综述

鸽乳成分及其合成调控机制的研究进展

  • 袁林 , 1 ,
  • 李万利 , 1, * ,
  • 靳玮 1 ,
  • 刘沛尧 2
展开
  • 1 河南省农业科学院畜牧研究所,河南省畜禽繁育与营养调控重点实验室,郑州 450002
  • 2 河南天成鸽业有限公司,平顶山 467000
* 李万利,副研究员,E-mail:

袁 林(1987—),男,河南开封人,助理研究员,博士,主要从事家禽营养调控研究。E-mail:

Office editor: 菅景颖

收稿日期: 2023-12-02

  网络出版日期: 2024-05-15

基金资助

河南省重大科技专项(221100110200)

Research Progress on Pigeon Milk Components and Synthesis Regulation Mechanisms

  • YUAN Lin , 1 ,
  • LI Wanli , 1, * ,
  • JIN Wei 1 ,
  • LIU Peiyao 2
Expand
  • 1 Henan Key Laboratory of Farm Animal Breeding and Nutritional Regulation, Institute of Animal Husbandry, Henan Academy of Agricultural Sciences, Zhengzhou 450002, China
  • 2 Henan Tiancheng Pigeon Industry Co., Ltd., Pingdingshan 467000, China
* associate professor, E-mail:

Received date: 2023-12-02

  Online published: 2024-05-15

摘要

鸽子是晚成鸟类,刚出生的乳鸽不能直接消化饲料,需要哺乳期的种鸽(包括雌鸽和雄鸽)摄入饲料并由嗉囊组织产生鸽乳来喂养。鸽乳中含有丰富的蛋白质、脂肪、矿物元素等营养物质及微生物群,其合成分泌受种鸽饲粮营养水平的影响以及催乳素、胰岛素信号通路的调控;此外,雷帕霉素靶蛋白复合物1(TORC1)、Janus激酶2(JAK2)-信号传导及转录激活蛋白5(STAT5)信号通路和微小RNA(miRNA)相关的内源竞争RNA(ceRNA)网络在鸽乳合成中也发挥了重要作用。本文主要综述了鸽乳的营养成分、微生物群组成以及鸽乳生产过程中激素、信号通路和嗉囊组织学变化,旨在为提高肉鸽产业效率提供参考。

本文引用格式

袁林 , 李万利 , 靳玮 , 刘沛尧 . 鸽乳成分及其合成调控机制的研究进展[J]. 动物营养学报, 2024 , 36(5) : 2743 -2751 . DOI: 10.12418/CJAN2024.236

Abstract

Pigeons are altricial birds, and newly born squab cannot digest feed directly. Breeding pigeons (including female pigeons and male pigeons) take feed and produce pigeon milk to feed squab. Pigeon milk contains abundant nutrients such as protein, fat, minerals, and microbial communities. Its synthesis and secretion are influenced by the nutrient levels of pigeon feed and regulated by prolactin and insulin signaling pathways. In addition, the target of rapamycin complex 1 (TORC1), Janus kinase 2 (JAK2)- signal transducer and activator of transcription 5 (STAT5) signaling pathways, and microRNA (miRNA) related competing endogenous RNA (ceRNA) networks also play important roles in pigeon milk synthesis. This article mainly reviewed the nutritional composition and microbial community of pigeon milk, as well as the changes in hormones, signaling pathways, and crop histology during pigeon milk production, which intended to provide theoretical reference for improving the efficiency of the pigeon industry.

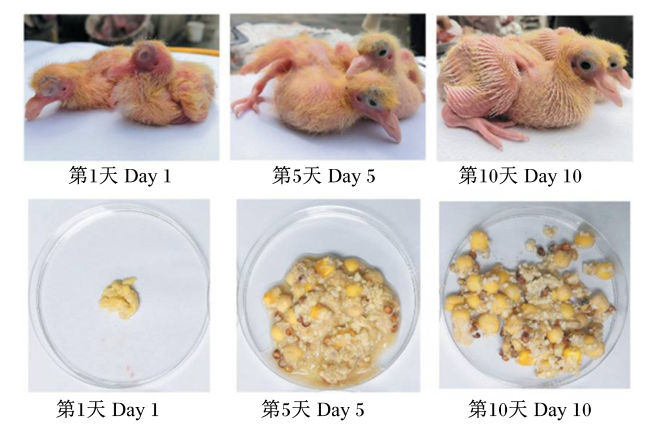
近年来,中国的肉鸽养殖规模逐年稳步增长,约占到全球份额的80%,鸽子已成为仅次于鸡、鸭、鹅之后的第四大家禽产品[1]。但是,由于美国、加拿大、英国和法国的乳鸽养殖量也在快速增长,中国乳鸽在全球份额的占比开始下降[2-3]。鸽子为晚成鸟类,刚孵化的乳鸽无法独立进食,种鸽会从嗉囊中逆呕鸽乳以口对口的方式喂养乳鸽,且雄鸽和雌鸽都产鸽乳[4-5]。对于大多数家禽来说,嗉囊起着临时储存食物的作用,但对于鸽子来说,嗉囊也是生产鸽乳的器官[6]。乳鸽7日龄内主要依靠鸽乳来获得营养,之后嗉囊中包含鸽乳与未消化完全的饲粮(图1),种鸽饲喂乳鸽直至28日龄左右出栏[7]。乳鸽在28日龄出栏时体重可达500 g左右,如此快速的生长速度可能与鸽乳中丰富的抗体和蛋白质、脂肪、碳水化合物、矿物质等营养物质有关[8]
图1 乳鸽和鸽乳在不同阶段(第1、5、10天)的形态

Fig.1 Morphology of squab and pigeon milk at different stages (days 1, 5 and 10)[7]

但是,由于这种特殊的饲养模式,鸽子的后代数量和存活率都较低,种鸽的饲粮营养和鸽乳质量是影响肉鸽生产效益的主要因素[9-10]。尽管希望通过研究生产人工鸽乳来提高肉鸽养殖的工业化水平,但关于鸽乳成分的信息较少,人工鸽乳的营养物质配比受限,其喂养乳鸽后生长较差甚至死亡,且大多数肉鸽养殖场仍面临饲养标准欠缺等问题,导致生产效率低下[11-12]。相反,1952年的一项研究发现,将鸽乳饲喂鸡后其生长速度提高了38%[13]。因此,测定鸽乳的营养成分,评估种鸽饲粮营养因素对鸽乳的影响,研究嗉囊合成分泌鸽乳的调控机制,对开发人工鸽乳,推动肉鸽产业发展至关重要。

1 鸽乳的营养成分

鸽乳是种鸽嗉囊分泌的白色或淡黄色伴有腐臭味的糊状物,因此又称嗉囊乳。鸽乳在乳鸽生长中起着不可或缺的作用,其主要由蛋白质和脂肪组成,同时含有一些矿物质、氨基酸及脂肪酸[14-16]。研究表明,鸽乳中含有脱落的嗉囊上皮细胞,这可能在乳鸽生长中发挥特殊作用[17]。此外,有研究发现鸽乳中含有丰富的免疫球蛋白A(immunoglobulin A,IgA)、免疫球蛋白G(immunoglobulin G,IgG)等母体抗体及酸性磷酸酶(acid phosphatase,ACP)、碱性磷酸酶(alkaline phosphatase,ALP),且种鸽的不同饲喂阶段和种鸽的饲粮组成会影响鸽乳成分[18-19]。这些信息可以为进一步研究人工鸽乳提供更准确的参考,以确保乳鸽获得足够的营养。

1.1 蛋白质和氨基酸

蛋白质是乳鸽生长发育所必需的,哺乳第3天(R3)内鸽乳中粗蛋白质(crude protein,CP)含量可达55%~60%(以干物质计),且酪蛋白含量占鸽乳总蛋白含量的90%[20]。与牛初乳类似,鸽乳中富含大量免疫球蛋白和丰富的生物活性酶[21],其中生物活性酶主要包括ACP、ALP、半乳糖苷酶、亮氨酸氨基肽酶和γ-谷氨酰转肽酶[19]。泌乳第1周的鸽乳富含免疫球蛋白和生长因子,从而有利于提高乳鸽的抗病性和存活率,因此乳鸽表现出高生长率和强抗病性[22-23]
鸽乳中的游离氨基酸含量约占总氮含量的17.0%,研究表明,鸽乳中氨基酸部分来源于血浆中的游离氨基酸,它们被嗉囊细胞的摄取可能决于各种转运蛋白的效率。嗉囊细胞内氨基酸代谢活跃,为鸽乳中的非必需氨基酸(nonessential amino acid,NEAA)提供了重要来源[16]。此外,尽管雄性和雌性种鸽所产鸽乳中的氨基酸组成没有表现出差异,但参与氨基酸运输及合成的基因随着性别的不同而有显著差异,这表明在研究鸽乳形成机制时,应考虑氨基酸的代谢[16]。哺乳期第1周的鸽乳中必需氨基酸(essential amino acid,EAA)与NEAA的比例约为59∶41,因此有利于乳鸽对氮的利用,从而促使其生长发育[22]。在R3时鸽乳中含量最高的2种氨基酸是谷氨酸(14.96%)和天冬氨酸(9.7%),但在R3后含量下降,而同一时期蛋氨酸的含量为1.07%,并在哺乳第4~6天(R4-6)降至0.77%,大分子蛋白质也有同样的趋势[24]。缬氨酸、丝氨酸、甘氨酸、丙氨酸、亮氨酸、苯丙氨酸、组氨酸和赖氨酸等氨基酸的含量在哺乳第6天(R6)显著降低[22]。综上所述,哺乳期鸽乳中的蛋白质含量随哺乳日龄增加而逐渐降低。养分含量在R3内最高,此时的氨基酸比例最适合乳鸽消化利用。因此,在人工鸽乳生产中,应确保足够水平的CP、适宜的氨基酸种类及比例和关键生物活性因子。

1.2 脂肪

种鸽在孵化期间嗉囊组织中脂肪油滴的含量逐渐增加,通过油红O染色试剂盒检测种鸽嗉囊组织中脂滴的密度变化,发现开始孵化时嗉囊组织中仅有很少的红色脂滴,而在孵化第17天(I17)和哺乳第1天(R1)时急剧增加,在哺乳第7天(R7)后减少,乳鸽出栏时,脂滴几乎消失[25]。经检测发现,在R3最高,为37.65%,在R7逐渐下降至7.43%[26]。也有研究结果显示,在R3时鸽乳中脂肪含量高达38.16%,在R4-6降至32.97%[24]。哺乳第10天(R10)后,种鸽鸽乳中脂质含量逐渐降低到配方饲粮中的粗脂肪含量水平,且雄鸽嗉囊组织中脂肪酸转移酶、脂肪酸结合蛋白5和酰基辅酶A结合蛋白基因表达量在I17时最高,而雌鸽嗉囊组织中脂肪酸转移酶基因表达量在I14时最高,脂肪酸结合蛋白5和酰基辅酶A结合蛋白基因表达量在孵化第14天(I14)和R7时达到峰值[27]。张晓昀等[22]研究表明,鸽乳中含有14种脂肪酸,不饱和脂肪酸和油酸含量分别占总脂肪含量的73%和43%;随着乳鸽年龄的增长,鸽乳中棕榈酸和亚油酸的含量略有增加,而棕榈油酸、硬脂酸和油酸的含量下降。此外,有研究发现,在种鸽的饲粮中添加6%大豆油可以改善乳鸽的肠道形态,提高代谢率[28]。因此,在人工鸽乳的制备过程中添加适量的大豆油可能对乳鸽的生长产生积极影响。

1.3 矿物元素

鸽乳中富含多种必需矿物元素,这些矿物元素有助于乳鸽多种重要功能的发挥,其中包括高水平的钙(0.81%~1.55%)、磷(0.85%~1.04%)和钠(0.54%~0.79%),且在哺乳期含量相对稳定,这对乳鸽细胞的正常功能和骨骼发育至关重要[29]。同时,鸽乳中还含有铁、铜、锌、硒等微量矿物元素,但其含量会随着乳鸽日龄的增大急剧下降[1]。不同研究中泌乳期鸽乳的钙含量差异较大,Sales等[30]研究表明,在R3时鸽乳中钙、钾、镁和钠含量分别为0.81%、0.62%、0.08%和0.54%;而曾秋凤等[24]研究显示,此期间鸽乳中钙、磷和钠含量分别为1.34%、1.04%和0.79%。不同研究所得结果的差异可能与鸽子品种、饲料配方或其他因素有关,需要进一步研究证实。

1.4 微生物群

微生物群与其宿主具有复杂的共生关系,在宿主生理的许多方面发挥着重要作用,包括营养、代谢和肠道稳态。微生物群的早期定植可能对宿主产生长期影响,例如提供促进宿主生长发育、增强免疫功能的必需代谢产物[31-32]。哺乳动物的新生儿可以通过胎盘、羊水、阴道和母乳获得母体微生物群,鸽乳与哺乳动物乳相似,含有丰富的微生物群,可调节后代的菌群丰度及代谢,并促进其免疫系统发育[33-35]。研究发现,嗉囊的微生物群多样性比小肠和直肠更为复杂,小肠和直肠主要菌群为乳杆菌属,而鸽乳中的优势菌属不仅包括乳杆菌属和双歧杆菌属,肠球菌属和韦氏菌属也有较高丰度[7,36]。早期断乳会导致乳鸽的生长速度较差,且断乳增加了乳鸽回肠放线菌门、拟杆菌门、蓝藻门和变形菌门的相对丰度,而厚壁菌门的相对丰度降低[37]。乳鸽R7内回肠微生物群的定植至关重要,大肠杆菌和乳酸杆菌定植有利于肉鸽的免疫功能[38]。近年来,一些研究试图开发功能性添加剂来改善乳鸽的生长性能,例如在种鸽饲粮中添加1%亚油酸增加了肠道丁酸弧菌等菌群的相对丰度[39];用2 mg蛋氨酸锌灌胃乳鸽增加了芽孢杆菌、乳酸杆菌、肠球菌和双歧杆菌的相对丰度,并改善了生长性能和免疫功能[40]。以上研究结果显示,乳鸽消化道中含有丰富的益生菌,表明在人工鸽乳中添加益生菌可能调节乳鸽的菌群结构及丰度,从而促进乳鸽的生长发育。

2 鸽乳合成中的组织学、激素及信号通路调控

2.1 嗉囊在泌乳过程中的组织学变化

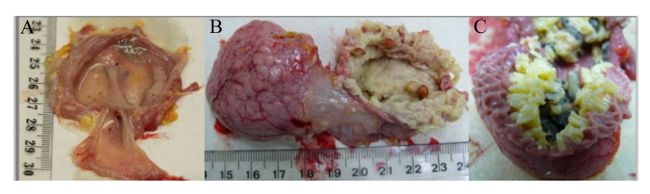
种鸽嗉囊的生理特征和激素水平的变化与鸽乳的合成直接相关[41]。嗉囊是位于鸟类食管中部和下部的一种膨胀结构。研究发现,非泌乳期嗉囊与泌乳期嗉囊的外观完全不同,在非泌乳期,鸽子嗉囊为一层薄薄的上皮,为角质化、分层、鳞状细胞结构(图2-A);相反,种鸽在泌乳期时,嗉囊壁增厚,大小是非泌乳期嗉囊的2倍多,重量和厚度分别是非泌乳期的4.2倍和3.5倍(图2-B);这些变化在R3时达到最高水平,也是嗉囊乳汁分泌量最大的阶段,打开泌乳期的嗉囊可观察到鸽乳为一层紧密堆积的离散米状颗粒,这些颗粒与组织的黏膜表面紧密相连(图2-C),而非泌乳期的嗉囊是未分化的,周围血管较少[6]。泌乳期种鸽的嗉囊由黏膜肌层、黏膜下层和固有层组成,黏膜肌层是一层厚厚的平滑肌纤维,黏膜下层含有疏松的血管和神经结缔组织,肌膜由带外膜的平滑肌纤维组成,而固有层有疏松的结缔组织,在食管近端约2/3的区域有许多大的导管腺[41]。腺体是黏液腺和浆液腺的混合物,具有囊状外观;腺细胞的特征是具有丰富的细胞质,嗜碱性较弱,颜色柔和,泡沫状[19]
图2 泌乳期和非泌乳期阶段种鸽的嗉囊形态

A:非泌乳期嗉囊 the non-lactating crop;B:泌乳期嗉囊 the lactating crop;C:泌乳期嗉囊内的鸽乳 pigeon milk in the lactating crop。

Fig.2 Crop morphology of breeding pigeons during lactating and non-lactating stages[6]

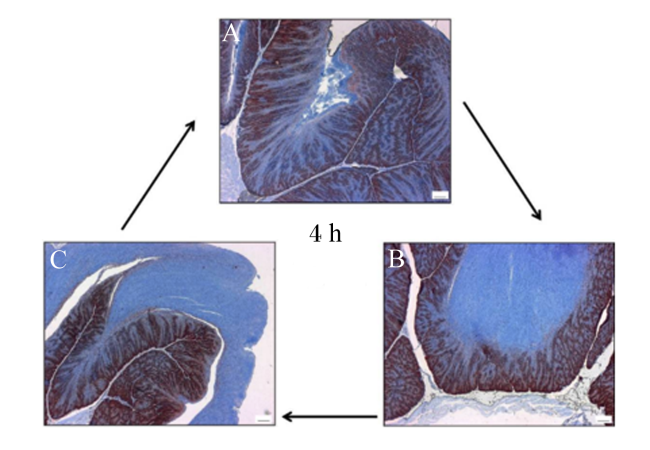
种鸽在哺乳期每4 h喂1次乳鸽,组织学结果显示,角质化上皮的生成和更新也是以4 h为1个周期(图3),乳鸽的鸽乳摄入量逐渐减少直至哺乳期结束,哺乳期持续了大约14 d[17]。通过分析种鸽嗉囊在静止状态和孵化时增殖细胞的免疫组织学结构,发现嗉囊合成鸽乳时黏膜上皮基底细胞和棘层深层细胞的分裂逐渐增加,细胞向上移动,导致黏膜上皮增厚并形成回状结构,固有层逐渐扩大、变窄,从而增加了嗉囊的表面积[6]。在泌乳期,嗉囊具有高度增殖性,脂质在棘层浅层细胞和表面扁平细胞中的合成和积累形成脂质囊泡,之后血液供应不足导致细胞变性,充满脂质的角质化上皮细胞脱落入嗉囊腔中形成嗉囊乳[25]
图3 鸽乳的生成以4 h为1个周期

A:哺乳后嗉囊准备再生鸽乳 the crop ready to regenerate pigeon milk after it has been regurgitated to the young;B:鸽乳(蓝色)合成期 pigeon milk (blue) synthesis period;C:鸽乳(蓝色)分泌期 pigeon milk (blue) secretion phase

Fig.3 Pigeon milk production is a four-hour cycle[17]

2.2 激素在鸽乳合成中的调控

激素与禽类的繁殖性能密切相关。研究表明,催乳素是促进脊椎动物生殖期孵化行为的主要激素,在鸽子的繁殖周期中同样发挥至关重要的作用,在求偶和早期孵化期间血浆中催乳素浓度较低,但在孵化第7~15天(I7-15)期间嗉囊快速增殖,催乳素浓度显著增加,并且在R4内一直保持上升,但随着嗉囊逐渐退化而下降[42]。也有研究显示,当嗉囊增殖、合成分泌鸽乳时催乳素浓度较高,而在孵化开始时催乳素的分泌并没有像母鸭、母鸡等其他禽类那样增加[43]。种鸽血清催乳素的这些变化可能与孵化过程中蛋或巢提供的触觉和视觉刺激、种鸽垂体中催乳素的表达量增加有关,也可能与钙结合蛋白膜联蛋白I有关[44]。有研究发现,鸽子的催乳素浓度在R1时达到峰值(雄性2.29 ng/mL,雌性1.54 ng/mL),嗉囊组织中催乳素受体mRNA丰度在I17时达到峰值[45]。催乳素至少通过2种机制发挥促进嗉囊增殖及泌乳作用,一是对嗉囊的直接影响,使嗉囊黏膜上皮对结缔组织生长因子的促有丝分裂作用敏感;二是增加该因子的产生,之后催乳素与该因子协同作用促进嗉囊黏膜细胞的增殖[46],同时,当催乳素与受体结合时,诱导了嗉囊脂质的合成,促进了嗉囊发育和鸽乳生产[47]。在哺乳动物中有关催乳素调控功能的研究较多,而对鸽子催乳素功能和机制的研究较少。
胰岛素也是一种多肽激素,在营养物质代谢的调节中发挥重要作用[48]。研究表明,胰岛素在繁殖阶段增加,非繁殖阶段减少,调节葡萄糖代谢,从而改善鸽乳合成并促进乳鸽生长。雄性鸽子嗉囊组织中胰岛素受体mRNA的丰度在孵化过程中及孵化后略有变化,而雌性鸽子的胰岛素受体mRNA丰度在R4时达到峰值,然后在哺乳后期急剧下降[45]。然而,也有研究显示,在哺乳阶段嗉囊的糖酵解增强,糖异生受到显著抑制,而血清胰岛素浓度没有差异,推测胰岛素可能没有参与调节嗉囊组织中的葡萄糖代谢[10]。胰岛素参与种鸽孵化哺乳的调节机制还需要进一步研究。

2.3 影响鸽乳合成的分子调控机制

尽管鸽乳合成与分泌的分子生物学机制研究还不清晰,但有研究表明,雷帕霉素靶蛋白复合物1(target of rapamycin complex 1,TORC1)信号通路与鸽乳分泌存在联系,TORC1是连接细胞代谢和生长的调节剂,TORC1磷酸化调节真核翻译起始因子4E(eukaryotic initiation factor 4E,eIF4E)结合蛋白1(eIF4E-binding protein,4EBP1)翻译,并决定核糖体蛋白S6(ribosomaiprotein S6,S6)的S6激酶1(S6 kinase 1,S6K1)依赖性磷酸化水平[49]。哺乳期种鸽的血清催乳素和胰岛素浓度显著高于非繁殖种鸽,S6K1、4EBP1和eIF4E蛋白的磷酸化水平在哺乳期均上调[41]。另一项研究表明,甲磺酸溴隐亭注射液显著抑制催乳素受体/Janus激酶2(Janus kinase 2,JAK2)/信号传导及转录激活蛋白5(signal transducer and activator of transcription 5,STAT5)途径,导致鸽乳中蛋白质和氨基酸含量降低,进而造成乳鸽生长受限[15]。以上研究表明,种鸽泌乳期间胰岛素通过激活雷帕霉素靶蛋白(target of rapamycin,TOR)信号通路,参与嗉囊乳蛋白的合成。
繁殖期母鸽大脑较非繁殖期时表现出催乳素诱导的STAT5高磷酸化水平,推测JAK2-STAT5信号通路也参与调节鸽的繁殖行为及鸽乳的合成[50-51]。研究表明,在种鸽泌乳期间,催乳素受体、JAK2和STAT5蛋白表达水平增加,而注射甲磺酸溴隐亭(一种催乳素特异性抑制剂)抑制了JAK2-STAT5信号通路,嗉囊相对重量、鸽乳中蛋白质含量和乳鸽体重降低,并且乳鸽的死亡率随着甲磺酸溴隐亭浓度的升高而增加[15];同时,该研究还发现,饲粮中添加0.3%的蛋氨酸可以提高种鸽血清催乳素浓度,上调催乳素受体、JAK2和STAT5的蛋白表达水平,并改善乳鸽的生长[15]。此外,饲粮中添加0.15%或0.45%亮氨酸可显著提高种鸽嗉囊组织中TOR、S6K1、S6、4EBP1和eIF4E的蛋白表达水平[20]。然而,亮氨酸是否直接与胰岛素或TORC1结合,还需要进一步研究。因此,不同的氨基酸可能通过不同的信号通路促进鸽乳的合成(亮氨酸激活TORC1信号通路,蛋氨酸激活JAK2-STAT5信号通路),而具体机制尚不清楚。
除了TORC1和JAK2-STAT5信号通路外,KEGG富集分析表明,AMP活化蛋白激酶(AMP-activated protein kinase,AMPK)信号通路也参与了鸽子的生长,在孵化期雄鸽嗉囊组织中AMPK活性高于乳鸽饲养期[52]。此外,微小RNA(microRNA,miRNA)相关的内源竞争RNA(competing endogenous RNA,ceRNA)调控网络在嗉囊组织生长和鸽乳合成中发挥重要作用,研究显示,miR-20b-5p、miR-146b-5p、miR-21-5p、miR-148a-3p、miR-10a-5p、miR26a-5p和miR-26b-5p是哺乳期嗉囊中的关键miRNA[53-54]
综上所述,催乳素和胰岛素等激素在鸽子孵化和哺乳初期发挥关键作用。鸽乳在功能上与哺乳动物乳相似,但合成及分泌组织不同,其调控机制可能不同。因此,调控鸽乳合成及分泌的分子机制需要进一步研究。

3 种鸽饲粮对鸽乳合成的影响

在鸽乳的合成过程中,缺乏营养物质供应将导致其产量和质量下降。鸽子通常主要食用不同种类的谷物,如玉米、小麦、高粱、豌豆以及作为添加剂补充的保健砂[55]。由于其独特的饲养特性,鸽子与其他禽类(如鸡和鸭)在饲粮摄入量、表观代谢能和养分代谢率方面存在显著差异[28]。种鸽的营养需求随着生产阶段的不同而变化,建议种鸽哺乳期饲粮CP水平为18.6%,表观代谢能为12.3 MJ/kg[11,23,28]
与其他家禽类似,鸽子的饲粮中也需要额外补充赖氨酸、蛋氨酸、精氨酸和亮氨酸等必需氨基酸。然而,由于缺乏种鸽氨基酸需要量的研究,在配制种鸽饲粮时氨基酸需要量经常参考鸡的饲养标准[56]。饲粮中的氨基酸对泌乳动物的生产性能有显著影响,添加必需氨基酸可以发挥最大生产潜力。研究表明,在哺乳期动物饲粮中添加亮氨酸、赖氨酸或蛋氨酸可以促进乳蛋白合成并增加乳汁分泌量[15,57-58]。亮氨酸对种鸽乳中蛋白质的合成和分泌有促进作用。研究表明,饲粮中添加0.45%亮氨酸可以有效促进鸽乳分泌,减少种鸽在孵化期和哺乳期的体重损失,提高乳鸽的平均日增重和胸肌百分比[20]。蛋氨酸也是哺乳动物的限制性氨基酸,其含量直接影响乳蛋白的合成。研究发现,在基础饲粮中添加0.30%蛋氨酸或0.30%蛋氨酸二肽显著增加了鸽乳的CP含量,并降低了种鸽在哺乳期的体重损失[15];同时,饲粮中添加蛋氨酸还改善了乳鸽的屠宰性能及肉品质,且蛋氨酸二肽的效果优于蛋氨酸[59]。但应注意的是,添加高剂量的氨基酸会对上述指标产生负面影响[20]。在种鸽饲粮中添加0.45%亮氨酸或0.30%蛋氨酸可显著提高鸽乳中CP、αs1酪蛋白、αs2酪蛋白和β-酪蛋白含量,改善乳鸽的生长及屠宰性能[20,59]。因此,应保证种鸽饲粮中含有足够的蛋白质、各类氨基酸以满足营养需求,减少哺乳期的体重损失,确保鸽乳的合成及分泌,从而改善乳鸽的生长发育。

4 小结与展望

鸽乳中含量丰富的蛋白质、脂肪、矿物元素等营养物元素及微生物群,是乳鸽健康高效生长的关键,应保证种鸽饲粮中含有足够的能量、蛋白质及各类氨基酸,以确保鸽乳质量。然而,鸽乳的合成和分泌过程以及参与调控的分子机制仍处于探索阶段。目前的研究认为,鸽乳的合成与哺乳动物乳类似,受催乳素和胰岛素激活的信号通路的调节,如JAK2-STAT5和TORC1信号通路。然而,与哺乳动物不同的是分泌鸽乳的嗉囊没有腺体。因此,鸽乳具体的合成分泌机制还需进一步研究和验证。今后的研究应利用蛋白质组学和代谢组学等现代生物分析技术来筛选鸽乳中关键的生物活性因子,并全面分析鸽乳的组成及含量,从而生产出满足需求的人工鸽乳,促进肉鸽产业的发展。
[1]
JI F, ZHANG S, AN Y, et al. Influence of dietary phosphorus concentrations on the performance of rearing pigeons (Columba livia),and bone properties of squabs[J]. Poultry Science, 2022, 101(4):101744.

[2]
ZHAO W H, LIU Q Y, JIANG H, et al. Monitoring the variations in physicochemical characteristics of squab meat during the braising cooking process[J]. Food Science & Nutrition, 2022, 10(8):2727-2735.

[3]
ZHONG C, TONG D Q, ZHANG Y R, et al. DL-methionine and DL-methionyl-DL-methionine increase intestinal development and activate Wnt/β-catenin signaling activity in domestic pigeons (Columba livia)[J]. Poultry Science, 2022, 101(3):101644.

[4]
MA H, NI A X, GE P Z, et al. Analysis of long non-coding RNAs and mRNAs associated with lactation in the crop of pigeons (Columba livia)[J]. Genes, 2020, 11(2):201.

[5]
MAHDY M A A. Comparative morphological study of the oropharyngeal floor of squabs and adult domestic pigeons (Columba livia domestica)[J]. Microscopy Research and Technique, 2021, 84(3):499-511.

DOI PMID

[6]
GILLESPIE M J, HARING V R, MCCOLL K A, et al. Histological and global gene expression analysis of the ‘lactating’ pigeon crop[J]. BMC Genomics, 2011, 12:452.

[7]
DING J M, LIAO N, ZHENG Y M, et al. The composition and function of pigeon milk microbiota transmitted from parent pigeons to squabs[J]. Frontiers in Microbiology, 2020, 11:1789.

DOI PMID

[8]
HORSEMAN N D, BUNTIN J D. Regulation of pigeon crop milk secretion and parental behaviors by prolactin[J]. Annual Review of Nutrition, 1995, 15:213-238.

[9]
WEN J S, ZHAO W Y, LI J K, et al. Dietary supplementation of chitosan oligosaccharide-Clostridium butyricum synbiotic relieved early-weaned stress by improving intestinal health on pigeon squabs (Columba livia)[J]. Frontiers in Immunology, 2022, 13:926162.

[10]
ZHU J G, XIE P, SONG C, et al. Differential expression of glucose metabolism-related genes and AMP-activated protein kinases in crop tissue of male and female pigeons (Columba livia domestica) during the incubation and chick-rearing periods[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(2):680-690.

[11]
常玲玲, 卜柱, 刘敏, 等. 不同生产模式对乳鸽生长性能、屠宰性能和肉品质的影响[J]. 中国家禽, 2022, 44(7):84-89.

CHANG L L, BU Z, LIU M, et al. Effects of different production modes on growth performance,slaughter performance and meat quality of squabs[J]. China Poultry, 2022, 44(7):84-89. (in Chinese)

[12]
赵武, 银慧慧, 曾雪颜, 等. 酯化鸽乳对人工哺育幼鸽生长性能和免疫功能的影响[J]. 饲料工业, 2022, 43(21):24-28.

ZHAO W, YIN H H, ZENG X Y, et al. Effects of esterified pigeon milk on growth performance and immune function of artificially fed young pigeons[J]. Feed Industry, 2022, 43(21):24-28. (in Chinese)

[13]
PACE D M, LANDOLT P A, MUSSEHL F E. The effect of pigeon crop-milk on growth in chickens[J]. Growth, 1952, 16(4):279-285.

PMID

[14]
SHAO Y X, MA W H, JI F, et al. Exploration of proteomics analysis of crop milk in pigeons (Columba livia) during the lactation period[J]. ACS Omega, 2021, 6(42):27726-27736.

[15]
CHEN M J, PAN N X, WANG X Q, et al. Methionine promotes crop milk protein synthesis through the JAK2-STAT5 signaling during lactation of domestic pigeons (Columba livia)[J]. Food & Function, 2020, 11(12):10786-10798.

[16]
XIE P, HAN M X, CHEN W X, et al. The profiling of amino acids in crop milk and plasma and mRNA abundance of amino acid transporters and enzymes related to amino acid synthesis in the crop tissue of male and female pigeons during incubation and chick-rearing periods[J]. Poultry Science, 2020, 99(3):1628-1642.

DOI PMID

[17]
GILLESPIE M J, CROWLEY T M, HARING V R, et al. Transcriptome analysis of pigeon milk production-role of cornification and triglyceride synthesis genes[J]. BMC Genomics, 2013, 14(1):169.

[18]
GOUDSWAARD J, VAN DER DONK J A, VAN DER GAAG I, et al. Peculiar IgA transfer in the pigeon from mother to squab[J]. Developmental & Comparative Immunology, 1979, 3:307-319.

[19]
BHARATHI L, SHENOY K B, HEGDE S N. Biochemical differences between crop tissue and crop milk of pigeons (Columba livia)[J]. Comparative Biochemistry and Physiology Part A:Physiology, 1997, 116(1):51-55.

[20]
XIE W Y, FU Z, PAN N X, et al. Leucine promotes the growth of squabs by increasing crop milk protein synthesis through the TOR signaling pathway in the domestic pigeon (Columba livia)[J]. Poultry Science, 2019, 98(11):5514-5524.

DOI PMID

[21]
常玲玲, 汤青萍, 刘佳佳, 等. 不同时期鸽乳营养水平及生理活性物质动态变化分析[J]. 中国畜牧兽医, 2021, 48(9):3215-3222.

DOI

CHANG L L, TANG Q P, LIU J J, et al. Analysis on dynamic changes of nutrient levels and physiological active substances in pigeon milk at different periods of squabs[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(9):3215-3222. (in Chinese)

[22]
张晓昀, 董信阳, 卜星晨, 等. 2-10日龄鸽乳中活性成分变化的规律研究[J]. 中国畜牧杂志, 2016, 52(11):39-42.

ZHANG X Y, DONG X Y, BU X C, et al. Bioactive constituents in pigeon milk during 2-10 days secretion[J]. Chinese Journal of Animal Science, 2016, 52(11):39-42. (in Chinese)

[23]
王明礼, 王猛, 李延森, 等. 不同粗蛋白水平人工鸽乳对乳鸽生长性能、血清抗氧化水平及肠道发育的影响[J]. 畜牧兽医学报, 2023, 54(4):1545-1554.

WANG M L, WANG M, LI Y S, et al. Effect of different crude protein levels of artificial crop milk on growth performance,serum antioxidant level and intestinal development of squabs[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(4):1545-1554. (in Chinese)

[24]
曾秋凤, 张彬, 张在伟. 自然鸽乳的常规营养分析[J]. 中国家禽, 2003, 25(21):12-14.

ZENG Q F, ZHANG B, ZHANG Z W. Routine nutritional analysis of natural pigeon milk[J]. China Poultry, 2003, 25(21):12-14. (in Chinese)

[25]
XIE P, ZHU J G, WANG L X, et al. Lipid accumulation and oxidative stress in the crop tissues of male and female pigeons during incubation and chick-rearing periods[J]. Poultry Science, 2023, 102(1):102289.

[26]
何志华, 丁家桐, 沈曼曼, 等. 乳鸽生长及嗉囊乳营养水平分析[J]. 国外畜牧学(猪与禽), 2012, 32(2):48-50.

HE Z H, DING J T, SHEN M M, et al. Analysis of the growth of squab and the nutritional level of crop milk[J]. Animal Science Abroad (Pigs and Poultry), 2012, 32(2):48-50. (in Chinese)

[27]
XIE P, WANG X P, BU Z, et al. Differential expression of fatty acid transporters and fatty acid synthesis-related genes in crop tissues of male and female pigeons (Columba livia domestica) during incubation and chick rearing[J]. British Poultry Science, 2017, 58(5):594-602.

DOI PMID

[28]
XIE P, WANG Y M, WANG C, et al. Effect of different fat sources in parental diets on growth performance, villus morphology,digestive enzymes and colorectal microbiota in pigeon squabs[J]. Archives of Animal Nutrition, 2013, 67(2):147-160.

[29]
孙晓珊, 林冬梅, 邵玉新, 等. 不同日龄鸽乳粗蛋白质和矿物元素含量变化规律的研究[J]. 中国畜牧兽医, 2022, 49(5):1697-1706.

DOI

SUN X S, LIN D M, SHAO Y X, et al. Study on the changes of crude protein and mineral elements in pigeon milk at different ages[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(5):1697-1706. (in Chinese)

[30]
SALES J, JANSSENS G P J. Methods to determine metabolizable energy and digestibility of feed ingredients in the domestic pigeon (Columba livia domestica)[J]. Poultry Science, 2003, 82(9):1457-1461.

DOI PMID

[31]
DEC M, STEPIEŃ-PYŚNIAK D, PUCHALSKI A, et al. Biodiversity of Ligilactobacillus salivarius strains from poultry and domestic pigeons[J]. Animals,2021,11(4):972.

[32]
DIETZ M W, SALLES J F, HSU B Y, et al. Prenatal transfer of gut bacteria in rock pigeon[J]. Microorganisms, 2019, 8(1):61.

[33]
JORGENSEN J M, YOUNG R, ASHORN P, et al. Associations of human milk oligosaccharides and bioactive proteins with infant morbidity and inflammation in Malawian mother-infant dyads[J]. Current Developments in Nutrition, 2021, 5(5):nzab072.

[34]
NOTARBARTOLO V, GIUFFRÈ M, MONTANTE C, et al. Composition of human breast milk microbiota and its role in children’s health[J]. Pediatric Gastroenterology,Hepatology & Nutrition, 2022, 25(3):194-210.

[35]
朱建国, 严璐, 刘双倩, 等. 鸽乳中产纤维素酶和脂肪酶微生物的分离鉴定[J]. 畜牧与兽医, 2021, 53(9):27-32.

ZHU J G, YAN L, LIU S Q, et al. Isolation and identification of cellulose-and lipase-producing microorganisms from pigeon milk[J]. Animal Husbandry & Veterinary Medicine, 2021, 53(9):27-32. (in Chinese)

[36]
JI F, ZHANG D Y, SHAO Y X, et al. Changes in the diversity and composition of gut microbiota in pigeon squabs infected with Trichomonas gallinae[J]. Scientific Reports, 2020, 10(1):19978.

[37]
XU Q Q, JIAN H F, ZHAO W Y, et al. Early weaning stress induces intestinal microbiota disturbance,mucosal barrier dysfunction and inflammation response activation in pigeon squabs[J]. Frontiers in Microbiology, 2022, 13:877866.

[38]
XU Q Q, ZHAO W Y, LI Y, et al. Intestinal immune development is accompanied by temporal deviation in microbiota composition of newly hatched pigeon squabs[J]. Microbiology Spectrum, 2022, 10(3):e0189221.

[39]
XU Q Q, WEN J S, WANG X M, et al. Maternal dietary linoleic acid altered intestinal barrier function in domestic pigeons (Columba livia)[J]. The British Journal of Nutrition, 2021, 126(7):1003-1016.

[40]
WANG Y, YI L, ZHAO M L, et al. Effects of zinc-methionine on growth performance,intestinal flora and immune function in pigeon squabs[J]. British Poultry Science, 2014, 55(3):403-408.

[41]
HU X C, GAO C Q, WANG X H, et al. Crop milk protein is synthesised following activation of the IRS1/Akt/TOR signalling pathway in the domestic pigeon (Columba livia)[J]. British Poultry Science, 2016, 57(6):855-862.

PMID

[42]
沈曼曼. 肉鸽繁殖期生殖激素变化规律及PRLR表达和多态性分析[D].硕士学位论文. 扬州: 扬州大学, 2012.

SHEN M M. Changes of reproductive hormone of Tix pigeon and analysis of expression and polymorphism of PRLR[D].Master’s Thesis. Yangzhou: Yangzhou University, 2012. (in Chinese)

[43]
ANGELIER F, WINGFIELD J C, TARTU S, et al. Does prolactin mediate parental and life-history decisions in response to environmental conditions in birds?A review[J]. Hormones and Behavior, 2016, 77:18-29.

[44]
WILKANOWSKA A, MAZUROWSKI A, MROCZKOWSKI S, et al. Prolactin (PRL) and prolactin receptor (PRLR) genes and their role in poultry production traits[J]. Folia Biologica-Krakow, 2014, 62(1):1-8.

PMID

[45]
XIE P, WAN X P, BU Z, et al. Changes in hormone profiles, growth factors, and mRNA expression of the related receptors in crop tissue,relative organ weight, and serum biochemical parameters in the domestic pigeon (Columba livia) during incubation and chick-rearing periods under artificial farming conditions[J]. Poultry Science, 2018, 97(6):2189-2202.

[46]
朱建国. 催乳素通过Hippo通路调控鸽嗉囊上皮增殖研究[D].硕士学位论文. 扬州: 扬州大学, 2023.

ZHU J G. Study of prolactin regulating pigeon crop epithelial proliferation through Hippo pathway[D].Master’s Thesis. Yangzhou: Yangzhou University, 2023. (in Chinese)

[47]
WAN X P, XIE P, BU Z, et al. Prolactin induces lipid synthesis of organ-cultured pigeon crops[J]. Poultry Science, 2019, 98(4):1842-1853.

DOI PMID

[48]
SWEAZEA K L, MCMURTRY J P, BRAUN E J. Inhibition of lipolysis does not affect insulin sensitivity to glucose uptake in the mourning dove[J]. Comparative Biochemistry and Physiology Part B:Biochemistry & Molecular Biology, 2006, 144(3):387-394.

[49]
CHEN M J, FU Z, JIANG S G, et al. Targeted disruption of TORC1 retards young squab growth by inhibiting the synthesis of crop milk protein in breeding pigeon (Columba livia)[J]. Poultry Science, 2020, 99(1):416-422.

DOI PMID

[50]
边世雄, 孙研研, 麻慧, 等. 鸽乳的组成及其生成调控机制的研究进展[J]. 畜牧兽医学报, 2020, 51(9):2048-2058.

BIAN S X, SUN Y Y, MA H, et al. Research progress on the composition and production regulatory mechanism of pigeon milk[J]. Acta Veterinaria et Zootechnica Sinica, 2020, 51(9):2048-2058. (in Chinese)

[51]
BUNTIN J D, BUNTIN L. Increased STAT5 signaling in the ring dove brain in response to prolactin administration and spontaneous elevations in prolactin during the breeding cycle[J]. General and Comparative Endocrinology, 2014, 200:1-9.

DOI PMID

[52]
DING H, LIN Y Y, ZHANG T, et al. Transcriptome analysis of differentially expressed mRNA related to pigeon muscle development[J]. Animals, 2021, 11(8):2311.

[53]
GE P Z, MA H, LI Y L, et al. Identification of microRNA-associated-ceRNA networks regulating crop milk production in pigeon (Columba livia)[J]. Genes, 2020, 12(1):39.

[54]
MA Y, FENG S Y, WANG X, et al. Exploration of exosomal microRNA expression profiles in pigeon 'Milk' during the lactation period[J]. BMC Genomics, 2018, 19(1):828.

DOI PMID

[55]
XIE P, JIANG X Y, BU Z, et al. Free choice feeding of whole grains in meat-type pigeons:1.Effect on performance,carcass traits and organ development[J]. British Poultry Science, 2016, 57(5):699-706.

[56]
RUAN D, FOUAD A M, ZHANG Y N, et al. Effects of dietary lysine on productivity,reproductive performance,protein and lipid metabolism-related gene expression in laying duck breeders[J]. Poultry Science, 2019, 98(11):5734-5745.

[57]
WANG C, LIU H Y, WANG Y M, et al. Effects of dietary supplementation of methionine and lysine on milk production and nitrogen utilization in dairy cows[J]. Journal of Dairy Science, 2010, 93(8):3661-3670.

DOI PMID

[58]
GAO H N, HU H, ZHENG N, et al. Leucine and histidine independently regulate milk protein synthesis in bovine mammary epithelial cells via mTOR signaling pathway[J]. Journal of Zhejiang University.Science.B, 2015, 16(6):560-572.

[59]
JIANG S G, PAN N X, CHEN M J, et al. Effects of dietary supplementation with DL-methionine and DL-methionyl-DL-methionine in breeding pigeons on the carcass characteristics,meat quality and antioxidant activity of squabs[J]. Antioxidants (Basel,Switzerland), 2019, 8(10):435.

文章导航

/