研究论文

白藜芦醇缓解脂多糖诱导的奶牛乳腺上皮细胞炎性损伤和细胞凋亡

  • 孙奕烁 ,
  • 马学虎 ,
  • 冀思同 ,
  • 户春丽 ,
  • 冯雪 ,
  • 曹佩佩 ,
  • 马燕芬 , *
展开
  • 宁夏大学动物科技学院,宁夏回族自治区反刍动物分子细胞育种重点实验室,银川 750021
* 马燕芬,研究员,博士生导师,E-mail:

孙奕烁(1998—),女,黑龙江哈尔滨人,硕士研究生,从事反刍动物营养与调控研究。E-mail:

Office editor: 武海龙

收稿日期: 2023-12-07

  网络出版日期: 2024-05-15

基金资助

宁夏自然科学基金项目(2022AAC02006)

宁夏大学研究生创新项目(CXXM202348)

宁夏回族自治区青年拔尖人才项目(2022)

Resveratrol Alleviated Lipopolysaccharide-Induced Inflammatory Injury and Apoptosis of Bovine Mammary Epithelial Cells

  • SUN Yishuo ,
  • MA Xuehu ,
  • JI Sitong ,
  • HU Chunli ,
  • FENG Xue ,
  • CAO Peipei ,
  • MA Yanfen , *
Expand
  • Ningxia Hui Autonomous Region Key Laboratory of Ruminant Molecular Cell Breeding, College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
* professor, E-mail:

Received date: 2023-12-07

  Online published: 2024-05-15

摘要

本试验旨在研究白藜芦醇(RES)对脂多糖(LPS)诱导的奶牛乳腺上皮细胞(bMECs)炎性损伤和细胞凋亡的影响。试验采用LPS诱导构建炎性损伤bMECs模型,采用单因子随机试验设计方法,构建对照组(CON组,用饥饿培养基孵育bMECs 24 h)、LPS组(用含10 μg/mL LPS配制的饥饿培养基孵育bMECs 24 h)、RES组(用含15 μmol/L RES配制的饥饿培养基孵育bMECs 24 h)和RES+LPS组(用含10 μg/mL LPS+15 μmol/L RES共同配制的饥饿培养基孵育bMECs 24 h)。结果表明:1)与0 μg/mL LPS相比,10 μg/mL的LPS处理bMECs 24 h显著或极显著降低细胞活力和bMECs中谷胱甘肽过氧化物酶(GSH-Px)、超氧化物歧化酶(SOD)、过氧化物酶体增殖物激活受体-γ共激活因子-1α(PGC-1α)、核呼吸因子2(Nrf2)和线粒体转录因子A(TFAM)的mRNA相对表达水平(P<0.05或P<0.01),极显著提高了bMECs中白细胞介素-6(IL-6)、白细胞介素-8(IL-8)和丙二醛(MDA)的mRNA相对表达水平(P<0.01),表明bMECs炎性损伤模型构建成功。RES缓解炎性损伤bMECs的适宜浓度为15 μmol/L。2)与CON组相比,LPS组的bMECs中IL-8、白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)、MDA、B细胞淋巴瘤-2相关X蛋白(Bax)的mRNA相对表达水平显著或极显著提高(P<0.05或P<0.01),PGC-1αTFAM和B细胞淋巴瘤-2(Bcl-2)的mRNA相对表达水平显著或极显著降低(P<0.05或P<0.01);与LPS组相比,RES+LPS组的bMECs中IL-8、TNF-αMDABax的mRNA相对表达水平显著或极显著降低(P<0.05或P<0.01),PGC-1αTFAMBcl-2的mRNA相对表达水平极显著升高(P<0.01)。由此可见,外源添加RES可起到缓解LPS诱导的bMECs线粒体损伤、氧化应激、炎性反应和细胞凋亡,为在奶牛生产中推广应用RES奠定了技术支撑。

本文引用格式

孙奕烁 , 马学虎 , 冀思同 , 户春丽 , 冯雪 , 曹佩佩 , 马燕芬 . 白藜芦醇缓解脂多糖诱导的奶牛乳腺上皮细胞炎性损伤和细胞凋亡[J]. 动物营养学报, 2024 , 36(5) : 3262 -3273 . DOI: 10.12418/CJAN2024.279

Abstract

This experiment was conducted to study the effects of resveratrol (RES) on lipopolysaccharide (LPS)-induced inflammatory injury and apoptosis of bovine mammary epithelial cells (bMECs). The inflammatory injury bMECs model induced by LPS was constructed, using a single factor randomized trial design method, set up the control group (CON group, incubated bMECs with starvation medium for 24 hours), LPS group (incubated bMECs with starvation medium contained 10 μg/mL LPS for 24 hours), RES group (incubated bMECs with starvation medium contained 15 μmol/L RES for 24 hours) and RES+LPS group (incubated bMECs with starvation medium contained 10 μg/mL LPS+15 μmol/L RES for 24 hours). The results showed as follows: 1) compared with 0 μg/mL LPS, the 10 μg/mL LPS treated bMECs for 24 hours significantly decreased the cell activity and mRNA relative expression levels of glutathione peroxidase (GSH-Px), superoxide dismutase (SOD) peroxisome proliferator-activated receptor-gamma coactivator-1α (PGC-1α), nuclear respiratory factor 2 (Nrf2) and mitochondrial transcription factor A (TFAM) in bMECs (P<0.05 or P<0.01), significantly increased the mRNA relative expression levels of interleukin-6 (IL-6), interleukin-8 (IL-8) and malondialdehyde (MDA) in bMECs (P<0.05 or P<0.01), which showed the inflammatory damage model of bMECs was successfully constructed. The optimal concentration of bMECs for RES alleviated inflammatory injury was 15 μmol/L. 2) Compared with CON group, the mRNA relative expression levels of IL-8, interleukin-1β (IL-1β), tumor necrosis factor-α (TNF-α), MDA and B-cell lymphoma-2 associated X-protein (Bax) in bMECs of LPS group were significantly increased (P<0.05 or P<0.01), and the mRNA relative expression levels of PGC-1α, TFAM and B-cell lymphoma-2 (Bcl-2) were significantly decreased (P<0.05 or P<0.01); compared with LPS group, the mRNA relative expression levels of IL-8, TNF-α, MDA and Bax in bMECs of RES+LPS group were significantly decreased (P<0.05 or P<0.01), and the mRNA relative expression levels of PGC-1α, TFAM and Bcl-2 were significantly increased (P<0.01). In conclusion, the exogenous addition of RES can alleviate mitochondrial damage, oxidative stress, inflammatory response and cell apoptosis induced by LPS-induced bMECs, laying a technical support for the promotion and application of RES in dairy cow production.

乳腺炎是奶牛最为常见的感染性疾病之一,可显著降低乳腺健康和乳品产量[1],显著增加奶牛淘汰率,给全球奶牛养殖业造成严重的经济损失[2]。虽然奶牛乳腺炎的诊断和防控取得了重大的进展,但在全球仍普遍存在大量感染现象[1,3-4]。奶牛乳腺炎发生的主要原因是多种病原微生物入侵乳腺组织,释放大量致病性物质进入乳腺而导致;其次是奶牛产生自由基和清除自由基的能力失衡,能量需求和耗氧量需求增大,活性氧(reactive oxygen species,ROS)生成增多,降低了奶牛机体的抗氧化能力,引起机体脂质过氧化,导致奶牛处于氧化应激状态,氧化应激能够加强中性粒细胞和乳腺上皮细胞的黏附作用,从而加重炎性反应,进一步加剧奶牛乳腺炎[3,5]。脂多糖(lipopolysaccharide,LPS)是一种细菌内毒素,是革兰氏阴性细菌细胞壁外壁的一部分,可诱导乳腺上皮细胞产生炎性反应,释放促炎介质和ROS,并被广泛用于建立炎性反应模型[6]。因此,调控氧化应激和炎性应激降低奶牛乳腺炎发病是实现奶牛健康养殖的关键步骤。
白藜芦醇(resveratrol,RES)也称为3,4',5-三羟甲基二苯乙烯,是一种非黄酮类多酚有机化合物,于1976年首次在植物中被发现[7]。既往的试验研究报道,RES已在至少72种植物中被发现,并且该种植物保护素具有多种生物活性作用,包括抗炎、抗氧化、保护心血管、抗衰老、抗癌等作用[8-9]。RES不仅能有效清除ROS,还能通过降低ROS和丙二醛(malondialdehyde,MDA)的产生以及提高超氧化物歧化酶(superoxide dismutase,SOD)和谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)的活性来减轻氧化应激[8]。线粒体是细胞的发电厂,是参与哺乳动物细胞中ATP合成的主要细胞器,负责维持氧化磷酸化,对于预防氧化损伤和细胞死亡起到至关重要的作用,因此被称为细胞信号通路的十字路口[10]。RES还可通过调控沉寂信息调节因子1(silent information regulator 1,SIRT1)/单磷酸腺苷活化蛋白激酶(adenosine 5'-monophosphate-activated protein kinase,AMPK)通路,诱导下游过氧化物酶体增殖物激活受体-γ共激活因子-1α(peroxisome proliferator-activated receptor-gamma coactivator-1α,PGC-1α)、核呼吸因子1(nuclear respiratory factor 1,Nrf1)、核呼吸因子2(nuclear respiratory factor 2,Nrf2)和线粒体转录因子A(mitochondrial transcription factor A,TFAM)的表达而增强线粒体生物活性,从而提高线粒体的抗氧化能力[11]。研究表明,RES可以降低氧化因子、抑制炎性因子,从而缓解鱼藤酮诱导的小鼠小胶质瘤细胞氧化应激和炎症[12]。然而,RES是如何保护奶牛乳腺上皮细胞(bovine mammary epithelial cells,bMECs)免受炎性损伤中的作用研究仍不清楚。因此,本研究选用LPS诱导的bMECs为炎症模型,探讨RES作为抗氧化剂对LPS诱导的bMECs损伤的保护作用。

1 材料与方法

1.1 主要试剂

DMEM高糖培养基(SH30022.01)购自美国Hyclone公司;胎牛血清(C04001)购自美国BI公司;青霉素-链霉素-两性霉素B混合液(735094)、RES购自金克隆(北京)生物技术有限公司;Albumin Bovine V牛血清白蛋白(735094)购自上海罗氏制药有限公司;0.25%胰蛋白酶(SH30042.01B)、细胞增殖及毒性检测试剂盒(MA0218)购自大连美仑生物技术有限公司;磷酸盐缓冲液(phosphate buffered saline,PBS)(SH30256.01B)购自北京索莱宝科技有限公司;多聚甲醛(P6148)购自西格玛奥德里奇(上海)贸易有限公司;Trition X-100溶液(Top1141)购自北京博奥拓达科技有限公司;QuickBlock免疫染色封闭液(P0260)、V-FITC细胞凋亡检测试剂盒(C1062L)、活性氧检测试剂盒(S0033S)、线粒体膜电位检测试剂盒(C2006)均购自上海碧云天生物技术有限公司。PrimeScriptTM RT reagent Kit with gDNA Eraser反转录试剂盒购、TRIzol自宝生物工程(大连)有限公司。

1.2 试验方法

1.2.1 细胞培养和试验设计

本研究中使用的bMECs(永生化MAC-T细胞系)由本课题组提供,完全培养基由90 mL的DMEM加含10 mL胎牛血清组成,饥饿培养基为单一的DMEM。当bMECs达到80%~90%汇合时,用细胞角蛋白18的表达作为标记物,用免疫荧光染色来鉴定bMECs的纯度[13]。所有培养条件均在37 ℃含5%的二氧化碳(CO2)浓度的培养箱中孵育。将bMECs接种到完全培养基6孔培养板中,待细胞生长至70%~80%后,将细胞分为对照组(CON组,用饥饿培养基孵育bMECs 24 h)、LPS组(用含10 μg/mL LPS配制的饥饿培养基孵育bMECs 24 h[14])、RES组(用含15 μmol/L RES配制的饥饿培养基孵育bMECs 24 h)和RES+LPS组(用含10 μg/mL LPS+15 μmol/L RES共同配制的饥饿培养基孵育bMECs 24 h)。

1.2.2 细胞活力检测

采用细胞计数试剂盒8(cell counting kit 8,CCK8)检测bMECs活力。将bMECs接种到96孔板中,待细胞密度生长至70%~80%后,用不同浓度的LPS(0、5、10、20、50、100和200 μg/mL)处理细胞24 h,建立细胞损伤模型。处理细胞后向每个孔中加入10 μL的CCK8。将96孔板放在37 ℃细胞培养箱中孵育1 h后,置于酶标仪内在450 nm波长处测量每个孔的吸光度(OD)值。

1.2.3 ROS含量测定

采用二氯二氢荧光素二乙酸盐(dichlorodihydrofluorescein diacetate,DCFH-DA)荧光探针测定bMECs内的ROS含量。先将bMECs接种在6孔培养板中,待细胞密度生长至70%~80%后,观察细胞状态,吸出细胞培养基,并向每个孔中加入10 μmol的DCFH-DA;随后将细胞在37 ℃、5% CO2培养箱中孵育20 min后,用PBS洗涤3次,使用荧光倒置显微镜随机选择每个样品的微观视野进行观察,并重复观察3次。最后用ImageJ软件进行图像分析。

1.2.4 线粒体膜电位(mitochondrial membrane potential,MMP)测定

使用JC-1线粒体膜电位检测试剂盒检测不同bMECs的线粒体膜电位。首先将bMECs接种于6孔细胞培养板中,待细胞密度生长至70%~80%后,观察细胞状态,吸出细胞培养基,并向每个孔中加入等体积的JC-1染色溶液(5 μg/mL)在37 ℃、5% CO2的培养箱中孵育20 min后,用PBS冲洗2次以除去荧光探针后,使用荧光倒置显微镜观察荧光强度。JC-1染色结果显示为红色/绿色荧光的相对比值,试验重复3次,最后用ImageJ软件进行图像分析。

1.2.5 细胞凋亡测定

使用V-FITC细胞凋亡试剂盒检测bMECs凋亡。将bMECs接种于6孔培养板中,待细胞密度生长至70%~80%后,吸出原有培养基,加入PBS清洗后吸出PBS;室温条件加入胰酶消化,消化完成后加入含血清培养基停止消化,收集到离心管内,94×g离心5 min,弃上清加PBS重悬后再次94×g离心5 min,吸出上清;然后加入195 μL V-FITC细胞凋亡试剂盒结合液重悬细胞,加入5 μL V-FITC细胞凋亡试剂盒结合液、10 μL碘化丙啶染色液,混匀后室温避光10~20 min置于冰浴中,孵育期间轻轻重悬2次以改善染色效果;之后进行流式细胞仪上机检测,最后用FlowJo软件分析整理数据。

1.2.6 炎性因子含量检测

将bMECs接种于6孔培养板中,待细胞密度生长至70%~80%后,收集细胞上清液,采用酶联免疫吸附测定(ELISA)试剂盒检测bMECs中炎性因子白细胞介素-6(IL-6)和白细胞介素-8(IL-8)含量。

1.2.7 RNA提取和荧光定量PCR(qPCR)分析

使用Trizol法提取bMECs中总RNA,要求RNA的纯度达到OD260/280≥1.8,纯度达到OD260/230≥1.0,并通过琼脂糖凝胶电泳检查细胞中RNA降解和污染。通过PrimeScriptTM RT reagent Kit with gDNA Eraser反转录试剂盒将获得的总RNA反转录成cDNA。qPCR反应程序如下:95 ℃、3 min预变性,95 ℃、10 s变性,60 ℃、20 s退火温度,72 ℃、30 s延伸,循环40次。使用Premier 5.0设计所有qPCR引物(表1),采用β-肌动蛋白(β-actin)作为内参,每个测定设置3个重复。mRNA的相对表达水平使用2-ΔΔCt法进行计算。
表1 引物信息

Table 1 Primer information

基因
Genes
GenBank登录号
GenBank accession number
序列
Sequences
产物长度
Product
length/bp
温度
Temperature/
核呼吸因子2
Nrf2
AB162435.1 F:GACCCAGTCCAACCTTTGTCG
R:GCTTTTGCCCGTAGCTCATC
185 60
过氧化物酶体增殖物激活受体-γ
共激活因子-1α
PGC-1α
XM_059887363.1 F:TGGACACGAGGAAAGGAAGGC
R:ACGGGTCGGAATCTGTGGAAG
200 60
肿瘤坏死因子-α
TNF-α
XM_005223596.5 F:CTCACATACCCTGCCACAA
R:CAACCAGGAGGAAGGAGAA
191 60
线粒体转录因子A
TFAM
NM_001034016.2 F:GCAGACTGGCAGGTATACAA
R:GCGAGGTCTTTTCGGTTT
165 60
白细胞介素-6
IL-6
NM_173923.2 F:CTGGGTTCAATCAGGCGAT
R:CAGCAGGTCAGTGTTTGTGG
206 60
白细胞介素-8
IL-8
JN559767.1 F:ACACATTCCACACCTTTCCAC
R:ACCTTCTGCACCCACTTTTC
149 60
白细胞介素-1β
IL-1β
NM_174093.1 F:CAACCGTACCTGAACCC
R:GACACCACCTGCCTGAA
193 60
β-肌动蛋白
β-actin
HM768303.1 F:GCTAACAGTCCGCCTAGAA
R:GCAGTCATCACCATCGGCAATGAG
406 60
B细胞淋巴瘤-2相关X蛋白
Bax
NM_173894.1 F:GAGATGAATTGGACAGTAACA
R:TTGAAGTTGCCGTCAGAA
118 60
B细胞淋巴瘤-2
Bcl-2
NM_001166486.1 F:ATGACCGAGTACCTGAAC
R:CATACAGCTCCACAAAGG
605 60
丙二醛
MDA
NM_001046269.2 F:TCGGCTGGGCTAGGATGTT
R:AGAGCGTTCTCAGACGATGGA
115 60
谷胱甘肽过氧化物酶
GSH-Px
NM_174076.3 F:TGCGAGGTGAATGGCGAGAA
R:GGGACCAGGTGATGAACTTAGGG
118 60
超氧化物歧化酶
SOD
AY971580.1 F:GACAAATCTGAGCCCTAA
R:AAGCAGCAATCTGTAAGC
185 60

1.3 数据处理

使用GraphPad Prism 9软件进行组间差异显著性检验,P>0.05表示差异不显著,P<0.05表示差异显著,P<0.01表示差异极显著,利用Image J软件对细胞荧光图进行量化分析,数据以平均值±标准误表示。

2 结果与分析

2.1 诱导bMECs产生炎性损伤的LPS浓度筛选

采用4',6-二脒基-2-苯基吲哚(DAPI)染色和花青素荧光染料Cy3标记的细胞角蛋白18鉴定本试验培养出的细胞是否是bMECs。从图1结果可知,CK-18呈阳性染色,证明所培养的细胞确实是bMECs,可用于后续试验研究。
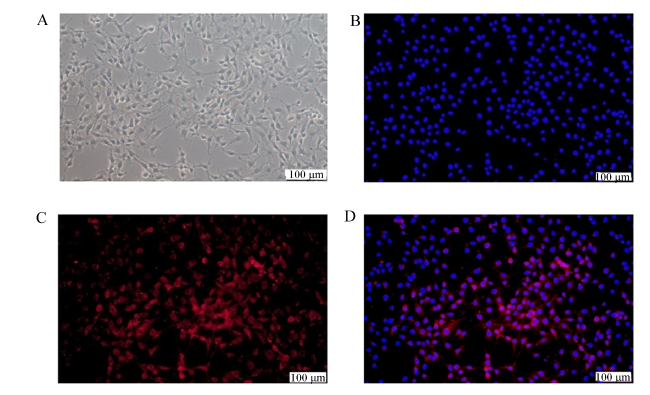
图1 bMECs鉴定

A:正常视野 normal field of vision;B:DAPI染色 DAPI staining;C:用Cy3标记的细胞角蛋白18进行免疫荧光 immunofluorescence using Cy3 labeled cytokeratin 18;D:B和C的合并图 merge diagram of B and C。

Fig.1 Identification of bMECs

为了筛选出LPS诱导bMECs产生炎性损伤的适宜浓度,首先将bMECs在不同浓度(0、5、10、20、50、100和200 μg/mL)的LPS下孵育24 h,采用CCK-8试剂盒测定bMECs活力。从图2-A结果可知,与0 μg/mL LPS时相比,10、50、100和200 μg/mL LPS时细胞活力极显著下降(P<0.01),根据用量以及试验效果,选择10 μg/mL作为LPS的适宜浓度,处理时间为24 h。
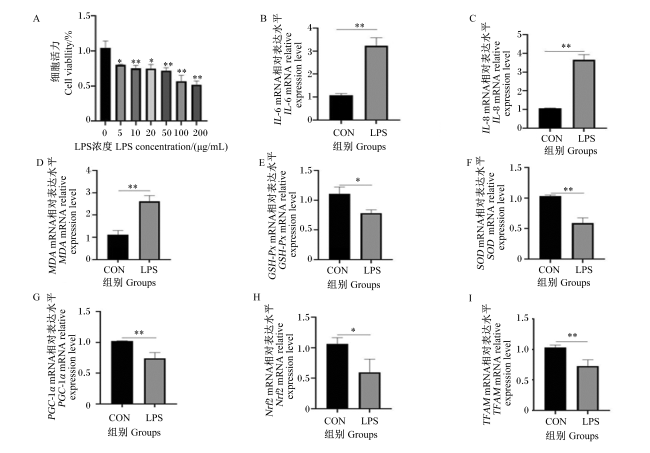
图2 LPS诱导bMECs产生炎性损伤的浓度筛选及验证

*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。下图同。

Fig.2 Concentration screening and verification of LPS-induced inflammatory injury in bMECs

* mean significant difference (P<0.05), and ** mean extreme significant difference (P<0.01). The same as below.

为验证所选LPS的浓度,用10 μg/mL的LPS处理bMECs 24 h,采用qPCR测定bMECs中炎性因子、氧化因子、抗氧化酶和线粒体相关基因的mRNA表达。从图2-B~图2-I结果可知,与CON组相比,10 μg/mL的LPS可极显著提高bMECs中炎性因子IL-6和IL-8以及氧化因子MDA的mRNA相对表达水平(P<0.01),可显著或极显著降低抗氧化酶GSH-PxSOD以及线粒体相关基因PGC-1αNrf2和TFAM的mRNA相对表达水平(P<0.05或P<0.01)。这表明10 μg/mL的LPS诱导的bMECs炎性损伤模型构建成功。

2.2 RES缓解炎性损伤bMECs适宜浓度筛选

采用15、25和50 μmol/L的RES预处理bMECs 24 h,再用10 μg/mL的LPS孵育bMECs 24 h,采用qPCR测定炎性因子和氧化因子mRNA表达。从图3结果可知,15、25和50 μmol/L的RES均可显著或极显著降低炎性因子IL-6、IL-8和氧化因子MDA的mRNA相对表达水平(P<0.05或P<0.01),考虑到RES使用剂量及其对bMECs形态影响,本试验选用15 μmol/L作为RES缓解炎性损伤bMECs的适宜浓度。
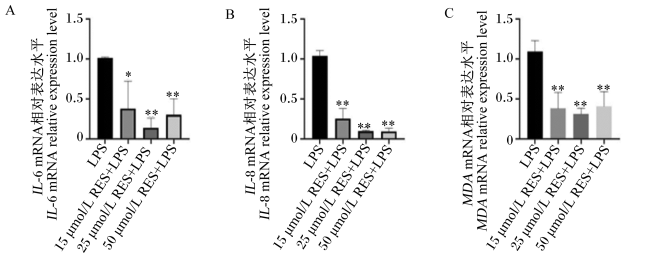
图3 RES缓解炎性损伤bMECs适宜浓度筛选

LPS:脂多糖 lipopolysaccharide;RES:白藜芦醇 resveratrol。

Fig.3 Screening of optimal concentration of bMECs alleviated by RES

2.3 RES缓解炎性损伤bMECs氧化应激

为了探究RES缓解LPS引起的bMECs氧化应激与炎性损伤的作用,用RES(15 μmol/L)、LPS(10 μg/mL)和RES(15 μmol/L)+LPS(10 μg/mL)分别处理bMECs,采用荧光染色和qPCR分别测定bMECs中氧化因子ROS荧光强度和MDA的mRNA表达。从图4结果可知,与CON组相比,LPS组的bMECs中ROS荧光强度极显著提高(P<0.01);与LPS组相比,RES+LPS组的bMECs中ROS荧光强度极显著降低(P<0.01)。MDA是脂质氧化的最终分解产物,其mRNA相对表达水平反映了LPS刺激bMECs中氧化应激的强度。本试验中,与CON组相比,LPS组的bMECs中MDA的mRNA相对表达水平极显著增加(P<0.01);与LPS组相比,RES+LPS组的bMECs中MDA的mRNA相对表达水平显著降低(P<0.05)。以上结果表明,RES可缓解LPS诱导的bMECs氧化应激。
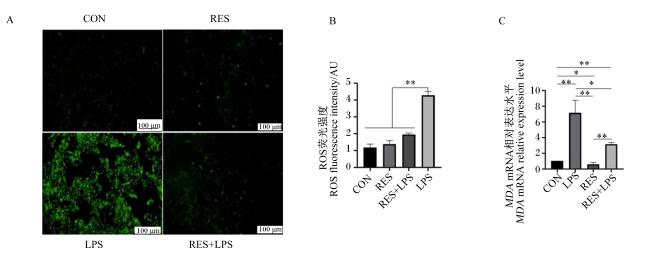
图4 RES缓解炎性损伤bMECs氧化应激

CON:CON组 CON group;RES:RES组 RES group;RES+LPS:RES+LPS组 RES+LPS group;LPS:LPS组 LPS group。下图同 the same as below。

Fig.4 Resveratrol alleviated oxidative stress in bMECs with inflammatory injury

2.4 RES缓解炎性损伤bMECs线粒体损伤

线粒体作为“细胞能量站”参与了各种细胞功能调控,包括细胞信号传导、代谢、自噬、衰老和肿瘤发生等都与线粒体的质量和活性有关。为了确定出RES是否能够缓解炎性损伤bMECs的线粒体功能,本试验采用JC-1染色观察线粒体膜电位变化,采用qPCR测定线粒体相关基因及其下游基因的mRNA表达。从图5结果可知,与CON组相比,LPS组的bMECs中线粒体膜电位和PGC-1α的mRNA相对表达水平显著或极显著降低(P<0.05或P<0.01),TFAM的mRNA相对表达水平极显著降低(P<0.01),说明LPS可导致bMECs线粒体产生损伤;与LPS组相比,RES+LPS组的bMECs中线粒体膜电位和PGC-1α的mRNA相对表达水平极显著升高(P<0.01),TFAM的mRNA相对表达水平极显著升高(P<0.01),说明RES处理对LPS诱导的bMECs线粒体损伤有缓解作用。
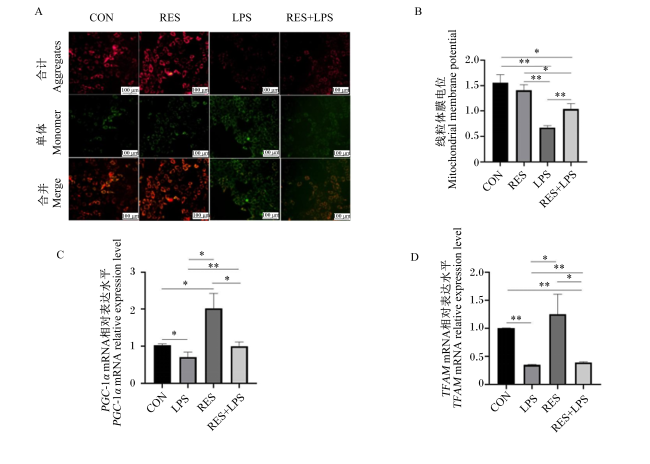
图5 RES缓解炎性损伤bMECs的线粒体功能

Fig.5 RES alleviated mitochondrial function in bMECs after inflammatory injury

2.5 RES缓解bMECs炎性反应

为了确定RES对LPS诱导的bMECs炎性反应的抑制作用,本试验采用qPCR和ELISA法分别检测了促炎因子的mRNA表达。从图6结果可知,与CON组相比,LPS组的bMECs中IL-8、IL-1βTNF-α的mRNA相对表达水平显著或极显著提高(P<0.05或P<0.01);与LPS组相比,RES+LPS组的bMECs中IL-8和TNF-α的mRNA相对表达水平显著或极显著降低(P<0.05或P<0.01)。采用ELISA法进一步检测了促炎因子含量,结果发现,与CON组相比,LPS组的bMECs中IL-6含量显著提高(P<0.05);与LPS组相比,RES+LPS组的bMECs中IL-6含量显著降低(P<0.05),该结果与qPCR结果一致。以上结果说明RES具有缓解bMECs炎性反应的作用。各组之间bMECs中促炎因子IL-8含量无显著差异(P>0.05)。
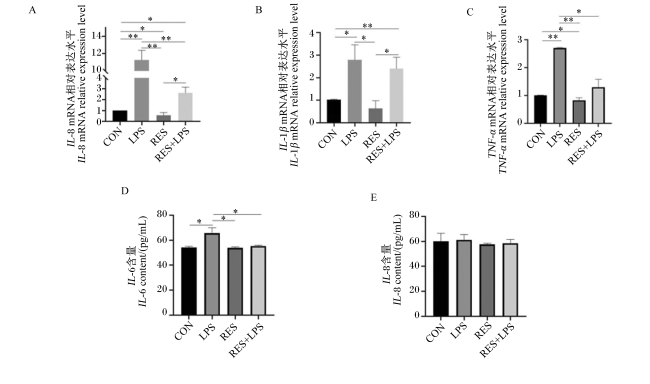
图6 RES缓解bMECs炎性反应

Fig.6 RES alleviated inflammatory response of bMECs

2.6 RES缓解炎性损伤bMECs凋亡

为了确定出RES对炎性损伤bMECs凋亡的作用,本试验采用流式细胞术和qPCR 2种方法检测了bMECs的凋亡率。从图6结果可知,流式细胞术结果发现,与CON组相比,LPS组的bMECs凋亡极显著增加(P<0.01);与LPS组相比,RES+LPS组的bMECs凋亡极显著降低(P<0.01)。qPCR结果发现,与CON组相比,LPS组的促凋亡因子Bax的mRNA相对表达水平极显著提高(P<0.01),抗凋亡因子Bcl-2的mRNA相对表达水平极显著降低(P<0.01);与LPS组相比,RES+LPS组的促凋亡因子Bax的mRNA相对表达水平极显著降低(P<0.01),抗凋亡因子Bcl-2的mRNA相对表达水平极显著提高(P<0.01)。这进一步说明了RES处理对LPS诱导的bMECs凋亡有缓解作用。
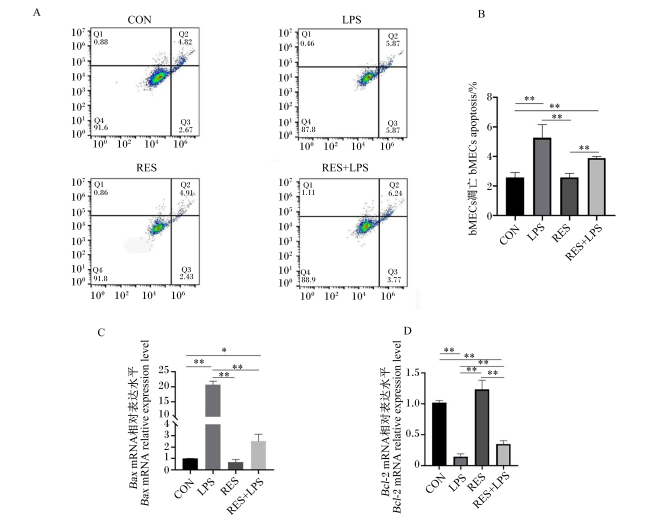
图7 RES缓解炎性损伤bMECs凋亡

Fig.6 RES alleviated inflammatory injury of bMECs apoptosis

3 讨论

奶牛乳腺健康是奶牛发挥正常泌乳功能的重要保障。奶牛乳腺炎是全球最常见和成本最高的奶牛疾病之一[15],主要由病原微生物入侵乳腺内环境引起,能直接诱导乳腺组织产生炎性损伤,降低血乳屏障密闭性,并抑制乳腺上皮细胞的泌乳功能,进而降低产奶量及乳品质量[16-18]。LPS是大肠杆菌致病的主要毒力因子,它会导致乳腺内毒素休克,并诱导bMECs发生炎性损伤,主要表现为奶牛乳腺中IL-1βIL-8和TNF-α的高表达,同时也会引起奶牛产生氧化应激,加快乳腺炎的发生和发展,严重时会导致细胞凋亡[19-20]。因此,阻断LPS的毒性可能有助于疾病的缓解,故本试验用抗氧化和抗炎作用的RES探究其是否可以缓解LPS诱发的氧化应激和炎性反应。
本试验采用LPS作为刺激源,发现10 μg/mL的LPS处理bMECs 24 h能够显著诱导bMECs产生炎性损伤和凋亡,而当LPS浓度过高会导致bMECs产生不可逆转的损伤和凋亡。因此,本试验选择用10 μg/mL的LPS处理bMECs 24 h构建炎性损伤bMECs的模型。ROS和MDA常被作为氧化应激发生的标志物[21],当LPS处理后可显著增加bMECs中ROS和MDA含量,引起细胞氧化应激,而当加入RES后再用LPS处理细胞,发现bMECs中ROS和MDA含量明显降低,表明RES可以抑制细胞产生氧化应激,进而降低炎症的发生率,这与Ali等[22]对抗氧化剂丁酸钠的作用效果研究基本一致。SOD和GSH-Px是机体必需的抗氧化酶,在机体抵应对氧化应激中发挥重要作用[23]。本试验中,LPS可显著下调SODGSH-Px的mRNA相对表达水平,而当用RES+LPS共同处理细胞后,与LPS单独处理相比,SODGSH-Px的mRNA相对表达水平显著降升高。这与Li等[24]在研究抗氧化剂提高SODGSH-Px的mRNA相对表达水平缓解乳腺炎奶牛性损伤与氧化应激的报道一致。
研究表明,LPS刺激细胞产生炎性细胞因子的过程中ROS发挥了巨大的作用[25],反之LPS也可抑制细胞活力,增加ROS含量,促进炎症的发生与细胞凋亡[26-27]。本试验中,LPS单独处理刺激了bMECs中炎性因子IL-1βIL-8和TNF-α的mRNA相对表达水平和含量增加;免疫荧光检测到ROS荧光显著增强,表明bMECs发生了严重的氧化应激和炎性损伤,而RES逆转了这一反应,与LPS组相比,RES+LPS组bMECs中炎性因子IL-1βIL-8和TNF-α的mRNA相对表达水平和含量降低,ROS荧光显著减弱,证实了RES具有缓解经LPS刺激bMECs产生的氧化应激和炎性反应。与之相似,研究表明LPS诱导细胞发生炎症后可通过引发ROS的产生加重细胞损伤[27],抗氧化剂槲皮素可以通过下调细胞中ROS的产生来缓解LPS诱导的氧化应激和炎症[28]
当炎症发生后会引起细胞中线粒体功能障碍的发生,转录因子TFAM和PGC-1α以及线粒体膜电位在线粒体中发挥重要作用[29-30]。研究发现,线粒体ROS通过破坏TFAM介导的线粒体DNA维持,促进缺血性急性肾损伤的线粒体功能障碍和炎症[31]。本试验中,经过检测TFAMPGC-1α的mRNA相对表达水平以及线粒体膜电位,发现当单独用LPS处理后,bMECs中线粒体因子TFAMPGC-1α的mRNA相对表达水平显著降低,这说明氧化应激和炎性损伤造成了线粒体功能紊乱;而当用RES+LPS共同处理细胞后,bMECs中线粒体因子TFAM和PGC-1α的相对表达水平显著升高,表明RES可以恢复线粒体功能障碍,缓解线粒体损伤。这与RES通过诱导SH-SY5Y细胞自噬来阻止氟哌啶醇诱导的线粒体功能障碍作用相似[32]。因此,RES可以缓解细胞发生氧化应激和炎症反应及引起的线粒体功能紊乱,对在细胞生物反应中发挥积极作用。
多种细胞损伤和外部刺激可促进细胞凋亡,大致分为内源性和外源性。内源性凋亡是由DNA损伤、ROS过多、缺氧或应激引发的[33]。越来越多的研究发现,RES在不同的细胞中发挥着抗凋亡作用[34-35]。Bcl-2蛋白家族中的Bax和Bcl-2是凋亡途径早期阶段的关键调节因子[36]Bcl-2是一种抗凋亡基因,能够抑制氧自由基的产生,也能稳定线粒体膜电位,而Bax则起到促进细胞凋亡的作用[37]。本试验中,通过检测凋亡因子Bax的mRNA表达发现,LPS可提升bMECs中Bax的mRNA相对表达水平;而RES+LPS共同处理细胞后,则可显著降低bMECs中Bax的mRNA相对表达水平。此外,流式细胞术检测细胞凋亡率也呈现类似的结果。通过对bMECs中抗凋亡因子Bcl-2的mRNA相对表达水平检测发现,其结果与Bax相反。
综合以上结果表明,RES可有效地抑制炎性因子、氧化因子和凋亡因子的基因表达,还可以增加抗氧化酶的活性和线粒体基因(TFAMPGC-1α)的表达上调,进一步证实RES在抗氧化和抗炎方面的积极作用。但其具体的作用机制仍然不完全清楚,需要进一步的研究来揭示其详细的作用途径和机理。

4 结论

① LPS诱导bMECs产生炎性损伤的适宜浓度为10 μg/mL,RES缓解炎性损伤bMECs的适宜浓度为15 μmol/L。
② LPS可通过上调炎性因子、氧化因子、促凋亡因子的mRNA表达,下调抗氧化酶、线粒体基因、抑凋亡因子的mRNA表达,导致bMECs产生氧化应激、炎性应激、线粒体损伤和细胞凋亡;而RES则可逆转这一反应,从恢复线粒体功能方面发挥保护细胞免受氧化应激和炎性损伤的功效。
[1]
KLAAS I C, ZADOKS R N. An update on environmental mastitis:challenging perceptions[J]. Transboundary and Emerging Diseases, 2018,65 (Suppl.1):166-185.

[2]
PUERTO M A, SHEPLEY E, CUE R I, et al. The hidden cost of disease:I.Impact of the first incidence of mastitis on production and economic indicators of primiparous dairy cows[J]. Journal of Dairy Science, 2021, 104(7):7932-7943.

[3]
DEB R, KUMAR A, CHAKRABORTY S, et al. Trends in diagnosis and control of bovine mastitis:a review[J]. Pakistan Journal of Biological Sciences, 2013, 16(23):1653-1661.

[4]
COBIRKA M, TANCIN V, SLAMA P. Epidemiology and classification of mastitis[J]. Animals, 2020, 10(12):2212.

[5]
FU K Q, SUN Y N, WANG J B, et al. Tanshinone IIa alleviates LPS-induced oxidative stress in dairy cow mammary epithelial cells by activating the Nrf2 signalling pathway[J]. Research in Veterinary Science, 2022, 151:149-155.

DOI PMID

[6]
STRANDBERG Y, GRAY C, VUOCOLO T, et al. Lipopolysaccharide and lipoteichoic acid induce different innate immune responses in bovine mammary epithelial cells[J]. Cytokine, 2005, 31(1):72-86.

PMID

[7]
CARRIZZO A, FORTE M, DAMATO A, et al. Antioxidant effects of resveratrol in cardiovascular,cerebral and metabolic diseases[J]. Food and Chemical Toxicology, 2013, 61:215-226.

[8]
MENG T T, XIAO D F, MUHAMMED A, et al. Anti-inflammatory action and mechanisms of resveratrol[J]. Molecules, 2021, 26(1):229.

[9]
REN B X, KWAH M X Y, LIU C L, et al. Resveratrol for cancer therapy:challenges and future perspectives[J]. Cancer Letters, 2021, 515:63-72.

[10]
CHABAN Y, BOEKEMA E J, DUDKINA N V. Structures of mitochondrial oxidative phosphorylation supercomplexes and mechanisms for their stabilisation[J]. Biochimica et Biophysica Acta, 2014, 1837(4):418-426.

DOI PMID

[11]
KUNG H C, LIN K J, KUNG C T, et al. Oxidative stress,mitochondrial dysfunction,and neuroprotection of polyphenols with respect to resveratrol in Parkinson’s disease[J]. Biomedicines, 2021, 9(8):918.

[12]
LI H H, SHEN Y J, XIAO H, et al. Resveratrol attenuates rotenone-induced inflammation and oxidative stress via STAT1 and Nrf2/Keap1/SLC7A11 pathway in a microglia cell line[J]. Pathology,Research and Practice, 2021, 225:153576.

[13]
YANG J, HU Q C, WANG J P, et al. RNA-seq reveals the role of miR-29c in regulating inflammation and oxidative stress of bovine mammary epithelial cells[J]. Frontiers in Veterinary Science, 2022, 9:865415.

[14]
FAN J Q, JIA F, LIU Y, et al. Astragalus polysaccharides and astragaloside IV alleviate inflammation in bovine mammary epithelial cells by regulating Wnt/β-catenin signaling pathway[J]. PLoS One, 2022, 17(7):e0271598.

[15]
MUSHTAQ S, SHAH A M, SHAH A, et al. Bovine mastitis:an appraisal of its alternative herbal cure[J]. Microbial Pathogenesis, 2018, 114:357-361.

[16]
CHENG W N, HAN S G. Bovine mastitis:risk factors,therapeutic strategies,and alternative treatments—a review[J]. Asian-Australasian Journal of Animal Sciences, 2020, 33(11):1699-1713.

[17]
ZHENG Y H, LIU G, WANG W, et al. Lactobacillus casei Zhang counteracts blood-milk barrier disruption and moderates the inflammatory response in Escherichia coli-induced mastitis[J]. Frontiers in Microbiology, 2021, 12:675492.

[18]
GONG X X, SU X S, ZHAN K, et al. The protective effect of chlorogenic acid on bovine mammary epithelial cells and neutrophil function[J]. Journal of Dairy Science, 2018, 101(11):10089-10097.

DOI PMID

[19]
LIU M J, FANG G Q, YIN S J, et al. Caffeic acid prevented LPS-induced injury of primary bovine mammary epithelial cells through inhibiting NF-κB and MAPK activation[J]. Mediators of Inflammation, 2019, 2019:1897820.

[20]
YU G M, KUBOTA H, OKITA M, et al. The anti-inflammatory and antioxidant effects of melatonin on LPS-stimulated bovine mammary epithelial cells[J]. PLoS One, 2017, 12(5):e0178525.

[21]
LI L, TANG W, ZHAO M, et al. Study on the regulation mechanism of lipopolysaccharide on oxidative stress and lipid metabolism of bovine mammary epithelial cells[J]. Physiological Research, 2021, 70(5):777-785.

DOI PMID

[22]
ALI I, LI C M, KUANG M Q, et al. Nrf2 activation and NF-κB & caspase/Bax signaling inhibition by sodium butyrate alleviates LPS-induced cell injury in bovine mammary epithelial cells[J]. Molecular Immunology, 2022, 148:54-67.

[23]
VALKO M, JOMOVA K, RHODES C J, et al. Redox- and non-redox-metal-induced formation of free radicals and their role in human disease[J]. Archives of Toxicology, 2016, 90(1):1-37.

DOI PMID

[24]
LI L, WANG H H, NIE X T, et al. Sodium butyrate ameliorates lipopolysaccharide-induced cow mammary epithelial cells from oxidative stress damage and apoptosis[J]. Journal of Cellular Biochemistry, 2019, 120(2):2370-2381.

[25]
PLATNICH J M, CHUNG H, LAU A, et al. Shiga toxin/lipopolysaccharide activates caspase-4 and gasdermin D to trigger mitochondrial reactive oxygen species upstream of the NLRP3 inflammasome[J]. Cell Reports, 2018, 25(6):1525-1536.e7.

DOI PMID

[26]
REN Q, ZHAO S J, REN C J, et al. Astragalus polysaccharide alleviates LPS-induced inflammation injury by regulating miR-127 in H9c2 cardiomyoblasts[J]. International Journal of Immunopathology and Pharmacology, 2018, 32:2058738418759180.

[27]
QIU Z, HE Y H, MING H, et al. Lipopolysaccharide (LPS) aggravates high glucose- and hypoxia/reoxygenation-induced injury through activating ROS-dependent NLRP3 inflammasome-mediated pyroptosis in H9C2 cardiomyocytes[J]. Journal of Diabetes Research, 2019, 2019:8151836.

[28]
SUL O J, RA S W. Quercetin prevents LPS-induced oxidative stress and inflammation by modulating NOX2/ROS/NF-κB in lung epithelial cells[J]. Molecules, 2021, 26(22):6949.

[29]
GHOSH S, SENGUPTA S, SCARIA V. Hydroxymethyl cytosine marks in the human mitochondrial genome are dynamic in nature[J]. Mitochondrion, 2016, 27:25-31.

DOI PMID

[30]
KONG S F, CAI B L, NIE Q H. PGC-1α affects skeletal muscle and adipose tissue development by regulating mitochondrial biogenesis[J]. Molecular Genetics and Genomics, 2022, 297(3):621-633.

DOI PMID

[31]
ZHAO M, WANG Y Z, LI L, et al. Mitochondrial ROS promote mitochondrial dysfunction and inflammation in ischemic acute kidney injury by disrupting TFAM-mediated mtDNA maintenance[J]. Theranostics, 2021, 11(4):1845-1863.

DOI PMID

[32]
HU M M, WANG R Q, CHEN X, et al. Resveratrol prevents haloperidol-induced mitochondria dysfunction through the induction of autophagy in SH-SY5Y cells[J]. Neurotoxicology, 2021, 87:231-242.

DOI PMID

[33]
VOSKOBOINIK I, WHISSTOCK J C, TRAPANI J A. Perforin and granzymes:function,dysfunction and human pathology[J]. Nature Reviews Immunology, 2015, 15(6):388-400.

[34]
LI T, CHEN Z Q, ZHOU Y, et al. Resveratrol pretreatment inhibits myocardial apoptosis in rats following coronary microembolization via inducing the PI3K/Akt/GSK-3β signaling cascade[J]. Drug Design,Development and Therapy, 2021, 15:3821-3834.

[35]
ZONG D D, LIU X M, LI J H, et al. Resveratrol attenuates cigarette smoke induced endothelial apoptosis by activating Notch1 signaling mediated autophagy[J]. Respiratory Research, 2021, 22(1):22.

[36]
LEE J S, JUNG W K, JEONG M H, et al. Sanguinarine induces apoptosis of HT-29 human colon cancer cells via the regulation of Bax/Bcl-2 ratio and caspase-9-dependent pathway[J]. International Journal of Toxicology, 2012, 31(1):70-77.

DOI PMID

[37]
PERLMAN H, ZHANG X, CHEN M W, et al. An elevated bax/bcl-2 ratio corresponds with the onset of prostate epithelial cell apoptosis[J]. Cell Death and Differentiation, 1999, 6(1):48-54.

PMID

文章导航

/