研究论文

田菁不同部位营养价值、分子结构特性和体外瘤胃降解率研究

  • 王路遥 , 1 ,
  • 江应松 2 ,
  • 曹晓风 3 ,
  • 韩波 4 ,
  • 卜登攀 5 ,
  • 邓娴 3 ,
  • 赵庆华 3 ,
  • 于静 4 ,
  • 尤常清 3 ,
  • 张晓冬 6 ,
  • 马露 5 ,
  • 贾亚军 7 ,
  • 田雨佳 , 1, *
展开
  • 1 天津农学院动物科学与动物医学学院,天津市农业动物繁育与健康养殖重点实验室,天津 300392
  • 2 天津市农业农村委,天津 300454
  • 3 中国科学院遗传与发育生物学研究所,基因组生物学研究中心,北京 100101
  • 4 天津梦得集团有限公司,天津 300188
  • 5 中国农业科学院北京畜牧兽医研究所,反刍动物营养创新部,北京 100193
  • 6 山东省农业科学院农作物种质资源研究所,济南 250100
  • 7 海南省崖州湾种子实验室,创新研究部,三亚 572024
* 田雨佳,副教授,硕士生导师,E-mail:

王路遥(1997—),男,山东潍坊人,硕士研究生,研究方向为反刍动物营养与饲料科学。E-mail:

Office editor: 田艳明

收稿日期: 2023-11-08

  网络出版日期: 2024-05-15

基金资助

国家黄三角农高区科技专项资助项目(2022SZX14)

天津市奶牛(肉羊)产业技术体系创新团队建设项目(ITTCRS2021000)

中国科学院青年创新促进会优秀会员项目(2022039)

黑土地保护与利用科技创新工程专项资助(XDA28030100)

国家奶牛产业技术体系(CARS-36)

Study on Nutritional Value, Molecular Structure Characteristics and in Vitro Rumen Degradation Rate in Different Parts of Sesbania cannabina

  • WANG Luyao , 1 ,
  • JIANG Yingsong 2 ,
  • CAO Xiaofeng 3 ,
  • HAN Bo 4 ,
  • BU Dengpan 5 ,
  • DENG Xian 3 ,
  • ZHAO Qinghua 3 ,
  • YU Jing 4 ,
  • YOU Changqing 3 ,
  • ZHANG Xiaodong 6 ,
  • MA Lu 5 ,
  • JIA Yajun 7 ,
  • TIAN Yujia , 1, *
Expand
  • 1 Tianjin Key Laboratory of Agricultural Animal Breeding and Healthy Farming, College of Animal Science and Veterinary Medicine, Tianjin Agricultural University, Tianjin 300392, China
  • 2 Tianjin Agricultural and Rural Committee, Tianjin 300454, China
  • 3 Genome Biology Research Center, Institute of Genetics and Developmental Biology, Chinese Academy of Sciences, Beijing 100101, China
  • 4 Tianjin Mengde Group Co., Ltd., Tianjin 300188, China
  • 5 Department of Ruminant Nutrition Innovation, Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing 100193, China
  • 6 Institute of Crop Germplasm Resources, Shandong Academy of Agricultural Sciences, Ji’nan 250100, China
  • 7 Department of Innovative Research, Yazhou Bay Seed Laboratory, Hainan Province, Sanya 572024, China
* associate professor, E-mail:

Received date: 2023-11-08

  Online published: 2024-05-15

摘要

本试验旨在研究田菁不同部位(包括叶、茎、根及全株)的营养价值、分子结构特征及体外瘤胃降解率,为反刍动物优质粗饲料资源的开发提供基础数据。试验按照概略养分分析法和康奈尔净碳水化合物和蛋白质体系(CNCPS)分析田菁叶、茎、根及全株的营养成分含量,同时利用傅立叶变换红外光谱(FTIR)技术对田菁不同部位的分子结构进行分析,最后进行体外瘤胃模拟发酵,分析田菁不同部位在瘤胃内的降解率以及产气量。结果表明:1)田菁不同部位间的蛋白质组成和二级结构光谱参数存在显著差异(P<0.05)。其中,叶的蛋白质成分含量较高,根的较低;叶的酰胺Ⅰ区和酰胺Ⅱ区的峰高和峰面积以及β-折叠峰面积较高,茎的酰胺Ⅰ区峰高和峰面积较低。2)田菁不同部位间的碳水化合物组成和分子结构光谱参数存在显著差异(P<0.05)。其中,根的中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)和酸性洗涤木质素(ADL)含量较高,叶的较低;根的总碳水化合物峰高和峰面积较高。此外,田菁的蛋白质和碳水化合物组成与分子结构之间存在一定的相关性。3)田菁叶的体外发酵粗蛋白质和干物质降解率最高,显著高于全株、茎和根(P<0.05);叶的48 h总产气量显著高于茎和根(P<0.05)。由此可见,田菁不同部位的营养价值与分子结构之间具有一定的相关性;其中,叶和茎的营养价值及利用率相对较高,而根的营养价值及利用率较低。

本文引用格式

王路遥 , 江应松 , 曹晓风 , 韩波 , 卜登攀 , 邓娴 , 赵庆华 , 于静 , 尤常清 , 张晓冬 , 马露 , 贾亚军 , 田雨佳 . 田菁不同部位营养价值、分子结构特性和体外瘤胃降解率研究[J]. 动物营养学报, 2024 , 36(5) : 3386 -3400 . DOI: 10.12418/CJAN2024.290

Abstract

The aim of this experiment was to study the nutritional value, molecular structure characteristics and in vitro rumen degradation rate in different parts of Sesbania cannabina (including leaves, stems, roots and whole plant), and to provide basic data for the development of high-quality roughage resources for ruminants. The nutrient contents in leaves, stems, roots and whole plant of Sesbania cannabina were analyzed according to the preliminary nutrient analysis and Cornell Net Carbohydrate and Protein System (CNCPS). Meanwhile, the molecular structure of different parts of Sesbania cannabina was analyzed by Fourier transform infrared spectroscopy (FTIR) technology. Finally, the rumen simulated fermentation was carried out in vitro, and the degradation rate and gas production of different parts of Sesbania cannabina were analyzed. The results showed as follows: 1) there were significant differences in protein composition and secondary structure spectral parameters among different parts of Sesbania cannabina (P<0.05). Among them, the protein content in leaves was higher, while that in roots was lower. The peak height and peak area of amide Ⅰ and amide Ⅱ and β-sheet peak area in leaves were higher, while the peak height and peak area of amide Ⅰ in stems were lower. 2) The carbohydrate composition and molecular structure spectral parameters in different parts of Sesbania cannabina were significantly different (P<0.05). The contents of neutral detergent fiber (NDF), acid detergent fiber (ADF) and acid detergent lignin (ADL) were higher in roots, but lower in leaves; the peak height and peak area of total carbohydrate in roots were higher. In addition, there was a certain correlation between the protein and carbohydrate composition of Sesbania cannabina and its molecular structure. 3) The in vitro fermentation degradation rates of crude protein and dry matter in leaves of Sesbania cannabina were the highest, which were significantly higher than those in whole plant, stems and roots (P<0.05); the 48 h total gas production of leaves was significantly higher than that of stems and roots (P<0.05). In conclusion, the nutritional value in different parts of Sesbania cannabina has a certain correlation with its molecular structure. Among them, the nutrient value and utilization rate of leaves and stems are relatively high, while the nutrient value and utilization rate of roots are low.

优质饲草通常能够稳定奶品质,提升产奶量,但由于现阶段国内优质饲草供应不足,且价格大幅上涨,这导致饲草成本增加[1] 。因此,生产中应找到更多优质的粗饲料作为饲用来源。田菁(Sesbania cannabina)是一种1年生豆科草本植物,广泛分布于我国海南、江苏、浙江及江西等地,具有耐寒、耐旱和生长旺盛等特点,且蛋白质含量高,纤维含量低;其叶片有清热解毒功效,根部有固氮能力,能够在盐碱地生长[2-3] 。但现阶段全面系统地对田菁各部位营养价值评价的相关研究较少,缺乏基础数据库信息,这阻碍了其作为饲料的开发利用。研究表明,在单胃动物饲粮中添加田菁,对动物生产性能无显著影响[4] ;在反刍动物全混合日粮中添加田菁,试验组奶牛平均日产奶量比对照组提高了约1 L[5]
二级分子结构是利用傅立叶变换红外光谱(Fourier transform infrared spectroscopy,FTIR)技术在不破坏其样品内部结构通过分子振动来监测其内部分子结构及化学组成的分析技术,其能够获得饲草内蛋白质及碳水化合物(CHO)的分子结构图谱,从而揭示其差异性。目前,有相关研究利用光谱技术与营养组分分析其相关关系,从而揭示饲草的营养价值及潜在利用率[6] 。目前,关于田菁的研究仅限于对家畜生产效果进行评价,未全面比较田菁不同部位的营养成分及其在反刍动物瘤胃内的利用率。因此,本研究将对田菁不同部位的营养价值进行全面解析,并探究其在瘤胃中的降解率,以期挖掘出田菁的饲用潜力,同时结合FTIR技术,建立田菁二级分子结构数据库,为田菁在反刍动物饲粮中的应用提供理论依据。

1 材料与方法

1.1 田菁采集及样品处理

田菁样品采集地为天津市滨海新区大道口村(116°43'E,39°13'N)田菁牧草种植基地,在3个不同地块各随机取生长高度相近的30株现蕾期全株田菁(留茬高度为15 cm),人工随机分为2组,一组为15株全株田菁,另一组将15株全株田菁分为叶、茎、根3部分,每个样品3个平行。随后,将全株田菁与分离好的叶、茎、根3部分粉碎至1~2 cm,放置于恒温干燥箱内,温度设置为60 ℃,时间设置为48 h,烘干至恒重。将烘干后的样品粉碎并过40目筛,将过筛后的样品混匀,随后进行湿化学分析;将粉碎后的样品磨至0.45 mm,进行体外瘤胃模拟发酵试验;将粉碎后的样品磨至0.25 mm,进行FTIR分子结构测定。

1.2 常规营养成分与康奈尔净碳水化合物和蛋白质体系(CNCPS)指标测定

在本试验中,牧草干物质(dry matter,DM)含量采用AOAC(2016)[7] 化学分析方法进行测定;根据杜马斯法[8] 测定氮含量,然后按照氮含量×6.25计算粗蛋白质(crude protein,CP)含量;粗灰分(crude ash,Ash)含量通过马弗炉在525 ℃下燃烧6 h测定;粗脂肪(ether extract,EE)含量使用全自动脂肪分析仪(FOSS,美国)进行测定;中性洗涤纤维(neutral detergent fiber,NDF)、酸性洗涤纤维(acid detergent fiber,ADF)以及酸性洗涤木质素(acid detergent lignin,ADL)含量使用全自动纤维分析仪(ANKOM,美国)进行测定;采用Theodorou等[9] 的方法将体外发酵后的NDF和ADF滤袋进行收集,随后使用凯氏定氮仪(FOSS,美国)进行酸性洗涤不溶粗蛋白质(acid detergent insoluble crude protein,ADICP)、非蛋白氮(non protein nitrogen,NPN)、中性洗涤不溶粗蛋白质(neutral detergent insoluble crude protein,NDICP)以及可溶性粗蛋白质(soluble crude protein,SCP)含量测定;根据Lanzas等[10] 的CNCPS 6.5公式计算各蛋白质和碳水化合物组分含量。

1.3 FTIR数据的采集及分析

使用FTIR仪(Lambda FTIR-7600,澳大利亚)对样品进行光谱扫描,扫描分辨率设为4 cm-1,波段设为800~4 000 cm-1,样品均平行扫描5次,收集图谱为CSV格式并保存。数据通过OMNIC 9.1软件进行处理分析,分析后的数据用Peak Fit 4.1.2进行分子线图数据处理以解析田菁不同部位的蛋白质二级结构,并利用Origin 2023进行3D分子瀑布图制作。

1.4 体外瘤胃模拟发酵

参照Menke等[11] 提出的体外发酵产气方法测定试验饲粮的瘤胃发酵指标。选择日龄、体重和生产阶段相近的奶牛15头,用专业瘤胃液采集器从口腔采取每头牛约500 mL瘤胃液,与人工唾液按照1∶2比例混合后进行模拟瘤胃体外发酵;48 h后冰浴终止发酵,将发酵后的残渣收集并进行降解率测定及分析。

1.5 数据处理分析

试验数据采用SAS 9.4的PROC GLM模块进行单因素方差分析,分析田菁不同部位蛋白质和碳水化合物营养组分、光谱峰值以及体外模拟瘤胃降解指标数据;采用Duncan氏法进行多重比较分析,相关性分析采用PROC CORR模块。结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著。

2 结果

2.1 田菁不同部位蛋白质组成与蛋白质二级结构之间的关系

2.1.1 田菁不同部位的蛋白质成分和CNCPS蛋白质组分

表1可知,田菁不同部位间的蛋白质成分和CNCPS蛋白质组分含量均存在显著差异(P<0.05)。田菁叶的蛋白质成分含量显著高于全株(NPN含量除外)、茎和根(P<0.05),且根的蛋白质成分含量最低;田菁全株的CP和NPN含量显著高于茎和根(P<0.05)。
表1 田菁不同部位的蛋白质成分和CNCPS蛋白质组分

Table 1 Protein composition and CNCPS protein components in different parts of Sesbania cannabina

项目
Items
全株
Whole plant

Leaf

Stem

Root
均值标准误
SEM
P
P-value
蛋白质成分Protein composition/% DM
粗蛋白质CP 15.04b 30.67a 6.65c 5.59c 1.258 <0.01
可溶性粗蛋白质SCP 1.71b 3.45a 1.36b 0.73b 0.285 <0.01
非蛋白氮NPN 9.29a 8.01a 3.62b 3.26b 0.470 <0.01
中性洗涤不溶粗蛋白质NDICP 4.55b 7.32a 4.30b 3.31b 0.817 <0.01
酸性洗涤不溶粗蛋白质ADICP 3.84b 5.64a 3.78b 2.53b 0.792 <0.01
蛋白质成分Protein composition/% CP
可溶性粗蛋白质SCP 10.99d 22.07a 21.89b 13.97c 1.272 <0.01
非蛋白氮NPN 61.80a 26.11d 53.43c 57.37b 2.644 <0.01
中性洗涤不溶粗蛋白质NDICP 30.45b 22.86c 66.81a 64.83a 3.261 <0.01
酸性洗涤不溶粗蛋白质ADICP 25.53a 18.38b 56.84a 45.25a 0.586 <0.01
CNCPS蛋白质组分CNCPS protein components/% CP
可溶性真蛋白质PA 1.02c 1.77b 0.79d 8.00a 0.684 <0.01
快速降解蛋白质PB1 9.96c 20.30b 21.09a 5.96d 0.372 <0.01
中速降解蛋白质PB2 58.49a 55.07b 11.29d 20.42c 0.221 <0.01
慢速降解蛋白质PB3 4.92c 4.48d 9.97b 19.58a 0.317 <0.01
非降解蛋白质PC 25.59c 18.38d 58.84a 45.26b 0.839 <0.01

同行数据肩标不同小写字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different lowercase letter superscripts mean significant difference (P<0.05), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

田菁叶和茎的CNCPS蛋白质组分的快速降解蛋白质(PB1)含量显著高于全株和根(P<0.05),根的CNCPS蛋白质组分的慢速降解蛋白质(PB3)含量显著高于全株、叶和茎(P<0.05),茎的CNCPS蛋白质组分的非降解蛋白质(PC)含量显著高于全株、叶和根(P<0.05)。

2.1.2 田菁不同部位的蛋白质二级结构

表2可知,田菁不同部位蛋白质酰胺带参数均存在显著差异(P<0.05)。其中,田菁叶的酰胺Ⅰ区和酰胺Ⅱ区峰高以及酰胺Ⅰ区和酰胺Ⅱ区峰面积均显著高于全株及其他部位(P<0.05);田菁全株的酰胺Ⅰ区峰高/酰胺Ⅱ区峰高值显著高于全株及其他部位(P<0.05),根的酰胺Ⅰ区峰面积/酰胺Ⅱ区峰面积值显著高于全株及其他部位(P<0.05)。
表2 田菁不同部位的蛋白质二级结构光谱参数

Table 2 Spectral parameters of protein secondary structure in different parts of Sesbania cannabina

项目
Items
全株
Whole plant

Leaf

Stem

Root
均值标准误
SEM
P
P-value
蛋白质酰胺带参数Protein amide band parameters
酰胺Ⅰ区峰高Amide Ⅰ peak height/×10-6 0.01b 0.03a 0.01b 0.01b 0.000 <0.01
酰胺Ⅱ区峰高Amide Ⅱ peak height/×10-6 0.01b 0.01a 0.01b 0.01b 0.000 <0.01
酰胺Ⅰ区峰高/酰胺Ⅱ区峰高
Amide Ⅰ peak height/amide Ⅱ peak height
5.88a 2.63c 2.29d 3.09b 0.111 <0.01
酰胺Ⅰ区峰面积Amide Ⅰ peak area 1.57b 2.04a 0.84d 1.10c 0.035 <0.01
酰胺Ⅱ区峰面积Amide Ⅱ peak area 0.17b 0.50a 0.15b 0.10b 0.018 <0.01
酰胺Ⅰ区峰面积/酰胺Ⅱ区峰面积
Amide Ⅰ peak area/amide Ⅱ peak area
9.10b 4.05d 5.46c 10.61a 2.319 <0.01
蛋白质二级结构参数Protein secondary structure parameters
α-螺旋峰面积α-helix peak area/×10-6 0.01b 0.06b 0.05b 0.10a 0.009 0.03
α-螺旋峰面积总占比
α-helix peak area total ratio/×10-6
0.01c 0.08b 0.19a 0.28a 0.019 <0.01
β-折叠峰面积β-sheet peak area 0.19b 0.37a 0.10c 0.10c 0.012 <0.01
β-折叠峰面积总占比
β-sheet peak area total ratio
0.37b 0.40a 0.44a 0.32b 0.012 0.01
β-转角峰面积β-turn peak area 0.21a 0.23a 0.06b 0.08b 0.009 <0.01
β-转角峰面积总占比
β-turn peak area total ratio
0.34a 0.24b 0.26b 0.22b 0.009 0.01
无规则卷曲峰面积
Random-coil peak area/×10-6
0.14b 0.24a 0.01c 0.06c 0.008 <0.01
无规则卷曲峰面积总占比
Random-coil peak area total ratio
0.28a 0.27a 0.08b 0.17b 0.016 <0.01
从蛋白质二级结构分析,田菁根的α-螺旋峰面积显著高于全株、叶和茎(P<0.05),叶的β-折叠和无规则卷曲峰面积显著高于全株、茎和根(P<0.05),全株的β-转角峰面积总占比显著高于叶、茎和根(P<0.05)。

2.1.3 田菁不同部位的蛋白质酰胺带参数与其蛋白质成分和CNCPS蛋白质组分含量之间的相关关系

表3可知,田菁不同部位的蛋白质酰胺带参数与蛋白质成分和CNCPS蛋白质组分含量之间存在一定相关关系。从蛋白质成分分析,其CP、SCP、NDICP和ADICP含量与酰胺Ⅰ区峰高、酰胺Ⅱ区峰高以及酰胺Ⅱ区峰面积呈显著正相关(r=0.49~0.97,P<0.05),CP含量与酰胺Ⅰ区峰面积呈显著负相关(r=-0.48,P<0.05),SCP、NDICP和ADICP含量与酰胺Ⅰ区峰面积/酰胺Ⅱ区峰面积值呈显著负相关(r=-0.66~-0.64,P<0.05),NPN含量与酰胺Ⅱ区峰高和酰胺Ⅱ区峰面积呈显著负相关(r=-0.45~-0.42,P<0.05);从CNCPS蛋白质组分分析,PB3和PC含量与酰胺Ⅰ区峰高、酰胺Ⅱ区峰高以及酰胺Ⅰ区峰面积呈显著负相关(r=-0.89~-0.52,P<0.05)。
表3 田菁不同部位的蛋白质酰胺带参数与其蛋白质成分和CNCPS蛋白质组分含量之间的相关关系

Table 3 Correlation of protein amide band parameters with contents of protein composition and CNCPS protein components in different parts of Sesbania cannabina

项目
Items
酰胺Ⅰ区峰高
Amide Ⅰ peak height
酰胺Ⅱ区峰高
Amide Ⅱ peak height
酰胺Ⅰ区峰高/
酰胺Ⅱ区峰高
Amide Ⅰ peak height/
amide Ⅱ peak height
酰胺Ⅰ区峰面积
Amide Ⅰ peak area
酰胺Ⅱ区峰面积
Amide Ⅱ peak area
酰胺Ⅰ区峰面积/
酰胺Ⅱ区峰面积
Amide Ⅰ peak area/
amide Ⅱ peak area
r P r P r P r P r P r P
蛋白质成分Protein composition
粗蛋白质CP 0.49* <0.01 0.51* <0.01 0.14 0.44 -0.48* <0.01 0.66* <0.01 -0.40* 0.03
可溶性粗蛋白质
SCP
0.83* <0.01 0.78* <0.01 -0.15 0.42 0.18 0.32 0.93* <0.01 -0.64* <0.01
非蛋白氮NPN -0.31 0.09 -0.45* 0.01 0.10 0.56 0.01 0.95 -0.42* 0.02 0.38* 0.03
中性洗涤不溶
粗蛋白质
NDICP
0.86* <0.01 0.87* <0.01 -0.21 0.36 0.03 0.88 0.97* <0.01 -0.66* <0.01
酸性洗涤不溶
粗蛋白质
ADICP
0.86* <0.01 0.84* <0.01 -0.24 0.30 0.00 0.97 0.95* <0.01 -0.65* <0.01
CNCPS蛋白质组分CNCPS protein components/% CP
可溶性真蛋白质
PA
-0.26 0.15 -0.27 0.13 0.05 0.77 -0.15 0.40 0.10 0.57 0.82* <0.01
快速降解蛋白质
PB1
0.29 0.11 0.46* <0.01 -0.51* <0.01 0.25 0.17 -0.27 0.14 -0.97* <0.01
中速降解蛋白质
PB2
0.85* <0.01 0.55* <0.01 0.45* 0.01 0.76* <0.01 0.13 0.47 -0.32 0.08
慢速降解蛋白质
PB3
-0.63* <0.01 -0.52* <0.01 -0.09 0.62 -0.52* <0.01 0.04 0.80 0.82* <0.01
非降解蛋白质
PC
-0.89* <0.01 -0.63* <0.01 -0.32 0.08 -0.83* <0.01 -0.09 0.61 0.31 0.08

r:相关系数;P:P值。*表示显著相关(P<0.05)。表4表7同。

r: correlation coefficient; P: P-value. * indicated significant correlation (P<0.05). The same as Table 4 and Table 7.

2.1.4 田菁不同部位的蛋白质二级结构参数与其蛋白质成分和CNCPS蛋白质组分含量之间的相关关系

表4可知,田菁不同部位的蛋白质二级结构参数与其蛋白质成分和CNCPS蛋白质组分含量之间存在一定相关关系。从蛋白质成分分析,SCP、NDICP和ADICP含量与β-折叠峰面积、β-转角峰面积以及无规则卷曲峰面积呈显著正相关(r=0.76~0.91,P<0.05),CP含量与β-折叠峰面积呈显著正相关(r=0.53,P<0.05),NPN含量与β-转角峰面积总占比呈显著正相关(r=0.50,P<0.05),NPN含量与β-转角峰面积呈显著负相关(r=-0.47,P<0.05),SCP含量与α-螺旋峰面积总占比呈显著负相关(r=-0.60,P<0.05);从CNCPS蛋白质组分分析,可溶性真蛋白质(PA)含量与α-螺旋峰面积总占比呈显著负相关(r=-0.46,P<0.05),PB1含量与β-折叠峰面积总占比呈显著正相关(r=0.49,P<0.05),中速降解蛋白质(PB2)含量与β-折叠峰面积、β-转角峰面积总占比、无规则卷曲峰面积和无规则卷曲峰面积总占比呈显著正相关(r=0.66~0.81,P<0.05)。
表4 田菁不同部位的蛋白质二级结构参数与其蛋白质成分和CNCPS蛋白质组分含量之间的相关关系

Table 4 Correlation of protein secondary structure parameters with contents of protein composition and CNCPS protein components in different parts of Sesbania cannabina

项目
Items
α-螺旋峰面积
α-helix
peak area
α-螺旋峰面积
总占比
α-helix peak
area total ratio
β-折叠峰面积
β-sheet
peak area
β-折叠峰面积
总占比
β-sheet peak
area total ratio
β-转角峰面积
β-turn
peak area
β-转角峰面积
总占比
β-turn peak
area total ratio
无规则卷
曲峰面积
Random-coil
peak area
无规则卷曲峰
面积总占比
Random-coil peak
area total ratio
r P r P r P r P r P r P r P r P
蛋白质成分Protein composition
粗蛋白质CP -0.24 0.21 -0.39* 0.03 0.53* <0.01 0.15 0.44 0.39* 0.04 -0.11 0.56 0.52* 0.01 0.28 0.15
可溶性粗蛋白质
SCP
-0.44* 0.01 -0.60* <0.01 0.90* <0.01 0.23 0.21 0.82* <0.01 0.20 0.29 0.85* <0.01 0.45* 0.01
非蛋白氮NPN 0.02 0.89 0.08 0.67 -0.46* 0.01 -0.34 0.06 -0.47* <0.01 0.50* <0.01 -0.38 0.06 0.32 0.09
中性洗涤不溶
粗蛋白质
NDICP
-0.30 0.18 -0.34 0.21 0.90* <0.01 -0.05 0.83 0.78* <0.01 -0.03 0.88 0.90* <0.01 0.44* 0.04
酸性洗涤不溶
粗蛋白质
ADICP
-0.23 0.31 -0.33 0.12 0.91* <0.01 -0.04 0.83 0.76* <0.01 -0.05 0.82 0.89* <0.01 0.42 0.06
CNCPS蛋白质组分CNCPS protein components
可溶性真
蛋白质
PA
0.41* 0.02 0.51* <0.01 -0.32 0.08 -0.46* <0.01 -0.11 0.56 -0.31 0.08 -0.01 0.93 -0.13 0.46
快速降解
蛋白质
PB1
-0.23 0.20 -0.33 0.07 0.38* 0.03 0.49* <0.01 -0.09 0.60 0.23 0.21 0.11 0.54 0.04 0.81
中速降解
蛋白质
PB2
-0.22 0.22 -0.57* <0.01 0.77* <0.01 -0.04 0.82 0.07 0.69 0.81* <0.01 0.72* <0.01 0.66* <0.01
慢速降解
蛋白质
PB3
0.39* 0.02 0.64* <0.01 -0.64* <0.01 -0.34 0.06 -0.08 0.66 -0.63* <0.01 -0.39* 0.03 -0.41* 0.02
非降解蛋白质
PC
0.14 0.44 0.49* <0.01 -0.80* <0.01 0.07 0.68 0.00 0.98 -0.80* <0.01 -0.80* <0.01 -0.65* <0.01

2.2 田菁不同部位碳水化合物组成与碳水化合物分子结构的关系

2.2.1 田菁不同部位的碳水化合物成分和CNCPS碳水化合物组分

表5可知,田菁不同部位间的碳水化合物成分含量均存在显著差异(P<0.05)。其中,田菁根的NDF、ADF和ADL含量最高且显著高于全株和叶(P<0.05),叶的ADF和ADL含量相较于全株及其他部位最低,且叶的半纤维素含量最高且显著高于全株和茎(P<0.05),茎的碳水化合物含量最高且显著高于全株和叶(P<0.05)。
表5 田菁不同部位的碳水化合物成分和CNCPS碳水化合物组分

Table 5 Carbohydrate composition and CNCPS carbohydrate components in different parts of Sesbania cannabina

项目
Items
全株
Whole plant

Leaf

Stem

Root
均值标准误
SEM
P
P-value
碳水化合物成分Carbohydrate composition/% DM
中性洗涤纤维NDF 47.00b 58.60b 73.48a 81.48a 2.046 <0.01
酸性洗涤纤维ADF 37.13b 36.60b 67.13a 67.66a 1.771 <0.01
酸性洗涤木质素ADL 5.94b 5.37b 8.48a 9.18a 0.071 <0.01
半纤维素Hemicellulose 9.87b 22.00a 9.84b 13.81a 1.425 0.02
碳水化合物CHO 74.38b 55.33c 85.47a 83.47a 0.683 <0.01
CNCPS碳水化合物组分CNCPS carbohydrate components/% CHO
可消化纤维CB3 33.44 46.23 57.38 57.41 2.612 0.07
不可消化纤维CC 13.55c 12.91c 19.91b 22.00a 0.099 <0.01
CNCPS碳水化合物组分中的可消化纤维(CB3)在田菁不同部位间无显著差异(P>0.05),田菁根的CB3含量最高;田菁根的不可消化纤维(CC)含量最高且显著高于全株、叶和茎(P<0.05),其中叶的CC含量相较于其他部位最低。

2.2.2 田菁不同部位的碳水化合物分子结构

表6可知,田菁不同部位的碳水化合物光谱结构特点部分参数存在显著差异(P<0.05)。其中,田菁茎和根的总碳水化合物亚峰Ⅰ峰高、亚峰Ⅱ峰高和亚峰Ⅱ峰面积显著高于全株和叶(P<0.05),全株的总碳水化合物亚峰Ⅲ峰面积显著低于其他部位(P<0.05);结构性碳水化合物峰高和峰面积、总碳水化合物峰高和峰面积、总碳水化合物亚峰Ⅰ峰面积以及总碳水化合物亚峰Ⅲ峰高在各部位之间无显著差异(P>0.05)。
表6 田菁不同部位的碳水化合物分子结构光谱参数

Table 6 Spectral parameters of carbohydrate molecular structure in different parts of Sesbania cannabina

项目
Items
全株
Whole plant

Leaf

Stem

Root
均值标准误
SEM
P
P-value
碳水化合物光谱结构特点Characteristics of spectral structure of carbohydrate
结构性碳水化合物峰高
STCHO peak height/×10-6
0.01 0.01 0.01 0.01 0.000 0.23
结构性碳水化合物峰面积
STCHO peak area
2.47 2.67 2.30 2.23 0.088 0.31
总碳水化合物峰高TCHO peak height 0.05 0.05 0.06 0.07 0.002 0.07
总碳水化合物峰面积TCHO peak area 7.83 7.75 7.54 9.49 0.079 0.29
总碳水化合物亚峰Ⅰ峰高
TCHO subpeak Ⅰ peak height/×10-6
0.01b 0.01b 0.01a 0.01a 0.000 <0.01
总碳水化合物亚峰Ⅰ峰面积
TCHO subpeak Ⅰ peak area
0.04 0.06 0.08 0.08 0.004 0.11
总碳水化合物亚峰Ⅱ峰高
TCHO subpeak Ⅱ peak height/×10-6
0.01b 0.01b 0.01a 0.01a 0.000 <0.01
总碳水化合物亚峰Ⅱ峰面积
TCHO subpeak Ⅱ peak area
0.06b 0.04b 0.13a 0.15a 0.005 <0.01
总碳水化合物亚峰Ⅲ峰高
TCHO subpeak Ⅲ peak height/×10-6
0.01 0.01 0.01 0.01 0.000 0.50
总碳水化合物亚峰Ⅲ峰面积
TCHO subpeak Ⅲ peak area
0.04b 0.15a 0.07a 0.08a 0.007 <0.01
碳水化合物光谱结构比值Ratio of carbohydrate spectral structure
结构性碳水化合物峰高/总碳水化合物峰高
STCHO peak height/TCHO peak height
0.21c 0.27a 0.21b 0.19d 0.002 <0.01
结构性碳水化合物峰面积/总碳水化合物峰面积
STCHO peak area/TCHO peak area
0.33b 0.34a 0.30c 0.23d 0.004 <0.01
总碳水化合物亚峰Ⅰ峰高/总碳水化合物亚峰Ⅱ峰高
TCHO subpeak Ⅰ peak height/TCHO subpeak Ⅱ peak height
1.04a 0.89c 0.90b 0.82d 0.016 <0.01
总碳水化合物亚峰Ⅰ峰高/总碳水化合物亚峰Ⅲ峰高
TCHO subpeak Ⅰ peak height/TCHO subpeak Ⅲ peak height
1.09c 0.57d 1.14a 1.11b 0.151 <0.01
总碳水化合物亚峰Ⅱ峰高/总碳水化合物亚峰Ⅲ峰高
TCHO subpeak Ⅱ peak height/TCHO subpeak Ⅲ peak height
1.04c 0.63d 1.26b 1.34a 0.200 <0.01
总碳水化合物亚峰Ⅰ峰面积/总碳水化合物亚峰Ⅱ峰面积
TCHO subpeak Ⅰ peak area/TCHO subpeak Ⅱ peak area
0.78b 1.41a 0.60c 0.51d 0.329 <0.01
总碳水化合物亚峰Ⅰ峰面积/总碳水化合物亚峰Ⅲ峰面积
TCHO subpeak Ⅰ peak area/TCHO subpeak Ⅲ peak area
1.03b 0.39d 1.16a 1.00c 0.236 <0.01
总碳水化合物亚峰Ⅱ峰面积/总碳水化合物亚峰Ⅲ峰面积
TCHO subpeak Ⅱ peak area/TCHO subpeak Ⅲ peak area
1.31c 0.27d 1.93b 1.95a 1.235 <0.01
田菁不同部位的碳水化合物光谱结构比值均存在显著差异(P<0.05)。其中,田菁叶的结构性碳水化合物峰高/总碳水化合物峰高值、结构性碳水化合物峰面积/总碳水化合物峰面积值以及总碳水化合物亚峰Ⅰ峰面积/总碳水化合物亚峰Ⅱ峰面积值均显著高于全株、茎和根(P<0.05),根的最低;田菁茎的总碳水化合物亚峰Ⅰ峰高/总碳水化合物亚峰Ⅲ峰高值和总碳水化合物亚峰Ⅰ峰面积/总碳水化合物亚峰Ⅲ峰面积值均显著高于全株、叶和根(P<0.05),叶的最低;田菁全株的总碳水化合物亚峰Ⅰ峰高/总碳水化合物亚峰Ⅱ峰高值显著高于叶、茎和根(P<0.05),根的最低;田菁根的总碳水化合物亚峰Ⅱ峰高/总碳水化合物亚峰Ⅲ峰高值和总碳水化合物亚峰Ⅱ峰面积/总碳水化合物亚峰Ⅲ峰面积值均显著高于全株、叶和茎(P<0.05),叶的最低。

2.2.3 田菁不同部位的碳水化合物分子结构光谱参数与其碳水化合物成分含量之间的相关关系

表7可知,田菁不同部位的ADF、ADL和CHO含量与总碳水化合物亚峰Ⅱ峰面积呈显著正相关(r=0.62~0.85,P<0.05),NDF、ADF、ADL和CHO含量与结构性碳水化合物峰面积/总碳水化合物峰面积值呈显著负相关(r=-0.88~-0.51,P<0.05),ADF、ADL和CHO含量与总碳水化合物亚峰Ⅲ峰面积呈显著负相关(r=-0.55~-0.47,P<0.05),ADF含量与结构性碳水化合物峰面积呈显著负相关(r=-0.49,P<0.05),CHO含量与总碳水化合物亚峰Ⅰ峰面积呈显著正相关(r=0.48,P<0.05)。
表7 田菁不同部位的碳水化合物分子结构光谱参数与其碳水化合物成分含量之间的相关关系

Table 7 Correlation between spectral parameters of carbohydrate molecular structure and carbohydrate composition content in different parts of Sesbania cannabina

项目
Items
结构性碳水化
合物峰面积
STCHO peak area
总碳水化合物
峰面积
TCHO peak area
总碳水化合物亚峰Ⅰ
峰面积
TCHO subpeak Ⅰ
peak area
总碳水化合物亚峰Ⅱ
峰面积
TCHO subpeak Ⅱ
peak area
总碳水化合物亚峰Ⅲ
峰面积
TCHO subpeak Ⅲ
peak area
结构性碳水化合物
峰面积/总碳水化
合物峰面积
STCHO peak area/
TCHO peak area
r P r P r P r P r P r P
碳水化合物成分Carbohydrate composition/% DM
中性洗涤纤维NDF -0.33 0.07 -0.01 0.95 -0.11 0.54 0.33 0.07 -0.36 0.05 -0.59* <0.01
酸性洗涤纤维
ADF
-0.49* <0.01 0.01 0.94 0.17 0.37 0.62* <0.01 -0.55* <0.01 -0.66* <0.01
酸性洗涤木质素
ADL
-0.35 0.06 0.28 0.13 0.41* 0.02 0.85* <0.01 -0.47* <0.01 -0.88* <0.01
半纤维素
Hemicellulose
-0.09 0.62 -0.36 0.05 -0.39* 0.03 -0.42* 0.02 0.11 0.55 0.09 0.63
碳水化合物CHO -0.30 0.10 0.17 0.36 0.48* <0.01 0.81* <0.01 -0.52* <0.01 -0.51* <0.01
CNCPS碳水化合物组分CNCPS carbohydrate components/% CHO
可消化纤维CB3 0.12 0.70 0.36 0.23 0.59* 0.03 0.56 0.05 0.47 0.12 -0.19 0.53
不可消化纤维CC 0.09 0.75 0.42 0.16 0.51 0.08 0.92* <0.01 0.24 0.44 -0.82* <0.01
田菁不同部位的CB3含量与总碳水化合物亚峰Ⅰ峰面积呈显著正相关(r=0.59,P<0.05);CC含量与总碳水化合物亚峰Ⅱ峰面积呈显著正相关(r=0.92,P<0.05),且与结构性碳水化合物峰面积/总碳水化合物峰面积值呈显著负相关(r=-0.82,P<0.05)。

2.3 田菁不同部位的蛋白质二级结构3D瀑布图

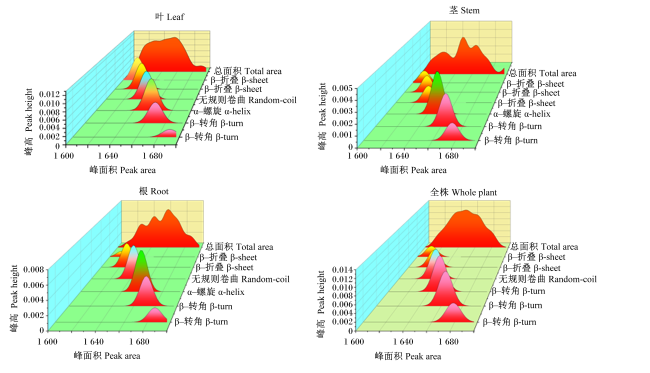
图1所示,田菁全株的蛋白质二级结构峰高在0.000~0.014,高于叶、茎和根;茎的蛋白质二级结构峰高最低为0.000~0.005。田菁全株的蛋白质二级结构无α-螺旋峰面积,茎无无规则卷曲峰面积;根的α-螺旋峰面积占比最高,茎的β-折叠峰面积占比最高;全株的β-转角和无规则卷曲峰面积占比最高。3D瀑布图结果与表2结果一致,由此可知田菁叶、茎、根和全株蛋白质二级结构存在显著差异(P<0.05)。
图1 田菁不同部位的蛋白质二级结构3D瀑布图

Fig.1 3D waterfall plot of protein secondary structure in different parts of Sesbania cannabina

2.4 田菁不同部位体外发酵降解率和产气量分析

表8可知,田菁不同部位的体外发酵CP和DM降解率均存在显著差异(P<0.05)。其中,田菁叶的CP和DM降解率最高,且显著高于全株、茎和根(P<0.05),根的CP和DM降解率最低。
表8 田菁不同部位体外发酵降解率和产气量分析

Table 8 Analysis of degradation rates and gas production in different parts of Sesbania cannabina in in vitro fermentation

项目
Items
全株
Whole plant

Leaf

Stem

Root
均值标准误
SEM
P
P-value
降解率Degradation rate/% DM
粗蛋白质CP 66.77b 84.66a 58.25b 43.87c 0.017 <0.01
干物质DM 64.81b 82.83a 45.72c 45.31c 0.009 <0.01
产气量Gas production/(mL/g)
6 h 34.50a 40.11a 21.22b 13.11b 1.552 <0.01
19 h 74.00a 55.88b 39.00c 29.55d 1.185 <0.01
48 h 26.00b 31.33a 17.33c 18.11c 0.677 <0.01
总产气量Total gas production 134.50a 127.33a 77.55b 60.77c 2.038 <0.01
田菁不同部位的6、19和48 h累积产气量以及总产气量均存在显著差异(P<0.05)。其中,田菁不同部位在发酵19 h时的累积产气量高于在6和48 h时;田菁叶在发酵6和48 h时的累积产气量最高,且显著高于茎和根(P<0.05);根在发酵6 h时的累积产气量最低,茎在发酵48 h时的累积产气量最低;全株在发酵19 h时的累积产气量最高,且显著高于叶、茎和根(P<0.05),根最低;全株的总产气量最高,且显著高于茎和根(P<0.05),根的总产气量最低。

3 讨论

3.1 田菁不同部位蛋白质组成分析

通常植物叶的CP含量最高,根的最低,本试验中田菁叶的CP含量也远高于根;牧场常用苜蓿作为反刍动物优质粗饲料,其CP含量为15%~25%[12],本试验中田菁全株CP含量为15.04%,证明田菁有作为优质粗饲料的可能性。蛋白质在CNCPS 6.5体系中,一般被划分为PA、PB1、PB2、PB3和PC[13] 。粗饲料蛋白质的主要来源物质为PB2和PB3,可降解蛋白质(PB)又是饲草中最主要的蛋白质成分,PB3相比于PB2只有少量可在瘤胃内被降解,饲草中过量PB3会产生过多的PC过瘤胃,造成家畜饲料消化率降低,从而影响动物的健康和生产性能。研究表明,饲草中PB3含量不宜超过DM总量的10%[14-15] ;本试验中,田菁叶的PB3含量为4.48%,在瘤胃内发酵速率更快,更有利于反刍动物瘤胃营养吸收,而田菁根的PB3含量为19.58%,较难被反刍动物消化降解,可能原因在于植物根部在生长过程中容易木质化。因此,在收割时应注意留茬高度,本试验田菁的留茬高度为15 cm,建议将来收割田菁时提高留茬高度,具体的适宜留茬高度需进行进一步科研试验测定。

3.2 田菁不同部位碳水化合物组成分析

NDF和ADF在饲草中尤为重要,其含量高低能够直接影响家畜对营养物质的吸收利用。NDF和ADL含量的高低能够直接影响动物的采食量和消化率[16] 。通常ADL在动物体内难以被消化,动物在消化ADL的同时,也会抑制其他体内营养物质的消化利用。植物生长过程中根和茎作为植物的支撑体,通常会被木质化,容易造成植物高纤维[17] 。有相关研究表明,高纤维能够影响动物的采食量与消化率[18] 。本试验结果表明,田菁茎和根的NDF、ADF和ADL含量显著高于叶,结果与豆科牧草化学表型一致。
在CNCPS 6.5中,碳水化合物组分中的CB3为可利用成分,CC为不可利用成分;在反刍动物消化过程中CC和CB3在瘤胃中不易被降解代谢[19] 。本试验中,田菁叶的CC和NDF含量显著低于茎和根,证明田菁叶的不可消化纤维含量低,更适合被家畜吸收利用。通常豆科植物的碳水化合物含量越高,半纤维素含量就越低[20],这与本试验结果一致。

3.3 田菁不同部位营养成分与分子结构相关性分析

相关研究表明,CP的蛋白质分子结构能够体现饲料中蛋白质含量的高低[21],可以间接评估动物体内蛋白质的可消化性[22],酰胺Ⅰ区和酰胺Ⅱ区作为蛋白质二级结构的主要条带,可作为蛋白质分子结构的预测[23-24] 。Yari等[25] 分析了苜蓿干草蛋白质二级结构差异,结果显示秸秆叶的酰胺Ⅰ区峰高及峰面积相较于其他部位最高,结果与本试验一致。反刍动物瘤胃内的降解可通过蛋白质二级结构中的α-螺旋和β-折叠来代表其特性[26] ;一般而言,蛋白质二级结构中的α-螺旋和β-折叠峰面积相加占比越大,更有利于在瘤胃降解的过程中释放出更多的氨基酸,提高家畜的降解效率[27] 。田菁叶的α-螺旋和β-折叠峰面积相加占比最高,这与本试验田菁叶的CNCPS中PC含量最低结果一致,说明田菁叶的体外瘤胃降解率相比于其他部位更高。
通常饲草的营养价值与分子结构存在一定相关性,营养评价可以通过分子数据分析其营养价值[28] 。Li等[29] 研究发现,饲草中的CP含量与蛋白质二级结构中的酰胺Ⅱ区峰高和峰面积呈显著正相关,这与本试验结果一致。本试验中,田菁不同部位的CNCPS蛋白质组分中,PB1含量与酰胺Ⅱ区峰高和β-折叠峰面积呈显著正相关,这与Wang等[30] 的试验结果一致。Zabala-Letona等[31] 研究发现,饲草中CNCPS蛋白质组分中的PB3和PC含量与分子结构酰胺Ⅱ区峰高呈负相关,这与本试验结果一致。
饲草内营养成分相对含量可以通过官能团之间的比值来确定[32-33] 。本试验中,田菁不同部位的碳水化合物光谱结构比值均存在显著差异,说明田菁不同部位的碳水化合物营养价值均存在显著差异。还有研究结果表明,饲草不同处理方式或其种类的不同会影响分子结构与碳水化合物的相关性[34] 。Ji等[35] 研究发现,不同牧草营养成分的CB3含量与碳水化合物分子结构呈负相关,本试验结果与上述研究结果不符,这可能是由于样品检测方法及种类的不同所导致结果有一定差异。
本试验研究发现,田菁不同部位的NDF、ADF、ADL和CHO含量与结构性碳水化合物峰面积和总碳水化合物亚峰Ⅲ峰面积呈负相关,CB3和CC含量则呈正相关。吕静仪等[36] 研究表明,南瓜副产物中的NDF、ADF和ADL含量与结构性碳水化合物峰面积和纤维素复合物峰面积呈正相关,而CC含量与总碳水化合物亚峰I峰Ⅲ峰面积呈负相关,以上试验结果与本试验结果不一致。

3.4 田菁不同部位体外发酵降解率和产气量分析

家畜能够将饲草内的蛋白质分解成为小分子氨基酸而被消化利用,体外发酵营养物质降解率能够体现反刍动物瘤胃对营养物质的利用率。CP和DM降解率越高,代表其活性越高,能够形成更多的小分子氨基酸供家畜吸收利用[37] 。本试验结果表明,田菁叶的体外发酵CP和DM降解率显著高于茎和根,表明田菁叶的体外瘤胃降解效果最好。
在发酵过程产生的气体通常是碳水化合物和蛋白质在瘤胃内被消化利用而产生,在消化过程中,产气量越高代表瘤胃内微生物活性越强[38] 。本试验中,田菁叶的产气量含量显著高于茎和根,且与营养成分的结果表现一致,表明其能够给反刍动物瘤胃消化利用提供更多的营养物质。

4 结论

① 田菁不同部位的营养价值与分子结构之间存在一定的相关性。
② 田菁叶和茎的营养价值及利用率相对较高,而根的营养价值及利用率较低。
[1]
董宁. 牧草进口产品成本及进口价格分析--以苜蓿草为例[D]. 硕士学位论文. 泰安: 山东农业大学, 2018.

DONG N. Analysis on the cost and the price of pasture imported products[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2018. (in Chinese)

[2]
EVANS D O, ROTAR P P. Sesbania in agriculture[M/OL]. New York: CRC Press, 2019:1-206.[2023-09-26].https://www.taylorfrancis.com/books/mono/10.1201/9780429305856/sesbania-agriculture-dale-evans-peter-rotar.

[3]
SINGH K, GERA R, SHARMA R, et al. Mechanism and application of Sesbania root-nodulating bacteria:an alternative for chemical fertilizers and sustainable development[J]. Archives of Microbiology, 2021, 203(4):1259-1270.

[4]
李福岭. 田菁的饲料利用价值及饲喂试验[J]. 饲料研究, 1993,(5):30-31.

LI F L. Feed utilization value of Sesbania and feeding experiment[J]. Feed Research, 1993(5):30-31. (in Chinese)

[5]
MAKAU D N, VANLEEUWEN J A, GITAU G K, et al. Effects of calliandra and Sesbania on daily milk production in dairy cows on commercial smallholder farms in Kenya[J]. Veterinary Medicine International, 2020, 2020:3262370.

[6]
孙晓旭, 彭婧, 江雨霏, 等. 青藏高原中华羊茅不同部位的营养价值及分子结构特性研究[J]. 动物营养学报, 2023, 35(3):1850-1862.

DOI

SUN X X, PENG J, JIANG Y F, et al. Nutritional value and molecular structure characteristics in different parts of festuca sinensis from Qinghai-Tibet plateau[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1850-1862. (in Chinese)

[7]
AOAC International. Official methods of analysis of AOAC international[M] .20th ed. Arlington: AOAC International, 2016.

[8]
HANSEN B. Determination of nitrogen as elementary N,an alternative to Kjeldahl[J]. Acta Agriculturae Scandinavica, 1989, 39(2):113-118.

[9]
THEODOROU M K, WILLIAMS B A, DHANOA M S, et al. A simple gas production method using a pressure transducer to determine the fermentation kinetics of ruminant feeds[J]. Animal Feed Science and Technology, 1994, 48(3/4):185-197.

[10]
LANZAS C, SNIFFEN C J, SEO S, et al. A revised CNCPS feed carbohydrate fractionation scheme for formulating rations for ruminants[J]. Animal Feed Science and Technology, 2007, 136(3/4):167-190.

[11]
MENKE K H, RAAB L, SALEWSKI H, et al. The estimation of the digestibility and metabolizable energy content of ruminant feedingstuffs from the gas production when they are incubated with rumen liquor in vitro[J]. The Journal of Agricultural Science, 1979, 93(1):217-222.

[12]
汪春, 车刚, 李玉清. 干燥过程对紫花苜蓿粗蛋白含量影响规律的试验研究[J]. 农业工程学报, 2006, 22(9):225-228.

WANG C, CHE G, LI Y Q. Experimental study on effect of drying process on crude protein content of alfalfa[J]. Transactions of the Chinese Society of Agricultural Engineering, 2006(9):225-228. (in Chinese)

[13]
VAN AMBURGH M E, FOSKOLOS A, COLLAO-SAENZ E A, et al. Updating the CNCPS feed library with new feed amino acid profiles and efficiencies of use:evaluation of model predictions,version 6.5[C] 75th Cornell Nutrition Conference for Feed Manufacturers. Ithaca: Cornell University, 2013:1-18.

[14]
HIGGS R J, CHASE L E, ROSS D A, et al. Updating the Cornell net carbohydrate and protein system feed library and analyzing model sensitivity to feed inputs[J]. Journal of Dairy Science, 2015, 98(9):6340-6360.

DOI PMID

[15]
闫贵龙, 曹春梅, 鲁琳, 等. 玉米秸秆不同部位主要化学成分和活体外消化率比较[J]. 中国农业大学学报, 2006, 11(3):70-74.

YAN G L, CAO C M, LU L, et al. Comparison of main chemical composition and in vitro digestibility in various sections of corn stalks[J]. Journal of China Agricultural University, 2006, 11(3):70-74. (in Chinese)

[16]
VILLALBA J J, ATES S, MACADAM J W. Non-fiber carbohydrates in forages and their influence on beef production systems[J]. Frontiers in Sustainable Food Systms, 2021, 5:338-566.

[17]
HAO Y Y, HUANG S, LIU G K, et al. Effects of different parts on the chemical composition,silage fermentation profile,in vitro and in situ digestibility of paper mulberry[J]. Animals, 2021, 11(2):413.

[18]
吴发莉. 不同区城和季节对高寒天然牧草品质的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2014.

WU F L. Effects of different areas and seasons on the quality of the native forage grass from high-cold steppes[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2014. (in Chinese)

[19]
BELANCHE A, WEISBJERG M R, ALLISON G G, et al. Measurement of rumen dry matter and neutral detergent fiber degradability of feeds by Fourier-transform infrared spectroscopy[J]. Journal of Dairy Science, 2014, 97(4):2361-2375.

DOI PMID

[20]
OWUSU-SEKYERE A, KONTTURI J, HAJIBOLAND R, et al. Influence of selenium (Se) on carbohydrate metabolism,nodulation and growth in alfalfa (Medicago sativa L.)[J]. Plant and Soil, 2013, 373(1/2):541-552.

[21]
SADAT A, JOYE I J. Peak fitting applied to Fourier transform infrared and Raman spectroscopic analysis of proteins[J]. Applied Sciences, 2020, 10(17):5918.

[22]
YU P Q. Protein secondary structures (α-helix and β-sheet) at a cellular level and protein fractions in relation to rumen degradation behaviours of protein:a new approach[J]. The British Journal of Nutrition, 2005, 94(5):655-665.

[23]
YU P Q. Application of cluster analysis (CLA) in feed chemical imaging to accurately reveal structural-chemical features of feeds and plants within cellular dimension[J]. Journal of Agricultural and Food Chemistry, 2005, 53(8):2872-2880.

PMID

[24]
YU P. Application of advanced synchrotron radiation-based Fourier transform infrared (SR-FTIR) microspectroscopy to animal nutrition and feed science:a novel approach[J]. The British Journal of Nutrition, 2004, 92(6):869-885.

[25]
YARI M, VALIZADEH R, NASERIAN A A, et al. Protein molecular structures in alfalfa hay cut at three stages of maturity and in the afternoon and morning and relationship with nutrient availability in ruminants[J]. Journal of the Science of Food and Agriculture, 2013, 93(12):3072-3080.

DOI PMID

[26]
SHI M J, MA Z X, TIAN Y J, et al. Effects of corn straw treated with CaO on rumen degradation characteristics and fermentation parameters and their correlation with microbial diversity in rumen[J]. Animal Feed Science and Technology, 2022, 292:115403.

[27]
KIM H, PARK H. Protein secondary structure prediction based on an improved support vector machines approach[J]. Protein Engineering, 2003, 16(8):553-560.

DOI PMID

[28]
XIN H S, YU P Q. Chemical profile,energy values,and protein molecular structure characteristics of biofuel/bio-oil co-products (carinata meal) in comparison with canola meal[J]. Journal of Agricultural and Food Chemistry, 2013, 61(16):3926-3933.

[29]
LI Y, WU Q H, LV J Y, et al. Associations of protein molecular structures with their nutrient supply and biodegradation characteristics in different byproducts of seed-used pumpkin[J]. Animals, 2022, 12(8):956.

[30]
WANG Q D, HU J K, HU H F, et al. Integrated eco-physiological,biochemical,and molecular biological analyses of selenium fortification mechanism in alfalfa[J]. Planta, 2022, 256(6):114.

[31]
ZABALA-LETONA A, CASTILLO-PATINO G. PB2 and its involve ment in the response of the human epidermis to UV radiation:an integrated proteomic and transcriptomic approach[J]. Scientific Reports, 2018, 8(1):8273.

[32]
YU P Q, MCKINNON J J, CHRISTENSEN C R, et al. Chemical imaging of microstructures of plant tissues within cellular dimension using synchrotron infrared microspectroscopy[J]. Journal of Agricultural and Food Chemistry, 2003, 51(20):6062-6067.

DOI PMID

[33]
YU P Q, MCKINNON J J, CHRISTENSEN C R, et al. Using synchrotron transmission FTIR microspectroscopy as a rapid,direct,and nondestructive analytical technique to reveal molecular microstructural-chemical features within tissue in grain barley[J]. Journal of Agricultural and Food Chemistry, 2004, 52(6):1484-1494.

[34]
马占霞, 田雨佳, 卢冬亚, 等. 豆粕、双低菜粕及普通菜粕碳水化合物分子结构分析及营养价值评价[J]. 中国畜牧杂志, 2020, 56(9):144-149.

MA Z X, TIAN Y J, LU D Y, et al. Difference of carbohydrate nutrition content and molecular structure among soybean meal,canola meal and rapeseed meal[J]. Chinese Journal of Animal Science, 2020, 56(9):144-149. (in Chinese)

[35]
JI C Y, ZHANG X W, YAN X G, et al. Bio-functions and molecular carbohydrate structure association study in forage with different source origins revealed using non-destructive vibrational molecular spectroscopy techniques[J]. Spectrochimica acta Part A:Molecular and Biomolecular Spectroscopy, 2017, 183:260-266.

[36]
吕静仪, 李光磊, 杜鸿波, 等. 籽用南瓜副产物营养价值、瘤胃降解特性以及碳水化合物分子结构比较及其相关关系[J]. 动物营养学报, 2021, 33(5):2971-2981.

DOI

LV J Y, LI G L, DU H B, et al. Comparison of nutritional value,rumen degradation characteristics and their relationships with carbohydrate molecular structures of seed pumpkin by products[J]. Chinese Journal of Animal Nutrition, 2021, 33(5):2971-2981. (in Chinese)

[37]
ABD EL TAWAB A M, KHATTAB M S A, HADHOUD F I, et al. Effect of mixture of herbal plants on ruminal fermentation,degradability and gas production[J]. Acta Scientiarum.Animal Sciences, 2021, 43:e48549.

[38]
程景, 张元庆, 张丹丹, 等. 全株玉米青贮、小麦秸秆、苜蓿干草组合的体外消化特性及组合效应研究[J]. 动物营养学报, 2021, 33(5):2982-2992.

DOI

CHENG J, ZHANG Y Q, ZHANG D D, et al. Digestive characteristics and associative effects of whole corn silage,wheat straw and alfalfa hay in vitro[J]. Chinese Journal of Animal Nutrition, 2021, 33(5):2982-2992. (in Chinese)

文章导航

/