综述

酿酒酵母培养物对牛生理机能的功能作用及调控机制

  • 雷嘉鑫 , 1 ,
  • 贺斌成 2 ,
  • 户春丽 1 ,
  • 马燕芬 , 1, *
展开
  • 1 宁夏大学动物科技学院,银川 750021
  • 2 宁夏壹泰牧业有限公司,银川 750104
*马燕芬,研究员,博士生导师,E-mail:

雷嘉鑫(2000—),男,宁夏西吉人,硕士研究生,研究方向为动物营养调控与免疫。E-mail:

Copy editor: 武海龙

收稿日期: 2025-04-06

  网络出版日期: 2025-11-14

基金资助

宁夏回族自治区重点研发计划项目(2023BCF01034)

宁夏反刍动物营养科技创新团队项目(2024CXTD008)

Functional Effects and Regulatory Mechanisms of Saccharomyces erevisiae Culture on Physiological Functions of Bovine

  • LEI Jiaxin , 1 ,
  • HE Bincheng 2 ,
  • HU Chunli 1 ,
  • MA Yanfen , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Yitai Animal Husbandry Co., Ltd., Yinchuan 750104, China
*professor, E-mail:

Received date: 2025-04-06

  Online published: 2025-11-14

摘要

酿酒酵母培养物(SYC)是以酿酒酵母为菌种,将植物蛋白质等发酵浓缩干燥获得的产品,富含酵母代谢产物、细胞壁多糖及菌体蛋白等功能性成分,具有改善动物生长性能、调节免疫功能和维护肠道微生态平衡等益生作用。开发利用SYC可有效解决目前制约牛产业发展的饲料成本高和饲料利用率低等产业瓶颈问题。本文综述了SYC对牛生长发育、瘤胃健康、免疫功能和肉品质等方面的调控作用,以及各信号通路间的网络协同机制,以期为SYC在牛养殖生产实践中的应用提供理论参考。

本文引用格式

雷嘉鑫 , 贺斌成 , 户春丽 , 马燕芬 . 酿酒酵母培养物对牛生理机能的功能作用及调控机制[J]. 动物营养学报, 2025 , 37(11) : 7322 -7329 . DOI: 10.12418/CJAN2025.596

Abstract

Saccharomyces cerevisiae culture (SYC) is a product derived from the fermentation, concentration and drying of plant proteins using Saccharomyces cerevisiae as the starter culture, it rich in functional components such as yeast metabolites, cell wall polysaccharides and microbial proteins, and exhibits probiotic effects, including improved growth performance, regulated immune function and maintained gut microbial balance in animals. The development and application of SYC can effectively solve the bottleneck problems in the cattle industry, such as high feed costs and low feed utilization efficiency. This article reviews the regulatory effects of SYC on growth and development, rumen health, immune function and meat quality of bovine, as well as the networked synergistic mechanisms among signaling pathways, to provide theoretical reference for the application of SYC in bovine breeding production practices.

近年来,全球畜牧业面临资源利用效率低、温室气体排放加剧及动物健康与生产性能失衡等系统性挑战。据联合国粮农组织统计,反刍动物肠道发酵产生的甲烷占农业温室气体排放总量的30%以上,同时低饲料转化率导致全球每年约12亿t饲料被浪费[1]。在此背景下,开发兼具环境友好性与生产高效性的功能性饲料添加剂,已成为推动畜牧业绿色转型的关键突破口。酿酒酵母培养物(Saccharomyces cerevisiae culture,SYC)作为一种新型功能性饲料添加剂,因其多重益生特性受到广泛关注。SYC以酿酒酵母为菌种,通过固体或液体发酵工艺制备而成,富含菌体蛋白、酵母代谢产物、细胞壁多糖及活性酶等多种成分[2]。与传统酵母培养物相比,SYC可通过独特的代谢产物组合与细胞壁结构,在维持胃肠道微生态平衡、增强肠道屏障功能、调节宿主免疫反应及抑制病原菌定植等方面表现出显著优势[3]。SYC不仅可提高反刍动物饲料消化率[4],还能通过抑制甲烷生成菌活性减少肠道温室气体排放[5]。此外,SYC对免疫系统的调控具有双向性,通过激活自然杀伤细胞增强先天免疫应答,还能通过抑制中性粒细胞活性氧(reactive oxygen species,ROS)及促炎因子干扰素-γ(interferon-γ,IFN-γ)的过量产生缓解炎性反应[6]。这些特性使其在反刍动物健康养殖与高效生产体系中展现出重要应用潜力。本文在查阅大量相关文献的基础上,系统综述了SYC对牛生理机能的功能作用及调控机制,以期为SYC在牛生产中的深入研究和广泛应用提供基础依据和技术支撑。

1 SYC对牛生长发育的调控作用及机制

1.1 促进蛋白质合成与肌肉生长

SYC对肉牛肌肉生长的促进作用与其蛋白质合成效率的显著提升密切相关。在安格斯犊牛及育肥期安格斯杂交肉牛饲粮中添加SYC,可显著提高其平均日增重(average daily gain,ADG)与总增重,改善生长性能[7-8]。SYC对哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路的激活作用,是调控蛋白质合成过程的关键分子机制[9]。mTOR信号通路作为蛋白质合成的核心调控机制,SYC通过胰岛素样生长因子-Ⅰ(insulin-like growth factor-Ⅰ,IGF-Ⅰ)激活的磷脂酰肌醇3-激酶-蛋白激酶B(phosphatidylinositol 3-kinase-protein kinase B,PI3K-Akt)信号级联,磷酸化核其下游关键调控靶点,进而增强核糖体生物合成能力并加速翻译进程,这一级联调控显著提升了肌肉蛋白质沉积速率,为肉牛生长性能的优化奠定了分子基础[10-11]。此外,SYC对mTOR信号通路的激活不仅驱动肌肉生长,还可能通过调控成骨细胞分化与骨基质矿化影响骨骼发育。研究表明,IGF-Ⅰ作为mTOR的上游信号分子,能够刺激成骨细胞增殖并抑制破骨细胞活性[12],而SYC通过提升IGF-Ⅰ水平,可能间接促进骨骼纵向生长和骨密度增加,为肉牛骨骼发育提供支持。

1.2 调节肠道菌群与营养代谢-生长轴整合

SYC通过重塑肠道菌群结构及其代谢功能,系统性提升营养吸收效率,进而驱动机体生长发育。研究表明,SYC可特异性促进产短链脂肪酸(short-chain fatty acids,SCFAs)菌属如梭状芽孢杆菌属的增殖,同时抑制条件致病菌的定植[13]。这种菌群结构的优化显著改善了肠道微生态环境,促进SCFAs的生物合成,其浓度提升与宿主代谢调控密切相关。其中,丙酸作为SCFAs的主要组分,可通过激活mTOR信号通路,增强蛋白质合成与代谢调控能力,从而为动物生长发育提供能量与物质基础[9]。此外,如丁酸等SCFAs还可作为肠道上皮细胞的主要能量底物,维持黏膜屏障完整性并提升整体能量代谢效率[14]。代谢产物SCFAs可通过多重机制促进动物生长。首先,SCFAs作为肠道上皮细胞的主要能量底物,可维持黏膜屏障完整性;其次,SCFAs能激活胰蛋白酶、淀粉酶等消化酶系统,提升营养吸收效率;最后,SCFAs通过迷走神经传入信号和下丘脑-垂体轴调控生长相关激素分泌,这种协同作用显著提升了机体的能量代谢效率和营养利用能力。
研究表明,饲粮中添加SYC可提高安格斯杂交公牛和水牛的采食量和粗蛋白质表观消化率,并显著提高ADG和饲料利用效率[15-16],这些表型变化可能与微生物群落通过SYC调控宿主代谢过程有关,其潜在机制可能是由SYC促进合成的SCFAs通过刺激生长激素(growth hormone,GH)和IGF-Ⅰ,调节肠道微生物群,整合营养信号与生长调控,其机制为肠道菌群代谢产生的SCFAs及游离氨基酸可刺激下丘脑弓状核生长激素释放激素(growth hormone-releasing hormone,GHRH)神经元,促使垂体前叶GH分泌量增加,而GH经门静脉系统作用于肝细胞膜表面生长激素受体(growth hormone receptor,GHR),诱导IGF-Ⅰ基因转录及合成,IGF-Ⅰ通过内分泌途径作用于长骨生长板软骨细胞中的IGF-Ⅰ受体,调控细胞外基质合成与软骨内成骨进程,同时通过激活肌肉卫星细胞促进肌纤维肥大,实现机体线性生长[17]

2 SYC对牛瘤胃健康的调控作用及机制

2.1 优化瘤胃代谢效率

瘤胃健康是反刍动物高效生产的关键,其核心指标pH、挥发性脂肪酸(volatile fatty acids,VFA)和氨态氮(ammonia nitrogen,NH3-N)是判定瘤胃健康与否的重要依据。SYC通过菌群重构、代谢通路激活、pH稳态调控三级作用网络,系统提升瘤胃能量转化效率。首先,SYC可通过激活纤维素分解菌的代谢活性,显著提升奶牛瘤胃中VFA浓度,降低丙酸比例,优化乙酸与丙酸比值[18]。其机制为SYC中的甘露寡糖作为益生元可特异性促进纤维分解菌增殖,增强纤维素和半纤维素降解能力,显著提升粗饲料消化率;纤维素分解菌主导的发酵过程以乙酸生成为主,而丙酸主要由丙酸菌通过琥珀酸途径合成,SYC可能通过促进纤维素分解菌的增殖,提升乙酸比例,同时抑制丙酸菌的代谢活性,从而优化乙酸与丙酸比值,改善能量利用效率。其次,SYC可能通过激活关键代谢通路,显著提升瘤胃能量转化效率。腺苷酸活化蛋白激酶(AMP-activated protein kinase,AMPK)信号通路是细胞能量调节的核心机制,主要响应能量状态变化,维持能量平衡。SYC通过激活AMPK信号通路,增强细胞对葡萄糖和脂肪酸的利用,抑制能量浪费并提高ATP合成效率,从而优化瘤胃的能量供应[19]。在此过程中,纤维分解菌代谢产生的SCFAs通过单羧酸转运体1(monocarboxylate transporter 1,MCT1)被瘤胃上皮细胞高效吸收,为宿主提供直接能量来源,同时通过G蛋白偶联受体41(G-protein coupled receptor 41,GPR41)调控宿主能量代谢与炎性反应[20]。最后,SYC可能通过清除氧气降低氧化还原电位,抑制有害厌氧菌增殖,同时促进乳酸利用菌的活性,缓解亚急性瘤胃酸中毒风险[21]。在受到亚急性瘤胃酸中毒影响的泌乳期荷斯坦奶牛饲粮中补充SYC后,发现瘤胃微生物群的稳健性得到了显著增强,降低了菌群的相对丰度波动,并提升了乳酸利用菌和纤维分解菌数量[22]。具体机制为SYC通过促进乳酸利用菌的丙酮酸脱氢酶复合体(pyruvate dehydrogenase complex,PDC)活性,加速乳酸向丙酸或丁酸的转化,避免乳酸积累导致的pH下降,从而缓解亚急性瘤胃酸中毒。同时,SYC还通过上调碳酸酐酶2(carbonic anhydrase 2,CA2)的表达,加速二氧化碳(CO2)与碳酸氢根(HC O 3 -)的转化,缓冲瘤胃pH波动,为瘤胃微生物提供稳定的代谢环境[23]

2.2 强化瘤胃屏障功能

核因子E2相关因子2(nuclear factor e2-related factor 2,Nrf2)作为细胞氧化还原稳态的核心调控因子,通过特异性结合抗氧化反应元件(antioxidant response element,ARE),实现对细胞氧化应激防御系统的转录级联激活。研究表明,SYC可通过激活Nrf2/ARE信号通路上调超氧化物歧化酶(superoxide dismutase,SOD)和谷胱甘肽过氧化物酶(glutathione peroxidase,GPx)的基因表达,显著降低瘤胃液中ROS浓度,保护纤维分解菌免受氧化损伤,维持其纤维素降解效率,最终提升粗饲料消化率与VFA浓度[24]。此外,SYC还可通过激活PI3K-Akt信号通路促进瘤胃上皮细胞分泌闭合蛋白和闭锁小带蛋白-1(zonula occludens-1,ZO-1),提升瘤胃上皮跨膜电阻值,显著降低内毒素渗透量,缓解慢性炎症导致的代谢耗能,间接提升饲料转化效率[25-26]

3 SYC对牛免疫功能的调控作用及机制

3.1 先天免疫与适应性免疫的协同激活

SYC对牛生产性能的优化作用与其先天免疫激活和炎症平衡的多维度调控密切相关。饲粮中添加SYC可显著降低育肥期安格斯杂交公牛体内炎性因子白细胞介素-6(interleukin-6,IL-6)和白细胞介素-8(interleukin-8,IL-8)浓度[15],显著提高抗氧化酶活性。SYC添加还与安格斯杂交犊牛体内肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、IL-6和IFN-γ浓度降低相关,伴随犊牛炎性反应减弱[27]。其机制为SYC通过模式识别受体激活先天免疫应答,当SYC释放的β-葡聚糖结合树突状细胞相关C型凝集素-1(dendritic cell-associated C-type lectin-1,Dectin-1)受体后,通过其胞内免疫受体酪氨酸激活基序结构域的磷酸化修饰,触发脾酪氨酸激酶(spleen tyrosine kinase,Syk)的构象依赖性激活[28]。激活后的Syk通过磷酸化半胱天蛋白酶募集域蛋白(caspase recruitment domain-containing protein 9,CARD9)-B细胞淋巴瘤10(B-cell lymphoma/leukaemia 10,BCL10)-黏膜相关淋巴组织1(mucosal-associated lymphoid tissue 1,MALT1)复合体激活转化生长因子β激活激酶1(transforming growth factor-β-activated kinase 1,TAK1)级联反应[29],活化的TAK1通过磷酸化IκB激酶复合体(IκB kinase complex,IKK complex),促使κB抑制蛋白α(inhibitor of κB alpha,IκBα)发生泛素化降解,从而释放核因子-κB(nuclear factor-κB,NF-κB)二聚体转位入核,通过结合靶基因调控区并募集转录共激活因子,启动TNF-αIL-6等促炎因子转录,快速清除病原[30]。此外,SYC还可通过调节T细胞亚群分化增强适应性免疫应答。

3.2 炎性反应动态平衡

SYC可通过抑制过度炎症的发生维持体内免疫稳态。饲粮中添加SYC可显著减轻断奶期安格斯杂交阉牛体内TNF-α和半胱天冬酶1(cysteinyl aspartate-specific protease 1,Caspase1)含量[8],进而减轻炎性反应。其机制为Caspase1在调控促炎细胞因子如白细胞介素-1β(interleukin-1β,IL-1β)和白细胞介素-18(interleukin-18,IL-18)的成熟中起着关键作用[31],NOD样受体蛋白3炎症小体(NOD-like receptor family pyrin domain containing 3 inflammasome,NLRP3)是免疫细胞内的重要复合体,参与炎性反应的启动。SYC抑制NLRP3活化的核心机制在于靶向阻断凋亡相关斑点样蛋白(apoptosis-associated speck-like protein containing a CARD,ASC)的寡聚化过程,当细胞接收到危险信号时,NLRP3识别信号并通过其热蛋白结构域(pyrin domain,PYD)与ASC结合,而SYC在此阶段通过特异性干扰ASC与PYD结构域相互作用,阻止其形成寡聚化的“斑点样结构”复合物,导致ASC无法通过CARD结构域有效募集Caspase1前体[32]。这种空间阻断使NLRP3丧失功能性组装基础,Caspase1前体因缺乏寡聚化诱导的邻近效应而无法自切割活化,导致具有酶切活性的Caspase-1生成量显著减少[33];而未被活化的Caspase1因无法切割IL-1β前体和IL-18前体进而抑制成熟IL-1β和IL-18的释放,最终提升机体抗氧化能力并减轻炎性反应[34]

4 SYC对牛肉品质的调控作用及机制

4.1 脂肪代谢调控与大理石花纹优化

SYC通过协调脂肪合成与分解的动态平衡,显著提升肌内脂肪(intramuscular fat,IMF)沉积及大理石花纹等级。在育肥期秦川牛饲粮中添加SYC可显著提高秦川牛的眼肌面积和大理石花纹评分等级,显著上调脂肪代谢相关基因的表达,进一步提升了牛肉的大理石花纹等级[35]。其机制为SYC通过上调脂肪酸合成酶(fatty acid synthase,FAS)及脂肪酸转运蛋白(fatty acid transporter,FAT)的基因表达,催化脂肪酸的从头合成及向IMF组织的转运,促进IMF沉积[36];SYC可增强脂肪分解能力,通过激活过氧化物酶体增殖物激活受体α(peroxisome proliferator-activated receptor α,PPARα)信号通路上调肉碱棕榈酰转移酶1(carnitine palmitoyltransferase 1,CPT1)的基因表达,促进脂肪酸β氧化,减少脂肪过度沉积[37];SYC还可优化IMF分布,通过上调脂肪酸结合蛋白(fatty acid binding proteins,FABP)的基因表达,促进脂肪酸在肌细胞内的储存与运输,使脂肪均匀分布于肌束间,从而提升大理石花纹等级评分[38]

4.2 脂肪酸优化与风味物质调控

牛肉脂肪酸谱特征与挥发性有机化合物谱共同构成其营养特性评估体系的核心评价维度,是解析肉品食用品质形成机制的关键生化标记物。在饲粮中添加SYC不仅改善了育肥期安格斯肉牛的生长性能和胴体性状,还显著提升了牛肉的嫩度[39],特别是对于饲喂高精饲料的育肥期安格斯肉牛,补充SYC后显著改善了牛肉品质,其胸长肌更为嫩滑、多汁且风味更佳[40]。其机制为SYC通过上调硬脂酰辅酶A去饱和酶1(stearoyl-coa desaturase 1,SCD1)的基因表达,促进油酸(oleic acid,OA,C18∶1)和亚油酸(linoleic acid,LA,C18∶2)的合成[41],通过增加不饱和脂肪酸含量、减少饱和脂肪酸积累来提升有益脂肪酸的比例。牛肉挥发性风味化合物谱系的生物合成网络主要锚定于脂肪酸代谢谱系的动态平衡,醛类物质因为容易被感知且容易生成,是牛肉甜香味的核心成分,还能转化成果香味的酯类物质;酮类物质由糖和蛋白质反应以及脂肪氧化共同产生,自带果香和奶香,能通过分子间相互作用调整肉的整体风味层次。SYC通过优化脂肪酸组成,促进脂质氧化生成醛类和酮类,赋予牛肉坚果香和奶油香[42]。此外,SYC通过激活Nrf2/ARE信号通路上调SODGPx的基因表达,减少硫代巴比妥酸反应物(thiobarbituric acid reactive substances,TBARS)生成,抑制过度氧化导致的异味,从而从多方面提升牛肉品质和风味。

5 SYC调控牛生理机能的多维作用网络

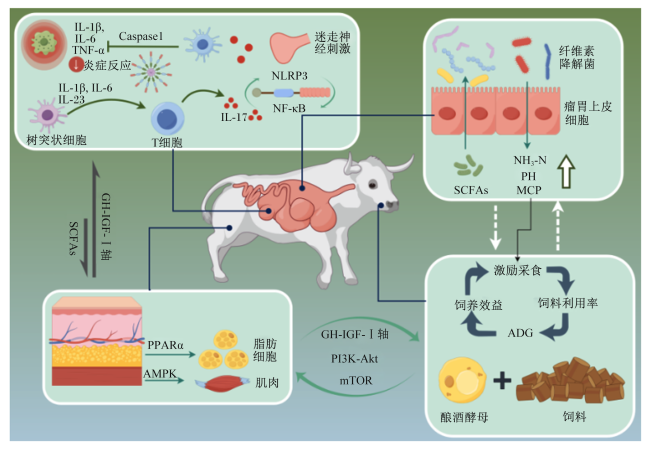
SYC通过多重机制的协调作用,全面调控反刍动物的各项生理机能,而GH-IGF-Ⅰ轴、PI3K-Akt信号通路、NF-κB信号通路等关键信号通路在反刍动物生长发育、免疫调节和肉质提升等多个环节中紧密相互作用,形成多维度生理调控网络。在生长与代谢协同方面,GH-IGF-Ⅰ轴驱动肌肉生长,mTOR信号通路强化蛋白质合成,二者通过PI3K-Akt信号串联,共同提升饲料转化率与生长效率;在免疫与炎性平衡方面,NF-κB信号通路在免疫激活与炎症抑制间保持动态平衡,NLRP3协同调控避免组织损伤,GH-IGF-Ⅰ轴通过增强细胞修复能力,间接调控免疫功能;在能量分配整合方面,AMPK信号通路与PPARα信号通路响应SCFAs信号,优化能量分配至肌肉生长与脂肪代谢,形成“生长-免疫-代谢”三位一体的调控网络。如图1所示,SYC通过GH-IGF-Ⅰ轴驱动肌肉生长,mTOR信号通路强化蛋白质合成,而NF-κB信号通路平衡免疫与炎性反应,三者通过PI3K-Akt信号串联,形成一个跨通路的协同网络,最终优化反刍动物的生长性能、免疫稳态与能量代谢效率。
图1 SYC对牛生理机能的调控网络(由Figdraw绘制)

IL-1β:白细胞介素-1β interleukin-1β;IL-6:白细胞介素-6 interleukin-6;IL-23:白细胞介素-23 interleukin-23;IL-17:白细胞介素-17 interleukin-17;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;Caspase1:半胱天冬酶1 cysteinyl aspartate-specific protease 1;NLRP3:NOD样受体蛋白3炎症小体 NOD-like receptor family pyrin domain containing 3 inflammasome;NF-κB:核因子-κB nuclear factor-κB;SCFAs:短链脂肪酸 short-chain fatty acids;NH3-N:氨态氮 ammonia nitrogen;MCP:微生物蛋白 microbial cell protein;ADG:平均日增重 average daily gain;GH-IGF-Ⅰ轴:生长激素-胰岛素样生长因子-Ⅰ轴 growth hormone-insulin-like growth factor-Ⅰ axis;PI3K-Akt:磷脂酰肌醇3-激酶-蛋白激酶B phosphatidylinositol 3-kinase-protein kinase B;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator-activated receptor α;AMPK:腺苷酸活化蛋白激酶 AMP-activated protein kinase。

Fig.1 Regulatory network of SYC on bovine physiological functions (drawn by Figdraw)

6 小结与展望

随着我国反刍动物集约化养殖规模的持续扩大,开发兼具环境友好性与生产高效性的功能性饲料添加剂已成为推动畜牧业绿色转型的关键突破口。SYC作为一种多效性功能产品,通过调节瘤胃微生态平衡、增强免疫屏障功能、优化能量代谢及促进肌内脂肪沉积等机制,可显著提升牛的生长性能、健康水平及肉品质。然而,其应用仍面临SYC中活性成分的作用机制尚未完全解析、发酵工艺波动导致产品质量不稳定、缺乏统一的质量标准与效果评估方法等诸多挑战。随着相关研究的深入以及多组学测序技术等生物技术的发展,应结合多组学技术深入研究其作用机制,建立发酵过程动态监控体系,实现机制解析的深度化、工艺优化的精准化、标准制定的科学化和应用场景的差异化。通过跨学科协作与大数据驱动的精准饲喂策略,SYC有望成为反刍动物健康养殖的核心技术,推动畜牧业向高效、低碳、可持续方向转型。
[1]
D'ABRAMO L R. Sustainable aquafeed and aquaculture production systems as impacted by challenges of global food security and climate change[J]. Journal of the World Aquaculture Society, 2021, 52(6):1162-1167.

[2]
TIAN S F, ZENG W Z, GUAN X, et al. Effects of fortified starter culture containing Saccharomyces cerevisiae and Lactobacillus fermentum on microbial community structure and ethyl carbamate[J]. Food Control, 2022,137:108890.

[3]
GUO J, XU L, KHALOUEI H, et al. Saccharomyces cerevisiae fermentation products reduce bacterial endotoxin concentrations and inflammation during grain-based subacute ruminal acidosis in lactating dairy cows[J]. Journal of Dairy Science, 2022, 105(3):2354-2368.

[4]
THOMAS M, SERRENHO R C, PUGA S O, et al. Effect of feeding a Saccharomyces cerevisiae fermentation product to Holstein cows exposed to high temperature and humidity conditions on milk production performance and efficiency-a pen-level trial[J]. Journal of Dairy Science, 2023, 106(7):4650-4665.

[5]
DHUNGANA A, ODUNFA O, BLAIR J, et al. PSX-17 effects of Saccharomyces cerevisiae fermentation product on methane production of steers fed a finishing diet[J]. Journal of Animal Science, 2024, 102(S3):746-747.

[6]
JENSEN G S, PATTERSON K M, YOON I. Yeast culture has anti-inflammatory effects and specifically activates NK cells[J]. Comparative Immunology,Microbiology and Infectious Diseases, 2008, 31(6):487-500.

[7]
GÖNCÜ S, BOZKURT S, GÖRGÜLÜ M. The effect of yeast (Saccharomyces cerevisiae) on fattening performances of growing cattle[J]. MOJ Ecology&Environmental Sciences, 2020, 5(3):109-111.

[8]
ADEYEMI J A, HARMON D L, COMPART D M P, et al. Effects of a blend of Saccharomyces cerevisiae-based direct-fed microbial and fermentation products in the diet of newly weaned beef steers:growth performance,whole-blood immune gene expression,serum biochemistry,and plasma metabolome1[J]. Journal of Animal Science, 2019, 97(11):4657-4667.

[9]
WANG G Y, QIN S L, ZHENG Y N, et al. Propionate promotes gluconeogenesis by regulating mechanistic target of rapamycin (mTOR) pathway in calf hepatocytes[J]. Animal Nutrition, 2023,15:88-98.

[10]
SUMIYOSHI R, KOGA T, FUKUI S, et al. Exploring the role of insulin-like growth factor binding protein-1 in identifying idiopathic multicentric Castleman's disease types:implications for the mTOR signaling pathway[J]. Clinical Immunology, 2023,256:109798.

[11]
CORONAS-SERNA J M, VALENTI M, DEL VAL E, et al. Modeling human disease in yeast:recreating the PI3K-PTEN-Akt signaling pathway in Saccharomyces cerevisiae[J]. International Microbiology, 2020, 23(1):75-87.

[12]
GONG W, ZHANG N D, CHENG G, et al. Rehmannia glutinosa libosch extracts prevent bone loss and architectural deterioration and enhance osteoblastic bone formation by regulating the IGF-1/PI3K/mTOR pathway in streptozotocin-induced diabetic rats[J]. International Journal of Molecular Sciences, 2019, 20(16):3964.

[13]
LIN Y, YU C L, MA Z, et al. Effects of yeast culture supplementation in wheat-rice-based diet on growth performance,meat quality,and gut microbiota of growing-finishing pigs[J]. Animals, 2022, 12(17):2177.

[14]
CONDER E, SHAY H C, VEKARIA H J, et al. Butyrate-induced mitochondrial function improves barrier function in inflammatory bowel disease(IBD)[J]. Gastroenterology, 2023, 164(4):S91.

[15]
RIENTS E L, DETERS E L, MCGILL J L, et al. Effects of feeding a Saccharomyces cerevisiae fermentation product and ractopamine hydrochloride to finishing beef steers on growth performance,immune system,and muscle gene expression[J]. Journal of Animal Science, 2023,101:skac311.

[16]
ALI M, AHMED S, ALI M, et al. Effects of Saccharomyces cerevisiae live cells and culture on growth and productive performance in lactating Nili-Ravi buffaloes[J]. Tropical Animal Health and Production, 2023, 55(4):283.

[17]
HU B W, LI H M, ZHANG X Q. A balanced act:the effects of GH-GHR-IGF1 axis on mitochondrial function[J]. Frontiers in Cell and Developmental Biology, 2021,9:630248.

[18]
SHEN Y Z, WANG H R, RAN T, et al. Influence of yeast culture and feed antibiotics on ruminal fermentation and site and extent of digestion in beef heifers fed high grain rations[J]. Journal of Animal Science, 2018, 96(9):3916-3927.

[19]
LIANG Z Q, JIN C J, BAI H X, et al. Low rumen degradable starch promotes the growth performance of goats by increasing protein synthesis in skeletal muscle via the AMPK-mTOR pathway[J]. Animal Nutrition, 2023,13:1-8.

[20]
PARADA VENEGAS D, et al.DE LA FUENTE M K,LANDSKRON G, Short chain fatty acids (SCFAs)-mediated gut epithelial and immune regulation and its relevance for inflammatory bowel diseases[J]. Frontiers in Immunology, 2019,10:277.

[21]
GUO J F, ZHANG Z X, GUAN L L, et al. Postbiotics from Saccharomyces cerevisiae fermentation stabilize rumen solids microbiota and promote microbial network interactions and diversity of hub taxa during grain-based subacute ruminal acidosis (sarA) challenges in lactating dairy cows[J]. Frontiers in Microbiology, 2024,15:1409659.

[22]
GUO J F, ZHANG Z X, GUAN L L, et al. Postbiotics from Saccharomyces cerevisiae fermentation stabilize microbiota in rumen liquid digesta during grain-based subacute ruminal acidosis (SARA) in lactating dairy cows[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):101.

[23]
TAN P P, ZHAO C X, DONG Y, et al. A network pharmacology and multi-omics combination approach to reveal the effect of strontium on Ca2+ metabolism in bovine rumen epithelial cells[J]. International Journal of Molecular Sciences, 2023, 24(11):9383.

[24]
SIVINSKI S E, MEIER K E, MAMEDOVA L K, et al. Effect of Saccharomyces cerevisiae fermentation product on oxidative status,inflammation,and immune response in transition dairy cattle[J]. Journal of Dairy Science, 2022, 105(11):8850-8865.

[25]
ZHAO Y J, GUO W Y, GU X L, et al. Repression of deoxynivalenol-triggered cytotoxicity and apoptosis by mannan/β-glucans from yeast cell wall:involvement of autophagy and PI3K-AKT-mTOR signaling pathway[J]. International Journal of Biological Macromolecules, 2020,164:1413-1421.

[26]
KUO W T, ZUO L, ODENWALD M A, et al. The tight junction protein ZO-1 is dispensable for barrier function but critical for effective mucosal repair[J]. Gastroenterology, 2021, 161(6):1924-1939.

[27]
BURDICK SANCHEZ N C, CARROLL J A, BROADWAY P R, et al. Some aspects of the acute phase immune response to a lipopolysaccharide (LPS) challenge are mitigated by supplementation with a Saccharomyces cerevisiae fermentation product in weaned beef calves[J]. Translational Animal Science, 2020, 4(3):txaa156.

[28]
KNOBLOCK C E, SHI W, YOON I, et al. Effects of supplementing a Saccharomyces cerevisiae fermentation product during the periparturient period on the immune response of dairy cows fed fresh diets differing in starch content[J]. Journal of Dairy Science, 2019, 102(7):6199-6209.

[29]
YE S J, HUANG H, XIAO Y, et al. Macrophage dectin-1 mediates Ang Ⅱ renal injury through neutrophil migration and TGF-β1 secretion[J]. Cellular and Molecular Life Sciences, 2023, 80(7):184.

[30]
LEI C Q, WU X, ZHONG X, et al. USP19 inhibits TNF-α-and IL-1β-triggered NF-κB activation by deubiquitinating TAK1[J]. Journal of Immunology, 2019, 203(1):259-268.

[31]
VALENTI M, MOLINA M, CID V J. Heterologous expression and auto-activation of human pro-inflammatory caspase-1 in Saccharomyces cerevisiae and comparison to caspase-8[J]. Frontiers in Immunology, 2021,12:668602.

[32]
FU J N, WU H. Structural mechanisms of NLRP3 inflammasome assembly and activation[J]. Annual Review of Immunology, 2023,41:301-316.

[33]
BOUCHER D, MONTELEONE M, COLL R C, et al. Caspase-1 self-cleavage is an intrinsic mechanism to terminate inflammasome activity[J]. Journal of Experimental Medicine, 2018, 215(3):827-840.

[34]
YANG J Q, XIA X Y, DU M, et al. Highly effective nobiletin-MPN in yeast microcapsules for targeted modulation of oxidative stress,NLRP3 inflammasome activation,and immune responses in ulcerative colitis[J]. Journal of Agricultural and Food Chemistry, 2024, 72(23):13054-13068.

[35]
叶连萌, 杨朝云, 卢鑫, 等. 添加生物饲料对肉牛大理石纹相关基因表达的影响[J]. 安徽农业大学学报, 2020, 47(4):524-529.

YE L M, YANG Z Y, LU X, et al. Effect of adding a biological feed on the expression of marbling-related genes in beef cattle[J]. Journal of Anhui Agricultural University, 2020, 47(4):524-529. (in Chinese)

[36]
TEGELER A P, FIALLO-DIEZ J, MICHELOTTI T, et al. 32 depot-specific transcriptome and adipocyte metabolism in intramuscular and subcutaneous adipose tissue in beef cattle[J]. Journal of Animal Science, 2023, 101(S1):16-17.

[37]
TAHRI-JOUTEY M, ANDREOLETTI P, SURAPUREDDI S, et al. Mechanisms mediating the regulation of peroxisomal fatty acid beta-oxidation by PPARα[J]. International Journal of Molecular Sciences, 2021, 22(16):8969.

[38]
SCHOLZ H, KOHLWEIN S D, PALTAUF F, et al. Expression of a functionally active cardiac fatty acid-binding protein in the yeast,Saccharomyces cerevisiae[J]. Molecular and Cellular Biochemistry, 1990, 98(1/2):69-74.

[39]
GENG C Y, REN L P, ZHOU Z M, et al. Comparison of active dry yeast (Saccharomyces cerevisiae) and yeast culture for growth performance,carcass traits,meat quality and blood indexes in finishing bulls[J]. Animal Science Journal, 2016, 87(8):982-988.

[40]
WILLIAMS M S, MANDELL I B, WOOD K M, et al. The effects of feeding benzoic acid and/or active dry yeast (Saccharomyces cerevisiae) on fatty acid composition,sensory attributes,and retail shelf-life of beef longissimus thoracis[J]. Translational Animal Science, 2023, 7(1):txac161.

[41]
LIU R M, FANG X B, LU X, et al. Polymorphisms of the SCD1 gene and its association analysis with carcass, meat quality,adipogenic traits,fatty acid composition,and milk production traits in cattle[J]. Animals, 2024, 14(12):1759.

[42]
BAI H X, ZHANG M M, ZHAO Y F, et al. Altering the ratio of palmitic,stearic,and oleic acids in dietary fat affects nutrient digestibility,plasma metabolites,growth performance,carcass,meat quality,and lipid metabolism gene expression of Angus bulls[J]. Meat Science, 2023,199:109138.

文章导航

/