研究论文

植物甾醇对肉鸽生长性能、血清生化指标及肝脏组织转录组和代谢组的影响

  • 何玉琴 , 1, 2 ,
  • 陈冬金 3 ,
  • 谢璐娜 4 ,
  • 许卫华 1 ,
  • 林标声 , 1, 5, *
展开
  • 1 龙岩学院生命科学学院,龙岩 364012
  • 2 福建省家畜传染病防治与生物技术重点实验室,龙岩 364012
  • 3 福建省农业科学院畜牧兽医研究所,福州 350013
  • 4 福建省龙岩市动物疫病预防控制中心,龙岩 364000
  • 5 预防兽医学与生物技术福建省高等学校重点实验室,龙岩 364012
*林标声,副教授,E-mail:

何玉琴(1981—),女,福建福清人,副教授,硕士,从事天然药物的研究。E-mail:

Copy editor: 武海龙

收稿日期: 2025-03-28

  网络出版日期: 2025-11-14

基金资助

福建省科技厅对外合作项目(2023I0026)

龙岩市重点项目(2023LYF9002)

龙岩市重点项目(2024LYF9035)

福建省家畜传染病防治与生物技术重点实验室开放课题(ZDSYS2024006)

福建省科技厅产学研合作项目(2023N5009)

中央引导地方科技发展专项(2023L3069)

Effects of Phytosterols on Growth Performance, Serum Biochemical Indices and Hepatic Transcriptome and Metabolome of Meat Pigeons

  • HE Yuqin , 1, 2 ,
  • CHEN Dongjin 3 ,
  • XIE Luna 4 ,
  • XU Weihua 1 ,
  • LIN Biaosheng , 1, 5, *
Expand
  • 1 College of Life Science, Longyan University, Longyan 364012, China
  • 2 Longyan University & Fujian Provincial Key Laboratory for Prevention and Control of Animal Infectious Diseases and Biotechnology, Longyan 364012, China
  • 3 Animal Husbandry and Veterinary Research Institute, Fujian Academy of Agricultural Sciences, Fuzhou 350013, China
  • 4 Animal Disease Prevention and Control Center of Longyan City, Longyan 364000, China
  • 5 Key Laboratory of Fujian Universities Preventive Veterinary Medicine and Biotechnology, Longyan 364012, China
*associate professor, E-mail:

Received date: 2025-03-28

  Online published: 2025-11-14

摘要

本试验旨在探究植物甾醇对肉鸽生长性能、血清生化指标及肝脏组织转录组和代谢组的影响。选取28日龄离乳健康银王肉鸽120只,随机分为4组,每组6个重复,每个重复5只肉鸽。对照组(A组)饲喂基础饲粮,试验组(B、C、D组)分别在基础饲粮中添加20、40和80 mg/kg植物甾醇。预试期7 d,正试期30 d。结果表明:1)与A组相比,B、C、D组平均日采食量、平均日增重显著提高(P<0.05),C、D组料重比显著降低(P<0.05)。2)与A组相比,C、D组血清总蛋白、白蛋白和球蛋白含量显著提高(P<0.05)。3)肝脏转录组测序分析显示,与A组相比,B、C、D组肝脏差异表达基因数目较多,且主要参与脂肪酸降解、脂肪酸代谢和脂肪酸生物合成等通路。4)肝脏代谢组测序分析显示,添加植物甾醇能改变肝脏中多种脂质代谢物的含量,胆固醇、三酰基甘油等含量呈下降趋势,而硫酸己糖基神经酰胺、油酸甲酯等含量呈上升趋势。5)肝脏差异表达基因与脂质代谢物之间的关联分析表明,ATP结合盒亚家族A成员1(ABCA1)、磷脂转移蛋白(PLTP)基因对脂质代谢物的影响较大,且与多种脂质代谢途径表现出极显著相关性(P<0.01)。综上所述,饲粮中添加40 mg/kg植物甾醇能够改善肉鸽的生长性能和血清生化指标,调节肝脏基因表达和脂质代谢;植物甾醇通过调节ABCA1和PLTP基因的表达,影响脂质代谢,降低胆固醇等脂质的积累,同时促进某些脂质代谢物的生成和积累,从而改善肉鸽的脂质代谢和健康状况。

本文引用格式

何玉琴 , 陈冬金 , 谢璐娜 , 许卫华 , 林标声 . 植物甾醇对肉鸽生长性能、血清生化指标及肝脏组织转录组和代谢组的影响[J]. 动物营养学报, 2025 , 37(11) : 7593 -7606 . DOI: 10.12418/CJAN2025.617

Abstract

This study aimed to explore the effects of phytosterols on the growth performance, serum biochemical indices and hepatic transcriptome and metabolome of meat pigeons. A total of 120 healthy 28-day-old weaned silver king pigeons were randomly divided into 4 groups with 6 replicates per group and of 5 pigeons per replicate. The control group (group A) was fed a basal diet, and the experimental groups (groups B, C and D) were fed basal diets supplemented with 20, 40 and 80 mg/kg phytosterols, respectively. The pre-experimental period lasted for 7 days, and the experimental period lasted for 30 days. The results showed as follows: 1) compared to group A, the average daily feed intake and average daily gain of groups B, C and D were significantly increased (P<0.05), and the feed to gain ratio of groups C and D were significantly decreased (P<0.05). 2) Compared to group A, the contents of total protein, albumin and globulin in serum of groups C and D were significantly increased (P<0.05). 3) The hepatic transcriptome sequencing analysis showed that compared to group A, the number of differentially expressed genes in liver of groups B, C and D was higher, and primarily involved in fatty acid degradation, fatty acid metabolism and fatty acid biosynthesis pathways. 4) The hepatic metabolome sequencing analysis showed that phytosterol supplementation could change the contents of multiple lipid metabolites in liver, the contents of cholesterol and triacylglycerols et al showed a decreasing trend, while the contents of sulfated hexosylceramides and oleic acid methyl ester et al showed an increasing trend. 5) The correlation analysis between hepatic differentially expressed genes and lipid metabolites showed that the ATP binding cassette subfamily A member 1 (ABCA1) and phospholipid transfer protein (PLTP) genes significantly influenced the lipid metabolism, and were strongly associated with multiple lipid metabolic pathways (P<0.01). In conclusion, diet supplemented with 40 mg/kg phytosterols can improve the growth performance and serum biochemical indices of meat pigeons, regulate the liver gene expression and lipid metabolism; the phytosterols can regulate the ABCA1 and PLTP genes expression, then affect the lipid metabolism, reduce the accumulation of lipids such as cholesterol, and promote the generation and accumulation of certain lipid metabolites through, thereby improve the lipid metabolism and health status of meat pigeons.

近年来我国畜牧业迅速发展,养殖业结构也在不断进行调整和完善。在这种大环境的影响下,肉鸽养殖业不断发挥自身优势,在福建龙岩,肉鸽养殖已经成为特色产业,存栏数量不断增加,在农业经济发展上起到了重要作用[1]。鸽肉中含有丰富的蛋白质、维生素和微量元素,营养和药用价值极高,在膳食配方以及中药方剂的配伍中应用广泛。随着健康饮食理念越来越受到大众认同,人们对鸽肉品质以及营养价值都提出了更高要求。如何为肉鸽提供良好的饲养环境、配制平衡饲粮、有效控制疫病及提高鸽肉品质等,成为业界关注和探讨的热点[2-3]。1~2月龄童鸽离开种鸽后基本不会自主采食,在新环境里适应力弱,抗病力较差,在此阶段很容易因沙门氏菌病、新城疫等常见鸽群疫病引起大量的童鸽死亡。因此,为了满足肉鸽的营养需要,促进肉鸽在童鸽饲养阶段的生长发育以及增强其抗病能力,需要通过在饲粮中添加含量不足或本身就不含的营养性或非营养性物质,完善饲粮的全价性[4-5]。自2020年7月1日起,饲料生产企业禁止生产含抗生素类的饲料添加剂[6],为了安全高效的解决以上问题,探索绿色、高效的功能性饲料添加剂,对于实现肉鸽在童鸽饲养阶段增强体质和抗病能力、改善健康状况、促进生长、提高养殖效益具有十分重要的意义。
植物甾醇(phytosterols,PS)属于植物性甾体化合物,其结构与胆固醇相似,不能在动物或人体内合成,却广泛存在于植物的根、茎、叶和果实中[7]。植物甾醇被誉为“生命的钥匙”,具有十分重要的生理功能,包括抗炎、抗氧化、调节脂质代谢等,这些特性使得植物甾醇成为了潜在的保肝护肝药物成分[8]。有研究表明,植物甾醇具有抗氧化和抗炎作用,能够有效清除体内自由基,减少肝脏氧化应激损伤,从而改善肝脏功能,这对于动物在应激状态下的肝脏保护尤为重要[9]。此外,植物甾醇还可以调节动物体内的脂质代谢,降低血液中的胆固醇含量,这对于预防动物因脂质代谢紊乱而引发的肝脏疾病,如脂肪肝等,具有积极作用[10]。因此,近年来随着对植物甾醇生理功能认识的不断深化,其药用价值越来越受到人们的重视。
2008年,植物甾醇被我国农业农村部批准为饲料添加剂新品种,获准在畜禽商品饲料中使用[11]。植物甾醇作为一种功能性饲料添加剂,能促进动物生长、增进健康、提高生产性能、改善畜产品品质、提高养殖经济效益,在饲料工业中具有广阔的应用前景[12]。目前,植物甾醇在畜牧业上的应用研究主要集中在生猪和家禽方面[13-14],在肉鸽上的应用研究还未见报道。因此,本试验以肉鸽为研究对象,研究饲粮中添加不同水平植物甾醇对肉鸽生长性能、血清生化指标及肝脏组织转录组和代谢组的影响,探明植物甾醇在童鸽饲养阶段饲粮中的适宜添加水平,从保肝护肝方面明确植物甾醇作用机理,为进一步开发以植物甾醇为核心的功能性饲料添加剂提供理论参考。

1 材料与方法

1.1 试验设计

试验由龙岩学院伦理委员会批准进行(批准号:2025027X)。选择120只28日龄、初始体重为(417.06±19.24) g的离乳健康银王肉鸽(福建凰鸽生态农业发展有限公司提供),随机分成4组,每组6个重复,每个重复5只肉鸽。对照组(A组)饲喂基础饲粮,试验组(B、C、D组)分别在基础饲粮中添加20、40和80 mg/kg植物甾醇(纯度95.22%)。试验共进行37 d,其中预试期7 d,正试期30 d。试验用饲粮均使用制粒机制粒,试验组将不同比例植物甾醇与颗粒料混匀后制粒。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)%

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
玉米Corn 51.0 粗蛋白质CP 13.76
豌豆Pea 32.0 赖氨酸Lys 1.10
小麦Wheat 7.0 蛋氨酸Met 0.46
高粱Sorghum 7.0 钙Ca 1.20
食盐NaCl 0.5 磷P 0.54
石粉Limestone 1.5 代谢能ME/(MJ/kg) 12.33
预混料Premix1) 1.0
合计Total 100.0

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:生物素 biotin 1.34 mg,叶酸 folic acid 0.55 mg,烟酸 niacin 15.00 mg,泛酸 pantothenic acid 7.50 mg,VA 6 000 IU,VD 31 200 IU,VE 34 IU,VB1 3.2 mg,VB2 720 mg,VB6 0.10 mg,Cu 12.00 mg,Fe 35.00 mg,Zn 35.00 mg,Mn 55.00 mg,I 0.25 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.2 饲养管理

饲养试验于龙岩学院生命科学学院动物房进行。试验时采用3层阶梯式鸽笼饲养肉鸽,单笼单鸽饲喂,预试期对每只肉鸽进行采食训练,保证其正试期可以进行自主采食,并在饮水中加入甲硝唑净化毛滴虫,给药期为3 d。试验期开始每个重复使用自封袋称取鸽保健砂0.5 kg,饲粮5 kg,自封袋上标记好称料时间以及料重信息。试验期间肉鸽自由采食,自由饮水,鸽舍保持自然通风,定期清洗食槽、水杯,清理粪板。鸽舍提供人工照明,保证16 h光照(20 lx),并结合实际天气情况适当增减人工照明时间。

1.3 测定指标

1.3.1 营养成分测定

饲粮粗蛋白质含量测定参照《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)的方法,赖氨酸、蛋氨酸含量测定参照《饲料中氨基酸的测定》(GB/T 18246—2019)的方法,钙含量测定参照《饲料中钙的测定》(GB/T 6436—2018)的方法,磷含量测定参照《饲料中总磷的测定》(GB/T 6437—2018)的方法。饲粮代谢能按照各原料消化能值和配比进行计算,各原料消化能参照《白羽肉种鸽营养需要量》(DB3208/T 187—2022)。

1.3.2 生长性能测定

饲养期间以重复为单位,详细记录每天的采食量。于试验开始、试验结束当天08:00对每组肉鸽进行空腹称重,以重复为单位记录2个阶段的体增重和耗料量,计算试验期总采食量、平均日增重(average daily gain,ADG)、平均日采食量(average daily feed intake,ADFI)和料重比(feed to gain ratio,F/G)。

1.3.3 血清生化指标

于试验结束后,从每组每个重复随机挑选2只肉鸽,进行翅下静脉采血,分离血清,采用试剂盒(南京建成生物工程研究所)进行丙氨酸氨基酸转移酶、天冬氨酸氨基转移酶、γ-谷氨酰转移酶活性和总胆固醇、甘油三酯、总蛋白、白蛋白、球蛋白含量检测。

1.3.4 肝脏转录组测序

于试验结束后,从每组每个重复随机挑选2只肉鸽,采集肝脏,混合均匀后采用TRIzol Reagent总RNA提取试剂盒(南京建成生物工程研究所)提取各样本总RNA,各样本RNA纯度和长度检测合格后通过北京奥维森基因科技有限公司Illumina HiSeq 4000高通量测序平台进行双端转录组测序。所得的测序数据经过滤、Trimmomatic(v0.33)软件去除带有测序接头及一些低质量的reads,随后以参考基因组原鸽(Columba livia)(NCBI)为模板,通过Tophat 2、Cufflinks(v2.1.1)软件对所获得优质序列进行比对、组装,再进行转录组测序(RNA-Seq)相关性检查。根据基因表达水平分析中得到的read count数据来进行基因差异表达分析,使用DESeq(1.10.1)进行差异表达分析[15],筛选条件为q值(q-value)<0.05[16]。通过GOseq软件对差异表达基因(differentially expressed genes,DEGs)进行GO富集分析[17],利用京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)数据库进行富集分析及差异表达基因的功能注释和分类[18]

1.3.5 肝脏代谢组测序

采用超高效液相色谱-串联质谱(ultra-high performance liquid chromatography-tandem mass spectrometry,UHPLC-MS/MS)非靶向代谢组学方法分析各组样品的脂质组成。将上述各组每个重复随机挑选的肉鸽(2只)混合均匀的肝脏取25 mg至EP管中,加入匀浆珠、200 μL水、480 μL的提取液(甲基叔丁基醚∶甲醇=5∶1,体积比)混匀30 s,放入匀浆仪中匀浆(35 Hz,4 min),再转移到冰水浴超声5 min,-40 ℃静置1 h,1 621×g、4 ℃离心15 min;取上清300 μL于EP管中,低温真空干燥。向干燥样本加入200 μL的提取液(二氯甲烷∶甲醇=1∶1,体积比)进行复溶,水浴超声10 min,1 621×g、4 ℃离心10 min,取100 μL上清液于进样瓶中上机检测。
各样品采用Vanquish超高效液相色谱仪(美国Thermo Fisher Scientific公司),通过Phenomenex Kinetex C18液相色谱柱(2.1 mm×100 mm,2.6 μm)对目标化合物进行色谱分离。液相色谱A相为40%水和60%乙腈溶液(含10 mmol/L甲酸铵);B相为10%乙腈,90%异丙醇,其中含10 mmol/L甲酸铵水溶液;进样体积2 μL。色谱柱分离得到的样品通过Orbitrap Exploris120质谱仪(美国Thermo Fisher Scientific公司)进行二级质谱数据采集。色谱分析条件:鞘气流量设定为30 arb,辅助气体流量为10 arb;毛细管温度320(正)或320 ℃(负);全扫描模式下毫秒分辨率设置为60 000,ms/ms模式下设置为15 000。碰撞能量在NCE模式下分别设置为15、30和45。喷雾电压在正离子模式下为3.8 kV,在负离子模式下为-3.4 kV。所获得的质谱原始数据使用ProteoWizard软件将其转成mzXML格式,再使用X液相色谱-质谱(X-chromatography-mass spectrometry,XCMS)开源软件包做保留时间矫正、峰识别、峰提取、峰积分、峰对齐等工作,最小组分数(minimum fraction,minfrac)设为0.5,截止值(cutoff value,cutoff)设为0.3。最后使用测序平台实验室的基于XCMS软件、自撰写R程序包及lipidblast数据库进行脂质鉴定。
采用主成分分析(principal component analysis,PCA)和正交偏最小二乘法判别分析(partial least squares-discriminant analysis,PLS-DA)了解各组样本之间的脂质代谢物含量差异和组内样本之间的变异度大小,以P<0.05且变量重要性投影(variable importance in projection,VIP)>1为差异显著的筛选标准[19]。对应用筛选标准鉴定得到的差异脂质代谢物质的原始相对含量按行采用单位差异缩放(unit variance scaling,UV)处理,通过R软件ComplexHeatmap包绘制热图,分析各组脂质相对含量的变化规律[20]

1.4 肉鸽肝脏与脂质代谢物的关联分析

为探讨各组肉鸽肝脏基因表达对其主要脂质的影响,选取VIP>1的前20种脂质和相对丰度排名前25的差异表达基因进行Spearman相关性层次聚类分析,相关系数(r)以颜色来表示,r>0表示正相关,以红色来表示,r<0表示负相关,以蓝色来表示,颜色越深表示相关性越强[21]

1.5 数据统计与分析

对各组收集的生长性能、血清生化指标数据采用SPSS 25.0软件进行单因素方差分析,采用Duncan氏法比较各组之间的差异显著性;各组数据用平均值±标准差表示,P<0.05表示差异显著。

2 结果和分析

2.1 植物甾醇对肉鸽生长性能的影响

表2所示,与A组相比,B、C、D组总采食量和ADFI显著提高(P<0.05),且C组总采食量和ADFI显著低于B、D组(P<0.05)。与A组相比,B、C、D组ADG显著提高(P<0.05),且B组ADG显著低于C、D组(P<0.05)。与A组相比,C、D组F/G显著降低(P<0.05),且C组F/G显著低于B组(P<0.05)。上述结果表明,饲粮中添加40 mg/kg植物甾醇对肉鸽生长性能具有较好的促进作用。
表2 植物甾醇对肉鸽生长性能的影响

Table 2 Effects of phytosterols on growth performance of meat pigeons

项目
Items
组别Groups P
P-value
A B C D
初始体重IBW/g 416.50±46.85 443.00±39.65 412.00±89.91 396.75±47.63 0.742
终末体重FBW/g 465.25±38.43 506.00±22.61 478.75±49.71 465.00±49.71 0.672
总采食量TFI/g 1 189.00±78.20c 1 247.25±60.49a 1 213.50±55.94b 1 257.50±79.36a 0.032
平均日采食量ADFI/(g/d) 32.14±4.23c 33.71±3.27a 32.80±3.02b 33.99±4.29a 0.032
平均日增重ADG/(g/d) 1.32±0.48c 1.70±0.65b 1.80±0.33a 1.85±0.45a 0.005
料重比F/G 27.43±11.93a 23.58±13.59ab 18.58±3.43c 19.52±6.70bc 0.011

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 植物甾醇对肉鸽血清生化指标的影响

表3所示,与A组相比,B、C、D组血清总蛋白含量显著提高(P<0.05),且B组血清总蛋白含量显著低于D组(P<0.05)。与A组相比,C、D组血清白蛋白和球蛋白含量显著提高(P<0.05)。各组之间丙氨酸氨基酸转移酶、天冬氨酸氨基转移酶、γ-谷氨酰转移酶活性和总胆固醇、甘油三酯含量均无显著差异(P>0.05),但B、C、D组较A组均有所降低。上述结果表明,饲粮中添加40 mg/kg植物甾醇对肉鸽血清生化指标具有一定的改善作用。
表3 植物甾醇对肉鸽血清生化指标的影响

Table 3 Effects of phytosterols on serum biochemical indices of meat pigeons

项目
Items
组别Groups P
P-value
A B C D
丙氨酸氨基酸转移酶
Alanine aminotransferase/(U/L)
8.80±0.67 8.36±0.17 8.03±0.27 7.80±0.06 0.321
天冬氨酸氨基转移酶
Aspartate transaminase/(U/L)
349.80±35.38 327.50±12.97 315.04±5.31 304.70±7.82 0.442
γ-谷氨酰转移酶
γ-glutamyl transferase/(U/L)
2.67±0.58 2.67±0.23 2.63±0.48 2.50±0.23 0.990
总胆固醇
Total cholesterol/(mmol/L)
4.46±0.29 4.39±0.12 4.17±0.09 3.98±0.20 0.343
甘油三酯
Triglycerides/(mmol/L)
1.91±0.53 1.80±0.27 1.50±0.20 1.24±0.10 0.474
总蛋白Total protein/(g/L) 19.70±0.35c 24.47±1.69b 28.63±0.12ab 29.03±0.68a <0.001
白蛋白Albumin/(g/L) 9.23±0.44b 11.90±0.70ab 12.47±1.08a 12.77±0.59a 0.035
球蛋白Globulin(g/L) 10.47±0.13b 13.57±1.03ab 16.17±1.17a 16.27±1.11a 0.008

2.3 植物甾醇对肉鸽肝脏转录组的影响

2.3.1 差异表达基因的筛选

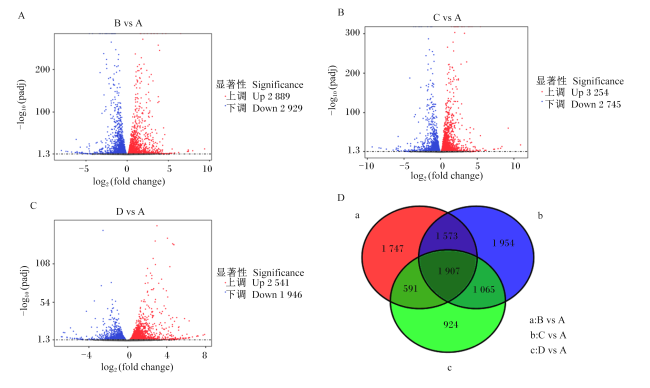
通过|log2差异倍数(fold change)|>1且q值<0.05设定标准筛选各组样品肝脏差异表达基因,与A组相比,B组有差异表达基因5 818个,其中上调差异表达基因2 889个,占比49.66%;下调差异表达基因2 929个,占比50.34 %(图1-A)。与A组相比,C组有差异表达基因6 008个,其中上调差异表达基因3 254个,占比54.17%;下调差异表达基因2 754个,占比45.83%(图1-B)。与A组相比,D组有差异表达基因4 487个,其中上调差异表达基因2 541个,占比56.63%;下调差异表达基因1 946个,占比43.37 %(图1-C)。以外显子每千碱基片段百万比(FPKM)>1作为判断基因表达的标准,4组共同表达基因1 907个,与A组相比,B组特有表达基因1 747个,C组特有表达基因1 954个,D组特有表达基因924个(图1-D)。以上结果表明,当饲粮中植物甾醇添加水平为40 mg/kg时,其基因表达与对照组差异最大;当饲粮中植物甾醇添加水平为80 mg/kg时,其基因表达与对照组差异最小。
图1 差异表达基因的火山图和韦恩图

padj:校正P值 adjust P-value;fold change:差异倍数;B vs A:B组与A组相比 group B compared with group A;C vs A:C组与A组相比 group C compared with group A;D vs A:D组与A组相比 group B compared with group A。下图同 the same as below。

Fig.1 Volcano diagram and venn diagram of DEGs

2.3.2 差异表达基因KEEG富集分析

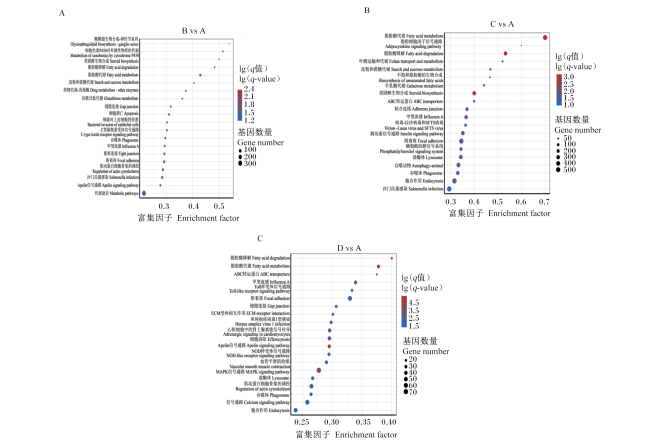
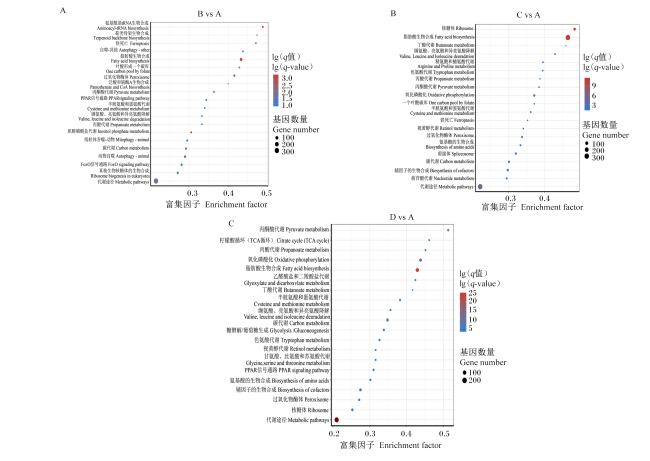
对上述各组差异表达基因进行KEEG富集分析,其中富集最显著的20条KEGG代谢通路分析如图2图3所示。各组上调差异表达基因富集最显著的代谢通路为脂肪酸降解(fatty acid degradation)和脂肪酸代谢(fatty acid metabolism);各组下调差异表达基因富集最显著的代谢通路为脂肪酸生物合成(fatty acid biosynthesis),富集基因数目最多的代谢通路为代谢途径(metabolic pathways)。其中,当饲粮中植物甾醇添加水平为40 mg/kg时,在上调和下调的富集最显著的20条KEGG代谢通路上,其脂肪酸降解、脂肪酸代谢和脂肪酸生物合成代谢通路富集基因数目均最多。以上结果表明,饲粮中添加植物甾醇有利于增强脂肪酸降解和代谢、抑制脂肪酸合成,有助于降低动物体内脂肪酸的积累,降低血脂水平。
图2 上调差异表达基因的KEEG富集代谢通路

Fig.2 KEEG enrichment metabolic pathways of up-regulated DEGs

图3 下调差异表达基因的KEEG富集代谢通路

Fig.3 KEEG enrichment metabolic pathways of down-regulated DEGs

2.4 植物甾醇对肉鸽肝脏代谢组的影响

2.4.1 各组样品的聚类分析
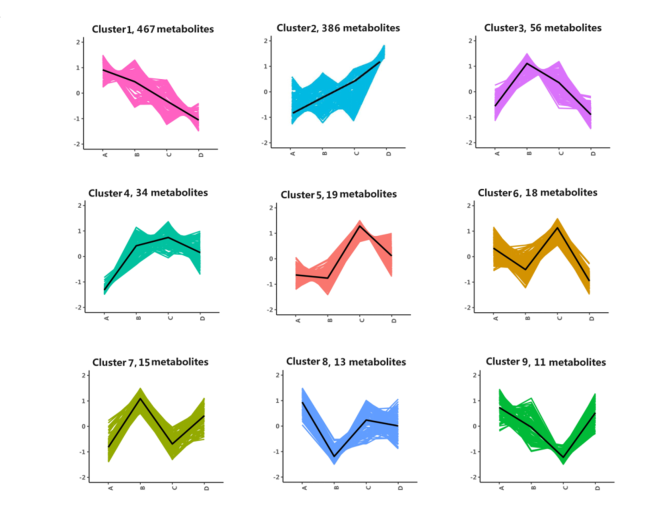
脂质非靶代谢组分析表明,4组12个样品通过UHPLC-MS/MS平台测序分析后得到2 998个脂质代谢物,包括甘油磷脂973个、甘油酯1 075个、鞘脂766个、异戊烯醇脂11个、甾醇酯132个、脂肪酰基41个,其中4组的差异脂质代谢物为1 019个。为了研究差异脂质代谢物质在不同分组中的相对含量变化趋势,将4组中按照筛选标准鉴定得到全部差异脂质代谢物的相对含量进行UV处理,随后进行K均值(K-means)聚类分析,结果表明差异脂质代谢物变化趋势中主要为聚类1和聚类2(图4)。
图4 4组脂质的K-means分析图

Cluster:聚类;metababolites:代谢物。

Fig.4 K-means analysis chart of lipids in four groups

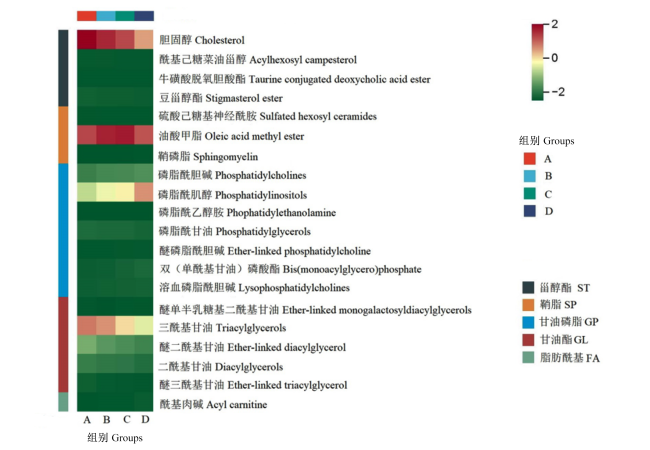
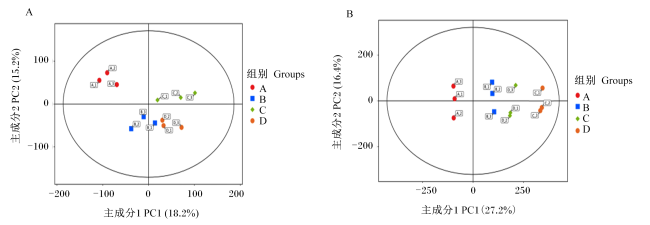
PCA和PLS-DA(图5)均表明,添加不同水平植物甾醇的B、C、D组与A组差异最大,不能很好地聚类在一起;添加不同水平植物甾醇之间,B、D组之间能较好地聚类在一起,与C组有一定的差异。4组样品主要测定的脂质按VIP值大小排列前20的统计信息见表4,绘制的热图见图6。总体上,随着植物甾醇添加水平的增加,胆固醇、三酰基甘油、醚二酰基甘油、二酰基甘油、醚三酰基甘油和豆甾醇酯等含量呈下降趋势,硫酸己糖基神经酰胺、磷脂酰胆碱、磷脂酰肌醇、磷脂酰乙醇胺、磷脂酰甘油、醚磷脂酰胆碱等含量呈下上升趋势。推测原因可能是植物甾醇在体内可能与胆固醇竞争吸收位点,从而抑制胆固醇的吸收和合成,导致胆固醇含量下降。同时,植物甾醇可能激活或调节特定的脂质代谢通路,促进某些脂质的生成或积累。例如,它可能通过调节酶的活性或影响信号通路,促进磷脂酰胆碱等磷脂质的合成,使其含量上升。此外,植物甾醇还可能影响脂肪酸的代谢,改变脂质的分布和储存,进一步影响其他脂质的含量变化。
图5 4组的PCA(A)和PLS-DA(B)聚类分析

Fig.5 PCA (A) and PLS-DA (B) clustering analysis in four groups

图6 4组差异物质的热图分析

Fig.6 Heat map analysis of differential substances in 4 groups

表4 4组主要测定的脂质信息统计

Table 4 Statistical analysis of mainly measured lipid information in 4 groups

序号
Serial
Numbers
物质名称
Material names
物质一级分类
Primary classification of
substances
变量重要
性投影
VIP
P
P-value
变化趋势
Change trend
可能机理推测
Possible mechanism
speculation
1 胆固醇Cholesterol 甾醇酯Sterol lipids 1.83 0.25×10⁻² Cluster 1,下降 结构与功能竞争,阻断脂质更新
2 硫酸己糖基神经酰胺
Sulfated hexosyl ceramides
鞘脂Sphingolipids 1.82 0.63×10⁻² Cluster 2,上升 鞘酶抑制致酰胺聚集
3 油酸甲酯Oleic acid methyl ester 脂肪酰基Fatty acyls 1.78 1.11×10⁻² Cluster 4,上升再下降 促进脂肪酸乙酰化储存
4 磷脂酰胆碱Phosphatidylcholines 甘油磷脂Glycerophospholipids 1.78 0.84×10⁻² Cluster 2,上升 增强脂质转运
5 醚单半乳糖基二酰基甘油
Ether-linked monogalactosyldiacylglycerols
甘油酯Glycerolipids 1.75 0.92×10⁻² Cluster 8,下降、
上升再下降
激发受体激活
回补机制维持稳态
6 磷脂酰肌醇Phosphatidylinositols 甘油磷脂Glycerophospholipids 1.75 0.87×10⁻² Cluster 2,上升 磷脂酰肌醇-3-激酶/
蛋白激酶B信号通路调控
7 三酰基甘油Triacylglycerols 甘油酯Glycerolipids 1.74 1.66×10⁻² Cluster 1,下降 抑制脂肪合成
8 醚二酰基甘油Ether-linked diacylglycerol 甘油酯Glycerolipids 1.73 0.76×10⁻² Cluster 1,下降 醚脂合成受阻
9 磷脂酰乙醇胺Phophatidylethanolamine 甘油磷脂Glycerophospholipids 1.70 1.65×10⁻² Cluster 2,上升 干扰甲基供体结合域减少物质转化
10 酰基己糖菜油甾醇Acylhexosyl campesterol 甾醇酯Sterol lipids 1.68 3.39×10⁻² Cluster 3,
上升再下降
阻断内源甾醇生物合成
路径的中间产物积累
11 二酰基甘油Diacylglycerols 甘油酯Glycerolipids 1.66 4.30×10⁻² Cluster 1,下降 抑制羟甲基戊二酰辅酶A
还原酶阻断内源甾醇合成
12 磷脂酰甘油Phosphatidylglycerols 甘油磷脂Glycerophospholipids 1.64 4.23×10⁻² Cluster 2,上升 胆固醇损耗促磷脂代偿性合成
13 醚磷脂酰胆碱
Ether-linked phosphatidylcholine
甘油磷脂Glycerophospholipids 1.63 3.07×10⁻² Cluster 2,上升 烷基甘油醚合成代偿性增强
14 醚三酰基甘油Ether-linked triacylglycerol 甘油酯Glycerolipids 1.59 4.54×10⁻² Cluster 1,下降 抑制单酰甘油酯脂酶
活性阻断脂质更新
15 酰基肉碱Acyl carnitine 脂肪酰基Fatty acyls 1.59 4.33×10⁻² Cluster 2,上升 促长链脂肪酸β-氧化
16 双(单酰基甘油)磷酸酯
Bis(monoacylglycero)phosphate
甘油磷脂Glycerophospholipids 1.58 4.72×10⁻² Cluster 2,上升 增强脂质转运
17 牛磺酸脱氧胆酸酯
Taurine conjugated deoxycholic acid ester
甾醇酯Sterol lipids 1.50 1.31×10⁻² Cluster 2,上升 胆汁酸-辅酶A连接酶活性提升
18 鞘磷脂Sphingomyelin 鞘脂Sphingolipids 1.43 3.64×10⁻² Cluster 2,上升 干扰鞘磷脂酶,抑制鞘磷脂降解
19 豆甾醇酯Stigmasterol ester 甾醇酯Sterol lipids 1.35 2.32×10⁻² Cluster 1,下降 累积外源甾醇
20 溶血磷脂酰胆碱
Lysophosphatidylcholines
甘油磷脂Glycerophospholipids 1.12 1.80×10⁻² Cluster 2,上升 膜磷脂重构与磷脂酶激活裂解

2.5 肝脏转录组与脂质代谢组的关联分析

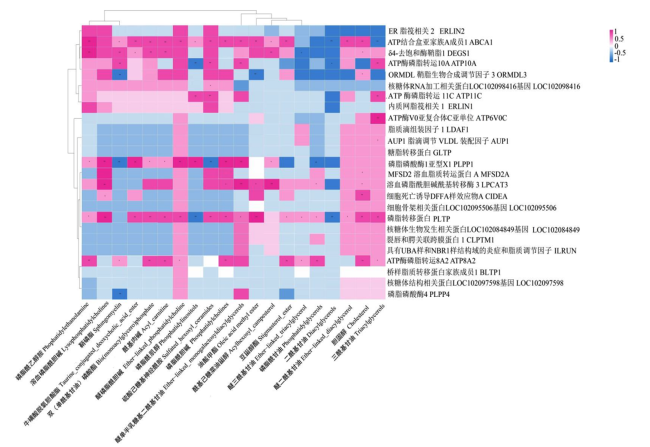
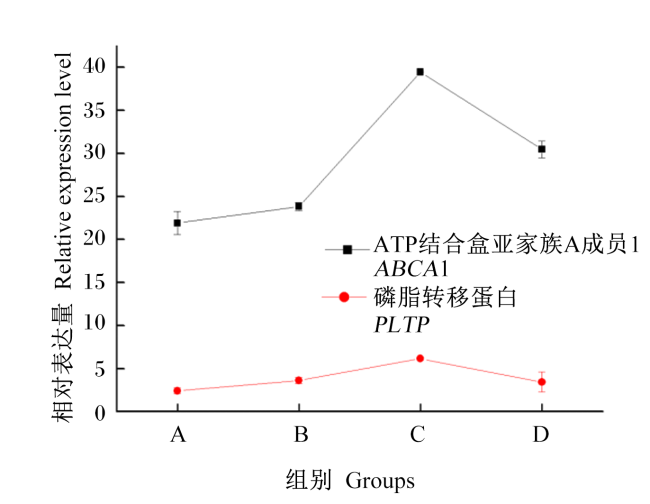
所筛选的20种脂质代谢物和差异表达基因的Spearman相关性层次聚类分析如图7所示,两者之间29对具有显著相关性(P<0.05),63对具有极显著相关性(P<0.01)。ATP结合盒亚家族A成员1(ATP binding cassette subfamily A member 1,ABCA1)、δ4-去饱和酶鞘脂1(delta 4-desaturase sphingolipid 1,DEGS1)、ATP酶磷脂转运10A(ATPase phospholipid transporting 10A,ATP10A)、磷脂磷酸酶1亚型X1(phospholipid phosphatase 1 isoform X1,PLPP1)、溶血磷脂酰胆碱酰基转移酶3(lysophosphatidylcholine acyltransferase 3,LPCAT3)、磷脂转移蛋白(phospholipid transfer protein,PLTP)和ATP酶磷脂转运8A2(ATPase phospholipid transporting 8A2,ATP8A)对脂质代谢物的影响较大。其中,ABCA1和PLTP基因对多种脂质代谢物的影响较大,在多种脂质代谢途径中均表现出极显著相关性(P<0.01),表明它们在多种脂质代谢途径中发挥核心作用,其功能的改变可能对整个脂质代谢网络产生广泛影响。此外,如图8所示,与A组相比,ABCA1和PLTP基因在B、C、D组别中表达增强,基因相对表达量呈上升再下降的趋势。其中,C组ABCA1和PLTP基因相对表达量明显高于B、D组,这可能就是植物甾醇对脂质代谢调节作用在C组最为显著的原因。
图7 转录组主要基因与脂质代谢物之间的Spearman相关性分析

Fig.7 Spearman correlation analysis between major genes in transcriptome and lipid metabolites

图8 ABCA1和PLTP基因在4组中的相对表达量

Fig.8 Relative expression levels of ABCA1 and PLTP genes in 4 groups

3 讨论

本研究通过在肉鸽童鸽饲养阶段饲粮中添加不同水平的植物甾醇,探究其对肉鸽生长性能、血清生化指标及肝脏组织转录组和代谢组的影响,结果表明,植物甾醇具有促生长和改善健康的作用,其内在机制主要体现在以下几个方面:1)植物甾醇添加组的ADFI、ADG和F/G等生长性能指标均有提升,尤其是40 mg/kg添加水平组效果最好。
这可能与植物甾醇的多种生理功能有关。一方面,植物甾醇具有抗炎和抗氧化作用,能够有效清除体内自由基,减少肝脏氧化应激损伤,从而改善肝功能,为肉鸽的生长提供更加良好的生理基础[22]。肝脏是动物体内重要的代谢器官,其功能的优化有助于提高营养物质的代谢和利用效率,进而促进生长。另一方面,植物甾醇可能通过调节动物体内的脂质代谢,改善肉鸽的营养吸收和利用,从而促进生长[23]。2)植物甾醇能显著降低肉鸽血清中丙氨酸氨基酸转移酶、天冬氨酸氨基转移酶、γ-谷氨酰转移酶活性和总胆固醇、甘油三酯含量,提高总蛋白、白蛋白和球蛋白含量,其中40 mg/kg添加水平对血清生化指标的改善作用最好。这些血清生化指标的改善对于提高肉鸽童鸽饲养阶段的免疫力具有极其重要的意义。丙氨酸氨基酸转移酶、天冬氨酸氨基转移酶和γ-谷氨酰转移酶活性的降低,意味着肝脏功能得到优化[24],肝脏在免疫系统中扮演着关键角色,其功能的提升有助于增强童鸽的免疫功能。总蛋白和白蛋白含量的提高为免疫系统的正常运作提供了更充足的营养基础[25],白蛋白在维持机体正常生理功能和免疫反应中发挥着重要作用,其含量的增加能够增强童鸽的体质和抗病能力,从而在整体上提升童鸽的免疫力,使其在生长发育过程中能够更好地抵御疾病的侵袭,为健康生长奠定坚实基础。3)肝脏转录组测序分析发现,添加植物甾醇的各组与对照组相比,差异表达基因数目较多,且富集分析表明这些基因主要参与脂肪酸降解、脂肪酸代谢和脂肪酸生物合成等通路。肝脏代谢组测序分析显示,添加植物甾醇能改变肝脏中多种脂质代谢物的含量,如胆固醇、三酰基甘油等含量呈下降趋势,而硫酸己糖基神经酰胺、油酸甲酯等含量呈上升趋势。这些结果表明,植物甾醇可能通过调节肝脏基因表达和脂质代谢途径,降低动物体内脂肪酸的积累,改善脂质代谢。
在本研究中,ABCA1和PLTP基因对脂质代谢物的影响最为显著,在多种脂质代谢途径中均表现出极显著相关性。ABCA1作为ATP结合盒转运蛋白,主要参与胆固醇和磷脂的外排,对维持脂质稳态和胆固醇的逆向转运起关键作用,其表达增加通常会促进胆固醇和其他脂质的外流和清除,从而对多种脂质代谢产生重要影响[26-27]。PLTP则直接参与磷脂和胆固醇的转运,通过调节脂蛋白的重塑和脂质的分布,对胆固醇代谢、磷脂酰胆碱的转运以及油酸甲酯等脂质的代谢过程发挥重要作用[28]。在40 mg/kg添加水平组中,ABCA1和PLTP基因明显上调,可能是导致胆固醇、三酰基甘油等脂质代谢物含量下降,以及硫酸己糖基神经酰胺、磷脂酰胆碱等脂质代谢物含量上升的重要原因,进而改善了肉鸽的脂质代谢和健康状况。
此外,植物甾醇在其他动物模型中的研究也提供了重要的参考。在小鼠模型中,植物甾醇被证明可以显著降低血清胆固醇和甘油三酯含量,同时提高高密度脂蛋白胆固醇(HDL-C)含量[29],这与本研究中肉鸽的血清生化指标变化趋势一致。在猪的饲养试验中,植物甾醇的添加也显示出对生长性能和脂质代谢的积极影响,特别是在脂肪酸代谢和胆固醇合成途径中的基因表达调控方面[30]。这些研究结果表明,植物甾醇在不同动物模型中具有相似的生理功能和代谢调节机制,进一步支持了本研究的结论。

4 结论

植物甾醇通过调节ABCA1、PLTP等关键基因的表达,显著改善脂质代谢,降低胆固醇等脂质的积累,同时促进特定脂质代谢物的生成与积累,从而优化肉鸽肉鸽童鸽饲养阶段的健康状况和生长性能。植物甾醇不仅能够改善肉鸽肉鸽童鸽饲养阶段的血清生化指标和肝脏功能,还能在适宜添加水平(40 mg/kg)下增强其生长效率,提高养殖效益。
[1]
赵露. 规模肉鸽养殖场新型保健砂应用技术与分析[J]. 福建畜牧兽医, 2024, 46(6):68-69.

ZHAO L. Application technology and analysis of new health sand in large-scale pigeon breeding farms[J]. Fujian Journal of Animal Husbandry and Veterinary Medicine, 2024, 46(6):68-69. (in Chinese)

[2]
肖长峰, 丁梓钊, 吕文纬, 等. 发酵饲料对乳鸽屠宰性能、器官发育及肌肉品质的影响[J]. 中国饲料, 2024(15):131-136.

XIAO C F, DING Z Z, LV W W, et al. Effects of fermented feed on slaughter performance,organ development and muscle quality of squabs[J]. China Feed, 2024(15):131-136. (in Chinese)

[3]
YOGESWARA I B A, KUSUMAWATI I G A W, NURSINI N W, et al. Health-promoting role of fermented pigeon pea (Cajanus cajan L (Mill)) milk enriched with γ-aminobutyric acid (GABA) using probiotic Lactiplantibacillus plantarum Dad-13[J]. Fermentation, 2023, 9(7):e587.

[4]
OKIN O A, OLADAPE A A, AWOFADEJU O F J. Physical,chemical and sensory characteristics of cookies produced from fermented sorghum flour composited with roasted pigeon pea flour[J]. The Nigerian Agricultural Journal, 2021, 52(2):41-46.

[5]
姜世光, 王修启, 高春起. 肉鸽饲料原料的营养价值及营养需要量研究进展[J]. 养禽与禽病防治, 2020(8):32-37.

JIANG S G, WANG X Q, GAO C Q. Research progress on the nutritional value and nutritional requirements of meat pigeon feed raw materials[J]. Poultry Husbandry and Disease Control, 2020(8):32-37. (in Chinese)

[6]
印遇龙. 动物营养学:无抗时代下的精准营养与肠道城墙[J]. 中国科学(生命科学), 2020, 50(9):895-896.

YIN Y L. Animal nutrition:precise nutrition and intestinal barrier wall in the era of no antibiotic[J]. Scientia Sinica(Vitae)), 2020, 50(9):895-896. (in Chinese)

[7]
FONTANÉ L, PEDRO-BOTET J, GARCIA-RIBERA S, et al. Use of phytosterol-fortified foods to improve LDL cholesterol levels:a systematic review and Meta-analysis[J]. Nutrition,Metabolism,and Cardiovascular Diseases, 2023, 33(8):1472-1480.

[8]
PAVANI M, SINGHA P, DASH D R, et al. Novel encapsulation approaches for phytosterols and their importance in food products:a review[J]. Journal of Food Process Engineering, 2022, 45(8):e14041.

[9]
GUMEDE N M, LEMBEDE B W, NKOMOZEPI P, et al. Protective effect of β-sitosterol against high-fructose diet-induced oxidative stress,and hepatorenal derangements in growing female sprague-dawley rats[J]. Laboratory Animal Research, 2024, 40(1):30.

[10]
岑凤. 植物甾醇豆甾醇联合有氧运动对肥胖大鼠肠道菌群和肝脏脂代谢的影响[J]. 分子植物育种, 2023, 21(19):6523-6530.

CEN F. Impact of plant sterol combined with aerobic exercise on gut microbiota and hepatic lipid metabolism in obese rats[J]. Molecular Plant Breeding, 2023, 21(19):6523-6530. (in Chinese)

[11]
王恬, 周岩民, 顾莞婷. 植物甾醇的生物学功能及其在动物生产中的应用[J]. 饲料与畜牧(新饲料), 2009(1):9-15.

WANG T, ZHOU Y M, GU W T. Biological functions of phytosterols and its application in animal production[J]. Feed and Livestock (New Feed), 2009(1):9-15. (in Chinese)

[12]
张蓓, 杨歌谣. 植物甾醇的生物学功能及其对动物生产、经济效益影响的研究进展[J]. 饲料研究, 2024, 47(13):168-172.

ZHANG B, YANG G Y. Research progress on biological functions of phytosterols and their effects on animal production and economic benefits[J]. Feed Research, 2024, 47(13):168-172. (in Chinese)

[13]
夏英姿, 于振洋. 不同水平酯化植物甾醇对仔猪生长性能、免疫功能及血清生化指标的影响[J]. 饲料研究, 2023, 46(3):26-29.

XIA Y Z, YU Z Y. Effect of different levels of esterified phytosterols on growth performance,immune function and serum biochemical indexes of piglets[J]. Feed Research, 2023, 46(3):26-29. (in Chinese)

[14]
FENG X, ZHU H, CHEN B D, et al. Effects of phytosterols supplementation on growth performance and intestinal microflora of yellow-feather broilers[J]. Poultry Science, 2020, 99(11):6022-6030.

[15]
赵延辉, 邢凯, 原佳妮, 等. 不同分析软件对长白猪背膘厚差异表达基因鉴定结果的比较[J]. 中国畜牧杂志, 2021, 57(Z1):170-173.

ZHAO Y H, XING K, YUAN J N, et al. Comparison of identification results of differentially expressed genes in backfat thickness of Changbai pigs using different analysis software[J]. Chinese Journal of Animal Science, 2021, 57(Z1):170-173. (in Chinese)

[16]
WANG Z, GERSTEIN M, SNYDER M. RNA-Seq:a revolutionary tool for transcriptomics[J]. Nature Reviews Genetics, 2009, 10(1):57-63.

[17]
YANG X H, CHEN L, YANG Y, et al. Transcriptome analysis reveals that exogenous ethylene activates immune and defense responses in a high late blight resistant potato genotype[J]. Scientific Reports, 2020, 10(1):21294.

[18]
WANG Z R, SONG M Y, WANG Z, et al. Metabolome and transcriptome analysis of flavor components and flavonoid biosynthesis in fig female flower tissues (Ficus carica L.) after bagging[J]. BMC Plant Biology, 2021, 21(1):396.

[19]
LI J, XU Y X, DU W B, et al. Comparative analysis of aroma compounds in Chinese traditional dry-rendered fat by HS/GC-IMS,SPME/GC-MS,and SPME/GC-O[J]. Journal of Food Composition and Analysis, 2022,107:104378.

[20]
GU Z G, HÜBSCHMANN D. Make interactive complex heatmaps in R[J]. Bioinformatics, 2022, 38(5):1460-1462.

[21]
唐瑞霞, 苏晗, 邢倩. 类风湿关节炎患者肠道菌群变化及其骨代谢的相关性研究[J]. 风湿病与关节炎, 2022, 11(12):6-11,34.

TANG R X, SU H, XING Q. Study on the relationship between intestinal flora and bone metabolism in patients with rheumatoid arthritis[J]. Rheumatism and Arthritis, 2022, 11(12):6-11,34. (in Chinese)

[22]
EL OMARI N, BAKRIM S, KHALID A, et al. Unveiling the molecular mechanisms:dietary phytosterols as guardians against cardiovascular diseases[J]. Natural Products and Bioprospecting, 2024, 14(1):27.

[ 23 DBROWSKA A,

[24]
吴仁毅, 陈峰, 陈雷. 益生菌对非酒精性脂肪性肝病小鼠肠道菌群及STING信号通路的影响[J]. 中国微生态学杂志, 2022, 34(11):1292-1298.

WU R Y, CHEN F, CHEN L. Effects of probiotics on the intestinal flora and stimulator of interferon gene STING signal pathway in mice with non-alcoholic fatty liver[J]. Chinese Journal of Microecology, 2022, 34(11):1292-1298. (in Chinese)

[25]
刘辉, 季海峰, 王四新, 等. 乳酸片球菌对生长猪生长性能、粪便菌群、血清生化和免疫指标的影响[J]. 动物营养学报, 2020, 32(6):2558-2566.

LIU H, JI H F, WANG S X, et al. Effects of Pediococcus acidilactici on growth performance,fecal microbiota,serum biochemical and immune indexes of growing pigs[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2558-2566. (in Chinese)

[26]
FRIKKE-SCHMIDT R, NORDESTGAARD B G, STENE M C A, et al. Association of loss-of-function mutations in the ABCA1 gene with high-density lipoprotein cholesterol levels and risk of ischemic heart disease[J]. JAMA, 2008, 299(21):2524-2532.

[27]
DAI J N, HARVEY D, SUGALI C K, et al. The role of ATP-binding cassette transporter A1 (ABCA1) in glucocorticoid-induced lipid and extracellular matrix accumulation in the trabecular meshwork[J]. Investigative Ophthalmology & Visual Science, 2024, 65(7):e3582.

[28]
INDUMATHI B, ORUGANTI S S, SHARMA G, et al. Hypermethylation and reduced expression of lipoprotein metabolism genes ABCG1,LIPC and PLTP in obese and diabetic subjects:potential risk factors for coronary artery disease[J]. Indian Journal of Experimental Biology, 2023,61:517-525.

[29]
张沙, 邓圣庭, 方成堃, 等. 植物甾醇的性质、生理功能及其在动物生产中的应用研究[J]. 湖南饲料, 2022(1):43-48.

ZHANG S, DENG S T, FANG C K, et al. Research on the properties,physiological functions,and applications of plant sterols in animal production[J]. Hunan Feed, 2022(1):43-48. (in Chinese)

[30]
彭建, 陈刘浦, 贝亦江, 等. 植物甾醇的生理功能及在动物生产中的应用[J]. 饲料研究, 2021, 44(5):152-154.

PENG J, CHEN L P, BEI Y J, et al. Physiological functions and application in animal production of phytosterols[J]. Feed Research, 2021, 44(5):152-154. (in Chinese)

文章导航

/