研究论文

槲皮素对呕吐毒素诱导的仔猪肝细胞损伤和铁死亡信号通路的影响

  • 肖勇兵 ,
  • 张敏芳 ,
  • 徐启龙 ,
  • 吕青青 ,
  • 郭俊杰 ,
  • 刘玉兰 ,
  • 肖勘 , *
展开
  • 武汉轻工大学,动物营养与饲料科学湖北省重点实验室,武汉 430023
*肖勘,副教授,硕士生导师,E-mail:

肖勇兵(1998—),男,贵州铜仁人,硕士研究生,从事猪营养与免疫研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2025-05-16

  网络出版日期: 2025-11-14

基金资助

国家自然科学基金区域创新发展联合基金重点支持项目(U22A20517)

湖北省自然科学基金面上项目(2024AFB926)

Effects of Quercetin on Hepatocyte Injury and Ferroptosis Signaling Pathway of Deoxynivalenol-Induced Piglets

  • XIAO Yongbing ,
  • ZHANG Minfang ,
  • XU Qilong ,
  • LYU Qingqing ,
  • GUO Junjie ,
  • LIU Yulan ,
  • XIAO Kan , *
Expand
  • Hubei Key Laboratory of Animal Nutrition and Feed Science, Wuhan Polytechnic University, Wuhan 430023, China
*associate professor, E-mail:

Received date: 2025-05-16

  Online published: 2025-11-14

摘要

本试验旨在研究槲皮素(Que)对呕吐毒素(DON)诱导的仔猪肝细胞损伤、铁离子沉积和铁死亡信号通路的影响。选取24头28日龄的“杜×长×大”健康断奶仔猪[平均体重(6.9±0.8) kg],按体重一致原则随机分为4组,每组6个重复,每个重复1头猪。试验采用2×2因子设计,4组分别为对照组、Que组、DON组和Que+DON组。对照组饲喂基础饲粮,Que组、DON组和Que+DON组分别在基础饲粮中添加100 mg/kg Que、4 mg/kg DON和100 mg/kg Que+4 mg/kg DON。仔猪饲喂21 d后屠宰取肝脏样品检测。结果表明:1)与对照组相比,DON组肝脏中央静脉周围肝细胞索排列紊乱、炎症细胞浸润明显,肝细胞发生萎缩并伴随着核固缩、核溶解、细胞质空泡化;而与DON组相比,DON+Que组肝细胞形态得到明显改善、炎性细胞浸润减少。2)与对照组相比,DON组仔猪肝脏组织蓝染颗粒呈片状增多,铁离子沉积较多;而与DON组相比,DON+Que组仔猪肝脏组织有不同程度减少,铁离子沉积减少。3)与对照组相比,DON组仔猪肝细胞铁死亡信号通路关键基因铁离子外排蛋白1(FPN1)、溶质载体家族7成员11亚基(SLC7A11)、转铁蛋白(TF)、转铁蛋白受体1(TFR1)的mRNA相对表达量显著上升(P<0.05),谷胱甘肽过氧化物酶4(GPX4)的mRNA相对表达量显著降低(P<0.05);而与DON组相比,DON+Que组仔猪SLC7A11、TFTFR1的mRNA相对表达量显著降低(P<0.05)。综上所述,在本试验条件下,Que可抑制DON诱导的仔猪肝细胞铁死亡信号通路的激活,缓解仔猪肝细胞损伤和铁离子沉积。

本文引用格式

肖勇兵 , 张敏芳 , 徐启龙 , 吕青青 , 郭俊杰 , 刘玉兰 , 肖勘 . 槲皮素对呕吐毒素诱导的仔猪肝细胞损伤和铁死亡信号通路的影响[J]. 动物营养学报, 2025 , 37(11) : 7852 -7860 . DOI: 10.12418/CJAN2025.638

Abstract

This study aimed to investigated the effects of quercetin (Que) on the hepatocyte injury, iron ion deposition, and ferroptosis signaling pathway of deoxynivalenol (DON)-induced piglets. A total of 24 healthy weaned piglets (Duroc×Landrace×Yorkshire) [average body weight: (6.9±0.8) kg] at the age of 28 days were selected. According to body weight, they were randomly divided into 4 groups with 6 replicates per group, and 1 pig per replicate. A 2×2 factorial design was adopted, with the 4 groups being: control group, Que group, DON group, and Que+DON group. The control group was fed a basal diet, while the Que, DON, and Que+DON groups were supplemented with 100 mg/kg Que, 4 mg/kg DON, and 100 mg/kg Que+4 mg/kg DON based on the basal diet, respectively. After 21 days of feeding, piglets were slaughtered, and liver samples were collected for analysis. The results showed as follows: 1) compared with the control group, the DON group exhibited disorganized hepatocyte cords around the central vein and significant inflammatory cell infiltration, and hepatocytes exhibited atrophy accompanied by characteristic cellular damage, including nuclear pyknosis, karyolysis, and cytoplasmic vacuolization. Compared with the DON group, the Que+DON group showed markedly alleviated hepatocellular morphology and reduced inflammatory cell infiltration. 2) Compared with the control group, the DON group exhibited increased patchy blue granules and enhanced iron deposition in the liver. In contrast, the Que+DON group showed varying degrees of reduction in blue-stained granules and iron deposition relative to the DON group. 3) Compared with the control group, the DON group showed a significant increase in the mRNA relative expression of key ferroptosis-related genes, including ferroportin 1 (FPN1), solute carrier family 7 member 11 (SLC7A11), transferrin (TF), and transferrin receptor 1 (TFR1) (P<0.05), and exhibited a significant decrease in the mRNA relative expression of glutathione peroxidase 4 (GPX4) (P<0.05). Compared with the DON group, the Que+DON group showed significantly reduced mRNA expression of SLC7A11, TF, and TFR1 (P<0.05). In conclusion, under the conditions of this experiment, Que can inhibit the activation of the ferroptosis signaling pathway induced by DON, thereby alleviating hepatocyte injury and iron ion deposition in piglets.

肝脏是动物重要的解毒器官,具有代谢、解毒和合成蛋白质等生理功能,其功能的完整性对动物健康具有重要意义[1]。然而,许多因素如细菌和病毒感染等可引起肝脏枯否细胞激活,导致炎性细胞因子的大量释放,最终造成肝脏损伤和功能衰竭[2]。真菌毒素是一类由丝状真菌产生的有毒代谢物,呕吐毒素(deoxynivalenol,DON,又称为脱氧雪腐镰刀菌烯醇)是一种常见的真菌毒素,经常污染谷物和谷物制品[3]。DON在小肠吸收后,被转运到肝脏,在肝脏积累并进行分解[4],动物摄入DON后可导致肝脏炎症水平和肝脏组织损伤明显增加[5]
肝脏损伤伴随着细胞的死亡,铁死亡(ferroptosis)是一种铁依赖性细胞死亡形式。铁死亡会引起细胞多方面的损伤,表现为线粒体萎缩、铁离子沉积、氧化还原系统失衡以及活性氧积累[6]。铁超载、氧化还原系统失衡被广泛认为是导致铁死亡的主要原因[7]。细胞内的铁稳态主要是由铁反应元件-铁调节蛋白调控,铁调节蛋白通过识别mRNA上的铁反应元件调节铁代谢,铁反应元件包括转铁蛋白受体1(transferrin receptor 1,TFR1)以及铁离子外排蛋白1(ferroportin 1,FPN1)等[8],多余的铁离子通过FPN1转出细胞。当亚铁离子(Fe2+)过度沉积,与过氧化氢发生芬顿反应,生成大量羟自由基(·OH),·OH诱导形成脂质过氧化物,导致铁死亡。细胞内抗氧化系统失衡是导致细胞铁死亡的主要原因[7],Xc-系统是细胞膜上的一种氨基酸转运体,由溶质载体家族7成员11亚基(solute carrier family 7 member 11,SLC7A11)和溶质载体家族3成员2亚基(solute carrier family 3 member 2,SLC3A2)组成,其可以介导谷氨酸的外排和胱氨酸的摄取,胱氨酸进入细胞后迅速转化为半胱氨酸[9],用于合成谷胱甘肽。抑制Xc-系统的功能可减少谷胱甘肽的形成,从而影响谷胱甘肽过氧化物酶4(glutathione peroxidase 4,GPX4)的活性,导致脂质过氧化物积累,活性氧大量产生,最终导致铁死亡[10]。由上述研究结果可以看出,SLC7A11和GPX4是该途径中铁死亡的重要靶点。
槲皮素(quercetin,Que)又名栎精,是一种植物衍生的类黄酮,广泛存在于多种植物的茎皮、花、叶、芽、种子和果实中。据报道,Que具有广泛的生理功能,如抗氧化、抗炎等[11],而且Que还具有清除活性氧和维持谷胱甘肽水平等功能[12]。然而,Que是否能够缓解DON诱导的肝脏细胞损伤、炎症反应和铁死亡并不清楚。本试验通过在饲粮中添加DON来诱导仔猪发生肝脏损伤,探究Que对DON诱导的仔猪肝细胞损伤、铁离子沉积和铁死亡信号通路的影响,以期为Que缓解断奶仔猪肠道损伤提供数据支持。

1 材料与方法

1.1 伦理声明

本次动物试验由武汉轻工大学动物伦理委员会批准,批准编号为EM699。

1.2 试验材料

DON是通过培养禾谷镰刀菌W3008株获得,具体培养过程参照吕青青[13]报道的方法:将禾谷镰刀菌W3008株在马铃薯葡萄糖琼脂培养基上28 ℃下培养7 d以获得成熟孢子,将成熟孢子接种于烧瓶中培养28 d后,将烧瓶中霉菌污染的样品干燥过夜,混合,取样检测样品中的DON含量。Que购自Sigma-Aldrich公司。

1.3 试验设计

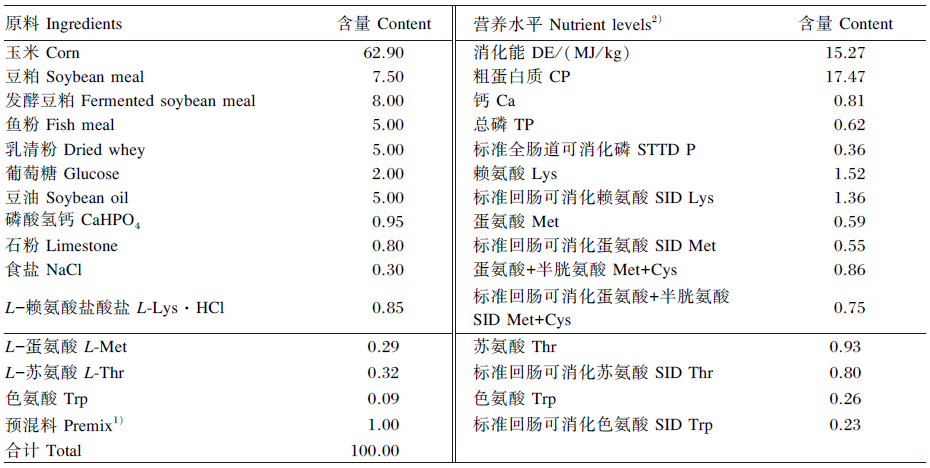
选取24头28日龄的“杜×长×大”健康断奶仔猪[平均体重(6.9±0.8) kg],按体重一致原则随机分为4组,每组6个重复,每个重复1头猪。试验采用2×2因子设计,4组分别为对照组、Que组、DON组和Que+DON组。参照NRC(2012)仔猪营养需要量配制基础饲粮,其组成及营养水平见表1。对照组饲喂基础饲粮,Que组、DON组和Que+DON组分别在基础饲粮中添加100 mg/kg Que、4 mg/kg DON、100 mg/kg Que+4 mg/kg DON。试验期间按照常规程序对试验仔猪进行饲养管理,饲喂21 d后对仔猪麻醉后屠宰,取肝脏样品检测。
表1 基础饲粮组成及营养水平(饲喂基础)

Table 1 Composition and nutrient levels of the basal diet (as-fed basis)%

1)预混料为每千克饲粮提供 Premix provided the following per kilogram of the diet:VA 5 512 IU,VD3 2 200 IU,VE 30 IU,VK3 4 mg,VB12 0.01 mg,核黄素 riboflavin 5.22 mg,D-泛酸钙 D-calcium pantothenate 20 mg,烟酸 nicotinic acid 26 mg,Mn (MnSO4·H2O) 40 mg,Fe (FeSO4·H2O) 75 mg,Zn (ZnSO4·7H2O) 75 mg,Cu (CuSO4·5H2O) 100 mg,I (CaI2) 0.3 mg,Se (Na2SeO3) 0.3 mg。

2)粗蛋白质、钙、总磷为实测值,分别参考GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018测定;其余营养水平为计算值,均参照《中国饲料成分及营养价值表(2023年第34版)》计算。CP, Ca and TP were determined values, analyzed according to GB/T 6432—2018, GB/T 6436—2018, and GB/T 6437—2018, respectively. The remaining nutrient levels were calculated values, all calculated with reference to the China Feed Composition and Nutritional Value Table (34th edition, 2023).

1.4 样品采集及处理

将仔猪肝脏取出放置在冰面上,使用冷生理盐水进行清洗。切取1小块肝脏组织(体积约为1.5 cm3),并将其固定在4%多聚甲醛溶液中,待制备组织切片进行光学显微镜检查;剩余肝脏组织用剪刀剪碎,锡纸包裹后先保存在液氮中,再转移到-80 ℃冰箱保存待测。

1.5 测定指标和方法

1.5.1 苏木精-伊红(HE)染色分析肝脏组织形态与结构

将固定在4%多聚甲醛溶液中的肝脏组织取出,进行梯度脱水和包埋后制成厚度5 μm的石蜡切片。参照Ding等[14]的方法对石蜡切片进行HE染色、树脂胶封片等处理后,在Olympus光学显微镜下观察。

1.5.2 普鲁士蓝染色分析肝脏组织铁离子沉积情况

普鲁士蓝染色参照Pu等[15]的方法进行,先将肝脏组织石蜡切片在新鲜制备的5%六氰基铁酸钾三水合物和5%盐酸溶液(37 ℃)中浸染60 min,然后用蒸馏水洗涤2遍,切片经过无水乙醇、二甲苯、中性树胶封片处理,最后在Olympus光学显微镜下观察。

1.5.3 肝细胞铁死亡信号通路关键基因mRNA相对表达量测定

将-80 ℃冰箱保存的肝脏样品取出,取适量研磨后按照RNAiso Plus裂解液说明书提取肝脏总RNA,使用PrimeScript® RT Reagent Kit with gDNA Eraser反转录试剂盒将RNA反转录成cDNA,并在-20 ℃保存备用。根据已在NCBI上发表的猪的基因序列,利用Primer Premier 6.0设计目的基因的引物序列,并由武汉擎科生物科技有限公司合成,引物序列见表2。以cDNA为模板,使用ABI 7500 Real-time PCR仪进行PCR扩增。反应体系(20 μL)由10.0 μL SYBR® Premix Ex TaqTM(2×)、0.4 μL ROX reference dyeⅡ(10×)、2.0 μL cDNA、6.8 μL RNase free dH2O、0.4 μL上游引物(10 μmol/L)、0.4 μL下游引物(10 μmol/L)组成。反应条件:95 ℃预变性30 s;95 ℃变性5 s,60 ℃退火/延伸34 s,40个循环。反应结束后导出各样品的Ct值,以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt[16]计算肝细胞铁死亡信号通路关键基因mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequence (5'—3')
登录号
Accession number
产物大小
Product size/bp
铁离子外排蛋白1
FPN1
F:GGTTCTTACTTCCTGCTATATC
R:ACTGGTCAATCCTTCGTATT
XM_003483701.4 167
铁反应元件结合蛋白2
IREB2
F:CGGTATGCTCACTTATCTCATCC
R:CTTACAGGTCTCTTCCACAACAC
NM_001167781.1 154
谷胱甘肽过氧化物酶4
GPX4
F:CTGTTCCGCCTGCTGAA
R:ACCTCCGTCTTGCCTCAT
NM_214407.1 218
溶质载体家族7成员11
SLC7A11
F:GCCTTGTCCTATGCTGAGTTG
R:GTTCCAGAATGTAGCGTCCAA
XM_021101587.1 178
转铁蛋白
TF
F:GATAAGTTCCACGCCAAGA
R:GGTTCTCATAGGTGTCATCC
NM_001244653.1 126
转铁蛋白受体1
TFR1
F:GATAAGTTCCACGCCAAGA
R:GGTTCTCATAGGTGTCATCC
XM_003124374.5 277
β-肌动蛋白
β-actin
F:TGCGGGACATCAAGGAGAAG
R:AGTTGAAGGTGGTCTCGTGG
XM_021086047.1 216

1.6 统计分析

用Excel 2010软件归一化处理试验数据,试验数据采用SPSS 22.0统计软件进行双因素方差分析,模型主效应包括Que和DON,并分析其互作效应。当互作效应显著或者有显著趋势时,采用Duncan氏法进行多重比较。结果用平均值±标准误(mean±SE)表示。P<0.05为差异显著,0.05≤P<0.10为具有显著趋势。

2 结果

2.1 Que对DON诱导的仔猪肝脏组织形态和结构的影响

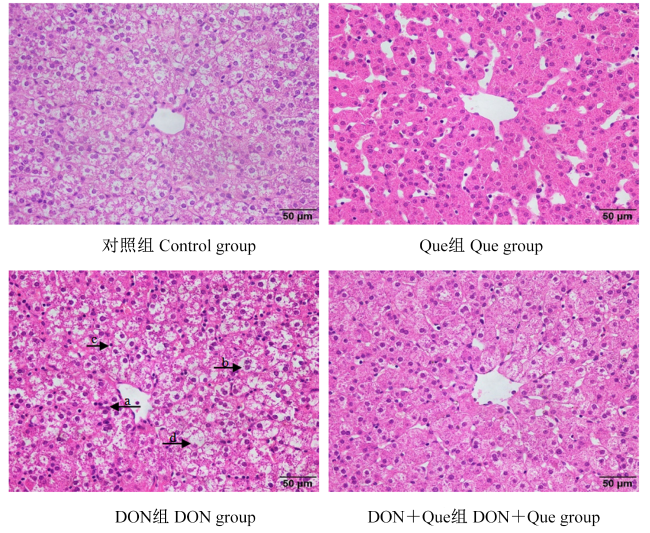
各组仔猪肝脏组织切片HE染色观察如图1所示。与对照组相比,DON组中央静脉周围肝细胞索排列紊乱、炎症细胞浸润明显,肝细胞发生萎缩并伴随着核固缩、核溶解、细胞质空泡化;而与DON组相比,DON+Que组肝细胞形态得到明显改善、炎性细胞浸润减少,上述病理症状得到缓解。
图1 Que对DON诱导的仔猪肝脏组织形态和结构的影响

a:炎性细胞浸润 inflammatory cell infiltration;b:肝细胞核溶解 hepatocyte karyolysis;c:肝细胞核固缩 hepatocyte karyopyknosis;d:肝细胞空泡化 hepatocyte vacuolization。对照组肝脏组织结构正常;Que组肝脏组织结构正常;DON组肝细胞索紊乱,大量肝细胞坏死;DON+Que组肝细胞索轻度紊乱,炎性细胞减少。

Fig.1 Effects of Que on liver morphology and structure of DON-induced piglets

a: inflammatory cell infiltration; b: hepatocyte karyolysis; c: hepatocyte karyopyknosis; d: hepatocyte vacuolization. The liver tissue structure in the control group was normal; the Que group showed normal liver tissue structure; the DON group exhibited disordered hepatic cords with extensive hepatocyte necrosis; the DON+Que group displayed mildly disorganized hepatic cords and reduced inflammatory cell infiltration.

2.2 Que对DON诱导的仔猪肝脏组织铁离子沉积的影响

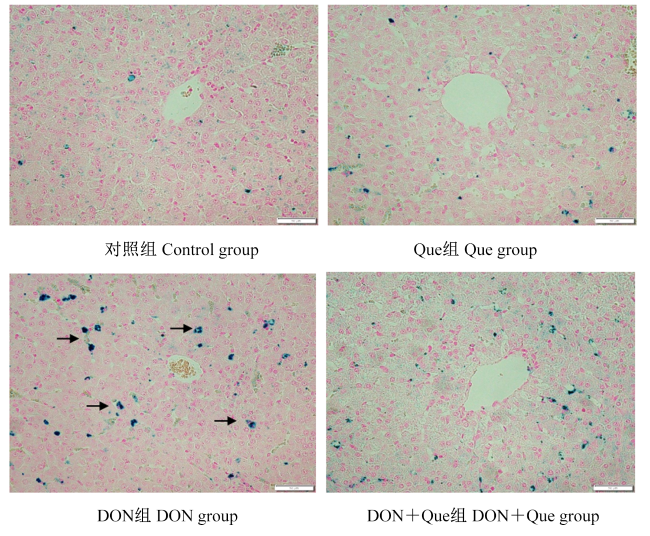
各组仔猪肝脏组织切片普鲁士蓝染色观察如图2所示,图中紫红色为细胞核及其他组织染色,蓝色为铁离子着色。在对照组和Que组中,蓝染颗粒着色较浅,表明这2组仔猪肝脏铁离子沉积较少;与对照组相比,DON组仔猪肝脏组织蓝染颗粒呈片状增多,肝脏铁离子沉积较多;而与DON组相比,DON+Que组仔猪肝脏组织蓝染颗粒有不同程度减少,肝脏铁离子沉积减少。
图2 Que对DON诱导的仔猪肝脏组织铁离子沉积的影响

对照组蓝染颗粒呈片状,数量正常;Que组蓝染颗粒呈片状,数量正常;DON组蓝染颗粒(黑色箭头所示)呈片状,增多;DON+Que组蓝染颗粒呈片状,减少。

Fig.2 Effects of Que on iron ion deposition in liver tissue of DON-induced piglets

In the control group, the blue granules appeared sheet-like and were normal in quantity; the Que group showed sheet-like blue granules with a normal quantity; the DON group exhibited an increased amount of sheet-like blue granules (as indicated by the black arrow); the DON+Que group displayed a decreased amount of sheet-like blue granules.

2.3 Que对DON诱导的仔猪肝细胞铁死亡信号通路关键基因表达的影响

表3可知,Que和DON对仔猪肝细胞铁死亡信号通路关键基因FPN1、SLC7A11、转铁蛋白(TF)和TFR1的mRNA相对表达量存在显著的互作效应(P<0.05),对GPX4的mRNA相对表达量的互作效应有显著的趋势(0.05≤P<0.10),对IREB2的mRNA相对表达量无显著互作效应(P>0.05)。与对照组相比,DON组FPN1、SLC7A11、TFTFR1的mRNA相对表达量显著上升(P<0.05),GPX4的mRNA相对表达量显著降低(P<0.05);而与DON组相比,DON+Que组仔猪SLC7A11、TFTFR1的mRNA相对表达量显著降低(P<0.05)。
表3 Que对DON诱导的仔猪肝细胞铁死亡信号通路关键基因表达的影响

Table 3 Effects of Que on expression of key genes of ferroptosis signaling pathway in hepatocyte of DON-induced piglets

项目
Items
组别Groups PP-value
对照Control Que DON Que+DON DON Que 互作效应
Interaction
effect
铁离子外排蛋白1
FPN1
1.00±0.19a 1.14±0.36ab 1.43±0.24b 1.12±0.20ab 0.067 0.418 0.046
铁反应元件结合蛋白2
IREB2
1.00±0.21 0.93±0.12 0.67±0.11 0.85±0.27 0.015 0.503 0.104
谷胱甘肽过氧化物酶4
GPX4
1.00±0.21b 0.93±0.06b 0.67±0.12a 0.87±0.22ab 0.009 0.373 0.057
溶质载体家族7成员11
SLC7A11
1.00±0.51a 1.35±0.29ab 1.91±0.65b 1.15±0.38a 0.082 0.306 0.010
转铁蛋白
TF
1.00±0.12a 1.21±0.12ab 1.69±0.29c 1.28±0.12b 0.001 0.186 0.001
转铁蛋白受体1
TFR1
1.00±0.10a 1.25±0.20ab 2.35±0.42c 1.56±1.18b 0.001 0.016 0.001

DON:呕吐毒素;Que:槲皮素。同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。

DON: deoxynivalenol; Que: quercetin. In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05).

3 讨论

3.1 Que对DON诱导的仔猪肝脏组织形态和结构的影响

肝脏是机体参与解毒和代谢的关键器官,良好的肝脏形态和结构是肝脏维持正常生理功能的基础。研究表明,采食受DON污染的饲粮可导致仔猪采食量减少、呕吐、腹泻和厌食[17],肝脏形态受损,同时发生肝细胞炎症和死亡[18]。Que属于类黄酮中的一员,具有典型的类黄酮物质的特性,在调节仔猪抗氧化和免疫功能、提高生长性能方面具有广阔的应用前景。本课题组前期研究已证明,Que可以缓解产肠毒素大肠杆菌(enterotoxigenic Escherichia coli,ETEC)K88诱导的IPEC-1细胞炎症和程序性坏死[19]。在本试验中,DON导致仔猪肝脏组织出现明显病理损伤:肝细胞发生核固缩、细胞质空泡化以及细胞之间界限模糊,而Que能够明显缓解DON诱导的肝脏损伤。Hasuda等[20]研究发现,DON刺激猪肝脏后,导致肝细胞索紊乱和细胞质空泡化,这与本试验结果相符。Cui等[21]研究发现,Que预处理可有效保护肝脏毒素诱导的急性肝细胞损伤,使得肝细胞形态恢复正常。综上所述,DON仔猪导致肝脏组织出现明显的损伤,Que则可以缓解DON引起肝脏损伤。

3.2 Que对DON诱导的仔猪肝脏组织铁离子沉积的影响

铁离子沉积是引发氧化还原稳态受损并最终导致细胞铁死亡的关键环节[22]。为了研究DON对肝脏组织铁离子稳态的影响,本试验采用普鲁士蓝染色肝脏组织切片,以观察仔猪肝细胞铁离子沉积的情况。由于普鲁士蓝会与铁离子生成深蓝色不溶性沉淀物,因此可通过蓝染颗粒数量反映铁离子的沉积量。本试验中,DON诱导的仔猪肝脏组织蓝染颗粒呈片状增多,而Que可使DON诱导的仔猪肝脏组织蓝染颗粒减少,表明DON造成仔猪急性肝损伤和肝脏铁阳性细胞数量增加,而Que则显著抑制了由DON引起的肝脏铁阳性细胞数量增加,表明了Que能够减少DON诱导的仔猪肝脏铁离子沉积,缓解DON引起的肝脏损伤。Zhu等[23]研究发现,在DON处理肝脏细胞后,细胞质游离亚铁离子数量显著增加,而关于Que是否能够缓解DON导致的铁离子沉积尚未见报道。

3.3 Que对DON诱导的仔猪肝细胞铁死亡信号通路关键基因表达的影响

铁死亡是一种铁依赖性的细胞死亡形式,由细胞膜中脂质过氧化物的积累引起[24]。SLC7A11能够介导胱氨酸的摄取,促进谷胱甘肽的生物合成和机体抗氧化防御[25],而GPX4通过与谷胱甘肽结合发挥其辅助因子的功能,促进脂质过氧化物分解,将其转化为脂质醇。抗氧化因子GPX4表达量降低引起的脂质过氧化产物的积累是铁死亡的特征之一。FPN1是一种铁输出蛋白,主要作用是将亚铁离子运出细胞,维持细胞所需的铁水平,降低亚铁离子对细胞的毒性[26]。TF是一种载体蛋白,在TFR1作用下与铁离子结合,将铁离子输送到不同的组织[27]。Gao等[28]研究发现,铁死亡需要TF,敲除TFR1基因可以显著减少铁死亡。本试验中,与对照组相比,DON诱导后仔猪肝细胞中GPX4的mRNA相对表达量显著降低,而FPN1、SLC7A11、TFTFR1的mRNA相对表达量显著上升。Wang等[29]研究发现,DON处理HepG2细胞后导致TFR1的mRNA相对表达量显著上升,GPX4的mRNA相对表达量显著下降,与本试验结果一致。目前未见关于DON对肝细胞中TFFPN1、SLC7A11基因表达影响的报道。本试验中,与DON组相比,DON+Que组SLC7A11、TFTFR1的mRNA相对表达量显著降低,表明Que可抑制DON诱导引起的铁死亡信号通路的激活。目前关于Que对肝细胞铁死亡信号通路影响的研究非常少,其潜在机制可能是:Que作为一种类黄酮,其结构中的芦丁糖苷(又称为槲皮素芦丁苷)能够与亚铁离子结合,进而下调TFR1的表达,发挥抗氧化剂的作用,从而防止产生可能损害细胞的高活性自由基[30]。这可能是Que发挥抑制DON诱导引起的铁死亡信号通路激活的重要途径。

4 结论

在本试验条件下,Que可抑制DON诱导的仔猪肝细胞铁死亡信号通路的激活,缓解仔猪肝细胞损伤和铁离子沉积。
[1]
CRISPE I N. The liver as a lymphoid organ[J]. Annual Reviews of Immunology, 2009,27:147-163.

[2]
SCHMÖCKER C, WEYLANDT K H, KAHLKE L, et al. Omega-3 fatty acids alleviate chemically induced acute hepatitis by suppression of cytokines[J]. Hepatology, 2007, 45(4):864-869.

[3]
LI F F, JIN J, RIETJENS I M C M, et al. Interindividual differences in in vitro human intestinal microbial conversion of 3-acetyl-DON and 15-acetyl-DON[J]. Toxins, 2022, 14(3):199.

[4]
PRZYBYLSKA-GORNOWICZ B, LEWCZUK B, PRUSIK M, et al. The effects of deoxynivalenol and zearalenone on the pig large intestine.A light and electron microscopy study[J]. Toxins, 2018, 10(4):148.

[5]
AMUZIE C J, HARKEMA J R, PESTKA J J. Tissue distribution and proinflammatory cytokine induction by the trichothecene deoxynivalenol in the mouse:comparison of nasal vs. oral exposure[J]. Toxicology, 2008, 248(1):39-44.

[6]
LUOQIAN J Y, YANG W Y, DING X L, et al. Ferroptosis promotes T-cell activation-induced neurodegeneration in multiple sclerosis[J]. Cellular & Molecular Immunology, 2022, 19(8):913-924.

[7]
付红玉, 李玥, 崔晗, 等. 长链酯酰辅酶A合成酶4介导铁死亡的发生机制[J]. 畜牧兽医学报, 2024, 55(9):3792-3801.

FU H Y, LI Y, CUI H, et al. The mechanism of long-chain acyl-CoA synthetase 4-mediated ferroptosis[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(9):3792-3801. (in Chinese)

[8]
ANDERSON C P, SHEN M, EISENSTEIN R S, et al. Mammalian iron metabolism and its control by iron regulatory proteins[J]. Biochimica et Biophysica Acta:General Subjects, 2012, 1823(9):1468-1483.

[9]
CHEN X, LI J B, KANG R, et al. Ferroptosis:machinery and regulation[J]. Autophagy, 2021, 17(9):2054-2081.

[10]
ZHANG M H, GUO M Q, GAO Y, et al. Mechanisms and therapeutic targets of ferroptosis:implications for nanomedicine design[J]. Journal of Pharmaceutical Analysis, 2024, 14(7):100960.

[11]
CAMUESCO D, COMALADA M, RODRÍGUEZ-CABEZAS M E, et al. The intestinal anti-inflammatory effect of quercitrin is associated with an inhibition in iNOS expression[J]. British Journal of Pharmacology, 2004, 143(7):908-918.

[12]
PINGILI R B, CHALLA S R, PAWAR A K, et al. A systematic review on hepatoprotective activity of quercetin against various drugs and toxic agents:evidence from preclinical studies[J]. Phytotherapy Research, 2020, 34(1):5-32.

[13]
吕青青. 鱼油对呕吐毒素诱导的仔猪肠道损伤和线粒体分裂融合失衡的调控作用[D]. 硕士学位论文. 武汉: 武汉轻工大学, 2023.

LYU Q Q. Regulatory effect of fish oil on deoxynivalenol-induced intestinal injury and mitochondrial division and fusion imbalance in piglets[D]. Master's Thesis. Wuhan: Wuhan Polytechnic University, 2023. (in Chinese)

[14]
DING D J, MOU D L, ZHAO L P, et al. Maternal organic selenium supplementation alleviates LPS induced inflammation,autophagy and ER stress in the thymus and spleen of offspring piglets by improving the expression of selenoproteins[J]. Food & Function, 2021, 12(22):11214-11228.

[15]
PU Y T, LI S H, XIONG H T, et al. Iron promotes intestinal development in neonatal piglets[J]. Nutrients, 2018, 10(6):726.

[16]
LIVAK K J, SCHMITTGEN T D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) method[J]. Methods, 2001, 25(4):402-408.

[17]
PESTKA J J, SMOLINSKI A T. Deoxynivalenol:toxicology and potential effects on humans[J]. Journal of Toxicology and Environmental Health:Part B, 2005, 8(1):39-69.

[18]
XU Q L, GONG H Q, ZHOU M H, et al. Necroptosis contributes to deoxynivalenol-induced liver injury and inflammation in weaned piglets[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):160.

[19]
XIAO K, ZHOU M H, LV Q Q, et al. Protocatechuic acid and quercetin attenuate ETEC-caused IPEC-1 cell inflammation and injury associated with inhibition of necroptosis and pyroptosis signaling pathways[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):5.

[20]
HASUDA A L, PERSON E, KHOSHAL A K, et al. Deoxynivalenol induces apoptosis and inflammation in the liver:analysis using precision-cut liver slices[J]. Food and Chemical Toxicology, 2022,163:112930.

[21]
CUI Y M, HAN Y, YANG X B, et al. Protective effects of quercetin and quercetin-5',8-disulfonate against carbon tetrachloride-caused oxidative liver injury in mice[J]. Molecules, 2013, 19(1):291-305.

[22]
MANCARDI D, MEZZANOTTE M, ARRIGO E, et al. Iron overload,oxidative stress,and ferroptosis in the failing heart and liver[J]. Antioxidants (Basel,Switzerland), 2021, 10(12):1864.

[23]
ZHU Z Y, WANG J, CHENG H S, et al. Combined toxicity assessment of deoxynivalenol and Pb2+ on HK-2 cells involved in excessive ROS-induced ferroptosis[J]. Journal of Agricultural and Food Chemistry, 2025, 73(4):2573-2584.

[24]
YANG Y Z, YEE D. IGF-Ⅰ regulates redox status in breast cancer cells by activating the amino acid transport molecule Xc-[J]. Cancer Research, 2014, 74(8):2295-2305.

[25]
KOPPULA P, ZHUANG L, GAN B Y. Cystine transporter SLC7A11/xCT in cancer:ferroptosis,nutrient dependency,and cancer therapy[J]. Protein&Cell, 2021, 12(8):599-620.

[26]
MASALDAN S, CLATWORTHY S A S, GAMELL C, et al. Iron accumulation in senescent cells is coupled with impaired ferritinophagy and inhibition of ferroptosis[J]. Redox Biology, 2018,14:100-115.

[27]
RICHARDSON D R. Mysteries of the transferrin-transferrin receptor 1 interaction uncovered[J]. Cell, 2004, 116(4):483-485.

[28]
GAO M H, MONIAN P, QUADRI N, et al. Glutaminolysis and transferrin regulate ferroptosis[J]. Molecular Cell, 2015, 59(2):298-308.

[29]
WANG P J, YAO Q, ZHU D, et al. Resveratrol protects against deoxynivalenol-induced ferroptosis in HepG2 cells[J]. Toxicology, 2023,494:153589.

[30]
PATEL N, JOSEPH C, CORCORAN G B, et al. Silymarin modulates doxorubicin-induced oxidative stress, Bcl-xL and p53 expression while preventing apoptotic and necrotic cell death in the liver[J]. Toxicology and Applied Pharmacology, 2010, 245(2):143-152.

文章导航

/