研究论文

奶牛乳腺上皮细胞热应激模型的建立

  • 武汭 ,
  • 闫素梅 ,
  • 郭咏梅 , * ,
  • 宋岩 ,
  • 赵艳丽 ,
  • 郭晓宇
展开
  • 内蒙古农业大学动物科学学院,内蒙古自治区高校动物营养与饲料科学重点实验室,呼和浩特 010018
*郭咏梅,讲师,硕士生导师,E-mail:

武汭(2000—),女,内蒙古呼和浩特人,硕士研究生,动物营养与饲料科学专业。E-mail:

Copy editor: 菅景颖

收稿日期: 2025-03-27

  网络出版日期: 2025-11-14

基金资助

国家自然科学基金项目(32460841)

内蒙古自治区自然科学基金项目(2022QN03016)

内蒙古自治区直属高校基本科研业务费(BR251030)

Establishment of a Heat Stress Model in Bovine Mammary Epithelial Cells

  • WU Rui ,
  • YAN Sumei ,
  • GUO Yongmei , * ,
  • SONG Yan ,
  • ZHAO Yanli ,
  • GUO Xiaoyu
Expand
  • Key Laboratory of Animal Nutrition and Feed Science at Universities of Inner Mongolia Autonomous Region, College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
*lecturer, E-mail:

Received date: 2025-03-27

  Online published: 2025-11-14

摘要

本试验旨在构建奶牛乳腺上皮细胞(BMECs)的热应激模型,探究不同热处理时间下BMECs内的生理变化和应答反应。采用单因素完全随机试验设计,将BMECs随机分为7个组,分别在43 ℃下处理0(对照组)、1、4、6、8、12、24 h后测定细胞增殖率以及细胞中相关基因的表达情况。结果显示:与对照组相比,热处理4、6和8 h时细胞增殖率分别显著降低至65.86%、59.44%和55.67%(P<0.05)。与对照组相比,热休克蛋白相关基因热休克转录因子(HSF1)、热休克蛋白90(HSP90)、热休克蛋白70(HSP70)、热休克蛋白27(HSP27)的表达在热处理4 h时显著上调(P<0.05),且随热处理时间的延长出现先上升后下降的趋势。与对照组相比,核因子E2相关因子2(Nrf2)信号通路相关基因Nrf2、Kelch样ECH相关蛋白1(Keap1)、血红素加氧酶-1(HO-1)在热处理1、4 h时表达显著上调(P<0.05);并且,热处理4 h时超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPx)和过氧化氢酶(CAT)活性显著下降(P<0.05),丙二醛(MDA)和活性氧(ROS)含量显著上升(P<0.05)。与对照组相比,热处理4 h时核因子-κB(NF-κB)信号通路相关基因NF-κB p65和NF-κB p50的表达显著上调(P<0.05),炎症因子白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)的含量显著升高(P<0.05);此外,热处理4 h时还显著下调了乳蛋白合成相关基因哺乳动物雷帕霉素靶蛋白(mTOR)、Janus激酶2(JAK2)、信号转导与转录激活因子5(STAT5)的表达(P<0.05),显著增加了腺苷酸活化蛋白激酶(AMPK)含量。综上所述,43 ℃作用4 h可以构建BMECs热应激模型。

本文引用格式

武汭 , 闫素梅 , 郭咏梅 , 宋岩 , 赵艳丽 , 郭晓宇 . 奶牛乳腺上皮细胞热应激模型的建立[J]. 动物营养学报, 2025 , 37(11) : 7861 -7871 . DOI: 10.12418/CJAN2025.639

Abstract

This study aimed to establish a heat stress model in bovine mammary epithelial cells (BMECs) and investigate physiological changes and stress responses under thermal challenges. A completely randomized single-factor experimental design was employed, with BMECs divided into seven groups. After being exposed to 43 ℃ for 0 (control group), 1, 4, 6, 8, 12 and 24 hours, respectively, the cell proliferation rate and the expression of relevant genes in the cells were measured. Compared with the control group, the cell proliferation rates were significantly reduced to 65.86%, 59.44% and 55.67% after 4, 6 and 8 hours of heat treatment, respectively (P<0.05). The expression of heat shock protein-related genes, such as heat shock transcription factor 1 (HSF1), heat shock protein 90 (HSP90), heat shock protein 70 (HSP70), and heat shock protein 27 (HSP27), was significantly upregulated after 4 hours of heat treatment compared with the control group (P<0.05), showing an initial increase followed by a decrease as the heat treatment duration extended. Compared with the control group, the expression of genes related to the nuclear factor erythroid 2-related factor 2 (Nrf2) signaling pathway, such as Nrf2, Kelch-like ECH-associated protein 1 (Keap1), and heme oxygenase-1 (HO-1), was significantly upregulated after 1 and 4 hours of heat treatment (P<0.05). Additionally, after 4 hours of heat treatment, the activities of superoxide dismutase (SOD), glutathione peroxidase (GPx), and catalase (CAT) decreased significantly (P<0.05), while the contents of malondialdehyde (MDA) and reactive oxygen species (ROS) increased significantly (P<0.05). Compared with the control group, after 4 hours of heat treatment, the expression of genes related to the nuclear factor-kappa B (NF-κB) signaling pathway—NF-κB p65 and NF-κB p50 was significantly upregulated (P<0.05), and the contents of the inflammatory cytokines interleukin-1β (IL-1β) and tumor necrosis factor-α (TNF-α) were significantly increased (P<0.05). Additionally, heat treatment for 4 hours significantly downregulated the expression of milk protein synthesis-related genes, including mammalian target of rapamycin (mTOR), tyrosine-protein kinase 2 (JAK2), and signal transducer and activator of transcription 5 (STAT5) (P<0.05), while significantly increased the content of AMP-activated protein kinase (AMPK). It is concluded that 43 ℃ exposure for 4 hours effectively establishes a heat stress model in BMECs.

近年来,全球地表气温不断上升。高温环境下,动物失去体热平衡产生非特异性应答反应的总和称为热应激。实际生产中温湿指数大于72时认为奶牛处于热应激状态,此时干物质采食量和产奶量降低[1-2];同时,热应激导致奶牛处于氧化应激状态,损害机体免疫功能,并诱发乳腺炎等疾病[3-4]。奶牛乳腺主要由奶牛乳腺上皮细胞(BMECs)组成,这些细胞在激素和细胞因子的协助下构成泌乳的主要单位,其数量和活性决定泌乳量。研究表明,在高温环境下,奶牛核心体温升高同时乳腺内温度升高,此时乳腺细胞出现热休克反应,下调参与细胞结构、生物合成和转运的基因表达,上调热休克蛋白(HSP)和参与细胞凋亡的基因表达[5-8]。Collier等[9]研究发现,高温下BMECs的增殖停滞,并诱导细胞凋亡。Weng等[10]研究发现,高温改变BMECs内导管结构,导致乳糖短暂泄露,损害完整的乳腺上皮屏障,降低泌乳量。热应激也会引起氧化应激,Tao等[11]研究发现,热应激诱导BMECs产生过量活性氧(ROS),破坏细胞氧化还原平衡,增加炎症因子含量,损害细胞抗氧化能力。核因子E2相关因子2(Nrf2)是一种重要的转录因子,参与调节细胞氧化应激,调控谷胱甘肽过氧化物酶(GPx)、超氧化物歧化酶(SOD)、血红素加氧酶-1(HO-1)等多种抗氧化基因的转录,从而清除自由基,同时可以抑制核因子-κB(NF-κB)信号通路的激活,减少炎症因子的表达[12-15]。奶牛的乳产量和品质决定了其经济价值,而BMECs是影响泌乳量的主要因素。热应激损害BMECs,降低产奶量,最终造成经济损失。因此,从细胞水平揭示热应激状态下奶牛乳腺的生理变化,探究热应激时乳腺细胞产生的应答反应,对降低奶牛养殖业经济损失具有重要意义。基于此,本试验在构建BMECs热应激模型的基础上,探究热应激状态下BMECs产生的一系列应答反应,以期为后续研究热应激下奶牛乳腺生理变化提供理论基础。

1 材料与方法

1.1 伦理声明

本试验已经内蒙古农业大学实验动物福利与伦理委员会审核,审批编号为NND2024020。

1.2 细胞培养

采用胶原酶消化法培养BMECs。选取健康的奶牛乳腺组织,剔除表皮,避开血管和结缔组织取内部乳腺组织样块浸泡在3×磷酸盐缓冲溶液(PBS)中。依次经过3次3×PBS、1次75%乙醇(30 s)、3次1×PBS清洗,取腺泡丰富处的组织约1 mm3剪碎成糊状,加入2 mL的Ⅱ型胶原酶消化(消化1 h,每隔20 min摇匀1次),利用80目纱网过滤收集滤液,离心(905×g,3 min)、清洗后接种至细胞培养瓶中,置于37 ℃、5% CO2培养箱中培养。取对数生长期的细胞用于后续试验。

1.3 试验设计

本试验参考Li等[16]的方法将作用温度设置为43 ℃。采用单因素完全随机试验设计,将贴壁生长的第3代BMECs随机分为7个组,其中对照组在43 ℃培养箱中培养0 h(即不进行热应激,置于37 ℃下),6个热应激组在43 ℃培养箱中分别培养1、4、6、8、12、24 h,培养结束后收集样本进行后续测定。

1.4 指标测定

1.4.1 细胞增殖率的测定

使用CCK-8试剂盒(上海碧云天生物技术股份有限公司)测定BMECs的增殖率。以2×10⁴个/mL的密度接种BMECs于96孔板中,同时设置空白组和对照组。细胞贴壁70%~80%后按照试验设计中各组设定的作用温度和时间进行培养,培养结束后换液,并向每孔加入10 μL CCK-8溶液,在培养箱中孵育1 h,酶标仪测定450 nm波长下的吸光度(OD)值,按说明书方法计算细胞增殖率。
细胞增殖率(%)=[(试验组OD值-空白组OD值)/(对照组OD值-空白组OD值)]×100。

1.4.2 目的基因表达的测定

以2×10⁵个/mL的密度接种BMECs于6孔板中。细胞贴壁70%~80%后按照试验设计中各组设定的作用温度和时间进行培养,培养结束后使用Trizol法提取细胞总RNA,测定RNA浓度及纯度,反转录成cDNA备用。使用实时荧光定量PCR技术检测热休克蛋白相关基因[热休克转录因子1(HSF1)、HSP90、HSP70、HSP27]、Nrf2信号通路相关基因[Nrf2、Kelch样ECH相关蛋白1(Keap1)、HO-1]、NF-κB信号通路相关基因[NF-κB p65、NF-κB p50]、乳蛋白合成相关基因[Janus激酶2(JAK2)、信号转导与转录激活因子5(STAT5)、哺乳动物雷帕霉素靶蛋白(mTOR)]的mRNA表达情况。以甘油醛-3-磷酸脱氢酶(GAPDH)、β-肌动蛋白(β-actin)、酪氨酸3/色氨酸5单加氧酶激活蛋白ζ(YWHAζ)作为内参基因,使用3个内参基因的几何平均值,采用2-ΔΔCt法计算各目的基因的mRNA相对表达量。引物序列见表1
表1 引物序列

Table 1 Primer sequences

基因名称
Gene names
引物序列
Primer sequences (5'—3')
GenBank登录号
GenBank
accession No.
产物长度
Product
length/bp
β-肌动蛋白
β-actin
F:AACTCCATCATGAAGTGTGACG
R:GATCCACATCTGCTGGAAGG
NM_173979.3 234
甘油醛-3-磷酸脱氢酶
GAPDH
F:GGGTCATCATCTCTGCACCT
R:GGTCATAAGTCCCTCCACGA
XM_001252479 177
酪氨酸3/色氨酸5
单加氧酶激活蛋白ζ YWHAζ
F:GTAGGAGCCCGTAGGTCAT
R:CCTCAGCCAAGTAGCGGTAG
NM_174814 241
Janus激酶2
JAK2
F:CCACAGGGATCTGGCAACAAGG
R:GGGACTTTCACCAGGCTCTTTCAC
XM_005209981.4 133
信号转导与转录激活因子5
STAT5
F:GCGGAAGCAGCAGACCATCATC
R:GCCAACTTCTCACACCAGGACTG
NM_001012673.1 129
哺乳动物雷帕霉素靶蛋白
mTOR
F:TCACCCTTGCTCTCCGAACTCTC
R:TTGTGCTCGCTGTTCAGGAAGTG
XM_002694043.6 103
热休克蛋白70
HSP70
F:CAAGATCAGCGAGGCGGACAAG
R:ACACCTGCTCCAGCTCCTTCC
NM_203322.3 128
热休克转录因子1
HSF1
F:CCATGAAGCACGAGAACGAG
R:CAGCGAGATGAGGAACTGGA
NM_001076809.1 110
热休克蛋白90
HSP90
F:CCAAGTCTGGCACTAAAG
R:GAAGACTCCCAAGCATAC
NM_001079637 163
热休克蛋白27
HSP27
F:CGGACGCACCAGACCAGCCAGCAT
R:GGCTGTGGGCCGGATACCAGTCGCG
BT021550 105
核因子-κB p65
NF-κB p65
F:AACAACCCCTTCCAAGTTCC
R:CTCCCAGAGTTCCGATTCAC
NM_001080242 184
核因子-κB p50
NF-κB p50
F:CTGGAAGCACGAATGACAGA
R:GCTGTAAACATGAGCCGTACC
NM- 001076409 145
核因子E2相关因子2
Nrf2
F:GCAGAGACATTCCCGTTTGT
R:CCTGAGGAGGAGCAGTGAAG
NM_0010111678.2 115
Kelch样ECH相关蛋白1
Keap1
F:TCACCAGGGAAGGATCTACG
R:AGCGGCTCAACAGGTACAGT
NM_001101142.1 108
血红素加氧酶-1
HO-1
F:CCGCTACCTGGGAGACCTGTC
R:ACTTGGTGGCACTGGCGATATTG
NM_001014912.1 128

1.4.3 氧化应激相关指标、炎症因子和乳蛋白合成相关酶的测定

以2×10⁵个/mL的密度接种BMECs于6孔板中。细胞贴壁70%~80%后按照试验设计中各组设定的作用温度和时间进行培养,培养结束后收取上清液后用PBS清洗3遍细胞,加入裂解液(含RIPA+1%PMSF)冰浴30 min,收集细胞液2 088×g离心10 min取上清,使用试剂盒测定氧化应激相关指标[SOD、GPx、过氧化氢酶(CAT)、丙二醛(MDA)和ROS]、炎症因子(IL-1β和TNF-α)以及乳蛋白合成相关酶[腺苷酸活化蛋白激酶(AMPK)]的含量或活性。其中,SOD、CAT、MDA检测试剂盒购自南京建成生物工程研究所;GPx、AMPK检测试剂盒购自南京博研生物科技有限公司;IL-1β、TNF-α检测试剂盒购自上海酶联生物科技有限公司;ROS检测试剂盒购自北京安迪基因科技有限公司。

1.5 数据统计与分析

使用Excel 2019对数据进行初步整理后,采用SAS 9.2统计软件的单因素方差分析(one-way ANOVA)程序进行方差分析,并采用Duncan氏法对方差分析显著的指标进行组间多重比较。以P<0.05表示差异显著,P≥0.05表示差异不显著。

2 结果与分析

2.1 热处理时间对BMECs增殖率的影响

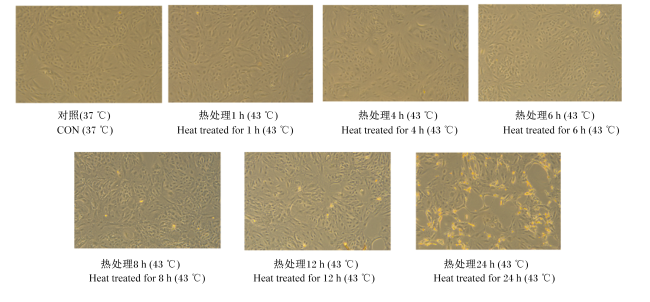
表2所示,随着热处理时间的延长,细胞增殖率先急剧降低,在热处理24 h时略有回升,这可能是因为建立了细胞耐热性。与对照组相比,热处理4 h时细胞增殖率显著降低至65.86%(P<0.05),其且与热处理6和8 h时无显著差异(P≥0.05)。如图1所示,对照组细胞分布均匀,形态良好;热处理1 h时细胞形态变化不明显,细胞损伤较小;热处理4 h时细胞出现脱落,形态变长,部分地方出现空泡;随着热处理时间的延长,细胞形态进一步变长,并出现大面积脱落死亡。
表2 热处理时间对BMECs增殖率的影响

Table 2 Effects of heat treatment time on proliferation rate of BMECs%

项目
Item
时间Time/h 均值标准误
SEM
P
P-value
0 1 4 6 8 12 24
增殖率Proliferation rate 100.00a 93.93a 65.89b 59.44b 55.67b 26.97c 35.27c 5.125 <0.000 1

同行数据肩标相同字母表示差异不显著(P≥0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with the same letter superscripts indicated no significant difference (P≥0.05), and with different lowercase letter superscripts indicated significant difference (P<0.05). The same as below.

图1 热处理时间对BMECs形态的影响

Fig.1 Effects of heat treatment time on morphology of BMECs (100×)

2.2 热处理时间对BMECs内热休克蛋白相关基因表达的影响

表3所示,热处理不同时间后,HSF1、HSP90、HSP70、HSP27的mRNA相对表达量均高于对照组,其中HSF1的mRNA相对表达量在热处理4、12和24 h时显著上升(P<0.05);HSP27的mRNA相对表达量在热处理4、6、8、12和24 h时显著上升(P<0.05);HSP70和HSP90的mRNA相对表达量在热处理1、4、6、8、12和24 h时均显著上升(P<0.05)。随着热处理时间的延长,HSF1、HSP90、HSP70、HSP27的mRNA相对表达量均呈现先升高后降低的趋势,在热处理4 h时,HSF1、HSP90、HSP70的mRNA相对表达量最高,显著高于其他热处理时间(P<0.05)。
表3 热处理时间对BMECs内热休克蛋白相关基因表达的影响

Table 3 Effects of heat treatment time on expression of heat shock protein-related genes in BMECs

项目
Items
时间Time/h 均值
标准误
SEM
P
P-value
0 1 4 6 8 12 24
热休克转录因子1 HSF1 1.00c 1.21c 3.00a 1.03c 1.08c 2.34b 2.09b 0.199 <0.000 1
热休克蛋白27 HSP27 1.00d 1.57d 13.69c 12.15c 12.78c 18.96b 22.90a 0.960 <0.000 1
热休克蛋白70 HSP70 1.00f 11.41e 122.59a 100.24b 47.12c 46.85c 33.01d 2.828 <0.000 1
热休克蛋白90 HSP90 1.00d 2.65bc 3.93a 2.31c 1.99c 2.12bc 2.90b 0.230 <0.000 1

2.3 热处理时间对BMECs内氧化应激状态的影响

表4所示,随着热处理时间的延长,3个Nrf2信号通路相关基因的mRNA相对表达量整体来看均呈现先上升后下降的趋势。Nrf2的mRNA相对表达量在热处理4 h时较对照组显著增加(P<0.05);与对照组相比,HO-1的mRNA相对表达量在热处理1、4、6、8、12和24 h时均显著上升(P<0.05),其中热处理4~8 h时还显著高于其他热处理时间(P<0.05);Keap1的mRNA相对表达量在热处理4 h时除显著高于对照组(P<0.05)外,还显著高于其他热处理时间(P<0.05)。
表4 热处理时间对BMECs内Nrf2信号通路相关基因表达的影响

Table 4 Effects of heat treatment time on expression of Nrf2 signaling pathway-related genes in BMECs

项目
Items
时间Time/h 均值
标准误
SEM
P
P-value
0 1 4 6 8 12 24
核因子E2相关因子2 Nrf2 1.00b 1.04b 2.62a 1.13b 1.38b 1.16b 1.62ab 0.364 0.042 7
血红素加氧酶-1 HO-1 1.00c 2.34b 4.59a 3.60ab 4.87a 2.80b 2.77b 0.374 <0.000 1
Kelch样ECH相关蛋白1
Keap1
1.00c 2.38b 3.31a 1.23c 1.43c 2.58ab 2.35b 0.540 <0.000 1
表5所示,热处理不同时间后,SOD、CAT、GPx活性整体上低于对照组,其中SOD活性在热处理4、8和12 h时显著降低(P<0.05);CAT活性在热处理1和4 h时显著下降(P<0.05);GPx活性在热处理1、4、8和12 h时显著下降(P<0.05)。热处理不同时间后,MDA和ROS含量均高于对照组,其中MDA含量在热处理4 h时显著升高(P<0.05);ROS含量在热处理1、4、6、12和24 h时显著升高(P<0.05),且在热处理4 h时还显著高于其他热处理时间(P<0.05)。
表5 热处理时间对BMECs内氧化应激相关指标的影响

Table 5 Effects of heat treatment time on oxidative stress-related indices in BMECs

项目
Items
时间Time/h 均值
标准误
SEM
P
P-value
0 1 4 6 8 12 24
超氧化物歧化酶SOD/(U/mL) 33.04a 32.40a 25.47c 32.12a 29.01b 24.51c 31.88a 0.788 <0.000 1
过氧化物酶CAT/(U/mL) 0.94a 0.17b 0.26b 0.30ab 0.92a 0.70ab 1.02a 0.191 0.016 3
谷胱甘肽过氧化物GPx/(U/mL) 0.36a 0.30cd 0.28d 0.34ab 0.29cd 0.32bc 0.35ab 0.011 <0.000 1
丙二醛MDA/(nmol/mL) 0.50b 0.80b 2.65a 1.14b 0.84b 1.31b 0.91b 0.271 <0.000 1
活性氧ROS/(ng/mg prot) 0.28d 0.43bc 0.63a 0.53ab 0.37cd 0.41c 0.49bc 0.036 <0.000 1

2.4 热处理时间对BMECs内炎症反应的影响

表6所示,随着热处理时间的延长,NF-κB p65和NF-κB p50的mRNA相对表达量整体呈现先上升后下降再上升的趋势。热处理不同时间后NF-κB p65和NF-κB p50的mRNA相对表达量均高于对照组,其中NF-κB p65的mRNA相对表达量在热处理4 h时显著上升(P<0.05),在6 h时又显著下降(P<0.05);NF-κB p50的mRNA相对表达量在热处理1和4 h时显著上升(P<0.05),在6 h后又显著回落(P<0.05)。
表6 热处理时间对BMECs内NF-κB信号通路相关基因表达的影响

Table 6 Effects of heat treatment time on expression of NF-κB signaling pathway-related genes in BMECs

项目
Items
时间Time/h 均值
标准误
SEM
P
P-value
0 1 4 6 8 12 24
核因子-κB p65 NF-κB p65 1.00c 1.73bc 3.10a 1.06c 1.48bc 2.61ab 1.96abc 0.375 0.004 8
核因子-κB p50 NF-κB p50 1.00c 1.77b 2.87a 1.83b 1.77b 1.50bc 1.92b 0.161 <0.000 1
表7所示,随着热处理时间的延长,TNF-α和IL-1β含量整体呈现先上升后下降的趋势。IL-1β含量在热处理4 h时较对照组显著上升(P<0.05),与其余热处理时间无显著差异(P≥0.05);TNF-α含量在热处理1、4、6、8、12和24 h时均较对照组显著上升(P<0.05),但在热处理24 h时较4 h时有显著回落(P<0.05)。
表7 热处理时间对BMECs内炎症因子含量的影响

Table 7 Effects of heat treatment time on inflammatory factor contents in BMECspg/mL

项目
Items
时间Time/h 均值
标准误
SEM
P
P-value
0 1 4 6 8 12 24
白细胞介素-1β IL-1β 233.73b 243.03b 256.03a 232.97b 240.07b 236.78b 245.47ab 3.942 0.003 0
肿瘤坏死因子-α TNF-α 246.83c 291.42ab 320.20a 316.65a 306.29ab 313.92a 277.92b 10.012 0.000 2

2.5 热处理时间对BMECs内乳蛋白合成的影响

表8所示,与对照组相比,mTOR的mRNA相对表达量在热处理4、6、8、12和24 h时显著下降(P<0.05);STAT5的mRNA相对表达量在热处理4和6 h时显著下降(P<0.05);JAK2的mRNA相对表达量在热处理1、4、6、8、12和24 h时均显著下降(P<0.05)。
表8 热处理时间对BMECs内乳蛋白合成相关基因表达的影响

Table 8 Effects of heat treatment time on expression of milk protein synthesis-related genes in BMECs

项目
Items
时间Time/h 均值
标准误
SEM
P
P-value
0 1 4 6 8 12 24
哺乳动物雷帕霉素靶蛋白
mTOR
1.00a 0.76ab 0.71b 0.66bc 0.42c 0.55bc 0.58bc 0.078 0.001 6
信号转导与转录激活因子5
STAT5
1.00a 0.84ab 0.60b 0.55b 0.86ab 0.74ab 0.70ab 0.080 0.031 0
Janus激酶2 JAK2 1.00a 0.68b 0.56bc 0.54bc 0.31c 0.63b 0.71b 0.080 0.000 3
表9所示,在热处理4、12和24 h时AMPK含量较对照组显著增加(P<0.05),且这3个热处理时间之间差异不显著(P≥0.05),热处理6~8 h时开始略有下降,12~24 h时又有所回升。
表9 热处理时间对BMECs内乳蛋白合成相关酶含量的影响

Table 9 Effects of heat treatment time on content of milk protein synthesis-related enzyme in BMECs ng/mL

项目
Item
时间Time/h 均值
标准误
SEM
P
P-value
0 1 4 6 8 12 24
腺苷酸活化蛋白激酶
AMPK
13.41c 19.18bc 24.06ab 19.06bc 17.71bc 21.51ab 27.86a 2.204 0.008 8

3 讨论

3.1 热应激对BMECs增殖的影响

乳腺是一个高度组织化的器官,能将血液中的营养物质转化为乳成分。奶牛乳腺健康是决定泌乳量的主要因素,经过胃肠道消化重吸收的小分子营养物质进入血液,流经BMECs吸收利用,组成乳脂、乳蛋白等营养物质,最终分泌合成牛乳。研究表明,在高温环境下暴露使BMECs出现较高的程序性死亡,导致细胞总数量和活性显著下降,细胞凋亡的相关基因表达显著上调,但参与细胞结构和生物合成的基因表达显著上调[5-6]。奶牛乳腺内温度与核心体温高度相关,并且在热应激时乳腺内温度更高[7]。前人研究发现,BMECs在43 ℃下处理1~2 h时细胞增殖率显著降低[17-18]。因此,本试验选择43 ℃作为制造热应激的处理温度。细胞增殖率作为建立细胞氧化应激模型的关键指标,孔令联等[19]认为根据不同细胞耐受力,选择增殖率在50%~70%为宜,增殖率过高说明应激源对细胞的刺激不显著,增殖率过低说明细胞受到了不可逆的损伤。本试验中,BMECs在43 ℃处理4、6、8 h时增殖率分别显著下降到65.89%、59.44%、55.67%,符合建模条件。

3.2 热应激对BMECs内热休克蛋白的影响

细胞热应激时会产生热休克反应,热休克蛋白被诱导表达,通过修复蛋白质损伤维持细胞内部稳定性。BMECs发生热应激后,HSF1与热应激元件结合激活下游热休克蛋白的表达,增强细胞耐热性[20]。大量研究发现,热应激后HSF1、HSP70、HSP90的表达显著上调[21-22]。HSP70是保护细胞免受热应激损伤的主要蛋白质,在热应激后其表达急速上调,导致对抗蛋白毒性的下一道防线启动,从而增加细胞的耐热性。本试验结果表明,在43 ℃处理4 h时BMECs内热休克蛋白的基因表达显著上调,随后部分下调,说明热应激下BMECs通过提高热休克蛋白的基因表达使细胞适应热环境,增强细胞耐热性。因此,选择4 h作为热应激建模的热处理时间。

3.3 热应激对BMECs内氧化应激状态的影响

热应激诱导ROS过量产生,打破氧化还原平衡,诱发细胞氧化应激,这是判断氧化应激状态的重要指标。MDA是脂质过氧化反应的最终产物,可以反映细胞损伤程度。Li等[23]研究表明,热应激诱导的氧化应激显著增加了BMECs内MDA的含量。本试验中,BMECs内ROS和MDA含量经43 ℃处理4 h后显著增加。研究表明,热应激增加ROS含量的同时降低了SOD、GPx和CAT活性,SOD和GPx构成了防御ROS诱导的氧化应激的主要屏障[24-25]。SOD催化超氧自由基生成过氧化氢,CAT将过氧化氢分解成水和氧气。本试验结果与之一致,在热处理4 h时BMECs内SOD、GPx和CAT活性显著下降。Nrf2信号通路是机体抵抗内环境氧化和化学刺激的重要防御性转导途径,过量的ROS激活Nrf2并在细胞核中积累,从而启动下游Keap1、HO-1等参与抗氧化基因的转录[26]。Wang等[22]研究发现,热应激促进了Nrf2的表达和核转位,HO-1和硫氧还蛋白还原酶1(Txnrd1)的mRNA相对表达量增加。这与本试验结果一致,热处理4 h时,BMECs内Nrf2、Keap1、HO-1的mRNA相对表达量表达显著增加。
氧化应激与炎症存在密切联系,炎症反应由细胞因子参与调控。在细胞因子中,NF-κB是调节炎症反应的关键因子。郑亚光[27]研究发现,沉默NF-κB基因,TNF-αIL-1β的基因表达量减少,从而减轻炎症反应。TNF-α和IL-1β是体内重要的促炎因子,参与机体免疫应答和炎症反应的调节。本试验中,热处理4 h时,在诱发BMECs氧化应激的同时,也使TNF-α和IL-1β的含量显著增加,同时伴随着NF-κB p65和NF-κB p50表达的显著上调。研究发现,热应激会上调BMECs内TNF-αIL-1β的基因表达[22]。这与本研究结果一致,说明热应激会激活炎症反应,导致TNF-α、IL-1β、NF-κB p65和NF-κB p50等炎症因子的表达上调,最终导致细胞损伤。

3.4 热应激对BMECs内乳蛋白合成的影响

奶牛热应激造成乳品质的下降主要表现为乳糖、乳脂及乳蛋白含量下降,而且这种负面影响具有持续性。与其他季节相比,夏季牛奶中乳蛋白含量下降6%[28]。干奶期的奶牛受到热应激的影响会使下一个泌乳周期的乳蛋白含量和产量下降,乳中免疫球蛋白的合成和杀菌功能也受到抑制[29]。在乳蛋白合成时需要足够的氨基酸和能量供应,mTOR参与整合并将其转化为特定的生理反应,如乳蛋白合成和乳的分泌。mTOR是重要的营养感应通路,与JAK2/STAT5协作影响乳蛋白的合成和细胞的增殖。已有研究表明,热应激会影响mTOR表达,当乳合成时,AMPK可以识别葡萄糖,激活自身进而抑制mTOR的表达[30]。长期处于热应激状态下的奶牛出现蛋白质、能量代谢紊乱[31],热应激奶牛血液中AMPK含量会显著增加,并且BMECs在能量不足时激活AMPK,通过抑制mTOR信号通路减少乳蛋白的合成[32-33]。本试验中,热处理4 h时,BMECs内AMPK含量显著升高,mTORJAK2、STAT5的mRNA相对表达量呈现相反的变化趋势。目前miRNA靶标通路分析显示JAK2-STAT5通路在奶牛热应激中发挥重要作用[34],催乳素诱导JAK2-STAT5通路介导乳蛋白的合成[35],而研究发现热应激时大鼠体内的催乳素会显著下降[36],进而通过JAK2-STAT5信号通路影响了乳蛋白合成。以上研究说明热应激会降低乳蛋白合成。

3.5 BMECs发生热应激的时间依赖性响应

本试验所测各类指标随热处理时间的延长而变化,但基本呈现先上升后下降或先下降后上升的折线形变化规律。研究发现,热应激引起奶牛晶胚细胞凋亡,但当细胞建立热耐受后抑制了这种变化[37]。高温诱导热休克蛋白的基因表达建立热耐受,以此保护细胞免受伤害。有研究发现,在热处理2~5 h时,鸡的心肌纤维、肝细胞和肾小管上皮细胞出现变形甚至坏死,但持续到10 h后受损减轻,表明细胞建立了一定程度的耐热性[38]。本试验中,热处理4 h时各热休克蛋白相关基因的mRNA相对表达量最高,6 h后开始下降,这可能是由于细胞在不断适应环境的变化,以保护自身免受损伤,是细胞产生耐受的反应;同时,抗氧化酶、炎症因子也出现相似的变化,多数指标在热处理4~6 h时出现第1个拐点。因此,综合热应激后BMECs增殖率、形态和各类指标的变化,选择4 h作为建立BMECs热应激模型的热处理时间。

4 结论

本试验条件下,43 ℃处理4 h可成功构建BMECs热应激模型。
[1]
ARMSTRONG D V. Heat stress interaction with shade and cooling[J]. Journal of Dairy Science, 1994, 77(7):2044-2050.

[2]
李征, 陈胜楠, 葛萃萃, 等. 热应激对荷斯坦奶牛泌乳能力和乳成分乳脂脂肪酸组成的影响[J]. 中国乳品工业, 2020, 48(11):19-21,25.

LI Z, CHEN S N, GE C C, et al. Effects of heat stress on lactation performance and fatty acid composition of milk fat in Holstein cows[J]. China Dairy Industry, 2020, 48(11):19-21,25. (in Chinese)

[3]
LI H, ZHANG Y F, LI R, et al. Effect of seasonal thermal stress on oxidative status,immune response and stress hormones of lactating dairy cows[J]. Animal Nutrition, 2021, 7(1):216-223.

[4]
CHOUPANI M, RIASI A, ALIKHANI M, et al. Effect of sustained-release antioxidant bolus on body condition score,blood parameters,uterine health,and some reproductive parameters in transition dairy cows under heat stress condition[J]. Tropical Animal Health and Production, 2023, 55(6):424.

[5]
吴方超, 顾凤飞, 刘建新. 热应激对奶牛免疫功能、消化道稳态和乳腺健康的影响及机制[J]. 动物营养学报, 2024, 36(9):5479-5485.

WU F C, GU F F, LIU J X. Effects and mechanisms of heat stress on immune function,digestive tract homeostasis and mammary gland health of dairy cows[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5479-5485. (in Chinese)

[6]
SKIBIEL A L, DADO-SENN B, FABRIS T F, et al. In utero exposure to thermal stress has long-term effects on mammary gland microstructure and function in dairy cattle[J]. PLoS One, 2018, 13(10):e0206046.

[7]
KAUFMAN J D, SAXTON A M, RĪUS A G. Short communication:relationships among temperature-humidity index with rectal,udder surface,and vaginal temperatures in lactating dairy cows experiencing heat stress[J]. Journal of Dairy Science, 2018, 101(7):6424-6429.

[8]
LI L, SUN Y, WU J, et al. The global effect of heat on gene expression in cultured bovine mammary epithelial cells[J]. Cell Stress & Chaperones, 2015, 20(2):381-389.

[9]
COLLIER R J, DOELGER S G, HEAD H H, et al. Effects of heat stress during pregnancy on maternal hormone concentrations,calf birth weight and postpartum milk yield of Holstein cows[J]. Journal of Animal Science, 1982, 54(2):309-319.

[10]
WENG X, MONTEIRO A P A, GUO J, et al. Effects of heat stress and dietary zinc source on performance and mammary epithelial integrity of lactating dairy cows[J]. Journal of Dairy Science, 2018, 101(3):2617-2630.

[11]
TAO S, ORELLANA R M, WENG X, et al. Symposium review:the influences of heat stress on bovine mammary gland function[J]. Journal of Dairy Science, 2018, 101(6):5642-5654.

[12]
WANG J C, LU Q Y, CAI J Y, et al. Nestin regulates cellular redox homeostasis in lung cancer through the Keap1-Nrf2 feedback loop[J]. Nature Communications, 2019, 10(1):5043.

[13]
WANG S P, CAO K, LIAO Y T, et al. CDCA2 protects against oxidative stress by promoting BRCA1-NRF2 signaling in hepatocellular carcinoma[J]. Oncogene, 2021, 40(25):4368-4383.

[14]
EBRAHIMI R, SEPAND M R, SEYEDNEJAD S A, et al. Ellagic acid reduces methotrexate-induced apoptosis and mitochondrial dysfunction via up-regulating Nrf2 expression and inhibiting the IκBα/NFκB in rats[J]. Journal of Faculty of Pharmacy, 2019, 27(2):721-733.

[15]
郭咏梅, 闫素梅. 硒对奶牛乳腺氧化应激及炎症反应的调控作用及其机制[J]. 动物营养学报, 2021, 33(8):4213-4220.

GUO Y M, YAN S M. Regulation and mechanism of selenium on oxidative stress and inflammation in dairy cows[J]. Chinese Journal of Animal Nutrition, 2021, 33(8):4213-4220. (in Chinese)

[16]
LI Y, YU R, TAN S J, et al. UFBP1 ameliorates heat stress-induced apoptosis via mitochondria-mediated pathway in bovine mammary epithelial cells[J]. Animals, 2025, 15(9):1233.

[17]
LIM J W, LEE J H, NEJAD J G, et al. Effects of L-leucine and sodium acetate on milk protein synthesis under heat stress conditions in bovine mammary epithelial cells in vitro[J]. Journal of Thermal Biology, 2024,126:103975.

[18]
ZOU Y X, SHAO J J, LI Y X, et al. Protective effects of inorganic and organic selenium on heat stress in bovine mammary epithelial cells[J]. Oxidative Medicine and Cellular Longevity, 2019,2019:1503478.

[19]
孔令联, 崔艳军, 杨金勇, 等. 奶牛小肠上皮细胞氧化损伤模型的构建[J]. 中国畜牧杂志, 2018, 54(11):79-83.

KONG L L, CUI Y J, YANG J Y, et al. Establishment of oxidative damage model in cow intestinal epithelial cells[J]. Chinese Journal of Animal Science, 2018, 54(11):79-83. (in Chinese)

[20]
MORANO K A, THIELE D J. Heat shock factor function and regulation in response to cellular stress,growth,and differentiation signals[J]. Gene Expression, 1999, 7(4/6):271-282.

[21]
BAI H, LI T T, YU Y, et al. Cytoprotective effects of taurine on heat-induced bovine mammary epithelial cells in vitro[J]. Cells, 2021, 10(2):258.

[22]
WANG H Z, HAO W G, YANG L, et al. Procyanidin B2 alleviates heat-induced oxidative stress through the Nrf2 pathway in bovine mammary epithelial cells[J]. International Journal of Molecular Sciences, 2022, 23(14):7769.

[23]
LI C M, WANG Y R, LI L, et al. Betaine protects against heat exposure-induced oxidative stress and apoptosis in bovine mammary epithelial cells via regulation of ROS production[J]. Cell Stress and Chaperones, 2019, 24(2):453-460.

[24]
GANAIE A H, SHANKER G, BUMLA N A, et al. Biochemical and physiological changes during thermal stress in bovines[J]. Journal of Veterinary Science and Technology, 2013, 4(1):1000126.

[25]
ZHANG B Z, GUO X T, CHEN J W, et al. Saikosaponin-D attenuates heat stress-induced oxidative damage in LLC-PK1 cells by increasing the expression of anti-oxidant enzymes and HSP72[J]. The American Journal of Chinese Medicine, 2014, 42(5):1261-1277.

[26]
赵雅丽, 张心壮, 格日乐其木格, 等. 氧化应激对畜禽组织器官的损伤及核因子E2相关因子2-抗氧化反应元件信号通路抗氧化应激的机理研究进展[J]. 动物营养学报, 2020, 32(5):2052-2059.

ZHAO Y L, ZHANG X Z, GERELCHIMEG, et al. Research progress of oxidative stress damage on livestock tissues and organs associated with antioxidative stress mechanism of nuclear factor E2 related factor 2-antioxidant response element signaling pathway[J]. Chinese Journal of Animal Nutrition, 2020, 32(5):2052-2059. (in Chinese)

[27]
郑亚光. 壳聚糖通过NF-κB信号通路调节奶牛抗氧化功能与抗炎症反应的机理研究[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2020.

ZHENG Y G. Mechanism of chitosan regulating antioxidant function and anti-inflammatory response of dairy cows by NF-κB signaling pathway[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2020. (in Chinese)

[28]
BERNABUCCI U, BASIRICÒ L, MORERA P, et al. Effect of summer season on milk protein fractions in Holstein cows[J]. Journal of Dairy Science, 2015, 98(3):1815-1827.

[29]
SAFA S, KARGAR S, MOGHADDAM G A, et al. Heat stress abatement during the postpartum period:effects on whole lactation milk yield,indicators of metabolic status,inflammatory cytokines,and biomarkers of the oxidative stress[J]. Journal of Animal Science, 2019, 97(1):122-132.

[30]
KIM J E, LEE H G. Amino acids supplementation for the milk and milk protein production of dairy cows[J]. Animals, 2021, 11(7):2118.

[31]
ANTANAITIS R, DŽERMEIKAITĒ K, KRIŠTOLAITYTĒ J, et al. The impacts of heat stress on rumination,drinking,and locomotory behavior,as registered by innovative technologies,and acid-base balance in fresh multiparous dairy cows[J]. Animals, 2024, 14(8):1169.

[32]
MIN L, CHENG J B, SHI B L, et al. Effects of heat stress on serum insulin,adipokines,AMP-activated protein kinase,and heat shock signal molecules in dairy cows[J]. Journal of Zhejiang University.Science.B, 2015, 16(6):541-548.

[33]
BURGOS S A, KIM J J M, DAI M, et al. Energy depletion of bovine mammary epithelial cells activates AMPK and suppresses protein synthesis through inhibition of mTORC1 signaling[J]. Hormone and Metabolic Research, 2013, 45(3):183-189.

[34]
LI Q L, YANG C H, DU J, et al. Characterization of miRNA profiles in the mammary tissue of dairy cattle in response to heat stress[J]. BMC Genomics, 2018, 19(1):975.

[35]
CHEN M J, PAN N X, WANG X Q, et al. Methionine promotes crop milk protein synthesis through the JAK2-STAT5 signaling during lactation of domestic pigeons (Columba livia)[J]. Food & Function, 2020, 11(12):10786-10798.

[36]
DOU J H, KHAN A, KHAN M Z, et al. Heat stress impairs the physiological responses and regulates genes coding for extracellular exosomal proteins in rat[J]. Genes, 2020, 11(3):306.

[37]
PAULA-LOPES F F, HANSEN P J. Heat shock-induced apoptosis in preimplantation bovine embryos is a developmentally regulated phenomenon[J]. Biology of Reproduction, 2002, 66(4):1169-1177.

[38]
付旭彬, 孙培明, 李玉保, 等. 肉鸡组织脏器的急性热应激损伤及HSP90的表达[J]. 南京农业大学学报, 2004, 27(3):85-88.

FU X B, SUN P M, LI Y B, et al. Tissue damages of heat-stressed broilers and expression of HSP90[J]. Journal of Nanjing Agricultural University, 2004, 27(3):85-88. (in Chinese)

文章导航

/