研究论文

呼伦贝尔羊瘤胃组织中微小RNA表达谱及其与表型关联研究

  • 周智轩 , 1, 2 ,
  • 颜琼娴 , 2, * ,
  • 贺志雄 2, 3 ,
  • 谭支良 2
展开
  • 1 湖南农业大学生物科学技术学院,长沙 410128
  • 2 中国科学院亚热带农业生态研究所,长沙 410125
  • 3 饲草种质高效设计与利用全国重点实验室,北京 100093
*颜琼娴,副研究员,硕士生导师,E-mail:

周智轩(2002—),男,湖南娄底人,硕士研究生,研究方向为反刍动物营养。E-mail:

Copy editor: 菅景颖

收稿日期: 2025-04-13

  网络出版日期: 2025-11-14

基金资助

中国科学院国际伙伴计划(092GJHZ2023050FN)

中国科学院战略性先导科技专项(XDA26040304)

Expression Profile of MicroRNA in Rumen Tissue of Hulunbuir Sheep and Its Correlation with Phenotype

  • ZHOU Zhixuan , 1, 2 ,
  • YAN Qiongxian , 2, * ,
  • HE Zhixiong 2, 3 ,
  • TAN Zhiliang 2
Expand
  • 1 College of Bioscience and Biotechnology, Hunan Agricultural University, Changsha 410128, China
  • 2 Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 3 State Key Laboratory of Forage Breeding-by-Design and Utilization, Beijing 100093, China
*associate professor, E-mail:

Received date: 2025-04-13

  Online published: 2025-11-14

摘要

本试验旨在探究呼伦贝尔羊在不同生长阶段瘤胃组织微小RNA(miRNA)的表达谱特征,以及miRNA表达模式与其生长发育相关表型指标之间的潜在关联,为理解瘤胃上皮发育的miRNA分子调节机制以及优化饲养管理策略提供科学支撑。将24只体重[(18.70±1.30) kg]相近、90日龄的雄性健康呼伦贝尔羊随机分为4组(每组6只),分别在90(3月龄,记为M3)、150(5月龄,记为M5)、180(6月龄组,记为M6)和240日龄(8月龄,记为M8)当日进行体重测量,采集颈静脉血检测游离氨基酸和免疫球蛋白含量等指标,屠宰后采集瘤胃组织提取总的RNA,构建miRNA文库,并进行Illumina测序。结果显示:1)在瘤胃组织中共鉴定到1 698个miRNA,各组存在差异表达的miRNA共568个(占比33.5%)。与M3阶段相比,M5、M6和M8阶段存在的差异表达miRNA数量分别为118、100和111个。2)与M3阶段相比,M5、M6和M8阶段共同存在的26个差异表达miRNA中,除miR-1490和miR-846的表达量上调外,其余miRNA的表达量均下调。3)与M3阶段相比,M5、M6和M8阶段的差异表达miRNA的靶基因主要富集在FcγR介导的吞噬作用信号通路;与M5阶段相比,M6和M8阶段的差异表达miRNA的靶基因主要富集在Notch信号通路;与M6阶段相比,M8阶段差异表达miRNA的靶基因主要富集在逆向内源性大麻素信号通路。4)鉴定出的miRNA可分成13个共表达模块,其中以miR-1185-3p为代 表的含175个miRNA的蓝色模块与外周血中甘氨酸(Gly)含量呈显著正相关(r=0.52,P=0.011),以miR-1024为代表的含53个miRNA的黑色模块与外周血中免疫球蛋白A(IgA)含量呈显著正相关(r=0.49,P=0.016),以miR-10b为代表的含269个miRNA的棕色模块与外周血中蛋氨酸(Met)(r=-0.47,P=0.015)和生长激素(GH)含量(r=-0.47,P=0.018)呈显著负相关。综上所述,不同生长阶段呼伦贝尔羊瘤胃组织中miRNA的表达模式存在差异,差异表达miRNA主要参与FcγR介导的吞噬作用、Notch信号通路、细胞因子-细胞因子受体信号通路等信号通路的调控。瘤胃组织的miRNA通过影响血液中Gly、IgA、Met以及GH的分泌,间接参与呼伦贝尔羊的生长发育调控。

本文引用格式

周智轩 , 颜琼娴 , 贺志雄 , 谭支良 . 呼伦贝尔羊瘤胃组织中微小RNA表达谱及其与表型关联研究[J]. 动物营养学报, 2025 , 37(11) : 7885 -7899 . DOI: 10.12418/CJAN2025.641

Abstract

This study aimed to investigate the expression profile characteristics of microRNA (miRNA) in rumen tissue of Hulunbuir sheep at different growth stages, as well as the potential correlations between the miRNA expression patterns and their associated growth and development phenotypic indicators, in order to provide scientific support for understanding the miRNA molecular regulatory mechanism of rumen epithelial development and optimizing feeding management strategies. Twenty-four healthy male Holunbuir sheep with the similar weight (18.70±1.30) kg and at 90 days of age were randomly divided into 4 groups (6 sheep in each group). Body weight was measured at 90 (3 months of age, designated as M3), 150 (5 months of age, M5), 180 (6 months of age, M6), and 240 days of age (8 months of age, M8). On the same days, jugular vein blood samples were collected to determine indicators such as free amino acid and immunoglobulin contents. After slaughter, rumen tissue was collected to extract total RNA, construct a miRNA library, and perform Illumina sequencing. The results showed as follows: 1) a total of 1 698 microRNAs (miRNAs) were identified in the rumen tissue. There were 568 differentially expressed miRNAs among the groups (accounting for 33.5%). Compared with the stage M3, the number of differentially expressed miRNAs in the stages M5, M6 and M8 was 118, 100 and 111, respectively. 2) Among the 26 differentially expressed miRNAs co-existing in the stages M5, M6, and M8 compared with the stage M3, the expression levels of all miRNAs were significantly downregulated (P<0.05), with the expression levels of miR-1490 and miR-846, which showed significant upregulation (P<0.05). 3) Compared with the stage M3, the differentially expressed miRNAs at the stages M5, M6 and M8 mainly enriched the FcγR-mediated phagocytosis signaling pathway; compared with the stage M5, the differentially expressed miRNAs at the stages M6 and M8 mainly enriched the Notch signaling pathway; compared with the stage M6, the differentially expressed miRNAs at the stage M8 mainly enriched the endogenous cannabinoid signaling pathway. 4) The identified miRNA could be divided into 13 co-expression modules. Among them, the blue module containing 175 miRNAs with miR-1185-3p as the representative was significantly positively correlated with the glycine (Gly) content in peripheral blood (r=0.52, P=0.011), the black module containing 53 miRNAs with miR-1024 as the representative was significantly positively correlated with the immunoglobulin A (IgA) content in peripheral blood (r=0.49, P=0.016), and the brown module containing 269 miRNAs with miR-10b as the representative was significantly negatively correlated with the methionine (Met) (r=-0.47,P=0.015) and growth hormone (GH) contents (r=-0.47, P=0.018) in peripheral blood. In summary, the expression profile of miRNA in rumen tissue of Hulunbuir sheep at different growth stages are different. The differentially expressed miRNAs are involved in regulating signaling pathways such as FcγR phagocytosis, Notch signalling pathway, cytokine-cytokine receptor signalling pathways. The miRNAs in rumen tissue indirectly participate in regulating the growth and development of Hulunbuir sheep by influencing the secretion of Gly, IgA, Met and GH in the blood.

我国拥有丰富的绵羊品种和悠久的绵羊遗传育种历史。通过广泛的自然选择和人工育种,呼伦贝尔羊具有抗寒性、耐粗饲、增重快、羔羊成活率高、肉质优良、膻味低等性状,这些优良性状使呼伦贝尔羊在养殖业中很受欢迎[1]。反刍动物具有独特的生物学特征,例如,它们拥有多个胃,可以将部分消化的食物重新送回口腔进行再次咀嚼和消化。反刍动物的胃由4部分组成,分别为瘤胃、网胃、瓣胃和皱胃,其中瘤胃被认为是反刍动物中最重要的进化特征[2]。研究表明,瘤胃、网胃和瓣胃可能是从食管进化而来[3-4]。作为反刍动物独特的消化器官,瘤胃具有丰富的微生物群,其主要功能是消化纤维素并将其转化为微生物蛋白、挥发性脂肪酸(volatile fatty acids,VFAs)及其衍生物,为机体提供重要的营养成分和能量供给[5]。这一系列复杂的生物转化过程受到宿主基因表达的精密调控。
微小RNA(microRNA,miRNA)是一类内源性的、长度为20~24个核苷酸的小RNA,其在细胞内具有多种重要的调节作用。每个miRNA可以有多个靶基因,而几个miRNA也可以调节同一个基因的表达。研究发现,荷斯坦公牛牛犊的瘤胃中早期微生物组产生的VFAs通过与宿主转录组和miRNA组的相互作用,调控瘤胃组织的代谢以及上皮细胞的发育[6]。据报道,在安格斯牛瘤胃中差异表达的bta-miR-122可能靶向紧密连接蛋白密封蛋白(occludin,OCLN)和RNA结合蛋白(RNA-binding protein 47,RBM47),进而对安格斯牛的瘤胃发酵功能造成不利影响[7]。Pacífico等[8]通过采集非泌乳期荷斯坦奶牛瘤胃组织样本,发现瘤胃上皮中的bta-miR-21-5p、bta-miR-143和bta-miR-24-3p表达量较高,这3个高表达的miRNA可能影响瘤胃上皮细胞的发育以及形态发生。除研究奶牛瘤胃中miRNA之外,研究人员还从山羊瘤胃中检测到一些miRNA(含miR-182、miR-23a以及miR-195-3p)对瘤胃发育有明显影响[9]。另有研究发现,miR-148a-3p是胚胎阶段山羊瘤胃中含量最丰富的miRNA之一[10]。因此,对于反刍动物而言,瘤胃中的miRNA对瘤胃上皮细胞的发育以及形态发生发挥着极其重要的作用。
到目前为止,饲粮组成和断奶月龄对瘤胃发育的影响已被广泛研究,而miRNA在呼伦贝尔羊瘤胃组织的表达及其与生长发育表型之间的关联机制尚未揭示。因此,本研究以增重速度较快的呼伦贝尔羊为试验对象,旨在探究呼伦贝尔羊在不同生长阶段瘤胃组织miRNA的表达谱特征,以及miRNA表达模式与其生长发育表型指标之间的潜在关联,为理解瘤胃上皮发育的miRNA分子调节机制以及优化饲养管理策略提供科学支撑。

1 材料与方法

1.1 试验材料

试验所需的呼伦贝尔羊均来自内蒙古自治区呼伦贝尔鄂温克旗中国科学院草牧业工程试验站。

1.2 试验设计与饲养管理

将24只体重[(18.70±1.30) kg]相近、90日龄的雄性健康呼伦贝尔羊随机分为4组(每组6只),分别在90(3月龄,记为M3)、150(5月龄,记为M5)、180(6月龄,记为M6)和240日龄(8月龄,记为M8)当日进行体重测量。各组羊饲喂相同的饲粮,该饲粮配方参照《肉羊营养需要量》(NY/T 816—2021)设计,精饲料与粗饲料的比例为70∶30,其组成及营养水平见表1。试验期间试验羊自由饮水,每天定时(分别在08:30和17:30)进行饲喂,同时记录每只羊的采食量。本试验的所有程序遵循《实验动物管理与使用指南》要求,试验动物的使用经中国科学院亚热带农业生态研究所动物伦理委员会批准(批准编号:ISA-202020)。
表1 饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the diet (DM basis)%

项目Items 含量Content
原料Ingredients
玉米Corn 30.01
大麦Barley 10.87
麸皮Wheat bran 8.72
豆粕Soybean meal 12.50
棉籽粕Cottonseed meal 3.00
预混料Premix1) 2.00
碳酸氢钠NaHCO3 0.70
氧化镁MgO 0.20
碳酸钙CaCO3 0.50
食盐NaCl 0.50
甜菜糖蜜Beet molasses 1.00
苜蓿Alfalfa 30.00
合计Total 100.00
营养水平Nutrients levels2)
干物质(风干基础) DM (air-dry basis) 94.82
代谢能ME/(MJ/kg) 11.05
粗蛋白质CP 14.82
酸性洗涤纤维ADF 6.81
中性洗涤纤维NDF 23.93
钙Ca 0.33
总磷TP 0.31

1)每千克预混料含有 One kg of premix contained the following:FeSO4·H2O 10 g,CuSO4·5H2O 3.97 g,CoSO4·H2O 33 mg,KIO3 1.5 g,MnSO4·H2O 20.34 g,ZnSO4·H2O 14.1 g,NaSeO3 0.5 g,VA 156 666.7 IU,VE 2 133.333 IU。

2)代谢能通过《中国饲料成分及营养价值表(2024年第35版)》中饲料原料的代谢能及其在饲粮配方中的质量百分比计算得出,其余为实测值。ME was calculated based on the ME of feed raw materials in Tables of Feed Composition and Nutritive Values in China (35th Edition, 2024) and their mass percentage in the dietary formula, while the others were measured values.

1.3 样品采集与处理

1.3.1 外周血采集

在试验结束当天,所有组别的试验羊(每组6只)于晨饲前采用颈静脉穿刺方式采血,并使用10 mL非抗凝采血管收集,之后将非抗凝采血管斜置于4 ℃冰箱中静置30 min,待血液凝固后1 007×g离心15 min,收集血清移至1.5 mL离心管内-20 ℃保存,用于后续游离氨基酸、生长激素(growth hormone,GH)、胰岛素(insulin,INS)、胰岛素样生长因子-1(insulin-like growth factor-1,IGF-1)、非酯化脂肪酸(non-esterified fatty acid,NEFA)、胰高血糖素样肽(glucagon-like peptide,GLP)、免疫球蛋白A(immunoglobulin A,IgA)、免疫球蛋白M(immunoglobulin M,IgM)以及免疫球蛋白G(immunoglobulin G,IgG)含量的检测。

1.3.2 瘤胃组织样采集

各组试验羊(每组6只)于对应月龄屠宰后取出瘤胃组织,将瘤胃内容物清洗干净,立即在每个瘤胃腹囊相同位置用剪刀取2~4 cm2的组织块,迅速用无菌生理盐水冲洗,冲至上皮表面无肉眼可见的饲草料颗粒,然后剪成1~2 cm2的组织块,分装于预冷的无菌冻存管中,并立即投入液氮中进行速冻,所有样本采集完毕后转运至实验室,保存于-80 ℃超低温冰箱。

1.4 饲粮营养成分的测定

干物质含量采用(105±2) ℃直接干燥法(DHG-9023A型烘箱,上海精宏实验设备有限公司)测定,粗蛋白质含量使用KDY-9830型全自动凯氏定氮仪(北京瑞邦兴业科技有限公司)测定,中性洗涤纤维和酸性洗涤纤维含量使用FT12型自动纤维分析仪(德国格哈特公司)测定,钙含量采用国家标准《饲料中钙的测定》(GB/T 6436—2018)中的高锰酸钾法测定,总磷含量采用分光光度法(721N型紫外分光光度计,上海仪电分析仪器有限公司)测定。

1.5 血液指标的测定

外周血中游离氨基酸的含量采用L-8900型氨基酸分析仪(日立,日本)测定,免疫球蛋白、非酯化脂肪酸以及激素类的含量均采用酶联免疫吸附测定(ELISA)试剂盒(上海酶联生物科技有限公司)测定。

1.6 miRNA文库构建及测序

1.6.1 瘤胃组织总RNA的提取

使用TRIzol Reagent抽提总RNA,具体步骤参照试剂盒说明书进行。使用 Nanodrop2000(赛默飞公司,美国)对提取的RNA进行浓度检测,并使用全自动核酸质控分析系统(Agient2100,LabChip GX,铂金埃尔默公司,美国)对其完整性进行检测。

1.6.2 文库构建

以样品总RNA为起始样品,使用M3、M5、M6、M8组的试验羊的24个瘤胃组织总RNA构建miRNA文库。使用翌圣Hieff NGS Ultima Dual-mode mRNA Library Prep Kit for Illumina试剂盒(上海翌圣生物科技有限公司)富集样本miRNA。因为miRNA的5'端有磷酸基团,3'端含有羟基,使用T4 RNA Ligase 1和T4 RNA Ligase 2分别在miRNA的5'端和3'端接上接头,反转录合成cDNA,并进行PCR扩增,利用聚丙烯酰胺凝胶(PAGE)电泳筛选目的片段,切胶回收得到的片段即为miRNA文库。

1.6.3 文库质控与测序

文库构建完成后,使用Qubit 3.0荧光定量仪(赛默飞公司,美国)对文库的有效浓度进行检测,使用定量PCR(qPCR)方法对文库的有效浓度进行准确定量,以保证文库质量。库检合格后,用高通量测序系统Illumina NovaSeq 6000 platform(因美纳公司,美国)进行高通量测序,单端测序(single-end,SE)读长为50 nt。

1.6.4 测序数据处理

测序得到的原始图像数据经过碱基识别转化为原始测序数据,原始序列含有接头序列或低质量序列,为了保证信息分析的准确性,需要对原始序列进行质量控制,得到高质量序列(clean reads)。原始序列质量控制的标准为:1)去除接头;2)去除短于18或长于30个核苷酸的序列;3)对于每个样本,将质量值低的序列去掉;4)去除未知碱基N(N为无法识别的碱基)含量≥10%的reads。

1.7 小RNA分类注释与miRNA分析

1.7.1 小RNA分类注释

利用Bowtie软件,将clean reads分别与Silva数据库、GtRNAdb数据库、Rfam数据库和Repbase数据库进行序列比对[11],过滤核糖体RNA(rRNA)、转运RNA(tRNA)、核内小RNA(snRNA)、核仁小RNA(snoRNA)等非编码RNA(ncRNA)以及重复序列,获得包含miRNA的unannotated reads。

1.7.2 与参考基因组比对

利用Bowtie软件将unannotated reads与绵羊参考基因组(Ovis_aries.assembly_ARS_UI_Ramb_v2.0)进行序列比对,获取在参考基因组上的位置信息,即为mapped reads。

1.7.3 miRNA分析

在已知miRNA鉴定方面,将比对到参考基因组的reads与miRbase(v22)数据库中的已知miRNA的成熟序列及其上游2 nt与下游5 nt的范围进行比对,最多允许1个错配,鉴定到已知miRNA。对于未鉴定到已知miRNA的序列,利用miRDeep2软件进行新miRNA的预测[12]。利用miRDeep2软件包,通过测序reads比对到基因组上的位置信息得到可能的前体序列(precursor sequence),基于reads在前体序列上的分布信息以及miRNA的产生特点,主要包括成熟体(mature)、伴随链(star)和环部(loop)以及前体结构稳定性信息(使用RNAfold和Randfold软件评估),采用贝叶斯模型计算概率得分 (probability score),最终实现新miRNA的预测。

1.8 miRNA表达量分析

对各样本中的miRNA进行表达量的统计,并用TPM算法对表达量进行归一化处理[13]。TPM归一化处理公式为:
TPM= r e a d   c o u n t × 1   000   000 m a p p e d   r e a d s
式中:read count表示比对到某一miRNA的reads数目;mapped reads表示比对到所有miRNA上的reads数目。

1.9 差异表达miRNA分析与靶基因预测

1.9.1 差异表达miRNA筛选与聚类分析

使用edgeR包进行差异表达miRNA分析[14],获得各生长阶段样品之间的差异表达miRNA。在差异表达miRNA检测过程中,使用|log2[差异倍数(fold change,FC)]|≥0.58且P≤0.05作为筛选标准。聚类分析利用TPM算法对miRNA表达量进行标准化,消除测序深度影响。用相关系数或欧氏距离衡量样本间差异,通过“平均连锁法(average linkage)”或“完全连锁法(complete linkage)”生成树状图,结合热图(heatmap)展示表达模式。

1.9.2 靶基因预测

根据已知miRNA和新预测的miRNA与对应物种的基因序列信息,采用miRanda进行靶基因预测[15]

1.9.3 miRNA靶基因KEGG注释

使用BLAST软件将预测靶基因序列与KEGG数据库进行比对,获得靶基因的注释信息[16]。通过该数据库对差异表达miRNA靶基因KEGG的注释结果按照KEGG中通路类型进行分类。利用富集因子(enrichment factor)分析通路的富集程度,并利用Fisher精确检验方法计算富集显著性。其中富集因子的计算公式如下:
富集因子=(单个通路中的差异表达miRNA靶基因数/ 单个通路中的所有靶基因数)/(所有通路中的差异表达miRNA靶基因数/所有通路 中的所有靶基因数)。

1.10 加权共表达网络分析

采用R语言的加权基因共表达网络分析(weighted gene co-expression network analysis,WGCNA)完成数据分析工作,数据可视化部分由R语言和Python 语言完成。为满足无尺度网络分布条件,需合理选取邻接矩阵的权重参数power值,范围设为1~30。通过计算不同power值下的相关系数和平均连接度,选取相关系数高(接近1)且基因连接度合理的power值,确保网络接近无尺度分布且基因连接度适中。使用加权参数β构建邻接矩阵,转为拓扑重叠矩阵后计算表达相异度,采用Block-wise法建网。计算基因模块特征值与样本性状相关系数,关联模块与样本,将相关模块合并后,得最终模块用于分析。

1.11 数据分析

血液指标用Excel 2019进行初步整理计算后,采用SPSS 23.0统计软件进行单因素方差分析(one-way ANOVA),结果用平均值±标准差表示。当P≤0.05时表示差异显著,当P>0.05时表示差异不显著。

2 结果与分析

2.1 生长发育相关表型指标测定结果

表2可知,M6与M8阶段呼伦贝尔羊的体重显著高于M3与M5阶段(P<0.05);此外,外周血中游离氨基酸含量分析表明,M3阶段的呼伦贝尔羊外周血中甘氨酸(Gly)含量显著高于M8阶段(P<0.05),其余检测的外周血游离氨基酸以及激素类、免疫球蛋白和非酯化脂肪酸含量在各月龄阶段均未观察到显著差异(P>0.05)。
表2 不同生长阶段呼伦贝尔羊生长发育相关表型指标

Table 2 Phenotype indicators related to growth and development of Hulunbuir sheep at different growth stages

项目
Items
生长阶段Growth stages
3月龄M3 5月龄M5 6月龄M6 8月龄M8
体重Body weight/kg 18.60±1.15c 25.69±2.30b 32.60±1.00a 32.43±3.15a
外周血中游离氨基酸含量Free amino acid contents in peripheral blood/(μg/mL)
天冬氨酸Asp 5.10±3.41 5.94±2.43 5.50±1.32 4.02±1.47
苏氨酸Thr 34.55±14.16 43.43±12.94 43.28±11.33 36.04±7.20
丝氨酸Ser 8.77±3.69 10.36±2.94 10.56±2.79 7.31±1.89
谷氨酸Glu 42.17±15.81 46.21±15.54 52.63±9.88 36.54±14.48
甘氨酸Gly 61.21±24.85a 54.54±19.75ab 48.95±9.37ab 33.67±4.90b
丙氨酸Ala 17.20±5.72 21.36±3.39 20.13±3.98 20.14±4.23
半胱氨酸Cys 3.85±3.32 2.07±0.71 1.84±0.36 2.28±0.35
缬氨酸Val 26.72±11.88 26.38±5.30 31.07±9.19 23.12±6.23
蛋氨酸Met 3.16±1.31 3.44±1.10 3.67±0.80 2.96±0.77
异亮氨酸Ile 12.87±7.04 12.02±3.52 11.77±3.86 9.86±2.13
亮氨酸Leu 20.02±8.88 18.95±4.27 19.97±3.60 16.30±3.33
酪氨酸Tyr 11.07±5.94 14.86±4.90 15.19±3.52 12.87±3.13
苯丙氨酸Phe 8.46±2.76 9.95±2.10 10.36±2.01 8.94±1.64
赖氨酸Lys 25.17±9.81 26.88±6.78 25.03±3.23 20.05±6.03
组氨酸His 8.60±2.84 9.11±2.18 8.69±1.78 7.10±1.23
精氨酸Arg 22.15±10.17 24.00±6.96 23.36±7.22 16.71±5.75
脯氨酸Pro 11.92±4.10 11.89±2.40 11.91±2.09 9.29±1.52
外周血中激素类含量Hormone contents in peripheral blood
生长激素GH/(ng/mL) 9.23±2.60 10.67±1.40 11.43±1.79 10.50±1.61
胰岛素INS/(μIU/mL) 33.00±9.59 27.19±7.08 29.56±4.67 31.81±9.20
胰岛素样生长因子-1 IGF-1/(ng/mL) 1 120.01±271.74 979.99±117.46 1 202.09±175.38 1 161.43±207.41
胰高血糖素样肽GLP/(ng/mL) 12.09±2.24 12.26±1.53 12.55±2.02 11.71±1.96
外周血中免疫球蛋白含量Immunoglobulin contents in peripheral blood
免疫球蛋白A IgA/(μg/mL) 437.90±54.88 439.64±42.35 439.55±21.69 449.65±46.78
免疫球蛋白M IgM/(μg/mL) 2 006.51±343.88 2 015.70±359.77 1 961.53±400.34 1 931.54±196.63
免疫球蛋白G IgG/(mg/mL) 48.66±14.01 55.39±10.75 53.09±6.03 53.52±10.78
外周血中非酯化脂肪酸含量
NEFA content in peripheral blood/(ng/mL)
14.72±3.59 12.51±1.68 13.60±3.26 15.96±3.39

同行数据肩标不同小写字母表示差异显著(P<0.05)。

Values with different lowercase letter superscripts in the same line indicated significant difference (P<0.05).

2.2 瘤胃上皮组织miRNA鉴定

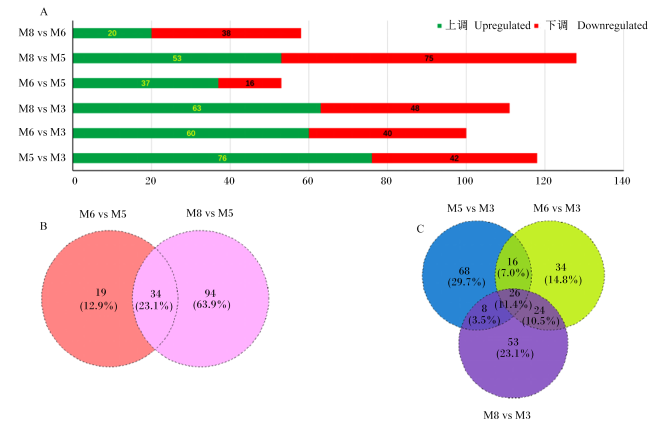
在呼伦贝尔羊的瘤胃上皮组织中,共鉴定到1 698个miRNA,其中差异表达miRNA共有568个(占比33.5%),如图1-A所示。与M3阶段相比,M5、M6和M8阶段的差异表达miRNA数量分别为118、100和111个,其中显著上调的差异表达miRNA数量分别为76、60和63个,显著下调的差异表达miRNA数量分别为42、40和48个。与M5阶段相比,M6和M8阶段的差异表达miRNA数量分别为53和128个,其中显著上调的差异表达miRNA数量分别为37和53个,显著下调的差异表达miRNA数量分别为16和75个。M8与M6阶段相比,差异表达miRNA数量为58个,其中显著上调的差异表达miRNA数量为20个,显著下调的差异表达miRNA数量为38个。韦恩图显示,与M5阶段相比,M6和M8阶段共同的差异表达miRNA数量为34个(占M6与M8阶段差异表达miRNA总数的23.1%)(图1-B);与M3阶段相比,M5、M6和M8阶段共同的差异表达miRNA数量为26个(占M5、M6和M8阶段差异表达miRNA总量的11.4%)(图1-C)。
图1 不同生长阶段呼伦贝尔羊瘤胃组织中的差异表达miRNA

M3:3月龄;M5:5月龄;M6:6月龄;M8:8月龄。下图同。M3: 3 months of age; M5: 5 months of age; M6: 6 months of age; M8: 8 months of age. The same as below.

A:4个生长阶段的两两比较中差异表达miRNA的数量;B:与M5阶段相比,M6和M8阶段共同存在的差异表达miRNA数量和比例;C:与M3阶段相比,在M5、M6和M8阶段共同存在的差异表达miRNA的数量和比例。A: the number of differentially expressed miRNA in pairwise comparisons among the four growth stages; B: the number and proportion of differentially expressed miRNA co-existing in stages M6 and M8 compared with stage M5; C: the number and proportion of differentially expressed miRNA co-existing in stages M5, M6 and M8 compared with stage M3.

Fig.1 Differentially expressed miRNA in rumen tissue of Hulunbuir sheep at different growth stages

2.3 差异表达miRNA的聚类分析

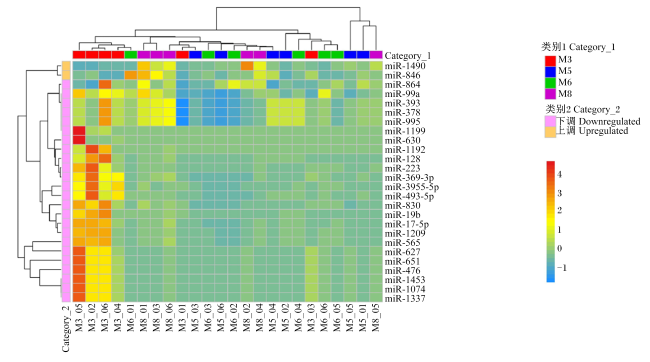
将呼伦贝尔羊不同生长阶段的瘤胃组织中共同的26个差异表达miRNA进行聚类分析,如图2所示。与M3组相比,26个差异表达的miRNA中,表达量上调的miRNA为miR-1490和miR-846,其余miRNA的表达量均下调。
图2 26个共同差异表达miRNA的聚类分析

Fig.2 Clustering analysis of 26 common differentially expressed miRNA

2.4 差异表达miRNA靶基因的KEGG通路富集分析

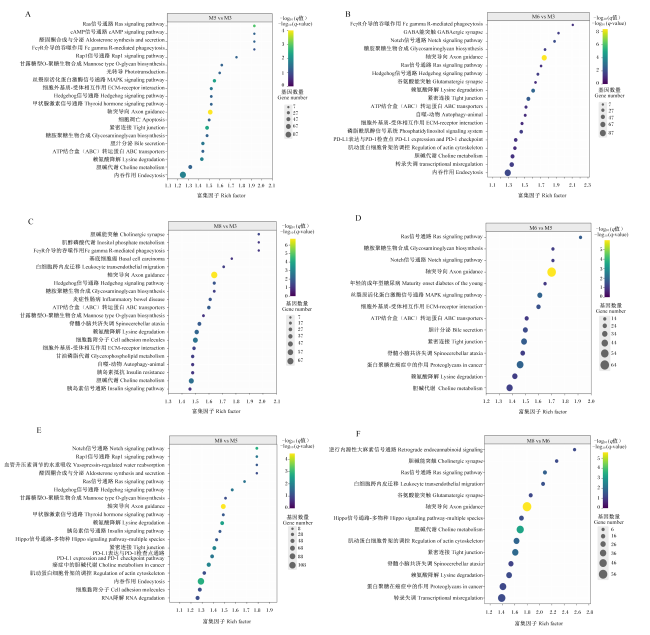
差异表达miRNA的靶基因共140 647个,KEGG通路富集分析显示,与M3阶段相比,M5、M6、M8阶段的差异表达miRNA的靶基因主要富集在FcγR介导的吞噬作用(Fc gamma R-mediated phagocytosis)、Ras信号通路(Ras signaling pathway)、cAMP信号通路(cAMP signaling pathway)、醛固酮合成与分泌(aldosterone synthesis and secretion)、GABA能突触(GABAergic synapse)、糖胺聚糖生物合成(glycosaminoglycan biosynthesis)、胆碱能突触(cholinergic synapse)以及肌醇磷酸代谢(inositol phosphate metabolism),如图3-A图3-B图3-C所示。与M5阶段对比,M6、M8阶段的差异表达miRNA的靶基因主要富集在Notch信号通路(Notch signaling pathway)、Ras信号通路、糖胺聚糖生物合成、Rap1信号通路(Rap1 signaling pathway)以及抗利尿激素调节-水重吸收(vasopressin-regulated water reabsorption),如图3-D图3-E所示。与M6阶段相比,M8阶段的差异表达miRNA的靶基因主要富集在逆行内源性大麻素信号通路(retrogarade endocannbinoid signaling pathway)、胆碱能突触(cholinergic synapse)以及Ras信号通路,如图3-F所示。
图3 不同生长阶段的呼伦贝尔羊瘤胃组织中差异表达miRNA的KEGG通路富集分析

A: M5与M3阶段差异表达miRNA富集通路;B:M6与M3阶段差异表达miRNA富集通路;C:M8与M3阶段差异表达miRNA富集通路;D:M6与M5阶段差异表达miRNA富集通路;E:M8与M5阶段差异表达miRNA富集通路;F:M8与M6阶段差异表达miRNA富集通路。

Fig.3 KEGG pathway enrichment of differentially expressed miRNA in rumen tissue of Hulunbuir sheep at different growth stages

A: differentially expressed miRNA enrichment pathway of stage M5 compared with stage M3; B: differentially expressed miRNA enrichment pathway of stage M6 compared with stage M3; C: differentially expressed miRNA enrichment pathway of stage M8 compared with stage M3; D: differentially expressed miRNA enrichment pathway of stage M6 compared with stage M5; E: differentially expressed miRNA enrichment pathway of stage M8 compared with stage M5; F: differentially expressed miRNA enrichment pathway of stage M8 compared with stage M6.

2.5 加权共表达网络分析

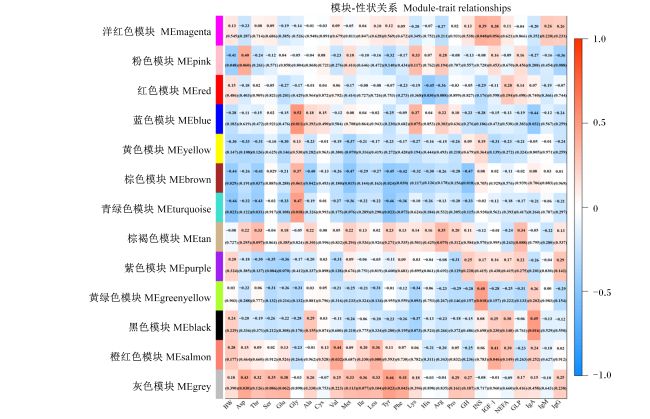
通过WGCNA,共构建出13个共表达模块(图4),包含1 516个差异表达miRNA。其中以miR-1185-3p为代表的含175个miRNA的蓝色模块(MEblue)与外周血中Gly含量呈显著正相关(r=0.52,P=0.011),以miR-1024为代表的含53个miRNA的黑色模块(MEblack)与外周血中IgA含量呈显著正相关(r=0.49,P=0.016),以miR-10b为代表的含269个miRNA的棕色模块(MEbrown)与外周血中蛋氨酸(Met)(r=-0.47,P=0.015)和GH含量(r=-0.47,P=0.018)呈显著负相关。
图4 不同生长阶段呼伦贝尔羊瘤胃组织中差异表达基因miRNA的加权基因共表达各模块与表型数据的关系

BW:体重 body weight;Asp:天冬氨酸 aspartic acid;Thr:苏氨酸 threonine;Ser:丝氨酸 serine;Glu:谷氨酸 glutamic acid;Gly:甘氨酸 glycine;Ala:丙氨酸 alanine;Cys:半胱氨酸 cysteine;Val:缬氨酸 valine;Met:蛋氨酸 methionine;Ile:异亮氨酸 isoleucine;Leu:亮氨酸 leucine;Tyr:酪氨酸 tyrosine;Phe:苯丙氨酸 phenylalanine;Lys:赖氨酸 lysine;His:组氨酸 histidine;Arg:精氨酸 arginine;Pro:脯氨酸 proline;GH:生长激素 growth hormone;INS:胰岛素 insulin;IGF-1:胰岛素样生长因子-1 insulin-like growth factor-1;NEFA:非酯化脂肪酸 non-esterified fatty acid;GLP:胰高血糖素样肽 glucagon-like peptide;IgA:免疫球蛋白A immunoglobulin A;IgM:免疫球蛋白M immunoglobulin M;IgG:免疫球蛋白G immunoglobulin G。

Fig.4 Relationship between weighted gene co-expression modules of differentially expressed miRNA in rumen tissue and phenotypic data of Hulunbuir sheep at different growth stages

2.6 表型相关miRNA的表达量

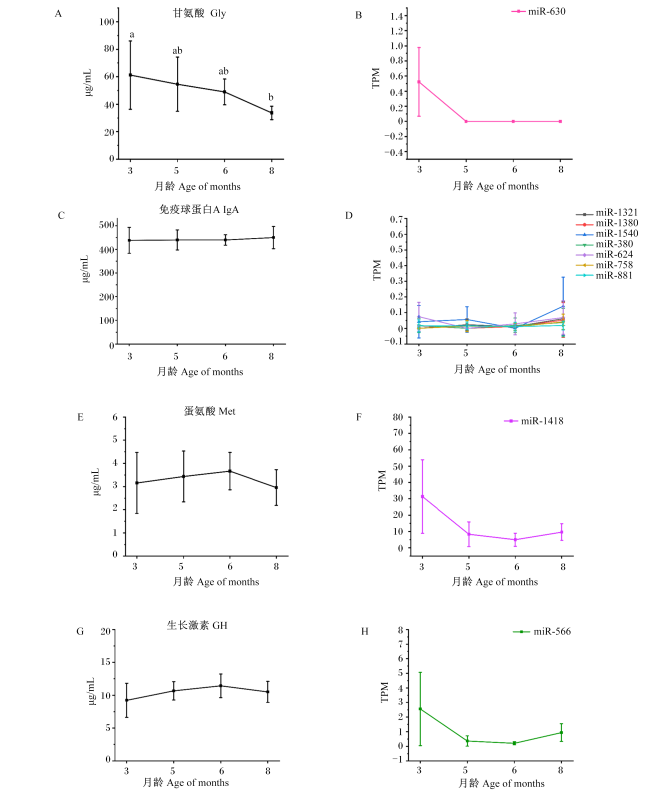
通过测定与外周血中Gly、IgA、Met和GH含量相关的miRNA的表达量,发现外周血中Gly含量在M3、M5以及M6阶段趋于平稳,M8阶段显著低于M3阶段(P<0.05),总体呈下降趋势,如图5-A所示。与外周血中Gly含量相关的miR-630在M3阶段的表达量最高(0.522 TPM),M5、M6以及M8阶段的表达量均为0 TPM,如图5-B所示。与外周血中IgA含量(维持稳定,图5-C)相关的miRNA有7个,分别是miR-1321、miR-1380、miR-1540、miR-380、miR-624、miR-758以及miR-881,如图5-D所示,这些miRNA的表达量在各月龄阶段趋于平稳。与外周血中Met含量(先升高后降低,图5-E)相关的miRNA为miR-1418,如图5-F所示,miR-1418的表达量在M3阶段是最高的(31.368 TPM),最低点在M6阶段(5.008 TPM)。与外周血中GH含量(先升高后降低,图5-G)相关的miRNA为miR-566,如图5-H所示,miR-566的表达量在M3阶段最高(2.560 TPM),在M6阶段最低(0.207 TPM)。
图5 不同生长阶段的呼伦贝尔羊相关表型及其相关miRNA的表达量的变化

A:外周血中Gly含量的变化;B:与外周血中Gly含量呈正相关的miRNA的表达量;C:外周血中IgA含量的变化;D:与外周血中IgA含量呈正相关的miRNA的表达量;E:外周血中Met含量的变化;F:与外周血中Met含量呈负相关的miRNA的表达量;G:外周血中GH含量的变化;H:与外周血中GH含量呈负相关的miRNA的表达量。数据点标注不同小写字母表示差异显著(P<0.05)。

Fig.5 Changes in phenotypes related to Hulunbuir sheep at different growth stages and expression levels of their associated miRNA

A: the change of Gly content in peripheral blood; B: the expression level of miRNA positively correlated with Gly content in peripheral blood; C: the change of IgA content in peripheral blood; D: the expression level of miRNA positively correlated with IgA content in peripheral blood; E: the change of Met content in peripheral blood; F: the expression levels of miRNA negatively correlated with Met content in peripheral blood; G: the change of GH content in peripheral blood; H: the expression level of miRNA negatively correlated with GH content in peripheral blood. Data points labeled with different lowercase letters indicated significant difference (P<0.05).

3 讨论

通过高通量测序分析发现,在不同生长阶段的呼伦贝尔瘤胃组织中共鉴定到568个差异表达miRNA,在4个生长阶段均存在的差异表达miRNA仅26个。其中,miR-17-5p属于miR-17-92家族成员[17],该家族包含7个成员——miR-17-3p、miR-17-5p、miR-18a-5p、miR-19a-3p、miR-19b-3p、miR-20a-5p和miR-92a-3p,这些miRNA参与多种生物学调控过程,包括细胞增殖、分化、凋亡、代谢、血管生成、基因表达调控、免疫逃避等[18-19]。miR-17-5p是一种促肿瘤因子,通过靶向Runt相关转录因子3(RUNX3),降低胃肿瘤细胞的凋亡,进而促进胃肿瘤细胞的增殖和侵袭[20]。miR-99a已被证明能够靶向抑制钙蛋白酶小亚基1(CAPNS1)、钙蛋白酶1(CALPAIN1)与钙蛋白酶2(CALPAIN2)的表达[21],进而抑制胃癌细胞的增殖与侵袭。本研究发现,miR-17-3p和miR-99a在瘤胃组织中的表达量随着月龄的增加逐渐下调,这2个miRNA对瘤胃发育的调节功能需要深入研究。
通过KEGG通路富集分析发现,差异表达miRNA的靶基因主要富集在FcγR介导的吞噬作用、Notch信号通路以及逆行内源性大麻素信号通路等。研究发现,与M3阶段相比,M5、M6与M8阶段在FcγR介导的吞噬作用信号通路富集的差异表达miRNA数量均为6个,分别是miR-134-3p、miR-370-3p、miR-3957-5p、miR-485-3p、miR-541-3p与miR-654-5p。该通路属于免疫系统信号通路,由FcγR通过识别IgG包被的抗原,激活巨噬细胞、中性粒细胞等的吞噬功能。富集在该通路的差异表达miRNA中,miR-370-3p、miR-654-5p和miR-541-3p可分别调控靶基因肌球蛋白10(MYO10)、ArfGAP蛋白1(ASAP1)及ArfGAP蛋白3(ASAP3)的表达。其中靶基因MYO10通过编码肌球蛋白X,在细胞骨架重塑、膜运输以及信号转导中起关键作用[22]
据报道,MYO10过表达会引起细胞核形态的改变,进而导致DNA的损伤与染色体异常,促进肿瘤的发生[23]。但目前没有MYO10在瘤胃上皮发育中的作用的相关报道,在本研究中miR-370-3p表达量随呼伦贝尔羊月龄的增加而增加,因此推测miR-370-3p通过靶向MYO10调控瘤胃上皮细胞的骨架动力学,影响微生物附着或营养吸收。在该通路中,靶基因ASAP1与ASAP3通过编码妊娠相关糖蛋白3(PAG3),影响细胞的吞噬作用、细胞骨架的调节以及吞噬体的关闭[24]。研究报道,当ASAP3在胃黏膜细胞中高表达时,与胃液氢离子浓度呈正相关,低表达时,胃壁细胞的H+/K+-ATP酶在顶膜分布会减少,通过调控质子泵定位,进而影响胃酸的分泌[25]。在本研究中,miR-654-5p和miR-541-3p表达量随呼伦贝尔羊月龄的增加而增加,因此推测miR-654-5p和miR-541-3p可能通过靶向ASAP1与ASAP3调控瘤胃组织细胞的吞噬功能和瘤胃液的氢离子浓度。
与M5阶段相比,M6与M8阶段的差异表达miRNA靶基因还富集在Notch信号通路,该通路对于细胞分化、增殖以及凋亡有调控作用,在细胞发育以及维持细胞内环境稳态中发挥关键作用,包含miR-1193-5p在内的6个差异表达miRNA,绝大多数的差异表达miRNA调控Deltex E3泛素连接酶(DTX3L)的DTX1/DTX3基因家族。DTX1通过其RING结构域介导Notch受体的泛素化修饰,促进受体经内吞途径进入溶酶体降解,从而负反馈抑制Notch信号的过度激活[26],但目前对于DTX3的功能尚不明确。因此,推测miR-1193-5p、miR-134-3p、miR-370-3p、miR-3957-5p、miR-541-3p、miR-665-5p等6个差异表达miRNA参与调控靶基因DTX1的表达,通过泛素化修饰Notch受体,加速其溶酶体的降解,进而维持Notch信号通路的正常活性。在M8与M6阶段的比较中,差异表达miRNA的靶基因主要富集在逆行内源性大麻素信号通路,该通路对细胞的代谢调控、动物胃肠功能的调节有着重要影响[27];其中miR-3957-5p调控靶基因CNR1的表达,CNR1通过编码大麻素受体蛋白1(CB1)来调节胃的消化酶释放,当CB1受体得到激活后,可延缓胃的排空,影响食物消化吸收效率[27]。因此,推测miR-3957-5p很可能通过调控CB1受体的表达进而参与消化酶的分泌、瘤胃的排空以及营养成分的消化吸收这些生物学过程。
为进一步了解miRNA与生长发育相关表型之间的关系,本试验运用了WGCNA,通过WGCNA鉴定出与各个表型相关的miRNA共表达模块,同一模块中的miRNA在功能上被认为是彼此关联的[28]。在构建的13个共表达模块中,确定了3个重要的共表达模块,蓝色模块中的miR-546等175个miRNA与呼伦贝尔羊外周血中Gly含量呈显著正相关。其中,在M8与M3阶段的比较中发现,M8阶段的Gly含量显著低于M3阶段,其原因可能是miR-630调控哺乳动物雷帕霉素靶蛋白(mTOR)信号通路中的溶质载体家族38成员9(SLC38A9)基因,使该基因表达下调。SLC38A9是哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)的“溶酶体氨基酸传感器”,其表达下调会直接抑制mTORC1激活[29],当mTORC1受到抑制时,其下游磷酸化核糖体蛋白S6激酶(S6K1)的磷酸化水平会随之下降;这一变化进而导致丝氨酸羟甲基转移酶(SHMT)活性降低,使丝氨酸(Ser)向Gly的转化效率大幅减弱[30],最终体现为M8阶段外周血中Gly含量显著低于M3阶段。
本研究发现,黑色模块与外周血中稳定不变的IgA含量呈显著正相关,通过将M8阶段与M5、M6阶段进行对比发现,miR-1321、miR-1380、miR-1540、miR-380、miR-624、miR-758以及miR-881这7个miRNA,其中涉及到的通路有细胞因子-细胞因子受体信号通路、补体和凝血级联信号通路、B细胞受体信号通路以及转化生长因子-β(TGF-β)信号通路。研究报道指出,细胞因子-细胞因子受体信号通路中的白细胞介素-32(IL-32)属于白细胞介素家族,其主要由自然杀伤细胞、单核细胞、上皮细胞系和T细胞表达[31],IL-32主要通过与一些其他分子的相互作用参与各种细胞内信号传导,IL-32在细胞内发挥作用时会与蛋白激酶C(PKC)和整合素相互作用,还会与黏着斑激酶1(FAK1)相互作用[32]。与PKC的相互作用会导致对表达IL-32的髓系细胞中白细胞介素-6(IL-6)的调节,同时还会与其他转录调节因子和多种蛋白质相互作用[33]。另外,据报道,α-1-B糖蛋白(A1BG)为血浆高丰度蛋白,参与体液渗透压维持、蛋白转运,A1BG上调可能通过优化血浆蛋白网络,减少IgA在循环中的降解(如抑制蛋白酶活性),或增强IgA与转运蛋白(如Fc受体样分子)的结合,间接提升外周血IgA的循环稳定性[34]。此外,补体和凝血级联信号通路中的凝血因子X(F10)的上调也影响着IgA的分泌,其通过凝血通路活化伴随肿瘤坏死因子(TNF-α)、IL-6等促炎因子释放,强化次级淋巴器官中B细胞的活化信号,从而引起外周血中IgA含量的升高[35-36]。研究表明,B细胞受体复合物亚基(CD79B)上调能直接增强B细胞受体(BCR)信号强度[37],当BCR识别抗原后,CD79B胞内ITAM基序磷酸化,招募脾脏酪氨酸激酶(SYK)、布鲁顿酪氨酸激酶(BTK)等激酶,启动磷脂酰肌醇3-激酶(PI3K)/蛋白激酶B(Akt)、核因子-κB(NF-κB)等通路,驱动B细胞增殖、存活以及向浆细胞分化,进而导致IgA的含量升高[38]。因此,外周血中IgA含量在M8阶段上升,这可能表明上述的7个miRNA在调控IgA的产生中发挥了重要作用,通过调控细胞因子-细胞因子受体信号通路等4条信号通路参与B细胞分化,直接或间接影响IgA的产生。
此外,本研究还发现棕色模块中的miRNA与外周血中Met和GH含量呈现负相关,在各生长阶段外周血中Met含量没有明显的差异,说明Met含量处于动态平衡状态。从KEGG通路中发现,Met含量主要受mTOR信号通路所调控。在M5与M6阶段,外周血中Met的含量发生了升高,通过对比M5、M6阶段与M3阶段的差异表达miRNA发现,miR-1418下调靶基因mTOR相互作用蛋白(DEPTOR)的表达。DEPTOR是mTOR复合体的内源性抑制蛋白,其表达降低会解除对mTORC1的抑制,导致mTORC1活性的增强。研究发现,mTORC1活性增强可能通过激活转录因子[如固醇调节元件结合蛋白(SREBP)]促进脂质合成,同时上调甲硫氨酸腺苷转移酶2A(MAT2A)表达,增加Met向S-腺苷甲硫氨酸(SAM)的转化,为维持SAM水平,肝脏可能通过增加甲硫氨酸的摄取或合成(如转甲基化循环),导致外周血中Met含量暂时性升高[39]。此外,在M8阶段,外周血中Met含量相较于M6阶段降低了,但总体含量相较于M3阶段是升高的。通过对比M8与M3阶段的差异表达miRNA发现,所有的靶基因均是下调的,且关键基因仍是miR-1418调控的DEPTOR,因此,推测M8阶段的外周血中Met总体含量要高于M3阶段的原因与上述DEPTOR的反馈调节机制是一致的。
与M3、M8阶段对比,M6阶段的外周血中GH含量显著高于M3、M8阶段。通过对比差异表达miRNA以及进行KEGG通路富集分析发现,miR-566调控GH的合成、分泌和作用。与M3、M8阶段对比,M6阶段的miR-566调控睫状神经营养因子受体(CNTFR)并导致了该基因的下调。研究表明,CNTFR信号减弱会导致信号转导及转录激活蛋白3(STAT3)磷酸化减少,从而降低其转录激活功能。STAT3通常通过抑制促炎因子(如IL-6)和调控代谢基因间接影响GH分泌,STAT3活性不足可能解除对GH释放激素(GHRH)的抑制,导致垂体前叶GH分泌增加[40]。此外,通过研究发现,CNTFR所在的JAK/STAT信号通路与PI3K/Akt和丝裂原活化蛋白激酶(MAPK)通路存在协同效应,CNTFR与GH受体(GHR)的JAK2-STAT5通路存在交叉对话,CNTFR下调可能通过解除对PI3K/Akt或MAPK通路的抑制,间接增强GH的信号转导,促进垂体分泌GH[40]

4 结论

不同生长阶段的呼伦贝尔羊瘤胃组织中miRNA的表达模式存在差异,差异表达miRNA主要参与FcγR介导的吞噬作用、Notch信号通路、细胞因子-细胞因子受体信号通路等信号通路的调控。miRNA部分表达模块与外周血中Gly和IgA含量呈显著正相关,与Met和GH含量呈显著负相关。瘤胃特定表达模块中的miRNA(如miR-1172、miR-370-3p、miR-1497和miR-566)通过影响血液中Gly、IgA、Met以及GH的分泌,间接参与呼伦贝尔羊的生长发育调控。
[1]
FAN H Y, ZHAO F P, ZHU C Y, et al. Complete mitochondrial genome sequences of Chinese indigenous sheep with different tail types and an analysis of phylogenetic evolution in domestic sheep[J]. Asian-Australasian Journal of Animal Sciences, 2016, 29(5):631-639.

[2]
CHEN C Y, YIN Y, LI H R, et al. Ruminant-specific genes identified using high-quality genome data and their roles in rumen evolution[J]. Science Bulletin, 2022, 67(8):825-835.

[3]
CHEN L, QIU Q, JIANG Y, et al. Large-scale ruminant genome sequencing provides insights into their evolution and distinct traits[J]. Science, 2019, 364(6446):eaav6202.

[4]
PAN X Y, CAI Y D, LI Z J, et al. Modes of genetic adaptations underlying functional innovations in the rumen[J]. Science China:Life Sciences, 2021, 64(1):1-21.

[5]
JAMI E, WHITE B A, MIZRAHI I. Potential role of the bovine rumen microbiome in modulating milk composition and feed efficiency[J]. PLoS One, 2014, 9(1):e85423.

[6]
MALMUTHUGE N, LIANG G A, GUAN L L. Regulation of rumen development in neonatal ruminants through microbial metagenomes and host transcriptomes[J]. Genome Biology, 2019, 20(1):172.

[7]
LI Y K, CARRILLO J A, DING Y, et al. DNA methylation,microRNA expression profiles and their relationships with transcriptome in grass-fed and grain-fed Angus cattle rumen tissue[J]. PLoS One, 2019, 14(10):e0214559.

[8]
PACÍFICO C, RICCI S, SAJOVITZ F, et al. Bovine rumen epithelial miRNA-mRNA dynamics reveals post-transcriptional regulation of gene expression upon transition to high-grain feeding and phytogenic supplementation[J]. Genomics, 2022, 114(3):110333.

[9]
ZHONG T, HU J T, XIAO P, et al. Identification and characterization of microRNAs in the goat (Capra hircus) rumen during embryonic development[J]. Frontiers in Genetics, 2017,8:163.

[10]
SONG C C, YANG J M, JIANG R, et al. miR-148a-3p regulates proliferation and apoptosis of bovine muscle cells by targeting KLF6[J]. Journal of Cellular Physiology, 2019, 234(9):15742-15750.

[11]
SOTCHEFF S, ZHOU Y Y, YEUNG J, et al. ViReMa:a virus recombination mapper of next-generation sequencing data characterizes diverse recombinant viral nucleic acids[J]. GigaScience, 2023,12:giad009.

[12]
CAI Z N, FU P, QIU Y, et al. vsRNAfinder:a novel method for identifying high-confidence viral small RNAs from small RNA-seq data[J]. Briefings in Bioinformatics, 2022, 23(6):bbac496.

[13]
ZHAO S R, YE Z, STANTON R. Misuse of RPKM or TPM normalization when comparing across samples and sequencing protocols[J]. RNA, 2020, 26(8):903-909.

[14]
LI J, QIAO H, WU F, et al. A novel hypoxia-and lactate metabolism-related signature to predict prognosis and immunotherapy responses for breast cancer by integrating machine learning and bioinformatic analyses[J]. Frontiers in Immunology, 2022,13:998140.

[15]
KUIJJER M L, FAGNY M, MARIN A, et al. PUMA:PANDA using microRNA associations[J]. Bioinformatics, 2020, 36(18):4765-4773.

[16]
KANEHISA M, GOTO S, KAWASHIMA S C, et al. The KEGG resource for deciphering the genome[J]. Nucleic Acids Research, 2004, 32( Database issue):D277-D280.

[17]
KONG W H, CHENG Y S, LIANG H, et al. Prognostic value of miR-17-5p in cancers:a Meta-analysis[J]. OncoTargets and Therapy, 2018,11:3541-3549.

[18]
MENDELL J T. MiRiad roles for the miR-17-92 cluster in development and disease[J]. Cell, 2008, 133(2):217-222.

[19]
FUZIWARA C S, KIMURA E T. Insights into regulation of the miR-17-92 cluster of miRNAs in cancer[J]. Frontiers in Medicine, 2015,2:64.

[20]
SONG J, LIU Y J, WANG T Y, et al. miR-17-5p promotes cellular proliferation and invasiveness by targeting RUNX3 in gastric cancer[J]. Biomedicine & Pharmacotherapy, 2020,128:110246.

[21]
ZHANG Y J, XU W X, NI P, et al. miR-99a and miR-491 regulate cisplatin resistance in human gastric cancer cells by targeting CAPNS1[J]. International Journal of Biological Sciences, 2016, 12(12):1437-1447.

[22]
欧海斌, 隋铭, 邵晶, 等. 非传统型肌球蛋白Myo10对结肠癌细胞SW620生长的影响及其机制[J]. 武汉大学学报(医学版), 2019, 40(4):552-557.

OU H B, SUI M, SHAO J, et al. Inhibition of unconventional myosin protein 10 on the growth of human colon cell line SW620 in vitro[J]. Medical Journal of Wuhan University, 2019, 40(4):552-557. (in Chinese)

[23]
MAYCA POZO F, GENG X R, TAMAGNO I, et al. MYO10 drives genomic instability and inflammation in cancer[J]. Science Advances, 2021, 7(38):eabg6908.

[24]
范静, 王丰梅, 郑小影, 等. ASAP1与FAK在肿瘤中的研究进展[J]. 临床医学进展, 2023, 13(4):6450-6456.

FAN J, WANG F M, ZHENG X Y, et al. Research progress of ASAP1 and FAK in cancer[J]. Advances in Clinical Medicine, 2023, 13(4):6450-6456. (in Chinese)

[25]
李月元. ASAP3蛋白与胃液酸度的关系及其临床意义[D]. 博士学位论文. 上海: 上海交通大学, 2016.

LI Y Y. The clinical significance of ASAP3 protein and association with human gastric acidity[D]. Ph.D.Thesis. Shanghai: Shanghai Jiao Tong University, 2016. (in Chinese)

[26]
ZHU K, CHATRIN C, SUSKIEWICZ M J, et al. Ubiquitylation of nucleic acids by deltex ubiquitin E3 ligase DTX3L[J]. EMBO Reports, 2024, 25(10):4172-4189.

[27]
BUSQUETS-GARCÍA A, BOLAÑOS J P, MARSICANO G. Metabolic messengers:endocannabinoids[J]. Nature Metabolism, 2022, 4(7):848-855.

[28]
WAN Q, TANG J, HAN Y, et al. Co-expression modules construction by WGCNA and identify potential prognostic markers of uveal melanoma[J]. Experimental Eye Research, 2018,166:13-20.

[29]
WANG S Y, TSUN Z Y, WOLFSON R L, et al. Metabolism. Lysosomal amino acid transporter SLC38A9 signals arginine sufficiency to mTORC1[J]. Science, 2015, 347(6218):188-194.

[30]
JIA J Y, ABUDU Y P, CLAUDE-TAUPIN A, et al. Galectins control MTOR and AMPK in response to lysosomal damage to induce autophagy[J]. Autophagy, 2019, 15(1):169-171.

[31]
SHODA H, FUJIO K, YAMAGUCHI Y M, et al. Interactions between IL-32 and tumor necrosis factor alpha contribute to the exacerbation of immune-inflammatory diseases[J]. Arthritis Research & Therapy, 2006, 8(6):R166.

[32]
HEINHUIS B, KOENDERS M I, VAN DEN BERG W B, et al. Interleukin 32 (IL-32) contains a typical α-helix bundle structure that resembles focal adhesion targeting region of focal adhesion kinase-1[J]. Journal of Biological Chemistry, 2012, 287(8):5733-5743.

[33]
KANG J W, PARK Y S, KIM M S, et al. Interleukin (IL)-32β-mediated CCAAT/enhancer-binding protein α (C/EBPα) phosphorylation by protein kinase Cδ (PKCδ) abrogates the inhibitory effect of C/EBPα on IL-10 production[J]. Journal of Biological Chemistry, 2013, 288(33):23650-23658.

[34]
FANG X, LU M, XIA Z K, et al. Use of liquid chromatography-tandem mass spectrometry to perform urinary proteomic analysis of children with IgA nephropathy and Henoch-Schönlein purpura nephritis[J]. Journal of Proteomics, 2021,230:103979.

[35]
ICHINOSE A, OSAKI T, SOURI M. Autoimmune coagulation factor X deficiency as a rare acquired hemorrhagic disorder:a literature review[J]. Thrombosis and Haemostasis, 2022, 122(3):320-328.

[36]
GRANDALIANO G, PONTRELLI P, CERULLO G, et al. Protease-activated receptor-2 expression in IgA nephropathy:a potential role in the pathogenesis of interstitial fibrosis[J]. Journal of the American Society of Nephrology, 2003, 14(8):2072-2083.

[37]
TORRES R M, FLASWINKEL H, RETH M, et al. Aberrant B cell development and immune response in mice with a compromised BCR complex[J]. Science, 1996, 272(5269):1804-1808.

[38]
PINTO D, MONTANI E, BOLLI M, et al. A functional BCR in human IgA and IgM plasma cells[J]. Blood, 2013, 121(20):4110-4114.

[39]
XIAO J, WANG S, CHEN L L, et al. 25-hydroxycholesterol regulates lysosome AMP kinase activation and metabolic reprogramming to educate immunosuppressive macrophages[J]. Immunity, 2024, 57(5):1087-1104,e7.

[40]
PHILIPS R L, WANG Y X, CHEON H, et al. The JAK-STAT pathway at 30:much learned,much more to do[J]. Cell, 2022, 185(21):3857-3876.

文章导航

/