综述

味觉受体对动物机体脂代谢的影响及其研究进展

  • 孙梦 ,
  • 江青艳 ,
  • 王丽娜 *
展开
  • 华南农业大学动物科学学院, 广东省动物营养调控重点实验室, 广州 510640
* 王丽娜,副教授,硕士生导师,E-mail:

孙 梦(2002—),女,河南驻马店人,硕士研究生,从事动物采食调控研究。E-mail:

收稿日期: 2025-04-23

  网络出版日期: 2025-12-13

基金资助

国家重点研发计划(2022YFD1300401)

Research Progress on Influences of Taste Receptors on Lipid Metabolism in Animals

  • SUN Meng ,
  • JIANG Qingyan ,
  • WANG Li’na *
Expand
  • Guangdong Provincial Key Laboratory of Animal Nutrition Control, College of Animal Science, South China Agricultural University, Guangzhou 510640, China
* associate professor, E-mail:

Received date: 2025-04-23

  Online published: 2025-12-13

摘要

味觉是动物参与食物化学特性感知的重要系统,通过激活不同类型味觉受体感知到甜、苦、鲜、咸、酸和脂等几种基本味觉。已有研究证明味觉受体[如味觉受体1型(T1R)、味觉受体2型(T2R)、脂肪酸转位酶(CD36)及G蛋白偶联受体120(GPR120)等]不仅存在于味蕾细胞,还在肠道、胰腺、脂肪等组织细胞中广泛表达。而近年来的研究发现,作为化学感应系统的关键组分,味觉受体通过感知营养物质还参与脂代谢的动态平衡调控。脂代谢是动物维持能量稳态的核心环节,其失衡不仅影响胴体品质和繁殖性能,还与肥胖、糖尿病等代谢疾病密切相关。因此,本文系统综述了甜味、鲜味、苦味及脂味受体的分布及其对动物机体脂代谢的调控机制,为解析脂代谢网络提供新视角,并为改善畜禽生产性能及代谢疾病干预措施提供参考。

关键词: 甜味; 鲜味; 苦味; 脂味; 脂代谢

本文引用格式

孙梦 , 江青艳 , 王丽娜 . 味觉受体对动物机体脂代谢的影响及其研究进展[J]. 动物营养学报, 2025 , 37(12) : 8167 -8175 . DOI: 10.12418/CJAN2025.666

Abstract

Taste is an important system involved in the sense of chemical properties of food in animals, and several basic gustation such as sweet, bitter, fresh, salty, sour and fatty are formed through the activation of different types of taste receptors. It has been demonstrated that taste receptors [e.g., taste receptor type 1 (T1R), taste receptor type 2 (T2R), fatty acid translocase (CD36) and G protein-coupled receptor 120 (GPR120), etc.] are not only present in the cells of taste buds but are also widely expressed in the cells of intestine, pancreas, adipose and other tissues. In recent years, it has been found that as key components of the chemosensory system, taste receptors are also involved in the dynamic homeostasis regulation of lipid metabolism through the sense of nutrients. Lipid metabolism is the core link to maintain energy homeostasis in animals, and its imbalance not only affects carcass quality and reproductive performance, but also is closely related to metabolic diseases such as obesity and diabetes. Therefore, this paper systematically reviewed the distribution of sweet, fresh, bitter and lipid gustatory receptors and their regulatory mechanisms on lipid metabolism in animals, which provided a new perspective for analyzing lipid metabolism network and laid a theoretical foundation for improving the production performance of livestock and poultry and intervention strategies for metabolic diseases.

味觉是动物参与食物化学特性感知的重要系统。早在20世纪初,便不断有研究证实味蕾存在于口腔味觉细胞中并能够检测味觉刺激,然后通过传入味觉神经支配将这些信息传递给大脑[1]。已知哺乳动物可以感知到甜、苦、鲜、咸、酸和脂等几种基本味觉,主要依赖于味觉受体1型(taste receptor type 1,T1R)、味觉受体2型(taste receptor type 2,T2R)、味觉受体3型(taste receptor type 3,T3R)等味觉受体发挥作用。基因组学研究表明,T1R、T2R和T3R家族及候选脂肪受体[脂肪酸转位酶(fatty acid translocase,CD36)、G蛋白偶联受体120(G protein-coupled receptor 120,GPR120)、G蛋白偶联受体40(G protein-coupled receptor 40,GPR40)]除在舌味蕾细胞发挥作用外,在肠道、胰腺和脂肪组织等外周器官也呈现广泛异位表达[2]。因此,除了作为食物中化学物质的感应器,味觉受体很可能参与了动物机体的其他生理调节功能。
脂代谢是动物机体维持能量稳态的核心环节,其动态平衡失衡会影响畜禽胴体品质、肌肉脂肪沉积和代谢疾病的发生。脂代谢异常会导致肉质下降(如肌内脂肪比例失调)、繁殖障碍(如母猪泌乳期能量负平衡)及代谢性疾病(如禽类脂肪肝)等问题。近年来,随着对脂代谢网络研究的深入,味觉受体这一保守的化学感应系统,在脂代谢调控中的作用逐渐受到关注。味觉不仅是食物选择的关键驱动因素,更通过复杂的神经内分泌机制与脂代谢通路形成交互作用,从而影响脂肪沉积模式、能量分配及肉品品质,为脂代谢研究提供了全新视角。已有研究表明,多种味觉受体参与机体的脂代谢调控,而味蕾细胞中脂肪受体可直接识别长链脂肪酸(long-chain fatty acids,LCFAs)和短链脂肪酸(short-chain fatty acids,SCFAs)等配体,调控肠源性激素分泌,进而影响脂质吸收、能量分配甚至炎症反应[3]。味觉受体作为连接外界营养信号与体内代谢应答的“分子传感器”,针对其研究不仅能够深化对脂代谢调控机制的理解,还为改善畜禽生产性能及人类代谢健康提供理论依据,因此,本文从几种味觉受体的分布及其对脂代谢的调控机制进行综述。

1 甜味受体与脂代谢

甜味受体为异源二聚体,由T1R2和T1R3亚基组成,属于C类G蛋白偶联受体(GPCR)家族。研究表明,该配体结合域位于T1R2亚基的捕蝇草结构域模块,可识别甜味物质,如葡萄糖、蔗糖及人工甜味剂等[4-5]。除舌部菌状乳头味蕾外,T1R2/T1R3在小肠内分泌细胞、胰岛β细胞及下丘脑弓状核中均有表达[6-7]。有研究显示,空腹18 h后再进食4 h条件下的大鼠表现出血糖水平升高和胰腺中T1R3的蛋白表达降低,而味蕾中T1R2和T1R3的蛋白表达是增加的[8]。也有研究表明,T1R2消融小鼠可减轻高脂低糖饮食诱导的脂肪沉积增加,葡萄糖刺激引起的胰岛素分泌能力下降,血清中甘油三酯水平升高[9]。由此可见,甜味受体在动物的糖和脂代谢调控中扮演着重要的角色。
据报道,甜味受体T1R3基因敲除小鼠在高脂饮食下仍能维持正常体重,提示甜味信号在脂质积累中起到关键作用。Feng等[10]研究发现,甜味受体的激活可通过AMP激活蛋白激酶(adenosine monophosphate-activated protein kinase,AMPK)/哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路,进而参与脂肪生成和脂质代谢[11],提示甜味受体可能是代谢性疾病的重要调控靶点。当味蕾中的甜味受体被激活时,甜味信号不仅向中枢神经传递,还可触发钙进入肠内分泌细胞,导致胆囊收缩素(cholecystokinin,CCK)释放增加,从而增加迷走神经传入活性,通过迷走神经反射促进胰岛素分泌[12]。有研究表明,雄性小鼠给予蔗糖溶液16周后,观察到小鼠脂肪量显著增加,食用蔗糖激活甜味受体T1R2/T1R3后还导致小鼠低密度脂蛋白(low-density lipoprotein,LDL)、胰岛素、肝脏脂质沉积水平升高[13]。进一步研究显示,果糖通过甜味受体T1R2/T1R3信号通路激活肝脏中固醇调节元件结合蛋白-1c(sterol regulatory element binding protein-1c,SREBP-1c)和碳水化合物反应元件结合蛋白(carbohydrate responsive element binding protein,ChREBP)等转录因子,进而促进脂肪酸合成酶(fatty acid synthase,FAS)和乙酰辅酶A羧化酶(acetyl-CoA carboxylase,ACC)的表达,最终导致肝脏脂肪过度积累[14]。这些结果表明,甜味感知通过迷走神经信号增强对高糖食物的偏好,但甜味受体过度激活可能通过SREBP-1c/ChREBP通路导致肝脏脂肪沉积,长期高糖饮食可导致甜味受体脱敏,会进一步加剧糖和脂代谢紊乱,同时甜味信号触发CCK释放,抑制脂解并促进脂肪细胞分化,导致肥胖相关表型,未来研究可进一步探索受体脱敏与脂代谢失衡的因果关系。
在肠道中,空肠L细胞T1R2/T1R3受体激活后,通过Gα-味导蛋白(Gα-gustducin)/瞬时受体电位通道M5(transient receptor potential channel M5,TRPM5)信号通路驱动胰高血糖素样肽-1(glucagon-like peptide-1,GLP-1)分泌[15],且这种GLP-1的分泌受到甜味受体抑制剂的抑制[16]。Xie等[17]研究发现,肠道中的T1R2/T1R3也可能通过激活环磷酸腺苷(cyclic adenosine monophosphate,cAMP)信号通路来刺激肠内分泌细胞分泌GLP-1以调节饱腹感。此外,有研究表明,甜味受体T1R2/T1R3在肠道中的激活可促进钠-葡萄糖协同转运蛋白-1(sodium-glucose cotransporter-1,SGLT-1)和葡萄糖转运蛋白-2(glucose transporter-2,GLUT-2)等葡萄糖转运体的表达,加速肠道对糖的吸收[18],然而,过度激活可能引发脂质合成相关基因FASSREBP-1c的上调,导致肝脏脂肪变性[19]。由此可见,肠道甜味受体通过多通路协调调控GLP-1分泌和糖吸收。值得注意的是,畜禽生产中高碳水化合物饲粮可能过度激活该通路,导致SGLT-1表达代偿性下降,这提示在育肥期需动态调整饲粮糖与脂的比例以维持受体敏感性。

2 鲜味受体与脂代谢

T1R1和T1R3异源二聚体特异性识别L-谷氨酸、肌苷酸等鲜味物质,其感知与蛋白质营养信号关联,促进动物对高蛋白质食物的摄取。T1R1在舌喙细胞中表达更多,其对谷氨酸单钠的敏感性比舌尾细胞高近100倍[20],该受体除在舌部味蕾细胞中表达外,在胃底腺主细胞、十二指肠上皮细胞及脂肪组织中均有表达[21]。鲜味受体的广泛表达提示它也可能参与了动物机体的代谢调节。
近年研究揭示了鲜味受体(T1R1/T1R3)在脂代谢调控中的复杂作用。有研究发现,T1R1通过感知氨基酸含量,影响脂肪从头合成,T1R1消融的小鼠氨基酸含量、脂肪量、脂肪细胞大小、肝脏甘油三酯水平均降低,其通过氧甾醇7α羟化酶和胰岛素样生长因子结合蛋白2促进脂质分解代谢,因此T1R1可以通过减少从头脂质合成和改善脂质分解代谢来减少脂质积累[22]。同样,T1R3基因缺失可降低食用高脂肪饮食小鼠的体重和肝脏甘油三酯的积累,值得注意的是,肝脏中哺乳动物雷帕霉素靶蛋白复合物1(mammalian target rapamycin complex 1,mTORC1)的活性也降低,而对mTORC1的抑制可能是肝脏甘油三酯积累降低的原因[23]。此外,胰腺β细胞中T1R1/T1R3可通过mTORC1通路感知氨基酸,干扰该受体会改变mTORC1的定位,上调氨基酸转运蛋白,下调通路抑制剂表达,进而调控自噬过程,影响蛋白质消耗[24]。以上研究结果提示,鲜味受体缺失可能通过蛋白质代谢失衡间接破坏脂质稳态。进一步的机制研究表明,氨基酸可通过鲜味受体介导从而激活mTORC1通路[25],然而过度激活会上调脂肪生成关键基因SREBP-1c的表达,以增强脂质合成和导致肥胖小鼠肝脏脂肪变性[26]。临床证据进一步支持这一现象,肥胖患者空肠组织中T1R3表达水平显著低于健康对照组,且与血清游离脂肪酸浓度呈负相关[27]。综上可知,鲜味受体通过mTORC1通路的调控可能为改善肌内脂肪沉积提供新靶点,尤其在畜牧生产中,优化饲粮氨基酸组成或许可间接影响脂代谢来调控肉品风味。
肠道中的鲜味受体T1R1/T1R3通过感知饲粮氨基酸参与全身能量调控。研究表明,鲜味受体T1R1/T1R3检测肠道中的氨基酸并诱导CCK的分泌[28],而谷氨酸以磷脂酶C(phospholipase C,PLC)/TRPM5信号通路依赖性方式激活T1R1/T1R3进而刺激CCK分泌,起到食物摄入减少而推动减肥的作用[29]。以上结果提示T1R1/T1R3通过神经内分泌信号(CCK/GLP-1)将营养物质感知与全身脂代谢调控耦联。值得注意的是,鲜味受体还通过肠道菌群互作影响脂代谢。研究发现,膳食谷氨酸通过T1R1/T1R3依赖的方式增加肠道中双歧杆菌的丰度,其代谢产物SCFAs可抑制肝脏胆固醇合成酶的表达,从而改善高脂饮食诱导的肥胖大鼠代谢紊乱[30];Shackley等[31]研究发现,SCFAs可通过G蛋白αi/o亚基(G protein subunit αi/o,Gαi/o)介导激活肠道中2种鲜味受体亚基的基因表达,进而影响血糖调节及食欲信号。肠道L细胞中的鲜味受体可促进CCK和GLP-1分泌,间接抑制食欲并增强脂解作用。例如,鲜味受体激动剂肌苷酸被证实可降低高脂饮食小鼠的体脂率,提示其在肥胖干预中的潜力[32]。由此可见,肠道中鲜味受体的作用靶点包含内分泌细胞、上皮细胞甚至肠道微生物。

3 苦味受体与脂代谢

苦味是一种防御性味觉,由T2R家族介导,可特异性识别奎宁、咖啡因及番木鳖碱等苦味物质,其感知与毒性防御机制密切相关,通过触发厌恶反射阻止动物摄入潜在有毒物质。苦味受体属于G蛋白偶联受体家族,该受体除分布于舌部味蕾细胞外,在胃肠道嗜铬细胞、结肠隐窝上皮细胞及呼吸道杯状细胞中也广泛存在,且其在结肠黏膜中的表达量显著高于其他外周组织[33],提示其可能参与肠道局部防御。人类基因组编码25种T2R(如T2R38、T2R43),而小鼠基因组编码36种T2R[34]。已有研究证实,T2R通过激活味导蛋白(gustducin)/磷脂酶Cβ2(phospholipase C beta 2,PLCβ2)/三磷酸肌醇(inositol trisphosphate,IP3)信号通路引发细胞内Ca2+震荡,导致Na+通过TRPM5通道内流,使细胞去极化,并导致神经递质ATP通过间隙连接半通道或钙稳态调节蛋白1离子通道释放,最后,释放的ATP激活味蕾神经上的嘌呤能受体,进而传递到中枢神经系统的味觉中枢,以启动对苦味的感知[35]。但是,近年来的研究发现,苦味受体的功能不仅仅局限于摄食行为中的防御性味觉功能,其在动物机体的能量平衡调控中也发挥着重要的作用。
苦味受体可通过抑制食欲和调节胆汁酸代谢影响脂质稳态。有研究表明,苦味化合物刺激T2R是通过激活迷走神经信号分泌厌食激素CCK,从而增强饱腹感,减少能量摄入[36],也有研究显示,舌部苦味受体激活后,通过迷走神经信号传入大脑中的孤束核神经元,之后通过γ-氨基丁酸(γ-aminobutyric acid,GABA)能神经元抑制摄食中枢表达,进一步延缓胃排空,从而抑制食欲[37]。此外,饲喂富含多酚的苦味提取物可显著降低高脂诱导肥胖小鼠的肝脏脂质含量,且可能是通过增强成纤维细胞生长因子21和AMPK信号传导介导的[38]。特别值得注意的是,肝脏中的苦味受体T2R14可感知胆汁酸浓度变化,并通过法尼酯X受体(farnesoid X receptor,FXR)信号通路调节胆汁酸的肝肠循环,且T2R14缺陷小鼠易出现高胆固醇血症和肝脏脂肪变性,使用甘氨酸-β鼠尾草酸可逆转高脂饮食引起的肥胖[39]。味蕾中的苦味受体能够特异性识别胆汁酸,Bensalem等[40]研究表明,武田G蛋白偶联受体5(Takeda G protein-coupled receptor 5,TGR5)在小鼠和人类的味蕾细胞中均有表达,这一发现揭示了胆汁酸可能在味觉感知影响脂质稳态中发挥重要作用。
苦味化合物(黄连素)能够与小鼠小肠内分泌细胞(STC-1细胞)上的苦味受体结合,促进GLP-1分泌,进而抑制脂肪分解,减少脂肪酸的释放,从而降低脂肪组织的分解代谢,有助于维持脂肪组织的稳定[41]。大鼠肠道苦味受体的激活可促进GLP-1和CCK分泌并抑制胃排空,减少食物摄入[42],并且还可降低成脂基因的表达,进而抑制前脂肪细胞分化[43],从而改善肥胖大鼠的代谢指标。T2R信号传导的内分泌机制为T2R激活释放后通过血液循环的激素在组织或细胞中起作用。苦味受体(如TAS2R1和TAS2R38)通过激活肠道L细胞分泌GLP-1,该肽通过细胞外液扩散进入循环,增强胰岛素敏感性并抑制脂肪合成酶活性,从而改善脂代谢紊乱,减少肝脏脂质沉积和肥胖相关表型[44]。苦味受体主要通过激活肠道L细胞分泌GLP-1和CCK,不仅抑制食欲和胃排空,还能下调成脂基因表达,从而减少脂肪分解和肝脏脂质沉积,改善代谢紊乱。这一机制提示,靶向调控苦味受体可能成为优化动物能量代谢、减少脂肪过度沉积的新策略,但需进一步研究其在畜禽中的特异性响应及长期效应。

4 脂味受体与脂代谢

脂味是一种新兴的基本味觉,主要由长链脂肪酸触发,依赖CD36和GPR120,负责感知LCFAs和胆汁酸,直接参与脂质吸收与代谢调控。除了舌菌状乳头味蕾细胞以外,CD36还在脂肪细胞、肝脏细胞中表达,且在空肠刷状缘的表达量是结肠的6倍[45]。GPR120[又称为游离脂肪酸受体4(free fatty acid receptor 4,FFAR4)]广泛分布于回肠L细胞、巨噬细胞及成熟脂肪细胞,对ω-3多不饱和脂肪酸(如二十二碳六烯酸)具有高亲和力[46]。有研究表明,肥胖患者的口腔和胃肠道中的膳食脂肪酸感减弱,且高脂饮食会显著降低瘦者对油酸的敏感性,而肥胖患者不会[47],这提示脂味受体与肥胖有着密切的联系。
脂味受体感知长链脂肪酸与能量摄入调控相关。临床研究表明,CD36基因多态性与肥胖风险显著相关[48],给予CD36基因敲除小鼠高脂饮食,其肠道对长链脂肪酸的吸收能力显著降低,肝脏甘油三酯合成减少[49],且CD36缺陷小鼠在高脂饮食下易出现脂肪肝和胰岛素抵抗[50],以上提示CD36介导的脂质信号在脂质堆积中具有关键作用。此外,CD36还通过调控脂肪酸氧化相关基因(如过氧化物酶体增殖物激活受体γ)的表达促进脂肪分解代谢,而反刍动物瘤胃微生物发酵产生的SCFAs可能通过肠道味觉受体(如游离脂肪酸受体2/3)影响宿主的脂代谢[51],但其具体机制尚未明晰。进一步的机制研究表明,CD36通过激活过氧化物酶体增殖物激活受体γ信号通路促进脂肪细胞分化和脂质储存,这一过程在肥胖模型中显著增强[52];也有研究表明,肠道中的GPR120(FFAR4)被长链脂肪酸激活后,可通过下游磷酸化细胞外调节激酶刺激前脂肪细胞的成脂分化,进而引起肥胖[53]。动物试验还发现,GPR120缺失小鼠在高脂饮食下出现严重的脂肪组织炎症和胰岛素抵抗[54],表明脂味受体通过多途径协调脂代谢稳态。
脂味受体不仅调控局部脂代谢,还通过神经内分泌系统影响全身能量平衡。例如,肠道中的CD36被激活后,可刺激CCK分泌,通过迷走神经信号增强饱腹感并减少摄食行为[46]。然而,长期高脂饮食会导致CD36基因缺陷小鼠肝脏脂肪变性,加剧脂质在肝脏和脂肪组织的异位沉积[49]。临床研究证实,GPR120功能突变人群更易发生肥胖与糖、脂代谢紊乱[55],其机制可能与脂肪组织中炎症因子水平升高及脂解功能障碍相关。此外,给予GPR120敲除小鼠单次施用长链甘油三酯,表现出GLP分泌和CCK作用减少,在长链甘油三酯饮食下,胰岛素抵抗和肝脏脂肪变性明显改善,但过度激活可能因脂质合成基因(如ACC)上调而诱发肝脏脂肪变性和纤维化[56]。综上可知,脂味受体通过整合外周与中枢信号共同调控脂代谢,其功能失调是肥胖、糖尿病等代谢性疾病的重要诱因,靶向调控这些受体或为治疗提供新策略。

5 小结

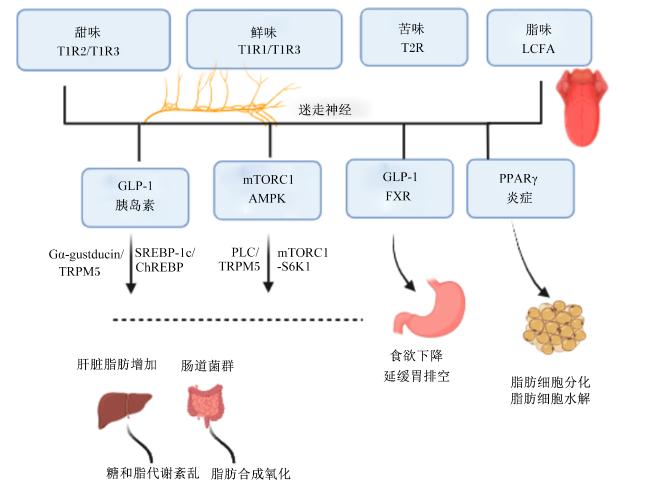
综上所述,味觉受体通过整合外界营养信号与体内代谢应答,在脂代谢调控中发挥多维度作用(图1)。甜味受体激活可增强动物对高糖饲粮的偏好,从而增加采食量,但过度激活可能加剧糖和脂代谢紊乱;鲜味受体通过调控氨基酸代谢和肠道菌群互作改善脂质沉积;苦味受体通过抑制食欲和调节胆汁酸代谢过程增强脂解作用调节能量平衡;脂味受体则直接介导脂肪酸吸收与氧化平衡,其功能失调与肥胖、脂肪肝等疾病密切相关。
图1 不同味觉受体对脂代谢的影响

T1R2:味觉受体1型成员2 taste receptor type 1 member 2;T1R3:味觉受体1型成员3 taste receptor type 1 member 3;T2R:味觉受体2型taste receptor type 2;Gα-gustducin:Gα-味导蛋白;TRPM5:瞬时受体电位通道M5 Gα-gustducin/transient receptor potential channel M5;SREBP-1c:固醇调节元件结合蛋白-1c sterol regulatory element binding protein-1c;ChREBP:碳水化合物反应元件结合蛋白 carbohydrate responsive element binding protein;PLC:磷脂酶C phospholipase C;S6K1:核糖体蛋白S6激酶1 ribosomal S6 kinase 1;LCFA:长链脂肪酸 long-chain fatty acids;GLP-1:胰高血糖素样肽-1 glucagon-like peptide-1;mTORC1:哺乳动物雷帕霉素靶蛋白复合物1 mammalian target rapamycin complex 1;AMPK:AMP激活蛋白激酶 adenosine monophosphate-activated protein kinase;FXR:法尼醇X受体 farnesoid X receptor;PPARγ:过氧化物酶体增殖物激活受体γ peroxisome proliferator-activated receptor γ。

Fig.1 Effects of different taste receptors on lipid metabolism

然而,目前研究仍存在局限性:尽管甜味、鲜味、苦味和脂味受体的功能已有一定研究,但脂代谢是一个复杂的网络,受多种因素调控,现有研究大多聚焦于单一受体或单一代谢途径,不同受体之间的协同或拮抗作用尚未明确;甜味受体和脂味受体在肠道中的交互作用可能共同影响脂质的吸收与脂代谢,其相关机制仍需深入解析;鲜味受体与脂味受体在高脂饮食中会出现拮抗作用,但二者如何共同影响脂代谢平衡尚未阐明。
在畜牧生产中,味觉受体的研究可为畜禽饲料配方设计及肉品质改善提供新思路。通过调控甜味受体活性可能改善动物对高糖饲粮的利用效率,靶向脂味受体可优化脂肪沉积模式,提高肉质品质,而味觉受体与肥胖、糖尿病等代谢疾病的密切关联为其干预提供了潜在靶点。开发有效的苦味受体激动剂以改善胰岛素敏感性,抑制甜味受体过度激活可能可缓解高脂饮食诱导的肝脏脂肪变性。这些发现为畜禽胴体品质提高和代谢疾病的防治提供了理论依据。未来需进一步研究以在实际生产中带来更积极的效益。
[1]
TORREY T W. The relation of taste-buds to their nerve-fibres[J]. Proceedings of the National Academy of Sciences of the United States of America, 1931, 17(11):591-594.

PMID

[2]
KOH G Y, ROWLING M J, PRITCHARD S K. Possible role of type 1 and type 2 taste receptors on obesity-induced inflammation[J]. Nutrition Reviews, 2022, 80(8):1919-1926.

DOI PMID

[3]
JANSSEN S, DEPOORTERE I. Nutrient sensing in the gut:new roads to therapeutics?[J]. Trends in Endocrinology and Metabolism, 2013, 24(2):92-100.

DOI

[4]
NELSON G, HOON M A, CHANDRASHEKAR J, et al. Mammalian sweet taste receptors[J]. Cell, 2001, 106(3):381-390.

DOI PMID

[5]
JEONG J Y, CHA Y K, AHN S R, et al. Ultrasensitive bioelectronic tongue based on the Venus flytrap domain of a human sweet taste receptor[J]. ACS Applied Materials & Interfaces, 2022, 14(2):2478-2487.

[6]
KOHNO D, KOIKE M, NINOMIYA Y, et al. Sweet taste receptor serves to activate glucose-and leptin-responsive neurons in the hypothalamic arcuate nucleus and participates in glucose responsiveness[J]. Frontiers in Neuroscience, 2016, 10:502.

[7]
KOJIMA I, NAKAGAWA Y. The role of the sweet taste receptor in enteroendocrine cells and pancreatic β-cells[J]. Diabetes & Metabolism Journal, 2011, 35(5):451-457.

[8]
IWAMURA M, HONDA R, NAGASAWA K. Elevation of the blood glucose level is involved in an increase in expression of sweet taste receptors in taste buds of rat circumvallate papillae[J]. Nutrients, 2020, 12(4):990.

DOI

[9]
SMITH K R, HUSSAIN T, KARIMIAN AZARI E, et al. Disruption of the sugar-sensing receptor T1R2 attenuates metabolic derangements associated with diet-induced obesity[J]. American Journal of Physiology:Endocrinology and Metabolism, 2016, 310(8):E688-E698.

[10]
FENG S B, WANG J J, PENG Q, et al. Schisandra sphenanthera extract modulates sweet taste receptor pathway,IRS/PI3K,AMPK/mTOR pathway and endogenous metabolites against T2DM[J]. Phytomedicine:International Journal of Phytotherapy and Phytopharmacology, 2025, 136:156348.

DOI

[11]
LAPLANTE M, SABATINI D M. An emerging role of mTOR in lipid biosynthesis[J]. Current Biology, 2009, 19(22):R1046-R1052.

[12]
GONG H S, PAN J P, GUO F, et al. Sodium oligomannate activates the enteroendocrine-vagal afferent pathways in APP/PS1 mice[J]. Acta Pharmacologica Sinica, 2024, 45(9):1821-1831.

DOI

[13]
WU X Y, CUI L, WANG H Q, et al. Impact of dietary sucralose and sucrose-sweetened water intake on lipid and glucose metabolism in male mice[J]. European Journal of Nutrition, 2023, 62(1):199-211.

DOI

[14]
RAGHOW R, DONG Q M, ELAM M B. Phosphorylation dependent proteostasis of sterol regulatory element binding proteins[J]. Biochimica et Biophysica Acta:Molecular and Cell Biology of Lipids, 2019, 1864(8):1145-1156.

[15]
WANG F, SONG X D, ZHOU L, et al. The downregulation of sweet taste receptor signaling in enteroendocrine L-cells mediates 3-deoxyglucosone-induced attenuation of high glucose-stimulated GLP-1 secretion[J]. Archives of Physiology and Biochemistry, 2018, 124(5):430-435.

DOI PMID

[16]
JANG H J, KOKRASHVILI Z, THEODORAKIS M J, et al. Gut-expressed gustducin and taste receptors regulate secretion of glucagon-like peptide-1[J]. Proceedings of the National Academy of Sciences of the United States of America, 2007, 104(38):15069-15074.

[17]
XIE S Z, YANG G, JIANG X M, et al. Polygonatum cyrtonema Hua polysaccharide promotes GLP-1 secretion from enteroendocrine L-cells through sweet taste receptor-mediated cAMP signaling[J]. Journal of Agricultural and Food Chemistry, 2020, 68(25):6864-6872.

DOI

[18]
MARGOLSKEE R F, DYER J, KOKRASHVILI Z, et al. T1R3 and gustducin in gut sense sugars to regulate expression of Na+-glucose cotransporter 1[J]. Proceedings of the National Academy of Sciences of the United States of America, 2007, 104(38):15075-15080.

DOI PMID

[19]
CHEN J J, HUANG W L, ZHANG T, et al. Anti-obesity potential of rare sugar D-psicose by regulating lipid metabolism in rats[J]. Food & Function, 2019, 10(5):2417-2425.

[20]
FAN Y X, HUANG Y L, ZHANG N L, et al. Study on the distribution of umami receptors on the tongue and its signal coding logic based on taste bud biosensor[J]. Biosensors and Bioelectronics, 2022, 197:113780.

DOI

[21]
HOFER D, PUSCHEL B, DRENCKHAHN D. Taste receptor-like cells in the rat gut identified by expression of alpha-gustducin[J]. Proceedings of the National Academy of Sciences of the United States of America, 1996, 93(13):6631-6634.

PMID

[22]
MA L, TIAN X K, XI F X, et al. Ablation of Tas1R1 reduces lipid accumulation through reducing the de novo lipid synthesis and improving lipid catabolism in mice[J]. Journal of Agricultural and Food Chemistry, 2022, 70(33):10248-10258.

DOI

[23]
SHOJAAT S S, ENGMAN S, HOFFERBER J, et al. Loss of the nutrient receptor Tas1R3 reduces atherosclerotic plaque accumulation and hepatic steatosis in ApoE-/- mice[J]. Journal of Physiology and Biochemistry, 2020, 76(4):623-636.

DOI

[24]
WAUSON E M, ZAGANJOR E, LEE A Y, et al. The G protein-coupled taste receptor T1R1/T1R3 regulates mTORC1 and autophagy[J]. Molecular Cell, 2012, 47(6):851-862.

DOI PMID

[25]
WAUSON E M, GUERRA M L, DYACHOK J, et al. Differential regulation of ERK1/2 and mTORC1 through T1R1/T1R3 in MIN6 cells[J]. Molecular Endocrinology, 2015, 29(8):1114-1122.

DOI PMID

[26]
CHEN H Q. Nutrient mTORC1 signaling contributes to hepatic lipid metabolism in the pathogenesis of non-alcoholic fatty liver disease[J]. Liver Research, 2020, 4(1):15-22.

DOI

[27]
BERTRAN L, PORTILLO-CARRASQUER M, MARTÍNEZ S, et al. Expression of jejunal taste receptors in women with morbid obesity[J]. Nutrients, 2021, 13(7):2437.

DOI

[28]
DALY K, AL-RAMMAHI M, MORAN A, et al. Sensing of amino acids by the gut-expressed taste receptor T1R1-T1R3 stimulates CCK secretion[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2013, 304(3):G271-G282.

[29]
KANG C C, WANG L Y, FENG J Y, et al. l-Glutamate stimulates cholecystokinin secretion via the T1R1/T1R3 mediated PLC/TRPM5 transduction pathway[J]. Journal of the Science of Food and Agriculture, 2020, 100(13):4818-4825.

DOI PMID

[30]
AN H M, PARK S Y, LEE D K, et al. Antiobesity and lipid-lowering effects of Bifidobacterium spp. in high fat diet-induced obese rats[J]. Lipids in Health and Disease, 2011, 10:116.

DOI

[31]
SHACKLEY M, MA Y, TATE E W, et al. Short chain fatty acids enhance expression and activity of the umami taste receptor in enteroendocrine cells via a Gαi/o pathway[J]. Frontiers in Nutrition, 2020, 7:568991.

DOI

[32]
BERG C J, KAUNITZ J D. Gut chemosensing:implications for disease pathogenesis[J]. F1000Research, 2016, 5:2424.

DOI

[33]
CHENG W, YAO M Y, LIU F N. Bitter taste receptor as a therapeutic target in orthopaedic disorders[J]. Drug Design,Development and Therapy, 2021, 15:895-903.

DOI

[34]
STERNINI C, ROZENGURT E. Bitter taste receptors as sensors of gut luminal contents[J]. Nature Reviews:Gastroenterology & Hepatology, 2025, 22(1):39-53.

[35]
LU P, ZHANG C H, LIFSHITZ L M, et al. Extraoral bitter taste receptors in health and disease[J]. The Journal of General Physiology, 2017, 149(2):181-197.

DOI

[36]
ANDREOZZI P, SARNELLI G, PESCE M, et al. The bitter taste receptor agonist quinine reduces calorie intake and increases the postprandial release of cholecystokinin in healthy subjects[J]. Journal of Neurogastroenterology and Motility, 2015, 21(4):511-519.

DOI PMID

[37]
PILATO S A, O’CONNELL F P, VICTOR J D, et al. Electrophysiological responses to appetitive and consummatory behavior in the rostral nucleus tractus solitarius in awake,unrestrained rats[J]. Frontiers in Integrative Neuroscience, 2024, 18:1430950.

DOI

[38]
YU Y M, ZHANG X H, EBERSOLE B, et al. Bitter melon extract attenuating hepatic steatosis may be mediated by FGF21 and AMPK/SIRT1 signaling in mice[J]. Scientific Reports, 2013, 3:3142.

DOI PMID

[39]
ZHANG L M, XIE C, NICHOLS R G, et al. Farnesoid X receptor signaling shapes the gut microbiota and controls hepatic lipid metabolism[J]. mSystems, 2016, 1(5):e00070-e00116.

[40]
BENSALEM A, MURTAZA B, HICHAMI A, et al. Bile acid receptor TGR5 is critically involved in preference for dietary lipids and obesity[J]. The Journal of Nutritional Biochemistry, 2020, 76:108298.

DOI

[41]
SUN S Y, YANG Y X, XIONG R Y, et al. Oral berberine ameliorates high-fat diet-induced obesity by activating TAS2Rs in tuft and endocrine cells in the gut[J]. Life Sciences, 2022, 311(Part A):121141.

[42]
GRAU-BOVÉ C, MIGUÉNS-GÓMEZ A, GONZÁLEZ-QUILEN C, et al. Modulation of food intake by differential TAS2R stimulation in rat[J]. Nutrients, 2020, 12(12):3784.

DOI

[43]
KIMURA S, TSURUMA A, KATO E. Taste 2 receptor is involved in differentiation of 3T3-L1 preadipocytes[J]. International Journal of Molecular Sciences, 2022, 23(15):8120.

DOI

[44]
CHOU W L. Therapeutic potential of targeting intestinal bitter taste receptors in diabetes associated with dyslipidemia[J]. Pharmacological Research, 2021, 170:105693.

DOI

[45]
ENCISO RAMÍREZ M A, REYES CASTILLO Z, VALDÉS MIRAMONTES E H. Genetic variants in CD36:emerging role in oral fat perception and food preferences[J]. Nutricion Hospitalaria, 2023, 40(6):1262-1269.

[46]
OH D Y, TALUKDAR S, BAE E J, et al. GPR120 is an omega-3 fatty acid receptor mediating potent anti-inflammatory and insulin-sensitizing effects[J]. Cell, 2010, 142(5):687-698.

DOI PMID

[47]
STEWART J E, FEINLE-BISSET C, GOLDING M, et al. Oral sensitivity to fatty acids,food consumption and BMI in human subjects[J]. The British Journal of Nutrition, 2010, 104(1):145-152.

DOI

[48]
LI Y X, HUANG X G, YANG G, et al. CD36 favours fat sensing and transport to govern lipid metabolism[J]. Progress in Lipid Research, 2022, 88:101193.

DOI

[49]
LUO X Q, ZENG H, TAN W, et al. Deletion of CD36 gene ameliorates glucose metabolism abnormality induced by high-fat diet and promotes liver lipid accumulation[J]. Acta Physiologica Sinica, 2021, 73(5):805-812.

[50]
GLATZ J F C, HEATHER L C, LUIKEN J J F P. CD36 as a gatekeeper of myocardial lipid metabolism and therapeutic target for metabolic disease[J]. Physiological Reviews, 2024, 104(2):727-764.

DOI

[51]
ZHANG D, JIAN Y P, ZHANG Y N, et al. Short-chain fatty acids in diseases[J]. Cell Communication and Signaling, 2023, 21(1):212.

DOI PMID

[52]
CAI X T, ZHANG Q, WANG J W, et al. Novel dual PPAR delta/gamma partial agonist induces hepatic lipid accumulation through direct binding and inhibition of AKT1 phosphorylation,mediating CD36 upregulation[J]. Chemical Research in Toxicology, 2024, 37(9):1574-1587.

DOI

[53]
ZHANG Z Y, HE Z Z, WANG X Y, et al. A natural small molecule pinocembrin resists high-fat diet-induced obesity through GPR120-ERK1/2 pathway[J]. The Journal of Nutritional Biochemistry, 2025, 135:109772.

DOI

[54]
YANG X Y, LI X D, HU M J, et al. EPA and DHA differentially improve insulin resistance by reducing adipose tissue inflammation-targeting GPR120/PPARγ pathway[J]. The Journal of Nutritional Biochemistry, 2024, 130:109648.

DOI

[55]
ICHIMURA A, HIRASAWA A, POULAIN-GODEFROY O, et al. Dysfunction of lipid sensor GPR120 leads to obesity in both mouse and human[J]. Nature, 2012, 483(7389):350-354.

DOI

[56]
YASUDA T, HARADA N, HATOKO T, et al. Inhibition of GPR120 signaling in intestine ameliorates insulin resistance and fatty liver under high-fat diet feeding[J]. American Journal of Physiology:Endocrinology and Metabolism, 2023, 324(5):E449-E460.

文章导航

/