综述

自噬调控精子质量的分子机制及其营养调控

  • 刘鹏 , 1 ,
  • 胡睿智 1 ,
  • 伍树松 1 ,
  • 袁旭鹏 , 1, 2, *
展开
  • 1 湖南农业大学动物科学技术学院, 长沙 410128
  • 2 湖南生物机电职业技术学院动物科技学院, 长沙 410128
* 袁旭鹏,畜牧师,硕士生导师,E-mail:

刘 鹏(2001—),男,江西九江人,硕士研究生,从事单胃动物营养研究。E-mail:

收稿日期: 2025-05-08

  网络出版日期: 2025-12-13

基金资助

国家重点研发计划项目(2023YFD1302300)

Molecular Mechanism of Autophagy Regulating Sperm Quality and Its Nutritional Regulation

  • LIU Peng , 1 ,
  • HU Ruizhi 1 ,
  • WU Shusong 1 ,
  • YUAN Xupeng , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 2 College of Animal Science and Technology, Hunan Biological and Electromechanical Polytechnic, Changsha 410128, China
* engineer, E-mail:

Received date: 2025-05-08

  Online published: 2025-12-13

摘要

精子发生是一个高度精密且受到精细调控的生物学过程,极易受到细胞内外各种刺激因素的干扰。自噬作为细胞内重要的物质清除与再利用机制,能够降解受损细胞器与异常蛋白质,在维持细胞稳态中发挥关键作用。研究表明,自噬与雄性生殖功能密切相关,睾丸中生精细胞和体细胞的自噬稳态是维持正常雄性生殖功能的核心基础。本文综述了自噬调控精子质量的分子机制、影响因素及其营养调控的研究进展,以期为深入解析精子质量调控的生理机制以及研发高效营养调控产品提供理论参考。

本文引用格式

刘鹏 , 胡睿智 , 伍树松 , 袁旭鹏 . 自噬调控精子质量的分子机制及其营养调控[J]. 动物营养学报, 2025 , 37(12) : 8176 -8186 . DOI: 10.12418/CJAN2025.667

Abstract

Spermatogenesis is a highly sophisticated and precisely regulated biological process, which is extremely susceptible to interference from various intracellular and extracellular stimuli. As a crucial intracellular mechanism for substance clearance and recycling, autophagy can degrade damaged organelles and abnormal proteins, playing a key role in maintaining cellular homeostasis. Studies have shown that autophagy is closely related to male reproductive function, and the autophagic homeostasis of spermatogenic cells and somatic cells in the testis is the core basis for maintaining normal male reproductive function. This article reviews the research progress on the molecular mechanism of autophagy regulating sperm quality, influencing factors and its nutritional regulation, aiming to provide a theoretical reference for in-depth analysis of the physiological mechanism of sperm quality regulation and the development of efficient nutritional regulatory products.

自噬(autophagy)是细胞借助溶酶体降解自身组分并进行循环利用的动态过程,主要是通过将受损细胞器、异常蛋白质及入侵病原体包裹形成自噬体,再与溶酶体融合形成自噬溶酶体实现降解再利用,兼具维持细胞稳态和调控凋亡的功能[1]。精子质量(活力、形态和遗传物质稳定性等)是决定受精能力和繁殖效率的关键,直接影响动物的生殖健康与繁殖性能[2]。精子发生过程伴随复杂的细胞分化与结构重塑,易受氧化损伤、能量代谢失衡及环境胁迫等因素的干扰[3]。自噬在精子生成、成熟及功能维持中起重要作用,既能通过清除异常细胞成分维持精子结构和功能的完整性,又可通过能量回收保障精子的运动与受精能力[4]。研究表明,自噬功能异常与精子活力降低、畸形率升高及受精能力下降密切相关,且营养素可通过调控自噬影响精子质量[5]。因此,本文系统综述了自噬调控精子质量的分子机制,并探讨了营养素(植物提取物、多不饱和脂肪酸、功能性氨基酸和维生素)通过调节自噬活性改善精子质量的作用途径,以期为深入解析精子质量的调控机制以及开发高效营养调控产品提供理论参考。

1 自噬与精子质量

1.1 自噬

自噬作为一种内源性调控机制,是细胞增殖与分化过程中的关键环节,能够动态调节细胞状态,进而持续维持内环境稳态[6]。依据物质进入溶酶体的方式及机制,自噬可分为巨自噬(macroautophagy)、微自噬(microautophagy)和分子伴侣介导自噬(chaperone mediated autophagy)3种类型。自噬过程由一系列自噬相关蛋白(autophagy-related protein,Atg)介导,这些蛋白通过形成特定蛋白复合物参与自噬体的起始、延伸、闭合及其与溶酶体的融合等步骤[7]。自噬的核心机制在于细胞内膜的重新排列与组装。当细胞受到辐射、饥饿等刺激时,会通过激活腺苷酸活化蛋白激酶(adenosine monophosphate-activated protein kinase,AMPK)或抑制哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路启动自噬,随后在Unc-51样激酶1(Unc-51-like kinase 1,ULK1)复合物招募下形成自噬小体,自噬小体经扩展、延伸并与吞噬泡等结构融合形成封闭的球形结构——自噬体,最终与溶酶体融合形成自噬溶酶体发挥作用[8-9]

1.2 自噬与精子发生

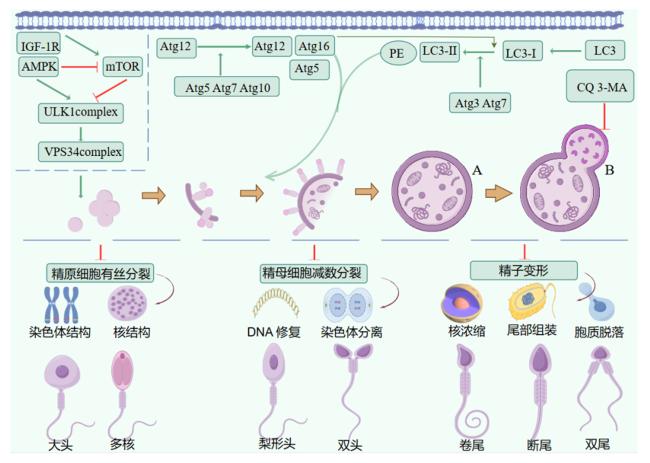
在生精小管中,精原细胞经历多阶段发育过程,最终分化为形态独特的精子细胞[10]。在此过程中,精原细胞和精母细胞会依次有序地进行有丝分裂与减数分裂,并伴随着明显的精细胞形态重塑[11]。自噬作为一种特殊的分解代谢途径,在生精细胞生长发育及细胞残留物清除中发挥关键作用[12]。自噬异常导致精子畸形的机制见图1
图1 精子发生中自噬异常导致精子畸形的机制

IGF-1R:胰岛素样生长因子1受体 insulin-like growth factor 1 receptor;AMPK:腺苷酸活化蛋白激酶 adenosine monophosphate-activated protein kinase;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;ULK1 complex:Unc-51样激酶1复合物 Unc-51-like kinase 1 complex;VPS34 complex:液泡蛋白分选蛋白34复合物 vacuolar protein sorting 34 complex;Atg:自噬相关蛋白 autophagy-related protein;PE:磷脂酰乙醇胺 phosphatidylethanolamine;LC3:微管相关蛋白1轻链3 microtubule-associated protein 1 light chain 3;CQ:氯喹 chloroquine;3-MA:3-甲基腺嘌呤 3-methyladenine;A:自噬体 autophagosome;B:自噬溶酶体 autolysosome。绿色箭头表示激活 green arrows indicate activation;红色箭头表示抑制 red arrows indicate inhibition。

Fig.1 Mechanism of sperm malformation caused by abnormal autophagy in spermatogenesis[1,2,13-17]

1.2.1 自噬调控精原细胞增殖分化

精原干细胞是精子发生的起始细胞,自噬是维持其增殖与分化动态平衡的关键机制。自噬能够清除错误折叠的蛋白质和受损细胞器,并释放营养物质,为细胞分裂提供能量[18]。Shang等[17]研究发现,在敲除小鼠精原细胞GC-1中的Atg7基因后,PDZ和LIM结构域蛋白1(PDZ and LIM domain protein 1,PDLIM1)出现异常蓄积,进而引发F-肌动蛋白聚合紊乱,导致外质特化结构(ectoplasmic specialization,ES)组装受阻,细胞分化停滞于精原细胞阶段。这一结果表明,正常的自噬活性是精原细胞进行持续增殖的必要条件。在分化过程中,自噬还可通过降解抑制因子推动精原细胞向精母细胞转化。Wang等[19]用自噬抑制剂3-甲基腺嘌呤(3-methyladenine,3-MA)处理GC-1细胞后,发现调控G1期向S期转换的细胞周期蛋白D1(cyclin D1)和细胞周期蛋白依赖性激酶4(cyclin-dependent kinase 4,CDK4)的表达下降,导致S期细胞比例降低,阻碍细胞有丝分裂进程;而当自噬被激活后,细胞分化比例显著提高。该研究证实了自噬对精原细胞的定向分化具有促进作用。

1.2.2 自噬参与精母细胞减数分裂

初级精母细胞的减数分裂是精子发生的核心环节,涉及染色体配对、交叉互换和分离等一系列复杂过程;自噬则通过物质供给与结构支持保障这一进程的精准性[20]。一方面,自噬可通过降解冗余成分释放氨基酸、核苷酸等原料,并借助线粒体自噬优化能量代谢,为DNA复制和蛋白质合成提供物质与能量[21]。Redmann等[22]用自噬抑制剂氯喹(chloroquine,CQ)和巴弗洛霉素A1(Bafilomycin A1,Baf-A1)阻断自噬流后,精母细胞因能量不足出现DNA复制延迟和蛋白质合成效率下降,直接证实了自噬在物质供给方面的重要作用。另一方面,自噬通过靶向降解异常成分和调控结构组装维持减数分裂秩序[23-24]。研究表明,自噬功能缺陷(如用Baf-A1干扰溶酶体功能或敲除Atg5基因)会导致自噬体积累、染色质稳定性下降,延长细胞在减数分裂Ⅰ前期的停留时间,甚至阻断分裂进程[14,25]。此外,Matsuhara等[26]在裂殖酵母中的研究进一步证实,当自噬相关基因Atg1、Atg7或Atg14缺失时,酵母突变体会出现纺锤体微管异常延长的情况,导致染色体无法正确排列至赤道板,形成多核细胞。上述研究表明,自噬能够为减数分裂相关结构的建成提供必要支持。

1.2.3 自噬促进精子变形

精细胞在塑形阶段会经历残余胞质清除、细胞器重新排布及精子头部、顶体、鞭毛结构形成等剧烈改造[27]。残余胞质的清除依赖自噬的靶向降解机制,在此过程中,多余的细胞质凝聚成残余体后,泛素化修饰的冗余蛋白通过自噬受体蛋白p62被自噬体识别降解,而敲除p62基因或用CQ阻断自噬体-溶酶体融合会导致残余体降解延迟,使精子因携带多余细胞质出现头、尾部畸形[28-29]。上述现象证实了自噬对胞质清除的必要性。顶体作为精子头部含受精相关酶的特殊结构,其形成依赖自噬相关蛋白对膜结构的重塑。研究表明,敲除小鼠生殖细胞中的Atg7基因可导致自噬过程缺陷,进而造成顶体形成异常并产生圆头精子[17,24]。这证明自噬及Atg7在小鼠顶体生物合成中具有关键作用。Cerrato等[30]研究发现,微管相关蛋白1轻链3(microtubule-associated protein 1 light chain 3,LC3)在顶体形成阶段会特异性富集于顶体区域,抑制其表达会使得顶体变小、结构破碎,直接影响精子的受精能力。该研究进一步证实了自噬对顶体正常形成及其功能的重要性。此外,线粒体自噬可通过选择性清除受损线粒体,同时筛选功能正常的线粒体并使其有序排列,对精子质量的多方面指标(包括线粒体功能、运动能力、形态完整性及受精潜力)产生决定性影响[31-32]。Burbulla等[33]在GC-1细胞中敲除线粒体自噬关键基因PTEN诱导激酶1(PTEN induced putative kinase 1,PINK1)后,线粒体鞘中出现大量肿胀、嵴断裂的异常线粒体。这一结果直接证实了线粒体自噬对精子线粒体结构与功能维持的核心作用。

2 影响自噬调控精子质量过程的因素

2.1 氧化应激因素

氧化应激是指机体或细胞内活性氧(reactive oxygen species,ROS)与抗氧化系统失衡,导致ROS过量蓄积并引发氧化损伤的过程[34]。过量的ROS会损伤精子膜结构、线粒体功能、顶体结构及运动能力,导致精子活力降低、畸形率升高[35]。Bosman等[36]通过流式细胞术检测发现,经过氧化氢(H2O2)处理的精子膜脂质过氧化水平显著升高,且与DNA碎片化指数(DNA fragmentation index,DFI)呈强正相关,证实过量ROS对精子膜结构具有破坏作用。Kadirvel等[37]研究表明,在水牛精子冷冻保存过程中,ROS蓄积会使脂质过氧化产物丙二醛(malondialdehyde,MDA)含量增加,同时伴随线粒体膜电位下降和DNA完整性受损,说明ROS可通过诱发脂质过氧化引发一系列级联损伤。Palma等[38]指出,精子线粒体呼吸链中的电子泄漏是ROS的主要内源性来源,而ROS又可通过破坏线粒体膜电位加剧能量代谢衰竭。Song等[39]在敲除PINK1基因的小鼠中观察到精子线粒体自噬缺陷和ATP生成量显著降低,证实了线粒体功能与ROS水平之间存在相互调控关系。

2.2 炎症因素

炎症(如睾丸炎、附睾炎)可通过释放肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、干扰素-γ(interferon-γ,IFN-γ)及白细胞介素(interleukin,IL)等促炎因子,激活核因子-κB (nuclear factor-κB,NF-κB)/NOD样受体热蛋白结构域相关蛋白3(NOD-like receptor pyrin domain-containing protein 3,NLRP3)通路并诱导过量ROS产生,从而双向调控自噬过程[40]。Reddy等[41]研究发现,采用脂多糖(lipopolysaccharide,LPS)诱导大鼠睾丸炎后,精子尾部卷曲、折断等畸形现象显著增加,且电镜下观察到LC3-Ⅱ在尾部富集,证实炎症会影响精子变形阶段的自噬过程,导致精子尾部结构发育缺陷。Wei等[42]用白消安处理体外培养的GC-1细胞,发现LC3-Ⅱ和p62蛋白表达水平升高,且绿色荧光蛋白(green fluorescent protein,GFP)-LC3单荧光检测显示精原干细胞自噬体增多,说明自噬流发生阻滞,即自噬体形成增强但降解受阻,最终引发自噬功能障碍和细胞凋亡。吴开慧[43]用白消安诱导小鼠睾丸炎,发现小鼠睾丸组织中LC3-Ⅱ和p62蛋白表达水平显著升高,导致自噬功能障碍,进而破坏了血睾屏障和细胞骨架完整性,损害生精微环境,干扰生精细胞正常的增殖与分化,最终导致精子质量降低。

2.3 微生物及其代谢物因素

病毒、霉菌毒素等有毒物质可直接损伤生精细胞,干扰精子生成过程并诱发精子畸形,且常伴随细胞自噬水平的异常改变[44]。常见的病毒有猪繁殖与呼吸综合征病毒(porcine reproductive and respiratory syndrome virus,PRRSV)、单纯疱疹病毒2型(herpes simplex virus-2,HSV-2)和寨卡病毒(Zika virus,ZIKV)等。Dass等[45]研究发现,HSV-2暴露可通过抑制ULK1磷酸化维持较低的自噬水平,从而促进病毒衣壳组装,同时激活磷脂酰肌醇3-激酶(phosphoinositide 3-kinase,PI3K)/蛋白激酶B(protein kinase B,Akt)/mTOR信号通路抑制自噬,引起苄氯素-1(Beclin-1)蛋白的表达下降,最终导致睾丸间质细胞凋亡增加及精子活力下降。ZIKV暴露则通过下调Akt/mTOR通路激活自噬,在精原细胞中过度诱导自噬体堆积,加快病毒复制并促进生精细胞凋亡,导致精子数量减少及DNA碎片化率升高[46-47]。常见的霉菌毒素有黄曲霉毒素B1(aflatoxin B1,AFB1)和玉米赤霉烯酮(zearalenone,ZEN)等。Huang等[48]研究证实,AFB1暴露会上调生精细胞中Atg5、Beclin-1、LC3及p62的表达,抑制自噬活性,同时引起ROS积累和氧化应激加剧,导致精子DNA损伤和线粒体功能异常。Lee等[49]研究指出,ZEN暴露通过激活自噬相关基因和蛋白诱导精原细胞自噬,与凋亡协同作用损伤精原细胞,进而影响精子生成与质量。目前,相关具体分子机制研究尚不深入,尤其不同毒素协同效应及自噬相关信号通路交叉作用仍需探索。

2.4 环境与外源性因素

微塑料(microplastics,MP)、重金属、农药等污染物可通过诱发氧化应激破坏自噬-溶酶体途径,导致精子遗传物质损伤和形态异常[50-52]。MP能够穿透精子质膜,侵入线粒体鞘并导致线粒体肿胀、嵴断裂及膜电位下降,还会异常激活PINK1/帕金蛋白(Parkin)通路,诱导线粒体自噬体形成及抑制溶酶体酸化,阻断自噬流,从而导致ATP生成减少,精子活力下降[50]。Anyanwu等[51]研究发现,重金属镉通过激活PI3K/Akt/mTOR通路抑制自噬起始,导致受损细胞器无法被及时清除,从而使生精细胞凋亡增加;铅则通过p38-MAPK通路诱导过度自噬,引发内质网应激,造成精子尾部畸形率升高。Ni等[52]研究表明,氟氯酮(flurochloridone,FLC)暴露通过诱导支持细胞内ROS积累,抑制AKT/mTOR信号通路,激活病理性自噬(伴随自噬流阻滞),导致支持细胞功能受损,无法为精细胞提供正常支持,最终引发生精障碍。

3 调控自噬改善精子质量的营养手段

营养调控自噬作为改善精子畸形的潜在策略,近年来在机制研究与干预手段方面均取得了显著进展。多项研究表明,植物提取物、多不饱和脂肪酸、功能性氨基酸、维生素等可通过调控自噬来改善精子质量,减少精子畸形(表1)[53-64]
表1 调控自噬改善精子质量的营养手段

Table 1 Nutritional approaches of regulating autophagy to improve sperm quality

添加剂
Additives
剂量
Doses
研究对象
Study subjects
作用效果
Action effects
参考文献
References
原儿茶酸
Protocatechuic acid
1 000 mg/kg 公猪 提高Beclin-1的蛋白表达水平和LC3-Ⅱ/LC3-Ⅰ
比值,显著降低p62的蛋白表达水平
[53]
30 μmol/L 小鼠睾丸间
质细胞TM3
上调LC3-Ⅱ蛋白的表达,
下调p62蛋白的表达
白藜芦醇
Resveratrol
200 mg/kg 小鼠 显著提高PINK1、Parkin的蛋白表达
水平及LC3-Ⅱ/LC3-Ⅰ比值
[54]
20 μmol/L 小鼠精原细胞
GC-1
提高Beclin-1、PINK1、Parkin、
LC3-Ⅱ的蛋白表达水平
[55]
槲皮素
Quercetin
50 mg/kg 雄性大鼠 提高Beclin-1、PINK1、Parkin的蛋白表达
水平,降低LC3-Ⅱ/LC3-Ⅰ比值,p62蛋白
表达水平也降低
[56]
姜黄素
Curcumin
20 μmol/L 小鼠睾丸支持
细胞TM4
上调LC3-Ⅱ和Beclin-1蛋白的表达,
降低p62蛋白的表达
[57]
200 mg/kg 小鼠
12-羟基二十碳五烯酸
12-HEPE
1 μmol/L 小鼠精原细胞GC-1 提高LC3-Ⅱ/LC3-Ⅰ比值和Beclin-1
基因的表达,降低p62蛋白的表达
[58]
2 μmol/L 小鼠
α-亚麻酸
α-linolenic acid
1% 公鸡 提高LC3-Ⅱ/LC3-Ⅰ比值 [59]
精氨酸
Arginine
0.8%~1.6% 公猪 提高Beclin-1、LC3-Ⅱ、和
PINK1、Parkin的蛋白表达水平
[60]
亮氨酸
Leucine
15 g/L 大鼠 LC3-Ⅱ/LC3-Ⅰ比值下降,
p62蛋白积累
[61]
维生素E
Vitamin E
50 mg/kg 大鼠 加速p62蛋白降解,降低
LC3-Ⅱ/p62比值
[62]
叶酸
Folic acid
10 mg/kg 公鸡 上调Beclin-1、LC3-Ⅱ蛋白的表达,
下调p62蛋白的表达
[63]
维生素K
Vitamin K
0.75 mg/kg 大鼠 LC3-Ⅱ/LC3-Ⅰ比值下降,
p62蛋白正常降解
[64]

Beclin-1:苄氯素-1;LC3:微管相关蛋白1轻链3 microtubule-associated protein 1 light chain 3;PINK1:PTEN诱导假定激酶1 PTEN induced putative kinase 1;Parkin:帕金蛋白。

3.1 植物提取物

多数植物活性成分可凭借其强抗氧化特性清除过量ROS,从而减轻氧化应激及优化自噬平衡,改善雄性动物的生殖功能[65]。例如,原儿茶酸(protocatechuic acid,PCA)兼具抗氧化、抗炎及调节能量代谢等特性。Hu等[53]在28月龄种公猪饲粮中连续12周添加1 000 mg/kg PCA,结果表明PCA可通过结合AMPK蛋白来增强磷酸化,提高Beclin-1的蛋白表达水平及LC3-Ⅱ/LC3-Ⅰ比值,并可激活过氧化物酶体增殖物激活受体γ辅激活因子-1α(peroxisome proliferator-activated receptor gamma coactivator-1α,PGC-1α)/核呼吸因子1(nuclear respiratory factor 1,Nrf1)通路,改善精子线粒体功能并提升精子质量;细胞试验进一步表明,30 μmol/L PCA处理可激活自噬,显著上调LC3-Ⅱ蛋白表达、下调p62蛋白表达,从而恢复偶氮二异丁基脒盐酸盐(AAPH)诱导的小鼠睾丸间质细胞TM3的睾酮产生,减轻氧化应激引发的细胞凋亡。白藜芦醇(resveratrol,RES)广泛存在于葡萄、桑葚等植物中,其作用侧重于激活线粒体自噬。凌梦玉[54]研究指出,补充400 mg/kg RES可通过激活PINK1/Parkin通路增强自噬,改善高脂饮食小鼠睾丸支持细胞睾酮合成减少的状况。石拴霞等[55]研究发现,使用15 μmol/L RES处理H2O2诱导的GC-1细胞24 h,能通过激活PINK1/Parkin信号通路增强线粒体自噬,有效缓解氧化应激。黄酮类化合物普遍具有良好抗氧化、抗炎及抑菌作用,作为环保型饲料添加剂在畜禽养殖中应用潜力巨大[66]。槲皮素(quercetin,QUE)是黄酮类的代表性物质。Wang等[56]研究表明,灌胃大鼠50 mg/kg QUE可通过激活PINK1/Parkin通路促进线粒体自噬,减少线粒体释放ROS,维持线粒体膜电位稳定,同时抑制NF-κB炎症通路,显著减轻镉对睾丸的损伤。此外,Xue等[57]研究表明,皮下注射200 mg/kg姜黄素可通过AMPK/mTOR通路激活自噬,恢复小鼠支持细胞的自噬功能,保护血睾屏障完整性,为精子发生提供良好的微环境,最终提升精子质量。上述研究表明,适量的植物抗氧化剂可通过缓解氧化应激、优化自噬功能,有效改善精子质量。

3.2 多不饱和脂肪酸

多不饱和脂肪酸(polyunsaturated fatty acids,PUFAs)可通过调节细胞能量代谢和膜结构稳态,精准调控自噬,从而改善精子畸形[67]。Ju等[68]研究发现,Omega-3多不饱和脂肪酸(ω-3 PUFAs)可通过激活AMPK抑制内质网应激,减少高脂饮食诱导的异常线粒体自噬,并促进线粒体生物合成,从而维持生精细胞的正常结构和能量供应,最终改善精子数量、活力及睾丸组织形态。二十碳五烯酸(eicosapentaenoic acid,EPA)能够通过纠正过度自噬导致的减数分裂异常,改善染色体及整体形态畸形。Jing等[58]研究发现,EPA的代谢产物12-羟基二十碳五烯酸(12-hydroxyeicosapentaenoic acid,12-HEPE)可通过激活睾丸支持细胞中的G蛋白偶联受体120(G protein-coupled receptor 120,GPR120)-细胞外信号调节激酶1/2(extracellular signal-regulated kinase 1/2,ERK1/2)信号通路,显著恢复支持细胞的结构和功能,减少生殖细胞凋亡,协同促进自噬激活和精原细胞分化,从而改善白消安导致的精子生成障碍,降低公猪精子畸形率。牡丹籽油作为植物源PUFAs的典型代表,其不饱和脂肪酸总含量超过85%,其中α-亚麻酸(α-linolenic acid,ALA)占比达42%以上[69]。Long等[59]研究指出,饲粮中添加1% ALA可显著提高LC3-Ⅱ/LC3-Ⅰ比值,促进自噬对受损线粒体的精准清除,还能通过核因子E2相关因子2(nuclear factor E2 related factor 2,Nrf2)/血红素加氧酶-1(heme oxygenase-1,HO-1)通路增强抗氧化能力,降低血清MDA含量及ROS水平,改善老龄种鸡的精子质量。综上所述,PUFAs可通过能量-膜-自噬的级联调控为精子正常发育提供多重保障。

3.3 功能性氨基酸

功能性氨基酸是公猪生殖系统发育与精子发生过程中的关键营养物质,其代谢平衡与自噬调控密切关联,共同参与调节生殖功能[70]。精氨酸可通过增强自噬活性清除精子变形期多余细胞质和受损线粒体,进而改善精子畸形[71]。一方面,精氨酸经一氧化氮合酶(NOS)催化生成一氧化氮,通过抑制mTOR活性适度激活自噬;另一方面,其代谢产物精胺能通过PINK1/Parkin通路诱导线粒体自噬,维持精子尾部线粒体功能。李晓彤[60]研究发现,公猪精液稀释液中补充0.8%~1.6% L-精氨酸,可缓解热应激诱导的精子活力下降,进一步证实了其对线粒体的保护作用。亮氨酸则主要针对自噬失衡(过度或不足)发挥调节作用,可改善因自噬过度导致的染色体分离错误(如双头、无头等畸形)以及自噬不足导致的结构蛋白合成缺陷。Kolahian等[61]研究发现,在大鼠饲粮中添加15 g/L亮氨酸能够激活mTOR通路,抑制过度自噬,减少生精细胞的异常降解及ROS损伤,从而改善糖尿病导致的精子畸形。综上所述,氨基酸可直接或间接调控自噬平衡的阈值,通过精准调节自噬强度以改善精子畸形,是连接营养代谢、细胞稳态与生殖功能的重要纽带。

3.4 维生素

维生素是动物维持正常生理功能所必需的微量有机物,可凭借其抗氧化活性清除过量ROS,维持精子细胞结构与功能稳定[72]。其中,维生素E能增强抗氧化能力,清除生精细胞内过量ROS,避免氧化应激引发的自噬紊乱。Alsemeh等[62]研究表明,以50 mg/kg维生素E处理大鼠可通过调控AMPK/mTOR信号通路,平衡丙戊酸诱导的睾丸异常自噬,使自噬流恢复正常,具体表现为促进自噬体与溶酶体融合,加速p62蛋白降解,使LC3-Ⅱ/p62比值回归生理水平,进而改善精子质量及保护睾丸功能。叶酸是一种水溶性B族维生素,其作为甲基供体通过影响组蛋白甲基化调控自噬相关基因,纠正自噬异常以改善精子质量。Ye等[63]研究表明,饲粮中添加10 mg/kg叶酸可上调Beclin-1和LC3-Ⅱ蛋白的表达,同时下调p62蛋白的表达;其甲基供体作用还可通过影响组蛋白甲基化增强自噬调控,纠正老年公鸡睾丸异常自噬,从而清除生精细胞内受损物质,维持正常精子发生并改善精子质量。维生素K则通过抗炎与激素合成双重机制调控自噬:一方面抑制NF-κB通路,减轻睾丸炎症,减少炎症因子对PI3K/Akt/mTOR等自噬信号通路的干扰;另一方面上调胆固醇侧链裂解酶(cholesterol side-chain cleavage enzyme,Cyp11a)基因和蛋白的表达,促进睾酮合成,通过调节mTOR活性维持自噬与细胞增殖分化的平衡。Takumi等[64]研究发现,在LPS诱导的睾丸炎大鼠饲粮中添加0.75 mg/kg维生素K后,Cyp11a表达和睾酮水平恢复,LC3-Ⅱ积累减少(抑制自噬过度激活),p62蛋白正常降解(恢复自噬流),证实其可纠正炎症诱导的自噬紊乱。综上所述,维生素虽不直接参与自噬,但可通过抗氧化、调控代谢等多维度作用,为自噬的精准性(靶向清除)与稳定性(避免过度或不足)提供必需条件。

4 小结与展望

畜禽养殖规模化、集约化发展背景下,雄性动物面临高温应激、营养失衡、病菌感染及生产扩繁压力等多重挑战,导致精子质量下滑,严重影响生殖健康与生产效率。近年来研究发现,营养素可以通过调控自噬改善精子畸形,为提升雄性动物精子质量提供了新思路。然而,该领域研究尚处于初步阶段,仍存在以下问题亟待解决:其一,营养与自噬相关基因、蛋白的相互作用机制仍不明确,尤其在精子生成的不同阶段及不同细胞类型中,具体作用细节需深入探索;其二,现有研究对物种和个体差异关注不足,导致营养调控方案用在不同种类或个体雄性动物上,效果参差不齐,难以实现稳定可靠的改善效果;其三,当前的营养干预措施缺乏针对性,无法把精子畸形类型和自噬功能障碍对应起来,难以达成精准调控目标。因此,未来的研究应重点关注自噬在不同雄性动物精子发生中的调控阈值与具体作用机制,结合物种特性与个体差异,建立个性化、适配性强的营养干预策略,从而有效提升繁殖效率、减少饲粮浪费,推动畜禽养殖向绿色可持续方向发展。
[1]
DEBNATH J, GAMMOH N, RYAN K M. Autophagy and autophagy-related pathways in cancer[J]. Nature Reviews Molecular Cell Biology, 2023, 24(8):560-575.

DOI PMID

[2]
TEVES M E, ROLDAN E R S. Sperm bauplan and function and underlying processes of sperm formation and selection[J]. Physiological Reviews, 2022, 102(1):7-60.

DOI

[3]
SHARPE R M. Environmental/lifestyle effects on spermatogenesis[J]. Philosophical Transactions of the Royal Society of London.Series B:Biological Sciences, 2010, 365(1546):1697-1712.

[4]
WANG M, ZENG L, SU P, et al. Autophagy:a multifaceted player in the fate of sperm[J]. Human Reproduction Update, 2022, 28(2):200-231.

DOI

[5]
XI H M, SHAN W J, LI M H, et al. Trehalose attenuates testicular aging by activating autophagy and improving mitochondrial quality[J]. Andrology, 2025, 13(4):911-920.

DOI

[6]
LIU S Z, YAO S J, YANG H, et al. Autophagy:regulator of cell death[J]. Cell Death & Disease, 2023, 14(10):648.

[7]
LI X H, HE S K, MA B Y. Autophagy and autophagy-related proteins in cancer[J]. Molecular Cancer, 2020, 19(1):12.

DOI PMID

[8]
KIM J, KUNDU M, VIOLLET B, et al. AMPK and mTOR regulate autophagy through direct phosphorylation of ULK1[J]. Nature Cell Biology, 2011, 13(2):132-141.

DOI PMID

[9]
CHAURASIA M, GUPTA S, DAS A, et al. Radiation induces EIF2AK3/PERK and ERN1/IRE1 mediated pro-survival autophagy[J]. Autophagy, 2019, 15(8):1391-1406.

DOI PMID

[10]
ISHIGURO K I. Mechanisms of meiosis initiation and meiotic prophase progression during spermatogenesis[J]. Molecular Aspects of Medicine, 2024, 97:101282.

DOI

[11]
SHARMA R, AGARWAL A. Spermatogenesis:an overview[M]// ZINIA, AGARWALA. SpermChromatin. New York: Springer,2011:19-44.

[12]
DIKIC I, ELAZAR Z. Mechanism and medical implications of mammalian autophagy[J]. Nature Reviews Molecular Cell Biology, 2018, 19(6):349-364.

DOI PMID

[13]
APARICIO I M, ROJO-DOMÍNGUEZ P, CASTILLEJO-RUFO A, et al. The autophagy marker LC3 is processed during the sperm capacitation and the acrosome reaction and translocates to the acrosome where it colocalizes with the acrosomal membranes in horse spermatozoa[J]. International Journal of Molecular Sciences, 2023, 24(2):937.

DOI

[14]
HUANG Q, LIU Y H, ZHANG S Y, et al. Autophagy core protein ATG5 is required for elongating spermatid development,sperm individualization and normal fertility in male mice[J]. Autophagy, 2021, 17(7):1753-1767.

DOI

[15]
KIM S, LEE W, CHO K. P62 links the autophagy pathway and the ubiquitin-proteasome system in endothelial cells during atherosclerosis[J]. International Journal of Molecular Sciences, 2021, 22(15):7791.

DOI

[16]
MAUVEZIN C, NEUFELD T P. Bafilomycin A1 disrupts autophagic flux by inhibiting both V-ATPase-dependent acidification and Ca-P60A/SERCA-dependent autophagosome-lysosome fusion[J]. Autophagy, 2015, 11(8):1437-1438.

DOI PMID

[17]
SHANG Y L, WANG H N, JIA P F, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1[J]. Autophagy, 2016, 12(9):1575-1592.

DOI PMID

[18]
FLEMING A, BOURDENX M, FUJIMAKI M, et al. The different autophagy degradation pathways and neurodegeneration[J]. Neuron, 2022, 110(6):935-966.

DOI PMID

[19]
WANG M, WANG X F, LI Y M, et al. Cross-talk between autophagy and apoptosis regulates testicular injury/recovery induced by cadmium via PI3K with mTOR-independent pathway[J]. Cell Death & Disease, 2020, 11(1):46.

[20]
LIU M, LIU S Y, SONG C Y, et al. Pre-meiotic deletion of PEX5 causes spermatogenesis failure and infertility in mice[J]. Cell Proliferation, 2023, 56(3):e13365.

DOI

[21]
PALIKARAS K, LIONAKI E, TAVERNARAKIS N. Balancing mitochondrial biogenesis and mitophagy to maintain energy metabolism homeostasis[J]. Cell Death and Differentiation, 2015, 22(9):1399-1401.

DOI PMID

[22]
REDMANN M, BENAVIDES G A, BERRYHILL T F, et al. Inhibition of autophagy with bafilomycin and chloroquine decreases mitochondrial quality and bioenergetic function in primary neurons[J]. Redox Biology, 2017, 11:73-81.

DOI PMID

[23]
XIONG Y W, LI D X, LING Z J, et al. Loss of Atg5 in sertoli cells enhances the susceptibility of cadmium-impaired testicular spermatogenesis in mice[J]. Food and Chemical Toxicology, 2023, 179:113967.

DOI

[24]
WANG H N, WAN H F, LI X I, et al. Atg7 is required for acrosome biogenesis during spermatogenesis in mice[J]. Cell Research, 2014, 24(7):852-869.

DOI PMID

[25]
ZHANG J Q, TIAN Y, XU X N, et al. PLD1 promotes spindle assembly and migration through regulating autophagy in mouse oocyte meiosis[J]. Autophagy, 2024, 20(7):1616-1638.

DOI

[26]
MATSUHARA H, YAMAMOTO A. Autophagy is required for efficient meiosis progression and proper meiotic chromosome segregation in fission yeast[J]. Genes to Cells, 2016, 21(1):65-87.

DOI PMID

[27]
ASADI A, GHAHREMANI R, ABDOLMALEKI A, et al. Role of sperm apoptosis and oxidative stress in male infertility:a narrative review[J]. International Journal of Reproductive Biomedicine, 2021, 19(6):493-504.

[28]
LEI Y Q, ZHANG X G, XU Q J, et al. Autophagic elimination of ribosomes during spermiogenesis provides energy for flagellar motility[J]. Developmental Cell, 2021, 56(16):2313-2328.e7.

DOI PMID

[29]
ZHANG J, ZHANG X M, LIU Y J, et al. Leucine mediates autophagosome-lysosome fusion and improves sperm motility by activating the PI3K/Akt pathway[J]. Oncotarget, 2017, 8(67):111807-111818.

DOI

[30]
CERRATO G, KEPP O, SAUVAT A, et al. A genome-wide RNA interference screen disentangles the Golgi tropism of LC3[J]. Autophagy, 2021, 17(3):820-822.

DOI PMID

[31]
LIU P, SHI J, SHENG D L, et al. Mitopherogenesis,a form of mitochondria-specific ectocytosis,regulates sperm mitochondrial quantity and fertility[J]. Nature Cell Biology, 2023, 25(11):1625-1636.

DOI

[32]
WANG Y, ZHANG Y, CHEN L W, et al. Kinetics and specificity of paternal mitochondrial elimination in Caenorhabditis elegans[J]. Nature Communications, 2016, 7:12569.

DOI

[33]
BURBULLA L F, FITZGERALD J C, STEGEN K, et al. Mitochondrial proteolytic stress induced by loss of mortalin function is rescued by Parkin and PINK1[J]. Cell Death & Disease, 2014, 5(4):e1180.

[34]
邓双义, 高莉, 杨力伟, 等. 动物精子冷冻损伤及耐冻性差异机制研究进展[J]. 中国畜牧兽医, 2025, 52(7):3202-3213.

DOI

DENG S Y, GAO L, YANG L W, et al. Research progress on mechanisms of cryodamage and differential cryotolerance of animal sperm[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(7):3202-3213. (in Chinese)

[35]
WANG Y T, FU X, LI H J. Mechanisms of oxidative stress-induced sperm dysfunction[J]. Frontiers in Endocrinology, 2025, 16:1520835.

DOI

[36]
BOSMAN L, ELLIS P, HOMA S, et al. P-111 development of a flow cytometric assay for membrane lipid oxidation in human sperm[J]. Human Reproduction, 2021, 36(S1):deab130.110.

[37]
KADIRVEL G, KUMAR S, KUMARESAN A. Lipid peroxidation,mitochondrial membrane potential and DNA integrity of spermatozoa in relation to intracellular reactive oxygen species in liquid and frozen-thawed buffalo semen[J]. Animal Reproduction Science, 2009, 114(1/2/3):125-134.

DOI

[38]
PALMA F R, GANTNER B N, SAKIYAMA M J, et al. ROS production by mitochondria:function or dysfunction?[J]. Oncogene, 2024, 43(5):295-303.

DOI

[39]
SONG C, ZHANG A G, ZHANG M, et al. Nrf2/PINK1-mediated mitophagy induction alleviates sodium fluoride-induced hepatic injury by improving mitochondrial function,oxidative stress,and inflammation[J]. Ecotoxicology and Environment Safety, 2023, 252:114646.

DOI

[40]
QIAN M J, FANG X C, WANG X D. Autophagy and inflammation[J]. Clinical and Translational Medicine, 2017, 6(1):e24.

DOI

[41]
REDDY M M, MAHIPAL S V K, SUBHASHINI J, et al. Bacterial lipopolysaccharide-induced oxidative stress in the impairment of steroidogenesis and spermatogenesis in rats[J]. Reproductive Toxicology, 2006, 22(3):493-500.

DOI PMID

[42]
WEI R, ZHANG X Y, CAI Y H, et al. Busulfan suppresses autophagy in mouse spermatogonial progenitor cells via mTOR of AKT and p53 signaling pathways[J]. Stem Cell Reviews and Reports, 2020, 16(6):1242-1255.

DOI

[43]
吴开慧. 白消安损伤小鼠生精机能及褪黑素缓解作用的研究[D]. 硕士学位论文. 北京: 中国农业科学院, 2024.

WU K H. Study on the damage of spermatogenic function and the relieving effect of melatonin by busulfan in mice[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2024. (in Chinese)

[44]
周均云, 习欠云, 关立增, 等. 猪精子与慢病毒作用机制的探讨[J]. 中国兽医学报, 2014, 34(4):658-663.

ZHOU J Y, XI Q Y, GUAN L Z, et al. Mechanism exploration of interaction of porcine sperm and lentivirus[J]. Chinese Journal of Veterinary Science, 2014, 34(4):658-663. (in Chinese)

[45]
DASS D, BANERJEE A, DHOTRE K, et al. HSV-2 manipulates autophagy through interferon pathway:a strategy for viral survival[J]. Viruses, 2024, 16(9):1383.

DOI

[46]
ALMEIDA R D N, BRAZ-DE-MELO H A, DE OLIVEIRA SANTOS I, et al. The cellular impact of the ZIKA virus on male reproductive tract immunology and physiology[J]. Cells, 2020, 9(4):1006.

DOI

[47]
LESTEBERG K E, FADER D S, BECKHAM J D. Pregnancy alters innate and adaptive immune responses to Zika virus infection in the reproductive tract[J]. Journal of Immunology, 2020, 205(11):3107-3121.

DOI PMID

[48]
HUANG W Y, CAO Z, ZHANG J, et al. Aflatoxin B1 promotes autophagy associated with oxidative stress-related PI3K/AKT/mTOR signaling pathway in mice testis[J]. Environmental Pollution, 2019, 255(Pt 2):113317.

DOI

[49]
LEE R, KIM D W, LEE W Y, et al. Zearalenone induces apoptosis and autophagy in a spermatogonia cell line[J]. Toxins, 2022, 14(2):148.

DOI

[50]
ZHAO Q C, FANG Z S, WANG P C, et al. Polylactic acid micro/nanoplastic exposure induces male reproductive toxicity by disrupting spermatogenesis and mitochondrial dysfunction in mice[J]. ACS Nano, 2025, 19(5):5589-5603.

DOI

[51]
ANYANWU B O, ORISAKWE O E. Current mechanistic perspectives on male reproductive toxicity induced by heavy metals[J]. Journal of Environmental Science and Health.Part C:Toxicology and Carcinogenesis, 2020, 38(3):204-244.

[52]
NI Z J, SUN W Q, LI R, et al. Fluorochloridone induces autophagy in TM4 Sertoli cells:involvement of ROS-mediated AKT-mTOR signaling pathway[J]. Reproductive Biology and Endocrinology, 2021, 19(1):64.

DOI

[53]
HU R Z, YANG X Z, GONG J T, et al. Patterns of alteration in boar semen quality from 9 to 37 months old and improvement by protocatechuic acid[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):78.

DOI

[54]
凌梦玉. 自噬机制在白藜芦醇保护高脂饮食小鼠睾酮合成功能中的作用[D]. 硕士学位论文. 合肥: 安徽医科大学, 2020.

LING M Y. Autophagy involved in resveratrol protective effect on steroidogenesis in mice fed a high-fat diet[D]. Master’s Thesis. Hefei: Anhui Medical University, 2020. (in Chinese)

[55]
石拴霞, 阎一鑫, 宋诚, 等. 白藜芦醇对Gc-1 spg细胞氧化应激损伤的作用研究[J]. 中国现代医学杂志, 2023, 33(19):46-54.

SHI S X, YAN Y X, SONG C, et al. Effect of resveratrol on oxidative stress injury of Gc-1 spg cells[J]. China Journal of Modern Medicine, 2023, 33(19):46-54. (in Chinese)

[56]
WANG J C, ZHU H L, WANG K, et al. Protective effect of quercetin on rat testes against cadmium toxicity by alleviating oxidative stress and autophagy[J]. Environmental Science and Pollution Research, 2020, 27(20):25278-25286.

DOI

[57]
XUE C, YAN Z X, CHENG W J, et al. Curcumin ameliorates aging-induced blood-testis barrier disruption by regulating AMPK/mTOR mediated autophagy[J]. PLoS One, 2025, 20(4):e0321752.

DOI

[58]
JING J, OUYANG L, ZHANG H, et al. Omega-3 polyunsaturated fatty acids and its metabolite 12-HEPE rescue busulfan disrupted spermatogenesis via target to GPR120[J]. Cell Proliferation, 2024, 57(2):e13551.

DOI

[59]
LONG C, YIN X F, SHENG X H, et al. Dietary alpha-linolenic acid supplementation enhances semen quality,antioxidant capacity,and sperm survival in aging breeder roosters[J]. Poultry Science, 2024, 103(12):104252.

DOI

[60]
李晓彤. 日粮添加精氨酸对公猪夏季精液品质影响及相关机制研究[D]. 硕士学位论文. 南京: 南京农业大学, 2022.

LI X T. Effects of dietary arginine supplementation on boar summer semen quality and related mechanism research[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2022. (in Chinese)

[61]
KOLAHIAN S, SADRI H, LARIJANI A, et al. Supplementation of diabetic rats with leucine,zinc,and chromium:effects on function and histological structure of testes[J]. International Journal for Vitamin and Nutrition Research, 2015, 85(5/6):311-321.

DOI

[62]
ALSEMEH A E, AHMED M M, FAWZY A, et al. Vitamin E rescues valproic acid-induced testicular injury in rats:role of autophagy[J]. Life Sciences, 2022, 296:120434.

DOI

[63]
YE N W, LV Z P, HUANG Z W, et al. Dietary folic acid supplementation improves semen quality and spermatogenesis through altering autophagy and histone methylation in the testis of aged broiler breeder roosters[J]. Theriogenology, 2022, 181:8-15.

DOI

[64]
TAKUMI N, SHIRAKAWA H, OHSAKI Y, et al. Dietary vitamin K alleviates the reduction in testosterone production induced by lipopolysaccharide administration in rat testis[J]. Food & Function, 2011, 2(7):406-411.

[65]
ADEWOYIN M, IBRAHIM M, ROSZAMAN R, et al. Male infertility:the effect of natural antioxidants and phytocompounds on seminal oxidative stress[J]. Diseases, 2017, 5(1):9.

DOI

[66]
张晨淼, 陈博文, 蒋林树, 等. 纳米技术改良黄酮类化合物在动物健康养殖中的应用潜力[J]. 畜牧兽医学报, 2025, 56(7):3107-3115.

DOI

ZHANG C M, CHEN B W, JIANG L S, et al. Potential applications of nanotechnology-improved flavonoids in animal health management[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(7):3107-3115. (in Chinese)

DOI

[67]
薛永强, 余苗, 马永喜, 等. ω-3多不饱和脂肪酸对畜禽生理功能的影响及其应用的研究进展[J]. 动物营养学报, 2021, 33(9):4870-4881.

DOI

XUE Y Q, YU M, MA Y X, et al. Research progress on effects of ω-3 polyunsaturated fatty acids on physiological function of livestock and poultry and their application[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):4870-4881. (in Chinese)

[68]
JU J X, WEN S L, ZHAO X, et al. Omega-3 polyunsaturated fatty acids ameliorate high-fat-diet-induced structural and functional impairments of testicular tissue via ER stress inhibition[J]. Transgenic Research, 2025, 34(1):32.

DOI PMID

[69]
李海波, 姚军, 张顺. 牡丹籽油及其主要成分α-亚麻酸在雄性动物生育能力中的作用[J]. 右江医学, 2023, 51(8):673-677.

LI H B, YAO J, ZHANG S. Effects of peony seed oil and its main component α-linolenic acid on male fertility[J]. Youjiang Medical Journal, 2023, 51(8):673-677. (in Chinese)

[70]
孔祥峰, 印遇龙, 伍国耀. 猪功能性氨基酸营养研究进展[J]. 动物营养学报, 2009, 21(1):1-7.

KONG X F, YIN Y L, WU G Y. Research advances in functional amino acid nutrition of pigs[J]. Chinese Journal of Animal Nutrition, 2009, 21(1):1-7. (in Chinese)

[71]
WU G Y, MEININGER C J, MCNEAL C J, et al. Role of L-arginine in nitric oxide synthesis and health in humans[J]. Advances in Experimental Medicine and Biology, 2021, 1332:167-187.

DOI PMID

[72]
CHEN J, RUAN X X, YUAN S, et al. Antioxidants, minerals and vitamins in relation to Crohn’s disease and ulcerative colitis:a Mendelian randomization study[J]. Alimentary Pharmacology & Therapeutics, 2023, 57(4):399-408.

文章导航

/