研究论文

饲粮添加甘草酸对产肠毒素大肠杆菌K88感染断奶仔猪体增重、免疫功能、抗氧化能力和肠道健康的影响

  • 王瑞 , 1, 2 ,
  • 林智健 2 ,
  • 郑华昱 2 ,
  • 曹舒婷 2 ,
  • 蒋宗勇 2 ,
  • 王丽 2 ,
  • 朱翠 , 1, *
展开
  • 1 佛山大学动物科技学院, 佛山 528225
  • 2 广东省农业科学院动物科学研究所, 猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室, 广州 510640
* 朱 翠,副研究员,硕士生导师,E-mail:

王 瑞(2000—),男,安徽太和人,硕士研究生,畜牧专业。E-mail:

收稿日期: 2025-05-22

  网络出版日期: 2025-12-13

基金资助

国家生猪产业技术体系(CARS-35)

广东省现代农业产业技术体系生猪创新团队项目(2025CXTD22-07)

Effects of Dietary Supplementation of Glycyrrhizic Acid on Body Weight Gain, Immune Function, Antioxidant Capacity and Intestinal Health of Weaned Piglets Challenged with Enterotoxigenic Escherichia coli K88

  • WANG Rui , 1, 2 ,
  • LIN Zhijian 2 ,
  • ZHENG Huayu 2 ,
  • CAO Shuting 2 ,
  • JIANG Zongyong 2 ,
  • WANG Li 2 ,
  • ZHU Cui , 1, *
Expand
  • 1 School of Animal Science and Technology, Foshan University, Foshan 528225, China
  • 2 Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
* associate professor, E-mail:

Received date: 2025-05-22

  Online published: 2025-12-13

摘要

本试验旨在研究饲粮添加甘草酸(GA)对产肠毒素大肠杆菌(ETEC)K88感染断奶仔猪体增重、免疫功能、抗氧化能力和肠道健康的影响。选取40头体重相近、胎次相同的21日龄“杜×长×大”断奶仔猪,采用2×2两因素设计,随机分成4组,每组10个重复,每个重复1头。对照组(CON组)和ETEC组饲喂玉米-豆粕型基础饲粮,GA组和GA+ETEC组饲喂基础饲粮+400 mg/kg GA。试验期21 d。于试验第19~21天,连续3 d对ETEC组和GA+ETEC组仔猪灌服10 mL浓度为1×10⁹ CFU/mL的ETEC K88菌液,CON组和GA组灌服等量的无菌磷酸盐缓冲液。结果表明:1)饲粮添加400 mg/kg GA显著提高第21天体重和第1~21天平均日增重(P<0.05)。2)ETEC K88感染显著提高血清白细胞介素-1β和空肠黏膜干扰素-γ含量(P<0.05),显著降低血清白细胞介素-10和免疫球蛋白G含量(P<0.05);饲粮添加400 mg/kg GA显著降低血清白细胞介素-1α、白细胞介素-2和肿瘤坏死因子-α含量(P<0.05),显著提高空肠黏膜分泌型免疫球蛋白A含量(P<0.05)。3)ETEC K88感染显著降低肝脏超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性(P<0.05)。饲粮添加400 mg/kg GA显著提高血清SOD和过氧化氢酶活性(P<0.05),显著降低血清丙二醛含量(P<0.05);同时,显著提高肝脏SOD、GSH-Px活性和总抗氧化能力以及GSH-Px1、GSH-Px4和核因子E2相关因子2(Nrf2)mRNA相对表达量(P<0.05)。4)ETEC K88感染显著降低十二指肠和空肠绒隐比(P<0.05),显著提高十二指肠和空肠隐窝深度(P<0.05);饲粮添加400 mg/kg GA显著提高十二指肠和空肠绒毛高度和绒隐比(P<0.05),显著降低十二指肠和空肠隐窝深度(P<0.05)。5)ETEC K88感染显著降低十二指肠闭合蛋白(Occludin)和空肠闭锁小带蛋白-1(ZO-1)、Occludin mRNA相对表达量(P<0.05),饲粮添加400 mg/kg GA显著提高空肠Occludin mRNA相对表达量(P<0.05)。6)饲粮添加400 mg/kg GA有提高结肠厚壁菌门相对丰度的趋势(P=0.076),显著降低结肠变形菌门相对丰度(P<0.05);同时,有提高结肠乳杆菌属(P=0.070)和联合乳杆菌属(P=0.093)相对丰度的趋势,有降低结肠埃希氏菌-志贺氏菌属(P=0.059)和狭义梭菌属1(P=0.084)相对丰度的趋势。综上所述,饲粮添加400 mg/kg GA能够提高断奶仔猪体增重,增强免疫功能和抗氧化能力,并促进肠道健康,从而缓解ETEC K88感染造成的负面影响。

本文引用格式

王瑞 , 林智健 , 郑华昱 , 曹舒婷 , 蒋宗勇 , 王丽 , 朱翠 . 饲粮添加甘草酸对产肠毒素大肠杆菌K88感染断奶仔猪体增重、免疫功能、抗氧化能力和肠道健康的影响[J]. 动物营养学报, 2025 , 37(12) : 8231 -8248 . DOI: 10.12418/CJAN2025.671

Abstract

This experiment aimed to investigate the effects of dietary supplementation of glycyrrhizic acid (GA) on body weight gain, immune function, antioxidant capacity and intestinal health of weaned piglets challenged with enterotoxigenic Escherichia coli (ETEC) K88. Forty 21-day-old Duroc×Landrace×Large White weaned piglets with similar body weight and the same parity were selected and randomly divided into 4 groups using a 2×2 two-factor design, with 10 replicates in each group and 1 pig in each replicate. The control group (CON group) and ETEC group were fed a corn-soybean meal type basal diet, while GA group and GA+ETEC group were fed the basal diet+400 mg/kg GA. The experiment lasted for 21 days. From day 19 to day 21 of the experiment, 10 mL of ETEC K88 bacterial solution with a concentration of 1×10⁹ CFU/mL was administered to piglets in ETEC group and GA+ETEC group for 3 consecutive days, while CON group and GA group were administered the same amount of sterile phosphate buffer solution. The results showed as follows: 1) dietary supplementation of 400 mg/kg GA significantly increased the body weight on day 21 and average daily gain from days 1 to 21 (P<0.05). 2) ETEC K88 infection significantly increased the contents of interleukin-1β in serum and interferon-γ in jejunal mucosa (P<0.05), and significantly decreased the contents of interleukin-10 and immunoglobulin G in serum (P<0.05); dietary supplementation of 400 mg/kg GA significantly reduced the contents of interleukin-1α, interleukin-2 and tumor necrosis factor-α in serum (P<0.05), and significantly increased the secretory immunoglobulin A content in jejunal mucosa (P<0.05). 3) ETEC K88 infection significantly reduced the activities of superoxide dismutase (SOD) and glutathione peroxidase (GSH-Px) in liver (P<0.05). Dietary supplementation of 400 mg/kg GA significantly increased the activities of SOD and catalase in serum (P<0.05), and significantly reduced the malondialdehyde content in serum (P<0.05). Meanwhile, it significantly increased the activities of SOD and GSH-Px, the total antioxidant capacity, and the mRNA relative expression levels of GSH-Px1, GSH-Px4 and nuclear factor E2-related factor 2 (Nrf2) in liver (P<0.05). 4) ETEC K88 infection significantly reduced the villus height to crypt depth ratio in duodenum and jejunum (P<0.05), and significantly increased the crypt depth in duodenum and jejunum (P<0.05); dietary supplementation of 400 mg/kg GA significantly increased the villus height and villus height to crypt depth ratio in duodenum and jejunum (P<0.05), and significantly reduced the crypt depth in duodenum and jejunum (P<0.05). 5) ETEC K88 infection significantly reduced the mRNA relative expression levels of Occludin in duodenum, and zonula occludens-1 (ZO-1) and Occludin in jejunum (P<0.05), while dietary supplementation of 400 mg/kg GA significantly increased the Occludin mRNA relative expression level in jejunum (P<0.05). 6) Dietary supplementation of 400 mg/kg GA tended to increase the Firmicutes relative abundance in colon (P=0.076), and significantly reduced the Proteobacteria relative abundance in colon (P<0.05); meanwhile, it tended to increase the relative abundances of Lactobacillus (P=0.070) and Ligilactobacillus (P=0.093), and to decrease the relative abundances of Escherichia-Shigella (P=0.059) and Clostridium_sensu_stricto_1 (P=0.084). In conclusion, dietary supplementation of 400 mg/kg GA can increase the body weight gain of weaned piglets, enhance immune function and antioxidant capacity, and promote intestinal health, thereby alleviating the negative effects caused by ETEC K88 infection.

产肠毒素大肠杆菌(enterotoxigenic Escherichia coli,ETEC)是严重威胁仔猪生产和肠道健康的常见细菌病原体之一,可产生一种或多种肠毒素,引起分泌性腹泻[1]。黏附素是在ETEC定植中起重要作用的蛋白质,通常存在于细菌表面的细胞壁和菌毛中,ETEC中常见的菌毛黏附素包括F4(K88)和F5(K99)等,以ETEC K88危害程度最大[2]。近几十年来,饲粮中抗生素生长促进剂有效地减少了仔猪ETEC感染。随着我国自2020年7月1日起饲料“禁抗令”的生效,寻找抗生素替代品的研究成为近年来的研究热点。
中草药制剂因其取材天然、毒性低以及生物学功能多样等优势,正日益成为研究和应用的热点。中药甘草系豆科多年生草本植物干草的干燥根及根茎,数百年以来被广泛用作甜味剂,其主要成分包括三萜皂苷、类黄酮、香豆素、植物甾醇、胆碱和维生素等[3]。其中,三萜皂苷中含量最高的活性物质是甘草酸(glycyrrhizic acid,GA)[4]。目前,GA已被研究证实具有抗病毒、抗癌、抗溃疡、抗炎、抗氧化和抗过敏等重要药理作用[5-6]。在畜禽上有研究发现,饲粮添加150 mg/kg甘草提取物(GA含量约10%)显著提高42~63日龄仔猪平均日增重(ADG)[7]。饲粮添加4.5%甘草提取物(GA含量为22%)可提高卡拉库尔羊血清总抗氧化能力(T-AOC)和超氧化物歧化酶(SOD)活性[8]。此外,给仔猪静脉注射12 h GA[1 mg/(kg·h)]可显著降低内毒素血症模型猪血清二胺氧化酶活性和D-乳酸含量,并减轻肠道损伤[9]。由此可见,GA在畜禽生产中具有广阔的前景,但目前关于GA在断奶仔猪上应用的研究相对较少,而ETEC K88对养猪业危害较大。因此,本研究旨在探究饲粮添加GA对ETEC K88感染断奶仔猪体增重、免疫功能、抗氧化能力和肠道健康的影响,以期为GA在畜禽养殖生产中的合理应用提供依据。

1 材料与方法

1.1 试验材料

GA为市售产品,经高效液相色谱(HPLC)法检测其GA含量≥65%。
ETEC K88菌株血清型为O149:K91:K88ac,购自中国兽医药品监察所。首先将ETEC K88菌株保存液从-80 ℃冰箱中取出,然后用灭菌的接种环蘸取少量ETEC K88菌液在LB琼脂平板划线,随后置于37 ℃恒温培养箱中培养18 h;挑取单菌落置于200 mL的LB肉汤中,置于摇床中,37 ℃培养18 h;将培养好的ETEC K88菌液经离心后,用LB培养液调整菌体浓度为1×10⁹ CFU/mL。

1.2 试验设计

本试验方案经广东省农业科学院动物科学研究所实验动物伦理委员会批准(批准编号:GDIAS20221103)。选取40头体重相近、胎次相同的21日龄“杜×长×大”断奶仔猪,采用2×2两因素设计,随机分成4组,每组10个重复,每个重复1头。对照组(CON组)和ETEC组饲喂玉米-豆粕型基础饲粮,GA组和GA+ETEC组饲喂基础饲粮+400 mg/kg GA。试验期21 d。于试验第19~21天,连续3 d对ETEC组和GA+ETEC组仔猪灌服10 mL浓度为1×10⁹ CFU/mL的ETEC K88菌液,CON组和GA组灌服等量的无菌磷酸盐缓冲液(PBS)。基础饲粮参照NRC(2012)猪营养需要配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 40.00
膨化玉米Expanded corn 15.00
豆粕Soybean meal 18.00
鱼粉Fish meal 5.00
低蛋白乳清粉Low protein whey powder 10.00
乳清蛋白粉Whey protein powder 1.00
大豆油Soybean oil 2.66
蔗糖Sucrose 2.00
碳酸氢钠NaHCO3 0.20
氯化钠NaCl 0.28
石粉Limestone 0.80
柠檬酸钙Calcium citrate 0.30
磷酸氢钙CaHPO4 0.85
L-赖氨酸盐酸盐L-Lys·HCl 0.70
DL-蛋氨酸DL-Met 0.17
L-苏氨酸L-Thr 0.29
L-色氨酸L-Trp 0.06
L-缬氨酸L-Val 0.19
DL-丙氨酸DL-Ala 0.50
预混料Premix1) 2.00
合计Total 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 14.80
代谢能ME/(MJ/kg) 14.26
净能NE/(MJ/kg) 10.87
粗蛋白质CP 19.00
钙Ca 0.80
标准回肠可消化赖氨酸SID Lys 1.40
标准回肠可消化蛋氨酸SID Met 0.40
标准回肠可消化苏氨酸SID Thr 0.82
标准回肠可消化色氨酸SID Trp 0.23
标准全肠道可消化磷STTD P 0.39

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:VA 4 400 IU,VD3 440 IU,VE 30 IU,VK 1 mg,VB1 3 mg,VB2 10 mg,VB6 8 mg,VB12 40 μg,烟酸 nicotinic acid 40 mg,D-泛酸 D-pantothenic acid 15 mg,叶酸 folic acid 1 mg,生物素 biotin 0.08 mg,FeSO4·H2O 120 mg,CuSO4·5H2O 16 mg,MnSO4·H2O 70 mg,ZnSO4·H2O 120 mg,CaI2O6 0.7 mg,Na2SeO3 0.30 mg。

2)粗蛋白质(GB/T 6432—2018)和钙(GB/T 6436—2018)为实测值,其他营养水平为计算值[根据NRC(2012)计算得出]。CP (GB/T 6432—2018) and Ca (GB/T 6436—2018) were measured values, while the other nutrient levels were calculated values according to NRC (2012).

1.3 样品采集

试验结束当天早晨对仔猪进行称重,称重结束后每组选择6头仔猪,前腔静脉采血10 mL,静置30 min,再在4 ℃、1 006.2×g条件下离心10 min后得到血清,分装于1.5 mL EP管并存放于-80 ℃冰箱,用于血清免疫和抗氧化指标的测定。然后,对仔猪前腔静脉注射30 mg/kg戊巴比妥钠麻醉后进行放血,随后开膛及解剖分离内脏,取左侧肝脏样品用于抗氧化指标测定。将十二指肠、空肠、回肠和结肠无菌结扎,取近端十二指肠、空肠中段、远端回肠各2~3 cm肠段组织样品,用4%多聚甲醛固定。取近端十二指肠、中段空肠、远端回肠肠段纵向剪开,在冰上轻轻刮取肠黏膜样品分装,液氮速冻,转置于-80 ℃保存。取结肠内容物于5 mL冻存管中,用于16S rRNA微生物测序。

1.4 测定指标及方法

1.4.1 体增重

分别于试验开始和结束时对所有试验仔猪进行称重,以重复为单位计算仔猪ADG[由于试验疏忽,当时没有准确测得采食量,导致本研究中没有平均日采食量(ADFI)和料重比数据]。计算公式如下:
ADG(g/d)=(终末体重-初始体重)/试验天数。

1.4.2 血清和空肠黏膜免疫指标

血清和空肠黏膜白细胞介素-1α(IL-1α)、白细胞介素-1β(IL-1β)、白细胞介素-2(IL-2)、白细胞介素-8(IL-8)、白细胞介素-10(IL-10)、肿瘤坏死因子-α(TNF-α)、干扰素-γ(IFN-γ)、免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)和分泌型免疫球蛋白A(sIgA)含量均采用试剂盒(江苏酶免实业有限公司)测定,按照试剂盒说明书进行操作。

1.4.3 血清和肝脏抗氧化指标

血清和肝脏谷胱甘肽过氧化物酶(GSH-Px)、SOD、过氧化氢酶(CAT)活性以及丙二醛(MDA)含量和T-AOC均采用试剂盒(南京建成生物工程研究所)测定。

1.4.4 肠道形态结构

参考姚康[10]的方法处理肠道组织样品和制作苏木精-伊红(HE)染色切片,采用光学显微镜(Eclipse E100-DS-U3,Nikon)观察切片,然后使用Image J软件测量十二指肠、空肠和回肠绒毛高度和隐窝深度,并计算绒隐比(绒毛高度/隐窝深度)。

1.4.5 肝脏抗氧化和肠道屏障功能相关基因表达

采用TRIzol法提取样品总RNA,在微量分光光度计(Nanodrop ND-1000,Thermo Scientific,美国)上分别于260和280 nm波长下测定吸光度,并计算RNA浓度和纯度;利用反转录试剂盒(Color reverse transcription kit with gDNA remover,EZBioscience)将总RNA反转录成cDNA,然后以cDNA为模板,采用Taq pro universal SYBR qPCR Master Mix(南京诺唯赞生物科技股份有限公司)于PCR仪(FQD-96A,杭州博日科技股份有限公司)上进行相关基因表达的测定。采用相对定量方法,以β-肌动蛋白(β-actin)作为内参基因,采用2-ΔΔCt法计算目的基因mRNA相对表达量。根据GenBank数据库相关基因序列信息,采用Primer3和BLAST查找并设计引物,并由生工生物工程(上海)股份有限公司合成,引物序列见表2
表2 引物序列

Table 2 Primer sequences

基因Genes 引物序列Primer sequences (5'—3')
β-肌动蛋白β-actin F:TGTGGATCAGCAAGCAGGAG
R:GAATGCAACTAACAGTCCGCC
超氧化物歧化酶1 SOD1 F:AAGATGCTGCTGCCTCGTTGTG
R:CCTGGAGATGGCATTCAGACTGTATTC
超氧化物歧化酶2 SOD2 F:TGCGGGTAGATTCGGGAGAGATG
R:AATGAGCAGGTGTCCAGGAGAGG
谷胱甘肽过氧化物酶1 GSH-Px1 F:TGGTCGTGCTCGGCTTCCC
R:CGTACTTGAGGCAATTCAGGATCTCC
谷胱甘肽过氧化物酶4 GSH-Px4 F:ACCGTCTCAACCGCCTCCAG
R:GCTGAGTGTAGTTTACCTCCGTCTTG
核因子E2相关因子2 Nrf2 F:AGCCAGCTGACCTCCTTAGA
R:AGTGACTGACTGATGGCAGC
密封蛋白-1 Claudin-1 F:TTCTGGGAGGTGCCCTACTT
R:CTTTCCCACTGGAAGGCGAA
黏蛋白2 MUC2 F:TGATGCAGCTCTTCCTGACG
R:GCCGTCTTGAAATCATCGCC
闭锁小带蛋白-1 ZO-1 F:CCAGGGAGAGAAGTGCCAGTAGG
R:TTTGGTGGGTTTGGTGGGTTGAC
闭合蛋白Occludin F:CAGCCTCATTACAGCAGCAGTGG
R:TCGCCGCCCGTCGTGTAG

1.4.6 结肠微生物区系

从结肠内容物中提取总DNA,并选用特异引物(515F,5'-CCTAYGGGRBGCASCAG-3';806R,5'-GGACTACNNGGGTATCTAAT-3')针对16S rRNA基因的V3~V4可变区进行PCR扩增。PCR扩增程序为:98 ℃预变性1 min,98 ℃变性10 s,50 ℃退火30 s,72 ℃延伸30 s,循环30次,最后在72 ℃下保持5 min。随后构建测序文库,并在北京诺禾致源科技股份有限公司的Illumina HiSeq 2500 PE250平台上进行测序分析。

1.5 数据统计分析

试验数据采用SPSS 20软件的一般线性模型(general linear model,GLM)进行两因素方差分析,包括GA和ETEC的主效应以及GA与ETEC的交互效应,结果数据以平均值和均值标准误(SEM)表示;采用GraphPad Prism 10.1.2软件进行柱状图绘制,统计学显著性为P<0.05,0.05<P<0.10为有显著趋势。

2 结果与分析

2.1 饲粮添加GA对ETEC K88感染断奶仔猪体增重的影响

表3可知,ETEC K88感染显著降低断奶仔猪试验第21天体重和第1~21天ADG(P<0.05),而饲粮添加400 mg/kg GA显著提高第21天体重和第1~21天ADG(P<0.05)。GA与ETEC对断奶仔猪体重和ADG无显著交互效应(P>0.05)。
表3 饲粮添加GA对ETEC K88感染断奶仔猪体增重的影响

Table 3 Effects of dietary supplementation of GA on body weight gain of weaned piglets challenged with ETEC K88 (n=10)

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON GA ETEC GA+ETEC ETEC GA GA×
ETEC
初始体重IBW/kg 5.41 5.42 5.41 5.40 0.063 0.957 0.634 0.840
第18天体重
BW on day 18/kg
9.19 9.80 9.17 9.33 0.153 0.432 0.226 0.471
第21天体重
BW on day 21/kg
9.60 11.02 9.15 9.68 0.216 0.018 0.011 0.213
平均日增重ADG/(g/d) 199.46 266.86 178.29 203.81 10.223 0.020 0.011 0.219

ETEC:产肠毒素大肠杆菌 enterotoxigenic Escherichia coli;GA:甘草酸 glycyrrhizic acid;GA×ETEC:GA与ETEC的交互效应 interaction between GA and ETEC。下表同 The same as below。

2.2 饲粮添加GA对ETEC K88感染断奶仔猪免疫功能的影响

2.2.1 饲粮添加GA对ETEC K88感染断奶仔猪血清和空肠黏膜炎性细胞因子含量的影响

表4可知,ETEC K88感染显著提高断奶仔猪血清IL-1β和空肠黏膜IFN-γ含量(P<0.05),显著降低血清IL-10含量(P<0.05);饲粮添加400 mg/kg GA显著降低血清IL-1α、IL-2和TNF-α含量(P<0.05),有降低空肠黏膜TNF-α含量的趋势(P=0.094),有提高空肠黏膜IL-10含量的趋势(P=0.056)。此外,GA与ETEC对断奶仔猪血清和空肠黏膜炎性细胞因子含量均无显著交互效应(P>0.05)。
表4 饲粮添加GA对ETEC K88感染断奶仔猪血清和空肠黏膜炎性细胞因子含量的影响

Table 4 Effects of dietary supplementation of GA on inflammatory cytokine contents in serum and jejunal mucosa of weaned piglets challenged with ETEC K88 (n=6)

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON GA ETEC GA+ETEC ETEC GA GA×
ETEC
血清Serum
白细胞介素-1α
IL-1α/(ng/L)
122.69 115.72 127.10 117.24 1.983 0.442 0.040 0.706
白细胞介素-1β
IL-1β/(ng/L)
52.68 53.25 61.60 61.60 1.518 0.003 0.911 0.911
白细胞介素-2
IL-2/(ng/L)
527.06 506.17 557.29 495.14 9.465 0.604 0.034 0.271
白细胞介素-8
IL-8/(ng/L)
484.46 480.70 485.54 484.73 5.763 0.838 0.855 0.906
白细胞介素-10
IL-10/(ng/L)
114.69 110.35 103.92 97.38 2.084 0.003 0.136 0.755
肿瘤坏死因子-α
TNF-α/(pg/mL)
673.10 631.60 768.60 654.60 20.621 0.116 0.046 0.320
干扰素-γ
IFN-γ/(pg/mL)
2 057.33 2 034.00 2 137.00 2 024.00 29.328 0.576 0.281 0.473
空肠黏膜Jejunal mucosa
白细胞介素-1α
IL-1α/(ng/g prot)
15.77 15.90 18.60 15.55 0.642 0.343 0.267 0.229
白细胞介素-1β
IL-1β/(ng/g prot)
4.90 4.71 5.54 5.27 0.172 0.114 0.531 0.917
白细胞介素-10
IL-10/(ng/g prot)
23.39 25.90 22.55 24.54 0.581 0.330 0.056 0.811
肿瘤坏死因子-α
TNF-α/(pg/mg prot)
87.89 80.21 92.95 83.73 2.414 0.377 0.094 0.872
干扰素-γ
IFN-γ/(pg/mg prot)
259.88 283.84 327.59 294.73 8.687 0.013 0.758 0.062

2.2.2 饲粮添加GA对ETEC K88感染断奶仔猪血清和空肠黏膜免疫球蛋白含量的影响

表5可知,ETEC K88感染显著降低断奶仔猪血清IgG含量(P<0.05),而对血清IgA、IgM以及空肠黏膜sIgA含量无显著影响(P>0.05);饲粮添加400 mg/kg GA显著提高空肠黏膜sIgA含量(P<0.05),但对血清免疫球蛋白含量无显著影响(P>0.05)。此外,GA与ETEC对断奶仔猪血清和空肠黏膜免疫球蛋白含量均无显著交互效应(P>0.05)。
表5 饲粮添加GA对ETEC K88感染断奶仔猪血清和空肠黏膜免疫球蛋白含量的影响

Table 5 Effects of dietary supplementation of GA on immunoglobulin contents in serum and jejunal mucosa of weaned piglets challenged with ETEC K88 (n=6)

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON GA ETEC GA+ETEC ETEC GA GA×
ETEC
血清Serum
免疫球蛋白A
IgA/(μg/mL)
37.93 37.79 35.91 36.24 0.574 0.152 0.940 0.846
免疫球蛋白G
IgG/(μg/mL)
407.41 443.41 383.98 391.91 8.383 0.026 0.174 0.378
免疫球蛋白M
IgM/(μg/mL)
45.05 43.47 43.27 42.87 0.793 0.487 0.564 0.731
空肠黏膜Jejunal mucosa
分泌型免疫球蛋白A
sIgA/(μg/mg prot)
4.37 5.18 4.28 4.94 0.149 0.536 0.015 0.782

2.3 饲粮添加GA对ETEC K88感染断奶仔猪抗氧化能力的影响

2.3.1 饲粮添加GA对ETEC K88感染断奶仔猪血清和肝脏抗氧化指标的影响

表6可知,ETEC K88感染显著降低断奶仔猪肝脏SOD和GSH-Px活性(P<0.05),有提高肝脏T-AOC的趋势(P=0.086),对血清抗氧化指标无显著影响(P>0.05);饲粮添加400 mg/kg GA显著提高血清SOD和CAT活性以及肝脏SOD、GSH-Px活性和T-AOC(P<0.05),有提高血清GSH-Px活性的趋势(P=0.080),显著降低血清MDA含量(P<0.05),有降低肝脏MDA含量的趋势(P=0.086)。此外,GA与ETEC对断奶仔猪血清SOD活性和肝脏MDA含量有显著交互效应(P<0.05)。
表6 饲粮添加GA对ETEC K88感染断奶仔猪血清和肝脏抗氧化指标的影响

Table 6 Effects of dietary supplementation of GA on antioxidant indices in serum and liver of weaned piglets challenged with ETEC K88 (n=6)

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON GA ETEC GA+ETEC ETEC GA GA×
ETEC
血清Serum
谷胱甘肽过氧化氢酶
GSH-Px/(U/mL)
379.23 478.46 369.23 390.00 16.833 0.143 0.080 0.237
超氧化物歧化酶
SOD/(U/mL)
10.87 14.29 12.32 12.23 0.355 0.522 0.003 0.002
丙二醛MDA/(nmol/mL) 4.33 3.01 4.68 3.78 0.211 0.109 0.004 0.529
过氧化氢酶
CAT/(U/mL)
3.57 4.62 3.05 4.95 0.221 0.761 <0.001 0.182
总抗氧化能力
T-AOC/(mmol/L)
0.56 0.56 0.52 0.61 0.061 0.930 0.183 0.200
肝脏Liver
超氧化物歧化酶
SOD/(U/mg prot)
19.95 22.17 16.21 19.23 0.623 0.001 0.005 0.621
谷胱甘肽过氧化氢酶
GSH-Px/(U/mg prot)
508.58 630.21 380.97 544.44 27.107 0.014 0.002 0.594
丙二醛MDA/(nmol/mg prot) 7.30 4.14 5.68 6.15 0.428 0.796 0.086 0.025
总抗氧化能力
T-AOC/(mmol/mg prot)
0.62 0.70 0.66 0.85 0.029 0.086 0.014 0.310

2.3.2 饲粮添加GA对ETEC K88感染断奶仔猪肝脏抗氧化相关基因表达的影响
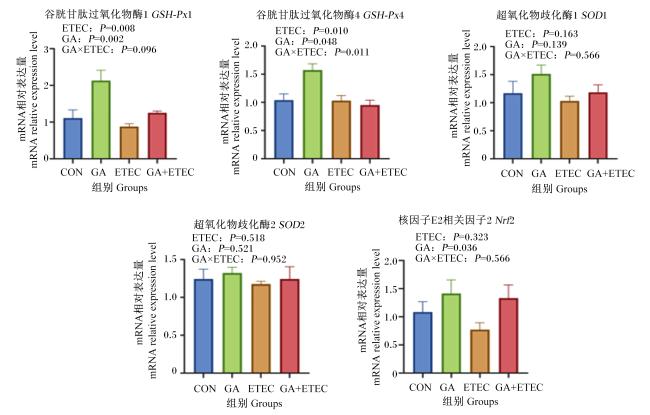
图1所示,ETEC K88感染显著降低断奶仔猪肝脏GSH-Px1和GSH-Px4 mRNA相对表达量(P<0.05),而饲粮添加400 mg/kg GA显著提高肝脏GSH-Px1、GSH-Px4和核因子E2相关因子2(Nrf2)mRNA相对表达量(P<0.05)。此外,GA与ETEC对断奶仔猪肝脏GSH-Px4 mRNA相对表达量有显著交互效应(P<0.05),对肝脏GSH-Px1 mRNA相对表达量有显著交互效应趋势(P=0.096)。
图1 饲粮添加GA对ETEC K88感染断奶仔猪肝脏抗氧化相关基因表达的影响

ETEC:产肠毒素大肠杆菌 enterotoxigenic Escherichia coli;GA:甘草酸 glycyrrhizic acid;GA×ETEC:GA与ETEC的交互效应 interaction between GA and ETEC。图2图5同 The same as Fig.2 to Fig.5

Fig.1 Effects of dietary supplementation of GA on expression of antioxidant related genes in liver of weaned piglets challenged with ETEC K88 (n=6)

2.4 饲粮添加GA对ETEC K88感染断奶仔猪肠道健康的影响

2.4.1 饲粮添加GA对ETEC K88感染断奶仔猪肠道形态结构的影响

表7可知,ETEC K88感染显著降低断奶仔猪十二指肠和空肠绒隐比(P<0.05),显著提高十二指肠和空肠隐窝深度(P<0.05);饲粮添加400 mg/kg GA则显著提高十二指肠和空肠绒毛高度和绒隐比(P<0.05),有提高回肠绒隐比的趋势(P=0.065),显著降低十二指肠和空肠隐窝深度(P<0.05),同时有降低回肠隐窝深度的趋势(P=0.097)。此外,GA与ETEC对断奶仔猪十二指肠绒毛高度和绒隐比以及空肠绒隐比有显著交互效应(P<0.05)。
表7 饲粮添加GA对ETEC K88感染断奶仔猪肠道形态结构的影响

Table 7 Effects of dietary supplementation of GA on intestinal morphological structure of weaned piglets challenged with ETEC K88 (n=6)

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON GA ETEC GA+ETEC ETEC GA GA×
ETEC
十二指肠Duodenum
绒毛高度Villus height/μm 476.69 476.35 403.92 497.66 11.002 0.150 0.013 0.012
隐窝深度Crypt depth/μm 294.55 261.06 364.79 284.03 9.591 0.001 <0.001 0.055
绒隐比V/C 1.66 1.85 1.11 1.75 0.077 0.003 <0.001 0.028
空肠Jejunum
绒毛高度Villus height/μm 424.93 466.23 394.28 481.12 13.628 0.760 0.020 0.382
隐窝深度Crypt depth/μm 273.93 265.57 307.97 269.03 5.226 0.037 0.011 0.084
绒隐比V/C 1.72 1.75 1.26 1.80 0.059 0.021 0.002 0.006
回肠Ileum
绒毛高度Villus height/μm 357.93 379.92 353.69 372.33 7.567 0.707 0.205 0.915
隐窝深度Crypt depth/μm 231.78 224.91 262.70 230.39 6.041 0.121 0.097 0.272
绒隐比V/C 1.55 1.69 1.39 1.58 0.046 0.126 0.065 0.814

2.4.2 饲粮添加GA对ETEC K88感染断奶仔猪肠道屏障功能相关基因表达的影响

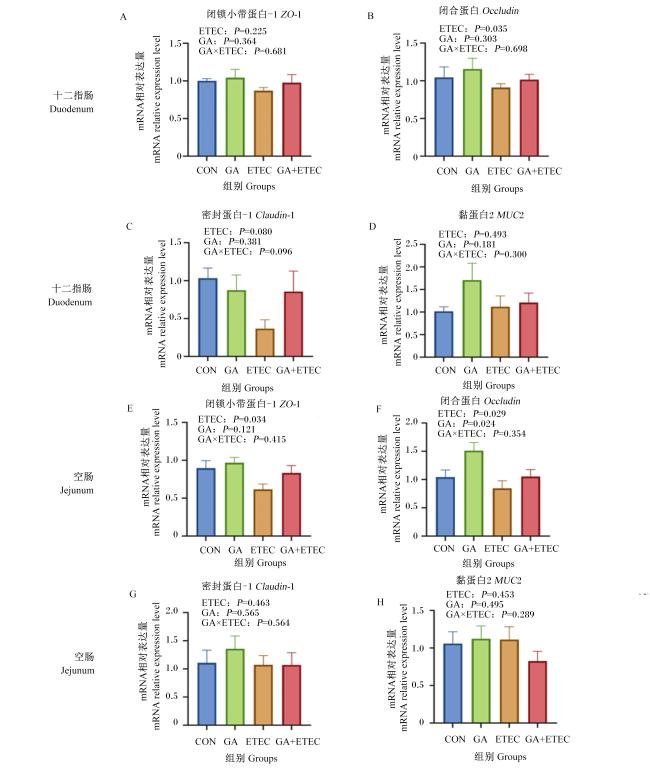
图2所示,ETEC K88感染显著降低断奶仔猪十二指肠闭合蛋白(Occludin)和空肠闭锁小带蛋白-1(ZO-1)、Occludin mRNA相对表达量(P<0.05),有降低十二指肠密封蛋白-1(Claudin-1)mRNA相对表达量的趋势(P=0.080),对十二指肠和空肠黏蛋白2(MUC2)mRNA相对表达量无显著影响(P>0.05);饲粮添加400 mg/kg GA显著提高空肠Occludin mRNA相对表达量(P<0.05),对其他肠道屏障功能相关基因mRNA相对表达量无显著影响(P>0.05)。此外,GA与ETEC对断奶仔猪十二指肠和空肠屏障功能相关基因mRNA相对表达量无显著交互效应(P>0.05)。
图2 饲粮添加GA对ETEC K88感染断奶仔猪肠道屏障功能相关基因表达的影响

Fig.2 Effects of dietary supplementation of GA on expression of genes related to intestinal barrier function of weaned piglets challenged with ETEC K88 (n=6)

2.5 饲粮添加GA对ETEC K88感染断奶仔猪结肠微生物区系的影响

2.5.1 结肠微生物区系多样性分析

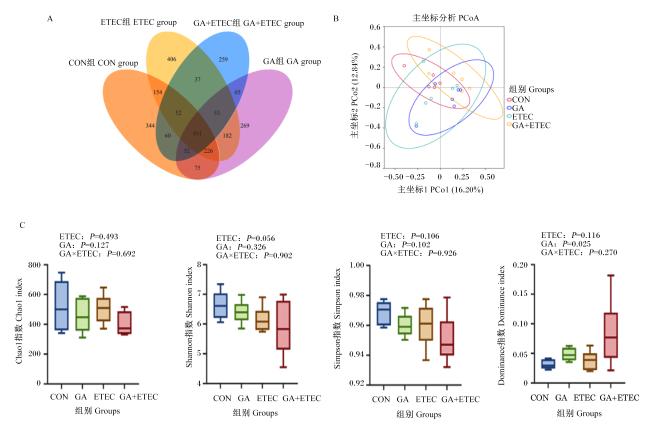
图3所示,断奶仔猪结肠内容物样品中共鉴定出2 665个独特的操作分类单位(operational taxonomic unit,OTU),其中431个属于4组共有的OTU,占OTU总数的16.17%;CON组、GA组、ETEC组和GA+ETEC组分别鉴定出344、269、406和259个独有的OTU。主坐标分析(PCoA)结果显示,各组间样本有部分重合。ETEC K88感染有降低断奶仔猪结肠微生物区系Shannon指数的趋势(P=0.056),对Chao1指数、Simpson指数和Dominance指数无显著影响(P>0.05);饲粮添加400 mg/kg GA显著提高Dominance指数(P<0.05),对Chao1指数、Simpson指数和Shannon指数无显著影响(P>0.05)。此外,GA与ETEC对断奶仔猪结肠微生物区系多样性指数无显著交互效应(P>0.05)。
图3 饲粮添加GA对ETEC K88感染断奶仔猪结肠微生物区系多样性的影响

A:OTU韦恩图 OTU Venn diagram;B:主坐标分析 PCoA;C:α多样性分析 α diversity analysis。

Fig.3 Effects of dietary supplementation of GA on colonic microbiota diversity of weaned piglets challenged with ETEC K88 (n=6)

2.5.2 结肠微生物区系组成分析

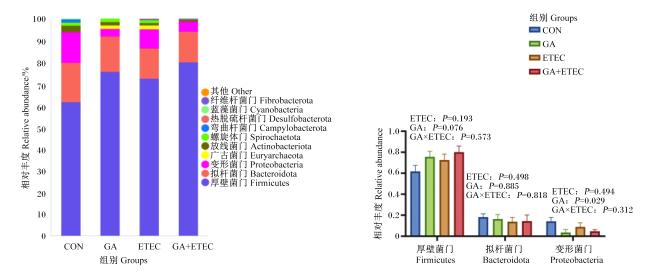
图4所示,在门水平上,厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)和变形菌门(Proteobacteria)是各组断奶仔猪结肠菌群最主要的菌门,占所有菌门的90%以上。饲粮添加400 mg/kg GA有提高结肠厚壁菌门相对丰度的趋势(P=0.076),显著降低结肠变形菌门相对丰度(P<0.05)。GA与ETEC对断奶仔猪结肠主要菌门相对丰度无显著交互效应(P>0.05)。
图4 饲粮添加GA对ETEC K88感染断奶仔猪结肠微生物区系在门水平上组成的影响

Fig.4 Effects of dietary supplementation of GA on colonic microbiota at phylum level of weaned piglets challenged with ETEC K88 (n=6)

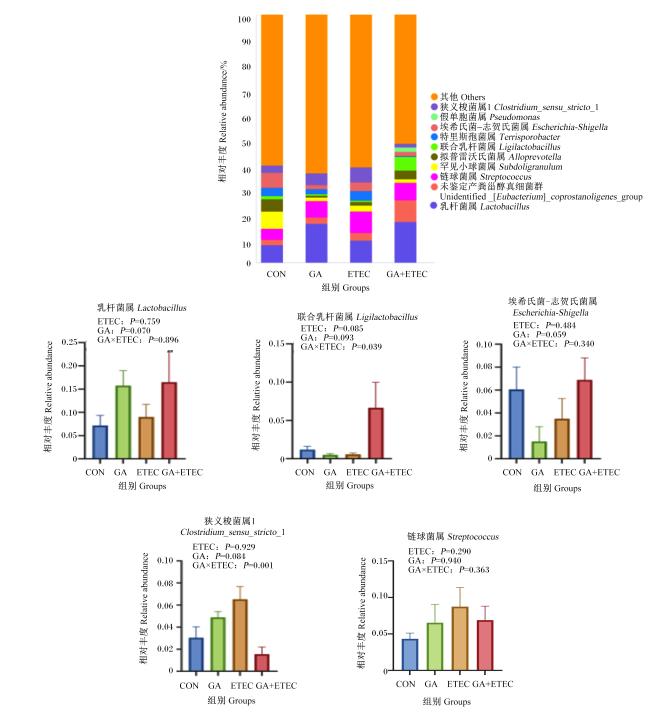
图5所示,ETEC K88感染有降低断奶仔猪结肠联合乳杆菌属(Ligilactobacillus)相对丰度的趋势(P=0.085);饲粮添加400 mg/kg GA有提高结肠乳杆菌属(Lactobacillus,P=0.070)和联合乳杆菌属(P=0.093)相对丰度的趋势,有降低结肠埃希氏菌-志贺氏菌属(Escherichia-Shigella,P=0.059)和狭义梭菌属1(Clostridium_sensu_stricto_1,P=0.084)相对丰度的趋势。此外,GA与ETEC对断奶仔猪结肠联合乳杆菌属和狭义梭菌属1相对丰度有显著交互效应(P<0.05)。
图5 饲粮添加GA对ETEC K88感染断奶仔猪结肠微生物区系在属水平上组成的影响

Fig.5 Effects of dietary supplementation of GA on colonic microbiota at genus level of weaned piglets challenged with ETEC K88 (n=6)

2.5.3 结肠微生物区系差异分析

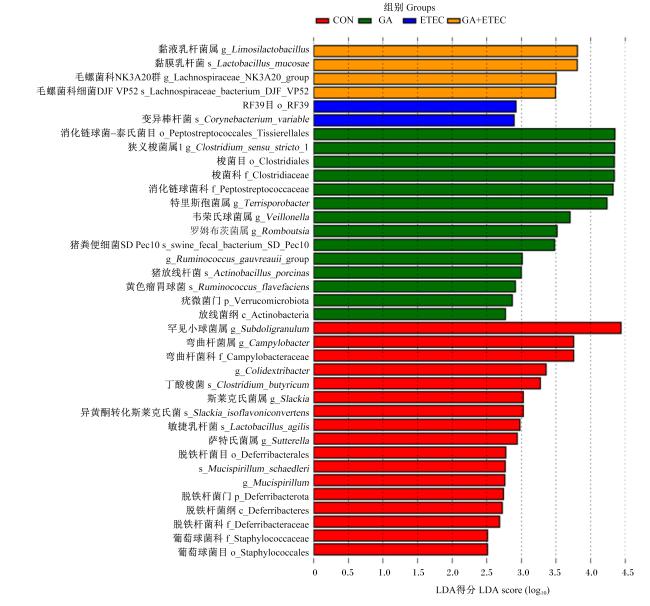
采用线性判别分析(LDA)效应大小(LEfSe)分析各组间断奶仔猪结肠微生物区系具有显著差异(LDA阈值为2.5,P<0.05)的物种。如图6所示,CON组LDA值大于2.5的前2个菌群为罕见小球菌属(Subdoligranulum)和弯曲杆菌属(Campylobacter),GA组为RF39目和变异棒杆菌(Corynebacterium variable),ETEC组为消化链球菌-泰氏菌目(Peptostreptococcales-Tissierellales)和狭义梭菌属1,GA+ETEC组为黏液乳杆菌属(Limosilactobacillus)和黏膜乳杆菌(Lactobacillus mucosae)。
图6 断奶仔猪结肠微生物区系差异分析

Fig.6 Analysis of colonic microbiota differences of weaned piglets (n=6)

3 讨论

3.1 饲粮添加GA对ETEC K88感染断奶仔猪体增重的影响

研究表明,ETEC K88感染显著降低仔猪ADG、ADFI和饲料转化率[11-13]。本研究也发现,ETEC K88感染后断奶仔猪第1~21天ADG和第21天体重显著降低,而饲粮添加400 mg/kg GA则显著提高第1~21天ADG和第21天体重。相似地,Xu等[14]研究也发现,饲粮添加400 mg/kg GA显著提高42~70日龄断奶仔猪ADG和ADFI,降低料重比。Aoyagi等[15]研究发现,20 g/d甘草提取物(GA含量≥13%)饲喂日本黑牛60 d或更长时间可以提高超排卵处理后获得的胚胎质量,并导致每头牛的可移植胚胎平均数量增加。Hu等[16]研究发现,饲粮添加100 mg/kg GA显著提高因鸡毒支原体而导致的ADG下降。由于仔猪偏爱甜食,而GA甜度约为蔗糖的50倍[17],这可能是仔猪体增重提高的原因之一。然而,由于本试验猪头数较少,未来仍需要在更大规模的动物群体中验证GA对ETEC K88感染仔猪生长的保护作用。

3.2 饲粮添加GA对ETEC K88感染断奶仔猪免疫功能的影响

炎性细胞因子是宿主炎症反应的重要指标,在调节免疫功能和促进病原性感染后的快速免疫反应中起着至关重要的作用[18-19]。免疫球蛋白是一类由B细胞分泌、能特异性识别和中和病原体并激活免疫反应的蛋白质(包括IgA、IgG和IgM)[20]。研究表明,ETEC感染仔猪后,仔猪机体IL-1β、TNF-α、IFN-γ和IL-10等细胞因子含量均有所升高[21-23]。本研究发现,ETEC K88感染显著提高断奶仔猪血清促炎因子IL-1β和回肠黏膜IFN-γ含量,显著降低血清抗炎因子IL-10和IgG含量,与前人研究基本一致。此外,大量体外试验表明,GA具有较强的免疫能力。例如,Huan等[24]用猪流行性腹泻病毒(PEDV)感染Vero细胞的试验发现,0.8 mmol/L GA下调了IL-1βTNF-α mRNA表达,进而减轻了PEDV感染期间细胞的促炎反应。Guo等[25]用牛疱疹病毒1型(BoAHV-1)感染牛肾细胞表明,GA下调了因BoAHV-1引起的IL-1β、IL-8、TNF-α和磷酸化核因子-κB(NF-κB)p65的升高。赵潇晗等[26]研究发现,50 μmol/L GA可显著降低脂多糖刺激仔猪小肠上皮细胞IPEC-J2上清液中白细胞介素-6(IL-6)含量,但对IL-1β和TNF-α含量无显著影响。以上研究大都是基于体外细胞试验得到的结果,而本研究通过断奶仔猪试验也验证了饲粮添加400 mg/kg GA具有较好的免疫调节功能,证实GA可显著降低断奶仔猪血清IL-1α、IL-2和TNF-α含量,同时降低空肠黏膜TNF-α含量,并提高空肠黏膜IL-10和sIgA含量。值得注意的是,sIgA是局部黏膜免疫的核心抗体,能在黏膜表面阻断病原体黏附、迅速中和病毒并清除细菌,为机体构筑首要防护屏障[27]

3.3 饲粮添加GA对ETEC K88感染断奶仔猪抗氧化能力的影响

动物机体在受到外界刺激和损伤时,会产生过量的活性氧和活性氮,造成机体亚硝酸化应激和氧化应激。SOD、CAT和GSH-Px是常见的抗氧化酶,其中SOD主要负责催化超氧阴离子转化为过氧化氢,CAT则进一步将过氧化氢分解成无毒的水,从而减轻对细胞的潜在毒性[28];GSH-Px通过谷胱甘肽还原过氧化氢和脂质过氧化物,保护细胞免受氧化损伤[29]。MDA是一种脂质过氧化产物,被认为是评价动物氧化应激和脂质过氧化的标志物。研究表明,ETEC可以诱导细胞氧化应激并降低抗氧化酶活性[30-31]。Zhu等[32]研究发现,GA可以通过抑制脂质过氧化和减少活性氧的积累来减轻心肌缺血再灌注诱导的铁死亡。Ma等[33]研究表明,GA通过提高SOD、CAT活性和降低凋亡蛋白或基因表达来减少氧化应激诱导的仔猪IPEC-J2细胞凋亡。本研究发现,ETEC K88感染显著降低断奶仔猪肝脏SOD和GSH-Px活性;而饲粮添加GA提高血清GSH-Px、CAT和SOD活性,显著降低血清MDA含量,并显著提高肝脏SOD、GSH-Px活性及T-AOC,这些结果与前人研究结果一致。胞质中的GSH-Px1在几乎所有的哺乳动物细胞中普遍表达,并形成四聚体,而GSH-Px4则以单体的形式运作[34]。与其他GSH-Px亚型相比,GSH-Px4能够还原大分子脂肪酸过氧化物,例如磷脂或胆固醇过氧化物。Nrf2在细胞抗氧化反应中起着核心作用,可以调控下游抗氧化酶GSH-Px1和GSH-Px4的表达,确保维持细胞内还原型谷胱甘肽水平,从而减少组织损伤[35]。因此,本研究又检测了肝脏GSH-Px1、GSH-Px4和Nrf2的mRNA相对表达量,结果发现ETEC K88感染显著降低断奶仔猪肝脏GSH-Px1和GSH-Px4 mRNA相对表达量,而饲粮添加400 mg/kg GA显著提高肝脏GSH-Px1、GSH-Px4和Nrf2 mRNA相对表达量。这些结果展现了GA具有较强的抗氧化能力,并且可能通过Nrf2/GSH-Px1和Nrf2/GSH-Px4信号通路来减轻因ETEC K88感染而导致的氧化损伤。

3.4 饲粮添加GA对ETEC K88感染断奶仔猪肠道屏障功能的影响

肠道是营养物质消化吸收的关键器官,肠道上皮结构的改变会影响营养物质的利用,常采用绒毛高度、隐窝深度和绒隐比来评估肠内消化吸收功能[36-37]。既往研究表明,ETEC可以在宿主小肠中定植和分泌外毒素,损害肠道健康[38]。Xu等[39]报道,ETEC主要攻击仔猪空肠。本试验发现,ETEC K88感染显著降低断奶仔猪空肠绒隐比,显著提高空肠隐窝深度,且感染仔猪十二指肠也表现出显著的绒毛萎缩。肠道屏障的完整性是通过紧密连接的细胞间凝聚来维持的,紧密连接是一种多功能复合物,可在顶端表面附近的相邻上皮细胞之间形成密封[40]。ZO-1、Occludin和Claduin-1是有助于维持肠道屏障完整性的紧密连接蛋白[41]。本研究结果显示,ETEC K88感染显著降低断奶仔猪十二指肠和空肠Occludin以及空肠ZO-1 mRNA相对表达量,有降低十二指肠Claduin-1 mRNA相对表达量的趋势,表明ETEC K88感染破坏了肠道屏障结构。研究发现,复合益生菌与GA联合使用可显著提高仔猪空肠ZO-1、Claduin-1和Occludin mRNA相对表达量[14],说明GA可能可以提高仔猪肠道屏障功能。本研究与之一致,发现饲粮添加GA可显著提高断奶仔猪空肠Occludin mRNA相对表达量,且恢复因ETEC K88感染导致的十二指肠和空肠绒毛高度的损伤。这些结果表明,饲粮添加GA可以减轻ETEC K88感染诱导的断奶仔猪肠道屏障功能损伤,对仔猪肠道上皮屏障的完整性具有保护作用。

3.5 饲粮添加GA对ETEC K88感染断奶仔猪肠道菌群的影响

肠道微生物群落是动物有机体的重要组成部分,影响着动物生理、免疫和机体健康[42]。在门水平上,猪肠道微生物群落通常包括3个优势菌门:厚壁菌门、拟杆菌门和变形菌门。其中,厚壁菌门被认为是肠道微生物群落中维持最佳肠道健康和修复功能的关键组成部分,在宿主的营养代谢中起着重要作用。该菌门负责复杂碳水化合物和纤维素的分解代谢,这不仅提高了营养的吸收效率,还为微生物提供了必需的营养物质[43]。厚壁菌门与拟杆菌门的比值是评价肠道微生物群落平衡的重要指标[44]。本试验观察到GA提高了断奶仔猪结肠厚壁菌门相对丰度以及厚壁菌门与拟杆菌门的比值。Ley等[45]报道,厚壁菌门与拟杆菌门比值的增加与体重增加直接相关。仔猪肠道菌群平衡对维持肠道健康至关重要。研究表明,GA可调节肠道微生物群落失衡,提高有益菌相对丰度,降低有害菌相对丰度[46]。本研究发现,饲粮添加GA可以改善断奶仔猪结肠微生物群落的多样性,从而减轻肠道炎症。据报道,肠道微生物群落多样性低通常与炎症有关[47]。有些梭菌如破伤风梭菌、肉毒梭菌和产气荚膜梭菌可产生具有致病性的外毒素,而乳杆菌属被认为是肠道益生菌[48]。本研究中,饲粮添加GA有降低断奶仔猪结肠狭义梭菌属1相对丰度的趋势,有提高结肠乳杆菌属相对丰度的趋势,表明GA具有降低产毒菌增殖,促进乳酸杆菌等有益菌生长和定植的能力。由此可见,GA能够提高ETEC K88感染断奶仔猪肠道微生物群落多样性,并改善肠道菌群组成,维持肠道微生物区系的平衡。然而,关于GA如何影响肠道菌群进而调控ETEC K88感染断奶仔猪生长和肠道健康的作用机制还有待进一步研究。

4 结论

饲粮添加400 mg/kg GA能够提高ETEC K88感染断奶仔猪体增重,增强免疫功能和抗氧化能力,并促进肠道健康,从而缓解ETEC K88感染造成的负面影响。
[1]
CANIBE N, HØJBERG O, KONGSTED H, et al. Review on preventive measures to reduce post-weaning diarrhoea in piglets[J]. Animals, 2022, 12(19):2585.

DOI

[2]
MAINIL J G, BEX F, JACQUEMIN E, et al. Prevalence of four enterotoxin (STaP,STaH,STb,and LT) and four adhesin subunit (K99,K88,987P,and F41) genes among Escherichia coli isolates from cattle[J]. American Journal of Veterinary Research, 1990, 51(2):187-190.

DOI

[3]
CHENG M Z, ZHANG J Q, YANG L, et al. Recent advances in chemical analysis of licorice (Gan-Cao)[J]. Fitoterapia, 2021, 149:104803.

DOI

[4]
YU J Y, HA J Y, KIM K M, et al. Anti-inflammatory activities of licorice extract and its active compounds,glycyrrhizic acid,liquiritin and liquiritigenin,in BV2 cells and mice liver[J]. Molecules, 2015, 20(7):13041-13054.

DOI

[5]
CHEN K, YANG R, SHEN F Q, et al. Advances in pharmacological activities and mechanisms of glycyrrhizic acid[J]. Current Medicinal Chemistry, 2020, 27(36):6219-6243.

DOI

[6]
REHMAN M U, FAROOQ A, ALI R, et al. Preclinical evidence for the pharmacological actions of glycyrrhizic acid:a comprehensive review[J]. Current Drug Metabolism, 2020, 21(6):436-465.

DOI

[7]
尤婷. 甘草提取物对断奶仔猪生长性能、免疫功能及肠道健康的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2020.

YOU T. Effects of licorice extract on growth performance,immune function and intestinal health of weaned piglets[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2020. (in Chinese)

[8]
GUO X F, CHENG L, LIU J F, et al. Effects of licorice extract supplementation on feed intake,digestion,rumen function,blood indices and live weight gain of karakul sheep[J]. Animals, 2019, 9(5):279.

DOI

[9]
WANG W, ZHAO F, FANG Y, et al. Glycyrrhizin protects against porcine endotoxemia through modulation of systemic inflammatory response[J]. Critical Care, 2013, 17(2):R44.

[10]
姚康. 乙醇梭菌蛋白替代豆粕对断奶仔猪生长性能、免疫功能和肠道健康的影响[D]. 硕士学位论文. 武汉: 华中农业大学, 2023.

YAO K. Effect of replacing soybean meal with clostridium ethanolamine protein on growth performance,immune function and intestinal health of weaned piglets[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2023. (in Chinese)

[11]
ZENG Y T, LI R, DONG Y, et al. Dietary supplementation with puerarin improves intestinal function in piglets challenged with Escherichia coli K88[J]. Animals, 2023, 13(12):1908.

DOI

[12]
LEI X J, KIM I H. Evaluation of coated zinc oxide in young pigs challenged with enterotoxigenic Escherichia coli K88[J]. Animal Feed Science and Technology, 2020, 262:114399.

DOI

[13]
ZHEN R, FENG J S, HE D S, et al. Effects of niacin on resistance to enterotoxigenic Escherichia coli infection in weaned piglets[J]. Frontiers Nutrition, 2022, 9:865311.

DOI

[14]
XU X X, CHANG J, WANG P, et al. Combination of glycyrrhizic acid and compound probiotics alleviates deoxynivalenol-induced damage to weaned piglets[J]. Ecotoxicology and Environment Safety, 2023, 256:114901.

DOI

[15]
AOYAGI Y, TAKEUCHI M, OONO Y, et al. Effect of feeding a licorice extract to Japanese black cows on embryo production performance after superovulation treatment[J]. Reproduction,Fertility and Development, 2019, 31(1):222.

DOI

[16]
HU F L, LUO R L, DUAN S W, et al. Evaluation of glycyrrhizic acid therapeutic effect and safety in Mycoplasma gallisepticum (HS strain)-infected arbor acres broilers[J]. Animals, 2022, 12(10):1285.

DOI

[17]
WAHAB S, ANNADURAI S, ABULLAIS S S, et al. Glycyrrhiza glabra (Licorice):a comprehensive review on its phytochemistry,biological activities,clinical evidence and toxicology[J]. Plants, 2021, 10(12):2751.

DOI

[18]
PALUDAN S R, PRADEU T, MASTERS S L, et al. Constitutive immune mechanisms:mediators of host defence and immune regulation[J]. Nature Reviews Immunology, 2021, 21(3):137-150.

DOI

[19]
SIERAWSKA O, MAŁKOWSKA P, TASKIN C, et al. Innate immune system response to burn damage-focus on cytokine alteration[J]. International Journal of Molecular Sciences, 2022, 23(2):716.

DOI

[20]
程远之, 周洪彬, 虞财华, 等. 不同类型酸化剂对断奶仔猪生长性能和免疫功能的影响[J]. 动物营养学报, 2021, 33(5):2575-2584.

DOI

CHENG Y Z, ZHOU H B, YU C H, et al. Effects of different types of acidifiers on growth performance and immune function of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2021, 33(5):2575-2584. (in Chinese)

[21]
KIM K, SONG M, LIU Y H, et al. Enterotoxigenic Escherichia coli infection of weaned pigs:intestinal challenges and nutritional intervention to enhance disease resistance[J]. Frontiers in Immunology, 2022, 13:885253.

DOI

[22]
ZHANG K, SHEN X Y, HAN L, et al. Effects on the intestinal morphology,inflammatory response and microflora in piglets challenged with enterotoxigenic Escherichia coli K88[J]. Research in Veterinary Science, 2023, 157:50-61.

DOI

[23]
ZHANG X Y, BRUBAKER J, TALAAT K R, et al. Intestinal inflammation induced by heat-labile toxin-producing enterotoxigenic E. coli infection and impact on immune responses in an experimental human challenge model[R/OL].(2025-04-03)[2025-05-10].https://doi.org/10.1101/2025.04.03.25325163.

[24]
HUAN C C, WANG H X, SHENG X X, et al. Glycyrrhizin inhibits porcine epidemic diarrhea virus infection and attenuates the proinflammatory responses by inhibition of high mobility group box-1 protein[J]. Archives of Virology, 2017, 162(6):1467-1476.

DOI

[25]
GUO B, WANG H F, ZHANG Y, et al. Glycyrrhizin alleviates varicellovirus bovinealpha 1-induced oxidative stress,inflammation,and apoptosis in MDBK cells by inhibiting NF-κB/NLRP3 axis through the Nrf2 signalling pathway[J]. Veterinary Research Communications, 2024, 48(2):749-759.

DOI

[26]
赵潇晗, 司玮, 赵青余, 等. 甘草酸通过c-Jun氨基末端蛋白激酶通路缓解脂多糖诱导的IPEC-J2细胞炎症反应[J]. 动物营养学报, 2023, 35(7):4632-4642.

DOI

ZHAO X H, SI W, ZHAO Q Y, et al. Glycyrrhizin alleviates lipopolysaccharide-induced inflammatory response in IPEC-J2 cells via c-Jun N-terminal protein kinase pathway[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4632-4642. (in Chinese)

DOI

[27]
LIU J J, STOLER-BARAK L, HEZRONI-BRAVYI H, et al. Turbinate-homing IgA-secreting cells originate in the nasal lymphoid tissues[J]. Nature, 2024, 632(8025):637-646.

DOI

[28]
HE J, XIA C L, HE Y X, et al. Proteomic responses to oxidative damage in meat from ducks exposed to heat stress[J]. Food Chemistry, 2019, 295:129-137.

DOI PMID

[29]
GOC Z, SZAROMA W, KAPUSTA E, et al. Protective effects of melatonin on the activity of SOD,CAT,GSH-Px and GSH content in organs of mice after administration of SNP[J]. Chinese Journal Physiology, 2017, 60(1):1-10.

DOI

[30]
JIN S S, XU H X, YANG C B, et al. Regulation of oxidative stress in the intestine of piglets after enterotoxigenic Escherichia coli (ETEC) infection[J]. Biochimica et Biophysica Acta:Molecular Cell Research, 2024, 1871(5):119711.

DOI

[31]
WANG Y, ZHANG Z T, DU M, et al. Berberine alleviates ETEC-induced intestinal inflammation and oxidative stress damage by optimizing intestinal microbial composition in a weaned piglet model[J]. Frontiers in Immunology, 2024, 15:1460127.

DOI

[32]
ZHU K Y, FAN R, CAO Y C, et al. Glycyrrhizin attenuates myocardial ischemia reperfusion injury by suppressing inflammation,oxidative stress,and ferroptosis via the HMGB1-TLR4-GPX4 pathway[J]. Experimental Cell Research, 2024, 435(1):113912.

DOI

[33]
MA C, WANG F X, ZHU J W, et al. 18beta-glycyrrhetinic acid attenuates H2O2-induced oxidative damage and apoptosis in intestinal epithelial cells via activating the PI3K/Akt signaling pathway[J]. Antioxidants, 2024, 13(4):468.

DOI

[34]
BRIGELIUS-FLOHÉ R, MAIORINO M. Glutathione peroxidases[J]. Biochimica et Biophysica Acta:General Subjects, 2013, 1830(5):3289-3303.

DOI

[35]
BHATTACHARJEE S, DASHWOOD R H. Epigenetic regulation of NRF2/Keap1 by phytochemicals[J]. Antioxidants, 2020, 9(9):865.

DOI

[36]
QIU Y Q, YANG J, WANG L, et al. Dietary resveratrol attenuation of intestinal inflammation and oxidative damage is linked to the alteration of gut microbiota and butyrate in piglets challenged with deoxynivalenol[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):71.

DOI PMID

[37]
TANG X P, XIONG K N, FANG R J, et al. Weaning stress and intestinal health of piglets:a review[J]. Frontiers in Immunology, 2022, 13:1042778.

DOI

[38]
DENG Y L, HAN X F, TANG S X, et al. Magnolol and honokiol regulate the calcium-activated potassium channels signaling pathway in enterotoxigenic Escherichia coli-induced diarrhea mice[J]. European Journal of Pharmacology, 2015, 755:66-73.

DOI

[39]
XU J, JIA Z, XIAO S, et al. Effects of enterotoxigenic Escherichia coli challenge on jejunal morphology and microbial community profiles in weaned crossbred piglets[J]. Microorganisms, 2023, 11(11):2646.

DOI

[40]
FÖRSTER C. Tight junctions and the modulation of barrier function in disease[J]. Histochemistry and Cell Biology, 2008, 130(1):55-70.

DOI PMID

[41]
HOROWITZ A, CHANEZ-PAREDES S D, HAEST X, et al. Paracellular permeability and tight junction regulation in gut health and disease[J]. Nature Reviews Gastroenterology & Hepatology, 2023, 20(7):417-432.

[42]
VALDES A M, WALTER J, SEGAL E, et al. Role of the gut microbiota in nutrition and health[J]. BMJ, 2018,361:k2179.

[43]
BERRY D. The emerging view of Firmicutes as key fibre degraders in the human gut[J]. Environmental Microbiology, 2016, 18(7):2081-2083.

DOI PMID

[44]
MARIAT D, FIRMESSE O, LEVENEZ F, et al. The firmicutes/bacteroidetes ratio of the human microbiota changes with age[J]. BMC Microbiology, 2009, 9:123.

DOI PMID

[45]
LEY R E, TURNBAUGH P J, KLEIN S, et al. Microbial ecology:human gut microbes associated with obesity[J]. Nature, 2006, 444(7122):1022-1023.

DOI

[46]
WANG S, LI X Y, JI H F, et al. Modulation of gut microbiota by glycyrrhizic acid may contribute to its anti-NAFLD effect in rats fed a high-fat diet[J]. Life Sciences, 2022, 310:121110.

DOI

[47]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

DOI

[48]
ZHENG Y X, ZHAO J R, NIE X Y, et al. Mutual adhesion of Lactobacillus spp. to intestinal cells:a review of perspectives on surface layer proteins and cell surface receptors[J]. International Journal of Biological Macromolecules, 2024, 282(Pt 4):137031.

DOI

文章导航

/