研究论文

甘草提取物对长期摄入玉米赤霉烯酮导致家兔肠道菌群紊乱的调节作用

  • 王雨 , 1 ,
  • 李涛 1 ,
  • 解红梅 1 ,
  • 李明勇 2 ,
  • 王召朋 2 ,
  • 刘曼 2 ,
  • 屈平平 , 1, *
展开
  • 1 山东畜牧兽医职业学院, 潍坊 261000
  • 2 青岛康大兔业发展有限公司, 青岛 266400
* 屈平平,讲师,E-mail:

王 雨(1991—),女,山东五莲人,助教,硕士,研究方向为动物生殖与免疫。E-mail:

收稿日期: 2025-04-10

  网络出版日期: 2025-12-13

基金资助

2024年潍坊市科技发展项目——甘草提取物防控家兔玉米赤霉烯酮中毒的研究(2024GX050)

山东省特种经济动物产业技术体系(SDAIT-21-03)

山东省职业教育技能大师工作室

Regulatory Effects of Glycyrrhiza Extract on Intestinal Microbiota Disorders in Rabbits Induced by Long-Term Zearalenone Intake

  • WANG Yu , 1 ,
  • LI Tao 1 ,
  • XIE Hongmei 1 ,
  • LI Mingyong 2 ,
  • WANG Zhaopeng 2 ,
  • LIU Man 2 ,
  • QU Pingping , 1, *
Expand
  • 1 Shandong Vocational Animal Science and Veterinary College, Weifang 261000, China
  • 2 Qingdao Kangda Rabbit Industry Development Co., Ltd., Qingdao 266400, China
* lecturer, E-mail:

Received date: 2025-04-10

  Online published: 2025-12-13

摘要

本试验旨在研究甘草提取物对长期摄入玉米赤霉烯酮(ZEN)导致家兔肠道菌群紊乱的调节作用。选取120只35日龄伊拉肉兔,随机分成4个组,每组30只(公母各占1/2)。对照组(C组)饲喂基础饲粮,玉米赤霉烯酮组(Z组)饲喂基础饲粮+5.0 mg/kg ZEN,甘草提取物组(G组)饲喂基础饲粮+0.4 g/kg甘草提取物,甘草提取物+玉米赤霉烯酮组(GZ组)饲喂基础饲粮+5.0 mg/kg ZEN+0.4 g/kg甘草提取物。预试期3 d,正试期42 d。结果表明:Z组的总操作分类单元(OTU)数目在第14天至第28天下降,第42天升高,独有OTU数目占比升至55.1%;第14天的厚壁菌门相对丰度较低,拟杆菌门和变形菌门相对丰度较高;第42天的瘤胃球菌属相对丰度降至5.0%。G组的总OTU数目在第28天达到峰值,疣微菌门和阿克曼菌属相对丰度在第42天达到峰值,瘤胃球菌属相对丰度在第28天达到峰值。GZ组第42天总OTU数目增加;厚壁菌门相对丰度在第42天达到峰值,但其他菌门相对丰度较低;拟杆菌属相对丰度在第14天达到峰值。由此可见,ZEN会抑制厚壁菌门和纤维降解菌的增殖,促进致病菌的增殖,长期摄入会可导致耐受性群落形成及功能紊乱;饲粮中添加甘草提取物能短期有效提升抗炎菌(拟杆菌门)和纤维降解菌(瘤胃球菌属)相对丰度,缓解ZEN的抑制作用,但长期摄入存在菌群结构单一化风险。

本文引用格式

王雨 , 李涛 , 解红梅 , 李明勇 , 王召朋 , 刘曼 , 屈平平 . 甘草提取物对长期摄入玉米赤霉烯酮导致家兔肠道菌群紊乱的调节作用[J]. 动物营养学报, 2025 , 37(12) : 8565 -8574 . DOI: 10.12418/CJAN2025.697

Abstract

This experiment was conducted to investigate the regulatory effects of glycyrrhiza extract on intestinal microbiota disorders in rabbits induced by long-term zearalenone (ZEN) intake. One hundred and twenty 35-day-old Ira meat rabbits were randomly divided into 4 groups with 30 rabbits per group (half male and half female). The control group (group C) was fed a basal diet, the zearalenone group (group Z) was fed a basal diet+5.0 mg/kg ZEN, the glycyrrhiza extract group (group G) was fed a basal diet+0.4 g/kg glycyrrhiza extract, and glycyrrhiza extract+zearalenone group (group GZ) was fed a basal diet+5.0 mg/kg ZEN+0.4 g/kg glycyrrhiza extract. The pre-experimental period lasted for 3 days, and the experimental period lasted for 42 days. The results showed that the total operational taxonomic units (OTU) number of group Z decreased from day 14 to day 28, increased on day 42, and the proportion of unique OTU increased to 55.1%; the Firmicutes relative abundance on day 14 was lower, while the Bacteroidetes and Proteobacteria relative abundances were higher; the Ruminococcus relative abundance on day 42 reduced to 5.0%. The total OTU number of group G reached peak on day 28, the Verrucomicrobia and Akkermansia relative abundances reached peak on day 42, and the Ruminococcus relative abundance reached peak on day 28. The total OTU number of group GZ increased on day 42; the Firmicutes relative abundance reached peak on day 42, while others were lower; the Bacteroides relative abundance reached peak on day 14. In conclusion, ZEN inhibits the proliferation of Firmicutes and fiber degrading bacteria, promotes the proliferation of pathogenic bacteria, and long-term intake can lead to the formation of tolerant communities and functional disorders; adding glycyrrhiza extract in diet can effectively increase the relative abundance of anti-inflammatory bacteria (Bacteroidetes) and fiber-degrading bacteria (Ruminococcus) in the short term, alleviating the inhibitory effect of ZEN, but long-term intake carries the risk of microbial community simplification.

玉米赤霉烯酮(zearalenone,ZEN)是一种由镰刀菌属真菌产生的非甾体雌激素性真菌毒素,它不溶于水,遇热稳定,普遍存在于受污染的谷物制成的食品和饲料中。据报道,我国畜禽饲料ZEN的污染较为严重,个体发生率大于88%,平均含量达到2.3~729.2 μg/kg[1]。ZEN在诱导性早熟等生殖毒理学效应中起主要作用[2-3],并可能是人类某些妊娠疾病的关键诱因[4-5]。此外,ZEN还具有肝毒性、肾毒性、血液毒性、遗传毒性和免疫毒性等[6-7]。ZEN会降低饲料的转化效率,损害畜禽的生长发育和健康,给畜牧业造成巨大的经济损失[8]。甘草(Glycyrrhiza uralensis Fisch.)属豆科多年生草本植物,含有多糖类、黄酮类、三萜类等生物活性物质[9]。甘草及其生物活性提取物具有解毒、抗炎、镇咳、治疗溃疡、抗肿瘤、抗氧化、抗菌、抗病毒、提高生长性能、调节肠道菌群、增强机体免疫力等作用[10-12]。ZEN作为一种常见的霉菌毒素,已被广泛证实不仅导致动物生长性能下降、肝脏和肾脏功能受损,还会扰乱肠道菌群结构,破坏菌群平衡(如降低菌群多样性、增加有害菌相对丰度、减少有益菌相对丰度),进而损害肠道屏障功能和机体健康[13-14]。虽然甘草提取物在解毒(尤其针对多种毒素)和抗炎方面作用明确,且部分研究提示其生物活性成分(如多糖类、黄酮类)可能通过影响微生物生长环境或直接作用于特定菌株来调节菌群,但其对特定动物(如家兔)肠道菌群的具体调节效应,特别是针对ZEN暴露下菌群紊乱的修复或保护作用,目前研究报道甚少。因此,本研究通过系统评估长期摄入ZEN家兔在添加甘草提取物后肠道菌群结构、多样性及关键菌群的变化,旨在明确甘草提取物是否能够调节ZEN中毒引起的肠道菌群失衡,以期为新型绿色的中草药植物提取物在家兔饲粮中的应用提供更多理论参考。

1 材料与方法

1.1 试验材料

ZEN纯度为98%。甘草提取物主要成分为甘草酸(7.5%)、甘草异酸(1.6%)、甘草苷(0.6%)和葡萄糖醛酸(3.2%)。

1.2 试验设计和饲养管理

本研究已获得山东畜牧兽医职业学院试验动物伦理委员会批准(伦理审批号:AWE20241018)。试验选取120只35日龄健康伊拉肉兔,随机分为4组,每组30只(公母各占1/2)。对照组(C组)饲喂基础饲粮,玉米赤霉烯酮组(Z组)饲喂基础饲粮+5.0 mg/kg ZEN,甘草提取物组(G组)饲喂基础饲粮+0.4 g/kg甘草提取物,甘草提取物+玉米赤霉烯酮组(GZ组)饲喂基础饲粮+5.0 mg/kg ZEN+0.4 g/kg甘草提取物。基础饲粮参考《肉兔营养需要量》(NY/T 4049—2021)[15]配制,其组成及营养水平见表1。每天分别于08:00、18:00各饲喂1次,自由采食、饮水,自然通风、光照。预试期3 d,正试期42 d。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
玉米粉Corn powder 22 消化能DE/(MJ/kg) 10.20
小麦次粉Wheat middling 18 粗蛋白质CP 15.80
豆粕Soybean meal 10 粗纤维CF 16.50
苜蓿草粉Alfalfa meal 12 粗脂肪EE 3.70
花生秧粉Peanut seedling powder 12 中性洗涤纤维NDF 38.30
花生壳粉Peanut shell powder 8 酸性洗涤纤维ADF 21.60
大蒜皮Garlic peel 8 钙Ca 0.58
豆秸粉Beanstalk meal 4 总磷TP 0.36
青蒿粉Artemisia annua powder 2 赖氨酸Lys 0.65
葡萄糖Glucose 2 蛋氨酸+胱氨酸Met+Cys 0.52
预混料Premix1) 2
合计Total 100

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Fe 80 mg,Cu 20 mg,Zn 90 mg,Mn 9 mg,Se 0.15 mg,Co 0.2 mg,VA 4 000 IU,VD 3 000 IU,VE 50 mg,VK 2.25 mg,胆碱 choline 1 mg,D-泛酸 D-pantothenic acid 15 mg,叶酸 folic acid 1.2 mg,地克珠利 dikezhuli 1 mg。

2)消化能为和氨基酸计算值[15],其余为实测值。DE and amino acids were calculated values[15], while the others were measured values.

1.3 样品采集及指标测定

1.3.1 样品的采集

分别在正式试验第14天、第28天和第42天,每组随机处死5只试验兔,采集盲肠样本。采样前,使用无菌缝合线结扎盲肠两端,避免盲肠内容物被污染,采集各组盲肠内容物(200~500 mg),放置于2 mL EP管内,液氮冷冻,然后转移至-80 ℃超低温冰箱保存。

1.3.2 饲粮营养成分

粗蛋白质含量参照GB/T 6432—2018的方法测定,粗纤维含量参照GB/T 6434—2006的方法测定,粗脂肪含量参照GB/T 6433—2006的方法测定,中性洗涤纤维含量参照GB/T 20806—2022的方法测定,酸性洗涤纤维含量参照NY/T 1459—2022的方法测定,钙含量参照GB/T 6436—2018的方法测定,总磷含量参照GB/T 6437—2018的方法测定。

1.3.3 盲肠微生物组总DNA提取

使用QIAamp Fast DNA Stool Mini Kit(德国QIAGEN公司)提取细菌基因组总DNA,具体操作按说明书进行。取少量DNA样品,通过0.8%琼脂糖凝胶电泳检测其完整性,并采用NanoDrop紫外分光光度计(美国Thermo Fisher Scientific公司)测定其浓度和纯度。经质检合格的DNA样品于-20 ℃保存备用。

1.3.4 目标片段PCR扩增

以细菌16S rRNA基因的V3~V4可变区为目标片段,对家兔盲肠内容物细菌DNA进行PCR扩增。
第1轮扩增(文库构建):使用通用引物对细菌DNA进行PCR扩增。反应体系(30 μL)包含:2×Hieff® Robust PCR Master Mix 15 μL,正向引物1 μL,反向引物1 μL,模板DNA 10~20 ng,使用Nuclease-free H2O补足至30 μL。反应程序:95 ℃预变性3 min,94 ℃变性20 s,55 ℃退火20 s,72 ℃延伸30 s,72 ℃、5 min循环5次。
第2轮扩增(index添加):在上轮产物基础上,使用带index序列的Illumina兼容引物进行PCR扩增。反应体系(30 μL)包含:2×Hieff® Robust PCR Master Mix 15 μL,正向引物1 μL,带index反向引物1 μL,第1轮PCR产物(模板)20~30 ng,使用Nuclease-free H2O补足至30 μL。反应程序与第1轮相同。

1.3.5 建库测序

DNA样品扩增检测合格后,进行PCR产物的混合和纯化,再经末端修复、加A尾、加测序接头、纯化等步骤完成文库制备。构建好的文库经过QuantiFluorTM-ST蓝色荧光定量系统(美国Promega公司)进行PCR定量,文库合格后进行上机测序。

1.4 统计分析

测序得到的原始数据进行拼接、过滤,得到有效数据,通过DADA2或deblur进行降噪,从而获得最终的操作分类单位(OTU)。一方面,对OTU进行相对丰度、alpha多样性计算、Venn图和花瓣图等分析,得到样本内物种丰富度和均匀度信息、不同样本或分组间的共有和特有OTU信息等;另一方面,对OTU进行多序列比对并构建系统发育树,通过主坐标分析(principal co-ordinates analysis,PCoA)等降维分析和样本聚类树展示,探究不同样本或组别间菌群结构的差异。

2 结果与分析

2.1 稀释曲线

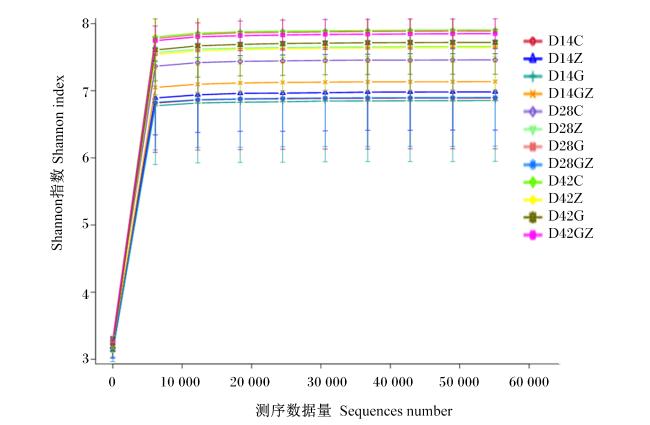
稀释曲线是常见的描述组内样本多样性的曲线,横轴代表测序数据量,纵轴代表对应alpha多样性指数。当曲线趋向平坦时,说明测序数据量渐进合理,更多的数据量也不会对alpha多样性指数有显著的影响。由图1可知,随着测序数据量的增加,Shannon指数不再升高,曲线趋于平缓,表明本次测序样本量充分,测序可以覆盖大多数细菌,测序结果可以较准确代表真实情况。
图1 物种稀释曲线

D14C:第14天C组 group C at day 14;D14Z:第14天Z组 group Z at day 14;D14G:第14天G组 group G at day 14;D14GZ:第14天GZ组 group GZ at day 14;D28C:第28天C组 group C at day 28;D28Z:第28天Z组 group Z at day 28;D28G:第28天G组 group G at day 28;D28GZ:第28天GZ组 group GZ at day 28;D42C:第42天C组 group C at day 42;D42Z:第42天Z组 group Z at day 42;D42G:第42天G组 group G at day 42;D42GZ:第42天GZ组 group GZ at day 42。下图同 the same as below。

Fig.1 Species rarefaction curve

2.2 家兔盲肠菌群的OTU分析

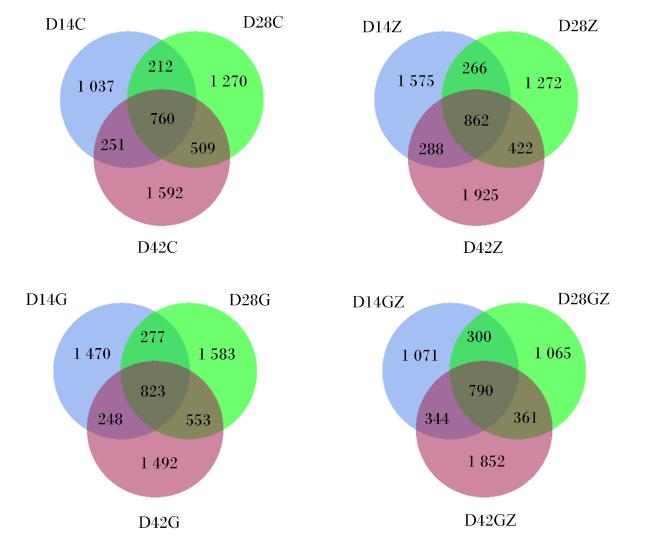
图2可知,C组在第14天、第28天、第42天的总OTU数目分别为2 260、2 751、3 112个,其中第14天、第28天、第42天的独有OTU数目分别为1 037、1 270、1 592个,总OTU数目从试验第14天持续增长至第42天,独有OTU数目占比从45.9%升至51.2%。Z组在第14天、第28天、第42天的总OTU数目分别为2 991、2 822、3 497个,其中第14天、第28天、第42天的独有OTU数目分别为1 575、1 272、1 925个,总OTU数目从第14天至第28天下降了5.7%,从第28天至第42天增长了23.9%,独有OTU数目占比在第42天达55.1%。G组在第14天、第28天、第42天的总OTU数目分别为2 818、3 236、3 116个,其中第14天、第28天、第42天的独有OTU数目分别为1 470、1 583、1 492个,总OTU数目在第28天时最高。GZ组在第14天、第28天、第42天的总OTU数目分别为2 505、2 516、3 347个,其中第14天、第28天、第42天的独有OTU数目分别为1 071、1 065、1 852个,总OTU数目从第14天至第28天增长缓慢,第42天时总OTU数目增加了32.9%,独有OTU数目占比在第42天达55.4%。
图2 各组在第14天、第28天、第42天的盲肠菌群OTU数目

Fig.2 OTU number of cecal microbiota on day 14,day 28 and day 42 of each group

2.3 ZEN对家兔盲肠菌群alpha多样性的影响

表2可知,各组样本的测序覆盖度均≥0.999,表明测序深度足够,数据可靠性高,能够真实反映样本的微生物群落情况。C组从第14天至第42天,Shannon指数由8.580升至9.128,Chao1指数由2 286.053升至3 166.698,均随试验时间增加而升高。各组在不同时间表现出不同特点:第14天时,Z组和G组的Chao1指数分别为3 052.621和2 864.205,均高于C组(2 286.053),但其Pielou均匀度和Shannon指数反而较低。第28天时,G组的Chao1指数(3 281.887)和Shannon指数(9.142)达到同期所有组别中的最高水平。第42天时,Z组的Chao1指数(3 588.463)变为最高,而GZ组的Pielou均匀度(0.789)和Shannon指数(9.232)与C组最为接近,且2组的Dominance指数最低,均为0.005。

2.4 ZEN对家兔盲肠菌群beta多样性的影响

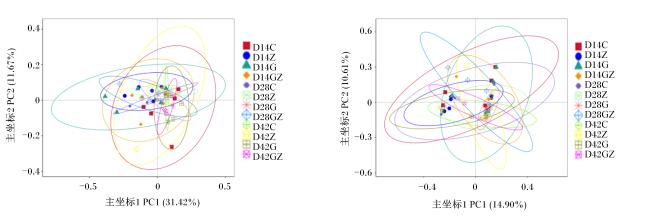
图3所示,基于Weighted Unifrac距离的PCoA可以看出,C组在第14天样本分散,第28天部分聚集,第42天向主坐标1(PC1)负方向偏移,反映菌群随宿主生长逐步稳定。Z组在第14天样本分散且部分位于PC1负方向,提示ZEN初期引发群落紊乱;第42天样本向PC1正方向移动,接近C组,可能耐受菌发生增殖。G组在第14天和第42天在主坐标2(PC2)正方向分离,反映甘草对特定菌群的长期促进作用。GZ组在第14天和第28天样本部分重叠。
图3 二维PCoA图(左:基于Weighted Unifrac距离;右:基于Unweighted Unifrac距离)

Fig.3 Two-dimensional PCoA graphs (left: based on Weighted Unifrac distance; right:based on Unweighted Unifrac distance)

基于Unweighted Unifrac距离的PCoA可以看出,C组在第14天至第42天沿PC1正方向移动,反映优势菌群相对丰度逐步增长。Z组在试验第42天在PC2负方向远离其他组,提示ZEN后期改变优势菌群结构。G组在第42天在PC1负方向聚集,可能与甘草促进的独特菌群相关。
表2 ZEN对家兔盲肠菌群alpha多样性的影响

Table 2 Effects of ZEN on alpha diversity of cecal microbiota of rabbits

项目
Items
Chao1指数
Chao1 index
Dominance
指数
Dominance
index
覆盖度
Goods
coverage
Observed
features指数
Observed features
index
Pielou
均匀度
Pielou
evenness
Shannon
指数
Shannon
index
Simpson指数
Simpson
index
D14C 2 286.053 0.007 1.000 2 260 0.770 8.580 0.993
D14Z 3 052.621 0.010 0.999 2 991 0.726 8.381 0.990
D14G 2 864.205 0.010 0.999 2 818 0.736 8.430 0.990
D14GZ 2 530.227 0.007 1.000 2 505 0.767 8.654 0.993
D28C 2 787.218 0.006 0.999 2 751 0.774 8.841 0.994
D28Z 2 849.878 0.006 1.000 2 822 0.771 8.837 0.994
D28G 3 281.887 0.006 0.999 3 236 0.784 9.142 0.994
D28GZ 2 556.623 0.008 0.999 2 516 0.743 8.391 0.992
D42C 3 166.698 0.005 0.999 3 112 0.787 9.128 0.995
D42Z 3 588.463 0.008 0.999 3 497 0.759 8.940 0.992
D42G 3 171.705 0.006 0.999 3 116 0.778 9.025 0.994
D42GZ 3 403.601 0.005 0.999 3 347 0.789 9.232 0.995

D14C:第14天C组 group C at day 14;D14Z:第14天Z组 group Z at day 14;D14G:第14天G组 group G at day 14;D14GZ:第14天GZ组 group GZ at day 14;D28C:第28天C组 group C at day 28;D28Z:第28天Z组 group Z at day 28;D28G:第28天G组 group G at day 28;D28GZ:第28天GZ组 group GZ at day 28;D42C:第42天C组 group C at day 42;D42Z:第42天Z组 group Z at day 42;D42G:第42天G组 group G at day 42;D42GZ:第42天GZ组 group GZ at day 42。

2.5 ZEN对家兔盲肠菌群结构的影响

2.5.1 门水平的盲肠菌群结构

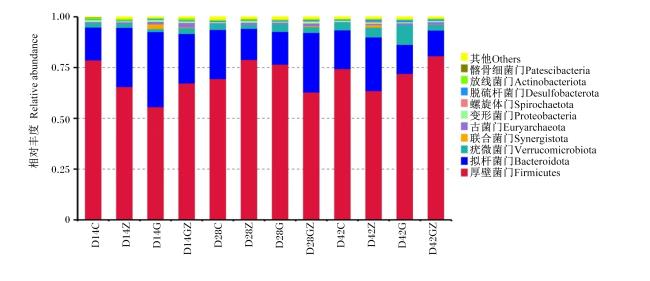
图4所示,在盲肠菌群门水平上,各组第14天、第28天、第42天的厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidota)占据绝对优势,两者合计相对丰度普遍超过85%,厚壁菌门相对丰度在53.9%~80.7%,拟杆菌门相对丰度相对在12.7%~37.0%,与厚壁菌门呈竞争关系。G组在第42天的疣微菌门(Verrucomicrobiota)相对丰度最高(9.7%)。各组第14天、第28天、第42天的变形菌门(Proteobacteria)相对丰度普遍较低(0.4%~1.1%)。GZ组在第14天的古菌门(Euryarchaeota)相对丰度最高(2.3%)。
图4 门水平的盲肠菌群结构

Fig.4 Structure of cecal microbiota at phylum level

C组第14天、第28天、第42天的厚壁菌门相对丰度较高(74.3%~78.7%),其他(others)菌门相对丰度较低(0.2%~1.4%)。Z组在第14天的厚壁菌门相对丰度(65.5%)低于C组(78.7%)。G组在第14天的拟杆菌门的相对丰度(37.0%)高于C组(16.2%),G组疣微菌门的相对丰度随试验时间延长而持续增加,至第42天时达到9.7%,明显高于同期C组(3.9%)。GZ组在第42天厚壁菌门相对丰度最高(80.7%),但其他菌门相对丰度最低(0.7%)。

2.5.2 属水平的盲肠菌群结构

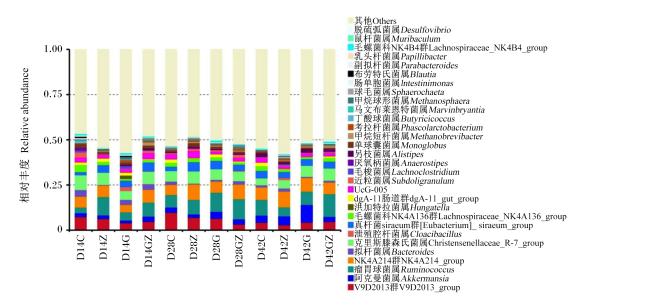
图5所示,C组、Z组和G组在第14天、第28天、第42天的阿克曼菌属(Akkermansia)相对丰度逐渐升高,分别为2.1%、2.9%、3.9%,2.0%、1.9%、4.9%,1.5%、3.8%、9.7%。C组和G组在第28天的瘤胃球菌属(Ruminococcus)相对丰度较高,分别为6.9%和10.5%;Z组在第14天、第28天、第42天的瘤胃球菌属相对丰度持续下降,分别为10%、8.0%、5.0%;G组在第28天的瘤胃球菌属相对丰度达峰值,为10.5%,在第42天又降低至7.3%。GZ组在第14天的拟杆菌属(Bacteroides)相对丰度最高(7.7%)。GZ组在第28天的毛螺菌科NK4A136群(Lachnospiraceae_NK4A136_group)相对丰度较高(11.1%)。对于其他菌属,C组在第14天、第28天、第42天相对丰度为62%~64%,Z组在第42天相对丰度最高(66.2%),G组在第42天相对丰度最低(59.4%),GZ组在第14天相对丰度最高(59.8%)。
图5 属水平的盲肠菌群结构

Fig.5 Structure of cecal microbiota at genus level

3 讨论

肠道菌群是一个特定的微生物群落,它帮助消化食物和吸收营养物质,促进免疫系统发育,调节新陈代谢,防止有害细菌的生长[16-18]。微生物是宿主生态系统和代谢能力的重要组成部分,成为宿主在时间和空间中生存和持续存在的基本要素。研究表明,家兔肠道菌群的组成趋于稳定[19-20],并且盲肠菌群从出生后由一个简单而不稳定的群落逐渐发展为一个复杂的顶极群落[21]。本研究显示,C组的alpha多样性指数(Shannon指数、Chao1指数)随家兔生长而升高,alpha多样性指数用于评估微生物群落的物种多样性,其中Chao1指数是估计样本中的物种总数,其越高表示物种丰富度越高,Shannon指数能综合反映物种丰富度和均匀度的多样性指标,其越高表示群落多样性越高,同时总OTU数目及独有物种比例也逐步增加,表明盲肠菌群复杂度与宿主生理成熟密切相关。本研究发现,家兔盲肠菌群结构主要由厚壁菌门和拟杆菌门的竞争关系所主导,其中厚壁菌门在整个试验期间均占据优势,这一结果符合家兔盲肠作为纤维降解核心器官的生理功能定位,与Carabaño[22]研究结果一致。隶属于厚壁菌门的瘤胃球菌属是一种关键的纤维降解菌,其相对丰度在第28天达到峰值,这一动态变化反映了随着日龄增长,家兔盲肠纤维降解能力的逐步提升。瘤胃球菌属等纤维降解菌通过发酵膳食纤维产生短链脂肪酸(SCFAs)。SCFAs对宿主的生长性能、代谢效率及疾病防控具有至关重要的作用[23]。本研究观测到的瘤胃球菌属相对丰度峰值,为本试验家兔盲肠高效的纤维降解功能及其伴随的SCFAs生产潜力提供了直接证据。
研究发现,ZEN能影响家兔盲肠菌群的平衡,减少某些具有重要代谢功能的细菌的数量[13]。本研究显示,在门水平上,Z组在第14天厚壁菌门相对丰度占65.5%,低于此时C组厚壁菌门相对丰度(78.7%),表明ZEN抑制厚壁菌门的增殖,同时拟杆菌门和变形菌门相对丰度增加,这与Li等[24]的研究结果一致。虽然变形菌门是家兔后肠微生物群落中的一个次要组成部分[25],但它包含了许多致病菌,如大肠杆菌、沙门氏菌和霍乱弧菌,据报道,变形菌群相对丰度的增加与严重的肠道炎症有关,这是上皮功能障碍的潜在诊断微生物特征[26]。本试验中,在属水平上,瘤胃球菌属相对丰度减少,可导致盲肠发酵效率下降;阿克曼菌属相对丰度增加,可能因毒素诱导的黏液分泌增加或pH变化,间接促进黏液降解菌生长,可能与宿主-菌群的适应性调节有关。同时,其他菌属相对丰度升高,反映菌群结构紊乱,潜在致病菌或未分类菌属相对丰度增加。因此,ZEN可能会导致家兔纤维降解能力下降及炎症风险增加。
研究表明,类黄酮可以通过减少致病菌和增加有益菌(如乳杆菌和双歧杆菌)来调节肠道微生物群,通过减少内毒素的产生来抑制Toll样受体4(TLR4)介导的炎症反应,从而促进肠道健康[27]。研究发现,甘草提取物能改善糖尿病小鼠结肠炎症并重塑肠道菌群,在属水平上降低毛螺菌科NK4A136群的相对丰度,同时增加拟普雷沃菌属(Alloprevotella)、拟杆菌属和阿克曼菌属的相对丰度[28]。这与本次研究结果一致,本研究发现,G组中阿克曼菌属相对丰度在试验末期(第42天)、瘤胃球菌属相对丰度在试验中期(第28天)均增加,这些变化(增加抗炎相关的拟杆菌属、纤维降解相关的瘤胃球菌属以及具有屏障保护作用的阿克曼菌属相对丰度)表明甘草提取物能显著改善盲肠菌群结构,增强肠道屏障功能与纤维降解能力。但在第42天时菌群多样性下降,这提示长期单一使用甘草提取物可能导致菌群适应性变化或生态位简化,若要持续改善菌群可能需要结合间歇性给药或补充益生菌等策略来维持。针对生产中常见的畜禽ZEN中毒,利用甘草提取物进行干预的研究较少。本研究发现,在家兔ZEN中毒后补充甘草提取物(GZ组),拟杆菌属相对丰度在第14天时达到最高,鉴于拟杆菌属参与多糖代谢与免疫调节,此试验结果提示甘草提取物在干预早期增强抗炎作用,有助于缓解ZEN的毒素效应。然而,GZ组同样存在群落复杂度低的问题,这表明厚壁菌门可能占据极端优势地位,会掩盖其他功能菌群(如产甲烷菌)的作用,导致代谢通路依赖性增强。同时,GZ组的独有OTU数目占比高,反映了群落可塑性下降(即菌群结构更单一、稳定性可能降低)。

4 结论

① ZEN通过破坏家兔盲肠菌群稳态发挥其毒性作用,如抑制厚壁菌门及纤维降解菌(如瘤胃球菌属)增殖,促进致病菌定植;长期ZEN诱导形成低多样性、高耐受性的菌群结构,导致代谢功能紊乱。
② 饲粮中添加甘草提取物短期(14~28 d)能够提升抗炎菌(拟杆菌门)和纤维降解菌(瘤胃球菌属)的相对丰度,有效拮抗ZEN对有益菌群的抑制;长期(42 d)或中毒状态下(GZ组)使用,则可能加剧菌群结构简化。
[1]
MA R, ZHANG L, LIU M, et al. Individual and combined occurrence of mycotoxins in feed ingredients and complete feeds in China[J]. Toxins, 2018, 10(3):113.

DOI

[2]
HAN X, HUANGFU B X, XU T X, et al. Research progress of safety of zearalenone:a review[J]. Toxins, 2022, 14(6):386.

DOI

[3]
EDUPUGANTI S R, EDUPUGANTI O P, O’KENNEDY R. Generation of anti-zearalenone scFv and its incorporation into surface plasmon resonance-based assay for the detection of zearalenone in sorghum[J]. Food Control, 2013, 34(2):668-674.

DOI

[4]
PERSHAD K, SULLIVAN M A, KAY B K. Drop-out phagemid vector for switching from phage displayed affinity reagents to expression formats[J]. Analytical Biochemistry, 2011, 412(2):210-216.

DOI PMID

[5]
ZHAO X, ZHANG Z J, HU B, et al. Response of gut microbiota to metabolite changes induced by endurance exercise[J]. Frontiers in Microbiology, 2018, 9:765.

DOI PMID

[6]
JIANG S Z, YANG Z B, YANG W R, et al. Effects of purified zearalenone on growth performance,organ size,serum metabolites,and oxidative stress in postweaning gilts[J]. Journal of Animal Science, 2011, 89(10):3008-3015.

DOI

[7]
TSOULOUFI T K, TSAKMAKIDIS I A, TSOUSIS G, et al. The effect of subchronic oral exposure to zearalenone on hematologic and biochemical analytes,and the blood redox status of adult rabbit bucks[J]. Veterinary Clinical Pathology, 2019, 48(2):328-334.

DOI

[8]
LIU T F, LIU G C, XU Y H, et al. Zearalenone induces blood-testis barrier damage through endoplasmic reticulum stress-mediated paraptosis of sertoli cells in goats[J]. International Journal of Molecular Sciences, 2023, 25(1):553.

DOI

[9]
黄莉, 张庆霞, 梁小军, 等. 甘草及其提取物的生物学功能及在动物生产中应用研究进展[J]. 饲料研究, 2023, 46(14):164-167.

HUANG L, ZHANG Q X, LIANG X J, et al. Research progress on biological functions of licorice and its extracts and its application in animal production[J]. Feed Research, 2023, 46(14):164-167. (in Chinese)

[10]
韩维维, 方东军, 李陆军, 等. 甘草化学成分及生物活性研究进展[J]. 化学工程师, 2022, 36(2):56-58,67.

HAN W W, FANG D J, LI L J, et al. Research progress on chemical constituents and biological activities of Glycyrrhiza uralensis Fisch.[J]. Chemical Engineer, 2022, 36(2):56-58,67. (in Chinese)

[11]
王波, 王丽, 刘晓峰, 等. 中药甘草成分和药理作用及其现代临床应用的研究进展[J]. 中国医药, 2022, 17(2):316-320.

WANG B, WANG L, LIU X F, et al. Research progress on the components,pharmacological effects and modern clinical application of radix glycyrrhiza[J]. China Medicine, 2022, 17(2):316-320. (in Chinese)

[12]
王世苗, 张晓妍, 李紫薇. 甘草黄酮提取分离及药理活性研究进展[J]. 伊犁师范大学学报(自然科学版), 2021, 15(4):35-42.

WANG S M, ZHANG X Y, LI Z W. Research progress on extraction,separation and pharmacological activity of flavonoids from glycyrrhiza[J]. Journal of Yili Normal University (Natural Science Edition), 2021, 15(4):35-42. (in Chinese)

[13]
张鑫. 玉米赤霉烯酮对家兔生长,肝肾功能,免疫和肠道菌群的影响[D]. 硕士学位论文. 沈阳: 沈阳农业大学, 2018.

ZHANG X. Effects of zearalenone on growth,liver and kidney function,immunity and intestinal microflora in rabbits[D]. Master’s Thesis. Shenyang: Shenyang Agricultural University, 2018. (in Chinese)

[14]
颜琼娴, 陈文勋, 惠浩阳, 等. 玉米赤霉烯酮对山羊生长性能、胃肠道发酵模式和菌群结构的影响研究[J]. 畜牧兽医学报, 2023, 54(3):1109-1123.

DOI

YAN Q X, CHEN W X, HUI H Y, et al. Effects of zearalenone on growth performance,gastrointestinal fermentation and microbiota community structure of goats[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(3):1109-1123. (in Chinese)

[15]
中华人民共和国农业农村部. 肉兔营养需要量:NY/T 4049—2021[S]. 北京: 中国农业出版社, 2022.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China. Nutrient requirements of meat rabbit:NY/T 4049—2021[S]. Beijing: China Agriculture Press, 2022.

[16]
WANG B T, KONG Q M, LI X, et al. A high-fat diet increases gut microbiota biodiversity and energy expenditure due to nutrient difference[J]. Nutrients, 2020, 12(10):3197.

DOI

[17]
SHI N, LI N, DUAN X W, et al. Interaction between the gut microbiome and mucosal immune system[J]. Military Medical Research, 2017, 4:14.

DOI PMID

[18]
CHOI H, RAO M C, CHANG E B. Gut Microbiota as a transducer of dietary cues to regulate host circadian rhythms and metabolism[J]. Nature Reviews:Gastroenterology & Hepatology, 2021, 18(10):679-689.

[19]
MICHELLAND R J, COMBES S, MONTEILS V, et al. Molecular analysis of the bacterial community in digestive tract of rabbit[J]. Anaerobe, 2010, 16(2):61-65.

DOI PMID

[20]
YANG C L, MI L, HU X L, et al. Investigation into host selection of the cecal acetogen population in rabbits after weaning[J]. PLoS One, 2016, 11(7):e0158768.

DOI

[21]
COMBES S, MICHELLAND R J, MONTEILS V, et al. Postnatal development of the rabbit caecal microbiota composition and activity[J]. FEMS Microbiology Ecology, 2011, 77(3):680-689.

DOI PMID

[22]
CARABAÑO R. Fibre digestion in rabbits:from feed to faeces[J]. Animal Feed Science and Technology, 2017, 233:3-17.

DOI

[23]
BLAS E. The role of gut microbiota in rabbit nutrition and health:a review[J]. Animals, 2020, 10(12):2345.

DOI

[24]
LI P, YANG S H, ZHANG X, et al. Zearalenone changes the diversity and composition of caecum microbiota in weaned rabbit[J]. BioMed Research International, 2018, 2018:3623274.

[25]
FU X C, ZENG B, WANG P, et al. Microbiome of total versus live bacteria in the gut of Rex rabbits[J]. Frontiers in Microbiology, 2018, 9:733.

DOI PMID

[26]
LITVAK Y, BYNDLOSS M X, TSOLIS R M, et al. Dysbiotic proteobacteria expansion:a microbial signature of epithelial dysfunction[J]. Current Opinion in Microbiology, 2017, 39:1-6.

DOI

[27]
CHENG Y, SIBUSISO L, HOU L F, et al. Sargassum fusiforme fucoidan modifies the gut microbiota during alleviation of streptozotocin-induced hyperglycemia in mice[J]. International Journal of Biological Macromolecules, 2019, 131:1162-1170.

DOI

[28]
ZHANG Y L, XU Y N, ZHANG L, et al. Licorice extract ameliorates hyperglycemia through reshaping gut microbiota structure and inhibiting TLR4/NF-κB signaling pathway in type 2 diabetic mice[J]. Food Research International, 2022, 153:110945.

DOI

文章导航

/