研究论文

葛根多糖对肉仔鸡免疫功能及脾脏基因表达的影响

  • 郑伟剑 , 1 ,
  • 张瀚文 1, * ,
  • 曾致 1 ,
  • 罗羽欣 1 ,
  • 王郡东 1 ,
  • 郝福星 2 ,
  • 王雨婷 1 ,
  • 董可 3 ,
  • 黄东璋 , 2, ** ,
  • 沈留红 , 1, **
展开
  • 1 四川农业大学动物医学院, 成都 611130
  • 2 江苏农牧科技职业学院, 泰州 225300
  • 3 四川育强本草生物技术有限公司, 成都 611130
** 黄东璋,副研究员,E-mail: ;
沈留红,教授,博士生导师,E-mail:

* 同等贡献作者

郑伟剑(1998—),男,江西九江人,硕士研究生,从事天然产物与兽医临床应用研究。E-mail:

收稿日期: 2025-06-20

  网络出版日期: 2025-12-13

基金资助

四川省科学技术厅重点研发项目(2024YFFK0146)

国家自然科学基金资助项目(32473109)

江苏农牧科技职业学院科研项目(NSF2024ZR08)

江苏农牧科技职业学院科研项目(NSF2022ZR03)

四川农业大学本科生科研兴趣培养计划项目(2025254X)

四川农业大学双支计划项目(03572174)

Effects of Pueraria lobata Polysaccharides on Immune Function and Spleen Gene Expression of Broilers

  • ZHENG Weijian , 1 ,
  • ZHANG Hanwen 1 ,
  • ZENG Zhi 1 ,
  • LUO Yuxin 1 ,
  • WANG Jundong 1 ,
  • HAO Fuxing 2 ,
  • WANG Yuting 1 ,
  • DONG Ke 3 ,
  • HUANG Dongzhang , 2, ** ,
  • SHEN Liuhong , 1, **
Expand
  • 1 College of Veterinary Medicine, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Jiangsu Agri-Animal Husbandry Vocational College, Taizhou 225300, China
  • 3 Sichuan Yuqiang Bencao Biotechnology Co., Ltd., Chengdu 611130, China
** HUANG Dongzhang, associate professor, E-mail: ;
SHEN Liuhong, professor, E-mail:

* Contributed equally

Received date: 2025-06-20

  Online published: 2025-12-13

摘要

本试验旨在研究葛根多糖(PLP)对肉仔鸡免疫功能及脾脏基因表达的影响。选取336只体重为(42.31±0.94) g的1日龄爱拔益加(AA)肉仔鸡,随机分为4组,每组6个重复,每个重复14只。对照组(NC-A组)饲喂基础饲粮,试验组分别在基础饲粮中添加100(PLP-L组)、200(PLP-M组)和400 mg/kg(PLP-H组)PLP。试验期35 d。检测7、14、21、28、35日龄肉仔鸡免疫器官指数及组织形态、外周血淋巴细胞增殖活性、血清免疫球蛋白及细胞因子含量,并取28日龄肉仔鸡脾脏组织进行转录组学测序与比较分析。结果表明:1)与NC-A组相比,PLP-L组28、35日龄胸腺指数显著升高(P<0.05);PLP-M组21~35日龄胸腺指数显著升高(P<0.05),21、28日龄法氏囊指数显著升高(P<0.05),28日龄脾脏指数显著升高(P<0.05);PLP-H组21~35日龄胸腺指数显著升高(P<0.05),7、28日龄脾脏指数显著升高(P<0.05)。2)与NC-A组相比,PLP-M组和PLP-H组7、28、35日龄外周血T细胞刺激指数(SI)显著升高(P<0.05),7~35日龄外周血B细胞SI显著升高(P<0.05)。3)与NC-A组相比,PLP-M组和PLP-H组21和28日龄血清免疫球蛋白G(IgG)含量显著升高(P<0.05)。4)与NC-A组相比,PLP-M组14~28日龄血清白细胞介素-2(IL-2)含量及14~35日龄血清白细胞介素-4(IL-4)和干扰素-γ(IFN-γ)含量显著高于NC-A组(P<0.05)。5)28日龄脾脏转录组分析显示,PLP-M组与NC-A组相比共鉴定出672个差异表达基因(DEGs),包括388个上调基因和284个下调基因。GO功能富集分析表明,这些DEGs主要参与免疫细胞的识别、信号传导、激活及效应过程;KEGG通路分析进一步揭示,DEGs在细胞因子-细胞因子受体相互作用、白细胞介素-17信号通路、Janus激酶-信号转导与转录激活因子(JAK-STAT)信号通路、肠道免疫球蛋白A(IgA)生成相关的免疫网络及Toll样受体信号通路中显著富集(P<0.05)。综上所述,饲粮中添加200和400 mg/kg PLP能够促进肉仔鸡免疫器官和免疫细胞成熟以及免疫球蛋白分泌,增强机体免疫功能,其中以200 mg/kg为最佳添加剂量。其作用机制在于,PLP通过调控由Toll样受体、核因子-κB、细胞因子网络以及JAK-STAT信号通路构成的层级化调控网络,增强了肉仔鸡脾脏的免疫应答能力。

本文引用格式

郑伟剑 , 张瀚文 , 曾致 , 罗羽欣 , 王郡东 , 郝福星 , 王雨婷 , 董可 , 黄东璋 , 沈留红 . 葛根多糖对肉仔鸡免疫功能及脾脏基因表达的影响[J]. 动物营养学报, 2025 , 37(12) : 8608 -8626 . DOI: 10.12418/CJAN2025.701

Abstract

This experiment was conducted to investigate the effects of Pueraria lobata polysaccharides (PLP) on immune function and spleen gene expression of broilers. A total of 336 one-day-old Arbor Acres (AA) broilers with an initial body weight of (42.31±0.94) g were randomly divided into 4 groups, with 6 replicates per group and 14 broilers per replicate. The control group (NC-A group) was fed a basal diet, while the experimental groups were fed basal diets supplemented with 100 (PLP-L group), 200 (PLP-M group) and 400 mg/kg (PLP-H group) PLP, respectively. The experiment lasted for 35 days. The immune organ indices and tissue morphology, peripheral blood lymphocyte proliferation activity, serum immunoglobulin and cytokine contents of broilers were determined at 7, 14, 21, 28 and 35 days of age. Additionally, spleen tissues of broilers at 28 days of age were collected for transcriptome sequencing and comparative analysis. The results showed as follows: 1) compared with the NC-A group, the thymus index of the PLP-L group was significantly increased at 28 and 35 days of age (P<0.05); the PLP-M group showed significant increases in the thymus index from 21 to 35 days of age (P<0.05), the bursa of Fabricius index at 21 and 28 days of age (P<0.05) and the spleen index at 28 days of age (P<0.05); the PLP-H group showed significant increases in the thymus index from 21 to 35 days of age (P<0.05) and the spleen index at 7 and 28 days of age (P<0.05). 2) Compared with the NC-A group, the peripheral blood T cell stimulation index (SI) was significantly increased in the PLP-M and PLP-H groups at 7, 28 and 35 days of age (P<0.05), and the peripheral blood B cell SI was significantly increased from 7 to 35 days of age (P<0.05). 3) Compared with the NC-A group, the serum immunoglobulin G (IgG) content was significantly increased in the PLP-M and PLP-H groups at 21 and 28 days of age (P<0.05). 4) Compared with the NC-A group, the serum interleukin-2 (IL-2) content was significantly increased in the PLP-M group from 14 to 28 days of age (P<0.05), and the serum interleukin-4 (IL-4) and interferon-γ (IFN-γ) contents were significantly higher from 14 to 35 days of age (P<0.05). 5) Transcriptome analysis of the spleen at 28 days of age revealed 672 differentially expressed genes (DEGs) in the PLP-M group compared with the NC-A group, including 388 up-regulated and 284 down-regulated genes. GO functional enrichment analysis indicated that these DEGs were mainly involved in immune cell recognition, signal transduction, activation, and effector processes. KEGG pathway analysis further showed that DEGs were significantly enriched in cytokine-cytokine receptor interaction, interleukin-17 signaling pathway, Janus kinase-signal transducer and activator of transcription (JAK-STAT) signaling pathway, intestinal immunoglobulin A (IgA)-related immune network, and Toll-like receptor signaling pathway (P<0.05). In conclusion, dietary supplementation with 200 and 400 mg/kg PLP can promote the maturation of immune organs and immune cells, enhance immunoglobulin secretion, and improve immune function of broilers, with 200 mg/kg being the optimal dose. The mechanism involves PLP enhancing splenic immune response in broilers by regulating a hierarchical network consisting of Toll-like receptors, nuclear factor-κB, cytokine network and JAK-STAT signaling pathway.

肉鸡养殖是我国畜牧业的重要组成部分,随着产业规模化和标准化发展,高度集约化的养殖模式易导致肉鸡免疫力下降、病死率增加,制约养殖效益的提升。在养殖业减抗、禁抗的背景下,开发天然、无抗、无残留且能有效提升肉鸡免疫力的饲料添加剂具有重要意义。
植物多糖作为天然植物提取物,凭借其抗氧化、免疫增强等生物学活性[1],近年来在畜禽养殖领域备受关注。大量研究证实,植物多糖能够有效调节肉鸡的免疫功能,增强抗病力,缓解应激反应,从而减少肉鸡生产对抗生素的依赖,提高生产效率[2-3]。例如,饲粮中添加枸杞多糖[4]、刺五加多糖[5]等植物多糖均能提高肉鸡血清免疫球蛋白A(IgA)和免疫球蛋白G(IgG)含量,同时增强血清中超氧化物歧化酶、谷胱甘肽过氧化物酶活性,从而保障肉鸡健康生长。葛根多糖(Pueraria lobata polysaccharide,PLP)是从豆科植物野葛[Pueraria lobata (Willd.) Ohwi]的干燥块根中提取的一种活性物质,具有多种生物学功能[6]。本课题组前期研究发现,PLP可显著提高犊牛血清免疫球蛋白含量,并能改善肠道免疫功能及优化肠道菌群结构[7-8]。许多研究也表明PLP具有提升免疫力[9]、抗炎[10]和抗氧化[11]等作用。体外试验表明,PLP可增强RAW264.7巨噬细胞的免疫反应[12];PLP还可促进树突细胞(DC)表面CD40、CD86以及主要组织容性复合物Ⅰ/Ⅱ表达,加速DC成熟并提升其抗原呈递能力,同时促进肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)和白细胞介素-12(IL-12)分泌,增强小鼠的免疫功能[13];此外,PLP能改善环磷酰胺导致的胸腺结构紊乱、皮质面积减小等现象,并通过T细胞受体(TCR)/CD3、免疫球蛋白M(IgM)/CD79和Toll样受体(TLR)2/4途径调节淋巴细胞增殖[14]。以上研究充分证实,PLP具备成为优质天然免疫调节剂的巨大潜力。然而,目前关于PLP在肉鸡养殖中的应用研究鲜见报道。因此,本研究基于PLP的免疫调节功能,探讨其在肉鸡养殖中的作用,旨在阐明PLP对肉鸡免疫系统的影响及调节机制,为其作为饲料添加剂应用于肉鸡养殖、促进肉鸡免疫系统发育提供理论依据和实践参考。

1 材料与方法

1.1 伦理声明

本研究方案已获得四川农业大学实验动物福利与伦理委员会批准(批准号:2023303166)。

1.2 试验设计与饲粮

采用单因素试验设计,选取336只体重为(42.31±0.94) g的1日龄爱拔益加(AA)肉仔鸡,随机分为4组,每组6个重复,每个重复14只。对照组(NC-A组)饲喂基础饲粮,试验组分别在基础饲粮中添加100(PLP-L组)、200(PLP-M组)和400 mg/kg(PLP-H组)PLP(纯度40.00%,添加量以实际PLP含量计)。试验期35 d。基础饲粮参照《鸡饲养标准》(NY/T 33—2004)配制,其组成及营养水平见表1。饲粮中代谢能和有效磷含量参照《中国饲料成分及营养价值表(2020年第31版)》计算,粗蛋白质、钙和氨基酸含量分别参照GB/T 6432—2018、GB/T 6436—2018和GB/T 18246—2019的方法测定。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
1~21日龄
1 to 21
days of age
22~35日龄
22 to 35
days of age
原料Ingredients
玉米Corn 54.02 59.11
大豆油Soybean oil 3.53 4.33
豆粕Soybean meal 38.19 32.68
赖氨酸盐酸盐Lys·HCl 0.15 0.12
碳酸钙CaCO3 1.20 1.14
二水磷酸氢钙CaHPO4·2H2O 1.88 1.61
DL-蛋氨酸DL-Met 0.20 0.18
食盐NaCl 0.40 0.40
氯化胆碱Choline chloride 0.15 0.15
复合多维Multi-vitamin1) 0.03 0.03
矿物质预混料Mineral premix2) 0.20 0.20
砻糠Rice chaff 0.01 0.01
米糠Rice bran 0.04 0.04
合计Total 100.00 100.00
营养水平Nutrient levels3)
代谢能ME/(MJ/kg) 12.34 12.76
粗蛋白质CP 21.00 19.00
钙Ca 1.00 0.90
有效磷AP 0.45 0.40
赖氨酸Lys 1.15 1.01
DL-蛋氨酸DL-Met 0.50 0.46
蛋氨酸+半胱氨酸Met+Cys 0.83 0.76

1)复合多维为每千克饲粮提供 Multi-vitamin provided the following per kg of diets:VA 12 500 IU,VD 3 000 IU,VE 18.75 IU,VK3 3 mg,VB5 15 mg,叶酸 folic acid 1.05 mg,烟酸 nicotinic acid 30 mg,生物素 biotin 0.14 mg。

2)矿物质预混料为每千克饲粮提供 Mineral premix provided the following per kg of diets:Fe 119.8 mg,Cu 8.1 mg,Mn 122.6 mg,Zn 105.6 mg,I 10.9 mg,Se 0.16 mg。

3)代谢能和有效磷为计算值,其余为测定值。ME and AP were calculated values, while the others were measured values.

1.3 饲养管理

试验于2024年8—10月在四川农业大学动物医学院雅安试验场进行。在雏鸡入舍前1周,对动物房及所有设备(包括料盘、料槽、水盘等)进行全面消毒,并提前通风。采用网上平养方式,通过排风扇进行通风,各组饲养环境保持一致。入舍后前3 d保持24 h持续光照,之后随着日龄的增长,每周光照时长减少2 h,直至达到18~20 h。第1周温度设置为33~35 ℃,此后每周下降2~3 ℃,直至达到20~22 ℃,相对湿度控制在50%~70%。每天08:00和18:00定时饲喂,自由采食与饮水,按正常免疫程序进行免疫接种。

1.4 样品采集

在肉仔鸡7、14、21、28和35日龄当天08:00,对各组进行空腹称重并记录(称重前禁食12 h,自由饮水)。随后每组随机选取6只(每个重复取1只)肉仔鸡,自心尖采集血液样本2份:一份(2 mL)置于乙二胺四乙酸(EDTA)抗凝管中,另一份(2 mL)置于无抗凝管中用于分离血清。血液采集完成后,采用颈部放血法处死肉仔鸡,采集胸腺、法氏囊和脾脏并称重,计算免疫器官指数[免疫器官指数(g/kg)=免疫器官重(g)/宰前活体重(kg)]。

1.5 指标检测

1.5.1 外周血淋巴细胞增殖活性

外周血淋巴细胞悬液制备:将采集的2 mL抗凝血用等体积样本稀释液稀释至4 mL,随后沿离心管壁缓慢叠加于4 mL淋巴细胞分离液(货号:P8740,北京索莱宝科技有限公司)上,具体分离步骤参照试剂说明书进行。取分离后的淋巴细胞悬液进行细胞计数,加入适量含10%胎牛血清(货号:C0234,上海碧云天生物技术有限公司)及1×10⁵ U/L青霉素-链霉素(货号:P7630-100 mL,北京索莱宝科技有限公司)的RPMI 1640培养基[货号:E600028-0500,生工生物工程(上海)股份有限公司]混合液,将细胞浓度调整至2×10⁶个/mL。
淋巴细胞增殖活性测定:于96孔板中进行,设置空白孔与试验孔。空白孔仅加入200 μL RPMI 1640完全培养液;试验孔每孔加入100 μL上述浓度为2×10⁶个/mL的淋巴细胞悬液,并分别加入100 μL RPMI 1640完全培养液(作为对照孔)、4 μg/mL刀豆蛋白A(ConA,货号:C8110,北京索莱宝科技有限公司)稀释液或10 μg/mL脂多糖(LPS,货号:L8880,北京索莱宝科技有限公司)稀释液,每个处理重复6孔。将培养板置于37 ℃、5%二氧化碳培养箱中培养44 h后,每孔加入20 μL CCK-8试剂(货号:CX001M,上海雅酶生物医药科技有限公司),继续培养4 h。使用酶标仪在450 nm波长下,空白孔调零后测定吸光度(OD)值,并计算刺激指数(SI),以此来表示淋巴细胞的增殖活性,SI计算公式如下:
SI=(试验孔OD值-空白孔OD值)/(对照孔OD值-空白孔OD值)。

1.5.2 血清免疫球蛋白及细胞因子含量

使用酶联免疫吸附试验(ELISA)试剂盒(上海酶联生物科技有限公司)测定血清IgA(货号:ml002792)、IgG(货号:ml092483)和IgM(货号:ml001661)含量,并据此筛选出最佳剂量组进行后续试验。对筛选出的最佳剂量组(PLP-M组)及NC-A组,进一步测定血清IL-1β(货号:ml059835)、白细胞介素-10(IL-10,货号:ml059830)、白细胞介素-2(IL-2,货号:ml042736)、白细胞介素-4(IL-4,货号:ml042739)和干扰素-γ(IFN-γ,货号:ml042772)含量。测定步骤严格按照试剂盒说明书进行。

1.5.3 免疫器官组织形态

取14和28日龄时PLP-M组与NC-A组肉仔鸡的胸腺、法氏囊和脾脏组织,室温下置于4%甲醛溶液(货号:P0099,上海碧云天生物技术有限公司)中固定24 h以上。将固定的免疫器官组织进行脱水、修剪、包埋、切片、苏木精-伊红(HE)染色和密封处理,使用显微镜进行观察。采用数字病理扫描仪采集图像,将获取的图像导入ImageJ软件,测定免疫器官的形态学指标,具体包括:胸腺的皮质面积、髓质面积、胸腺小体数量及面积;法氏囊小结的面积及其皮质面积、髓质面积;脾脏的红髓面积、白髓面积、脾小结数量及面积、动脉周围淋巴鞘厚度。

1.5.4 脾脏组织转录组测序(RNA-Seq)

1.5.4.1 RNA提取、文库构建与测序

随机选择28日龄PLP-M组与NC-A组各3个脾脏组织样本。使用TRIzol®试剂(广州美基生物科技有限公司)从脾脏组织中提取总RNA。随后对RNA样品进行质量检测:使用NanoDrop ND-2000微量分光光度计(Thermo Scientific,美国)检测260和280 nm处吸光度的比值(A260/A280),并利用Agilent Bioanalyzer 4150系统(Agilent Technologies,美国)测定RNA完整性数值(RIN值)。选取质量合格的RNA样本进行PCR扩增,扩增产物经AMPure XP纯化后,使用Agilent Bioanalyzer 4150系统评估文库质量。将构建好的文库在Illumina NovaSeq 6000平台上进行测序,获得150 bp的配对末端读数。

1.5.4.2 差异表达基因(DEGs)的功能分析

使用Feature Counts软件(http://subread.sourceforge.net/)对每个基因的读数进行统计分析,并根据基因长度计算外显子每千碱基片段百万比(FPKM)值。随后,利用DESeq2软件包(http://bioconductor.org/packages/release/bioc/html/DESeq2.html)对基因表达数据进行组间差异表达分析,以|log2[差异倍数(FC)]|>1且P<0.05为阈值筛选DEGs。采用clusterProfiler R包对筛选得到的DEGs进行GO功能和KEGG通路富集分析,以P<0.05作为显著富集的判定标准。

1.5.4.3 蛋白质-蛋白质互作(PPI)网络分析

使用STRING数据库(https://string-db.org/n,物种:鸡)对DEGs进行PPI网络分析,最小相互作用阈值设定为“最高置信度(highest confidence)>0.4”。通过Cytoscape 3.10软件对PPI网络进行可视化,构建并分析其相互作用网络。

1.5.4.4 实时荧光定量PCR(qRT-PCR)验证RNA-Seq准确性

为验证RNA-Seq基因表达数据的精确性和可重复性,本试验筛选了9个FC较大的DEGs进行qRT-PCR检测,筛选依据为PPI网络图中的核心基因及KEGG通路中富集的基因,其中包括7个上调基因和2个下调基因。使用RNA Easy Fast动物组织总RNA提取试剂盒[货号:DP451,天根生化科技(北京)有限公司]从脾脏组织中提取RNA,通过FastKing预混试剂盒[货号:KR118,天根生化科技(北京)有限公司]合成用于qRT-PCR的cDNA。使用FastReal快速荧光定量PCR预混试剂盒[货号:FP217,天根生化科技(北京)有限公司]测定基因的mRNA相对表达量。
使用Primer 5软件设计qRT-PCR引物,并经NCBI Primer-Blast工具进行种属特异性验证,引物由生工生物工程(上海)股份有限公司合成,引物序列信息见表2。qRT-PCR反应体系(20 μL)包括:2×Fast Real qPCR PreMix 10 μL,上游引物0.6 μL,下游引物0.6 μL,cDNA模板2 μL,dd H2O 6.8 μL。在荧光定量PCR仪上按以下程序进行扩增:95 ℃预变性2 min;95 ℃变性5 s,60 ℃退火/延伸15 s(47个循环)。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,采用2-ΔΔCt法计算基因的mRNA相对表达量。每组设置3个生物学重复,每个样本测定3次。
表2 引物序列信息

Table 2 Primer sequence information

基因
Genes
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
GenBank登录号
GenBank accession
number
白细胞介素-6
IL-6
F:CCCTCCTCGCCAATCTGAAG
R:ACAGAGGATTGTGCCCGAAC
171 NM_204628.2
白细胞介素-17A
IL-17A
F:TGCTGGATGCCTAACCCAAA
R:ACTGGGCATCAGCAACCAAG
185 NM_204460.2
白细胞介素-22
IL-22
F:AATCGCACCTACACCTTGGC
R:AGCGGTTGTTCTCCCTGATGT
106 NM_001199614.1
基质金属蛋白酶9
MMP9
F:GCGAGGCATTGATGTACCCT
R:CCAGAGCCACGACCATAGAG
100 NM_204667.2
C-C基序趋化因子配体4
CCL4
F:TCGCTCTTCTCATCGCATCC
R:TCGCGCTCCTTCTTTGTGAT
184 NM_204720.3
白细胞介素-10
IL-10
F:CAAACAACGCATGACTGCCT
R:AAAGTGCAGAGTGTCCGACC
182 NM_001004414.4
白细胞介素-8L2
IL-8L2
F:TGCTCTGTCGCAAGGTAGGA
R:GGTCCAAGCACACCTCTCTT
188 NM_205498.2
促动力蛋白受体1
PROKR1
F:GGGGCAGGAAAGAGGAAATAGT
R:ATGGGTAAACTGACGCACAGC
131 NM_001145229.2
脂肪酸结合蛋白4
FABP4
F:GAGGAAAGTGGTGGATGGGA
R:CAGTCCCACATGAAGACGGC
175 NM_204290.2
甘油醛-3-磷酸脱氢酶
GAPDH
F:ACTTTGGCATTGTGGAGGGT
R:GGACGCTGGGATGATGTTCT
82 NM_204305.2

1.6 数据统计与分析

使用SPSS 26.0软件对体重、免疫器官指数、外周血淋巴细胞增殖活性及血清免疫球蛋白含量等指标进行单因素方差分析(one-way ANOVA),差异显著者使用LDS法进行多重比较,并进行线性和多项式回归分析,建立PLP添加剂量与各指标之间的多项式回归函数,以此估算PLP最佳添加剂量。对血清细胞因子含量以及免疫器官组织形态等指标进行独立样本t检验分析。结果以“平均值±标准差”表示,P<0.05为差异显著。

2 结果与分析

2.1 PLP对肉仔鸡体重和免疫器官指数的影响

表3可知,PLP-L组、PLP-M组和PLP-H组1~35日龄平均日增重较NC-A组分别升高了7.28%、7.65%和9.84%,但差异不显著(P>0.05)。与NC-A组相比,PLP-L组28、35日龄胸腺指数显著升高(P<0.05),法氏囊指数和脾脏指数在各日龄时均无显著变化(P>0.05);PLP-M组21~35日龄胸腺指数显著升高(P<0.05),21、28日龄法氏囊指数显著升高(P<0.05),28日龄脾脏指数显著升高(P<0.05);PLP-H组21~35日龄胸腺指数显著升高(P<0.05),7、28日龄脾脏指数显著升高(P<0.05)。上述结果表明,饲粮中添加PLP对肉仔鸡体重增长具有一定的促进作用,且有增强免疫器官指数的趋势。
表3 PLP对肉仔鸡体重和免疫器官指数的影响

Table 3 Effects of PLP on body weight and immune organ indices of broilers

项目
Items
组别Groups P
P-value
NC-A PLP-L PLP-M PLP-H
体重BW/g
7日龄7 days of age 164.21±12.53 160.94±3.47 162.95±4.73 167.38±3.21 0.403
14日龄14 days of age 391.04±28.20 390.71±17.85 394.05±28.42 421.61±22.37 0.074
21日龄21 days of age 744.63±43.19 793.01±57.75 797.00±87.12 810.75±61.06 0.149
28日龄28 days of age 1 082.50±285.60 1 082.88±219.16 1 112.50±223.54 1 140.00±254.74 0.967
35日龄35 days of age 1 852.88±262.40 1 988.13±154.55 1 994.88±135.16 2 035.38±165.04 0.301
1~35日龄平均日增重
ADG at 1 to 35 days of age/g
54.50±2.92 58.47±1.72 58.67±1.50 59.86±1.83 0.301
胸腺指数Thymus index/(g/kg)
7日龄7 days of age 5.35±0.43 5.50±0.50 5.67±0.23 5.96±0.44 0.063
14日龄14 days of age 4.25±0.22 4.52±0.64 4.83±0.50 4.63±0.31 0.131
21日龄21 days of age 3.78±0.64b 4.23±0.36ab 4.70±0.70a 4.85±0.54a 0.006
28日龄28 days of age 3.22±0.42b 4.03±0.61a 4.45±0.37a 4.36±0.35a <0.001
35日龄35 days of age 3.33±0.52b 4.27±0.86a 4.28±0.50a 4.07±0.46a 0.020
法氏囊指数Bursa of Fabricius index/(g/kg)
7日龄7 days of age 1.88±0.24 2.09±0.25 2.01±0.21 2.16±0.12 0.106
14日龄14 days of age 2.10±0.32 2.22±0.38 2.40±0.15 2.31±0.28 0.294
21日龄21 days of age 2.30±0.39b 2.62±0.49ab 2.87±0.39a 2.71±0.29ab 0.040
28日龄28 days of age 2.03±0.32b 2.08±0.39ab 2.21±0.33a 2.07±0.33ab 0.048
35日龄35 days of age 1.64±0.22 1.74±0.46 1.89±0.16 1.86±0.29 0.422
脾脏指数Spleen index/(g/kg)
7日龄7 days of age 0.86±0.12b 0.89±0.13b 0.92±0.09ab 1.13±0.21a 0.006
14日龄14 days of age 0.72±0.10 0.77±0.25 0.92±0.06 0.86±0.18 0.118
21日龄21 days of age 0.88±0.12 0.90±0.21 1.02±0.12 0.95±0.19 0.428
28日龄28 days of age 0.84±0.20b 0.97±0.21ab 1.05±0.11a 1.12±0.20a 0.041
35日龄35 days of age 0.86±0.13 0.99±0.17 0.98±0.14 0.92±0.05 0.266

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 PLP对肉仔鸡外周血淋巴细胞增殖活性的影响

表4可知,7日龄时,在ConA和LPS刺激下各试验组外周血T细胞和B细胞SI均显著高于NC-A组(P<0.05);14日龄时,在ConA刺激下各组间外周血T细胞SI无显著差异(P>0.05),而在LPS刺激下各试验组外周血B细胞SI显著高于NC-A组(P<0.05);21日龄时,在ConA刺激下各组间外周血T细胞SI无显著差异(P>0.05),而在LPS刺激下PLP-M组和PLP-H组外周血B细胞SI显著高于NC-A组(P<0.05);28日龄时,在ConA和LPS刺激下PLP-M组和PLP-H组外周血T细胞和B细胞SI均显著高于NC-A组(P<0.05);35日龄时,在ConA刺激下各试验组外周血T细胞SI均高于NC-A组(P<0.05),在LPS刺激下PLP-M组和PLP-H组外周血B细胞SI显著高于NC-A组(P<0.05)。以上结果表明,饲粮中添加低剂量(100 mg/kg)PLP对肉仔鸡外周血淋巴细胞增殖的促进作用随日龄增长逐渐减弱,而添加中、高剂量(200、400 mg/kg)PLP对外周血淋巴细胞增殖的促进作用更稳定。
表4 PLP对肉仔鸡外周血淋巴细胞增殖活性的影响

Table 4 Effects of PLP on peripheral blood lymphocyte proliferative activity of broilers

项目
Items
组别Groups P
P-value
NC-A PLP-L PLP-M PLP-H
T细胞刺激指数T cell SI
7日龄7 days of age 0.951±0.054b 0.972±0.051a 1.066±0.061a 1.071±0.066a 0.005
14日龄14 days of age 1.050±0.066 1.071±0.078 1.140±0.090 1.166±0.091 0.110
21日龄21 days of age 1.091±0.084 1.124±0.091 1.235±0.074 1.201±0.109 0.069
28日龄28 days of age 1.137±0.082b 1.154±0.088ab 1.250±0.059a 1.160±0.043a 0.041
35日龄35 days of age 1.125±0.063b 1.139±0.067a 1.274±0.110a 1.265±0.089a 0.015
B细胞刺激指数B cell SI
7日龄7 days of age 0.809±0.048b 1.025±0.082a 1.054±0.058a 1.027±0.046a <0.001
14日龄14 days of age 0.936±0.067c 1.058±0.060b 1.085±0.092a 1.173±0.084a 0.002
21日龄21 days of age 1.068±0.087c 1.151±0.077bc 1.263±0.086a 1.230±0.062ab 0.002
28日龄28 days of age 1.082±0.091b 1.207±0.079ab 1.293±0.072a 1.240±0.058a 0.001
35日龄35 days of age 1.145±0.055b 1.200±0.051ab 1.257±0.069a 1.269±0.047a 0.013

2.3 PLP对肉仔鸡血清免疫球蛋白含量的影响

表5可知,7~35日龄时,饲粮中添加PLP对血清IgA和IgM含量无显著影响(P>0.05),但各试验组血清IgA和IgM含量均高于NC-A组;进一步分析发现,21和28日龄时PLP-M组和PLP-H组血清IgG含量显著高于NC-A组(P<0.05)。综合来看,各试验组中PLP-M组血清免疫球蛋白含量的提升效果更为突出。
表5 PLP对肉仔鸡血清免疫球蛋白含量的影响

Table 5 Effects of PLP on serum immunoglobulin contents of broilers

项目
Items
组别Groups P
P-value
NC-A PLP-L PLP-M PLP-H
免疫球蛋白A IgA/(μg/mL)
7日龄7 days of age 799.81±71.88 851.93±61.44 894.99±114.49 932.00±117.16 0.123
14日龄14 days of age 819.87±138.45 906.02±110.68 975.12±119.82 937.49±92.99 0.157
21日龄21 days of age 968.19±86.58 1 075.88±95.84 1 123.47±154.25 1 120.33±123.85 0.113
28日龄28 days of age 953.79±59.19 1 006.95±113.13 1 111.64±149.54 1 039.47±98.56 0.087
35日龄35 days of age 923.84±88.02 964.08±120.04 986.42±106.82 977.80±83.06 0.717
免疫球蛋白M IgM/(μg/mL)
7日龄7 days of age 1 715.55±246.19 1 796.90±219.51 1 959.70±286.97 1 950.52±239.24 0.277
14日龄14 days of age 1 664.00±277.21 1 816.68±323.70 2 027.74±241.43 1 997.93±232.22 0.103
21日龄21 days of age 2 043.21±241.75 2 140.68±194.60 2 287.94±147.60 2 223.25±128.00 0.146
28日龄28 days of age 2 056.15±212.35 2 250.10±277.41 2 386.22±284.65 2 311.42±259.00 0.185
35日龄35 days of age 1 855.53±250.37 1 979.40±260.77 2 166.47±320.07 2 142.32±219.06 0.175
免疫球蛋白G IgG/(g/L)
7日龄7 days of age 1.81±0.12 1.90±0.33 2.19±0.20 2.06±0.34 0.092
14日龄14 days of age 1.25±0.25 1.39±0.29 1.53±0.23 1.50±0.20 0.204
21日龄21 days of age 1.81±0.16b 1.96±0.15b 2.24±0.29a 2.26±0.18a 0.002
28日龄28 days of age 1.93±0.17b 2.07±0.41ab 2.52±0.35a 2.32±0.44a 0.044
35日龄35 days of age 1.84±0.36 2.08±0.52 2.37±0.48 2.28±0.30 0.175

2.4 PLP最佳添加剂量的确定

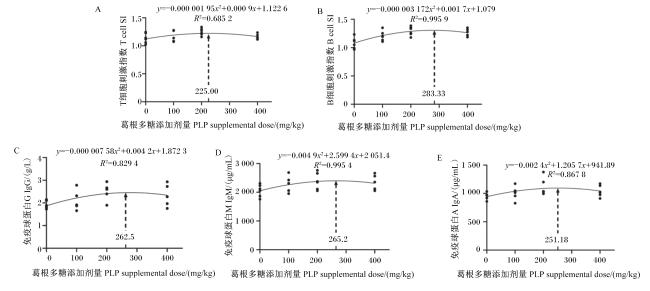
综合来看,在28日龄时,与NC-A组相比,饲粮中添加PLP可更有效地提高肉鸡外周血淋巴细胞增殖活性和血清免疫球蛋白含量。因此,本研究选取28日龄时的上述指标与PLP添加剂量进行多项式回归分析。结果(图1)显示,28日龄血清IgG、IgM和IgA含量及淋巴细胞增殖活性与PLP添加剂量之间呈二次曲线关系,模型预测PLP的最佳添加剂量可能为225.00~283.33 mg/kg。基于该结果,本研究将200 mg/kg(PLP-M组)确定为实际最佳添加剂量,并进一步选取PLP-M组与NC-A组开展血清细胞因子含量、免疫器官组织形态以及转录组学等指标的检测分析。
图1 PLP添加剂量与28日龄肉仔鸡外周血淋巴细胞增殖活性及血清免疫球蛋白含量的多项式回归关系

Fig.1 Polynomial regression relationships between PLP supplemental dose and peripheral blood lymphocyte proliferative activity as well as serum immunoglobulin contents of 28-day-old broilers

2.5 PLP对肉仔鸡血清细胞因子含量的影响

表6可知,PLP-M组7日龄血清IL-10、IL-2、IL-4和IFN-γ含量与NC-A组均无显著差异(P>0.05)。PLP-M组各日龄血清IL-1β含量与NC-A组无显著差异(P>0.05),但在7~21日龄时较NC-A组有所升高,提示PLP可能对机体免疫应答具有一定激活作用,但未引发炎症反应。
表6 PLP对肉仔鸡血清细胞因子含量的影响

Table 6 Effects of PLP on serum cytokine contents of broilers pg/mL

项目
Items
组别Groups P
P-value
NC-A PLP-M
白细胞介素-1β IL-1β
7日龄7 days of age 92.55±11.83 101.27±17.75 0.267
14日龄14 days of age 98.99±8.02 106.26±17.14 0.296
21日龄21 days of age 101.37±7.33 108.21±16.39 0.299
28日龄28 days of age 97.76±13.02 94.08±5.43 0.473
35日龄35 days of age 85.80±8.90 82.78±5.08 0.419
白细胞介素-10 IL-10
7日龄7 days of age 59.04±7.29 61.22±8.56 0.592
14日龄14 days of age 58.66±5.47 60.12±6.76 0.643
21日龄21 days of age 58.62±6.99b 63.27±5.24a 0.045
28日龄28 days of age 60.52±6.42 64.67±6.85 0.155
35日龄35 days of age 59.04±7.29 61.22±8.56 0.232
白细胞介素-2 IL-2
7日龄7 days of age 200.08±32.16 217.94±25.77 0.240
14日龄14 days of age 197.17±19.89b 220.38±12.35a 0.014
21日龄21 days of age 209.06±23.70b 233.95±22.33a 0.048
28日龄28 days of age 197.48±25.28b 228.10±30.74a 0.047
35日龄35 days of age 178.75±29.78 202.23±32.82 0.156
白细胞介素-4 IL-4
7日龄7 days of age 51.98±6.36 53.91±8.69 0.620
14日龄14 days of age 57.54±9.43b 69.55±12.54a 0.048
21日龄21 days of age 72.62±6.64b 81.46±6.59a 0.018
28日龄28 days of age 76.72±10.04b 88.78±8.36a 0.021
35日龄35 days of age 76.57±6.21b 94.62±3.73a <0.001
干扰素-γ IFN-γ
7日龄7 days of age 26.92±7.73 30.05±7.80 0.434
14日龄14 days of age 36.60±5.01b 42.62±3.49a 0.015
21日龄21 days of age 34.78±5.14b 41.92±3.41a 0.006
28日龄28 days of age 34.96±2.95b 40.06±3.14a 0.005
35日龄35 days of age 40.64±1.81b 43.07±1.63a 0.014
PLP-M组血清IL-10含量在21日龄时显著高于NC-A组(P<0.05),提示机体可能通过释放抗炎因子IL-10调节免疫应答,防止炎症产生。PLP-M组14~28日龄血清IL-2含量及14~35日龄血清IL-4和IFN-γ含量显著高于NC-A组(P<0.05),表明PLP可有效增强肉仔鸡免疫功能。

2.6 PLP对肉仔鸡免疫器官组织形态的影响

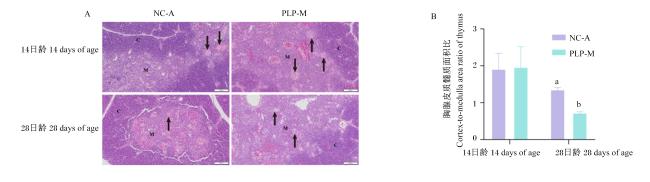
PLP对胸腺组织形态的影响如图2所示。14日龄时,PLP-M组胸腺皮质和髓质结构均比NC-A组更为成熟,细胞间排列更紧密,髓质中胸腺小体数量和面积均有所增加。28日龄时,PLP-M组胸腺结构趋于稳定,皮质与髓质间界限较NC-A组更清晰,在同一视野内观察到的胸腺小体数量增加,且胸腺皮质髓质面积比较NC-A组显著降低(P<0.05)。
图2 PLP对肉仔鸡胸腺组织形态的影响

黑色箭头表示胸腺小体,M表示髓质,C表示皮质。Black arrow indicated thymic corpuscles, M indicated medulla and C indicated cortex.

NC-A表示NC-A组,PLP-M表示PLP-M组。下图同。NC-A indicated NC-A group, PLP-M indicated PLP-M group. The same as below.

数据柱形标注不同字母表示差异显著(P<0.05)。图3图4图7同。Value columns with different letters mean significant difference (P<0.05). The same as Fig.3, Fig.4 and Fig.7.

Fig.2 Effects of PLP on thymus tissue morphology of broilers

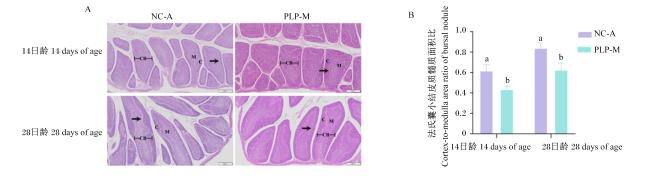
PLP对法氏囊组织形态的影响如图3所示。14日龄时,PLP-M组法氏囊小结的排列较NC-A组更紧密,皮质与髓质间有明显分界线(由整齐排列的上皮细胞层形成)。28日龄时,法氏囊小结呈现长条形态,PLP-M组法氏囊小结内白髓细胞间的连接较NC-A组更紧密,而NC-A组出现空泡化现象。ImageJ分析结果显示,PLP-M组在14、28日龄时法氏囊小结面积较NC-A组增加,且法氏囊小结皮质髓质面积比较NC-A组显著降低(P<0.05)。
图3 PLP对肉仔鸡法氏囊组织形态的影响

黑色箭头表示皮质髓质分界线(上皮细胞),M表示髓质,C表示皮质,CB表示法氏囊小结。

Fig.3 Effects of PLP on bursa of Fabricius tissue morphology of broilers

Black arrows indicated corticomedullary boundary (epithelial cells), M indicated medulla, C indicated cortex and CB indicated bursal nodule.

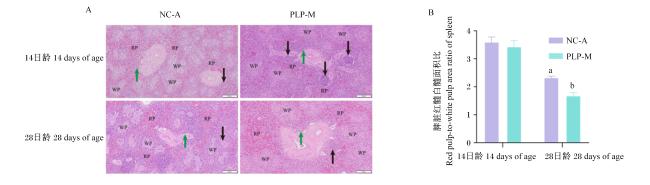
PLP对脾脏组织形态的影响如图4所示。14日龄时,PLP-M组脾小结结构较NC-A组更清晰,且动脉周围淋巴鞘更厚。28日龄时,NC-A组和PLP-M组红髓和白髓细胞排列较14日龄时更加紧密,红白髓之间界限更加明显;与NC-A组相比,PLP-M组动脉周围淋巴鞘更厚,脾小结面积更大,淋巴细胞排列也更密集。ImageJ分析结果显示,28日龄PLP-M组脾脏红髓白髓面积比较NC-A组显著降低(P<0.05)。上述结果提示PLP可刺激肉仔鸡脾脏淋巴细胞增殖,促进白髓面积占比增高,从而增强脾脏免疫功能。
图4 PLP对肉仔鸡脾脏组织形态的影响

WP表示白髓,RP表示红髓,黑色箭头表示脾小结,绿色箭头表示动脉周围淋巴鞘。

Fig.4 Effects of PLP on spleen tissue morphology of broilers

WP indicated white pulp, RP indicated red pulp, black arrows indicated splenic nodule and green arrows indicated periarterial lymphoid sheath.

2.7 PLP-M组与NC-A组肉仔鸡脾脏DEGs分析

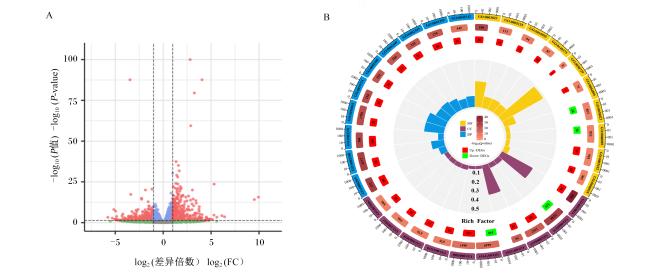
从NC-A组和PLP-M组28日龄脾脏组织样本中共鉴定出20 123个基因,以|log2(FC)| >1且P<0.05为标准,筛选得到DEGs进行后续分析。图5-A展示了这些DEGs的整体分布情况,PLP-M组与NC-A组之间共有672个DEGs,包括388个上调基因和284个下调基因。
图5 PLP-M组与NC-A组脾脏DEGs火山图(A)和前10项GO条目分析图(B)

UP-DEGs:上调差异表达基因 up-regulated differentially expressed genes;Down-DEGs:下调差异表达基因 down-regulated differentially expressed genes;BP:生物过程 biological process;MF:分子功能 molecular function;CC:细胞组分 cellular component;GO:0003823:抗原结合 antigen binding;Rich factor:富集因子;GO:0005125:细胞因子活性 cytokine activity;GO:0019955:细胞因子结合 cytokine binding;GO:0140375:免疫受体活性 immune receptor activity;GO:0090729:毒素活性 toxin activity;GO:0004896:细胞因子受体活性 cytokine receptor activity;GO:0038023:信号受体活性 signal receptor activity;GO:0060089:分子转换器活性 molecular chaperone activity;GO:0005102:信号受体结合 signal receptor binding;GO:0048018:受体配体活性 ligand activity of receptors;GO:0019814:免疫球蛋白复合物 immunoglobulin complex;GO:0005576:胞外区 extracellular region;GO:0005615:细胞外间隙 extracellular space;GO:0072562:血微粒 blood particles;GO:0071944:细胞外围 peripheral cell;GO:0005886:质膜 plasma membrane;GO:0043230:细胞外细胞器 extracellular organelles;GO:0065010:细胞外膜结合的细胞器 organelles bound to the extracellular membrane;GO:1903561:细胞外囊泡 extracellular vesicle;GO:0070062:细胞外泌体 exosomes;GO:0006955:免疫应答 immune response;GO:0002250:适应性免疫反应 adaptive immune response;GO:0002376:免疫系统过程 immune system processes;GO:0016064:免疫球蛋白介导的免疫应答 immunoglobulin-mediated immune response;GO:0019724:B细胞介导的免疫 B-cell mediated immunity;GO:0002460:免疫球蛋白超家族结构域构建的适应性免疫应答 adaptive immune response involving immunoglobulin superfamily domains;GO:0002449:淋巴细胞介导的免疫 lymphocyte-mediated immunity;GO:0002443:白细胞介导的免疫 leukocyte-mediated immunity;GO:0002252:免疫效应过程 immune effector processes;GO:0042742:细菌的防御反应 defense response of bacteria。

图A中灰色点代表既不满足|log2(FC)| >1也不满足P<0.05的基因,绿色点代表仅满足|log2(FC)| >1的基因,蓝色点代表仅满足P<0.05的基因,红色点代表同时满足|log2(FC)| >1和P<0.05的DEGs。In Fig.A, gray dots represented genes that meet neither the threshold of |log2(FC)| >1 nor P<0.05, green dots represented genes that meet only the threshold of |log2(FC)| >1, blue dots represented genes that meet only the threshold of P<0.05 and red dots represented DEGs that meet both the thresholds of |log2(FC)| >1 and P<0.05.

Fig.5 Volcano plot of spleen DEGs between PLP-M group and NC-A group (A) and top 10 GO terms analysis plot (B)

2.7.1 DEGs GO功能富集分析

为探究DEGs的功能,对672个DEGs进行了GO功能富集分析。结果显示,这些DEGs广泛存在于4 602个GO条目中,其中806个条目显著富集(P<0.05)。图5-B展示了生物过程(biological process,BP)、分子功能(molecular function,MF)和细胞组分(cellular component,CC)中富集最显著的前10个条目,其中免疫功能相关条目在MF(抗原结合、细胞因子活性和免疫受体活性等)、CC(免疫球蛋白复合物)和BP(免疫应答、适应性免疫反应、免疫系统过程和B细胞介导的免疫等)中均占据主导地位。这些DEGs共同参与了免疫细胞的识别、信号传导、激活及效应过程,可有效地增强免疫系统功能并维持免疫稳态。

2.7.2 DEGs KEGG通路富集分析

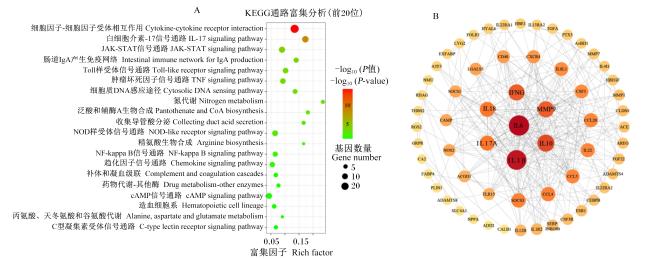
为进一步阐明DEGs在PLP影响脾脏免疫功能过程中的调控机制,对672个DEGs进行了KEGG通路富集分析。结果显示,这些DEGs在22条KEGG通路中显著富集(P<0.05),图6-A展示了富集程度排名前20的通路。其中,多个通路与免疫调节密切相关,主要包括细胞因子-细胞因子受体相互作用、白细胞介素-17(IL-17)信号通路、Janus激酶-信号转导与转录激活因子(JAK-STAT)信号通路、肠道IgA生成相关的免疫网络、TLR信号通路、肿瘤坏死因子信号通路、NOD样受体信号通路、视黄酸诱导基因-Ⅰ(RIG-Ⅰ)样受体信号通路、核因子-κB(NF-κB)信号通路以及趋化因子信号通路等。表7进一步列出了富集最为显著的10条通路中相关DEGs的分布情况。
图6 PLP-M组和NC-A组DEGs KEGG通路富集分析气泡图(A)和PPI网络图(B)

Fig.6 Bubble plot of KEGG pathway enrichment analysis (A) and PPI network plot (B) for DEGs between PLP-M group and NC-A group

表7 前10条KEGG通路DEGs富集情况

Table 7 DEGs enrichment in the top 10 KEGG pathways

项目Items 差异表达基因DEGs
细胞因子-细胞因子受体相互作用
Cytokine-cytokine receptor interaction
IFNG/IL-1R2/CCL17/IL-12β/TNFSF8/CCL4/CCL5/IL-6/INHBA/
TNFRSF6B/CD40/TNFRSF8/TNFRSF10B/IL-1β/CSF3R/IL-22RA1/IL-18/
IL10/CCR10/IL-17F/IL-17A/IL-13RA2/IL-8L1/IL-8/CXCR4/CCL20
白细胞介素-17信号通路
IL-17 signaling pathway
MMP1/CCL17/IL-6/MMP9/CEBPB/IL-1β/
S100A12/IL-17F/IL-17A/IL-8L1/IL-8/CCL20
Janus激酶-信号转导与转录激活因子信号通路
JAK-STAT signaling pathway
IFNG/IL-12β/SOCS1/SOCS3/IL-6/CSF3R/IL-22RA1/IL-10/
IL-22RA2/IL-13RA2/FHL1/IFNKL1
免疫球蛋白A产生的肠道免疫网络
Intestinal immune network for IgA production
IL-6/CD40/IL-10/CCR10/CXCR4
Toll样受体信号通路
Toll-like receptor signaling pathway
IL-12β/CCL4/CCL5/IL-6/CD40/IL-1β/IL-8L1/IL-8
肿瘤坏死因子信号通路
TNF signaling pathway
SOCS3/CCL5/IL-6/MMP9/CEBPB/IL-1β/CCL20
细胞质DNA感应途径
Cytosolic DNA sensing pathway
CCL4/CCL5/IL-6/IL-1β/IL-18
氮代谢Nitrogen metabolism CA7/CA13/CA2/CA9
泛酸和辅酶A生物合成
Pantothenate and CoA biosynthesis
IL-17REL/DPYS/ENPP3
收集导管酸分泌
Collecting duct acid secretion
CA2/ATP6V0D2/SLC4A1

IFNG:干扰素-γ interferon-γ;IL-1R2:白细胞介素-1受体2 interleukin-1 receptor type 2;CCL17:C-C基序趋化因子配体17 C-C motif chemokine ligand 17;IL-12β:白细胞介素-12β interleukin-12β;TNFSF8:肿瘤坏死因子超家族成员8 tumor necrosis factor superfamily member 8;CCL4:C-C基序趋化因子配体4 C-C motif chemokine ligand 4;CCL5:C-C基序趋化因子配体5 C-C motif chemokine ligand 5;IL-6:白细胞介素6 interleukin-6;INHBA:抑制素β A链 inhibin β A chain;TNFRSF6B:肿瘤坏死因子受体超家族成员6B tumor necrosis factor receptor superfamily member 6B;TNFRSF8:肿瘤坏死因子受体超家族成员8 tumor necrosis factor receptor superfamily member 8;TNFRSF10B:肿瘤坏死因子受体超家族成员10B tumor necrosis factor receptor superfamily member 10B;IL-1β:白细胞介素-1β interleukin-1β;CSF3R:集落刺激因子3受体 colony-stimulating factor 3 receptor;IL-22RA1:白细胞介素22-受体α1 interleukin-22 receptor α1;IL-18:白细胞介素18 interleukin-18;IL-10:白细胞介素-10 interleukin-10;CCR10:C-C基序趋化因子受体10 C-C motif chemokine receptor 10;IL-17F:白细胞介素-17F interleukin-17F;IL-17A:白细胞介素-17A interleukin-17A;IL-13RA2:白细胞介素-13受体α2 interleukin-13 receptor α2;IL-8L1:白细胞介素-8L1 interleukin-8L1;IL-8:白细胞介素-8 interleukin-8;CXCR4:C-X-C趋化因子受体4 C-X-C motif chemokine receptor 4;CCL20:C-C基序趋化因子配体20 C-C motif chemokine ligand 20;MMP1:基质金属蛋白酶1 matrix metalloproteinase 1;MMP9:基质金属蛋白酶9 matrix metalloproteinase 9;CEBPB:CCAAT增强子结合蛋白β CCAAT enhancer-binding protein β;S100A12:S100钙结合蛋白A12 s100 calcium-binding protein A12;SOCS1:细胞因子信号传导抑制因子1 suppressor of cytokine signaling 1;SOCS3:细胞因子信号传导抑制因子3 suppressor of cytokine signaling 3;IL-22RA2:白细胞介素-22受体α2 interleukin-22 receptor α2;FHL1:4个半LIM结构域1 four and a half LIM domains 1;IFNKL1:干扰素-κL1 interferon-κL1;CA7:碳酸酐酶7 carbonic anhydrase 7;CA13:碳酸酐酶13 carbonic anhydrase 13;CA2:碳酸酐酶2 carbonic anhydrase 2;CA9:碳酸酐酶9 carbonic anhydrase 9;IL-17REL:白细胞介素-17受体样蛋白 interleukin-17 receptor like protein;DPYS:二氢嘧啶酶 dihydropyrimidinase;ENPP3:外核苷酸焦磷酸酶/磷酸二酯酶3 ectonucleotide pyrophosphatase/phosphodiesterase 3;ATP6V0D2:ATP酶质子泵V0亚基D2 ATPase H+ transporting V0 subunit D2;SLC4A1:溶质载体家族4成员1 solute carrier family 4 member 1。图7同。The same as Fig.7.

2.7.3 PPI网络和中心基因分析

利用Cytoscape 3.10软件对DEGs的PPI网络进行可视化分析,共从DEGs中识别出327对PPI关系。图6-B呈现了PLP-M组与NC-A组DEGs的PPI网络,其中节点的大小和颜色依据DEGs的中心性(即中度值)设定,以此直观反映基因的重要程度。结果显示,白细胞介素-6(IL-6)、IL-1βIL-10、基质金属蛋白酶9(MMP9)和白细胞介素-17A(IL-17A)等免疫调节相关基因在PPI网络中表现出较高的中度值,且这些核心基因同时富集于表7所列富集最为显著的10条通路中。上述结果提示,这些基因的表达可能受PLP的影响更为显著,且在脾脏免疫功能的调控中可能发挥重要作用。

2.7.4 qRT-PCR验证RNA-Seq结果

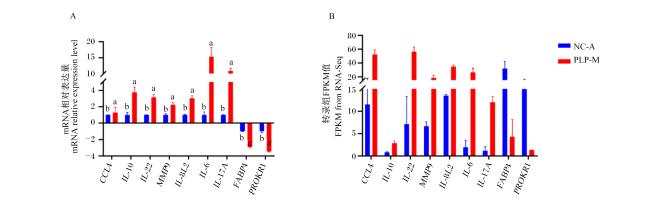
qRT-PCR结果(图7-A)显示,PLP-M组脾脏IL-6、IL-10、白细胞介素-22(IL-22)、MMP9、白细胞介素-8L2(IL-8L2)、IL-17A、C-C基序趋化因子配体4(CCL4)的mRNA相对表达量显著高于NC-A组(P<0.05),脾脏促动力蛋白受体1(PROKR1)和脂肪酸结合蛋白4(FABP4)的mRNA相对表达量显著低于NC-A组(P<0.05)。qRT-PCR结果与RNA-Seq结果(图7-B)趋势一致,表明RNA-Seq结果质量良好。
图7 转录组DEGs的qRT-PCR验证结果

IL-22:白细胞介素-22 interleukin-22;IL-8L2:白细胞介素-8L2 interleukin-8L2;FABP4:脂肪酸结合蛋白4 fatty acid-binding protein 4;PROKR1:促动力蛋白受体1 prokineticin receptor 1。

Fig.7 qRT-PCR verification results of transcriptome DEGs

3 讨论

3.1 PLP对肉仔鸡体重、免疫器官指数及组织形态的影响

植物多糖在畜牧业中应用广泛,生产中常通过在饲粮中添加适量多糖来提升畜禽的生长性能。曹楠等[2]研究发现,饲粮中添加400 mg/kg白术多糖有提高岭南黄鸡总增重和平均日增重的趋势。本试验结果表明,虽然饲粮中添加PLP对肉仔鸡1~35日龄平均日增重的影响效果不显著,但有一定提升作用。
胸腺、法氏囊和脾脏是禽类的主要免疫器官,其结构与功能直接影响免疫系统的整体效能。胸腺作为T细胞发育成熟的关键场所,其髓质区域主要储存已成熟的淋巴细胞;法氏囊承担B细胞的成熟调控功能;脾脏则是诱导细胞免疫与体液免疫产生效应的场所。因此,免疫器官指数被常用于初步评估和衡量机体免疫状态[15]。研究表明,在肉鸡饲粮中补充植物多糖可提高胸腺指数、脾脏指数和法氏囊指数,同时也可显著提高血清免疫球蛋白、IL-4和IFN-γ等含量[16-17],从而增强机体免疫力。本试验结果也表明,在28日龄时,饲粮中添加200 mg/kg PLP能促进肉仔鸡胸腺、法氏囊和脾脏增大,提高免疫器官指数。此外,本试验结果表明,饲粮中添加适量PLP能促进胸腺皮质、髓质增厚和细胞增多,使法氏囊小结内淋巴细胞排列更紧密,同时提高脾脏内脾小结面积和动脉淋巴周围鞘厚度,从而促进免疫器官的发育。许多研究也发现,饲粮中补充植物多糖可有效缓解胸腺皮质和髓质淋巴细胞减少的情况[18],同时还能增加法氏囊小结数量[2]。本试验结果与之相似,证实了PLP可调节肉仔鸡免疫器官发育。这种调节作用可能与PLP内的β-(1-6)-D-葡聚糖结构有关[19],具有β-葡聚糖结构的多糖能够被免疫细胞上TLR[13]、树突状细胞相关性C型凝集素-1(dectin-1)受体[20]等结合,触发细胞内信号通路的级联反应,促进免疫细胞活化、增殖、分化以及细胞因子分泌,从而表现为脾脏、胸腺等器官的发育增强、相对重量增加(器官指数升高)以及器官内免疫细胞数量增多。

3.2 PLP对肉仔鸡外周血淋巴细胞增殖活性的影响

T细胞和B细胞作为机体内最重要的免疫活性细胞,在机体免疫功能中发挥着重要作用。其中T细胞分为辅助性T细胞(Th)和细胞毒性T淋巴细胞(CTL)。Th细胞可诱导B细胞分泌抗体参与体液免疫应答;CTL细胞则辅助巨噬细胞吞噬被病原体感染的靶细胞,并通过杀死胞内微生物参与细胞免疫应答[21-22]。B细胞通过抗体依赖和非抗体依赖2种机制,分别介导适应性免疫与固有免疫反应,在体液免疫应答中发挥重要作用[23]。因此,淋巴细胞的增殖活性常作为评估机体免疫功能的重要指标,其增殖活性强弱可体现机体的细胞免疫水平[24]。不同种类的有丝分裂原能够刺激不同类型淋巴细胞的增殖。例如,ConA能够不可逆地结合细胞表面糖蛋白,从而特异性促进T细胞增殖[25];而B细胞则会对LPS的刺激产生增殖反应[26]。本试验结果表明,饲粮中添加200和400 mg/kg PLP显著提高了28、35日龄时外周血淋巴细胞在ConA和LPS刺激下的增殖活性,进一步证实了PLP在提升细胞免疫水平方面的积极作用。这与Yang等[27]报道的刺五加多糖能显著促进鸡的淋巴细胞增殖并增强其免疫反应的结果相符。也有研究表明,传统中药中的植物多糖成分能够抵抗环磷酰胺引起的免疫抑制,并显著促进淋巴细胞增殖[28-30]。综上,饲粮中添加200和400 mg/kg PLP能够有效促进肉仔鸡外周血淋巴细胞增殖,进而提高机体的细胞免疫能力。

3.3 PLP对肉仔鸡血清免疫球蛋白及细胞因子含量的影响

体液免疫是由B细胞介导,通过分泌抗体而进行的免疫应答过程。成熟的B细胞可分泌免疫球蛋白(IgA、IgG、IgM)至外周血,从而增强体液免疫应答。已有研究表明,在饲粮中添加植物多糖(如山药多糖[31]、枸杞多糖[4,15]、甘草多糖[32]等)可提高鸡血清IgA、IgM和IgG含量。本试验结果表明,在7~35日龄时,饲粮中添加PLP对血清IgA和IgM含量具有一定的提升作用,且添加200和400 mg/kg PLP可显著提高21、28日龄血清IgG含量,而IgG作为体液免疫的主要效应分子,可有效增强体液免疫功能。
Th细胞能产生多种细胞因子,根据细胞因子谱将其分为Th1和Th2细胞[33]。Th1细胞通过分泌IL-2和IFN-γ激活细胞免疫。其中,IL-2能够促进自身增殖并诱导CD8+T细胞分化为CTL细胞,直接杀伤靶细胞;IFN-γ则通过强化巨噬细胞的吞噬功能,协同清除胞内病原体[34]。Th2细胞通过分泌IL-4和IL-10主导体液免疫。其中,IL-4直接刺激B细胞增殖分化及抗体类别转换,而IL-10则通过抑制过度炎症反应维持免疫稳态[35]。此外,IL-1β作为一种重要的促炎细胞因子,能有效刺激机体产生免疫应答,但血清中IL-1β含量过高则提示炎症反应发生或持续[36]。本研究发现,饲粮中添加200 mg/kg PLP未对血清IL-1β含量产生显著影响,但在7~21日龄时PLP-M组血清IL-1β含量高于NC-A组。这一现象提示,PLP可在一定程度上激活机体免疫系统,且未引发明显炎症反应。同时,饲粮中添加200 mg/kg PLP还可提升肉仔鸡血清中Th1(IFN-γ、IL-2)和Th2(IL-4和IL-10)细胞因子含量,从而激活机体的Th1/Th2免疫反应,提升机体的细胞免疫水平。综上,PLP在体内可以同时促进体液免疫和细胞免疫相关应答,这可能在抗原特异性免疫增强方面具有显著优势。

3.4 基于脾脏转录组学探讨PLP对肉仔鸡免疫调节作用的潜在机制

脾脏作为启动免疫反应的关键器官,在先天免疫和获得性免疫中均发挥着至关重要的作用[37]。本研究通过PPI网络分析及KEGG通路富集分析,从DEGs中筛选出5个免疫相关核心基因(IL-6、IL-1βIL-10、MMP9和IL-17A)。其中,IL-6在免疫细胞的分化与功能调控中起关键作用,其不仅可以促进B细胞增殖和分化,增强抗体产生[38],还参与T细胞分化过程,尤其对Th17细胞的发育至关重要[39]。此外,IL-6和IL-1β均为经典的促炎细胞因子,二者具有协同作用,可通过NF-κB信号通路释放并放大炎症反应。IL-10则是重要的抑炎细胞因子,能够抑制促炎细胞因子的过度分泌,从而调节机体免疫状态[35]。IL-17A可诱导抗菌肽及趋化因子(如CCL4)招募中性粒细胞[40],增强血液病原体清除能力,还可与IL-22、MMP9协同作用,促进上皮屏障修复,维持组织稳态[41]
由KEGG通路富集分析结果可知,PLP作用的核心集中于细胞因子-细胞因子受体相互作用、IL-17信号通路、TLR/NF-κB轴及JAK-STAT信号通路。推测PLP可能以TLR/NF-κB轴作为免疫应答的启动枢纽,TLR信号通路(如TLR2/4)是病原模式识别的“第一哨兵”,可被PLP这类多糖类免疫调节剂激活[14],进而驱动NF-κB入核,诱导IL-1βIL-6和IL-10表达,为后续免疫反应奠定微环境基础。JAK-STAT信号通路则是细胞因子的功能执行者,上调的细胞因子(IL-6、IL-10、IL-22)可激活JAK-STAT传递指令:IL-6通过信号转导及转录激活蛋白3(STAT3)途径促进B细胞分化及Th17细胞扩增[42];IL-10通过STAT3途径调节炎症反应,保护脾脏结构;IL-22通过STAT3途径增强屏障修复。此外,IL-17信号通路是抗胞外菌防御的核心,该通路富集程度最高且PLP-M组IL-17A的mRNA相对表达量较NC-A组显著升高,提示PLP可增强Th17型免疫,并辅助B细胞活化[42],可能间接影响全身IgA分泌。综上,PLP可能通过作用于TLR而激活NF-κB信号通路,促使IL-6、IL-1βIL-10等细胞因子的表达与释放;这些细胞因子进一步参与JAK-STAT信号通路的调节,刺激T细胞和B细胞的活化。其中,IL-10通过STAT3途径负反馈调节NF-κB信号通路,避免炎症反应过度激活。上述过程共同构成免疫相关细胞因子的层级化网络通路,从而启动免疫反应,增强脾脏部分免疫功能。

4 结论

饲粮中添加200和400 mg/kg PLP能够促进肉仔鸡免疫器官、免疫细胞成熟及免疫球蛋白分泌,增强机体免疫功能;综合多项式回归结果,确定200 mg/kg为最优添加剂量。在作用机制上,PLP可能通过调控由TLR、NF-κB、细胞因子网络以及JAK-STAT信号通路构成的层级化调控网络,增强了肉仔鸡脾脏的免疫应答能力。具体表现为:在先天免疫方面,IL-17A表达上升有助于加强病原清除;在免疫平衡方面,IL-10与促炎因子协同作用,防止免疫过度激活;在组织适应方面,IL-22与MMP9共同促进脾脏结构修复。该作用机制为PLP作为畜禽免疫增强剂以替代抗生素提供了理论依据,后续研究可进一步验证其对禽类特异性免疫细胞的具体调控作用。
[1]
ZHAO R H, YANG F X, BAI Y C, et al. Research progress on the mechanisms underlying poultry immune regulation by plant polysaccharides[J]. Frontiers in Veterinary Science, 2023, 10:1175848.

DOI

[2]
曹楠, 杨舒展, 胡春燕, 等. 白术多糖对岭南黄鸡生长性能、屠宰性能及免疫器官发育的影响[J]. 动物营养学报, 2022, 34(1):205-214.

DOI

CAO N, YANG S Z, HU C Y, et al. Effects of polysaccharide of Atractylodes macrocephala koidz on growth performance,slaughter performance and immune organ development of Lingnan yellow chickens[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):205-214. (in Chinese)

[3]
WANG X, DING Y, ZHANG X P, et al. The effects of degraded polysaccharides from Acanthopanax senticosus on growth,antioxidant and immune effects in broiler chicks based on intestinal flora[J]. Poultry Science, 2025, 104(4):104933.

DOI

[4]
LONG L N, KANG B J, JIANG Q, et al. Effects of dietary Lycium barbarum polysaccharides on growth performance,digestive enzyme activities,antioxidant status,and immunity of broiler chickens[J]. Poultry Science, 2020, 99(2):744-751.

DOI

[5]
LONG L N, ZHANG H H, WANG F, et al. Research note:effects of polysaccharide-enriched acanthopanax senticosus extract on growth performance,immune function,antioxidation,and ileal microbial populations in broiler chickens[J]. Poultry Science, 2021, 100(4):101028.

DOI

[6]
郑伟剑, 曾致, 黄东璋, 等. 葛根主要成分、生物学功能及其在畜禽生产中的应用[J]. 动物营养学报, 2024, 36(10):6223-6233.

DOI

ZHENG W J, ZENG Z, HUANG D Z, et al. Main components,biological functions of Pueraria lobata and its application in livestock and poultry production[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6223-6233. (in Chinese)

[7]
吕尚揆. 葛根多糖对健康和腹泻犊牛血液相关细胞因子及肠道菌群的影响[D]. 硕士学位论文. 成都: 四川农业大学, 2023.

LYU S K. Effects of Pueraria polysaccharide on bloodrelated cytokines and intestinal flora in healthy and diarrhea calves[D]. Master’s Thesis. Chengdu: Sichuan Agricultural University, 2023. (in Chinese)

[8]
莘余, 吕尚揆, 尤留超, 等. 葛根多糖对健康犊牛基础临床指标、生理生化指标及血浆代谢物的影响[J]. 动物营养学报, 2022, 34(10):6609-6619.

DOI

SHEN Y, LYU S K, YOU L C, et al. Effects of Pueraria lobata polysaccharides on basic clinical indicators,physiological and biochemical indicators,and plasma metabolites in healthy calves[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6609-6619. (in Chinese)

DOI

[9]
DONG Z, ZHANG M M, LI H X, et al. Structural characterization and immunomodulatory activity of a novel polysaccharide from Pueraria lobata (Willd.) Ohwi root[J]. International Journal of Biological Macromolecules, 2020, 154:1556-1564.

DOI

[10]
张壮, 李琼, 黄丽萍, 等. 粉葛与葛根多糖对脂多糖诱导RAW264.7细胞的抗炎作用[J]. 现代食品科技, 2022, 38(7):1-10.

ZHANG Z, LI Q, HUANG L P, et al. Anti-inflammatory effect of Pueraria lobata (Willd.) Ohwi and P.thomsonii benth.polysaccharides on LPS-induced RAW264.7 cells[J]. Modern Food Science & Technology, 2022, 38(7):1-10. (in Chinese)

[11]
DOU Z M, ZHANG Y L, TANG W J, et al. Ultrasonic effects on the degradation kinetics,structural characteristics and protective effects on hepatocyte lipotoxicity induced by palmitic acid of Pueraria lobata polysaccharides[J]. Ultrasonics Sonochemistry, 2023, 101:106652.

DOI

[12]
董洲. 野葛根多糖的提取、分离纯化、结构鉴定及对小鼠巨噬细胞RAW264.7的免疫调节活性研究[D]. 硕士学位论文. 广州: 华南理工大学, 2018.

DONG Z. Extraction,isolation,purification,structural characterization and immunomodulatory activity in RAW264.7 cells of the polysaccharides from Pueraria lobata (Willd.) Ohwi root[D]. Master’s Thesis. Guangzhou: South China University of Technology, 2018. (in Chinese)

[13]
KIM H S, SHIN B R, LEE H K, et al. A polysaccharide isolated from Pueraria lobata enhances maturation of murine dendritic cells[J]. International Journal of Biological Macromolecules, 2013, 52:184-191.

DOI

[14]
CAI G F, WU C H, ZHU T Y, et al. Structure of a pueraria root polysaccharide and its immunoregulatory activity on T and B lymphocytes,macrophages,and immunosuppressive mice[J]. International Journal of Biological Macromolecules, 2023, 230:123386.

DOI

[15]
LIU Y L, YIN R Q, LIANG S S, et al. Effect of dietary Lycium barbarum polysaccharide on growth performance and immune function of broilers[J]. Journal of Applied Poultry Research, 2017, 26(2):200-208.

DOI

[16]
GUO J H, WEI T T, CHEN J F, et al. Structural characterization and immune activity evaluation of polysaccharide purified from Viola phillipica[J]. International Journal of Pharmaceutics, 2025, 678:125689.

DOI

[17]
LU Y B, MAIMAITI S, QIN Z K, et al. Effects of Ficus carica L. polysaccharide on the intestinal immune function and microbiota of broilers[J]. Frontiers in Immunology, 2025, 16:1579046.

DOI

[18]
SU J Q, XUE J J, WANG X Y, et al. Modulation of cyclophosphamide-induced immunosuppression and intestinal flora in broiler by deep eutectic solvent extracted polysaccharides of Acanthopanax senticosus[J]. Frontiers in Veterinary Science, 2024, 11:1415716.

DOI

[19]
WANG J L, DAI G N, SHANG M Y, et al. Extraction,structural-activity relationships,bioactivities,and application prospects of Pueraria lobata polysaccharides as ingredients for functional products:a review[J]. International Journal of Biological Macromolecules, 2023, 243:125210.

DOI

[20]
LIU C F, MIN X Y, WANG N Y, et al. Complement receptor 3 has negative impact on tumor surveillance through suppression of natural killer cell function[J]. Frontiers in Immunology, 2017, 8:1602.

DOI

[21]
SINGH M, O’HAGAN D T. Recent advances in veterinary vaccine adjuvants[J]. International Journal for Parasitology, 2003, 33(5/6):469-478.

DOI

[22]
DENG K, ADAMS M M, GIN D Y. Synthesis and structure verification of the vaccine adjuvant QS-7-Api.synthetic access to homogeneous Quillaja saponaria immunostimulants[J]. Journal of the American Chemical Society, 2008, 130(18):5860-5861.

DOI

[23]
ZOUGGARI Y, AIT-OUFELLA H, BONNIN P, et al. B lymphocytes trigger monocyte mobilization and impair heart function after acute myocardial infarction[J]. Nature Medicine, 2013, 19(10):1273-1280.

DOI PMID

[24]
KIM H M, HAN S B, OH G T, et al. Stimulation of humoral and cell mediated immunity by polysaccharide from mushroom Phellinus linteus[J]. International Journal of Immunopharmacology, 1996, 18(5):295-303.

DOI

[25]
FAN Y P, MA L, ZHANG W M, et al. Liposome can improve the adjuvanticity of Astragalus polysaccharide on the immune response against ovalbumin[J]. International Journal of Biological Macromolecules, 2013, 60:206-212.

DOI

[26]
BO R N, SUN Y Q, ZHOU S Z, et al. Simple nanoliposomes encapsulating Lycium barbarum polysaccharides as adjuvants improve humoral and cellular immunity in mice[J]. International Journal of Nanomedicine, 2017, 12:6289-6301.

DOI

[27]
YANG S B, SHAN C L, MA X, et al. Immunomodulatory effect of Acanthopanax senticosus polysaccharide on immunosuppressed chickens[J]. Poultry Science, 2021, 100(2):623-630.

DOI

[28]
GUO L W, LIU J G, HU Y A, et al. Astragalus polysaccharide and sulfated epimedium polysaccharide synergistically resist the immunosuppression[J]. Carbohydrate Polymers, 2012, 90(2):1055-1060.

DOI

[29]
FAN Y P, HU Y L, WANG D Y, et al. Epimedium polysaccharide and propolis flavone can synergistically stimulate lymphocyte proliferation in vitro and enhance the immune responses to ND vaccine in chickens[J]. International Journal of Biological Macromolecules, 2010, 47(2):87-92.

DOI

[30]
QIAO Q G, SONG X Z, ZHANG C, et al. Structure and immunostimulating activity of polysaccharides derived from the roots and leaves of dandelion[J]. Chemical and Biological Technologies in Agriculture, 2024, 11(1):51.

DOI

[31]
DENG J H, ZHANG J Z, CHANG Y D, et al. Effects of Chinese yam polysaccharides on the immune function and serum biochemical indexes of broilers[J]. Frontiers in Veterinary Science, 2022, 9:1013888.

DOI

[32]
WU Y, LI N N, ZHANG T, et al. Glycyrrhiza polysaccharides can improve and prolong the response of chickens to the Newcastle disease vaccine[J]. Poultry Science, 2022, 101(1):101549.

DOI

[33]
YANG M X, LIU Y G, REN G W, et al. Increased expression of surface CD44 in hypoxia-DCs skews helper T cells toward a Th2 polarization[J]. Scientific Reports, 2015, 5:13674.

DOI PMID

[34]
WANG Y Y, HUANG M Y, SUN R L, et al. Extraction,characterization of a Ginseng fruits polysaccharide and its immune modulating activities in rats with Lewis lung carcinoma[J]. Carbohydrate Polymers, 2015, 127:215-221.

DOI

[35]
YANG S F, DONG W W, LI G M, et al. A recombinant vaccine of Riemerella anatipestifer OmpA fused with duck IgY Fc and Schisandra chinensis polysaccharide adjuvant enhance protective immune response[J]. Microbial Pathogenesis, 2019, 136:103707.

DOI

[36]
LIU W, WANG Z, HOU J G, et al. The liver protection effects of maltol,a flavoring agent,on carbon tetrachloride-induced acute liver injury in mice via inhibiting apoptosis and inflammatory response[J]. Molecules, 2018, 23(9):2120.

DOI

[37]
BRONTE V, PITTET M J. The spleen in local and systemic regulation of immunity[J]. Immunity, 2023, 56(5):1152.

DOI PMID

[38]
KANG S J, NARAZAKI M, METWALLY H, et al. Historical overview of the interleukin-6 family cytokine[J]. The Journal of Experimental Medicine, 2020, 217(5):e20190347.

DOI

[39]
HIRANO T. IL-6 in inflammation,autoimmunity and cancer[J]. International Immunology, 2021, 33(3):127-148.

DOI

[40]
HUANGFU L J, LI R Y, HUANG Y M, et al. The IL-17 family in diseases:from bench to bedside[J]. Signal Transduction and Targeted Therapy, 2023, 8(1):402.

DOI

[41]
IWAKURA Y, NAKAE S S, SAIJO S, et al. The roles of IL-17A in inflammatory immune responses and host defense against pathogens[J]. Immunological Reviews, 2008, 226:57-79.

DOI PMID

[42]
GARBERS C, ROSE-JOHN S. Dissecting interleukin-6 classic and trans-signaling in inflammation and cancer[M]// JENKINS B J.Inflammation and cancer:methods and protocols. New York: Humana Press,2023:207-224.

文章导航

/