研究论文

饲粮中添加柠条对体外瘤胃发酵特性及微生物群落结构的影响

  • 张丹丹 ,
  • 杨洲 ,
  • 梁圆 ,
  • 程景 ,
  • 李博 ,
  • 王栋才 ,
  • 孙锐锋 ,
  • 张元庆 , *
展开
  • 山西农业大学动物科学学院, 太原 030801
* 张元庆,教授,博士生导师,E-mail:

张丹丹(1991—),女,山西阳城人,助理研究员,硕士,从事反刍动物营养与饲料资源开发研究。E-mail:

收稿日期: 2025-05-23

  网络出版日期: 2025-12-13

基金资助

山西省高等学校科技创新项目(2023L051)

山西农业大学动物科学学院团队培育专项(xmstdpy04)

Effects of Dietary Caragana korshinskii Kom. on Rumen Fermentation Characteristics and Microbial Community Structure in Vitro

  • ZHANG Dandan ,
  • YANG Zhou ,
  • LIANG Yuan ,
  • CHENG Jing ,
  • LI Bo ,
  • WANG Dongcai ,
  • SUN Ruifeng ,
  • ZHANG Yuanqing , *
Expand
  • College of Animal Science, Shanxi Agricultural University, Taiyuan 030801, China
* professor, E-mail:

Received date: 2025-05-23

  Online published: 2025-12-13

摘要

本研究旨在研究饲粮中添加柠条对体外瘤胃发酵特性及微生物群落结构的影响。粗饲料中全株玉米青贮和柠条的比例分别为100∶0(CK0组)、75∶25(CK25组)、50∶50(CK50组)、25∶75(CK75组)和0∶100(CK100组),再以40∶60的比例将精饲料与粗饲料制成全混合日粮,每组设置3个重复,开展体外模拟瘤胃发酵试验。结果表明,柠条添加比例显著影响产气量(GP)、体外干物质降解率(IVDMD)及氨态氮(NH3-N)、丁酸(BA)和戊酸(VA)含量(P<0.05)。主坐标分析(PCoA)揭示各组之间微生物群落结构存在显著差异(P=0.004),柠条添加比例显著影响潜在新属10(probable_genus_10)和产乙酸糖发酵菌属(Saccharofermentans)相对丰度(P<0.05),且CK25组拟杆菌门(Bacteroidota)和理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)相对丰度最高。线性判别分析效应大小(LEfSe)分析鉴定出21个差异菌群(P<0.05),Spearman相关性分析揭示GP与产乙酸糖发酵菌属(Saccharofermentans)呈极显著正相关(r=0.77,P<0.01)。综上所述,饲粮中添加柠条饲料可影响瘤胃发酵性能,提高瘤胃微生物的丰富度并增强其稳定性。当饲粮中精料与粗饲料的比例为40∶60时,推荐柠条添加比例为25%。

本文引用格式

张丹丹 , 杨洲 , 梁圆 , 程景 , 李博 , 王栋才 , 孙锐锋 , 张元庆 . 饲粮中添加柠条对体外瘤胃发酵特性及微生物群落结构的影响[J]. 动物营养学报, 2025 , 37(12) : 8666 -8680 . DOI: 10.12418/CJAN2025.706

Abstract

This study aimed to investigate the effects of dietary Caragana korshinskii Kom. on rumen fermentation characteristics and microbial community structure in vitro. The proportion of whole plant corn silage and Caragana korshinskii Kom. in roughage were 100∶0 (CK0 group), 75∶25 (CK25 group), 50∶50 (CK50 group), 25∶75 (CK75 group) and 0∶100 (CK100 group), respectively, then make a total mixed ratio with the concentrate to roughage of 40∶60, each group had 3 repelicates, donducted the in vitro simulated rumen fermentation experiments. The results showed that the Caragana korshinskii Kom. supplemental proportion significantly affected the gas production (GP), in vitro dry matter degradation rate (IVDMD) and contents of ammonia nitrogen (NH3-N), butyric acid (BA), valeric acid (VA) (P<0.05). The principal coordinate analysis (PCoA) revealed there were significant differences in microbial community structure among all groups (P=0.004), the Caragana korshinskii Kom. supplemental proportion significantly affected the relative abundances of probable_genus_10 and Saccharofermentans (P<0.05), and the relative abundance of Bacteroidetes and Rikenellaceae_RC9_gut_group of CK25 group were the highest. The linear discriminant analysis effect size (LefSe) analysis identified 21 differential microbial communities (P<0.05), and the Spearman correlation analysis revealed an extremely significant positive correlation between GP and Saccharofermentans (r=0.77, P<0.01). In conclusion, dietary Caragana korshinskii Kom. can affect the rumen fermentation performance, and increase the richness and stability of rumen microorganisms. The recommended Caragana korshinskii Kom. supplemental proportion is 25% when the ratio of concentrate to roughage in the diet is 40∶60.

随着畜牧业集约化与规模化发展的持续推进,我国饲料行业面临显著增长的供需矛盾。2022年度全国工业饲料总消费量已攀升至4.54亿t[1],较上年同期增长0.9%。其中,反刍动物饲料消费增速尤为突出,其年度增长率显著高于行业平均水平,揭示出畜产品消费结构升级对饲料产业形成的倒逼效应。当前我国饲料原料供给体系面临严峻的结构性挑战,内源性蛋白质资源不足,大豆粕、菜籽粕等优质植物性蛋白质原料长期依赖进口补给。外部因素(包括全球极端气候频发、地缘政治关系紧张以及国际物流体系波动)对主要蛋白质原料出口国的生产能力形成显著制约,饲料市场面临着原材料短缺和成本高昂的双重挑战[2-3]
基于此,越来越多的学者致力于非常规饲料资源的开发利用研究,且多项研究证明,饲喂非常规饲料可以提高反刍动物的生长性能[4-6]。例如,使用干酒糟及其可溶物(DDGS)饲喂育肥肉牛,在不对肉牛的生长性能或胴体特性产生负面影响的前提下,可以降低料重比[7]。补充黑枸杞残果能够提高育肥羊的生长性能,优化瘤胃发酵参数,并最终提高养殖效益[8]。因此,开发和利用非常规饲草资源对缓解饲料短缺和提高养殖效率具有重要意义。
柠条(Caragana korshinskii Kom.,CK)是一种多年生豆科灌木,广泛种植于我国干旱的荒漠地区[9],具有生长快速、耐寒抗旱、产量高、营养丰富以及价格低廉等优势。有研究证明,将柠条作为反刍动物饲料可以节约成本和提高生产效率[10]。在绵羊饲粮中添加柠条,可以丰富瘤胃、回肠和盲肠中的微生物组成,增强绵羊的瘤胃发酵能力,改善肌肉脂肪酸分布[11-12]。但目前对于柠条的应用研究多集中在羊上,在肉牛上的研究相对较少。因此,需要进一步探索柠条用作肉牛饲料的可行性。
尽管柠条作为饲料利用具有诸多优点,但由于其木质素含量高,纤维结构复杂,动物对其利用效率较低。针对此限制,王金宇等[13]提出,通过合理的饲料配方设计,可以有效提高饲料纤维的利用率。因此,本研究通过添加不同比例的柠条,利用体外模拟瘤胃发酵的方法,评价柠条的饲用价值,以及研究其对晋南牛体外瘤胃发酵的影响,并筛选出适宜的添加比例,为柠条的高效利用提供参考依据,也为肉牛产业的高质发展提供助力。

1 材料与方法

1.1 试验材料

选取山西省忻州市(东经112.73°,北纬38.42°)种植柠条,在开花期随机从3个位置收割,地上部分留茬15~20 cm。全株玉米青贮和精料取自山西省和顺县大友牛场。采集饲料样品后均于65 ℃烘干,粉碎,过筛(0.425 mm)。参照Van Soest等[14]的方法测定中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)含量,干物质(DM)(GB/T 6435—2006[15])、粗蛋白质(CP)(GB/T 6432—2018[16])、粗脂肪(EE)(GB/T 6433—2025[17])和粗灰分(Ash)(GB/T 6438—2007[18])参照国标方法测定。柠条和全株玉米青贮营养水平见表1,精料组成及营养水平见表2
表1 柠条和全株玉米青贮营养水平(风干基础)

Table 1 Nutrient levels of CK and whole plant corn silage (air-dry basis) %

项目
Items
柠条
CK
全株玉米青贮
Whole plant
corn silage
干物质DM 95.71 96.48
粗脂肪EE 3.61 2.31
中性洗涤纤维NDF 62.52 45.00
酸性洗涤纤维ADF 45.95 22.80
粗蛋白质CP 12.22 6.50
粗灰分Ash 4.90 4.01
表2 精料组成及营养水平(风干基础)

Table 2 Composition and nutrient levels of the concentrate (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 70.00
豆粕Soybean meal 5.00
棉籽粕Cottonseed meal 10.00
大豆皮Soybean hull 8.00
氯化钠NaCl 1.00
小苏打NaHCO3 1.00
预混料Premix1) 5.00
合计Total 100.00
营养水平Nutrient levels2)
综合净能NEmf/(MJ/kg) 7.14
干物质DM 96.18
粗脂肪EE 2.06
中性洗涤纤维NDF 19.56
酸性洗涤纤维ADF 9.88
粗蛋白质CP 10.29
粗灰分Ash 8.51

1)每千克预混料含 One kg of the premix contained the following:VA 80~120 kIU,VE 160~240 IU,VD3 16~24 kIU,Ca 75~115 g,Cu 0.3~0.45 g,I 1.6~2.4 mg,P 14~20 g,Zn 1.4~2.1 g,Se 7.2~10.8 mg,Mn 1.4~2.1 g,Fe 1.4~2.2 g,Co 5.6~8.4 mg。

2)综合净能根据《肉牛饲养标准》(NY/T 815—2004)[19]计算得出,其他营养水平均为实测值。NEmf was calculated according to Feeding Standard of Beef Cattle (NY/T 815—2004)[19], while the other nutrient levels were measured values.

1.2 试验设计

饲粮精粗比为40∶60,粗饲料中全株玉米青贮和柠条的比例分别为100∶0(CK0组,对照组)、75∶25(CK25组)、50∶50(CK50组)、25∶75(CK75组)和0∶100(CK100组),每组设置3个重复,通过体外模拟瘤胃发酵试验评价不同组合的瘤胃发酵性能。

1.3 试验方法

1.3.1 瘤胃液采集

瘤胃液取自4头装有瘤胃瘘管的晋南阉牛。在试验当天晨饲前采集瘤胃液1 000 mL,置于预先通有二氧化碳(CO2)的保温瓶中,盖严瓶口后迅速带回实验室。将瘤胃液混合均匀后经4层纱布过滤,置于39 ℃水浴中保存,并持续充入CO2以确保瘤胃液处于厌氧环境。

1.3.2 体外发酵试验

按照Menke等[20]介绍的方法配制缓冲液后,持续通入CO2并预热至39 ℃。将采集的晋南牛瘤胃液与缓冲液以1∶2的比例混合后制成人工瘤胃培养液。准确称量0.22 g发酵底物,加入30 mL人工瘤胃培养液后,在水浴恒温摇床中反应72 h后,终止发酵。将培养管中发酵液离心(4 ℃,5 900×g,15 min),所得上清液于-80 ℃保存,用于挥发性脂肪酸(volatile fatty acid,VFA)、氨态氮(NH3-N)和微生物蛋白(microbial protein,MCP)含量测定。多次清洗残渣后将残渣烘干,用于体外干物质降解率(in vitro dry matter degradation rate,IVDMD)测定。

1.4 测定指标及方法

1.4.1 产气量(GP)的测定及产气动力学模型分析

分别在1、2、3、4、6、8、10、12、24、28、32、48、58、72 h记录相应GP,不同时间的GP计算公式如下:
GPt=(Vt样-V0样)-(Vt空-V0空)。
式中:GPt为样品在t时刻的产气量(mL);Vt样为样品发酵t小时后培养管的刻度;V0样为样品在开始发酵时培养管的刻度;Vt空为空白管发酵t小时后培养管的刻度;V0空为空白管在开始发酵时培养管的刻度。
采用体外发酵模型[21]计算产气动力学参数,计算公式如下:
GP=b[1-e-c(t-Lag)]。
式中:GPt时间点的产气量(mL);b为理论最大产气量(mL);c为产气速度(mL/h);t为体外培养时间(h);Lag为延滞期(h)。

1.4.2 瘤胃发酵参数的测定

采用酸度计[pH S-25,上海仪电(雷磁)科学仪器股份有限公司]测定pH,采用碱性次氯酸钠-苯酚法(T2602紫外可见分光光度计,上海佑科仪器仪表有限公司)测定NH3-N含量,采用气相色谱法(Aglient7890A气相色谱仪,安捷伦科技有限公司)测定VFA含量,总挥发性脂肪酸(TVFA)为各VFA之和。

1.4.3 IVDMD的测定

IVDMD计算公式如下:
IVDMD(%)=100×[发酵底物干物质含量-(样品残渣干物质含量-空白管残渣干物质含量)]/发酵底物干物质含量。

1.5 瘤胃微生物区系的测定

1.5.1 DNA抽提

根据PF Mag-Bind Stool DNA Kit(美国Omega Bio-Tek公司)说明书进行微生物群落总基因组DNA抽提,使用1%的琼脂糖凝胶电泳检测抽提的基因组DNA的完整性,使用NanoDrop2000超微量分光光度计(美国Thermo Scientific公司)测定DNA浓度和纯度。

1.5.2 PCR扩增和测序文库构建

以上述提取的DNA为模板,使用携带Barcode序列的上游引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和下游引物806R(5'-GGACTACHVGGGTWTCTAAT-3')对16S rRNA基因V3~V4可变区进行PCR扩增。将同一样本的PCR产物混合后使用2%琼脂糖凝胶回收PCR产物,并进行产物纯化,2%琼脂糖凝胶电泳检测条带片段大小,并用QuantusTM Fluorometer荧光计(美国Promega公司)对回收产物进行检测定量。使用NEXTFLEX Rapid DNA-Seq Kit试剂盒(美国Bioo Scientific公司)对纯化后的PCR产物进行建库,利用Nextseq2000平台(美国Illumina公司)进行测序,交由上海美吉生物医药科技有限公司完成。
基于默认参数,使用Qiime2流程中的DADA2插件对质控拼接之后的优化序列进行降噪处理,生成扩增子序列变异(amplicon sequence variants,ASVs)。根据ASVs信息,使用Mothur v1.30.2计算α多样性指数,包括Chao1指数、Shannon指数。微生物α多样性差异通过Kruskal-Wallis检验进行分析,显著性水平为P<0.05。基于Sliva 16S rRNA基因数据库(v 138),使用Qiime2中的Naive bayes分类器对ASVs进行物种分类学分析。通过线性判别分析效应大小(linear discriminant analysis effect size,LEfSe)分析[(P<0.05,线性判别分析(linear discriminant analysis,LDA)>2)]对样本进行差异显著细菌筛选,运用R-3.3.1, python-2.7对瘤胃发酵参数与瘤胃菌属(相对丰度前20)进行Pearson相关性分析。

1.6 统计分析

原始数据通过Excel 2016处理后,再使用SPSS 21.0软件对瘤胃发酵参数进行单因素方差分析(one-way ANOVA)、线性(linear)及二次(quadratic)回归分析;对各组门和属水平物种进行单因素方差分析,并采用Duncan氏法进行多重比较,以P<0.05为差异显著,P<0.01为差异极显著。结果用平均值和均值标准误(standard error of mean,SEM)表示。微生物群落中的箱型图、韦恩图、热图以及柱状图采用上海美吉生物医药科技有限公司云平台进行制图。

2 结果与分析

2.1 体外模拟瘤胃发酵参数

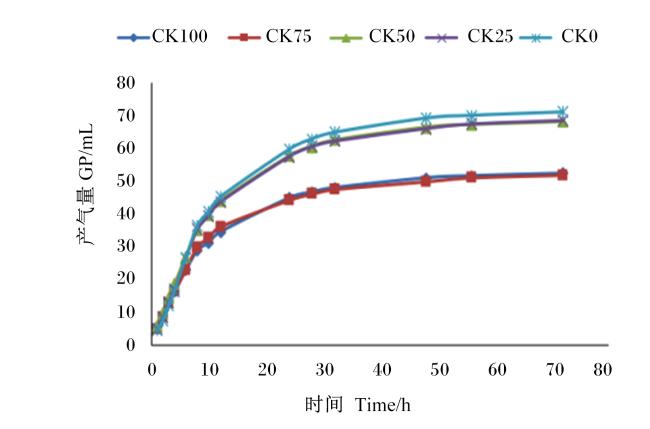
图1所示,各组GP均随发酵时间延长呈上升趋势。发酵10~72 h时,各组GP表现出较大差异,其中CK0、CK25和CK50组GP相对较高,CK75和CK100组GP相对较低。
图1 72 h产气量

CK0:CK0组 CK0 group;CK25:CK25组 CK25 group;CK50:CK50组 CK50 group;CK75:CK75组 CK75 group;CK100:CK100组 CK100 group。下图同 the same as below。

Fig.1 GP within 72 h

表3所示,经72 h发酵后,柠条添加比例对GP、IVDMD及NH3-N、丙酸(PA)、丁酸(BA)、戊酸(VA)含量有显著影响(P<0.05),GP、IVDMD、NH3-N、BA、异戊酸(IVA)、VA和乙酸/丙酸(AA/PA)均呈显著的线性和二次曲线变化(P<0.05),丙酸(PA)含量呈现显著的二次曲线变化(P<0.05)。CK75组、CK100组GP显著低于CK0组、CK25组、CK50组(P<0.05)。CK0组IVDMD显著高于其他各组(P<0.05)。CK75组NH3-N含量最高,显著高于CK0组、CK50组(P<0.05)。CK50组PA含量显著低于其他各组(P<0.05)。CK50组、CK75组、CK100组BA含量显著低于CK0组(P<0.05)。CK75组、CK100组VA含量显著高于CK0组、CK25组、CK50组(P<0.05)。
表3 柠条添加比例对72 h发酵后体外发酵参数的影响

Table 3 Effects of CK supplemental proportion on in vitro fermentation parameters after 72 h fermentation

项目
Items
组别Groups SEM PP-value
CK0 CK25 CK50 CK75 CK100 处理
Treatment
线性
Linear
二次
Quadratic
产气量GP/mL 71.10a 68.53a 68.10a 51.90b 52.40b 0.868 <0.001 <0.001 <0.001
体外干物质降解率
IVDMD/%
76.19a 68.90b 63.98c 61.50c 55.39d 1.347 <0.001 <0.001 <0.001
pH 5.98 6.01 5.92 5.92 6.11 0.123 0.794 0.625 0.589
氨态氮
NH3-N/(mg/dL)
28.14c 31.71ab 30.57bc 33.71a 32.05ab 0.907 0.004 0.004 0.005
微生物蛋白
MCP/(μg/mL)
88.97 90.83 84.63 83.18 88.71 3.947 0.632 0.512 0.579
乙酸AA/(mmol/L) 52.27 43.68 39.16 49.27 53.29 4.064 0.146 0.626 0.053
丙酸PA/(mmol/L) 14.67a 13.38a 10.94b 13.35a 13.13a 0.613 0.020 0.283 0.045
异丁酸
IBA/(mmol/L)
0.77 0.78 0.70 0.77 0.75 0.021 0.148 0.561 0.607
丁酸BA/(mmol/L) 8.85a 8.51ab 7.13c 7.81bc 7.27c 0.231 0.001 0.002 0.004
异戊酸
IVA/(mmol/L)
1.71 1.57 1.46 1.52 1.50 0.062 0.108 0.032 0.026
戊酸VA/(mmol/L) 0.95b 1.00b 0.91b 1.12a 1.13a 0.031 0.002 0.006 0.011
总挥发性脂肪酸
TVFA/(mmol/L)
79.23 68.93 60.30 73.83 77.06 4.872 0.120 0.977 0.061
乙酸/丙酸AA/PA 3.56 3.24 3.57 3.69 4.04 0.158 0.058 0.023 0.017

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

表4所示,柠条添加比例对理论最大产气量、产气速率和延滞期有显著影响(P<0.05),理论最大产气量和延滞期均呈显著的线性和二次曲线变化(P<0.05),产气速率呈显著的线性变化(P<0.05)。CK75组、CK100组理论最大产气量显著低于CK0组、CK25组、CK50组(P<0.05)。CK75组产气速率显著高于CK0组、CK25组、CK50组(P<0.05)。CK0组延滞期显著高于其他各组(P<0.05)。
表4 柠条添加比例对体外发酵产气动力学参数的影响

Table 4 Effects of CK supplemental proportion on gas production kinetics parameters in vitro fermentation

项目
Items
组别Groups SEM PP-value
CK0 CK25 CK50 CK75 CK100 处理
Treatment
线性
Linear
二次
Quadratic
理论最大产气量
b/mL
70.11a 67.30a 67.26a 50.29b 51.29b 1.729 <0.001 <0.001 <0.001
产气速率c/(mL/h) 0.09b 0.09b 0.09b 0.10a 0.10ab 0.001 0.018 0.027 0.097
延滞期Lag/h 0.57a 0.36b 0.14c 0.09c 0.01c 0.073 0.001 <0.001 <0.001

2.2 体外模拟瘤胃微生物群落多样性

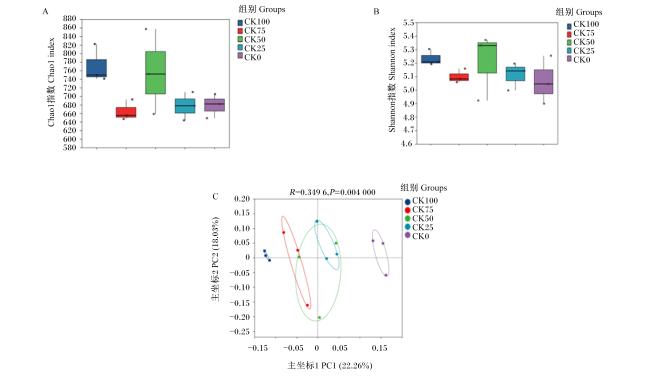
经72 h发酵后,通过16S rRNA基因测序共获得988 641条高质量序列。经标准化抽平处理后,各样本平均保留38 959个ASVs。尽管各组之间α多样性指数(Chao1指数和Shannon指数)无显著差异(P>0.05)(图2-A图2-B),但CK75组保持较低水平,而CK50组则保持最高水平。
图2 柠条添加比例对微生物群落多样性的影响

A:Chao1指数 Chao1 index;B:Shannon指数 Shannon index;C:主坐标分析 PCoA。

Fig.2 Effects of CK supplemental proportion on microbial community diversity

β多样性分析显示(图2-C),基于Bray-Curtis距离的主坐标分析(PCoA)揭示各组间微生物群落结构存在显著差异(P=0.004),其中主坐标1(PC1)和主坐标2(PC2)分别解释22.26%和18.03%的微生物群落变异度。

2.3 体外模拟瘤胃微生物群落组成

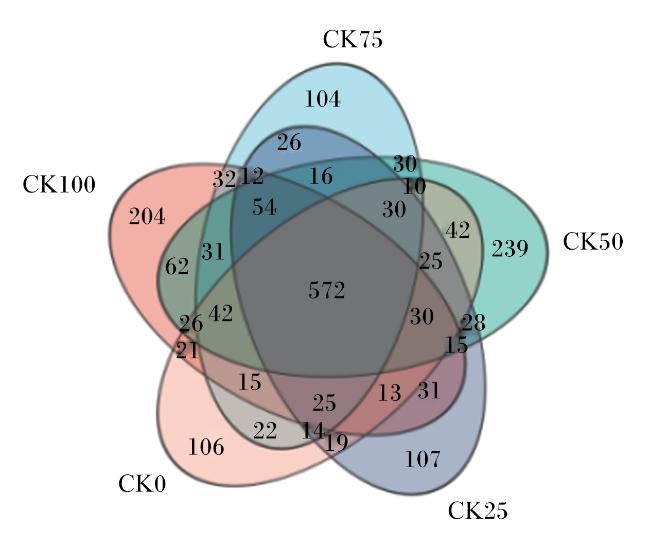
Venn图(图3)分析表明,5组共有ASVs数量为572个,各组特有ASVs数量分别为:CK0组106个,CK25组107个,CK50组239个,CK75组104个,CK100组204个。
图3 微生物ASVs数量Venn图

Fig.3 Venn diagram of ASVs number of microbiota

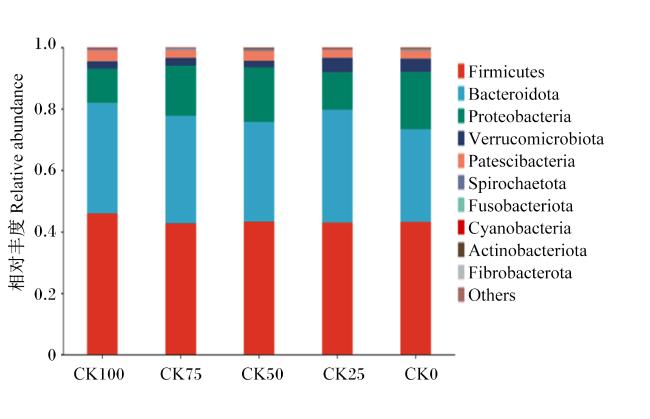
门水平微生物群落组成分析显示(图4表5),各组的优势菌门均为厚壁菌门(Firmicutes,相对丰度>42.78%)和拟杆菌门(Bacteroidota,>30.08%),且各组之间差异不显著(P>0.05)。其中,CK100组厚壁菌门相对丰度最高(45.94%),CK75组最低(42.78%);CK25组拟杆菌门相对丰度最高(36.68%),CK0组最低(30.08%)。CK0组变形菌门(Proteobacteria)相对丰度最高(18.68%),CK100组最低(11.15%)。
图4 柠条添加比例对微生物相对丰度的影响(门水平,前10)

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Verrucomicrobiota:疣微菌门;Patescibacteria:髌骨菌门;Spirochaetota:螺旋体门;Fusobacteriota:梭杆菌门;Cyanobacteria:蓝细菌门;Actinobacteriota:放线菌门;Fibrobacterota:丝状杆菌门。

Fig.4 Effects of CK supplemental proportion on relative abundance of microbiota (at phylum level, top 10)

表5 柠条添加比例对微生物门水平相对丰度的影响(前10)

Table 5 Effects of CK supplemental proportion on microbial relative abundance at phylum level (top 10) %

项目
Items
组别Groups SEM P
P-value
CK0 CK25 CK50 CK75 CK100
厚壁菌门Firmicutes 43.19 42.99 43.24 42.78 45.94 2.553 0.833
拟杆菌门Bacteroidota 30.08 36.68 32.42 34.95 35.95 3.153 0.355
变形菌门Proteobacteria 18.68 12.20 17.81 16.30 11.15 3.346 0.271
疣微菌门Verrucomicrobiota 4.33 4.66 2.18 2.60 2.44 1.160 0.261
髌骨菌门Patescibacteria 2.53 2.63 3.13 2.42 3.46 0.308 0.226
螺旋体门Spirochaetota 0.17 0.21 0.47 0.29 0.39 0.072 0.092
梭杆菌门Fusobacteriota 0.38 0.08 0.08 0.18 0.08 0.100 0.411
蓝细菌门Cyanobacteria 0.19 0.15 0.13 0.14 0.18 0.051 0.921
放线菌门Actinobacteriota 0.15 0.11 0.12 0.08 0.11 0.026 0.496
丝状杆菌门Fibrobacterota 0.06 0.06 0.15 0.06 0.08 0.025 0.768
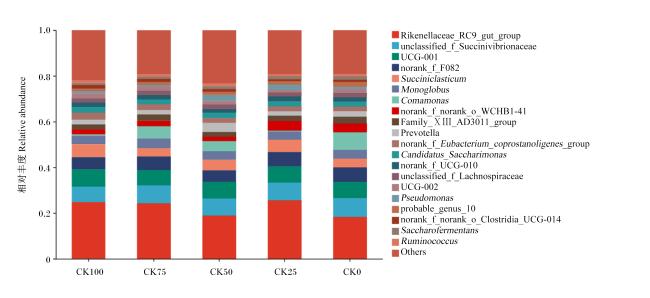
属水平微生物群落组成分析显示(图5表6),理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)为绝对优势菌属(相对丰度>18%),其中以CK25组最高(25.58%),CK0最低(18.38%)。柠条添加比例对潜在新属10(probable_genus_10)和产乙酸糖发酵菌属(Saccharofermentans)相对丰度有显著影响(P<0.05),且随着柠条的添加比例的增加呈下降的趋势。
图5 柠条添加比例对微生物相对丰度的影响(属水平,前20)

Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;unclassified_f_Succinivibrionaceae:琥珀酸弧菌科未分类属;norank_f_F082:F082科未明确属;Succiniclasticum:解琥珀酸菌属;Monoglobus:单球菌属;Comamonas:丛毛单胞菌属;norank_f_norank_o_WCHB1-41:WCHB1-41目未明确科未明确属;Family_ⅩⅢ_AD3011_group:十三科_AD3011_组;Prevotella:普雷沃氏菌属;norank_f_Eubacterium_coprostanoligenes_group:优杆菌产丁酸细菌群科未明确属;Candidatus_Saccharimonas:假丝酵母菌属;norank_f_UCG-010:UCG-010科未明确科属;unclassified_f_Lachnospiraceae:毛螺菌科未分类属;Pseudomonas:假单胞菌属;probable_genus_10:潜在新属10;norank_f_norank_o_Clostridia_UCG-014:梭菌UCG-014目未明确科未明确属;Saccharofermentans:产乙酸糖发酵菌属;Ruminococcus:瘤胃球菌属。

Fig.5 Effects of CK supplemental proportion on relative abundance of microbiota (at genus level, top 20)

表6 柠条添加比例对微生物属水平相对丰度的影响(前20位)

Table 6 Effects of CK supplemental proportion on microbial relative abundance at genus level (top 20) %

项目
Items
组别Groups SEM P
P-value
CK0 CK25 CK50 CK75 CK100
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
18.38 25.58 18.91 24.18 24.82 2.448 0.103
琥珀酸弧菌科未分类属
Unclassified_f_Succinivibrionaceae
8.28 7.71 7.45 8.04 6.71 0.573 0.359
UCG-001 6.98 7.13 7.34 6.58 7.62 0.565 0.443
F082科未明确属
norank_f_F082
6.45 6.26 5.03 5.93 5.34 0.735 0.323
解琥珀酸菌属
Succiniclasticum
3.75 5.43 4.60 3.65 5.60 1.263 0.598
单球菌属Monoglobus 3.92 3.69 3.74 4.31 3.79 0.271 0.380
丛毛单胞菌属Comamonas 5.88 4.30 4.48 5.13 4.72 0.508 0.184
WCHB1-41目未明确科未明确属
norank_f_norank_o_WCHB1-41
3.90 4.23 1.90 2.39 2.19 1.176 0.287
十三科_AD3011_组
Family_ⅩⅢ_AD3011_group
2.99 2.40 2.04 2.76 2.19 0.270 0.151
普雷沃氏菌属Prevotella 2.30 1.85 3.99 1.87 2.22 0.634 0.478
优杆菌产丁酸细菌群科未明确属
Norank_f_Eubacterium_
coprostanoligenes_group
2.10 2.11 2.14 2.67 2.91 0.315 0.274
假丝酵母菌属
Candidatus_Saccharimonas
2.10 2.17 2.42 2.05 2.58 0.241 0.483
UCG-010科未明确属
norank_f_UCG-010
2.03 2.20 1.54 1.95 1.83 0.248 0.498
毛螺菌科未分类属
Unclassified_f_Lachnospiraceae
1.88 1.67 1.93 1.78 1.78 0.173 0.730
UCG-002 1.72 1.31 1.58 1.92 2.33 0.304 0.207
假单胞菌属Pseudomonas 2.20 2.02 2.13 1.89 1.96 0.286 0.922
潜在新属10 Probable_genus_10 1.96a 1.43b 1.35b 1.16bc 0.91c 0.174 0.043
梭菌UCG-014未明确科未明确属
norank_f_norank_o_lostridia_
UCG-014
0.91 0.91 1.31 1.43 1.68 0.163 0.056
产乙酸糖发酵菌属
Saccharofermentans
1.51a 1.39b 1.22ab 0.94bc 0.80c 0.100 0.036
瘤胃球菌属Ruminococcus 0.96 0.99 1.30 1.16 1.26 0.116 0.127
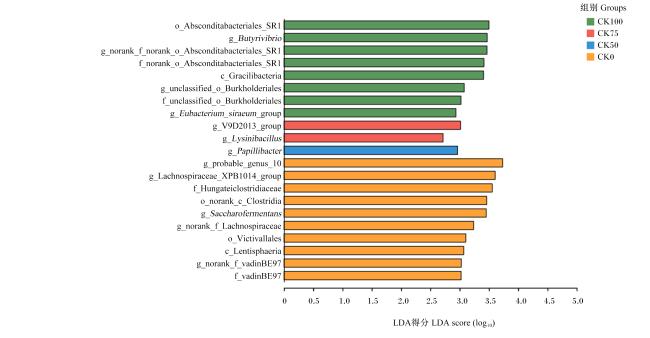
为深入解析不同柠条添加比例对瘤胃微生物群落的影响,本研究采用LEfSe分析筛选组间差异菌群(图6)。结果显示,共鉴定出21个具有显著差异的物种(P<0.05,LDA>2),各组呈现特异性菌群富集特征:CK100组特异性富集隐藏杆菌目SR1(Absconditabacteriales_SR1)、丁酸弧菌属(Butyrivibrio)、隐藏杆菌目SR1分支未明确科未明确属(norank_f_norank_o_Absconditabacteriales_SR1)、隐藏杆菌目SR1分支未明确科(norank_o_Absconditabacteriales_SR1)、纤细菌纲(Gracilibacteria)、伯克霍尔德氏菌目未分类属(unclassified_o_Burkholderiales)、伯克霍尔德氏菌目未分类科(unclassified_o_Burkholderiales)、真杆菌群(Eubacterium_siraeum_group);CK75组特异性富集V9D2013群(V9D2013_group)和赖氨酸芽孢杆菌属(Lysinibacillus);CK50组特异性富集乳头杆菌属(Papillibacter);CK0组特异性富集潜在新属10、毛螺菌科XPB1014群(Lachnospiraceae_XPB1014_group)、亨盖特梭菌科(Hungateiclostridiaceae)、梭菌纲未明确目(norank_c_Clostridia)、产乙酸糖发酵菌属、毛螺菌科未明确属(norank_f_Lachnospiraceae)、胜利菌目(Victivallales)、慢球菌纲(Lentisphaeria)、vadinBE97科未明确属(norank_f_vadinBE97)和vadinBE97科(vadinBE97)。
图6 微生物群落LEfSe分析(P<0.05,LDA>2)

o_Absconditabacteriales_SR1:隐藏杆菌目SR1;g_Butyrivibrio:丁酸弧菌属;g_norank_f_norank_o_Absconditabacteriales_SR1:隐藏杆菌目SR1分支未明确科未明确属;f_norank_o_Absconditabacteriales_SR1:隐藏杆菌目SR1分支未明确科;c_Gracilibacteria:纤细菌纲;g_unclassified_o_Burkholderiales:伯克霍尔德氏菌目未分类属;f_unclassified_o_Burkholderiales:伯克霍尔德氏菌目未分类科;g_Eubacterium_siraeum_group:真杆菌群;g_V9D2013_group:V9D2013群;g_Lysinibacillus:赖氨酸芽孢杆菌属;g_Papillibacter:乳头杆菌属;g_probable_genus_10:潜在新属10;g_Lachnospiraceae_XPB1014_group:毛螺菌科XPB1014群;f_Hungateiclostridiaceae:亨盖特梭菌科;o_norank_c_Clostridia:梭菌纲未明确目;g_Saccharofermentans:产乙酸糖发酵菌属;g_norank_f_Lachnospiraceae:毛螺菌科未明确属;o_Victivallales:胜利菌目;c_Lentisphaeria:慢球菌纲;g_norank_f_vadinBE97:vadinBE97科未明确属;f_vadinBE97:vadinBE97科。

Fig.6 Microbial community LEfSe analysis (P<0.05 and LDA >2)

2.4 属水平差异微生物与体外发酵参数的相关性分析

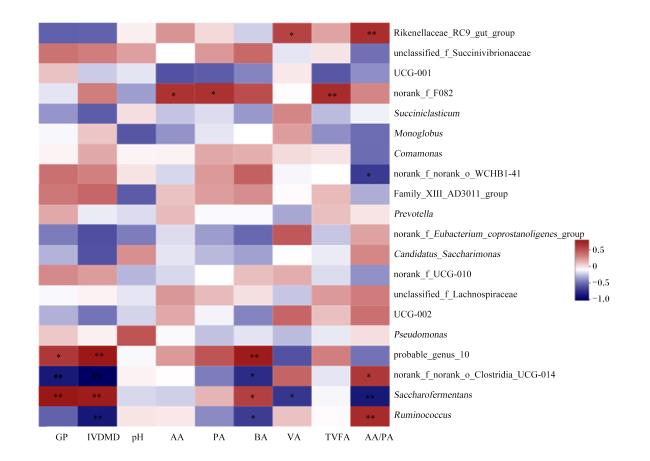
图7所示,GP与产乙酸糖发酵菌属呈极显著正相关(r=0.768,P=0.000 8),与潜在新属10呈显著正相关(r=0.600,P=0.018 0),而与梭菌UCG-014未明确科未明确属(norank_f_norank_o_Clostridia_UCG-014)呈显著负相关(r=-0.695,P=0.004 0)。IVDMD与瘤胃球菌属(Ruminococcus)(r=-0.699,P=0.003 7)和梭菌UCG-014未明确科未明确属(r=-0.810,P=0.000 3)呈极显著负相关,与潜在新属10(r=0.761,P=0.001 0)和产乙酸糖发酵菌属(r=0.736,P=0.001 8)呈极显著正相关。
图7 属水平差异微生物相对丰度与体外发酵参数的相关性分析

GP:产气量 gas production;IVDMD:体外干物质降解率 in vitro dry matter degradation rate;AA:乙酸 acetic acid;PA:丙酸 propionic acid;BA:丁酸 butyric acid;VA:戊酸 valeric acid;TVFA:总挥发性脂肪酸 total volatile fatty acid;AA/PA:乙酸/丙酸 acetic acid/propionic acid;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道菌群;unclassified_f_Succinivibrionaceae:琥珀酸弧菌科未分类属;UCG-001:UCG-001菌属;norank_f_F082:F082科未明确属;Succiniclasticum:解琥珀酸菌属;Monoglobus:单球菌属;Comamonas:丛毛单胞菌属;norank_f_norank_o_WCHB1-41:WCHB1-41目未明确科未明确属;Family_XIII_AD3011_group:十三科_AD3011_组;Prevotella:普雷沃菌属;norank_f_Eubacterium_coprostanoligenes_group:产粪甾醇真杆菌科未明确属;Candidatus_Saccharimonas:候选糖单胞菌属;norank_f_UCG-010:UCG-010科未明确属;unclassified_f_Lachnospiraceae:毛螺菌科未分类属;UCG-002:UCG-002菌属;Pseudomonas:假单胞菌属;probable_genus_10:潜在新属10;norank_f_norank_o_Clostridia_UCG-014:梭菌UCG-014未明确科未明确属;Saccharofermentans:产乙酸糖发酵菌属;Ruminococcus:瘤胃球菌属。

红色表示正相关,蓝色表示负相关,颜色越深表示相关性越强;*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。Red indicated positive correlation, blue indicated negative correlation, and darker colors indicated the stronger correlation; * indicated significant correlation (P<0.05), and ** indicated extremely significant correlation (P<0.01).

Fig.7 Correlation between differential microorganisms at genus level and in vitro fermentation parameters

VFA方面,BA与瘤胃球菌属(r=-0.545,P=0.035 6)和梭菌UCG-014未明确科未明确属(r=-0.609,P=0.015 0)呈显著负相关,与产乙酸糖发酵菌属(r=0.564,P=0.028 4)和潜在新属10(r=0.739,P=0.001 6)分别呈显著和极显著正相关。VA与产乙酸糖发酵菌属呈显著负相关(r=-0.467,P=0.027 9),与理研菌科_RC9肠道群呈显著正相关(r=0.551,P=0.033 0)。AA/PA与瘤胃球菌属(r=0.663,P=0.007 1)、梭菌UCG-014未明确科未明确属(r=0.600,P=0.018 1)及理研菌科_RC9肠道群(r=0.648,P=0.009 0)呈显著正相关,与产乙酸糖发酵菌属(r=-0.696,P=0.004 0)和WCHB1-41菌纲未明确科未明确属(norank_f_norank_o_WCHB1-41)(r=-0.549,P=0.034 0)呈显著负相关。F082菌科未明确属(norank_f_F082)与AA(r=0.629,P=0.012 0)、PA(r=0.632,P=0.011 4)及TVFA(r=0.654,P=0.008 2)均呈显著正相关。

3 讨论

3.1 柠条对肉牛瘤胃体外发酵参数的影响

金鹿等[22]研究表明,饲粮纤维水平是影响瘤胃发酵参数的关键因素之一,其与GP和VFA含量显著相关。本研究发现,柠条的NDF和ADF含量(62.52%和45.95%)明显高于全株玉米青贮(45.00%和22.8%),且随着柠条添加比例在饲粮中逐渐增加,GP呈现显著的线性降低,表明饲粮纤维水平的增加会影响瘤胃发酵效率。这一结果与Lee[23]的研究结果一致,即ADF与干物质消化率(DMD)之间存在显著负相关,且相较于NDF,ADF对DMD的抑制作用更为显著。本试验进一步发现,柠条添加比例的增加同样也导致IVDMD呈显著的线性下降。IVDMD反映体外发酵72 h后微生物对发酵底物的利用程度,IVDMD越高则说明其微生物丰度越高。相关性结果也表明,IVDMD与潜在新属10和产乙酸糖发酵菌属呈极显著正相关。基于上述研究结果,可以推断相较于单一饲喂柠条饲料,在其中适当添加全株玉米青贮能够有效改善饲料的消化特性,从而提高柠条的饲用价值。
体外发酵参数与饲粮中可溶性化合物的比例呈现显著的相关性[24]。本研究中,由于全株玉米青贮含有较高的可溶性碳水化合物含量,对照组的理论最大产气量显著高于其他各组。然而,对照组的产气延滞时间相对较长,这可能是由于可溶性碳水化合物的快速发酵导致初始发酵环境改变所致。但是,随着饲粮中柠条添加比例的增加,产气延滞时间呈现降低趋势,这一现象表明柠条中较高比例的纤维组分促进了纤维分解菌等的快速增殖和发酵启动。
pH作为评估瘤胃发酵状态的关键综合指标,其变化直接影响瘤胃微生物发酵效率[25]。pH的变化主要受发酵底物的营养成分及其组成比例调控,因此常被用作评估瘤胃微生态环境的重要参数[26]。本研究结果中,尽管柠条添加比例不同,但各组的pH始终维持在5.92~6.11,符合瘤胃健康的正常pH范围[27],证明柠条的添加并未对瘤胃发酵环境产生显著影响。然而,Meng等[28]研究认为,体外瘤胃发酵在pH为6.9时表现出更优的木质纤维素水解效率和产酸性能,这一发现说明体内与体外瘤胃发酵系统之间可能存在显著的微生态环境差异,这一差异可能与体外发酵系统中缺乏动态pH调节机制有关。
瘤胃中的NH3-N主要来源于微生物对饲粮蛋白质和内源性含氮化合物的降解作用,这些降解产物部分被用于MCP的合成,其余则分布于发酵液中[29-30]。作为评估瘤胃氮代谢的重要参数,瘤胃液中NH3-N含量直接反映了微生物可利用氮的能力[31]。本研究中,尽管各组之间的MCP含量未呈现显著差异,但随着柠条添加比例的增加,饲粮粗蛋白质含量相应提高,导致发酵过程中NH3-N含量呈现显著线性上升变化。这一现象可能与高蛋白质饲粮提供了更充足的氮源有关,理论上有利于促进含氮量更高的MCP合成,但具体机制仍需进一步研究证实。
瘤胃微生物的主要发酵产物是VFA,VFA在瘤胃上皮细胞中的吸收与质子或阴离子的转运密切相关,VFA可以调节瘤胃中的pH,并影响微生物的活性[32]。本研究发现,柠条添加比例对BA和VA含量有显著影响,其中CK50组的各类VFA含量均低于其他各组。这一现象可能与不同比例柠条添加导致的饲粮结构特性及其协同效应差异有关。但是,Meehan等[33]研究指出,GP的增加伴随着AA和PA含量的同步降低,而本研究中随着柠条比例增加,AA和PA含量呈二次曲线变化,先降低后增加,与GP的线性降低存在差异。

3.2 柠条对肉牛瘤胃体外发酵微生物区系的影响

维持瘤胃微生物群落的稳定性是肉牛营养管理的核心要素。瘤胃内形成的多样化微生物生态系统不仅调控宿主的营养代谢、生长发育等生理过程,还在免疫调节中发挥关键作用[34]。研究表明,更高的瘤胃微生物多样性往往与更复杂的群落结构和更强的生态稳定性相关,这种特性能够增强微生物群落对外界环境变化的适应能力和恢复力,从而促进宿主的整体健康水平。本研究中,CK50组表现出最高的Chao1指数,表明该组瘤胃微生物的物种丰富度提高了;相比之下,对照组的Shannon指数低于其他各组,说明单一饲喂全株玉米青贮饲粮组,瘤胃微生物群落的多样性和稳定性较低。这些发现为深入理解不同饲粮对瘤胃微生物生态系统的影响提供了重要依据。
厚壁菌门和拟杆菌门作为反刍动物瘤胃微生物群落的核心优势菌群,其相对丰度直接受饲粮营养品质的调控。本研究中,这2个菌门在各组中均表现出较高的相对丰度(分别>42.5%和>30%),这与Guo等[35]报道的反刍动物瘤胃微生物组成特征相一致。尽管Zhang等[12]的研究表明柠条能够显著提高绵羊瘤胃中厚壁菌门的相对丰度,但本试验并未观察到类似现象,这种差异可能源于体外发酵系统中底物可利用性的限制。拟杆菌门在蛋白质和碳水化合物的消化吸收过程中发挥关键作用,并参与调控胃肠道免疫系统的发育[36]。本研究中,CK25组表现出最高的拟杆菌门相对丰度,这可能与柠条提供了适宜的可利用氮源有关,从而促进了蛋白质和碳水化合物的微生物代谢过程。
饲粮中添加柠条后瘤胃中与糖代谢有关菌产乙酸糖发酵菌属和潜在新属的相对丰度显著降低。有研究表明,添加单宁后可通过影响与淀粉降解、蛋白质降解和纤维降解有关微生物进而影响养分利用[37]。在属水平上的微生物群落分析表明,理研菌科RC9肠道群在所有组中均占据优势地位。作为拟杆菌门的核心成员,该菌属的普遍存在与反刍动物瘤胃微生物组成特征相吻合。研究表明,理研菌科RC9肠道群不仅参与黏蛋白的降解代谢,在维持肠道黏膜屏障功能中发挥重要作用[38],还与脂质代谢调控密切相关,其相对丰度增加与肥胖发生率呈显著负相关[39-40]。Holman等[41]的研究进一步证实,理研菌科RC9肠道群的相对丰度与宿主采食量、VFA及短链脂肪酸(SCFA)代谢效率呈显著正相关。CK25组表现出最高的理研菌科RC9肠道群相对丰度,同时其PA和BA含量较高。相关性结果也表明,理研菌科RC9肠道群与AA/PA和VA均呈显著正相关,表明该菌群的增殖可能促进AA和VA的合成。这一发现与前期研究结果[42-44]一致,即理研菌科RC9肠道群能够增强短链脂肪酸的产生。基于以上结果,添加25%的柠条可能通过调控瘤胃微生物群落结构,促进肉牛瘤胃发酵效率和生长发育性能。本研究未对甲烷产量进行测定,但已有研究表明,理研菌科RC9肠道群的相对丰度与甲烷产量呈显著负相关[36],这一发现也从某方面说明理研菌科RC9肠道群增殖可能有助于降低反刍动物的甲烷排放。本课题组目前正在开展添加柠条饲料对甲烷产生量的影响研究,希望能够通过调控瘤胃微生物群落结构来减少甲烷生成。
在瘤胃微生物生态系统中,瘤胃球菌属作为关键的纤维分解菌群,通过分泌纤维素酶和半纤维素酶,将饲粮中的纤维素和半纤维素降解为可利用的营养物质[45]。此外,该菌属还参与碳水化合物代谢和营养物质消化过程[46]。本研究发现,随着柠条添加比例的增加,瘤胃球菌属的相对丰度呈现上升趋势,表明其对饲粮纤维含量的增加具有积极的响应性,这一结果与Baniel等[47]的研究结果一致。然而,尽管瘤胃球菌属相对丰度有所增加,但其绝对丰度仍不足以有效分解饲粮中的纤维成分,IVDMD因与饲粮ADF含量呈现更强的相关性,故未有降低的变化[48]

4 结论

在体外瘤胃发酵72 h后,饲粮中添加柠条可通过影响体外瘤胃发酵参数NH3-N、PA、BA、VA含量以及AA/PA、IVDMD和GP,从而影响瘤胃发酵性能;饲粮中添加柠条可提高瘤胃微生物的丰富度并增强其稳定性,添加25%的柠条可使拟杆菌门和理研菌科RC9肠道群的相对丰度达到最高。综上所述,当饲粮中精料与粗饲料的比例为40∶60时,推荐柠条添加比例为25%。
[1]
谯仕彦. 饲料营养与饲养科技创新是实施饲用豆粕减量行动的主要抓手[J]. 中国饲料, 2023(22):8-14.

QIAO S Y. Nutrition and feeding science and technology innovation is a key driver for the implementation of feed soybean meal reduction initiative[J]. China Feed, 2023(22):8-14. (in Chinese)

[2]
SAADAOUI I, RASHEED R, AGUILAR A, et al. Microalgal-based feed:promising alternative feedstocks for livestock and poultry production[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):76.

DOI

[3]
TESHAGER D, MEKURIAW Y, BEYERO N. Protein supplement potential of Dodonaea angustifolia leaves by replacing Atella on nutrient utilization and performance of farta sheep fed natural pasture hay basal diet[J]. Veterinary Medical Science, 2022, 8(5):2230-2240.

DOI

[4]
CHENG Y M, ZHANG H, ZHANG J W, et al. Effects of fermented rice husk powder on growth performance,rumen fermentation,and rumen microbial communities in fattening Hu sheep[J]. Frontiers in Veterinary Science, 2024, 11:1503172.

DOI

[5]
WEINERT-NELSON J R, ELY D G, FLYTHE M D, et al. Red clover supplementation modifies rumen fermentation and promotes feed efficiency in ram lambs[J]. Journal of Animal Science, 2023,101:skad036.

[6]
DUAN P P, REHEMUJIANG H, ZHANG L D, et al. Lycium barbarum (Wolfberry) branches and leaves enhance the growth performance and improve the rumen microbiota in Hu sheep[J]. Animals, 2024, 14(11):1610.

DOI

[7]
LARSON H E, JADERBORG J P, PAULUS-COMPART D M, et al. Effect of substitution of distillers grains and glycerin for steam-flaked corn in finishing cattle diets on growth performance and carcass characteristics[J]. Journal of Animal Science, 2023,101:skac348.

[8]
HOU L Z, DUAN P P, YANG Y X, et al. Effects of residual black wolfberry fruit on growth performance,rumen fermentation parameters,microflora and economic benefits of fattening sheep[J]. Frontiers in Veterinary Science, 2024, 11:1528126.

DOI

[9]
LU Q, MA H B, ZHOU Y, et al. Caragana korshinskii Kom. plantation reduced soil aggregate stability and aggregate-associated organic carbon on desert steppe[J]. PeerJ, 2022, 10:e12507.

DOI

[10]
LONG Y, LIANG F P, ZHANG J W, et al. Identification of drought response genes by digital gene expression (DGE) analysis in Caragana korshinskii Kom.[J]. Gene, 2020, 725:144170.

DOI

[11]
WANG X Q, HUANG X Y, ZHANG Z C, et al. Effect of Caragana korshinskii Kom. as a partial substitution for sheep forage on intake,digestibility,growth,carcass features,and the rumen bacterial community[J]. Tropical Animal Health and Production, 2022, 54(3):190.

DOI

[12]
ZHANG K, QIAN Q, MAO Y, et al. Characterization of growth phenotypes and gastrointestinal tract microbiota in sheep fed with caragana[J]. Journal of Applied Microbiology, 2021, 131(6):2763-2779.

DOI PMID

[13]
王金宇, 陈群, 蔡鑫毓, 等. 不同粗饲料组合对肉牛生长性能、营养物质表观消化、瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2024, 36(10):6432-6447.

DOI

WANG J Y, CHEN Q, CAI X Y, et al. Effects of different roughage combinations on growth performance,nutrient apparent digestibility,rumen fermentation parameters and microflora of beef cattle[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6432-6447. (in Chinese)

[14]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. methods for dietary fiber,neutral deterg-ent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[15]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料中水分和其他挥发性物质含量的测定:GB/T 6435—2006[S]. 北京: 中国标准出版社, 2007.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China,Standardization Administration of the People’s Republic of China. Determination of moisture and other volatile mater content in feeds:GB/T 6435—2006[S]. Beijing: Standards Press of China, 2007. (in Chinese)

[16]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feeds—Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[17]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗脂肪的测定:GB/T 6433—2025[S]. 北京: 中国标准出版社, 2007.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude fat in feeds:GB/T 6433—2025[S]. Beijing: Standards Press of China, 2007. (in Chinese)

[18]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料中粗灰分的测定:GB/T 6438—2007[S]. 北京: 中国标准出版社, 2007.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China,Standardization Administration of the People’s Republic of China. Determination of crude ash content in feed:GB/T 6438—2007[S]. Beijing: Standards Press of China, 2007. (in Chinese)

[19]
中华人民共和国农业部. 肉牛饲养标准:NY/T 815—2004[S]. 北京: 中国农业出版社, 2005.

Ministry of Agriculture of the People’s Republic of China. Feeding standard of beef cattle:NY/T 815—2004[S]. Beijing: China Agricultural Press, 2005. (in Chinese)

[20]
MENKE K H, RAAB L, SALEWSKI A, et al. The estimation of the digestibility and metabolizable energy content of ruminant feedingstuffs from the gas production when they are incubated with rumen liquor in vitro[J]. The Journal of Agricultural Science, 1979, 93:217-222.

DOI

[21]
FRANCE J, DIJKSTRA J, DHANOA M S, et al. Estimating the extent of degradation of ruminant feeds from a description of their gas production profiles observed in vitro:derivation of models and other mathematical considerations[J]. British Journal of Nutrition, 2000, 83(2):143-150.

DOI

[22]
金鹿, 李胜利, 张春华, 等. 不同非纤维性碳水化合物/中性洗涤纤维日粮瘤胃体外发酵产气量模型的评估[J]. 中国畜牧杂志, 2024, 60(9):293-297.

JIN L, LI S L, ZHANG C H, et al. Evaluation of in vitro rumen fermentation gas production models for different non-fibrous carbohydrate/neutral detergent fiber diets[J]. Chinese Journal of Animal Science, 2024, 60(9):293-297. (in Chinese)

[23]
LEE M A. A global comparison of the nutritive values of forage plants grown in contrasting environments[J]. Journal of Plant Research, 2018, 131(4):641-654.

DOI

[24]
李蒋伟, 周力, 马博研, 等. 饲粮非纤维性碳水化合物/中性洗涤纤维对藏羊瘤胃发酵参数及菌群结构的影响[J]. 四川农业大学学报, 2022, 40(2):253-259,275.

LI J W, ZHOU L, MA B Y, et al. Effects of dietary non fibrous carbohydrate/neutral detergent fiber on rumen fermentation parameters and flora structure of Tibetan sheep[J]. Journal of Sichuan Agricultural University, 2022, 40(2):253-259,275. (in Chinese)

[25]
徐领, 卢俊言, 陈欢, 等. 不同饲粮精粗比及菊粉和枯草芽孢杆菌添加水平对体外瘤胃发酵特性的影响[J]. 动物营养学报, 2025, 37(1):496-510.

DOI

XU L, LU J Y, CHEN H, et al. Effects of different dietary concentrate-roughage ratios and inulin and Bacillus subtilis supplemental levels on rumen fermentation characteristics in vitro[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):496-510. (in Chinese)

[26]
WANG Y Y, SHEN Q M, ZHONG S, et al. Comparison of rumen microbiota and serum biochemical indices in white cashmere goats fed ensiled or sun-dried mulberry leaves[J]. Microorganisms, 2020, 8(7):981.

DOI

[27]
冉航, 朱声鑫, 刘婷, 等. 黄芪多糖粉对湖羊瘤胃体外发酵参数和微生物区系的影响[J]. 动物营养学报, 2025, 37(3):1880-1892.

DOI

RAN H, ZHU S X, LIU T, et al. Effects of Astragalus polysaccharide powder on rumen fermentation parameters and microflora of Hu sheep in vitro[J]. Chinese Journal of Animal Nutrition, 2025, 37(3):1880-1892. (in Chinese)

[28]
MENG Y, MUMME J, XU H, et al. A biologically inspired variable-pH strategy for enhancing short-chain fatty acids (SCFAs) accumulation in maize straw fermentation[J]. Bioresource Technology, 2016, 201:329-336.

DOI PMID

[29]
KHATTAB I M, ABDEL-WAHED A M, ANELE U Y, et al. Comparative digestibility and rumen fermentation of camels and sheep fed different forage sources[J]. Animal Biotechnology, 2023, 34(3):609-618.

DOI

[30]
LIU Y F, HU J M, LI M M, et al. Effects of taurine on rumen fermentation,nutrient digestion,rumen bacterial community and metabolomics and nitrogen metabolism in beef steers[J]. Journal of the Science of Food and Agriculture, 2023, 103(7):3414-3426.

DOI

[31]
WANG Z W, LI X X, ZHANG L Y, et al. Effect of oregano oil and cobalt lactate on sheep in vitro digestibility,fermentation characteristics and rumen microbial community[J]. Animals, 2022, 12(1):118.

DOI

[32]
WANG K X, JIANG M C, CHEN Y H, et al. Changes in the rumen development,rumen fermentation,and rumen microbiota community in weaned calves during steviol glycosides treatment[J]. Frontiers in Microbiology, 2024, 15:1395665.

DOI

[33]
MEEHAN D J, CABRITA A R J, SILVA J L, et al. Effects of Chlorella vulgaris,Nannochloropsis oceanica and Tetraselmis sp. supplementation levels on in vitro rumen fermentation[J]. Algal Research, 2021, 56:102284.

DOI

[34]
STOFFEL M A, ACEVEDO-WHITEHOUSE K, MORALES-DURÁN N, et al. Early sexual dimorphism in the developing gut microbiome of northern elephant seals[J]. Molecular Ecology, 2020, 29(11):2109-2122.

DOI PMID

[35]
GUO W L, NA M L, LIU S W, et al. Rumen-degradable starch improves rumen fermentation,function,and growth performance by altering bacteria and its metabolome in sheep fed alfalfa hay or silage[J]. Animals, 2024, 15(1):34.

DOI

[36]
ZHAO J Y, WANG L H, CHENG S S, et al. A potential synbiotic strategy for the prevention of type 2 diabetes:Lactobacillus paracasei JY062 and exopolysaccharide isolated from Lactobacillus plantarum JY039[J]. Nutrients, 2022, 14(2):377.

DOI

[37]
喻梦圆, 吴桂红, 罗志军, 等. 添加五倍子和塔拉源单宁酸对肉牛体外瘤胃发酵参数和微生物区系的调控作用[J/OL]. 草业科学, 2025:1-28(2025-01-21)[2025-06-18]. http://kns.cnki.net/kcms/detail/62.1069.S.20250120.1905.008.html

YU M Y, WU G H, LUO Z J, et al. Effects of Chinese gallnut and Tara tannic acid supplementation on in vitro rumen fermentation parameters and microflora of beef cattle[J/OL]. Pratacultural Science, 2025:1-28(2025-01-21)[2025-06-18]. http://kns.cnki.net/kcms/detail/62.1069.S.20250120.1905.008.html in Chinese)

[38]
FAN P X, BIAN B L, TENG L, et al. Host genetic effects upon the early gut microbiota in a bovine model with graduated spectrum of genetic variation[J]. ISME Journal, 2020, 14(1):302-317.

DOI PMID

[39]
ZHOU L Y, XIAO X H, ZHANG Q, et al. Improved glucose and lipid metabolism in the early life of female offspring by maternal dietary genistein is associated with alterations in the gut microbiota[J]. Frontiers in Endocrinology, 2018, 9:516.

DOI PMID

[40]
SUZUKI T A, MARTINS F M, PHIFER-RIXEY M, et al. The gut microbiota and Bergmann’s rule in wild house mice[J]. Molecular Ecology, 2020, 29(12):2300-2311.

DOI

[41]
HOLMAN D B, GZYL K E. A Meta-analysis of the bovine gastrointestinal tract microbiota[J]. FEMS Microbiology Ecology, 2019, 95(6):fiz072.

[42]
AHMAD A A, YANG C, ZHANG J B, et al. Effects of dietary energy levels on rumen fermentation,microbial diversity,and feed efficiency of yaks (Bos grunniens)[J]. Frontiers in Microbiology, 2020, 11:625.

DOI

[43]
LIANG J S, FANG W, CHANG J N, et al. Long-term rumen microorganism fermentation of corn stover in vitro for volatile fatty acid production[J]. Bioresource Technology, 2022, 358:127447.

DOI

[44]
WANG B T, KONG Q M, LI X, et al. A high-fat diet increases gut microbiota biodiversity and energy expenditure due to nutrient difference[J]. Nutrients, 2020, 12(10):3197.

DOI

[45]
MIZRAHI I, WALLACE R J, MORAÏS S. The rumen microbiome:balancing food security and environmental impacts[J]. Nature Reviews Microbiology, 2021, 19(9):553-566.

DOI

[46]
JIANG F, GAO H M, QIN W, et al. Marked seasonal variation in structure and function of gut microbiota in forest and alpine musk deer[J]. Frontiers in Microbiology, 2021, 12:699797.

DOI

[47]
BANIEL A, AMATO K R, BEEHNER J C, et al. Seasonal shifts in the gut microbiome indicate plastic responses to diet in wild geladas[J]. Microbiome, 2021, 9(1):26.

DOI PMID

[48]
WEI S N, JEONG E C, LI Y F, et al. Evaluation of forage production,feed value,and ensilability of proso millet (Panicum miliaceum L.)[J]. Journal of Animal Science and Technology, 2022, 64(1):38-51.

DOI

文章导航

/