研究论文

不同发酵处理棉籽粕对营养成分含量、体外瘤胃发酵参数及微生物区系的影响

  • 徐同翔 ,
  • 罗琦雨 ,
  • 韩鑫宇 ,
  • 崔晶晶 ,
  • 杨鸿海 ,
  • 周小艳 ,
  • 王彩蝶 , *
展开
  • 新疆农业大学动物科学学院, 新疆肉乳用草食动物营养实验室,生物饲料与动物肠道健康研究中心, 乌鲁木齐 830052
* 王彩蝶,副教授,硕士生导师,E-mail:

徐同翔(1998—),男,山东临沂人,硕士研究生,研究方向为饲料资源开发与利用。E-mail:

收稿日期: 2025-05-23

  网络出版日期: 2025-12-13

基金资助

国家自然科学基金项目(32160811)

自治区重点研发计划项目(2022B02057-1-3)

新疆农业大学博士后流动站资助(2021年)

新疆农业大学校级大学生创新训练计划项目(dxscx2025069)

Effects of Different Fermentation Treatments of Cottonseed Meal on Nutrient Contents, in Vitro Rumen Fermentation Parameters and Microbial Flora

  • XU Tongxiang ,
  • LUO Qiyu ,
  • HAN Xinyu ,
  • CUI Jingjing ,
  • YANG Honghai ,
  • ZHOU Xiaoyan ,
  • WANG Caidie , *
Expand
  • Research Center for Biofeed and Animal Gut Health, Xinjiang Key Laboratory of Herbivore Nutrition for Meat&Milk,College of Animal Sciences, Xinjiang Agricultural University, Urumqi 830052, China
* associate professor, E-mail:

Received date: 2025-05-23

  Online published: 2025-12-13

摘要

本试验旨在探究不同发酵处理棉籽粕对营养成分含量、体外瘤胃发酵参数及微生物区系的影响。以干物质基础下棉籽粕与甜菜粕8∶2的混合物为发酵底物,分别设原料组、对照组(不添加发酵剂)、蛋白酶组(添加0.8 g/kg蛋白酶)、微生物组(添加0.3 g/kg枯草芽孢杆菌+1.5 g/kg酿酒酵母+0.3 g/kg粪肠球菌)和菌酶协同组(添加0.8 g/kg蛋白酶+0.3 g/kg枯草芽孢杆菌+1.5 g/kg酿酒酵母+0.3 g/kg粪肠球菌),每组6个重复。测定常规营养物质、游离棉酚(FG)、酸溶蛋白(ASP)含量,并进行十二烷基磺酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)检验和体外瘤胃发酵试验。结果表明:1)蛋白酶组、微生物组和菌酶协同组FG含量显著低于对照组(P<0.05),菌酶协同组ASP含量显著高于对照组(P<0.05)。2)蛋白酶组和菌酶协同组蛋白质分子质量主要集中在13 ku左右。3)蛋白酶组和菌酶协同组瘤胃液中干物质降解率(DMD)及氨态氮(NH3-N)、乙酸、异丁酸、丁酸、异戊酸、戊酸及总挥发性脂肪酸(TVFA)含量均显著高于对照组(P<0.05)。4)在门水平上,菌酶协同组脱硫杆菌门和互养菌门相对丰度显著高于对照组(P<0.05),拟杆菌门相对丰度显著低于对照组(P<0.05)。在属水平上,菌酶协同组琥珀酸弧菌科UCG-001相对丰度显著低于对照组(P<0.05),丹毒丝菌科UCG-009和UCG-002相对丰度显著高于对照组(P<0.05)。5)NK4A214群、解琥珀酸菌属、UCG-002和丹毒丝菌科UCG-009相对丰度与TVFA含量呈显著或极显著正相关(P<0.05或P<0.01)。综上所述,蛋白酶、微生物及菌酶协同处理均能降低棉籽粕FG含量;菌酶协同处理在提高棉籽粕DMD及ASP、NH3-N、挥发性脂肪酸含量等方面效果最佳,对瘤胃微生物菌群结构产生了积极影响。

本文引用格式

徐同翔 , 罗琦雨 , 韩鑫宇 , 崔晶晶 , 杨鸿海 , 周小艳 , 王彩蝶 . 不同发酵处理棉籽粕对营养成分含量、体外瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2025 , 37(12) : 8697 -8709 . DOI: 10.12418/CJAN2025.708

Abstract

This study aimed to investigate the effects of different fermentation treatments of cottonseed meal on nutrient contents, in vitro rumen fermentation parameters and microbial flora. A mixture of cottonseed meal and beet pulp with a ratio of 8∶2 on dry matter basis was used as the fermentation substrate, set up the raw material group, control group (without starter culture), protease group (added with 0.8 g/kg protease), microbe group (added with 0.3 g/kg Bacillus subtilis+1.5 g/kg Saccharomyces cerevisiae+0.3 g/kg Enterococcus faecalis), and bacteria-enzyme synergy group (added with 0.8 g/kg protease+0.3 g/kg Bacillus subtilis+1.5 g/kg Saccharomyces cerevisiae+0.3 g/kg Enterococcus faecalis), and each group contained 6 replicates. The conventional nutrient, free gossypol (FG), acid-soluble protein (ASP) contents were determined, and the sodium dodecyl sulfate-polyacrylamide gel electrophoresis (SDS-PAGE) test and rumen in vitro fermentation test were carried out. The results showed as follows: 1) the FG content of protease group, microbe group and bacteria-enzyme synergy group was significantly lower than that of the control group (P<0.05), and the ASP content of bacteria-enzyme synergy group was significantly higher than that of the control group (P<0.05). 2) The protein molecular weight of protease group and bacteria-enzyme synergy group was mainly concentrated at about 13 ku. 3) The dry matter digestibility (DMD) and contents of ammonia nitrogen (NH3-N), acetate, isobutyrate, butyrate, isovalerate, valerate and total volatile fatty acids (TVFA) in rumen fluid of protease group and bacteria-enzyme synergy group were significantly higher than those of the control group (P<0.05). 4) At the phylum level, the relative abundances of Desulfobacterota and Synergistota of bacteria-enzyme synergy group were significantly higher than those of the control group (P<0.05), and the Bacteroidota relative abundance was significantly lower than that of the control group (P<0.05). At the genus level, the Succinivibrionaceae_UCG-001 relative abundance of bacteria-enzyme synergy group was significantly lower than that of the control group (P<0.05), and the relative abundances of UCG-002 and Erysipelotrichaceae_UCG-009 were significantly higher than those of the control group (P<0.05). 5) The relative abundances of NK4A214_group, Succiniclasticum, UCG-002 and Erysipelotrichaceae_UCG-009 had significant or extremely significant positive correlations with TVFA content (P<0.05 or P<0.01). In conclusion, the treatments of protease, microbe and bacteria-enzyme synergy can reduce the FG content in cottonseed meal; the bacteria-enzyme synergy treatment has the best effects on improving DMD and contents of ASP, NH3-N, volatile fatty acids and other aspects of cottonseed meal, and has a positive effect on the structure of rumen microbiota.

棉籽粕是棉花加工业的主要副产品,是由棉籽经过物理压榨或浸提工艺制得,其主要成分为蛋白质、碳水化合物,并含有少量的脂肪和矿物质,是一种价格低廉且富含蛋白质的植物性饲料原料。据国家统计局数据显示,2023年我国棉花产量为561.8万t,种植面积为4 182.2万亩(1亩=666.67 m2),棉籽粕具有巨大的饲料化利用潜力[1]。棉籽粕中蛋白质经分解后,可获得17种氨基酸,其中精氨酸含量较高,约为5.44%;而赖氨酸、蛋氨酸含量相对较低,约为2.13%、0.65%;常需与菜籽粕和其他饲料配合使用,以改善氨基酸的平衡,提高饲料利用率[2]。然而,棉籽粕中含有游离棉酚(free gossypol,FG)、植酸、单宁和环丙烯脂肪酸等抗营养因子,其中FG是限制棉籽粕在养殖业广泛应用的主要因素。因此,常利用发酵的方式来提升棉籽粕的饲用价值。
发酵棉籽粕是指通过益生菌或酶制剂,在适宜的环境下对棉籽粕进行生物处理,实现原料中复杂大分子物质的降解与转化,从而降低抗营养因子含量,提高其营养价值、适口性及动物消化吸收效率。刘雅娜等[3]利用枯草芽孢杆菌、产朊假丝酵母、嗜酸乳杆菌和中性蛋白酶对豆粕进行固态发酵,枯草芽孢杆菌、产朊假丝酵母、嗜酸乳杆菌添加比例为5∶2∶2,接种量为5%,中性蛋白酶添加量为0.1%,料水比为1.0∶0.7,发酵后豆粕的粗蛋白质(crude protein,CP)、酸溶蛋白(acid-soluble protein,ASP)和小肽含量分别增加了20.25%、26.00%和23.69%。舒文秀[4]利用芽孢杆菌、酿酒酵母和植物乳杆菌复合发酵棉籽粕,在接种量为5%,初始水分含量为46.24%,发酵温度为35 ℃,发酵时间为72 h时,棉籽粕脱毒率为91.54%,还原糖含量提高至1.85 g,水溶蛋白含量从2.10 g提高到7.16 g。罗远琴等[5]利用枯草芽孢杆菌、酿酒酵母复合发酵棉籽粕,发酵72 h后,ASP含量由3.82%提高至21.44%,棉籽肽含量由3.75%提高至21.32%。由此可见,利用益生菌或酶制剂发酵能够降低棉籽粕中抗营养因子含量,提升其营养价值。
甜菜粕是甜菜在制糖过程中,经提糖后得到的含糖率较低的甜菜丝,其主要成分为纤维素、半纤维素和果胶,还含有少量的糖分、蛋白质、甜菜碱、矿物质、烟酸等营养物质。甜菜粕因其丰富的营养价值、低廉的价格及良好的适口性等特点,常作为家畜的饲料原料来源。李龙龙等[6]以甜菜粕与棉花秸秆进行混合青贮后探究其营养特性及饲用价值,发现CP含量较对照组相比由7.85%提高至10.33%,体外发酵试验结果表明其干物质降解率(dry matter digestibility,DMD)为44.05%。由于甜菜粕含水量较高,易腐败变质,于常温下不易长期储存,制约了甜菜粕的广泛利用。因此,考虑利用甜菜粕作为辅料,以调节发酵棉籽粕含水量及适口性,提高棉籽粕的发酵品质。
本研究利用蛋白酶、枯草芽孢杆菌、酿酒酵母、粪肠球菌发酵棉籽粕,探究不同发酵方式对棉籽粕营养特性的影响,并评估其对绵羊体外瘤胃发酵参数及微生物区系的作用,为棉籽粕的开发利用提供参考,减少对豆粕等传统蛋白质饲料的依赖。

1 材料与方法

1.1 试验材料

棉籽粕购自奎屯泰昆油脂有限公司。甜菜粕购自中粮屯河股份有限公司。蛋白酶(≥20 000 U/g)购自北京盛拓达生物技术有限公司。枯草芽孢杆菌(1×1011 CFU/g)、酿酒酵母(2×1010 CFU/g)、粪肠球菌(1×1011 CFU/g)均购自潍坊益昊生物技术有限公司。

1.2 试验设计

在干物质(dry matter,DM)基础下,以棉籽粕与甜菜粕比例8∶2的混合物为发酵底物,分别设原料组、对照组(不添加发酵剂)、蛋白酶组(添加0.8 g/kg蛋白酶)、微生物组(添加0.3 g/kg枯草芽孢杆菌+1.5 g/kg酿酒酵母+0.3 g/kg粪肠球菌)和菌酶协同组(添加0.8 g/kg蛋白酶+0.3 g/kg枯草芽孢杆菌+1.5 g/kg酿酒酵母+0.3 g/kg粪肠球菌),每组6个重复。将对照组、蛋白酶组、微生物组和菌酶协同组混合物料分装于500 mL配备单向呼吸阀的发酵袋中,装料后保留适量顶部空间空气,密封。将发酵袋置于35 ℃恒温培养箱中进行发酵,持续72 h。发酵结束后,立即将样品转移至鼓风干燥箱中,于(105±5) ℃条件下烘干至恒重。烘干样品经粉碎后,密封,避光保存,用于后续相关指标测定。

1.3 发酵棉籽粕常规营养成分及FG含量的测定

发酵棉籽粕中CP含量参考GB/T 6432—2018,使用凯氏定氮法测定;粗脂肪(ether extract,EE)含量参考GB/T 6433—2025,使用索氏提取法测定;中性洗涤纤维(neutral detergent fiber,NDF)和酸性洗涤纤维(acid detergent fiber,ADF)含量分别参考GB/T 20806—2022和NY/T 1459—2022,使用滤袋法测定;粗灰分(Ash)含量参考GB/T 6438—2007,使用灼烧法测定;钙(calcium,Ca)含量参考GB/T 6436—2018,使用乙二胺四乙酸二钠络合滴定法测定;磷(phosphorus,P)含量参考GB/T 6437—2018,使用分光光度法测定;FG含量参考GB/T 13086—2020,使用苯胺法测定;ASP含量参考NY/T 3801—2020,使用凯氏定氮法测定。

1.4 发酵棉籽粕十二烷基磺酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)检验

称取0.5 g发酵棉籽粕样品,于50 mL离心管中加入10 mL 8 mol/L的尿素溶液,室温静置20 min,每5 min涡旋振荡5 s,随后离心取上清液加入5×Loading Buffer置于水浴锅中沸水浴5 min。冷却后上样,进行SDS-PAGE,利用ImageJ V1.8.0112软件进行灰度分析,计算不同蛋白质分子质量灰度面积。

1.5 体外瘤胃发酵试验

选取华凌农牧业集团有限公司畜牧屠宰基地3只体重为(40±2) kg的9月龄健康绵羊作为瘤胃液供体,禁食12 h后屠宰,立即采集瘤胃液,经4层无菌医用纱布过滤后,迅速转移至预加热39 ℃的保温容器内,并在30 min内转运至实验室。配制试验所需人工唾液[7]。将过滤后的瘤胃液与预热至39 ℃的人工唾液按照1∶2的比例充分混匀,制备成瘤胃接种液。根据Menke等[8]建立的技术流程,采用精密天平准确称取0.4 g发酵棉籽粕样品(精确至0.001 g),装入规格为42 mm×53 mm、孔径为45 μm的尼龙袋中,将装有样品的尼龙袋垂直放置于容量为100 mL(最小刻度1.0 mL)的玻璃注射器内腔底部。向每支注射器中注入60 mL混合好的瘤胃接种液,小心排除注射器内残余气体后密封。将注射器置于39 ℃恒温培养箱中进行厌氧培养,持续48 h。

1.6 体外瘤胃发酵参数的测定

发酵过程中,每2 h晃动混合瘤胃液1次。通过记录注射器活塞杆的位移距离读取实时产气量,每6 h进行一次排气,并分别记录0、3、6、9、12、24、36和48 h的累积产气量。发酵结束后,取出注射器底部尼龙袋,用流水冲洗5 min。将其放入70 ℃烘箱中烘干至恒重,参照GB/T 6435—2014的方法测定残渣中DM含量,并计算DMD。使用pH计(PHS-3C,上海越平科学仪器有限公司)测定发酵液pH,取发酵液分装于5 mL冻存管中,于-20 ℃冰箱中冻存,用于后续挥发性脂肪酸(volatile fatty acids,VFA)和氨态氮(ammoniacal nitrogen,NH3-N)含量的测定。VFA含量参照许晓莉[9]的方法测定,NH3-N含量使用靛酚蓝比色法[10]测定。

1.7 体外瘤胃微生物区系的测定

取部分发酵液,于无菌无RNA酶冻存管中,液氮速冻后置于-80 ℃冰箱保存,用于后续瘤胃细菌多样性分析。发酵液送至北京诺禾致源生物信息科技有限公司进行测序。先对样品进行微生物组DNA提取,以引物341F(5'-CCTAYGGGRBGCASCAG-3')和806R(5'-GGACTACNNGGGTATCTAAT-3')对细菌16S rDNA V3~V4可变区进行PCR扩增、纯化。PCR产物纯化后构建测序文库,文库质检合格后使用Illumina NovaSeq 6000平台测序,对高通量测序数据进行分析[11]

1.8 数据统计分析

试验数据用Excel 2021进行整理,采用SPSS 24.0软件进行统计分析。对常规营养成分和瘤胃体外发酵指标进行单因素方差分析,并采用Duncan氏法进行多重比较,结果以平均值±标准差表示。瘤胃微生物相关数据采用独立样本t检验进行分析,结果以平均值±标准差表示。P<0.05表示差异显著。

2 结果与分析

2.1 不同发酵处理对棉籽粕营养物质及FG含量的影响

表1可知,各组之间CP、EE、ADF、NDF、Ca、P含量均无显著差异(P>0.05)。微生物组Ash含量显著高于对照组和原料组(P<0.05),菌酶协同组Ash含量显著高于原料组(P<0.05)。蛋白酶组、微生物组和菌酶协同组FG含量显著低于对照组和原料组(P<0.05),且微生物组FG含量显著低于蛋白酶组和菌酶协同组(P<0.05)。蛋白酶组和菌酶协同组ASP含量显著高于对照组、原料组和微生物组(P<0.05)。
表1 不同发酵处理对棉籽粕营养物质含量及FG含量的影响(干物质基础)

Table 1 Effects of different fermentation treatments on nutrient and FG contents of cottonseed meal (DM basis)

项目
Items
原料组
Raw material
group
对照组
Control group
蛋白酶组
Protease group
微生物组
Microbe
group
菌酶协同组
Bacteria-enzyme
synergy group
P
P-value
粗蛋白质CP/% 43.97±0.71 44.10±0.62 44.20±0.60 44.60±0.46 44.58±0.54 0.273
粗脂肪EE/% 3.22±0.93 3.37±0.81 2.89±0.86 3.06±1.41 2.66±1.17 0.801
中性洗涤纤维NDF/% 39.43±4.67 39.33±3.89 38.12±3.18 36.31±1.08 35.56±0.88 0.144
酸性洗涤纤维ADF/% 14.57±0.82 14.69±1.10 14.44±0.33 15.39±0.64 14.78±0.39 0.211
粗灰分Ash/% 7.59±0.05c 7.69±0.11bc 7.77±0.11abc 8.05±0.14a 7.97±0.54ab 0.029
钙Ca/% 0.36±0.02 0.36±0.01 0.36±0.01 0.36±0.01 0.37±0.01 0.360
磷P/% 0.49±0.04 0.49±0.02 0.51±0.02 0.50±0.02 0.52±0.05 0.292
游离棉酚FG/(mg/kg) 817.90±68.90b 887.27±54.31a 635.45±18.61c 565.95±53.30d 683.85±46.45c <0.001
酸溶蛋白ASP/% 3.81±0.15c 4.01±0.09b 8.24±0.07a 3.72±0.08c 8.33±0.09a <0.001

2.2 SDS-PAGE电泳结果

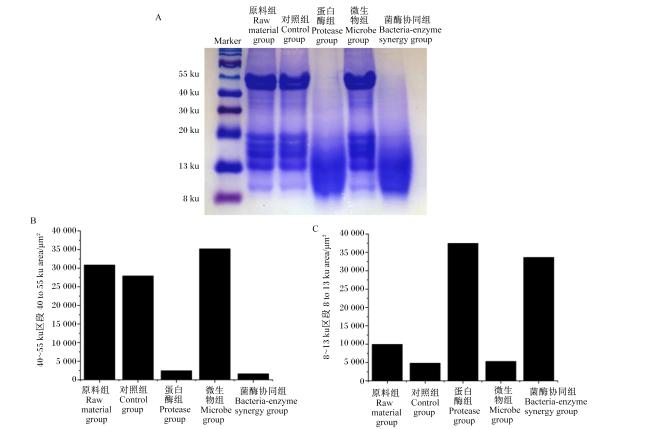
图1-A可知,原料组、对照组和微生物组蛋白质条带主要集中在40~55 ku区段。蛋白酶组和菌酶协同组蛋白质条带主要集中在8~13 ku区段。由图1-B可知,在40~55 ku区段,蛋白酶组和菌酶协同组蛋白质分子质量灰度面积低于对照组;由图1-C可知,在8~13 ku区段,蛋白酶组和菌酶协同组蛋白质分子质量灰度面积高于对照组。
图1 不同发酵处理对棉籽粕蛋白质分子质量的影响

Fig.1 Effects of different fermentation treatments on protein molecular weight of cottonseed meal

2.3 不同发酵处理棉籽粕对体外瘤胃发酵参数的影响

表2可知,在3~48 h时,蛋白酶组产气量最高,其次是菌酶协同组,均高于其他各组,蛋白酶组产气量显著高于对照组(P<0.05),微生物组产气量与对照组无显著差异(P>0.05);在9~36 h,菌酶协同组产气量显著高于对照组(P<0.05)。微生物组和菌酶协同组pH显著高于原料组(P<0.05),对照组、微生物组、微生物组和菌酶协同组之间pH无显著差异(P>0.05)。蛋白酶组和菌酶协同组NH3-N含量和DMD显著高于其他各组(P<0.05),且菌酶协同组DMD显著高于蛋白酶组(P<0.05)。
表2 不同发酵处理棉籽粕对体外瘤胃发酵参数的影响

Table 2 Effects of different fermentation treatments of cottonseed meal on rumen fermentation parameters in vitro

项目
Items
原料组
Raw material
group
对照组
Control group
蛋白酶组
Protease
group
微生物组
Microbe group
菌酶协同组
Bacteria-enzyme
synergy group
P
P-value
产气量Gas production/mL
3 h 10.50±1.87ab 9.50±1.97bc 12.33±1.51a 8.17±1.47c 10.00±1.10bc 0.003
6 h 20.50±2.26bc 20.17±2.64bc 26.17±1.94a 17.67±2.25c 21.67±2.42b <0.001
9 h 31.17±2.99c 32.00±3.22c 40.33±2.16a 29.00±2.83c 35.83±3.31b <0.001
12 h 43.17±3.49c 44.50±4.04c 54.50±1.87a 43.33±3.88c 49.17±2.48b <0.001
24 h 78.17±4.71b 77.00±2.83b 87.67±1.86a 76.17±5.23b 83.50±1.87a <0.001
36 h 94.50±5.65bc 93.00±2.76c 102.33±3.08a 90.50±5.21c 98.00±1.55ab <0.001
48 h 104.00±5.55bc 102.33±3.20bc 110.67±3.14a 99.33±5.72c 106.67±1.51ab 0.001
pH 6.87±0.04b 6.90±0.06ab 6.91±0.05ab 6.93±0.04a 6.96±0.02a 0.027
氨态氮NH3-N/(mg/L) 457.28±23.18b 414.56±10.04c 501.90±42.93a 432.07±30.14bc 505.90±16.54a <0.001
干物质降解率DMD/% 63.42±2.04c 60.66±3.45c 67.48±1.07b 60.65±2.71c 71.62±1.76a <0.001

2.4 不同发酵处理棉籽粕对体外瘤胃发酵VFA含量的影响

表3可知,蛋白酶组和菌酶协同组乙酸、异丁酸、丁酸、异戊酸、戊酸、总挥发性脂肪酸(total volatile fatty acids,TVFA)含量均显著高于对照组和原料组(P<0.05),微生物组与对照组和原料组无显著差异(P>0.05)。菌酶协同组丙酸含量显著高于微生物组、对照组和原料组(P<0.05)。蛋白酶组、微生物组和菌酶协同组乙酸/丙酸显著高于原料组(P<0.05),与对照组无显著差异(P>0.05)。
表3 不同发酵处理棉籽粕对体外瘤胃发酵VFA含量的影响

Table 3 Effects of different fermentation treatments of cottonseed meal on rumen VFA content in vitro fermentation

项目
Items
原料组
Raw material
group
对照组
Control group
蛋白酶组
Protease
group
微生物组
Microbe group
菌酶协同组
Bacteria-enzyme
synergy group
P
P-value
乙酸Acetate/(mmol/L) 35.99±1.76b 37.17±2.53b 40.36±1.85a 37.22±2.94b 42.03±2.92a 0.001
丙酸Propionate/(mmol/L) 18.44±1.01b 18.39±1.17b 19.58±0.46ab 18.51±1.46b 20.39±1.36a 0.019
异丁酸Isobutyrate/(mmol/L) 1.07±0.05b 1.10±0.07b 1.31±0.03a 1.14±0.09b 1.38±0.06a <0.001
丁酸Butyrate/(mmol/L) 5.49±0.31b 5.48±0.34b 6.54±0.25a 5.38±0.46b 6.86±0.36a <0.001
异戊酸Isovalerate/(mmol/L) 2.96±0.13c 3.04±0.19c 3.58±0.06b 3.14±0.21c 3.84±0.18a <0.001
戊酸Valerate/(mmol/L) 3.64±0.18b 3.75±0.23b 4.62±0.25a 3.68±0.28b 4.87±0.28a <0.001
乙酸/丙酸Acetate/propionate 1.95±0.04b 2.02±0.04a 2.06±0.05a 2.01±0.02a 2.06±0.05a 0.001
总挥发性脂肪酸
TVFA/(mmol/L)
69.54±3.28b 70.95±4.44b 78.05±2.54a 71.09±5.42b 81.42±5.07a <0.001

2.5 菌酶协同发酵棉籽粕对体外瘤胃发酵微生物区系的影响

2.5.1 瘤胃微生物16S rDNA测序数据质量评估
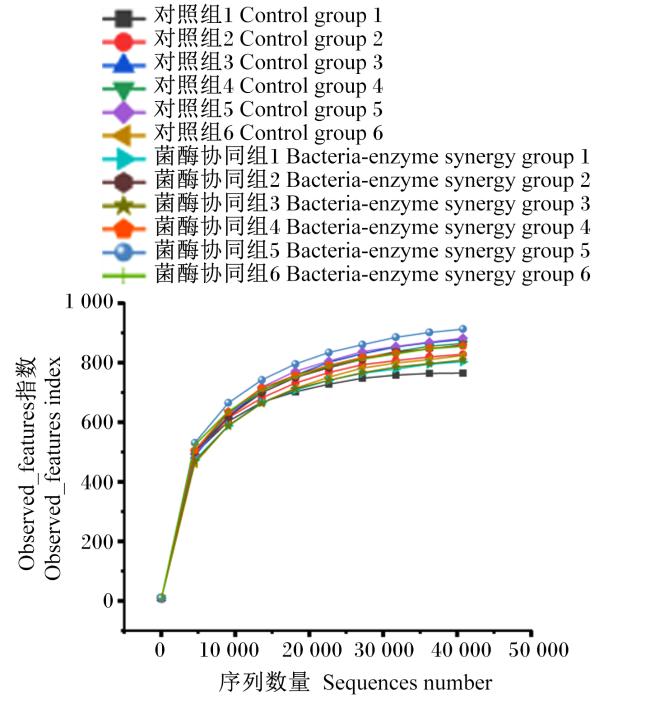
通过对Reads拼接、过滤、去嵌合体后,每个样品平均测得58 470条有效数据标签,序列的平均长度在420 nt左右。数据质量分析显示,所有样品Q20均在99%以上,平均质控有效率98.37%,数据利用率优于常规标准。由图2可知,所有样品曲线均呈现渐进线特征,提示测序数据量合理,满足后续分析要求。
图2 样品稀释曲线

Fig.2 Sample dilution curve

2.5.2 菌酶协同发酵棉籽粕对体外瘤胃发酵菌群alpha多样性的影响

表4可知,alpha多样性分析结果表明,对照组与菌酶协同组之间Chao1指数、Dominance指数、Observed_features指数、Pielou_e指数、Shannon指数和Simpson指数均无显著差异(P>0.05)。
表4 菌酶协同发酵棉籽粕对体外瘤胃发酵菌群alpha多样性的影响

Table 4 Effects of bacteria-enzyme synergy fermented cottonseed meal on microbiota alpha diversity of rumen fermentation in vitro

项目
Items
对照组
Control group
菌酶协同组
Bacteria-enzyme synergy group
P
P-value
Chao1指数Chao1 index 863.77±57.47 876.94±42.06 0.660
Dominance指数Dominance index 0.04±0.01 0.03±0.01 0.532
Observed_features指数Observed_features index 840.33±44.40 849.50±40.08 0.715
Pielou_e指数Pielou_e index 0.71±0.03 0.72±0.02 0.579
Shannon指数Shannon index 6.90±0.26 6.99±0.20 0.507
Simpson指数Simpson index 0.96±0.01 0.97±0.01 0.532

2.5.3 操作分类单位(OTUs)分析

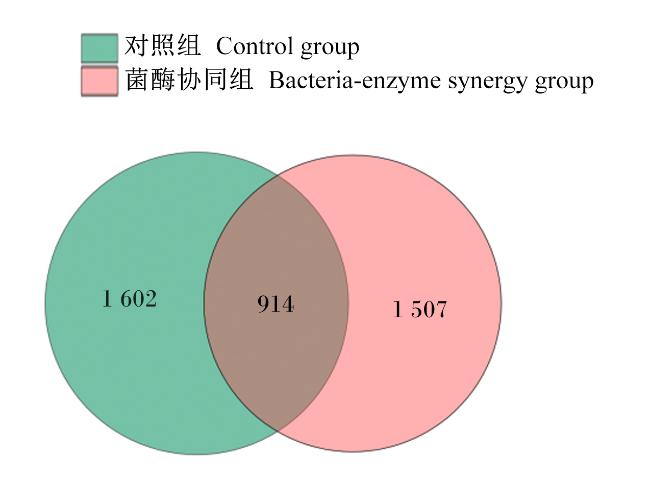
图3可知,对照组与菌酶协同组共有的OTUs数量为914个,对照组特有的OTUs数量为1 602个,菌酶协同组特有的OTUs数量为1 507个。
图3 OTUs韦恩图

Fig.3 Venn diagram of OTUs

2.5.4 发酵棉籽粕对体外胃瘤发酵菌群beta多样性的影响

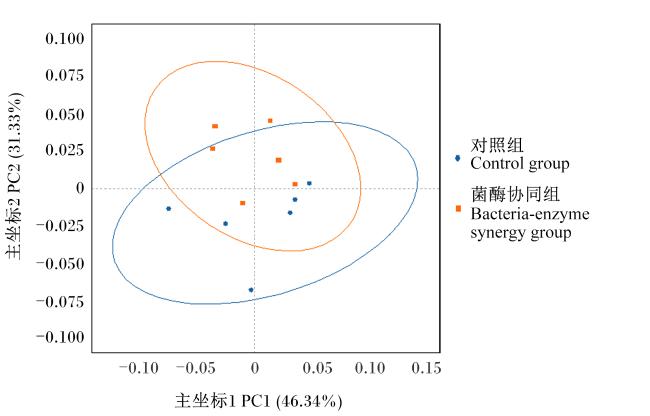
图4可知,基于Weighted Unifrac距离,主坐标1(PC1)和主坐标2(PC2)贡献率分别为46.34%和31.33%;对照组与菌酶协同组之间矩阵距离较近,提示对照组和菌酶协同组体外瘤胃发酵菌群的相似性较高。
图4 基于Weighted Unifrac距离的主坐标分析图

Fig.4 PCoA plot based on Weighted Unifrac distance

2.5.5 菌酶协同发酵棉籽粕对体外瘤胃发酵菌群构成的影响

在门水平上,体外瘤胃发酵菌群相对丰度排名前10如表5所示,对照组与菌酶协同组的优势菌门为拟杆菌门、厚壁菌门和变形菌门。菌酶协同组脱硫杆菌门和互养菌门相对丰度显著高于对照组(P<0.05),拟杆菌门相对丰度显著低于对照组(P<0.05)。
表5 菌酶协同发酵棉籽粕对体外瘤胃发酵菌群门水平相对丰度的影响

Table 5 Effects of bacteria-enzyme synergy fermented cottonseed meal on microbiota relative abundance of rumen fermentation in vitro at phylum level %

项目
Items
对照组
Control group
菌酶协同组
Bacteria-enzyme synergy group
P
P-value
拟杆菌门Bacteroidota 36.14±2.92a 32.82±1.92b 0.042
厚壁菌门Firmicutes 30.92±3.77 35.43±3.45 0.055
变形菌门Proteobacteria 30.43±5.39 28.61±3.90 0.519
脱硫杆菌门Desulfobacterota 0.58±0.09b 0.81±0.14a 0.007
互养菌门Synergistota 0.46±0.05b 0.71±0.07a <0.001
广古菌门Euryarchaeota 0.42±0.13 0.54±0.12 0.124
螺旋体门Spirochaetota 0.29±0.10 0.34±0.13 0.463
疣微菌门Verrucomicrobiota 0.30±0.08 0.27±0.11 0.584
放线菌门Actinobacteriota 0.14±0.04 0.17±0.04 0.282
纤维杆菌门Fibrobacterota 0.06±0.04 0.03±0.02 0.083
其他Others 0.26±0.05 0.27±0.07 0.702
在属水平上,体外瘤胃发酵菌群相对丰度排名前10如表6所示,菌酶协同组和对照组的优势菌属为瘤胃杆菌属和理研菌科RC9肠道群。菌酶协同组琥珀酸弧菌科UCG-001相对丰度显著低于对照组(P<0.05),丹毒丝菌科UCG-009和UCG-002相对丰度显著高于对照组(P<0.05)。
表6 菌酶协同发酵棉籽粕对体外瘤胃发酵菌群属水平相对丰度的影响

Table 6 Effects of bacteria-enzyme synergy fermented cottonseed meal on microbiota relative abundance of rumen fermentation in vitro at genus level %

项目
Items
对照组
Control group
菌酶协同组
Bacteria-enzyme synergy group
P
P-value
瘤胃杆菌属Ruminobacter 26.20±5.54 24.74±3.70 0.603
理研菌科RC9肠道群Rikenellaceae_RC9_gut_group 14.60±0.55 14.47±0.71 0.722
NK4A214群NK4A214_group 4.18±0.58 5.00±0.87 0.085
瘤胃球菌属Ruminococcus 4.39±0.62 4.81±0.78 0.326
普雷沃氏菌属7 Prevotella_7 3.17±1.58 1.66±0.87 0.067
普雷沃氏菌属Prevotella 3.69±0.83 2.77±0.64 0.056
解琥珀酸菌属Succiniclasticum 2.81±0.64 3.08±0.44 0.425
UCG-002 2.74±0.14b 3.49±0.19a <0.001
琥珀酸弧菌科UCG-001 Succinivibrionaceae_UCG-001 3.13±0.39a 2.60±0.41b 0.047
丹毒丝菌科UCG-009 Erysipelotrichaceae_UCG-009 1.73±0.44b 2.23±0.23a 0.033
其他Others 33.36±3.19 35.16±2.13 0.278

2.6 体外瘤胃发酵参数与属水平菌群相对丰度相关性分析

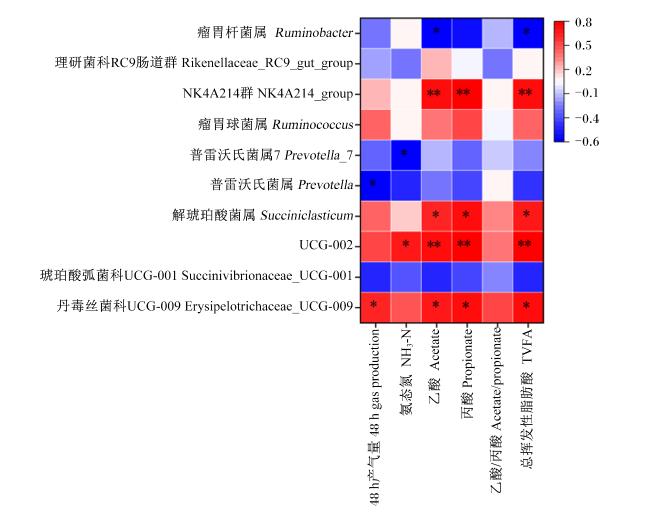
图5可知,将体外瘤胃发酵参数与属水平菌群相对丰度进行Spearman相关性分析,瘤胃杆菌属相对丰度与乙酸、TVFA含量呈显著负相关(P<0.05);NK4A214群、解琥珀酸菌属、UCG-002、丹毒丝菌科UCG-009相对丰度与乙酸、丙酸、TVFA含量呈显著或极显著正相关(P<0.05或P<0.01);普雷沃氏菌属、普雷沃氏菌属7相对丰度分别与48 h产气量、NH3-N含量呈显著负相关(P<0.05)。
图5 体外瘤胃发酵参数与属水平菌群相对丰度相关性分析

不同颜色表示相关系数的正负,颜色越深则相关性越强。*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.5 Correlation analysis between rumen fermentation parameters and microbiota relative abundance at genus level in vitro

Different colors represented the positive and negative of correlation coefficients, and the deeper the color, the stronger the correlation. * indicated significant correlation (P<0.05), and ** indicated extremely significant correlation (P<0.01).

3 讨论

3.1 发酵棉籽粕的常规营养成分、FG含量及SDS-PAGE变化

舒文秀[4]通过单因素试验对芽孢杆菌、酿酒酵母和植物乳杆菌复合发酵棉籽粕的发酵条件进行优化,发现棉籽粕中水溶蛋白含量在12~36 h明显增加,36 h后趋于平稳,而棉酚含量在36~72 h趋于平稳,综合后选择发酵时间为72 h。因此,本研究中考虑到发酵时间对常规营养物质、棉酚含量等影响,选择发酵时间为72 h。本研究采用了蛋白酶、微生物和菌酶协同3种方式发酵棉籽粕,与对照组相比,各处理棉籽粕CP含量均无显著差异,蛋白酶组和菌酶协同组ASP含量显著提高。潘进权等[12]以复合蛋白酶水解棉籽粕,在最佳工艺条件下,棉籽粕的多肽得率达到71.85%。张颖等[13]研究发现,利用干酪乳杆菌和芽孢杆菌源碱性蛋白酶在37℃的条件下固态发酵棉籽粕48 h,发酵后棉籽粕蛋白质水解度由29.56%提高至36.21%,ASP含量由4.22%提高至6.99%。韩伟等[14]利用枯草芽孢杆菌GJ00141、酿酒酵母GJ00079和中性蛋白酶发酵棉籽粕,发现ASP含量由3.68%提高至7.68%。这与本研究中蛋白酶组、菌酶协同组ASP含量增加的结果一致。
SDS-PAGE检测发现,与对照组和原料组相比,经蛋白酶和菌酶协同处理的棉籽粕,其分子质量由初始的40~55 ku降至10 ku左右。本研究中采用的蛋白酶为碱性蛋白酶,源于地衣芽孢杆菌,属于丝氨酸蛋白酶,在发酵过程中,该酶通过将蛋白质中的部分肽键水解,将大分子蛋白质降解为小分子肽或氨基酸。本研究中,微生物组和菌酶协同组NDF含量较对照组有所降低。这一结果可能表明在发酵过程中微生物迅速增殖并分泌纤维素酶,进而降解纤维素、半纤维素与木质素等成分,最终导致NDF含量降低。院江等[15]利用乳酸菌和酵母菌复合发酵棉籽壳,发现发酵前后棉籽壳中NDF含量由81.31%降至63.10%。和小黑[16]利用芽孢杆菌Z3发酵棉籽粕,发现棉籽粕经发酵后NDF含量较对照组降低了5.53%,与本研究结果一致。本研究中,各组FG含量较对照组显著降低,微生物组FG降解效率最高。王云超等[17]利用芽孢杆菌KC-1、乳酸菌SS-2、酵母菌JS-1固态发酵棉籽粕,发现以2∶1∶2的比例效果最佳,FG含量由727.15 mg/kg降至213.36 mg/kg,与本研究结果一致。本研究中,微生物组FG含量的降低可能是由于部分FG与发酵产物游离氨基酸或与活性蛋白质肽链中的游离氨基结合形成结合棉酚,使FG含量降低。

3.2 不同发酵处理棉籽粕对体外瘤胃发酵参数的影响

产气量是反映瘤胃发酵程度的重要指标,可在一定程度上反映瘤胃微生物的发酵状况,其高低主要取决于瘤胃微生物活性及发酵底物碳水化合物含量[18]。在本研究中,蛋白酶组和菌酶协同组的产气量高于对照组,这可能表明经蛋白酶或菌酶协同发酵处理后的棉籽粕,能够提高瘤胃微生物活性。DMD是评定饲料营养价值的关键指标,且与反刍动物的采食量呈正相关[19]。在本研究中,蛋白酶组和菌酶协同组DMD显著高于其他各组。已有研究指出体外发酵产气量与DMD呈正相关性[20],与本研究观察到的体外发酵产气量与DMD的正相关性结果相符。瘤胃液pH是反映瘤胃发酵状态的核心指标,也是瘤胃微生物正常生长繁殖和发挥功能的必要条件。反刍动物维持正常消化功能时,瘤胃液pH通常动态维持在5.5~7.5的正常范围内。本研究中,对照组、微生物组、微生物组和菌酶协同组之间瘤胃液pH差异不显著,变化范围在6.87~6.96,均处于正常范围,表明发酵棉籽粕对瘤胃内环境无不良影响。
瘤胃NH3-N含量是氮素代谢网路的关键动态平衡点,反映了瘤胃微生物对蛋白质合成及分解的效率。NH3-N含量在50~800 mg/L时有益于微生物蛋白的合成。本研究中,各组NH3-N含量均处于正常范围内,有利于瘤胃微生物蛋白的合成及营养物质的消化利用。蛋白酶组和菌酶协同组NH3-N含量显著高于其他各组,表明氮的降解率大于吸收率,推测是由于发酵底物中蛋白质更容易被瘤胃微生物降解导致。这与郁万瑞等[21]研究结果一致。

3.3 不同发酵处理棉籽粕对体外瘤胃发酵VFA含量的影响

VFA是瘤胃微生物代谢的主要产物,可为反刍动物基础代谢提供约70%的能量。VFA含量和比例是反映瘤胃发酵和消化代谢的重要指标。研究表明,乙酸是反刍动物机体乳脂合成的主要原料,而丙酸是合成葡萄糖的前体物质[22]。戊酸、异丁酸和异戊酸主要由饲料支链氨基酸经瘤胃微生物降解产生,不仅可用于重新合成支链氨基酸,也是微生物生长繁殖所必需的营养因子[23]。本研究发现,蛋白酶组和菌酶协同组乙酸、丙酸、异丁酸、丁酸、异戊酸、戊酸及TVFA含量均高于对照组。这表明经这2种处理的棉籽粕作为饲料底物,在瘤胃微生物发酵过程中的转化效率更高。乙酸/丙酸是反映瘤胃发酵模式变化的重要指标,有研究指出,当乙酸/丙酸低于2.5时,属于丙酸型发酵模式,其特点是反刍动物能够利用更多的丙酸合成葡萄糖为机体供能[24]。本研究中,蛋白酶组、微生物组和菌酶协同组乙酸/丙酸均低于2.5,且与对照组间无显著差异,说明发酵棉籽粕并未改变瘤胃的基础发酵模式。综合上述指标的分析结果,菌酶协同组的表现最优。因此,本研究选择对照组与菌酶协同组的发酵液进行瘤胃微生物区系的测定。

3.4 菌酶协同发酵棉籽粕对体外瘤胃发酵微生物区系的影响

瘤胃是反刍动物的核心消化器官,其内蕴藏着丰富的微生物群落。本研究中,菌酶协同处理棉籽粕对瘤胃体外发酵菌群Chao1指数、Observed_species指数、Pielou_e指数、Shannon指数和Simpson指数等均无显著影响,这表明菌酶协同发酵处理未显著影响瘤胃微生物群落的alpha多样性。在门水平上,拟杆菌门、厚壁菌门和变形菌门是本研究中主要的瘤胃微生物菌门,这与已知反刍动物瘤胃优势菌群的研究结果[25]相符。与对照组相比,菌酶协同组拟杆菌门相对丰度降低,而厚壁菌门相对丰度升高。有研究表明,反刍动物中厚壁菌门与拟杆菌门的相对丰度比值与平均日增重高度相关[26],这一变化提示菌酶协同组可能具有提高反刍动物平均日增重的潜力。脱硫杆菌门可降低瘤胃中硫化氢的浓度,减轻对瘤胃上皮细胞的影响[27];互养菌门代谢产物多与宿主能量供应和瘤胃上皮健康相关[28]。广古菌门多为产甲烷菌,通过利用氢气、甲酸或乙酸等底物生成甲烷,维持瘤胃低氢分压环境,从而支持纤维分解菌的活性[29]。菌酶协同组脱硫杆菌门、互养菌门和广古菌门相对丰度均高于对照组,这可能是其在发酵底物降解利用方面表现更优的原因之一。
在属水平上,对照组和菌酶协同组瘤胃微生物优势菌属均为瘤胃杆菌属和理研菌科RC9肠道群。瘤胃杆菌属和理研菌科RC9肠道群均属于变形菌门,瘤胃杆菌属能够将植物性蛋白质和非蛋白氮转化为微生物蛋白供宿主利用[30]。本研究发现,瘤胃杆菌属相对丰度与乙酸、TVFA含量呈显著负相关,提示其在VFA的代谢过程中起重要作用。理研菌科RC9肠道群可消化可溶性糖和不溶性纤维素,生成乙酸等VFA[31]。NK4A214群和UCG-002均属芽孢杆菌门毛螺菌科成员,具有纤维素降解活性,能够降解纤维促进瘤胃VFA的生成[32]。本研究中,菌酶协同组UCG-002相对丰度显著高于对照组。这与瘤胃发酵指标中该组VFA含量更高的结果相对应,也与其与乙酸、丙酸、TVFA含量呈极显著正相关的分析结果一致。普雷沃氏菌属和普雷沃氏菌属7均属普雷沃菌科,与蛋白质、淀粉、纤维素、果胶和木聚糖等降解过程密切相关。曾钰等[33]在棉籽粕和菜籽粕发酵饲料添加小肽饲喂肉牛的研究中发现,瘤胃菌群中普雷沃氏菌科所属细菌与瘤胃VFA的代谢相关。本研究中,对照组和菌酶协同组之间普雷沃菌属、普雷沃菌属7相对丰度无显著差异,与文献报道一致。解琥珀酸菌属能够将瘤胃中碳水化合物降解为琥珀酸,并继续参与代谢过程,最终生成丙酸[34]。这与本研究中菌酶协同组解琥珀酸菌属相对丰度高于对照组,且与丙酸含量呈显著正相关的结果一致。

4 结论

蛋白酶、微生物及菌酶协同处理均能显著降低棉籽粕FG含量。菌酶协同处理在提高棉籽粕DMD及ASP、NH3-N、VFA含量等方面效果最佳,同时菌酶协同处理对瘤胃菌群结构产生了影响,提高了脱硫杆菌门、互养菌门及丹毒丝菌科UCG-009、UCG-002相对丰度,对发酵底物的降解与利用产生了积极影响。
[1]
国家统计局. 中国统计年鉴2023[M]. 北京: 中国统计出版社, 2023.

National Bureau of Statistics. China statistical yearbook 2023[M]. Beijing: China Statistics Press, 2023. (in Chinese).

[2]
佚名. 中国饲料成分及营养价值表(第35版)[J]. 中国饲料, 2024(21):182-197.

Anon. Tables of feed composition and nutritive in China (thirty-fifth edition)[J]. China Feed, 2024(21):182-197. (in Chinese)

[3]
刘雅娜, 岳冰, 王淼淼, 等. 复合菌种协同蛋白酶发酵豆粕的优化工艺[J]. 广东饲料, 2021, 30(11):24-27.

LIU Y N, YUE B, WANG M M, et al. Optimization of the fermentation process of soybean meal by compound bacteria in synergy with protease[J]. Guangdong Feed, 2021, 30(11):24-27. (in Chinese)

[4]
舒文秀. 棉酚脱毒菌的筛选鉴定及其棉籽粕发酵试验研究[D]. 硕士学位论文. 兰州: 西北民族大学, 2021.

SHU W X. Screening and identification of gossypol det oxification bacteria experimental study on fermentation of cottonseed meal[D]. Master’s Thesis. Lanzhou: Northwest Minzu University, 2021. (in Chinese)

[5]
罗远琴, 胡倩, 芦岩, 等. 枯草芽孢杆菌、酿酒酵母及其复合菌发酵棉粕营养成分变化的研究[J]. 中国畜牧兽医, 2020, 47(2):452-459.

DOI

LUO Y Q, HU Q, LU Y, et al. Studies on nutrient composition of cotton meal fermented by Bacillus subtilis,Saccharomyces cerevisiae and their compound bacteria[J]. China Animal Husbandry & Veterinary Medicine, 2020, 47(2):452-459. (in Chinese)

[6]
李龙龙, 路顺萍, 陈雪文, 等. 棉花秸秆分别与全株玉米、甜菜渣混合青贮的营养价值研究[J]. 饲料研究, 2024, 47(2):106-110.

LI L L, LU S P, CHEN X W, et al. Nutritional value study of cotton straws combined with whole maize and beet residue in mixed silage[J]. Feed Research, 2024, 47(2):106-110. (in Chinese)

[7]
冯仰廉. 反刍动物营养学[M]. 北京: 科学出版社, 2004.

FENG Y L. Ruminant nutrition[M]. Beijing: Science Press, 2004. (in Chinese)

[8]
MENKE K H, STEINGASS H, MENKE. Estimation of the energetic feed value obtained from chemical analysis and in vitro gas production using rumen fluid[J]. Animal Research and Development, 1988, 28:7-55.

[9]
许晓莉. 添加大豆磷脂对绵羊瘤胃消化代谢及微生物区系的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2013.

XU X L. Effects of dietary addition of soybean lecithin on ruminal metabolism and microbial diversity in sheep[D]. Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2013. (in Chinese)

[10]
李晴. 添加不同组合支链氨基酸对绵羊整体消化代谢及瘤胃微生物多样性的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2015.

LI Q. Effects of adding different combinations branched-chain amino acid on sheep whole digestion metabolism and rumen microbial diversity[D]. Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2015. (in Chinese)

[11]
BOKULICH N A, SUBRAMANIAN S, FAITH J J, et al. Quality-filtering vastly improves diversity estimates from Illumina amplicon sequencing[J]. Nature Methods, 2013, 10(1):57-59.

DOI PMID

[12]
潘进权, 郑玉霞, 张耀尹. 复合蛋白酶水解棉粕制备多肽的工艺优化[J]. 中国油脂, 2018, 43(12):59-64.

PAN J Q, ZHENG Y X, ZHANG Y Y. Optimization of hydrolysis process of cottonseed meal by composite protease for preparation of polypeptides[J]. China Oils and Fats, 2018, 43(12):59-64. (in Chinese)

[13]
张颖, 郭祥月, 李千禧, 等. 菌酶协同发酵棉籽粕及其体外模拟消化研究[J]. 中国畜牧杂志, 2024, 60(5):239-246.

ZHANG Y, GUO X Y, LI Q X, et al. Study on the synergistic fermentation of cottonseed meal by fungi and enzymes and its in vitro simulated digestion[J]. Chinese Journal of Animal Science, 2024, 60(5):239-246. (in Chinese)

[14]
韩伟, 李晓敏, 刘倩, 等. 微生物固态发酵和酶解工艺处理棉粕的研究[J]. 中国油脂, 2017, 42(1):112-115.

HAN W, LI X M, LIU Q, et al. Treatment of cottonseed meal by solid-state fermentation and enzymatic hydrolysis[J]. China Oils and Fats, 2017, 42(1):112-115. (in Chinese)

[15]
院江, 孙新文, 丁宁, 等. 微生物发酵对棉籽壳营养成分及游离棉酚的影响[J]. 石河子大学学报(自然科学版), 2006, 24(3):299-301.

YUAN J, SUN X W, DING N, et al. Effects of microbial fermentation on the content of free gossypol and nutritive value of cottonseed hull[J]. Journal of Shihezi University (Natural Science Edition), 2006, 24(3):299-301. (in Chinese)

[16]
和小黑. 棉粕源枯草芽孢杆菌发酵饲料消化酶活性的研究[D]. 硕士学位论文. 石河子: 石河子大学, 2014.

HE X H. A study on digestive enzymes activity of Bacillus subtilis fermented feed from cottonseed meal[D]. Master’s Thesis. Shihezi: Shihezi University, 2014. (in Chinese)

[17]
王云超, 米军, 刘孟健, 等. 棉粕固态发酵菌种的筛选及复配[J]. 饲料工业, 2017, 38(21):57-61.

WANG Y C, MI J, LIU M J, et al. Screening and complex of solid state fermentation strains of cottonseed meal[J]. Feed Industry, 2017, 38(21):57-61. (in Chinese)

[18]
ZHANG M M, LIANG G G, ZHANG X L, et al. The gas production,ruminal fermentation parameters,and microbiota in response to Clostridium butyricum supplementation on in vitro varying with media pH levels[J]. Frontiers in Microbiology, 2022, 13:960623.

DOI

[19]
LUNSIN R, PILAJUN R, CHERDTHONG A, et al. Effects of high-quality oil palm frond pellets on nutrient digestion,rumen fermentation,and production performance of lactating dairy cows[J]. Applied Animal Science, 2021, 37(5):574-582.

DOI

[20]
NOGOY K M C, YU J, SONG Y G, et al. Evaluation of the nutrient composition,in vitro fermentation characteristics,and in situ degradability of Amaranthus caudatus,Amaranthus cruentus,and Amaranthus hypochondriacus in cattle[J]. Animals, 2020, 11(1):18.

DOI

[21]
郁万瑞, 李明洋, 王芳芳, 等. 不同比例芦苇秸秆与残次香梨混合青贮对绵羊体外瘤胃发酵特性的影响[J]. 动物营养学报, 2024, 36(10):6511-6527.

DOI

YU W R, LI M Y, WANG F F, et al. Effects of mixed silage of reed straw and defective pear with different proportions on in vitro rumen fermentation characteristics in sheep[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6511-6527. (in Chinese)

[22]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

DOI PMID

[23]
靳亚星, 李璇玥, 李千一, 等. 饲粮营养水平对多浪羊生长性能、肉品质、血清生化指标及瘤胃发酵参数的影响[J]. 中国畜牧兽医, 2024, 51(10):4343-4351.

DOI

JIN Y X, LI X Y, LI Q Y, et al. Effects of dietary nutrient levels on growth performance,meat quality,serum biochemical indices and rumen fermentation parameters of Duolang sheep[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(10):4343-4351. (in Chinese)

[24]
赵亚星. 沙葱精油对肉羊脂代谢和挥发性风味物质组成的影响及其机理[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2022.

ZHAO Y X. Effects of Allium mongolicum regel essential oil on lipid metabolism and components of volatile flavor compounds and its relevant mechanism in mutton sheep[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2022. (in Chinese)

[25]
HAN L L, XUE W C, CAO H W, et al. Comparison of rumen fermentation parameters and microbiota of yaks from different altitude regions in Tibet,China[J]. Frontiers in Microbiology, 2021, 12:807512.

DOI

[26]
MIN B R, GURUNG N, SHANGE R, et al. Potential role of rumen microbiota in altering average daily gain and feed efficiency in meat goats fed simple and mixed pastures using bacterial tag-encoded FLX amplicon pyrosequencing[J]. Journal of Animal Science, 2019, 97(8):3523-3534.

DOI

[27]
王振阳, 胡杨恺, 李泽伦, 等. 芦竹叶替代苜蓿干草对奶牛瘤胃体外发酵特性和菌群结构的影响[J]. 动物营养学报, 2024, 36(11):7196-7211.

DOI

WANG Z Y, HU Y K, LI Z L, et al. Effects of giant reed leaves replacing alfalfa hay on rumen fermentation characteristics and microbiota structure of dairy cows in vitro[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7196-7211. (in Chinese)

[28]
MIZRAHI I, WALLACE R J, MORAÏS S. The rumen microbiome:balancing food security and environmental impacts[J]. Nature Reviews Microbiology, 2021, 19(9):553-566.

DOI

[29]
薛树媛, 李九月, 田丰, 等. 膨化秸秆微生物发酵饲料对杜寒杂交肉羊瘤胃微生物区系的影响[J]. 中国饲料, 2021(19):115-123.

XUE S Y, LI J Y, TIAN F, et al. Effects of extruded straw microbial fermented feed on rumen microflora of Dorper×Han crossbred sheep[J]. China Feed, 2021(19):115-123. (in Chinese)

[30]
范定坤, 张吉贤, 付域泽, 等. 反刍动物瘤胃微生物培养组学研究进展[J]. 畜牧兽医学报, 2024, 55(1):51-58.

DOI

FAN D K, ZHANG J X, FU Y Z, et al. Research progress of ruminant microbial culturomics[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(1):51-58. (in Chinese)

DOI

[31]
ZHU Y X, WANG Z S, HU R, et al. Comparative study of the bacterial communities throughout the gastrointestinal tract in two beef cattle breeds[J]. Applied Microbiology and Biotechnology, 2021, 105(1):313-325.

DOI PMID

[32]
NYONYO T, SHINKAI T, MITSUMORI M. Improved culturability of cellulolytic rumen bacteria and phylogenetic diversity of culturable cellulolytic and xylanolytic bacteria newly isolated from the bovine rumen[J]. FEMS Microbiology Ecology, 2014, 88(3):528-537.

DOI PMID

[33]
曾钰, 游茵洁, 高彦华, 等. 发酵杂粕型饲粮中添加小肽对肉牛瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2024, 36(8):5094-5106.

DOI

ZENG Y, YOU Y J, GAO Y H, et al. Effects of small peptide supplementation in diets with fermented mixed meals on rumen fermentation parameters and microflora of beef cattle[J]. Chinese Journal of Animal Nutrition, 2024, 36(8):5094-5106. (in Chinese)

DOI

[34]
RIDWAN R, RUSMANA I, WIDYASTUTI Y, et al. Bacteria and methanogen community in the rumen fed different levels of grass-legume silages[J]. Biodiversitas Journal of Biological Diversity, 2019, 20(4):1055-1062.

DOI

文章导航

/