综述

酵母细胞壁β-葡聚糖和甘露聚糖的改性及其对畜禽健康的调控作用

  • 李静薇 , 1 ,
  • 张董燕 2 ,
  • 刘明 , 1, *
展开
  • 1 北京农学院动物科学技术学院,北京 102206
  • 2 北京市农林科学院畜牧兽医研究所,北京 100097
* 刘明,教授,博士生导师,E-mail:

李静薇(2002—),女,云南迪庆人,硕士研究生,研究方向为微生物发酵技术与饲料应用。E-mail:

收稿日期: 2025-06-29

  网络出版日期: 2026-01-13

基金资助

北京农学院人才强教工程项目(5066516008-6)

河北省科技计划资助项目(2022HBQZYCXY016)

Modification of Yeast Cell Wall β-Glucan and Mannan and Their Regulation on Health of Livestock and Poultry

  • LI Jingwei , 1 ,
  • ZHANG Dongyan 2 ,
  • LIU Ming , 1, *
Expand
  • 1 Animal Science and Technology College, Beijing University of Agriculture, Beijing 102206, China
  • 2 Institute of Animal Husbandry and Veterinary Medicine, Beijing Academy of Agriculture and Forestry Sciences, Beijing 100097, China
* professor,E-mail:

Received date: 2025-06-29

  Online published: 2026-01-13

摘要

酵母菌是一类单细胞真菌,酵母细胞壁是其活性成分的来源,以β-葡聚糖和甘露聚糖作为主要活性物质,具有提高免疫力和抗氧化活性等功效,在饲料、养殖等领域应用广泛,展现出重要的应用价值。近年来,通过物理、化学和酶法改性等手段,提高了β-葡聚糖和甘露聚糖的水溶性和原有生物活性,降低生产成本,有着广阔的应用潜力。本文从酵母细胞壁β-葡聚糖和甘露聚糖的结构、改性方法、生物活性3个方面进行了综述,为推动酵母细胞壁β-葡聚糖和甘露聚糖的深度研究及其在畜禽生产中的科学应用提供参考。

本文引用格式

李静薇 , 张董燕 , 刘明 . 酵母细胞壁β-葡聚糖和甘露聚糖的改性及其对畜禽健康的调控作用[J]. 动物营养学报, 2026 , 38(1) : 111 -118 . DOI: 10.12418/CJAN2026.010

Abstract

Yeasts are a group of unicellular fungi, and yeast cell walls serve as a source of their active components. With β-glucan and mannan as the main active substances, they possess efficacy such as enhancing immunity and antioxidant activity, and are widely applied in fields like feed and aquaculture, demonstrating significant application value. In recent years, physical, chemical, and enzymatic modification methods have been employed to improve the water solubility and inherent biological activity of β-glucan and mannan, while reducing production costs, thus showing broad application potential. This article reviews the structure, modification methods, and biological activities of β-glucan and mannan from yeast cell walls, aiming to provide a reference for promoting in-depth research on yeast cell wall β-glucan and mannan and their scientific application in livestock and poultry production.

酵母菌是一类单细胞真菌,酵母细胞壁多糖是其重要的活性物质组成成分,酵母细胞壁多糖主要包括β-葡聚糖和甘露聚糖。研究表明,β-葡聚糖和甘露聚糖具有改善肠道环境、激活先天性免疫和调节获得性免疫等作用[1-4]。近年来,部分对β-葡聚糖和甘露聚糖进行改性研究,发现通过改性可提高其水溶性与原有生物活性[5-6]。为此,本文从酵母细胞壁及β-葡聚糖和甘露聚糖的结构、改性及其对畜禽健康的调控作用进行了综述,以期为推动酵母细胞壁β-葡聚糖和甘露聚糖在畜禽营养中的应用提供参考。

1 酵母细胞壁的结构

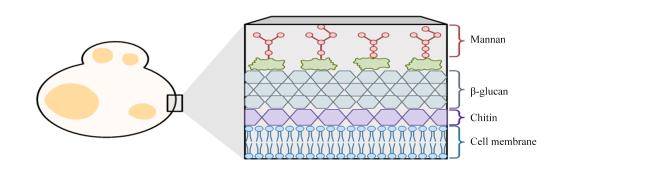
酵母细胞壁是一种复杂的结构,由共价连接的多糖和蛋白质基质组成,包括β-葡聚糖、甘露聚糖、蛋白质和几丁质(图1),这几种成分的比例可根据酵母种类和环境条件而变化[7]。一般情况下,各成分在酵母细胞壁中的占比β-葡聚糖为29%~64%,甘露聚糖为31%,蛋白质为13%,脂质为9%,几丁质为1%~2%[8]
图1 酵母细胞壁结构

Mannan:甘露聚糖;β-glucan:β-葡聚糖;Chitin:几丁质;Cell membrane:细胞膜。

Fig.1 Structure of yeast cell wall

1.1 β-葡聚糖

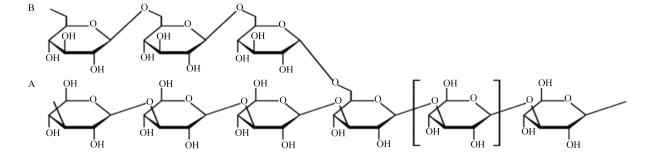
β-葡聚糖位于酵母细胞壁的内层,主要以柔性β-1,3结构连接,可以进行各种延伸[9]。β-葡聚糖由葡萄糖分子通过β-糖苷键连接而成,根据连接方式的不同,可细分为β-1,3葡聚糖(占细胞壁β-葡聚糖总量的85%),以及β-1,6葡聚糖(占β-葡聚糖总量15%),一般β-1,3葡聚糖亚型在一条链上有超过1 500个葡萄糖单元,而β-1,6葡聚糖具有较低的聚合度,约有150个葡萄糖单元[10]。β-葡聚糖结构见图2
图2 β-葡聚糖结构

A:β-1,3葡聚糖和主链 β-1,3 glucan and main chain;B:β-1,6葡聚糖和侧链 β-1,6 glucan and side chain。

Fig.2 Structure of β-glucan[8]

1.2 甘露聚糖

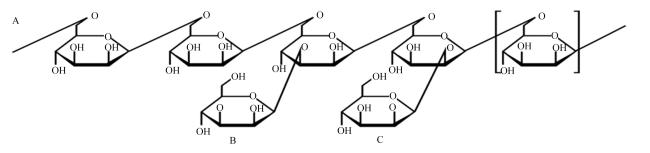
甘露聚糖存在于酵母细胞壁的外层,占细胞壁质量的30%~50%,与表面蛋白碳水化合物侧链上的多个磷酸二酯桥结合[11]。甘露聚糖是由约 90% 的甘露糖与 10% 的蛋白质共同组成的多糖链:其主链中,甘露糖残基通过 α-1,6 糖苷键连接;侧链则由多个甘露糖分子通过 α-1,2 及 α-1,3 糖苷键连接而成。[8]。甘露糖蛋白具有与天冬酰胺残基相连的高度支链碳水化合物[9]。甘露聚糖是甘露糖蛋白的外层,甘露聚糖的部分也可以连接在丝氨酸或苏氨酸的羟基上(O-连接)或天冬酰胺的胺基上(N-连接)[12]。甘露聚糖结构结构见图3
图3 甘露聚糖结构

A:α-1,6甘露聚糖和主链 α-1,6 mannan and main chain;B:α-1,3甘露聚糖 α-1,3 mannan;C:α-1,2甘露聚糖 α-1,2 mannan。

Fig.3 Structure of mannan[8]

2 β-葡聚糖和甘露聚糖的改性

多糖的生物活性和理化性质直接或间接受其结构的调节,通过物理、化学等方法来改变多糖结构可以改善其生物活性,如提高它们原有的生物活性或使其产生新的生物活性,因此近年来有多项研究对β-葡聚糖和甘露聚糖进行改性。

2.1 β-葡聚糖的改性

目前,常用的β-葡聚糖的改性方法有物理法、化学法等,物理法包括超声波改性、辐照改性和微波改性,化学法包括羧甲基化、硫酸化、磷酸化等[13]。物理改性中的超声通过疏散聚集体结构、扩大其表面积来促进酵母β-葡聚糖的酶解,从而提高其产量[14]。Yuan等[6]研究使用超声协同酶法对酵母β-葡聚糖进行改性,改性后的β-葡聚糖溶解度达到75.35%。超声酶法提高了降解效率,使β-葡聚糖颗粒明显变小,稳定性得到提高,同时β-葡聚糖天然三螺旋结构中的氢键部分断裂,其原始结构被破坏从而更容易溶于水。Ma等[15]利用超声辅助过氧化氢(H2O2)溶解酵母β-葡聚糖,将β-葡聚糖的溶解度增加到70.00%,分子质量从6.73×10⁶ Da降至1.22×10⁶ Da;扫描电子显微镜(SEM)显示超声辅助H2O2在不改变β-葡聚糖主要结构的情况下,大大增加了构象的柔韧性,同时β-葡聚糖的溶解提高了β-葡聚糖对自由基的清除活性。β-葡聚糖也可以通过辐照进行改性,包括γ射线、X射线和电子束,以引起其结构的物理和化学变化[16]。Methacano等[17]通过γ辐照修饰探究β-葡聚糖的构象与白细胞介素-8(IL-8)的刺激活性之间的关系,发现随着照射计量的增加,β-葡聚糖的分子质量从5.9×10³ Da下降至5 000 Da,表明具有螺旋构象的β-葡聚糖在诱导IL-8的产生中活性较低,而分子质量为5 000 Da的β-葡聚糖表现出最强的诱导IL-8产生的能力,这可能是因为较小的分子与受体结合的几率更高。
化学改性一般为β-葡聚糖主链或侧链上的基团发生酯化反应,引入不同基团从而改变其生物活性[18-19]。Li等[5]研究通过对酿酒酵母菌细胞壁进行降解和硫酸化改性,获得了分子质量分别为560、60和146 kDa,硫酸盐度数为2.04的硫酸化水溶性β-葡聚糖(SCGS),通过碳水化合物微阵列和表面等子体共振试验对比了天然β-葡聚糖和硫酸化衍生物之间的结合亲和力,该研究发现,SCGS与成纤维细胞生长因子(FGF)、血管内皮生长因子(VEGF)表现出很强的结合力,而天然β-葡聚糖没有反应,表明硫酸化β-葡聚糖具有作为新型抗肿瘤药物的潜力,此外,SCGS显著抑制了小鼠高度转移性黑色素瘤(B16F10)细胞的迁移速率,可以显著减少和消除结节,体内抑制率达到86.7%;同时显著上调干扰素-α(IFN-α)、肿瘤坏死因子-α(TNF-α)和白细胞介素-1β(IL-1β)含量。Mei等[20]研究了磷酸化修饰对酵母细胞壁β-D-1,3葡聚糖抗氧化活性的影响,采用酸碱法提取碱不溶性β-D-1,3葡聚糖合成了磷酸化衍生物,该研究结果显示,磷酸化β-D-1,3葡聚糖能够清除1,1-二苯基-2-三硝基苯肼(DPPH)自由基,且随着β-葡聚糖浓度的增加对DPPH自由基的清除作用增强,呈现出明显的量效关系,体内测定结果表明高、中剂量的磷酸化β-D-1,3葡聚糖可显著提高小鼠血清、肝脏和脑组织中超氧化物歧化酶(SOD)和过氧化氢酶(CAT)的活性,表明磷酸化可以提高酵母细胞壁来源的β-D-1,3葡聚糖的抗氧化活性。

2.2 甘露聚糖的改性

化学改性法是目前甘露聚糖最常用的的改性方法,通过化学方法将其他活性基团引入多糖链,从而产生更新的生物活性或增强原有的生物活性的一种方法,是克服天然多糖水溶性差和生物活性低的最佳和广泛的使用方法,常见羧甲基化、磷酸化、硫酸化和乙酰化,通常是将原有的基团取代而增强其生物活性[21-22]。Liu等[23]研究通过化学改性方法获得了5种甘露聚糖的衍生物,分别是磷酸化甘露聚糖(P-M)、硫酸化甘露聚糖(S-M)、羧甲基化甘露聚糖(CM-M)、羧甲基化磷酸化甘露聚糖(CMP-M)和羧甲基化硫酸甘露聚糖(CMS-M),并对甘露聚糖及其5种化学改性的衍生物进行自由基清除能力的测定,结果显示,磷酸化甘露聚糖和羧甲基化磷酸化甘露聚糖的羟基自由基清除能力相比甘露聚糖有所提高,且所有衍生物的抗脂质过氧化能力均高于甘露聚糖,其中羧甲基化磷酸化甘露聚糖的抗脂质过氧化能力最强。

3 β-葡聚糖和甘露聚糖对畜禽健康的调控作用

β-葡聚糖和甘露聚糖在动物体内具有显著的生物活性,可预防疾病、调节免疫(表1),最终提高动物的生长性能。
表1 β-葡聚糖和甘露聚糖的生物活性

Table 1 Biological activities of β-glucan and mannan

项目
Items
动物模型
Animal model
生物活性
Biological activity
参考文献
References
β-葡聚糖
β-glucan
断奶仔猪 促进脂质代谢、调节肠道微生物群、
提高断奶仔猪的生长性能
[24]
β-葡聚糖
β-glucan
断奶仔猪 抑制炎性细胞因子的分泌、提高血清免疫球蛋白
含量、改善肠道上皮功能、减轻大肠杆菌攻击
后断奶仔猪的肠道损伤
[25]
β-葡聚糖
β-glucan
保育猪 减少保育猪空肠中的促炎细胞因子含量、激活肠道中的C型凝集
素样受体-1来降低免疫反应的能量消耗、减少胃肠道
毒性中的炎症、提高保育猪的生长速度
[26]
β-葡聚糖
β-glucan
蛋鸡 提高蛋鸡对粗蛋白质、干物质消化率及
代谢能、增加产蛋量
[27]
甘露聚糖
Mannan
保育猪 降低消化液黏度、增强营养消化并改善
保育猪肠道健康和生长性能
[28]
甘露聚糖
Mannan
肉鸡 诱导免疫细胞表达、促进肠道有益菌增殖、
提高肉鸡生长性能和体液免疫力
[29]

3.1 维护肠道屏障功能

肠道菌群在营养物质消化与吸收以及免疫调节中发挥着关键作用,肠道菌群失衡会导致疾病的发生,常规状态下,肠道内的菌群维持动态平衡状态,共生肠道菌群通过竞争营养和黏附位点抑制有害病原体,维持肠道免疫屏障的发育和功能[30-31]。多项研究表明,酵母细胞壁β-葡聚糖和甘露聚糖可以促进动物肠道菌群健康,改善肠道屏障功能,并丰富肠道菌群的构成[32-35]。β-葡聚糖还可通过上调紧密连接蛋白的水平,促进乙酰胆碱酯酶、物质等神经递质的表达与短链脂肪酸的产生,增加有益菌的丰度,减少肠道屏障的损伤[36-37]
甘露聚糖可以在肠道中被降解成短链脂肪酸,为肠道细胞提供能量,维持肠道形态和功能,当甘露聚糖作为碳源存在时,可以提高拟杆菌的代谢而占据竞争优势,从而避免其他菌群的过度繁殖,间接维持肠道菌群平衡[38]。在作为肠道抗菌剂方面,布拉迪酵母菌的甘露聚糖呈现出海绵状结构,通过甘露聚糖的特异性黏附素来吸附肠道致病菌,如沙门氏菌、大肠杆菌[39]。Corrigan等[40]在蛋鸡基础饲粮中添加酵母菌衍生的甘露聚糖(MRF)开展饲养试验,结果表明与有益微生物添加组相比,MRF 补充组蛋鸡肠道内致病菌(如埃希菌属、短螺旋菌属、特吕佩尔氏菌属)及其携带的抗菌药物耐药性(AMR)编码基因的相对丰度显著降低,进而有效降低肠道疾病的发生风险。Bar-Dagan等[41]研究表明,β-葡聚糖可通过调控肠道菌群、恢复肠道微生态平衡,进而调节机体内神经递质的表达。以酵母菌源 β-葡聚糖,或酵母与蘑菇来源 β-葡聚糖的混合物作为雏鸡饲粮添加剂开展体内试验,结果表明:β-葡聚糖能够激活肠道巨噬细胞,调控肠道形态与功能,进而发挥抗炎及免疫调节作用,最终改善雏鸡肠道健康。

3.2 提高免疫力

在免疫细胞表面受体的刺激下,β-葡聚糖能刺激释放细胞因子和趋化因子,如树突状细胞中肿瘤坏死因子和白细胞介素的分泌,也可激活巨噬细胞,增加巨噬细胞中溶菌酶的数量,还能通过激活C型凝集素样受体-1(Dectin-1)、补体受体3(CR3)、Toll样受体4(TLR4)等受体及下游信号通路(如脾酪氨酸激酶、磷脂酰肌醇3-激酶),诱导训练免疫,增强先天免疫反应[42-43]。甘露聚糖可以激活免疫细胞,包括巨噬细胞、树突状细胞、T细胞和上皮细胞,这种激活是通过N-连接的甘露糖特异性识别C型凝集素受体,如C型凝集素样受体-2(Dectin-2)、甘露糖结合凝集素、树突状细胞受体的级联反应[38,44]。Qui等[45]研究显示,在饲粮中添加β-葡聚糖显著提高了肉鸡的生长性能、新城疫(ND)抗体滴度以及胸腺器官指数,可以有效提高其免疫力。已有研究证明,β-葡聚糖可以调节鱼类一些重要的生化指标(血清血红蛋白、血清蛋白含量和总血细胞计数)和免疫学特性(溶菌酶、吞噬、氧化爆发和酚氧化酶活性)[46]

3.3 提高抗氧化能力

动物机体内氧化和抗氧化系统失衡会引起动物的氧化应激,对动物机体健康造成损害,因此抗氧化对预防和治疗氧化应激,保护机体健康起着关键作用。β-葡聚糖与甘露聚糖能够通过增强SOD、CAT等关键抗氧化酶的活性,有效提升对自由基和超氧阴离子的清除效率,从而提升动物机体的抗氧化能力[8]。Lei等[47]对低分子质量酵母β-葡聚糖的抗氧化作用进行探讨,制备3种不同分子质量的硫酸化β-葡聚糖(SCGS),受分子质量的影响,这些β-葡聚糖在试验中表现出不同的抗氧化活性,其中最低分子质量的硫酸化葡聚糖表现出最高的抗氧化活性。He等[48]探究了酵母 β-葡聚糖对育肥猪抗氧化能力的影响,结果表明:在饲粮中添加 200 mg/kg 酵母 β-葡聚糖,可显著提高育肥猪骨骼肌中CAT、SOD的活性及总抗氧化能力(T-AOC);同时,该添加量可显著降低结肠内容物中 WPS-2 的相对丰度,且 WPS-2 相对丰度与肌肉乳酸含量、滴水损失呈显著正相关。由此可见,饲粮中添加 200 mg/kg 酵母 β-葡聚糖,可通过抑制宰后肌肉糖酵解、增强机体抗氧化能力,有效改善鲜肉的 pH 与持水性能。Zhao等[49]研究不同分子质量甘露聚糖抗氧化活性的差异,通过乙醇沉淀从酿酒酵母中获得甘露聚糖多糖YM50、YM70和YM90,分子质量分别为172.90、87.09和54.05 kDa,试验表明酵母甘露聚糖具有很强的自由基清除能力,且受其分子质量影响,分子质量越低,甘露聚糖清除自由基的能力越强,抗氧化能力越强。Yehia等[50]研究指出,从酿酒酵母中提取的甘露聚糖也具有显著地清除羟基自由基和超氧阴离子的能力。

4 小结与展望

酵母菌细胞壁中的β-葡聚糖和甘露聚糖作为主要功能性成分,具有维护肠道健康、提升机体免疫力和抗氧化能力等重要生物活性。值得注意的是,β-葡聚糖和甘露聚糖2种活性成分对动物机体的有益效应具有异质性,其作用效果受到畜禽品种、年龄阶段及饲养环境等因素影响。因此,系统开展不同畜禽种类、生长阶段和饲养条件下β-葡聚糖和甘露聚糖的作用机制研究,解析其与宿主-微生物互作的关键节点,将为开发精准靶向的高效饲料添加剂提供科学依据。此外,随着改性技术的持续迭代,通过物理、化学或酶法等手段对β-葡聚糖和甘露聚糖进行结构改性优化,可提高水溶性、增强抗氧化性等,为二者在饲料和食品工业中的创新应用开辟了新途径。
[1]
VETVICKA V, VETVICKOVA J. Anti-infectious and anti-tumor activities of β-glucans[J]. Anticancer Research, 2020, 40(6):3139-3145.

DOI PMID

[2]
KOROLENKO T A, BGATOVA N P, OVSYUKOVA M V, et al. Hypolipidemic effects of β-glucans,mannans,and fucoidans:mechanism of action and their prospects for clinical application[J]. Molecules (Basel,Switzerland), 2020, 25(8):1819.

DOI

[3]
HAMZA Z K, HATHOUT A S, OSTROFF G, et al. Assessment of the protective effect of yeast cell wall β-glucan encapsulating humic acid nanoparticles as an aflatoxin B1 adsorbent in vivo[J]. Journal of Biochemical and Molecular Toxicology, 2022, 36(1):e22941.

DOI

[4]
PAULOVIČOVÁ E, PAULOVIČOVÁ L, ČÍŽOVÁ A, et al. Amphoteric mannan as an immune response modifier.New model immunobiologically active Candida albicans mannan-based formula[J]. Immunological Investigations, 2023, 52(4):415-438.

DOI

[5]
LI J, ZHENG M M, WANG Z, et al. Anti-tumor and anti-metastasis of water-soluble sulfated β-glucan derivatives from Saccharomyces cerevisiae[J]. Carbohydrate Polymers, 2024, 344:122466.

[6]
YUAN H J, HE Y, ZHANG H, et al. Ultrasound-assisted enzymatic hydrolysis of yeast β-glucan catalyzed by β-glucanase:chemical and microstructural analysis[J]. Ultrasonics Sonochemistry, 2022, 86:106012.

[7]
JOFRE F M, DE SOUZA QUEIROZ S, SANCHEZ D A, et al. Biotechnological potential of yeast cell wall:an overview[J]. Biotechnology Progress, 2024, 40(6):e3491.

DOI

[8]
LIU Y N, WU Q, WU X Y, et al.Structure, preparation,modification,and bioactivities of β-glucan and mannan from yeast cell wall:a review[J]. International Journal of Biological Macromolecules, 2021, 173:445-456.

DOI

[9]
KLIS F M, MOL P, HELLINGWERF K, et al. Dynamics of cell wall structure in Saccharomyces cerevisiae[J]. FEMS Microbiology Reviews, 2002, 26(3):239-256.

DOI

[10]
AGUILAR-USCANGA B, FRANÇOIS J M. A study of the yeast cell wall composition and structure in response to growth conditions and mode of cultivation[J]. Letters in Applied Microbiology, 2003, 37(3):268-274.

DOI

[11]
KLIS F M, BOORSMA A. DE GROOT P W J. Cell wall construction in Saccharomyces cerevisiae[J]. Yeast, 2006, 23(3):185-202.

DOI

[12]
ORLEAN P. Architecture and biosynthesis of the Saccharomyces cerevisiae cell wall[J]. Genetics, 2012, 192(3):775-818.

DOI

[13]
WANG Q, SHENG X, SHI A, et al. β-glucans:relationships between modification,conformation and functional activities[J]. Molecules, 2017, 22(2):257.

DOI

[14]
ZHENG Z M, HUANG Q L, LUO X G, et al. Effects and mechanisms of ultrasound- and alkali-assisted enzymolysis on production of water-soluble yeast β-glucan[J]. Bioresource Technology, 2019, 273:394-403.

DOI PMID

[15]
MA X, DONG L, HE Y, et al. Effects of ultrasound-assisted H2O2 on the solubilization and antioxidant activity of yeast β-glucan[J]. Ultrasonics Sonochemistry, 2022, 90:106210.

[16]
李彦杰, 哈益明, 范蓓, 等. 辐照技术在多糖分子修饰中的应用[J]. 食品科学, 2009, 30(21):403-408.

DOI

YAN J L, HA Y M, FAN B, et al. Application of radiation technology in molecular modification of polysaccharides:a review[J]. Food Science, 2009, 30(21):403-408.

[17]
METHACANON P, WEERAWATSOPHON U, TANJAK P, et al. Interleukin-8 stimulating activity of low molecular weight β-glucan depolymerized by γ-irradiation[J]. Carbohydrate Polymers, 2011, 86(2):574-580.

DOI

[18]
CALEGARI G C, QUEIROZ SANTOS V A, BARBOSA-DEKKER A M, et al. Sulfonated (1→6)-β-D-glucan (lasiodiplodan):preparation,characterization and bioactive properties[J]. Food Technology and Biotechnology, 2019, 57(4):490-502.

DOI

[19]
WILLIAMS D L, MCNAMEE R B, JONES E L, et al. A method for the solubilization of a (1→3)-β-D-glucan isolated from Saccharomyces cerevisiae[J]. Carbohydrate Research, 1991, 219:203-213.

DOI

[20]
MEI X, TANG Q, HUANG G, et al. Preparation,structural analysis and antioxidant activities of phosphorylated (1→3)-β-D-glucan[J]. Food Chemistry, 2020, 309:125791.

[21]
CHAKKA V P, ZHOU T. Carboxymethylation of polysaccharides:synthesis and bioactivities[J]. International Journal of Biological Macromolecules, 2020, 165(Pt B):2425-2431.

DOI

[22]
XU Y, WU Y J, SUN P L, et al. Chemically modified polysaccharides:synthesis,characterization,structure activity relationships of action[J]. International Journal of Biological Macromolecules, 2019, 132:970-977.

DOI

[23]
LIU Y, HUANG G L. The derivatization and antioxidant activities of yeast mannan[J]. International Journal of Biological Macromolecules, 2018, 107(Pt A):755-761.

DOI PMID

[24]
BARDUCCI R S, SANTOS A A D, PACHECO L G, et al. Enhancing weaned piglet health and performance: the role of autolyzed yeast (Saccharomyces cerevisiae) and β-glucans as a blood plasma alternative in diets[J]. Animals, 2024, 14(4):631.

DOI

[25]
ZHOU Y, LUO Y, YU B, et al. Effect of β-glucan supplementation on growth performance and intestinal epithelium functions in weaned pigs challenged by enterotoxigenic Escherichia coli[J]. Antibiotics, 2022, 11(4):519.

DOI

[26]
CHOI H, KIM S W. Characterization of β-glucans from cereal and microbial sources and their roles in feeds for intestinal health and growth of nursery pigs[J]. Animals, 2023, 13(13):2236.

DOI

[27]
EZZAT W, MAHROSE K M, RIZK A M, et al. Impact of b-glucan dietary supplementation on productive, reproductive performance and physiological response of laying hens under heat stress conditions[J]. Poultry Science, 2024, 103:103183.

[28]
JANG K B, KIM Y I, DUARTE M E, et al. Effects of β-mannanase supplementation on intestinal health and growth of nursery pigs[J]. Journal of Animal Science, 2024, 102:skae052.

[29]
WANG A H, ARCHILE A, PATTERSON R. Feeding a novel mannan-rich yeast carbohydrate product improves production performance and humoral immunity of broiler chickens[J]. Animals, 2024, 14(11):1667.

DOI

[30]
ZHONG Y F, WANG S S, DI H Q, et al. Gut health benefit and application of postbiotics in animal production[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):38.

DOI PMID

[31]
GASALY N, DE VOS P, HERMOSO M A. Impact of bacterial metabolites on gut barrier function and host immunity:a focus on bacterial metabolism and its relevance for intestinal inflammation[J]. Frontiers in Immunology, 2021, 12:658354.

[32]
ZHANG X, ZHANG Y, HE Y, et al. β-glucan protects against necrotizing enterocolitis in mice by inhibiting intestinal inflammation,improving the gut barrier,and modulating gut microbiota[J]. Journal of Translational Medicine, 2023, 21(1):14.

DOI

[33]
CHEN J, YIN J, XIE H, et al. Mannan-oligosaccharides promote gut microecological recovery after antibiotic disturbance[J]. Food & Function, 2024, 15(7):3810-3823.

[34]
HU Q Y, MAN J J, LUO J, et al. Early-life supplementation with mannan-rich fraction to regulate rumen microbiota, gut health,immunity,and growth performance in dairy goat kids[J]. Journal of Dairy Science, 2024, 107(11):9322-9333.

DOI

[35]
GUO H, HE X, YU L, et al. Bifidobacterium adolescentis CCFM1285 combined with yeast β-glucan alleviates the gut microbiota and metabolic disturbances in mice with antibiotic-associated diarrhea[J]. Food & Function, 2024, 15(7):3709-3721.

[36]
CHEN Z Y, LIN S S, JIANG Y, et al. Effects of bread yeast cell wall beta-glucans on mice with loperamide-induced constipation[J]. Journal of Medicinal Food, 2019, 22(10):1009-1021.

DOI PMID

[37]
LI S, PENG H, SUN Y, et al. Yeast β-glucan attenuates dextran sulfate sodium-induced colitis:involvement of gut microbiota and short-chain fatty acids[J]. International Journal of Biological Macromolecules, 2024, 280:135846.

[38]
ABBOTT D W, MARTENS E C, GILBERT H J, et al. Coevolution of yeast mannan digestion:convergence of the civilized human diet,distal gut microbiome,and host immunity[J]. Gut Microbes, 2015, 6(5):334-339.

DOI

[39]
GEDEK. Adherence of Escherichia coli serogroup 0 157 and the Salmonella typhimurium mutant DT 104 to the surface of Saccharomyces boulardii[J]. Mycoses, 1999, 42(4):261-264.

DOI

[40]
CORRIGAN A, MCCOOEY P, TAYLOR-PICKARD J, et al. Breaking the cycle:a yeast mannan-rich fraction beneficially modulates egg quality and the antimicrobial resistome associated with layer hen caecal microbiomes under commercial conditions[J]. Microorganisms, 2024, 12(8):1562.

DOI

[41]
BAR-DAGAN H, GOVER O, COHEN N A, et al. Beta-glucans induce cellular immune training and changes in intestinal morphology in poultry[J]. Frontiers in Veterinary Science, 2022, 9:1092812.

[42]
FLORY C M, JONES M L, MILLER B F, et al. Regulatory roles of tumor necrosis factor-alpha and interleukin-1 beta in monocyte chemoattractant protein-1-mediated pulmonary granuloma formation in the rat[J]. The American Journal of Pathology, 1995, 146(2):450-462.

[43]
VUSCAN P, KISCHKEL B, HATZIOANNOU A, et al. Potent induction of trained immunity by Saccharomyces cerevisiae β-glucans[J]. Frontiers in Immunology, 2024, 15:1323333.

[44]
TORRECILLAS S, MONTERO D, IZQUIERDO M. Improved health and growth of fish fed mannan oligosaccharides:potential mode of action[J]. Fish & Shellfish Immunology, 2014, 36(2):525-544.

[45]
QUI N H, LINH N T. Effects of dietary β-glucan and rice fermented on growth performance,fatty acids,and Newcastle disease immune response in Turkey broilers[J]. Saudi Journal of Biological Sciences, 2023, 30(8):103736.

DOI

[46]
HADIUZZAMAN M, MONIRUZZAMAN M, SHAHJAHAN M, et al. β-glucan:mode of action and its uses in fish immunomodulation[J]. Frontiers in Marine Science, 2022, 9:905986.

[47]
LEI N, WANG M, ZHANG L, et al. Effects of low molecular weight yeast β-glucan on antioxidant and immunological activities in mice[J]. International Journal of Molecular Sciences, 2015, 16(9):21575-21590.

DOI PMID

[48]
HE L J, GUO J X, WANG Y B, et al. Effects of dietary yeast β-glucan supplementation on meat quality,antioxidant capacity and gut microbiota of finishing pigs[J]. Antioxidants (Basel,Switzerland), 2022, 11(7):1340.

[49]
ZHAO Y Y, WANG J Q, FU Q Z, et al. Characterization and antioxidant activity of mannans from Saccharomyces cerevisiae with different molecular weight[J]. Molecules (Basel,Switzerland), 2022, 27(14):4439.

DOI

[50]
YEHIA R S, SALEH A M, BANI ISMAIL M, et al. Isolation and characterization of anti-proliferative and anti-oxidative mannan from Saccharomyces cerevisiae[J]. Journal of King Saud University-Science, 2022, 34(2):101774.

DOI

文章导航

/