

1 材料与方法
1.1 试验设计和饲养管理
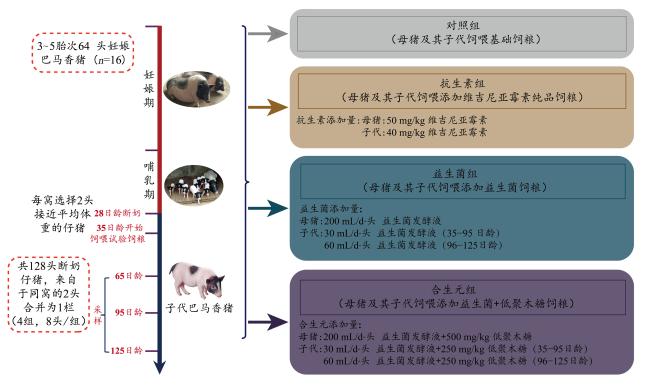
表1 母猪基础饲粮组成及营养水平(风干基础)Table 1 Composition and nutrient levels of basal diets for sows (air-dry basis) % |
| 项目 Items | 妊娠期 Pregnancy period | 哺乳期 Lactation period | |||
|---|---|---|---|---|---|
| 原料Ingredients | |||||
| 玉米Corn | 37.50 | 66.00 | |||
| 豆粕Soybean meal | 9.50 | 25.00 | |||
| 麦麸Wheat bran | 14.00 | 5.00 | |||
| 大麦Barley | 25.00 | ||||
| 大豆皮Soybean hull | 10.00 | ||||
| 妊娠期预混料Pregnant premix1) | 4.00 | ||||
| 哺乳期预混料Lactating premix2) | 4.00 | ||||
| 合计Total | 100.00 | 100.00 | |||
| 营养水平Nutrient levels3) | |||||
| 消化能Digestible energy/(MJ/kg) | 12.55 | 13.87 | |||
| 粗蛋白质Crude protein | 12.82 | 16.30 | |||
| 粗纤维Crude fiber | 4.56 | 2.87 | |||
| 标准回肠可消化赖氨酸SID Lys | 0.48 | 0.75 | |||
| 标准回肠可消化蛋氨酸+半胱氨酸SID Met+Cys | 0.43 | 0.51 | |||
| 标准回肠可消化苏氨酸SID Thr | 0.37 | 0.53 | |||
| 标准回肠可消化色氨酸SID Trp | 0.13 | 0.17 | |||
| 钙Calcium | 0.62 | 0.65 | |||
| 磷Phosphorus | 0.47 | 0.50 |
1)妊娠期预混料为每千克饲粮提供 Pregnant premix provided the following per kg of the diet:CaHPO4·2H2O 10 g,NaCl 4 g,CuSO4·5H2O 80 mg,FeSO4·H2O 360 mg,ZnSO4·H2O 240 mg,MnSO4·H2O 100 mg,MgSO4·7H2O 1 g,ICl 50 mg,Na2SeO3 36 mg,CoCl2 16 mg,NaHCO3 1.4 g,VA 10 000 IU,VD3 1 800 IU,VE 20 mg,VK3 2.4 mg,VB1 1.6 mg,VB2 6 mg,VB6 1.6 mg,VB12 0.024 mg,叶酸 folic acid 1.2 mg,烟酰胺 nicotinamide 20 mg,泛酸 pantothenic acid 12 mg,生物素 biotin 0.12 mg,甘氨酸亚铁 ferrous glycinate 100 mg,氯化胆碱 choline chloride 1 g,植酸酶 phytase 200 mg,香味剂 flavor 80 mg,石粉 limestone 12 g。 | |
2)哺乳期预混料为每千克饲粮提供 Lactating premix provided the following per kg of the diet:赖氨酸 lysine 1.5 g,CaHPO4·2H2O 10 g,NaCl 4 g,CuSO4·5H2O 80 mg,FeSO4·H2O 360 mg,ZnSO4·H2O 240 mg,MnSO4·H2O 100 mg,ICl 50 mg,Na2SeO3 36 mg,CoCl2 16 mg,NaHCO3 1.4 g,VA 10 000 IU,VD3 1 800 IU,VE 20 mg,VK3 2.4 mg,VB1 1.6 mg,VB2 6 mg,VB6 1.6 mg,VB12 0.024 mg,叶酸 folic acid 1.2 mg,烟酰胺 nicotinamide 20 mg,泛酸 pantothenic acid 12 mg,生物素 biotin 0.12 mg,甘氨酸亚铁 ferrous glycinate 100 mg,氯化胆碱 choline chloride 1 g,植酸酶 phytase 200 mg,香味剂 flavor 80 mg,石粉 limestone 12 g。 | |
3)营养水平为计算值。Nutrient levels were calculated values. |
表2 仔猪基础饲粮组成及营养水平(风干基础)Table 2 Composition and nutrient levels of basal diets for piglets (air-dry basis) % |
| 项目 Items | 35~95日龄 35 to 95 days of age | 96~125日龄 96 to 125 days of age | |||
|---|---|---|---|---|---|
| 原料Ingredients | |||||
| 玉米Corn | 54.92 | 58.00 | |||
| 豆粕Soybean meal | 22.00 | 18.35 | |||
| 麦麸Wheat bran | 10.13 | 11.35 | |||
| 米糠Rice bran | 8.95 | 8.30 | |||
| 预混料Premix1) | 4.00 | 4.00 | |||
| 合计Total | 100.00 | 100.00 | |||
| 营养水平Nutrient levels2) | |||||
| 消化能DE/(MJ/kg) | 13.50 | 13.42 | |||
| 粗蛋白质CP | 16.90 | 15.25 | |||
| 钙Ca | 0.44 | 0.44 | |||
| 总磷TP | 0.50 | 0.49 | |||
| 赖氨酸Lys | 1.40 | 1.30 | |||
| 蛋氨酸+半胱氨酸Met+Cys | 0.69 | 0.66 | |||
| 项目 Items | 35~95日龄 35 to 95 days of age | 96~125日龄 96 to 125 days of age | |||
| 苏氨酸Thr | 0.78 | 0.74 |
1)预混料为每千克饲粮提供 Premix provided the following per kilogram of diets:VA 26 000 IU,VD3 10 000 IU,VE 70 IU,VK3 10 mg,VB1 10 mg,VB2 25 mg,VB6 10 mg,VB12 0.075 mg,生物素 biotin 0.4 mg,叶酸 folic acid 5 mg,烟酰胺 nicotinamide 100 mg,泛酸 pantothenic acid 50 mg,胆碱 choline 1 600 mg,香味剂 flavoring agent 500 mg,甜味剂 sweetener 300 mg,酸化剂 acidulating agent 5 g,Cu (as CuSO4·5H2O) 230 mg,Mn (as MnSO4·H2O) 97 mg,Zn (as ZnSO4·H2O) 218 mg,Fe (as FeSO4·H2O) 165 mg,I (as Ca(IO3)2) 0.3 mg,Se (as Na2SeO3) 0.3 mg,Co (as CoSO4) 0.4 mg,葡萄糖 glucose 2.1 g,抗氧化剂 antioxidants 0.4 g,防霉剂 antimildew agent 1 g,Ca (as CaHPO4 and CaCO3) 3.42 g,P (as CaHPO4) 1.155 g。 2)粗蛋白质为实测值,参照GB/T 6432—2018测定;其他营养水平均为计算值,参照《中国饲料成分及营养价值表(2018年第29版)》计算得到。CP was a measured value, which measured according to GB/T 6432—2018; while other nutrient levels were calculated values, which calculated according to China Feed Composition and Nutritional Value Tables (29th edition, 2018). |
1.2 样品采集与处理
1.3 股二头肌营养成分测定
1.4 股二头肌肌纤维类型、肌纤维生长发育和脂质代谢相关基因表达测定
表3 引物序列Table 3 Primer sequences |
| 基因 Genes | 引物序列 Primer sequence (5'—3') | 产物大小 Product size/bp |
|---|---|---|
| β-肌动蛋白 β-actin | F:GGCACCACACCTTCTACAACGAG R:TCATCTTCTCACGGTTGGCTTTGG | 102 |
| 肌球蛋白重链Ⅰ MyHCⅠ | F:CTGTCCAAGTTCCGCAAGGT R:CTTTGTTGCGCCCTCAGGAT | 176 |
| 肌球蛋白重链Ⅱa MyHCⅡa | F:GGACCCCCTGAATGACACAG R:CGGTCTGGAAGGAAGAACCC | 149 |
| 肌球蛋白重链Ⅱb MyHCⅡb | F:AGGAGCATCAGCGCCTAATC R:TCGGGATAGCTGAGACACCA | 119 |
| 肌球蛋白重链Ⅱx MyHCⅡx | F:TGAGGAAGACCGCAAGAACA R:GGTCACTTTTGAGCATTTGGATG | 272 |
| 生肌分化因子 MyoD | F:CTATGATGACCCGTGTTTCG R:AGTGTTCCTCGGGCTTTAGG | 101 |
| 生肌调节因子 MyoG | F:AAACTACCTGCCCGTCCACCTC R:GGTCCCCAGCCCCTTATCTTCC | 112 |
| 生肌因子5 Myf5 | F:GGATCAGCAACTCCGAGCAACC R:GCACATGGTAGATGAGCCTGGAAC | 126 |
| 生肌因子6 Myf6 | F:GCTCGTGATGACTGCCAAGGAAG R:CGATGGAAGAAAGGCACCGAAGG | 80 |
| 胰岛素样生长因子-1 IGF-1 | F:GACGCTCTTCAGTTCGTGTG R:CTCCAGCCTCCTCAGATCAC | 141 |
| 肌肉生长抑制素 MSTN | F:GCACCAAGCAAACCCCAGAGG R:AGCACCCACAGCGATCTACTACC | 143 |
| 乙酰辅酶A羧化酶 ACC | F:CAAAGAGGTTCCAGGCACAGTCC R:CGTCAGCATGTCAGAAGGCAGAG | 146 |
| 脂肪甘油三酯脂酶 ATGL | F:TCACCAACACCAGCATCCA R:GCACATCTCTCGAAGCACCA | 95 |
| 肉碱棕榈酰转移酶-1 CPT-1 | F:TCAAAAACGGCAAGATGGGC R:TGGAATGTTGGGGTTGGTGT | 155 |
| 脂肪酸合成酶 FASN | F:TACCTTGTGGATCACTGCATAGA R:GGCGTCTCCTCCAAGTTCTG | 113 |
| 脂肪酸结合蛋白4 FABP4 | F:CAGGAAAGTCAAGAGCACCA R:TCGGGACAATACATCCAACA | 227 |
| 激素敏感脂酶 HSL | F:GCGTGCTCTCCAAGTGTGTCAG R:CCAGGCGGAGGTCTCGGAAG | 135 |
| 脂蛋白脂酶 LPL | F:ACACAGTTGAGGACACTTGCCATC R:TCCTGTCACCGTCCAGCCATG | 116 |
| 过氧化物酶体增殖物激活受体α PPARα | F:GGCACTGAACATCGAATGTAGAAT R:TGCAACCTTCACAGGCATGA | 80 |
| 过氧化物酶体增殖物激活受体γ PPARγ | F:TCCATGCTGTCATGGGTGAA R:ACCATGGTCACCTCTTGTGA | 103 |
| 硬脂酰辅酶A去饱和酶 SCD | F:ATTGGGAGCTGTGGGTGAG R:AAGTTGATGTGCCAGCGGTA | 90 |
| 胆固醇调节原件结合蛋白-1 SREBP-1 | F:GCGACGGTGCCTCTGGTAGT R:CGCAAGACGGCGGATTTA | 218 |
1.5 数据处理与分析
2 结果
2.1 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌粗蛋白质和水解氨基酸含量的影响
表4 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌CP和水解氨基酸含量的影响Table 4 Effects of probiotics and synbiotics addition in sow-offspring’s diet on contents of CP and hydrolyzed amino acids in biceps femoris muscle of offspring Bama mini-pigs % |
| 项目 Items | 日龄 Days of age | 对照组 Control group | 抗生素组 Antibiotics group | 益生菌组 Probiotics group | 合生元组 Synbiotics group | SEM | P值 P-value | ||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 粗蛋白质 CP | 65 | 22.20 | 23.09 | 22.87 | 23.10 | 0.277 | 0.097 | ||||||||
| 95 | 22.56 | 22.63 | 22.23 | 22.23 | 0.156 | 0.165 | |||||||||
| 125 | 22.43 | 22.74 | 22.33 | 21.62 | 0.353 | 0.203 | |||||||||
| 丙氨酸 Ala | 65 | 1.03b | 1.15a | 1.16a | 1.17a | 0.024 | 0.001 | ||||||||
| 95 | 1.21 | 1.19 | 1.21 | 1.19 | 0.026 | 0.903 | |||||||||
| 125 | 1.12 | 1.14 | 1.11 | 1.23 | 0.045 | 0.283 | |||||||||
| 天冬氨酸 Asp | 65 | 1.67b | 1.97a | 1.82a | 1.97a | 0.047 | <0.001 | ||||||||
| 95 | 1.81a | 1.70ab | 1.72ab | 1.67b | 0.036 | 0.049 | |||||||||
| 125 | 1.70 | 1.76 | 1.70 | 1.90 | 0.074 | 0.202 | |||||||||
| 谷氨酸 Glu | 65 | 2.48b | 2.85a | 2.68a | 2.82a | 0.050 | <0.001 | ||||||||
| 95 | 2.63 | 2.81 | 2.79 | 2.68 | 0.057 | 0.091 | |||||||||
| 125 | 2.72 | 2.85 | 2.80 | 3.05 | 0.126 | 0.283 | |||||||||
| 甘氨酸 Gly | 65 | 0.83b | 1.01a | 0.96a | 1.04a | 0.028 | <0.001 | ||||||||
| 95 | 0.89 | 0.88 | 0.89 | 0.85 | 0.016 | 0.301 | |||||||||
| 125 | 0.85 | 0.88 | 0.84 | 0.95 | 0.033 | 0.119 | |||||||||
| 脯氨酸 Pro | 65 | 0.98a | 0.66b | 0.77b | 0.72b | 0.042 | <0.001 | ||||||||
| 95 | 0.77b | 0.95a | 1.01a | 1.04a | 0.040 | <0.001 | |||||||||
| 125 | 0.96 | 0.94 | 1.06 | 0.94 | 0.083 | 0.682 | |||||||||
| 丝氨酸 Ser | 65 | 0.56b | 0.72a | 0.72a | 0.71a | 0.019 | <0.001 | ||||||||
| 95 | 0.71b | 0.78a | 0.72b | 0.71b | 0.017 | 0.023 | |||||||||
| 125 | 0.66 | 0.73 | 0.72 | 0.76 | 0.035 | 0.262 | |||||||||
| 酪氨酸 Tyr | 65 | 0.69 | 0.66 | 0.67 | 0.68 | 0.016 | 0.427 | ||||||||
| 95 | 0.60 | 0.56 | 0.65 | 0.64 | 0.033 | 0.271 | |||||||||
| 125 | 0.72 | 0.66 | 0.68 | 0.70 | 0.041 | 0.744 | |||||||||
| 精氨酸 Arg | 65 | 1.27 | 1.28 | 1.23 | 1.31 | 0.026 | 0.178 | ||||||||
| 95 | 1.23 | 1.21 | 1.28 | 1.25 | 0.021 | 0.184 | |||||||||
| 125 | 1.30 | 1.29 | 1.26 | 1.38 | 0.061 | 0.558 | |||||||||
| 组氨酸 His | 65 | 0.79 | 0.83 | 0.87 | 0.80 | 0.025 | 0.146 | ||||||||
| 95 | 0.86b | 1.00a | 0.92ab | 0.93ab | 0.025 | 0.003 | |||||||||
| 125 | 0.93 | 0.92 | 0.96 | 0.88 | 0.057 | 0.822 | |||||||||
| 异亮氨酸 Ile | 65 | 0.86b | 0.94a | 0.88ab | 0.95a | 0.020 | 0.006 | ||||||||
| 95 | 0.90 | 0.89 | 0.93 | 0.91 | 0.018 | 0.400 | |||||||||
| 125 | 0.94 | 0.94 | 0.92 | 1.03 | 0.042 | 0.304 | |||||||||
| 亮氨酸 Leu | 65 | 1.68 | 1.73 | 1.64 | 1.72 | 0.034 | 0.233 | ||||||||
| 95 | 1.74 | 1.66 | 1.66 | 1.64 | 0.032 | 0.110 | |||||||||
| 125 | 1.62 | 1.63 | 1.57 | 1.71 | 0.064 | 0.471 | |||||||||
| 赖氨酸 Lys | 65 | 1.70c | 1.99a | 1.84b | 1.96a | 0.039 | <0.001 | ||||||||
| 95 | 1.72 | 1.66 | 1.64 | 1.63 | 0.037 | 0.365 | |||||||||
| 125 | 1.78 | 1.80 | 1.76 | 1.96 | 0.089 | 0.419 | |||||||||
| 蛋氨酸 Met | 65 | 0.51 | 0.51 | 0.52 | 0.54 | 0.013 | 0.399 | ||||||||
| 95 | 0.54 | 0.54 | 0.54 | 0.53 | 0.014 | 0.955 | |||||||||
| 125 | 0.58 | 0.57 | 0.55 | 0.60 | 0.027 | 0.686 | |||||||||
| 苯丙氨酸 Phe | 65 | 0.83 | 0.79 | 0.80 | 0.80 | 0.017 | 0.375 | ||||||||
| 95 | 0.80 | 0.88 | 0.83 | 0.85 | 0.023 | 0.098 | |||||||||
| 125 | 0.87 | 0.86 | 0.87 | 0.90 | 0.045 | 0.938 | |||||||||
| 苏氨酸 Thr | 65 | 0.98a | 0.91b | 0.89b | 0.91b | 0.018 | 0.011 | ||||||||
| 95 | 0.90 | 0.92 | 0.96 | 0.94 | 0.019 | 0.127 | |||||||||
| 125 | 0.90 | 0.90 | 0.90 | 0.96 | 0.045 | 0.708 | |||||||||
| 缬氨酸 Val | 65 | 0.92b | 1.01a | 0.95b | 1.01a | 0.017 | <0.001 | ||||||||
| 95 | 0.96 | 0.99 | 0.95 | 0.94 | 0.021 | 0.308 | |||||||||
| 125 | 1.03 | 1.02 | 1.00 | 1.09 | 0.045 | 0.578 | |||||||||
| 必需氨基酸 EAA | 65 | 9.53 | 10.01 | 9.64 | 10.00 | 0.175 | 0.138 | ||||||||
| 95 | 9.63 | 9.77 | 9.71 | 9.61 | 0.166 | 0.900 | |||||||||
| 125 | 9.97 | 9.93 | 9.80 | 10.52 | 0.444 | 0.689 | |||||||||
| 非必需氨基酸 NEAA | 65 | 8.24b | 9.02a | 8.89a | 9.12a | 0.169 | 0.004 | ||||||||
| 95 | 8.57 | 8.87 | 8.99 | 8.77 | 0.156 | 0.279 | |||||||||
| 125 | 8.74 | 8.96 | 8.92 | 9.52 | 0.383 | 0.498 | |||||||||
| 鲜味氨基酸 FAA | 65 | 7.27b | 8.26a | 7.92a | 8.31a | 0.153 | <0.001 | ||||||||
| 95 | 7.75 | 7.79 | 7.89 | 7.64 | 0.124 | 0.582 | |||||||||
| 125 | 7.69 | 7.93 | 7.71 | 8.51 | 0.329 | 0.274 | |||||||||
| 总氨基酸 TAA | 65 | 17.75b | 19.03a | 18.47a | 19.12a | 0.330 | 0.025 | ||||||||
| 95 | 18.20 | 18.64 | 18.70 | 18.39 | 0.303 | 0.611 | |||||||||
| 125 | 18.71 | 18.89 | 18.72 | 20.04 | 0.825 | 0.620 |
同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。 | |
In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below. |
2.2 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌IMF和中长链脂肪酸含量的影响
表5 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌IMF和中长链脂肪酸含量的影响Table 5 Effects of probiotics and synbiotics addition in sow-offspring’s diet on contents of IMF and medium- and long-chain fatty acids in biceps femoris muscle of offspring Bama mini-pigs % |
| 项目 Items | 日龄 Days of age | 对照组 Control group | 抗生素组 Antibiotics group | 益生菌组 Probiotics group | 合生元组 Synbiotics group | SEM | P值 P-value | ||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 肌内脂肪 IMF | 65 | 1.04b | 2.02a | 2.01a | 2.18a | 0.117 | <0.001 | ||||||||
| 95 | 0.82b | 0.74b | 1.05ab | 1.26a | 0.124 | 0.027 | |||||||||
| 125 | 1.86 | 2.06 | 2.69 | 2.52 | 0.279 | 0.130 | |||||||||
| 癸酸 C10∶0 | 65 | - | - | - | - | ||||||||||
| 95 | 0.021b | 0.019c | 0.025a | 0.023ab | 0.001 | <0.001 | |||||||||
| 125 | - | - | - | - | |||||||||||
| 十二碳酸 C12∶0 | 65 | 0.052a | 0.041b | 0.038b | 0.034b | 0.002 | <0.001 | ||||||||
| 95 | 0.038a | 0.025c | 0.026bc | 0.030b | 0.001 | <0.001 | |||||||||
| 125 | - | - | - | - | |||||||||||
| 十四碳酸 C14∶0 | 65 | 0.357b | 0.377ab | 0.391ab | 0.410a | 0.010 | 0.008 | ||||||||
| 95 | 0.473 | 0.431 | 0.470 | 0.479 | 0.017 | 0.197 | |||||||||
| 125 | 0.408 | 0.359 | 0.397 | 0.396 | 0.016 | 0.216 | |||||||||
| 十五碳酸 C15∶0 | 65 | 0.024 | 0.024 | 0.026 | 0.024 | 0.001 | 0.660 | ||||||||
| 95 | 0.021 | 0.022 | 0.019 | 0.018 | 0.001 | 0.184 | |||||||||
| 125 | - | - | - | - | |||||||||||
| 十六碳酸 C16∶0 | 65 | 6.788b | 6.730b | 6.932b | 7.259a | 0.091 | 0.001 | ||||||||
| 95 | 7.626 | 7.381 | 7.663 | 7.656 | 0.126 | 0.344 | |||||||||
| 125 | 7.381 | 7.007 | 7.309 | 7.208 | 0.147 | 0.346 | |||||||||
| 十六碳一烯酸 C16∶1 | 65 | 1.058b | 1.246a | 1.293a | 1.203a | 0.040 | 0.002 | ||||||||
| 95 | 0.683 | 0.676 | 0.726 | 0.719 | 0.022 | 0.303 | |||||||||
| 125 | 0.858 | 0.870 | 0.897 | 0.826 | 0.046 | 0.751 | |||||||||
| 十七碳酸 C17∶0 | 65 | 0.098 | 0.093 | 0.107 | 0.106 | 0.006 | 0.299 | ||||||||
| 95 | 0.080 | 0.091 | 0.085 | 0.087 | 0.004 | 0.255 | |||||||||
| 125 | 0.075 | 0.087 | 0.065 | 0.076 | 0.006 | 0.103 | |||||||||
| 十八碳酸 C18∶0 | 65 | 3.660a | 3.386b | 3.657a | 3.720a | 0.061 | 0.003 | ||||||||
| 95 | 4.682 | 4.566 | 4.594 | 4.550 | 0.081 | 0.664 | |||||||||
| 125 | 4.219 | 4.203 | 3.910 | 4.024 | 0.108 | 0.153 | |||||||||
| 反式油酸 C18∶1n9t | 65 | 0.037 | 0.037 | 0.041 | 0.037 | 0.002 | 0.358 | ||||||||
| 95 | 0.030 | 0.031 | 0.034 | 0.029 | 0.002 | 0.278 | |||||||||
| 125 | 0.039 | 0.037 | 0.037 | 0.035 | 0.002 | 0.324 | |||||||||
| 油酸 C18∶1n9c | 65 | 7.921b | 8.587a | 7.950b | 8.817a | 0.157 | <0.001 | ||||||||
| 95 | 8.304a | 7.755b | 8.523a | 8.165ab | 0.147 | 0.007 | |||||||||
| 125 | 9.583b | 9.664b | 11.051a | 9.796b | 0.250 | 0.001 | |||||||||
| 亚油酸 C18∶2n6c | 65 | 4.813ab | 5.197a | 4.401b | 4.361b | 0.136 | <0.001 | ||||||||
| 95 | 2.896b | 3.273a | 2.823b | 2.372c | 0.101 | <0.001 | |||||||||
| 125 | 3.198a | 2.555b | 2.259b | 2.600b | 0.134 | <0.001 | |||||||||
| α-亚麻酸 C18∶3n3 | 65 | 0.150b | 0.172a | 0.155b | 0.148b | 0.004 | <0.001 | ||||||||
| 95 | 0.116b | 0.128a | 0.112b | 0.110b | 0.002 | <0.001 | |||||||||
| 125 | - | - | - | - | |||||||||||
| 亚油酸 C18∶3n6 | 65 | 0.030 | 0.028 | 0.028 | 0.027 | 0.001 | 0.664 | ||||||||
| 95 | - | - | - | - | |||||||||||
| 125 | - | - | - | - | |||||||||||
| 二十碳酸 C20∶0 | 65 | 0.045ab | 0.042b | 0.043b | 0.049a | 0.001 | 0.016 | ||||||||
| 95 | 0.068 | 0.067 | 0.064 | 0.068 | 0.002 | 0.685 | |||||||||
| 125 | 0.057ab | 0.065a | 0.052b | 0.057ab | 0.003 | 0.031 | |||||||||
| 二十碳一烯酸 C20∶1 | 65 | 0.186 | 0.199 | 0.192 | 0.205 | 0.011 | 0.649 | ||||||||
| 95 | 0.290a | 0.225b | 0.243b | 0.259b | 0.010 | 0.001 | |||||||||
| 125 | 0.102a | 0.094ab | 0.080b | 0.088ab | 0.004 | 0.004 | |||||||||
| 二十碳二烯酸 C20∶2 | 65 | 0.149 | 0.163 | 0.147 | 0.151 | 0.005 | 0.104 | ||||||||
| 95 | 0.144 | 0.139 | 0.120 | 0.126 | 0.007 | 0.071 | |||||||||
| 125 | 0.099ab | 0.102a | 0.083b | 0.095ab | 0.005 | 0.045 | |||||||||
| 花生三烯酸 C20∶3n6 | 65 | 0.134ab | 0.141a | 0.122b | 0.120b | 0.006 | 0.040 | ||||||||
| 95 | 0.071b | 0.093a | 0.067b | 0.060b | 0.006 | 0.002 | |||||||||
| 125 | 0.109a | 0.081b | 0.084b | 0.084b | 0.006 | 0.007 | |||||||||
| 花生四烯酸 C20∶4n6 | 65 | 1.248 | 1.355 | 1.100 | 1.081 | 0.091 | 0.134 | ||||||||
| 95 | 0.489b | 0.752a | 0.436b | 0.410b | 0.060 | 0.001 | |||||||||
| 125 | 0.980a | 0.715b | 0.629b | 0.727b | 0.072 | 0.008 | |||||||||
| 二十二碳六烯酸甲酯 C22∶6n3 | 65 | 0.066a | 0.057a | 0.043b | 0.039b | 0.005 | 0.002 | ||||||||
| 95 | - | - | - | - | |||||||||||
| 125 | - | - | - | - | |||||||||||
| 二十四碳酸 C24∶0 | 65 | 0.101a | 0.077b | 0.062b | 0.065b | 0.006 | <0.001 | ||||||||
| 95 | - | - | - | - | |||||||||||
| 125 | 0.080 | 0.068 | 0.054 | 0.071 | 0.007 | 0.103 | |||||||||
| 饱和脂肪酸 SFA | 65 | 11.150a | 10.712b | 11.411a | 11.549a | 0.128 | <0.001 | ||||||||
| 95 | 12.975 | 12.632 | 12.993 | 13.110 | 0.173 | 0.261 | |||||||||
| 125 | 11.942 | 12.284 | 12.050 | 12.023 | 0.350 | 0.918 | |||||||||
| 不饱和脂肪酸 UFA | 65 | 15.732 | 16.483 | 16.191 | 16.434 | 0.215 | 0.075 | ||||||||
| 95 | 13.390a | 13.344ab | 12.819b | 12.850b | 0.173 | 0.039 | |||||||||
| 125 | 14.576 | 14.494 | 14.907 | 14.097 | 0.248 | 0.184 | |||||||||
| 单不饱和脂肪酸 MUFA | 65 | 9.097b | 9.738ab | 9.822ab | 10.624a | 0.298 | 0.012 | ||||||||
| 95 | 9.281ab | 8.745b | 9.685a | 9.197ab | 0.174 | 0.007 | |||||||||
| 125 | 10.580 | 10.506 | 11.569 | 10.646 | 0.457 | 0.344 | |||||||||
| 多不饱和脂肪酸 PUFA | 65 | 6.663ab | 6.926a | 6.055ab | 5.928b | 0.258 | 0.030 | ||||||||
| 95 | 3.870b | 4.617a | 3.543b | 3.285b | 0.203 | 0.001 | |||||||||
| 125 | 4.575a | 3.452b | 3.021b | 3.655b | 0.241 | 0.001 | |||||||||
| n-3多不饱和脂肪酸 n-3PUFA | 65 | 0.225b | 0.267a | 0.220b | 0.216b | 0.008 | 0.001 | ||||||||
| 95 | 0.116b | 0.128a | 0.110bc | 0.108c | 0.002 | <0.001 | |||||||||
| 125 | - | - | - | - | |||||||||||
| n-6多不饱和脂肪酸 n-6PUFA | 65 | 6.277ab | 6.498a | 5.697b | 5.562b | 0.252 | 0.039 | ||||||||
| 95 | 3.600b | 4.356a | 3.304b | 3.051b | 0.197 | 0.001 | |||||||||
| 125 | 4.472a | 3.352b | 3.250b | 3.555b | 0.281 | 0.012 | |||||||||
| 多不饱和脂肪酸/ 饱和脂肪酸 PUFA/SFA | 65 | 0.597ab | 0.636a | 0.566ab | 0.521b | 0.026 | 0.026 | ||||||||
| 95 | 0.292b | 0.335a | 0.272b | 0.226c | 0.013 | <0.001 | |||||||||
| 125 | 0.353a | 0.281ab | 0.248b | 0.304ab | 0.024 | 0.023 | |||||||||
| n-3多不饱和脂肪酸/ n-6多不饱和脂肪酸 n-3PUFA/n-6PUFA | 65 | 0.036b | 0.041a | 0.039ab | 0.042a | 0.001 | 0.006 | ||||||||
| 95 | 0.034ab | 0.030b | 0.036a | 0.038a | 0.002 | 0.009 | |||||||||
| 125 | - | - | - | - |
-表示未检测出。 | |
- indicates not detected. |
2.3 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌肌纤维类型、肌肉生长发育和脂质代谢相关基因表达的影响
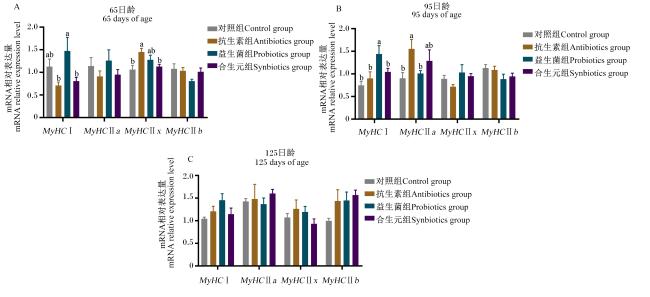
图1 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌肌纤维类型相关基因表达的影响MyHCⅠ:肌球蛋白重链Ⅰ myosin heavy chain Ⅰ;MyHCⅡa:肌球蛋白重链Ⅱa myosin heavy chain Ⅱa;MyHCⅡx:肌球蛋白重链Ⅱx myosin heavy chain Ⅱx;MyHCⅡb:肌球蛋白重链Ⅱb myosin heavy chain Ⅱb。 数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below. Fig.1 Effects of probiotics and synbiotics addition in sow-offspring’s diet on expression of muscle fiber type related genes in biceps femoris muscle of offspring Bama mini-pigs |
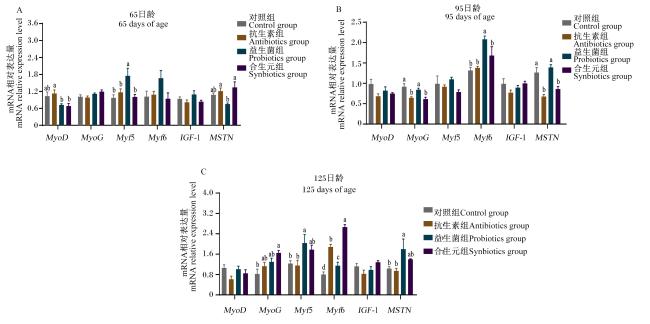
图2 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌肌肉生长发育相关基因表达的影响MyoD:生肌分化因子 myogenic differentiation factor;MyoG:生肌调节因子 myogenin;Myf5:生肌因子5 myogenic factor 5;Myf6:生肌因子6 myogenic factor 6;IGF-1:胰岛素样生长因子-1 insulin-like growth factor-1;MSTN:肌肉生长抑制素 myostatin。 Fig.2 Effects of probiotics and synbiotics addition in sow-offspring’s diet on expression of muscle growth and development related genes in biceps femoris muscle of offspring Bama mini-pigs |
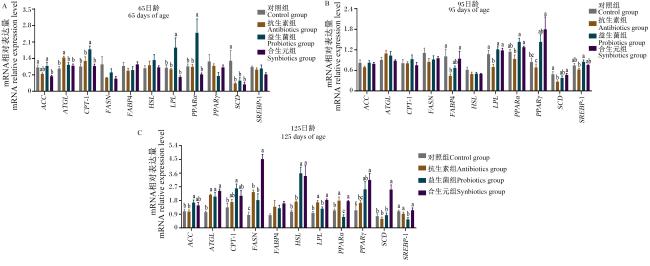
图3 母-子猪饲粮中添加益生菌和合生元对子代巴马香猪股二头肌脂质代谢相关基因表达的影响ACC:乙酰辅酶A羧化酶 acetyl coenzyme A carboxylase;ATGL:脂肪甘油三酯脂酶 fatty triglyceride lipase;CPT-1:肉碱棕榈酰转移酶-1 carnitine palmityl transferase-1;FASN:脂肪酸合成酶 fatty acid synthase;FABP4:脂肪酸结合蛋白4 fatty acid binding protein 4;HSL:激素敏感脂酶 hormone sensitive lipase;LPL:脂蛋白脂酶 lipoprotein lipase;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator-activated receptor α;PPARγ:过氧化物酶体增殖物激活受体γ peroxisome proliferator-activated receptor γ;SCD:硬脂酰辅酶A去饱和酶 stearyl coenzyme A desaturase;SREBP-1:胆固醇调节原件结合蛋白-1 sterol-regulatory element binding protein-1。 Fig.3 Effects of probiotics and synbiotics addition in sow-offspring’s diet on expression of lipid metabolism t related genes in biceps femoris muscle of offspring Bama mini-pigs |
 京公网安备 11010802041926号


