研究论文

复合功能生物活性剂对高温应激下母猪繁殖性能、生理代谢和免疫功能的影响

  • 陈亚婷 , 1 ,
  • 戢怡文 1 ,
  • 顾方 1 ,
  • 温晓鹿 1 ,
  • 侯磊 2 ,
  • 高开国 1 ,
  • 王丽 1 ,
  • 吴绮雯 , 1, * ,
  • 肖昊 1
展开
  • 1 广东省农业科学院动物科学研究所,猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室,广州 510640
  • 2 广西农垦永新畜牧集团有限公司,南宁 530300
* 吴绮雯,实验师,E-mail:

陈亚婷(2000—),女,云南昆明人,硕士研究生,从事动物营养研究。E-mail:

收稿日期: 2025-06-29

  网络出版日期: 2026-01-13

基金资助

国家生猪产业技术体系(CARS-35)

广东省乡村振兴战略专项资金(2025TS-3-1)

重庆自然科学基金面上项目(CSTB2023NSCQ-MSX0786)

Effects of Composite Functional Bioactive Agent on Reproductive Performance, Physiological Metabolism and Immune Function of Sows under High-Temperature Stress

  • CHEN Yating , 1 ,
  • JI Yiwen 1 ,
  • GU Fang 1 ,
  • WEN Xiaolu 1 ,
  • HOU Lei 2 ,
  • GAO Kaiguo 1 ,
  • WANG Li 1 ,
  • WU Qiwen , 1, * ,
  • XIAO Hao 1
Expand
  • 1 Guangdong Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of South China Animal Nutrition and Feed, Ministry of Agriculture and Rural Affairs, National Key Laboratory of Pig and Poultry Breeding, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 Guangxi Nongken Yongxin Animal Husbandry Group Co., Ltd., Nanning 530300, China
* engineer, E-mail:

Received date: 2025-06-29

  Online published: 2026-01-13

摘要

本试验旨在探究妊娠后期及泌乳期饲粮中添加复合功能生物活性剂对高温应激下母猪繁殖性能、生理代谢和免疫功能的影响 。选取360头遗传背景一致、背膘厚[(17.54±0.18) mm]和胎次[(4.47±0.18)胎]相近的健康二元(长白×大白)妊娠母猪,随机分为2组,每组180个重复,每个重复1头猪。对照组饲喂基础饲粮,试验组饲喂在基础饲粮中添加复合功能生物活性剂(300 mg/kg白藜芦醇+200 mg/kg黄芩素+10 000 mg/kg牛磺酸,通过预混料配伍添加)的试验饲粮。试验期从母猪妊娠第90天开始至分娩后第21天断奶结束。结果表明:与对照组相比,1)饲粮中添加复合功能生物活性剂极显著提高了产仔数、健仔数和初生窝重(P<0.01),极显著降低了泌乳期母猪平均日采食量(P<0.01),显著降低了母猪断奶背膘厚(P<0.05),有提高仔猪平均日增重(P=0.098)和断奶窝重(P=0.091)的趋势;2)饲粮中添加复合功能生物活性剂极显著提高了断奶时母猪血清牛磺酸含量(P<0.01),显著降低了血清甘氨酸含量(P<0.05),有提高血清缬氨酸含量的趋势(P=0.083);3)饲粮中添加复合功能生物活性剂显著提高了断奶时母猪血清总抗氧化能力(P<0.05),有提高血清总蛋白含量的趋势(P=0.062);4)饲粮中添加复合功能生物活性剂有降低初乳免疫球蛋白M含量的趋势(P=0.089),有提高常乳分泌型免疫球蛋白A(sIgA)含量的趋势(P=0.064);5)饲粮中添加复合功能生物活性剂影响了血清和乳汁代谢物组成,其中,常乳中差异代谢物3-甲基-2-氧代戊酸显著上调(P<0.05),该代谢物富集于缬氨酸、亮氨酸和异亮氨酸生物合成与降解通路,且与常乳sIgA含量呈极显著正相关(P<0.01)。综上所述,高温应激下在母猪妊娠后期及泌乳期饲粮中添加复合功能生物活性剂,可改善母猪繁殖性能,在一定程度上增强其机体抗氧化能力,同时提升常乳中sIgA含量。

本文引用格式

陈亚婷 , 戢怡文 , 顾方 , 温晓鹿 , 侯磊 , 高开国 , 王丽 , 吴绮雯 , 肖昊 . 复合功能生物活性剂对高温应激下母猪繁殖性能、生理代谢和免疫功能的影响[J]. 动物营养学报, 2026 , 38(1) : 236 -251 . DOI: 10.12418/CJAN2026.019

Abstract

This experiment aimed to investigate the effects of dietary supplementation with composite functional bioactive agent on reproductive performance, physiological metabolism and immune function of sows under high-temperature stress during late gestation and lactation. A total of 360 healthy crossbred (Landrace×Yorkshire) pregnant sows with consistent genetic background, similar backfat thickness [(17.54±0.18) mm] and parity [(4.47±0.18) parities] were randomly divided into 2 groups with 180 replicates per group and 1 sow per replicate. The control group was fed a basal diet, while the experimental group was fed the basal diet supplemented with composite functional bioactive agent (300 mg/kg resveratrol+200 mg/kg baicalein+10 000 mg/kg taurine, added via premix formulation). The experiment lasted from day 90 of gestation to day 21 of lactation (weaning). The results showed that compared with the control group: 1) dietary supplementation with composite functional bioactive agent extremely significantly increased the litter size, number of healthy piglets and litter weight at birth (P<0.01), extremely significantly decreased the average daily feed intake of sows during lactation (P<0.01), significantly reduced the weaning backfat thickness of sows (P<0.05), and tended to increase the average daily gain of piglets (P=0.098) and weaning litter weight (P=0.091); 2) dietary supplementation with composite functional bioactive agent extremely significantly increased the serum taurine content of sows at weaning (P<0.01), significantly decreased the serum glycine content (P<0.05), and tended to increase the serum valine content (P=0.083); 3) dietary supplementation with composite functional bioactive agent significantly improved the serum total antioxidant capacity of sows at weaning (P<0.05), and tended to increase the serum total protein content (P=0.062); 4) dietary supplementation with composite functional bioactive agent tended to decrease the immunoglobulin M content in colostrum (P=0.089) and tended to increase the secretory immunoglobulin A (sIgA) content in milk (P=0.064); 5) dietary supplementation with composite functional bioactive agent affected the metabolite composition of serum and milk. Among them, the differential metabolite 3-methyl-2-oxovaleric acid in milk was significantly up-regulated (P<0.05), which was enriched in the valine, leucine, and isoleucine biosynthesis and degradation pathway, and showed an extremely significant positive correlation with the sIgA content in milk (P<0.01). In conclusion, dietary supplementation with composite functional bioactive agent during late gestation and lactation can improve the reproductive performance of sows under high-temperature stress, enhance the antioxidant capacity to a certain extent, and increase the sIgA content in milk.

繁殖活动使母猪长期处于氧化应激状态。研究表明,若母猪在分娩后无法有效缓解氧化应激并从中恢复,会导致患乳腺炎的风险增加[1],而夏季高温会进一步加重这一应激反应,使母猪泌乳性能下降、仔猪存活率降低[2]。高温环境下,妊娠期母猪应激加剧,采食量减少,分娩前易陷入能量负平衡,进而引起新生仔猪死亡率升高、产仔数和初生重下降,同时分娩过程中的炎症发生率上升,发情期延长,断奶至发情间隔增加,以及产奶量减少[3]。Liu等[4]研究发现,在围产期至断奶(分娩后第26天)期间的母猪饲粮中添加1%瓜氨酸,可降低高温环境下泌乳母猪的呼吸速率及断奶前仔猪死亡率。Papatsiros等[5]研究发现,夏季热应激条件下,在初产母猪分娩前后1周饲粮中添加酚类植物性饲料添加剂,能减轻热应激引起的氧化损伤,并改善母猪的生产性能。因此,对妊娠和泌乳阶段母猪进行营养干预,是改善母猪抗氧化能力及繁殖性能的重要技术手段。
近年研究发现,牛磺酸、白藜芦醇、黄芩素等物质可从不同方面缓解母猪氧化应激,进而提高其繁殖性能。例如,母猪饲粮中添加1%牛磺酸可提高后代抗氧化能力和生长性能[6];体外试验证实,牛磺酸可通过刺激核因子E2相关因子2(Nrf2)-丝裂原活化蛋白激酶(MAPK)信号通路减轻猪乳腺上皮细胞氧化应激[7]。高温环境下,母猪饲粮中添加白藜芦醇可提高哺乳仔猪的生长性能、抗氧化能力及肠道健康[8];同时体外试验发现,白藜芦醇可能通过调控线粒体自噬及母体肠道微生物群,促进乳腺细胞增殖并增强其抗氧化能力[9]。刘燕等[10]研究发现,饲粮中添加黄芩提取物可提高母猪血液中免疫球蛋白G(IgG)、免疫球蛋白M(IgM)含量和仔猪血液中的免疫球蛋白A(IgA)、IgM、IgG含量。基于上述背景,本试验旨在探究妊娠后期及泌乳期饲粮中添加复合功能生物活性剂(白藜芦醇+黄芩素+牛磺酸)对高温应激下母猪繁殖性能、生理代谢和免疫功能的影响,为缓解母猪高温应激及提升其繁殖性能提供参考依据。

1 材料与方法

1.1 伦理声明

本研究所有动物试验程序均经广东省农业科学院动物科学研究所实验动物福利伦理委员会审查批准,批准号为GDIAS2023116。

1.2 试验材料

试验所用白藜芦醇(纯度99%)、黄芩素(纯度40%)和牛磺酸(纯度99.5%)均为市购产品。

1.3 试验设计与饲粮

试验于广西农垦永新畜牧集团有限公司良圻原种猪场开展。试验期间,栏舍平均温度为(25.36±1.38) ℃,相对湿度为73%~77%,温湿度指数(THI)为74~81。选取360头遗传背景一致、背膘厚[(17.54±0.18) mm]和胎次[(4.47±0.18)胎]相近的健康二元(长白×大白)妊娠母猪,随机分为2组,每组180个重复,每个重复1头猪。对照组饲喂基础饲粮,试验组饲喂在基础饲粮中添加复合功能生物活性剂(300 mg/kg白藜芦醇+200 mg/kg黄芩素+10 000 mg/kg牛磺酸,通过预混料配伍添加)的试验饲粮。试验期从母猪妊娠第90天开始至分娩后第21天断奶结束。
基础饲粮的营养水平均满足或超过NRC(2012)推荐的营养需要,其组成及营养水平见表1。妊娠第90天至分娩期间饲喂妊娠期饲粮,分娩至断奶期间饲喂泌乳期饲粮。饲粮中总能参照ISO 9831:1998的方法使用氧弹式热量计(6400,Parr Instrument公司,美国)测定,粗蛋白质含量参照GB/T 6432—2018的方法测定,粗脂肪含量参照GB/T 6433—2006的方法测定,钙含量参照GB/T 6436—2018的方法测定,总磷含量参照GB/T 6437—2018的方法测定;净能和标准回肠可消化氨基酸含量参照NRC(2012)计算得出。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
含量Content
妊娠期
Gestation
period
泌乳期
Lactation
period
原料Ingredients
玉米Corn 48.48 53.80
豆粕Soybean meal (43%) 14.13 10.56
甜菜粕Sugar beet pulp 5.00
发酵棕榈粕
Fermented palm kernel expeller
10.80
小麦麸Wheat bran 5.00 4.37
发酵豆粕
Fermented soybean meal
5.00
膨化大豆Extruded soybean 5.00
大豆皮Soybean hulls 5.00
面粉Flour 5.00 10.00
脂肪粉Fat powder 1.00 2.00
氯化钠NaCl 0.40 0.40
石粉Limestone 0.80 1.11
磷酸氢钙CaHPO4 1.75 1.62
菌体蛋白Mycoprotein 2.50
红糖Brown sugar 1.25
氯化胆碱
Choline chloride (60%)
0.13 0.15
L-赖氨酸盐酸盐L-Lys·HCl 0.16 0.45
DL-蛋氨酸DL-Met 0.07 0.18
L-苏氨酸L-Thr 0.11 0.20
L-色氨酸L-Trp 0.02 0.07
L-缬氨酸L-Val 0.26
预混料Premix1) 2.15 1.08
合计Total 100.00 100.00
营养水平Nutrient levels2)
总能GE/(MJ/kg) 15.82 16.25
净能NE/(MJ/kg) 9.33 10.67
粗蛋白质CP 14.62 16.63
粗脂肪EE 9.55 12.44
标准回肠可消化赖氨酸SID Lys 0.53 0.87
标准回肠可消化精氨酸SID Arg 0.56 0.68
标准回肠可消化蛋氨酸SID Met 0.09 0.17
标准回肠可消化苏氨酸SID Thr 0.31 0.47
总磷TP 0.58 0.51
钙Ca 0.95 1.14

1)妊娠期预混料为每千克饲粮提供 The premix provided the following per kg of the diet during gestation period:VA 10 000 IU,VD 1 400 IU,VE 40 mg,VK 3.0 mg,VB 10.50 mg,VB12 0.04 mg,烟酸 nicotinic acid 45 mg,泛酸 pantothenic acid 20 mg,叶酸 folic acid 1.2 mg,生物素 biotin 0.20 mg,Cu 80 mg,Fe 100 mg,Zn 100 mg,Mn 50 mg,I 0.3 mg,Se 0.25 mg。

2)净能和标准回肠可消化氨基酸含量为计算值,其余为实测值。NE and standardized ileal digestible amino acid contents were calculated values, while the others were measured values.

泌乳期预混料为每千克饲粮提供 The premix provided the following per kg of the diet during lactation period:VA 8 800 IU,VD3 900 IU,VE 50 IU,VK3 3.8 mg,VB1 1.85 mg,VB2 6.1 mg,VB6 2.8 mg,VB12 0.05 mg,烟酸 nicotinic acid 55.6 mg,泛酸钙 calcium pantothenate 30 mg,叶酸 folic acid 2.5 mg,生物素 biotin 0.2 mg,Mn 46 mg,Fe 85 mg,Zn 100 mg,Cu 20 mg,Se 0.18 mg,I 0.58 mg。

1.4 饲养管理

同一产房内对照组和试验组母猪各占1/2,饲养管理遵循公司标准方案执行。妊娠期间母猪限饲,妊娠后期每天每头饲喂3.2 kg饲粮,泌乳期间母猪自由采食和饮水,每天准确记录母猪的采食量及母猪、仔猪健康情况,并保持栏舍通风与环境卫生。

1.5 样品采集

血清样品:每组随机选取60头母猪,在断奶(分娩后第21天)当天08:00(空腹状态下)采集5 mL前腔静脉血于无抗凝剂采血管中,低温条件下以1 369×g离心15 min后分装血清,置于-80 ℃冰箱中保存待测。
乳汁样品:每组从采血母猪中选取10头,分别于分娩后2 h内采集初乳及分娩后第14天采集常乳。初乳直接采集;采集常乳前,对每头母猪耳缘注射2 mL缩宫素。采集时从前、中和后部乳头收集混合乳样,每头母猪共采集20 mL,置于-80 ℃冰箱中保存待测。

1.6 指标测定

1.6.1 母猪繁殖性能、平均日采食量(ADFI)和断奶背膘厚

繁殖性能:分娩结束后记录母猪产程及每窝产仔数、健仔数、弱仔数、死胎数、初生窝重,并计算弱仔率和死胎率;泌乳开始时记录母猪初始带仔数和初始窝重,并计算初始仔猪均重;于断奶当天记录断奶仔猪数和断奶窝重,并计算仔猪留存率、断奶窝增重、断奶仔猪均重及仔猪平均日增重(ADG)。ADG计算公式如下:
ADG=(断奶仔猪均重-初始仔猪均重)/21。
ADFI和断奶背膘厚:使用超声波背膘仪(RECON,美国)测量断奶时母猪背膘厚;记录母猪分娩至断奶期间每天的投料量和剩料量,计算ADFI。ADFI计算公式如下:
ADFI=(总投料量-总剩料量)/21。

1.6.2 血清游离氨基酸含量

取母猪血清样品(n=6)进行检测,步骤如下:将300 μL样品置于离心管中,加入900 μL 10%磺基水杨酸溶液,漩涡混匀后,以13 400×g离心15 min,收集上清液,经0.22 μm滤膜过滤后,采用全自动氨基酸分析仪(日立L-8900,日本)检测游离氨基酸含量。

1.6.3 血清抗氧化指标

采用南京建成生物工程研究所生产的试剂盒测定母猪血清抗氧化指标(n=6)。测定指标包括超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)活性及丙二醛(MDA)含量、总抗氧化能力(T-AOC)。

1.6.4 血清生化指标

采用中生北控生物科技股份有限公司生产的试剂盒,通过SELECTRA ProXL全自动生化分析仪(Vital Scientific,荷兰)测定母猪血清生化指标(n=6)。测定指标包括总蛋白(TP)、白蛋白(ALB)含量及谷丙转氨酶(ALT)、谷草转氨酶(AST)、碱性磷酸酶(ALP)活性。

1.6.5 乳成分及乳密度

采用EKOMILK乳成分自动分析仪(Bulteh 2000,保加利亚)测定初乳和常乳的乳成分和乳密度(n=9)。乳成分指标包括乳蛋白、乳脂肪和非脂乳固体含量。

1.6.6 血清和乳汁免疫球蛋白含量

采用酶联免疫吸附试验(ELISA)试剂盒(武汉华美生物工程有限公司)测定常乳中分泌性免疫球蛋白A(sIgA)含量(n=6),使用ELISA试剂盒(上海酶联生物科技有限公司)测定母猪血清(n=40)、初乳(n=10)和常乳(n=10)中IgA、IgG和IgM含量。

1.6.7 非靶向液相色谱-质谱联用(LC-MS)代谢组学分析

代谢物的提取与制备采用改良双相萃取法,具体操作如下:分别取200 μL血清(n=8)与乳汁样品(n=6),加入800 μL冰甲醇/乙腈(1∶1,V/V)混合溶液进行蛋白沉淀,经涡旋振荡60 s、4 ℃超声处理30 min及4 ℃下14 000×g离心20 min后,取上清液进行真空干燥,用100 μL乙腈/水(1∶1,V/V)复溶后待测。代谢组学分析采用超高效液相色谱系统(1290 Infinity LC,Agilent Technologies,美国)串联四极杆飞行时间质谱仪(Triple TOF 6600,AB Sciex,美国)。色谱分离使用UPLC BEH Amide色谱柱(2.1 mm×100 mm,1.7 μm),柱温保持25 ℃;流动相A为含25 mmol/L乙酸铵和25 mmol/L氢氧化铵的水溶液,流动相B为乙腈,梯度洗脱程序如下:0~0.5 min,95% B;0.5~7.0 min,95%~65% B;7.0~8.0 min,65%~40% B;8.0~9.0 min,40% B;9.0~9.1 min,40%~95% B;9.1~12.0 min,95% B。质谱检测采用正负离子双模式,参数设置如下:离子喷雾电压5 500 V(正离子模式)/-4 500 V(负离子模式),离子源温度600 ℃,气帘气压力30 psi,碰撞能量(35±15) eV。数据采集采用信息关联采集模式(information dependent acquisition,DIA),飞行时间质谱(time of flight mass spectrometer,TOF MS)扫描质量范围为60~1 000 m/z,子离子扫描范围为25~1 000 m/z。原始数据通过XCMS软件进行峰检测、对齐和定量分析;代谢物鉴定通过精确分子量和串联质谱(MS/MS)图与HMDB、METLIN、mzCloud标准数据库及自建库进行比对完成。所有血清、乳汁样品的预处理、上机检测、质谱参数设置及原始数据处理均由岳麓山实验室完成。使用正交偏最小二乘判别分析(OPLS-DA)构建表达模型,并结合单变量统计分析筛选差异代谢物,筛选标准为差异倍数(FC)≥1.0且P<0.05,通过联川生物和Metaboanalyst在线分析平台对差异代谢物进行聚类分析、通路富集分析及相关性分析。

1.7 数据统计与分析

试验数据采用SPSS 26.0软件进行t检验分析,结果以平均值±标准误表示,P<0.05表示差异显著,P<0.01表示差异极显著,0.05≤P<0.10表示有差异显著趋势。

2 结果与分析

2.1 复合功能生物活性剂对高温应激下母猪繁殖性能、ADFI和断奶背膘厚的影响

表2可知,与对照组相比,饲粮中添加复合功能生物活性剂极显著提高了产仔数、健仔数和初生窝重(P<0.01),对弱仔率、死胎率和产程无显著影响(P>0.05)。泌乳期相关指标显示,与对照组相比,饲粮中添加复合功能生物活性剂极显著降低了母猪ADFI(P<0.01),显著降低了母猪断奶背膘厚(P<0.05),有提高仔猪ADG(P=0.098)和断奶窝重(P=0.091)的趋势,对断奶仔猪数、仔猪留存率、断奶窝增重和断奶仔猪均重均无显著影响(P>0.05)。
表2 复合功能生物活性剂对高温应激下母猪繁殖性能、ADFI和断奶背膘厚的影响

Table 2 Effects of composite functional bioactive agent on reproductive performance, ADFI and weaning backfat thickness of sows under high-temperature stress (n=180)

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
产程Parturition duration/min 206.64±7.26 211.01±7.26 0.722
产仔数Litter size/头 13.00±0.33B 14.13±0.24A 0.007
健仔数Number of healthy piglets/头 10.83±0.27B 11.99±0.21A 0.004
弱仔率Weak piglet rate/% 6.11±0.68 6.93±0.62 0.198
死胎率Stillborn rate/% 5.95±0.61 4.84±0.49 0.322
初生窝重Litter weight at birth/kg 15.46±0.38B 16.81±0.32A 0.007
母猪平均日采食量Sow ADFI/kg 6.40±0.06A 6.18±0.06B <0.001
母猪断奶背膘厚Sow weaning backfat thickness/mm 16.54±0.23a 15.81±0.23b 0.029
初始带仔数Initial number of sucking piglets/头 12.51±0.16 12.63±0.16 0.604
初始窝重Initial litter weight/kg 17.09±0.33 16.83±0.28 0.550
初始仔猪均重Initial average weight per piglet/kg 1.37±0.02 1.34±0.02 0.356
断奶仔猪数Number of piglets at weaning/头 10.33±0.12 10.46±0.14 0.250
断奶窝重Weaning litter weight/kg 61.71±1.36 64.82±1.24 0.091
仔猪留存率Piglet retention rate/% 83.83±1.42 84.42±1.57 0.827
断奶窝增重Weaning litter weight gain/kg 46.44±1.43 49.18±1.35 0.166
断奶仔猪均重Average weaning weight per piglet/kg 5.99±0.10 6.20±0.08 0.145
仔猪平均日增重Piglet ADG/g 218.17±4.70 228.03±4.31 0.098

同行数据肩标不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 复合功能生物活性剂对高温应激下母猪生理代谢的影响

2.2.1 血清游离氨基酸含量

表3可知,与对照组相比,饲粮中添加复合功能生物活性剂极显著提高了断奶时母猪血清牛磺酸含量(P<0.01),显著降低了血清甘氨酸含量(P<0.05),有提高血清缬氨酸含量的趋势(P=0.083),对其他血清游离氨基酸含量均无显著影响(P>0.05)。
表3 复合功能生物活性剂对高温应激下母猪血清游离氨基酸含量的影响

Table 3 Effects of composite functional bioactive agent on serum free amino acid contents of sows under high-temperature stress (n=6) mol/L

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
牛磺酸Tau 191.33±17.57B 474.67±27.82A <0.001
尿素Urea 4 334.67±435.61 4 867.33±546.48 0.464
天冬氨酸Asp 25.33±2.23 21.33±1.98 0.209
苏氨酸Thr 250.00±21.18 286.00±21.93 0.265
丝氨酸Ser 155.33±9.71 155.33±9.43 1.000
天冬酰胺Asn 90.67±6.25 87.33±5.88 0.706
谷氨酸Glu 254.67±13.73 235.33±23.83 0.498
谷氨酰胺Gln 559.33±23.45 536.67±35.56 0.606
甘氨酸Gly 1 014.67±64.26a 802.00±58.29b 0.034
丙氨酸Ala 834.00±22.81 800.00±63.53 0.632
瓜氨酸Cit 180.67±13.56 192.67±7.69 0.459
缬氨酸Val 577.33±22.85 668.67±41.59 0.083
蛋氨酸Met 98.00±6.09 103.33±9.20 0.639
异亮氨酸Ile 140.00±10.58 158.00±10.97 0.265
亮氨酸Leu 263.33±13.24 269.33±20.47 0.811
酪氨酸Tyr 123.33±5.60 121.33±16.35 0.912
苯丙氨酸Phe 115.33±3.78 126.67±7.84 0.222
赖氨酸Lys 406.67±45.52 398.00±35.50 0.884
组氨酸His 78.00±4.70 72.67±6.65 0.527
精氨酸Arg 282.00±24.04 309.33±20.96 0.411
脯氨酸Pro 363.33±17.02 412.67±34.83 0.242

2.2.2 血清抗氧化指标

表4可知,与对照组相比,饲粮中添加复合功能生物活性剂显著提高了断奶时母猪血清T-AOC(P<0.05),对血清SOD、CAT、GSH-Px活性和MDA含量均无显著影响(P>0.05)。
表4 复合功能生物活性剂对高温应激下母猪血清抗氧化指标的影响

Table 4 Effects of composite functional bioactive agent on antioxidant indexes of sows under high-temperature stress (n=6)

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
总抗氧化能力T-AOC/(mmol/L) 0.52±0.02b 0.55±0.02a 0.022
超氧化物歧化酶SOD/(U/mL) 26.89±1.56 29.01±0.83 0.209
过氧化氢酶CAT/(U/mL) 0.67±0.18 0.82±0.06 0.337
谷胱甘肽过氧化氢酶GSH-Px/(U/mL) 1 827.96±105.78 2 025.95±46.14 0.111
丙二醛MDA/(nmol/mL) 2.85±0.31 2.43±0.05 0.231

2.2.3 血清生化指标

表5可知,与对照组相比,饲粮中添加复合功能生物活性剂有提高断奶时母猪血清TP含量的趋势(P=0.062),对血清ALT、AST、ALP活性和ALB含量均无显著影响(P>0.05)。
表5 复合功能生物活性剂对高温应激下母猪血清生化指标的影响

Table 5 Effects of composite functional bioactive agent on biochemical indexes of sows under high-temperature stress (n=6)

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
谷丙转氨酶ALT/(U/L) 30.47±2.94 31.95±4.24 0.790
谷草转氨酶AST/(U/L) 33.00±6.48 24.91±2.00 0.289
碱性磷酸酶ALP/(U/L) 49.92±11.91 84.26±15.91 0.122
总蛋白TP/(g/L) 81.93±2.23 87.60±0.71 0.062
白蛋白ALB/(g/L) 35.80±0.40 38.06±1.39 0.186

2.3 复合功能生物活性剂对高温应激下母猪乳成分及乳密度的影响

表6可知,与对照组相比,饲粮中添加复合功能生物活性剂对初乳和常乳中乳脂、非脂乳固体、乳蛋白含量以及乳密度均无显著影响(P>0.05)。
表6 复合功能生物活性剂对高温应激下母猪乳成分及乳密度的影响

Table 6 Effects of composite functional bioactive agent on milk composition and milk density of sows under high-temperature stress (n=9)

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
初乳Colostrum
乳脂Milk fat/% 5.27±0.49 6.30±0.59 0.215
非脂乳固体Solids-not-fat/% 13.32±0.56 13.36±0.60 0.962
乳蛋白Milk protein/% 5.05±0.21 5.06±0.23 0.965
乳密度Milk density/(kg/m3) 46.56±2.46 45.76±2.90 0.839
常乳Milk
乳脂Milk fat/% 7.33±0.56 7.78±0.67 0.610
非脂乳固体Solids-not-fat/% 10.36±0.19 10.73±0.13 0.127
乳蛋白Milk protein/% 3.93±0.07 4.08±0.06 0.124
乳密度Milk density/(kg/m3) 32.37±0.91 33.49±0.55 0.308

2.4 复合功能生物活性剂对高温应激下母猪血清和乳汁免疫球蛋白含量的影响

表7可知,与对照组相比,饲粮中添加复合功能生物活性剂有降低初乳IgM含量的趋势(P=0.089),有提高常乳sIgA含量的趋势(P=0.064),对血清和常乳IgA、IgM、IgG含量及初乳IgA、IgG含量均无显著影响(P>0.05)。
表7 复合功能生物活性剂对高温应激下母猪血清和乳汁免疫球蛋白含量的影响

Table 7 Effects of composite functional bioactive agent on serum and milk immunoglobulin contents of sows under high-temperature stress g/mL

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
血清Serum (n=40)
免疫球蛋白A IgA 25.55±0.94 24.56±0.64 0.392
免疫球蛋白M IgM 31.75±1.46 33.30±1.02 0.397
免疫球蛋白G IgG 287.74±12.27 301.18±5.71 0.260
初乳Colostrum (n=10)
免疫球蛋白A IgA 17.45±0.44 16.30±0.53 0.122
免疫球蛋白M IgM 22.96±1.04 20.10±1.17 0.089
免疫球蛋白G IgG 268.04±8.53 266.15±11.06 0.896
常乳Milk (n=10)
免疫球蛋白A IgA 22.01±0.60 21.45±0.60 0.523
免疫球蛋白M IgM 28.79±1.34 32.09±1.44 0.115
免疫球蛋白G IgG 341.61±5.45 373.37±17.69 0.329
分泌型免疫球蛋白A sIgA 8.97±1.40 15.78±2.85 0.064

2.5 复合功能生物活性剂对高温应激下母猪血清及乳汁代谢物的影响

2.5.1 血清代谢物差异分析
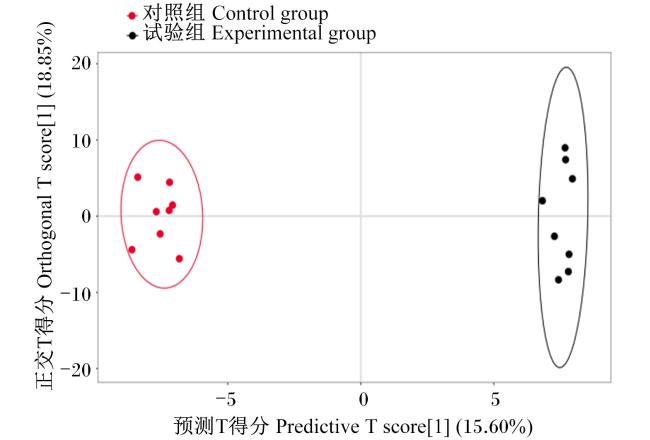
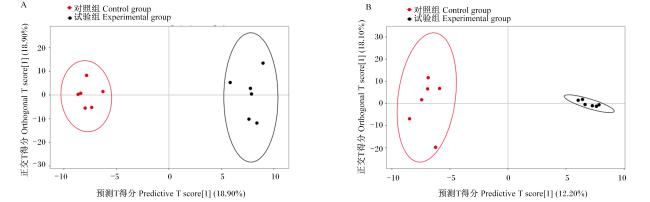
图1可知,构建的OPLS-DA模型具有良好的稳定性,能有效区分对照组与试验组母猪血清代谢物组成差异。
图1 母猪血清代谢物OPLS-DA得分图

Fig.1 OPLS-DA score plots of serum metabolites of sows (n=8)

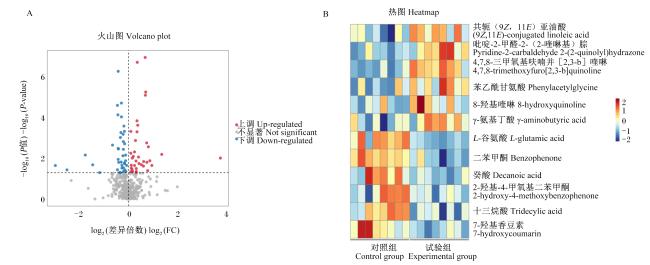
以FC≥1.0且P<0.05为标准,在对照组与试验组母猪血清中共筛选出75种差异代谢物(图2-A)。图2-B展示了部分差异代谢物的变化情况,包括脂肪酸类[共轭(9Z,11E)亚油酸、癸酸、十三烷酸],氨基酸及其衍生物类(L-谷氨酸、γ-氨基丁酸、苯乙酰甘氨酸),杂环化合物类[吡啶-2-甲醛-2-(2-喹啉基)腙、4,7,8-三甲氧基呋喃并[3-b]喹啉、8-羟基喹啉],酮类及酚酮衍生物类(2-羟基-4-甲氧基二苯甲酮、二苯甲酮)以及酚类及香豆素衍生物类(7-羟基香豆素)。
图2 母猪血清差异代谢物火山图(A)和热图(B)

Fig.2 Volcano plot (A) and heatmap (B) of serum differential metabolites of sows (n=8)

2.5.2 乳汁代谢物差异分析

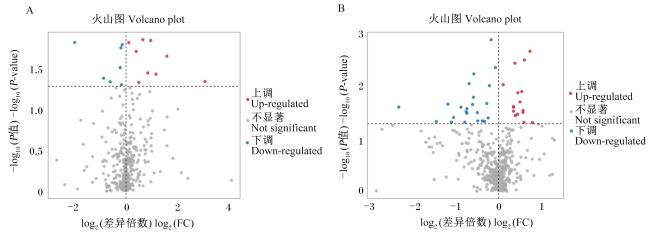
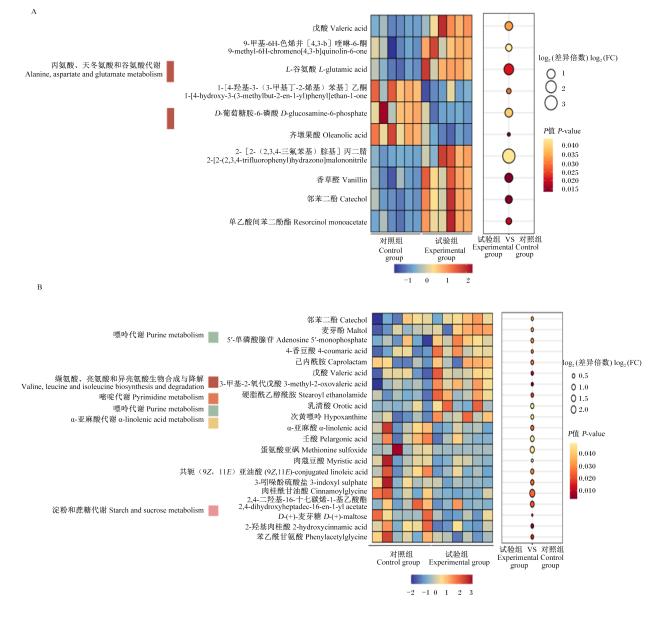
图3可知,构建的OPLS-DA模型具有良好的稳定性,能有效区分对照组与试验组母猪初乳及常乳代谢物组成差异。以FC≥1.0且P<0.05为标准,在对照组与试验组初乳和常乳中分别筛出16种和39种差异代谢物(图4)。图5展示了对照组与试验组母猪初乳(图5-A)和常乳(图5-B)差异代谢物的变化情况及富集的通路,初乳中检测到的差异代谢物包括氨基酸类(L-谷氨酸),脂肪酸类(戊酸),糖类衍生物类(D-葡萄糖胺-6-磷酸),酚类(单乙酸间苯二酚酯、邻苯二酚)以及醛类(香草醛)等。其中,L-谷氨酸和D-葡萄糖胺-6-磷酸富集于丙氨酸、天冬氨酸和谷氨酸代谢通路。常乳中检测到的差异代谢物包括氨基酸及其衍生物(苯乙酰甘氨酸、肉桂酰甘氨酸、蛋氨酸亚砜),脂肪酸类[共轭(9Z,11E)亚油酸、肉豆蔻酸、壬酸、α-亚麻酸、戊酸],糖类[D-(+)-麦芽糖],有机酸类(3-甲基-2-氧代戊酸、硬脂酰乙醇酰胺、3-吲哚硫酸盐、5'-单磷酸腺苷、麦芽酚),含氮杂环类(次黄嘌呤、乳清酸和己内酰胺)以及萜类衍生物(2,4-二羟基-16-十七碳烯-1-基乙酸酯)等。其中,3-甲基-2-氧代戊酸富集于缬氨酸、亮氨酸和异亮氨酸生物合成与降解通路,α-亚麻酸富集于α-亚麻酸代谢通路,5'-单磷酸腺苷和次黄嘌呤富集于嘌呤代谢通路,乳清酸富集于嘧啶代谢通路,D-(+)-麦芽糖富集于淀粉和蔗糖代谢通路。
图3 母猪初乳(A)和常乳(B)OPLS-DA得分图

Fig.3 OPLS-DA score plots of colostrum (A) and milk (B) of sows (n=6)

图4 母猪初乳(A)和常乳(B)差异代谢物火山图

Fig.4 Differential metabolites volcano plots of colostrum (A) and milk (B) of sows (n=6)

图5 母猪初乳(A)和常乳(B)差异代谢物热图及富集通路

Fig.5 Differential metabolites heatmap of colostrum (A) and milk (B) of sows (n=6)

2.5.3 相关性分析

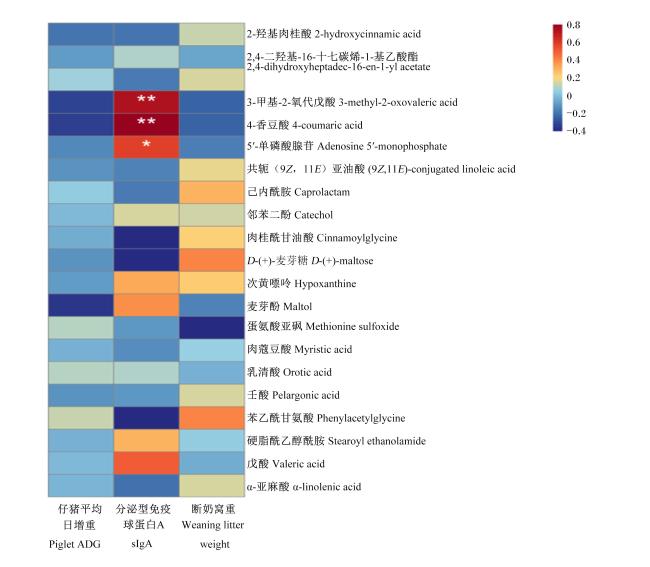
将常乳差异代谢物与仔猪ADG、断奶窝重和常乳sIgA含量进行皮尔逊相关性分析,结果如图6所示。5'-单磷酸腺苷与常乳sIgA含量呈显著正相关(P<0.05),3-甲基-2-氧代戊酸和4-香豆酸与常乳sIgA含量呈极显著正相关(P<0.01)。
图6 仔猪ADG、常乳sIgA含量和断奶窝重与常乳差异代谢物的相关性

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.6 Correlations between piglet ADG, milk sIgA content, weaning litter weight and milk differential metabolites

* indicated significant correlation (P<0.05), and ** indicated extremely significant correlation (P<0.01).

3 讨论

3.1 复合功能生物活性剂对高温应激下母猪繁殖性能的影响

牛磺酸作为一种多功能膳食抗氧化剂,可有效缓解仔猪氧化应激状态,调控炎性因子水平,降低肠道通透性并抑制细胞凋亡[11]。Xu等[12]研究发现,在后备母猪妊娠晚期及泌乳期饲粮中添加1 000 mg/kg牛磺酸,可提升仔猪抗氧化能力,改善肠道形态和屏障功能,进而提高仔猪ADG和断奶重。许蒙蒙[6]研究发现,在母猪妊娠第90天饲粮中添加1%牛磺酸并持续至仔猪21日龄断奶,可显著提高仔猪断奶个体重、断奶窝重和ADG。白藜芦醇是一种天然多酚类植物抗毒素,广泛存在于葡萄、浆果、花生等植物中,具有抗炎、免疫调节及抗氧化等多种生物学功能。本课题组前期研究发现,高温环境下在母猪饲粮中添加白藜芦醇可改善仔猪肠道屏障功能,促进仔猪生长[13]。Meng等[14]研究发现,在妊娠期及泌乳期母猪饲粮中添加白藜芦醇,可通过调控胎盘Kelch样环氧氯丙烷相关蛋白1(Keap1)-Nrf2通路增强抗氧化基因的表达,同时可提高仔猪的断奶窝重。本试验结果与前人研究结果一致,在母猪妊娠后期至泌乳期饲粮中添加复合功能生物活性剂,可使仔猪ADG和断奶窝重有增加趋势,表明高温应激下添加复合功能生物活性剂对改善母猪泌乳性能具有一定积极作用。此外,本试验观察到试验组泌乳期母猪的ADFI极显著降低,推测这一现象可能与复合制剂中黄芩素的特性相关。黄芩是从黄芩根中提取的主要黄酮类化合物,具有抗炎、抗菌和抗氧化等作用,但其性寒味苦[15]。高温应激下母猪本身采食量较低,而黄芩素的苦味可能进一步影响其采食意愿;尽管如此,复合制剂整体仍对母猪泌乳性能产生了积极影响,后续研究将重点优化该复合功能生物活性剂的适口性。母猪泌乳量是决定仔猪断奶体重的关键因素,而高温应激会导致母猪泌乳量降低[16]。前人研究发现,牛磺酸作为一种抑制性氨基酸神经递质,可通过刺激催乳素释放进而增加母猪泌乳量。许蒙蒙[6]的研究也证实,饲粮中添加牛磺酸能促进母猪乳腺发育,提高泌乳量。尽管本研究中复合功能生物活性剂的添加极显著降低了母猪泌乳期ADFI,但断奶时仔猪ADG和窝重呈增加趋势,推测可能是因为该复合制剂提高了母猪的泌乳量。然而,本试验未对母猪泌乳量进行量化测定,这是研究的不足之处,后续将进一步验证该推测。

3.2 复合功能生物活性剂对高温应激下母猪生理代谢的影响

作为机体氨基酸代谢的重要生物学标志物,血清游离氨基酸含量可在一定程度上表征机体对氨基酸的吸收、利用及代谢调控情况。本试验中试验组母猪血清牛磺酸含量极显著提高,提示饲粮中复合功能生物活性剂可提高血清中牛磺酸的可利用度。
高温环境易诱发动物应激反应,导致活性氧自由基过量生成,进而引起氧化应激[17]。MDA、T-SOD、T-AOC和GSH-Px等是评估机体抗氧化系统功能的重要指标[18]。前人研究显示,白藜芦醇不仅能直接清除活性氧,还能提高SOD、GSH-Px及CAT等抗氧化酶的活性[19],其潜在机制主要涉及对Nrf2、激活蛋白-1(AP-1)和沉默信息调节因子1(SIRT1)等核转录因子的激活,或通过其他酶促修饰途径实现[20]。本课题组前期研究发现,高温环境下自妊娠第75天起在母猪饲粮中添加300 mg/kg白藜芦醇,其妊娠阶段血浆SOD活性呈上升趋势,泌乳阶段血浆SOD和GSH-Px活性也呈上升趋势,MDA含量显著降低[8]。张卫辉等[21]研究发现,在妊娠第35天至断奶期间的饲粮中添加600 mg/kg牛磺酸,对母猪断奶时血清GSH-Px活性和MDA含量无显著影响。而许蒙蒙[6]研究发现,在妊娠第90天至泌乳第21天的饲粮中添加1%牛磺酸,能显著降低泌乳第10天血浆MDA含量,同时显著提高血浆T-AOC。Zhao等[8]研究发现,高温环境下在妊娠第90天至泌乳第21天的饲粮中添加300 mg/kg白藜芦醇,可显著提高泌乳第14天母猪血浆T-AOC。本试验结果表明,饲粮中添加复合功能生物活性剂显著提高断奶时母猪血清T-AOC,在数值上降低了血清MDA含量及提高了血清SOD、CAT及GSH-Px活性,但未达统计学显著水平,这提示其在一定程度上可能具有增强高温应激下母猪的抗氧化能力及改善机体健康状态的潜力,但仍需进一步验证。
血清生化指标是反映机体新陈代谢与整体健康状况的重要参数。TP含量代表机体蛋白质吸收、合成和代谢的能力,而机体蛋白质可为免疫球蛋白的合成提供原料,所以TP含量也在一定程度上反映了机体的免疫状态。血清TP和ALB含量能反映机体蛋白质沉积和代谢情况,ALT、AST和ALP活性在一定程度上可以反映动物肝脏功能。本试验结果表明,饲粮中添加复合功能生物活性剂有提高母猪血清TP含量的趋势,且对母猪血清ALT、AST及ALP活性无显著影响,提示该复合制剂可能有助于增强机体蛋白质的合成与代谢过程,且对肝脏功能无负面效应。

3.3 复合功能生物活性剂对高温应激下母猪血清代谢物的影响

代谢物是机体新陈代谢过程中产生或消耗的小分子化合物(如糖类、氨基酸、脂质、核苷酸、有机酸等),广泛参与各项生命活动。本试验结果表明,饲粮中添加复合功能生物活性剂使血清中共轭(9Z,11E)亚油酸和γ-氨基丁酸等代谢物显著上调。共轭亚油酸是由亚油酸异构体构成的一类具有共轭双键的混合物,其主要异构体包括共轭(9Z,11E)亚油酸和共轭(10E,12Z)亚油酸,是人体和动物机体自身无法合成但又不可缺少的功能性多不饱和脂肪酸[22]。陈亚萍等[22]研究发现,饲粮中添加共轭亚油酸能显著提高产蛋后期蛋鸡血清T-AOC。高腾飞等[23]研究发现,饲粮中添加共轭亚油酸可调节边鸡脂质代谢,并增强其机体抗氧化能力。在本试验中,共轭亚油酸作为试验组母猪血清中显著上调的差异代谢物,其差异表达趋势与血清T-AOC的提升呈同步性,推测复合功能生物活性剂可能通过减少共轭亚油酸氧化损耗及促进其合成相关代谢通路激活,增强共轭亚油酸与T-AOC的协同效应,进而增强母猪抗氧化功能,其具体调控机制仍需进一步探究。γ-氨基丁酸是哺乳动物体内广泛存在的一种抑制性神经递质,功能覆盖多个生理领域。前人研究发现,γ-氨基丁酸应用于畜禽养殖时,在缓解应激、调控采食及促进生长方面表现出良好稳定的效果[24]。此外,γ-氨基丁酸通过与其受体互作,能够改善机体的抗氧化能力,实现对机体氧化还原状态的有效干预,提高血清GSH-Px活性,降低血清MDA含量,从而减轻氧化应激损伤,改善动物健康水平[25]。本试验中,试验组血清代谢物中γ-氨基丁酸显著上调,推测复合功能生物活性剂可能通过促进γ-氨基丁酸合成或减少其分解,增强γ-氨基丁酸与受体的互作,进而协同提升机体T-AOC,其具体调控机制有待深入解析。综上所述,饲粮中添加复合功能生物活性剂可通过上调血清代谢物中的共轭亚油酸和γ-氨基丁酸,间接增强高温应激下母猪的抗氧化能力,改善母猪健康状态。

3.4 复合功能生物活性剂对高温应激下母猪乳成分及乳汁免疫功能的影响

哺乳期仔猪主要是从母乳中获取营养物质和能量,母猪泌乳量及乳蛋白、乳脂肪、乳糖等营养物质含量在很大程度上影响仔猪的健康与生长发育[26]。本课题组前期研究表明,在母猪妊娠期及泌乳期饲粮中添加牛磺酸,可能通过改变乳腺组织中精氨酸和谷氨酸的代谢,促进初乳中乳蛋白的合成[6]。而高温环境下,在母猪妊娠期及泌乳期饲粮中添加白藜芦醇对乳成分无显著影响[8]。本试验结果与上述结果相似,即高温应激下在母猪饲粮中添加复合功能生物活性剂,对初乳和常乳的乳成分均无显著影响,推测可能是高温应激下母猪优先利用复合功能生物活性剂缓解应激所致。母猪乳汁具有营养和免疫功能,初乳中IgG在分娩最初3 d含量比较高,之后IgA成为乳汁中主要的免疫球蛋白[27]。研究表明,母猪饲粮中添加牛磺酸可提高乳汁中免疫球蛋白含量,同时可调节细胞因子含量及免疫应答[12,28]。本课题组前期研究发现,高温环境下在母猪饲粮中添加300 mg/kg白藜芦醇可增加初乳中IgA、IgG和IgM含量,但乳汁中sIgA含量没有显著变化[8]。牛磺酸在淋巴细胞和中性粒细胞中含量相对较高,不仅对淋巴细胞具有保护作用,还能有效促进其增殖。张卫辉等[21]研究发现,在妊娠第35天至断奶期间的饲粮中添加600 mg/kg牛磺酸,有提高母猪血清IgG和IgM含量的趋势。Capogrosso等[29]研究发现,在杜氏肌营养不良小鼠模型中,1 000 mg/kg牛磺酸与100 mg/kg白藜芦醇联合使用,虽能改善肌肉力量和氧化应激指标,但效果未显著优于单独使用,这可能是因为二者作用机制缺乏协同,导致整体效应受限。本试验结果表明,高温应激下饲粮中添加复合功能生物活性剂可使母猪初乳IgA、IgG和IgM含量在数值上呈现降低,但经统计学检验,组间差异未达到显著水平,推测其原因可能是在高温应激下牛磺酸、白藜芦醇和黄芩素联合使用时存在“协同不足”,后续将优化其剂量配比以深入探究。
本试验结果表明,饲粮中添加复合功能生物活性剂有提高母猪常乳sIgA含量的趋势。通过对母猪常乳进行代谢组学分析,发现试验组差异代谢物3-甲基-2-氧代戊酸显著上调且富集于缬氨酸、亮氨酸和异亮氨酸生物合成与降解通路。3-甲基-2-氧代戊酸属于α-酮酸,是支链氨基酸(如亮氨酸)代谢过程中的关键中间产物。目前针对该代谢物的直接研究尚显匮乏,但其潜在作用机制可参考同类代谢物或相关通路的研究证据。白藜芦醇可通过腺苷酸活化蛋白激酶(AMPK)通路调节支链氨基酸转氨酶(BCAT)等代谢酶活性。Wen等[30]研究发现,AMPK通路激活能增强肌肉组织中支链氨基酸的分解代谢,而BCAT活性升高可加速支链氨基酸脱氨基过程,可能进一步促使3-甲基-2-氧代戊酸合成增加。Chaplin等[31]研究发现,白藜芦醇可调节肠道菌群结构,提高拟杆菌门(Bacteroidetes)和厚壁菌门(Firmicutes)丰度,增强异亮氨酸分解能力。本研究发现,试验组常乳代谢物中3-甲基-2-氧代戊酸显著上调且与sIgA含量呈极显著正相关,而常乳中的sIgA可通过仔猪消化道吸收,在肠道黏膜表面形成免疫屏障,维护肠道健康并促进生长。此外,前人研究发现,具有抗氧化性质的4-香豆酸可以抑制环氧合酶-2(COX-2)的表达与活性,从而缓解由右旋糖酐硫酸钠(DSS)引起的轻度急性肠道炎症[32];且酚类化合物可调节肠道菌群组成与代谢[33]。肠道菌群与肠道黏膜免疫密切相关,有益菌群可刺激肠道相关淋巴组织,促进B细胞在肠道黏膜局部分化为浆细胞分泌sIgA,因此推测4-香豆酸可能通过调节肠道菌群间接影响sIgA分泌。此外,5'-单磷酸腺苷作为细胞内能量代谢的关键分子及信号传导介质,在B细胞代谢调控中发挥重要作用,研究显示其可保障代谢通路正常运行,间接支持免疫球蛋白的合成与分泌[34]。综上所述,本试验首次在母猪常乳中发现3-甲基-2-氧代戊酸、4-香豆酸和5'-单磷酸腺苷与sIgA含量呈显著或极显著正相关,提示复合功能生物活性剂可能通过干预支链氨基酸代谢(如激活AMPK通路、调控BCAT活性)与肠道菌群结构(拟杆菌门/厚壁菌门丰度变化)等,经“乳肠轴”间接调控乳汁sIgA分泌,该结果为研究母猪营养干预与后代免疫发育的分子关联提供新视角,也为改善饲料利用效率、减轻应激损伤及提升动物健康水平提供了理论依据。

4 结论

高温应激下,母猪饲粮中添加复合功能生物活性剂可极显著提高产仔数、健仔数和初生窝重,同时提升仔猪ADG和断奶窝重,还能在一定程度上增强母猪机体抗氧化能力及提高常乳sIgA含量。
[1]
GORMLEY A, JANG K B, GARAVITO-DUARTE Y, et al. Impacts of maternal nutrition on sow performance and potential positive effects on piglet performance[J]. Animals, 2024, 14(13):1858.

DOI

[2]
NIU K Y, ZHONG J N, HU X D. Impacts of climate change-induced heat stress on pig productivity in China[J]. Science of the Total Environment, 2024, 908:168215.

[3]
KATIYAR R, GONMEI C, DEORI S, et al. Effect of heat stress on pig production and its mitigation strategies:a review[J]. Tropical Animal Health and Production, 2025, 57(3):139.

DOI

[4]
LIU F, DE RUYTER E M, ATHORN R Z, et al. Effects of L-citrulline supplementation on heat stress physiology,lactation performance and subsequent reproductive performance of sows in summer[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(1):251-257.

DOI

[5]
PAPATSIROS V G, KATSOGIANNOU E G, PAPAKONSTANTINOU G I, et al. Effects of phenolic phytogenic feed additives on certain oxidative damage biomarkers and the performance of primiparous sows exposed to heat stress under field conditions[J]. Antioxidants, 2022, 11(3):593.

DOI

[6]
许蒙蒙. 饲粮添加牛磺酸对初产母猪泌乳性能的影响及机制研究[D]. 博士学位论文. 雅安: 四川农业大学, 2019:58-78.

XU M M. Effects and mechanisms of dietary supplementation with taurine on lactation performance of gilts[D]. Ph.D.Thesis. Ya’an: Sichuan Agricultural University, 2019:58-78. (in Chinese)

[7]
XU M M, CHE L, GAO K G, et al. Taurine alleviates oxidative stress in porcine mammary epithelial cells by stimulating the Nrf2-MAPK signaling pathway[J]. Food Science & Nutrition, 2023, 11(4):1736-1746.

DOI

[8]
ZHAO Y, HUANG Y J, GAO K G, et al. Maternal resveratrol regulates the growth performance,antioxidant capacity,and intestinal health of suckling piglets through intestinal microorganisms at high summer temperatures[J]. Frontiers in Nutrition, 2022, 9:971496.

[9]
ZHA C, XIAO H, SONG B, et al. Resveratrol promotes mammary cell proliferation and antioxidation capacity during pregnancy and lactation in mice[J]. Journal of Applied Microbiology, 2021, 130(2):450-463.

DOI

[10]
刘燕, 朱金凤. 山银花和黄芩提取物对母猪生产性能、繁殖性能及免疫机能的影响[J]. 饲料研究, 2021, 44(8):22-25.

LIU Y, ZHU J F. Effect of Lonicera flos extract and Scutellariae radix extract on production performance,reproductive performance and immune function of sows[J]. Feed Research, 2021, 44(8):22-25. (in Chinese)

[11]
ZHOU M, WU Z C, DENG D H, et al. Effects of taurine on the growth performance,diarrhea,oxidative stress and intestinal barrier function of weanling piglets[J]. Frontiers in Veterinary Science, 2024, 11:1436282.

[12]
XU M M, CHE L, GAO K G, et al. Effects of dietary taurine supplementation to gilts during late gestation and lactation on offspring growth and oxidative stress[J]. Animals, 2019, 9(5):220.

DOI

[13]
HONG C M, HUANG Y J, YANG G, et al. Maternal resveratrol improves the intestinal health and weight gain of suckling piglets during high summer temperatures:the involvement of exosome-derived microRNAs and immunoglobin in colostrum[J]. Animal Nutrition, 2024, 17:36-48.

DOI

[14]
MENG Q W, GUO T, LI G Q, et al. Dietary resveratrol improves antioxidant status of sows and piglets and regulates antioxidant gene expression in placenta by Keap1-Nrf2 pathway and SIRT1[J]. Journal of Animal Science and Biotechnology, 2018, 9(1):34.

DOI

[15]
张博. 黄芩素作为饲料添加剂对肉鸡生长性能、免疫力和抗氧化能力的影响[J]. 北方牧业, 2021(12):27.

ZHANG B. Effects of baicalein as a feed additive on growth performance,immunity and antioxidant capacity of broilers[J]. Northern Animal Husbandry, 2021(12):27. (in Chinese)

[16]
VILAS BOAS RIBEIRO B P, LANFERDINI E, PALENCIA J Y P, et al. Heat negatively affects lactating swine:a Meta-analysis[J]. Journal of Thermal Biology, 2018, 74:325-330.

DOI

[17]
WANG Y, WU J, XIA S W, et al. miR-27a-3p relieves heat stress-induced mitochondrial damage and aberrant milk protein synthesis through MEK/ERK pathway in BMECs[J]. Cell Stress and Chaperones, 2023, 28(3):265-274.

DOI

[18]
AHMED K D. Effects of using L-arginine on production and physiological performance of rabbits[J]. IOP Conference Series:Earth and Environmental Science, 2021, 761:012107.

DOI

[19]
GAL R, DERES L, TOTH K, et al. The effect of resveratrol on the cardiovascular system from molecular mechanisms to clinical results[J]. International Journal of Molecular Sciences, 2021, 22(18):10152.

DOI

[20]
MOUTABIAN H, MAJDAEEN M, GHAHRAMANI-ASL R, et al. A systematic review of the therapeutic effects of resveratrol in combination with 5-fluorouracil during colorectal cancer treatment:with a special focus on the oxidant,apoptotic,and anti-inflammatory activities[J]. Cancer Cell International, 2022, 22(1):142.

DOI

[21]
张卫辉, 朱秋凤. N-氨甲酰谷氨酸或牛磺酸对母猪繁殖性能、血清抗氧化指标、免疫球蛋白水平及其仔猪生产性能的影响[J]. 南京农业大学学报, 2023, 46(4):764-771.

ZHANG W H, ZHU Q F. Effects of N-carbamylglutamate or taurine on reproductive performance,serum antioxidant indices,immunoglobulin levels of sows and growth performance of piglets[J]. Journal of Nanjing Agricultural University, 2023, 46(4):764-771. (in Chinese)

[22]
陈亚萍, 黄昀巍, 张媛, 等. 共轭亚油酸对产蛋后期蛋鸡生产性能、生化指标及抗氧化性能的影响[J]. 西北农林科技大学学报(自然科学版), 2024, 52(10):19-25,34.

CHEN Y P, HUANG Y W, ZHANG Y, et al. Effects of conjugated linoleic acid on production performance,biochemical indexes and antioxidant properties of laying hens in late laying period[J]. Journal of Northwest A&F University(Natural Science Edition), 2024, 52(10):19-25,34. (in Chinese)

[23]
高腾飞, 杨鑫, 李亚莉, 等. 共轭亚油酸对边鸡生长性能、血清生化指标、肉品质和抗氧化能力以及其在肌肉中富集的影响[J]. 动物营养学报, 2025, 37(1):320-329.

DOI

GAO T F, YANG X, LI Y L, et al. Effects of conjugated linoleic acid on growth performance,serum biochemical indices,meat quality,antioxidant capacity and its enrichment in muscle of Bian chickens[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):320-329. (in Chinese)

[24]
范志勇, 邓近平, 杨玲媛, 等. γ-氨基丁酸对热应激大鼠新生子代的发育及抗氧化力的影响[J]. 中国农学通报, 2012, 28(11):89-92.

FAN Z Y, DENG J P, YANG L Y, et al. Effects of γ-aminobutyric acid on development and antioxidant ability of neonates of heat-stressed rats[J]. Chinese Agricultural Science Bulletin, 2012, 28(11):89-92. (in Chinese)

DOI

[25]
丁亚南, 张光磊, 肖勇, 等. γ-氨基丁酸对妊娠母猪繁殖性能、氧化状态和免疫水平的影响[J]. 养猪, 2017(2):37-40.

DING Y N, ZHANG G L, XIAO Y, et al. Effect of γ-aminobutyric acid for pregnant sow reproductive performance,oxidation state and immunity levels[J]. Swine Production, 2017(2):37-40. (in Chinese)

[26]
李帅, 温晓鹿, 蒋宗勇, 等. 妊娠后期及泌乳期添加异黄酮-S对母猪繁殖性能、抗氧化能力、免疫功能的影响[J]. 动物营养学报, 2022, 34(10):6459-6468.

DOI

LI S, WEN X L, JIANG Z Y, et al. Effects of dietary supplementation of isoflavone-S in late gestation and lactation on reproductive performance,antioxidant capacity and immune functions of sows[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6459-6468. (in Chinese)

[27]
董世娟, 谢春芳, 司伏生, 等. 猪流行性腹泻病毒免疫及疫苗研制[J]. 生物工程学报, 2021, 37(8):2603-2613.

DONG S J, XIE C F, SI F S, et al. Immunization against porcine epidemic diarrhea virus and vaccine development[J]. Chinese Journal of Biotechnology, 2021, 37(8):2603-2613. (in Chinese)

[28]
薛可. 牛磺酸对LPS诱导仔猪炎症激活的抑制作用研究[D]. 硕士学位论文. 沈阳: 沈阳农业大学, 2018.

XUE K. Inhibitory effect of taurine on LPS induced inflammatory activation in piglets[D]. Master’s Thesis. Shenyang: Shenyang Agricultural University, 2018. (in Chinese)

[29]
CAPOGROSSO R F, COZZOLI A, MANTUANO P, et al. Assessment of resveratrol,apocynin and taurine on mechanical-metabolic uncoupling and oxidative stress in a mouse model of Duchenne muscular dystrophy:a comparison with the gold standard,α-methyl prednisolone[J]. Pharmacological Research, 2016, 106:101-113.

DOI

[30]
WEN W X, CHEN X L, HUANG Z Q, et al. Resveratrol regulates muscle fiber type gene expression through AMPK signaling pathway and miR-22-3p in porcine myotubes[J]. Animal Biotechnology, 2022, 33(3):579-585.

DOI

[31]
CHAPLIN A, CARPÉNÉ C, MERCADER J. Resveratrol,metabolic syndrome,and gut microbiota[J]. Nutrients, 2018, 10(11):1651.

DOI

[32]
LUCERI C, GUGLIELMI F, LODOVICI M, et al. Plant phenolic 4-coumaric acid protects against intestinal inflammation in rats[J]. Scandinavian Journal of Gastroenterology, 2004, 39(11):1128-1133.

DOI PMID

[33]
WANG X F, QI Y, ZHENG H. Dietary polyphenol,gut microbiota,and health benefits[J]. Antioxidants, 2022, 11(6):1212.

DOI

[34]
JOHNSTONE J C, YAZICIOGLU Y F, CLARKE A J. Fuelling B cells:dynamic regulation of B cell metabolism[J]. Current Opinion in Immunology, 2024, 91:102484.

文章导航

/