研究论文

生长猪多元化饲粮适宜粗蛋白质和标准回肠可消化氨基酸水平研究

  • 王怀鑫 ,
  • 郭东习 ,
  • 蒲俊宁 ,
  • 陈代文 ,
  • 郑萍 ,
  • 何军 ,
  • 余冰 , *
展开
  • 四川农业大学动物营养研究所,动物抗病营养教育部重点实验室,成都 611130
* 余冰,教授,博士生导师,E-mail:

王怀鑫(2000—),男,山东临沂人,硕士研究生,从事猪营养与饲料研究。E-mail:

收稿日期: 2025-06-13

  网络出版日期: 2026-01-13

基金资助

国家重点研发计划项目(2022YFD1300502)

四川省重大科技专项项目(2021ZDZX0009)

Research on Optimal Levels of Crude Protein and Standard Ileal Digestible Amino Acids in Diversified Diets for Growing Pigs

  • WANG Huaixin ,
  • GUO Dongxi ,
  • PU Junning ,
  • CHEN Daiwen ,
  • ZHENG Ping ,
  • HE Jun ,
  • YU Bing , *
Expand
  • Key Laboratory for Animal Disease-Resistance Nutrition of Ministry of Education, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
* professor, E-mail:

Received date: 2025-06-13

  Online published: 2026-01-13

摘要

本试验旨在研究多元化饲粮条件下不同粗蛋白质(CP)和标准回肠可消化氨基酸(SID AA)水平对生长猪生长性能、养分表观消化率、氮平衡及粪便微生物区系的影响,以确定饲粮适宜CP和SID AA水平。选取72头体重为(25.41±1.93) kg的“杜×长×大”三元杂交猪,随机分为6组,每组6个重复,每个重复2头猪。其中,3个为不同CP水平组,饲粮CP水平分别为16%、15%和14%,SID AA水平均为100.0% NRC(2012)推荐量;其余3个为不同SID AA水平组,饲粮SID AA水平分别为75.0%、87.5%和112.5% NRC(2012)推荐量,CP水平均为14%。生长试验期30 d,结束后进行为期7 d的氮平衡试验。结果表明:1)当饲粮SID AA水平相同时,不同CP水平对生长性能无显著影响(P>0.05);但16% CP组干物质(DM)、总能(GE)和CP表观消化率显著低于其他2组(P<0.05)。当饲粮CP水平为14%时,随着SID AA水平的升高,平均日增重(ADG)、料重比(F/G)以及DM、GE、粗脂肪(EE)和CP表观消化率均呈线性和二次变化(P<0.05);且75.0% NRC组DM、GE、EE和CP表观消化率显著低于100.0%和112.5% NRC组(P<0.05)。2)随着饲粮CP水平的降低,粪氮排放量显著降低(P<0.05);14% CP组氮沉积率和氮表观生物学价值显著高于15%和16% CP组(P<0.05);16% CP组血清尿素氮含量显著高于14%和15% CP组(P<0.05)。当饲粮CP水平为14%时,随着SID AA水平的升高,氮沉积率和氮表观生物学价值呈二次变化(P<0.05),血清白蛋白含量呈线性升高(P<0.05)。3)粪便微生物区系分析发现,饲粮CP和SID AA水平对α和β多样性无显著影响(P>0.05);当饲粮CP水平为14%时,100.0% NRC组拟杆菌门(Bacteroidetes)和未分类韦荣氏菌科(unclassified Veillonellaceae)相对丰度显著高于75.0% NRC组(P<0.05)。综上所述,在本试验条件下,综合分析生长性能、养分表观消化率和氮平衡相关指标,25~50 kg生长猪多元化饲粮适宜CP水平为14%;此时,以ADG和EE表观消化率为评价指标,适宜SID AA水平为NRC(2012)推荐量的103.46%~105.06%;以F/G、氮沉积率和氮表观生物学价值为评价指标,适宜SID AA水平为NRC(2012)推荐量的98.50%~101.92%。综合以上指标,适宜SID AA水平平均值为NRC(2012)推荐量的101.65%。

本文引用格式

王怀鑫 , 郭东习 , 蒲俊宁 , 陈代文 , 郑萍 , 何军 , 余冰 . 生长猪多元化饲粮适宜粗蛋白质和标准回肠可消化氨基酸水平研究[J]. 动物营养学报, 2026 , 38(1) : 252 -266 . DOI: 10.12418/CJAN2026.020

Abstract

The purpose of this experiment was to investigate the effects of varying levels of crude protein (CP) and standard ileal digestible amino acids (SID AAs) in diversified diets on growth performance, nutrient apparent digestibilities, nitrogen balance and fecal microbiota in growing pigs, and to determine the optimal CP and SID AAs levels in diversified diets. Seventy-two Duroc×Landrace×Yorkshire crossbred pigs, with an average body weight of (25.41±1.93) kg, were randomly assigned to six groups, with six replicates per group and two pigs per replicate. The dietary treatments consisted of three CP levels (16%, 15% and 14%) paired with SID AAs levels at 100.0% of NRC (2012) recommendations, and three SID AAs levels [75.0%, 87.5% and 112.5% of NRC (2012) recommendations] with a constant CP level of 14%. The experimental period included a 30-day feeding trial followed by a 7-day nitrogen balance trial. The results showed as follows: 1) under consistent dietary SID AAs levels, different CP levels did not significantly affect the growth performance (P>0.05). However, the apparent digestibilities of dry matter (DM), gross energy (GE) and CP were significantly lower in 16% CP group compared to the other two groups (P<0.05). At dietary CP level of 14%, increasing SID AAs levels resulted in significant linear and quadratic changes in average daily gain (ADG), feed to gain ratio (F/G) as well as apparent digestibilities of DM, GE, ether extract (EE) and CP (P<0.05). Furthermore, the apparent digestibilities of DM, GE, EE and CP were significantly lower in 75.0% NRC group compared to 100.0% and 112.5% NRC groups (P<0.05). 2) As dietary CP level decreased, the fecal nitrogen excretion was significantly decreased (P<0.05); the nitrogen deposition rate and apparent biological value of nitrogen in 14% CP group were significantly higher than those in 15% and 16% CP groups (P<0.05); the serum urea nitrogen content in 16% CP group was significantly higher than that in 14% and 15% CP groups (P<0.05). At dietary CP level of 14%, increasing SID AAs levels resulted in quadratic changes both in nitrogen deposition rate and apparent biological value of nitrogen (P<0.05), and the serum albumin content was increased linearly (P<0.05). 3) The fecal microbiota analysis revealed that dietary CP and SID AAs levels did not significantly influence α and β diversity (P>0.05). However, at dietary CP level of 14%, the relative abundances of Bacteroidetes and unclassified Veillonellaceae in 100.0% NRC group were significantly higher compared to 75.0% NRC group (P<0.05). In conclusion, under the conditions of this experiment, based on evaluations of growth performance, nutrient apparent digestibility and nitrogen balance related parameters, the optimal dietary CP level for 25 to 50 kg growing pigs was determined to be approximately 14% in a diversified diet. At this CP level, the appropriate SID AAs levels were identified as follows: when using ADG and EE apparent digestibility as indicators, the optimal SID AAs levels ranged from 103.46% to 105.06% of NRC (2012) recommendations; when considering F/G, nitrogen deposition rate, and apparent biological value of nitrogen as indicators, the optimal SID AAs levels ranged from 98.50% to 101.92% of NRC (2012) recommendations. The overall average optimal SID AAs level was approximately 101.65% of NRC (2012) recommendations.

我国是生猪养殖大国,生猪饲粮结构以玉米-豆粕型为主。目前,我国60%左右的蛋白质饲料和近30%的能量饲料依赖进口,其中大豆的对外依存度超过80%,这对我国饲料粮安全构成严峻挑战[1]。同时,饲料成本在猪肉生产成本中占据最大比重,而作为主要原料的玉米和豆粕价格却易受国际形势影响,导致饲料成本不易控制[2]。此外,生猪养殖过程中的粪尿氮排放量较高,约占畜禽粪尿氮排放总量的1/3[3],对环境造成显著压力。上述因素共同制约着我国生猪养殖业的可持续发展。近年研究表明,采用低蛋白质饲粮并补充限制性氨基酸,可在降低养殖成本的同时有效减少氮排放[4-5]。同时,我国拥有丰富的非常规饲料资源,但目前其在生猪养殖中的应用仍较为有限。因此,如果采用低蛋白质饲粮配制技术并结合多种非常规饲料原料的应用,配制粗蛋白质(CP)含量较低且氨基酸平衡的多元化饲粮,将对实现生猪养殖的节粮、降本和减排具有重要意义。
团体标准《生猪低蛋白低豆粕多元化日粮生产技术规范》(T/CFIAS 8001—2022)为开发原料多样化、营养平衡的饲粮提供了技术指导[6]。在多元化饲粮中,常使用非常规原料替代玉米和豆粕,这可能导致饲粮中抗营养因子含量增加,影响养分的消化、吸收和代谢,从而对猪的生长发育产生潜在影响[7]。与此同时,Abdallah等[8]研究发现,饲粮蛋白质来源可影响氨基酸在消化道的释放模式,进而影响其吸收和利用效率。在低蛋白质条件下,外源性晶体氨基酸添加比例上升,会改变饲粮氨基酸的吸收和利用模式[9]。此外,提高氨基酸利用效率还需匹配适宜的能量供应模式。当淀粉消化所产生的葡萄糖与饲粮氨基酸在释放量和时间上相对平衡时,蛋白质沉积可以达到最大化[10]。机体对养分的利用效率受饲粮中淀粉组成变化的影响,该效应主要通过调控葡萄糖的释放速率来实现[11]。因此,在多元化饲粮中,由于使用了多种非常规能量原料,其不同组分所导致的葡萄糖释放速率差异,可能进一步放大对饲粮氮利用效率的影响。综上可知,多元化饲粮模式可能会改变饲粮氨基酸和葡萄糖在动物消化道内的释放和吸收过程,从而影响整体养分的利用和沉积效率。鉴于上述因素,在传统玉米-豆粕型饲粮条件下研究获得的营养需要量可能不完全适用于多元化饲粮,因此有必要进一步探究其适宜的CP和氨基酸需要量。
因此,本试验旨在通过探究不同CP和标准回肠可消化氨基酸(SID AA)水平的多元化饲粮对生长猪生长性能、养分表观消化率、氮平衡及粪便微生物区系的影响,以确定生长猪在多元化饲粮条件下适宜的饲粮CP和SID AA水平,为进一步完善猪低蛋白质、低豆粕多元化饲粮技术提供参考。

1 材料与方法

1.1 试验设计

选取72头体重为(25.41±1.93) kg的“杜×长×大”三元杂交猪,按体重相近、公母各占1/2的原则随机分为6组,每组6个重复,每个重复2头猪。其中,3个为不同CP水平组,饲粮CP水平分别为16%、15%和14%,SID AA水平均为100.0% NRC(2012)推荐量;其余3个为不同SID AA水平组,饲粮SID AA水平分别为75.0%、87.5%和112.5% NRC(2012)推荐量,CP水平均为14%;同时,6组饲粮净能(NE)计算值保持一致。生长试验期30 d,结束后将每个组的阉公猪转至代谢笼,进行为期7 d的氮平衡试验(含3 d适应期和4 d全收粪尿期)。

1.2 试验饲粮

试验饲粮采用玉米、小麦、碎米、小麦麸、米糠、菜籽粕、棉籽粕和豆粕等为大宗原料,应用SID AA和NE体系配制。除CP和SID AA水平外,各组饲粮其他营养水平一致且均满足NRC(2012)生长猪25~50 kg阶段推荐量,饲粮组成及营养水平见表1
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis) %

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels1)
16%
(100.0%)
15%
(100.0%)
14%
(75.0%)
14%
(87.5%)
14%
(100.0%)
14%
(112.5%)
原料Ingredients
玉米Corn 56.61 60.18 63.75 63.75 63.75 63.78
小麦Wheat 8.00 8.00 8.00 8.00 8.00 8.00
碎米Broken rice 6.00 6.00 6.00 6.00 6.00 6.00
小麦麸Wheat bran 1.00 1.01 0.85 0.94 1.02 1.10
米糠Rice husk 3.51 3.16 2.35 2.58 2.82 3.05
菜籽粕Rapeseed meal 4.00 4.00 4.00 4.00 4.00 4.00
棉籽粕Cottonseed meal 3.50 3.50 3.50 3.50 3.50 3.50
豆粕Soybean meal 11.88 8.61 7.32 6.33 5.33 4.30
大豆油Soybean oil 1.78 1.51 0.88 1.05 1.23 1.40
L-赖氨酸盐酸盐L-Lys·HCl 0.56 0.66 0.39 0.57 0.75 0.94
DL-蛋氨酸DL-Met 0.07 0.08 0.01 0.05 0.09 0.13
L-苏氨酸L-Thr 0.16 0.20 0.06 0.16 0.24 0.33
L-色氨酸L-Trp 0.04 0.05 0.02 0.05 0.07 0.10
L-缬氨酸L-Val 0.08 0.13 0.09 0.18 0.28
L-异亮氨酸L-Ile 0.03 0.08 0.06 0.14 0.21
石粉Limestone 0.62 0.63 0.64 0.64 0.65 0.65
氯化胆碱Choline chloride 0.15 0.15 0.15 0.15 0.15 0.15
磷酸氢钙CaHPO4 1.18 1.22 1.25 1.25 1.25 1.25
氯化钠NaCl 0.30 0.30 0.30 0.30 0.30 0.30
矿物质预混料Mineral premix2) 0.20 0.20 0.20 0.20 0.20 0.20
维生素预混料Vitamin premix3) 0.03 0.03 0.03 0.03 0.03 0.03
酸化剂Acidifier 0.26 0.26 0.26 0.26 0.26 0.26
复合酶Compound enzyme4) 0.04 0.04 0.04 0.04 0.04 0.04
合计Total 100.00 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels5)
粗蛋白质CP 16.00(15.78) 15.00(14.69) 14.00(13.46) 14.00(13.46) 14.00(13.48) 14.00(13.50)
净能NE/(MJ/kg) 10.26 10.26 10.26 10.26 10.26 10.26
钙Ca 0.66 0.66 0.66 0.66 0.66 0.66
标准全肠道可消化磷STTD 0.31 0.31 0.31 0.31 0.31 0.31
标准回肠可消化氨基酸SID AA
标准回肠可消化赖氨酸SID Lys 0.98 0.98 0.74 0.86 0.98 1.10
标准回肠可消化蛋氨酸SID Met 0.28 0.28 0.21 0.25 0.28 0.32
标准回肠可消化苏氨酸SID Thr 0.59 0.59 0.44 0.52 0.59 0.66
标准回肠可消化色氨酸SID Trp 0.17 0.17 0.13 0.15 0.17 0.19
标准回肠可消化缬氨酸SID Val 0.64 0.64 0.50 0.56 0.64 0.72
标准回肠可消化异亮氨酸SID Ile 0.51 0.51 0.41 0.45 0.51 0.57

1)14%、15%和16%分别表示饲粮CP水平,75.0%、87.5%、100.0%和112.5%分别表示饲粮SID AA水平为75.0%、87.5%、100.0%和112.5% NRC(2012)推荐量。表2表9同。14%, 15% and 16% represented dietary CP levels, and 75.0%, 87.5%, 100.0% and 112.5% represented that dietary SID AA levels were 75.0%, 87.5%, 100.0% and 112.5% of NRC (2012) recommendations, respectively. The same as Table 2 to Table 9.

2)矿物质预混料为每千克饲粮提供 The mineral premix provided the following per kg of diets:Fe (FeSO4·H2O) 70 mg,Cu (CuSO4·5H2O) 4.50 mg,Zn (ZnSO4·H2O) 70 mg,Mn (MnSO4·H2O) 3 mg,I (KI) 0.14 mg,Se (Na2SeO3) 0.30 mg。

3)维生素预混料为每千克饲粮提供 The vitamin premix provided the following per kg of diets:VA 15 000 IU,VD3 5 000 IU,VE 40.0 IU,VK3 5.0 mg,VB1 5.0 mg,VB2 12.5 mg,VB6 6.0 mg,VB12 0.6 mg,烟酰胺 nicotinamide 50.0 mg,泛酸 pantothenic acid 25.0 mg,叶酸 folic acid 2.5 mg,生物素 biotin 2.5 mg。

4)复合酶组成:木聚糖酶活性≥32 000 U/g,β-葡聚糖酶活性≥3 500 U/g,β-甘露聚糖酶活性≥1 000 U/g,纤维素酶活性≥1 000 U/g,淀粉酶活性≥3 500 U/g,蛋白酶活性≥8 000 U/g,载体为玉米淀粉,水分含量≤10.0%。Composition of compound enzymes: xylanase activity≥32 000 U/g, β-glucanase activity≥3 500 U/g, β-mannanase activity≥1 000 U/g, cellulase activity≥1 000 U/g, amylase activity≥3 500 U/g, protease activity≥8 000 U/g, carrier was corn starch, and moisture content≤10.0%.

5)粗蛋白质括号中的数据为实测值;其余指标为计算值[根据《中国饲料成分及营养价值表(2020年第31版)》计算]。Data of CP in parentheses were measured values, while the others were calculated values according to Tables of Feed Composition and Nutritive Values in China (31st edition, 2020).

1.3 饲养管理

本研究中的所有动物试验方案均获得四川农业大学动物福利和使用委员会的批准(许可证号:CD-SYXK-2017-015)。试验在四川农业大学动物营养研究所科研基地进行。日常管理参照动物营养研究所动物饲养管理规范操作。每天饲喂3次(08:00、14:00和20:00各1次),每次以试验猪吃饱后料槽有适量余料为度,自由饮水,每天结算当日采食量。于试验第31天早上对试验猪进行空腹称重和前腔静脉采血;然后,将每个组的阉公猪(6头)转入代谢笼进行氮平衡试验。

1.4 样品采集

1.4.1 饲粮样品

饲粮样品参照《饲料采样》(GB/T 14699—2023)[12]要求,每组取250 g左右放入-20 ℃冰箱保存。

1.4.2 粪尿样品

于试验第31天早上无菌采集试验猪直肠粪便20 g左右分装于冻存管中,液氮速冻后置于-80 ℃超低温冰箱保存待测。
氮平衡试验期间,采用全收粪尿法收集粪尿样品。每天收集全部粪便于样品袋中,并加入粪便重量10%的硫酸(10%)固氮以及2~3滴甲苯防腐,放入-20 ℃冰箱保存。记录每头猪每天的排尿量,并取总尿量10%的样品装入塑料瓶,加入硫酸(10%)固氮以及2~3滴甲苯防腐,放入-20 ℃冰箱保存。收集期结束后,将每头猪4 d的粪便样品混合均匀后取样于65 ℃烘箱中烘干,回潮24 h至恒重,粉碎过40目筛,保存于-20 ℃冰箱待测;将4 d尿液样品混合后取100 mL装入塑料瓶,保存于-20 ℃冰箱待测。

1.4.3 血清样品

饲养试验结束时,即试验第31天早上,每重复选取1头体重接近该组平均体重的试验猪(禁食12 h),从前腔静脉采血15 mL,室温环境下静置30 min后1 100×g离心15 min,将所得血清分装入EP管中,并放置于-20 ℃冰箱保存,以备后续测定。

1.5 测定指标及方法

1.5.1 生长性能

分别于试验第1天和第31天早上对禁食12 h后的试验猪进行称重,试验期每天记录饲粮消耗量,计算平均日采食量(ADFI)、平均日增重(ADG)和料重比(F/G)。

1.5.2 养分表观消化率

常规养分分析测定在四川农业大学动物营养公共实验室进行。饲粮和粪便样品中水分含量参照GB/T 6435—2014中方法进行测定,然后计算干物质(DM)含量;粗脂肪(EE)含量参照GB/T 6433—2006采用索氏抽提法进行测定;CP含量参照GB/T 6432—2018中方法采用全自动凯氏定氮仪(BUCHIK,瑞士)进行测定;总能(GE)参照ISO 9831:1998中方法采用全自动氧弹式测热仪(Parr6400,Instrument Co.,美国)进行测定。养分表观消化率计算公式如下:
某养分表观消化率(%)=[(饲粮中该养分含量×
采食量)-(粪便中该养分含量×排粪量)/
(饲粮中该养分含量×采食量)]×100。

1.5.3 血清氮代谢指标

血清尿素氮(urea nitrogen,UN)含量采用脲酶法测定,总蛋白(total protein,TP)含量采用考马斯亮蓝法测定,白蛋白(albumin,ALB)含量采用溴甲酚绿比色法测定。试剂盒均购于南京建成生物工程研究所。

1.5.4 氮平衡指标

饲粮、粪便和尿液样本中的氮含量参照GB/T 6432—2018中方法测定。根据采食量、粪便和尿液排放量及各自的氮含量,计算摄入氮、粪氮和尿氮,并按以下公式计算氮平衡相关指标:
沉积氮(g/d)=摄入氮-(粪氮+尿氮);
氮沉积率(%)=(沉积氮/摄入氮)×100;
氮表观生物学价值(%)=[沉积氮/
(摄入氮-粪氮)]×100。

1.5.5 粪便微生物区系

根据生长性能、血清氮代谢和氮平衡指标结果,本试验选取16% CP(SID AA为100.0% NRC)组、14% CP(SID AA为75.0% NRC)组和14% CP(SID AA为100.0% NRC)组试验猪粪便样品,委托成都罗宁生物科技有限公司进行16S rRNA基因扩增子高通量测序分析。根据Ma等[13]推荐的方法从直肠粪便中提取微生物总DNA后,用0.8%的琼脂糖凝胶检测基因组DNA的完整性,并采用PicoGreen染料法测定核酸浓度。采用特异性引物515F(5'-GTGYCAGCMGCCGCGGTAA-3')和806R(5'-GGACTACNVGGGTWTCTAAT-3')对细菌V4区域进行扩增,用2%的琼脂凝胶电泳纯化后建库,并质检。采用Illumina NovaSeq 6000 Reagent Kit V1.5测序试剂盒测序,测序策略为PE250测序模式。调用DADA2对原始数据去噪[14],获得特征信息。对每个扩增子序列变异(ASV)作物种注释,得到对应的物种信息和基于物种的相对丰度分布情况;注释时采用QIIME 2在silva-138-99[15]代表序列数据库训练分类器,再使用该分类器注释。基于ASV特征表进行相对丰度和多样性分析。

1.6 数据处理和统计分析

试验数据采用Excel 2021进行整理,相同SID AA(100.0% NRC)不同CP水平组和相同CP(14%)不同SID AA水平组分别采用SPSS 27.0软件进行单因素方差分析(one-way ANOVA),差异显著时进行Duncan氏多重比较检验,P<0.05视为差异显著,0.05≤P≤0.10视为差异有显著趋势。同时,对相同CP不同SID AA水平组进行线性和二次回归分析。结果用“平均值±标准差(mean±SD)”形式表示。

2 结果与分析

2.1 多元化饲粮不同CP和SID AA水平对生长猪生长性能的影响

表2可知,当饲粮SID AA水平相同(100.0% NRC)时,不同CP水平对生长猪生长性能无显著影响(P>0.05),但14% CP组ADFI和ADG数值上均高于15%和16% CP组。当饲粮CP水平相同(14%)时,不同SID AA水平对ADFI无显著影响(P>0.05);但随着饲粮SID AA水平的升高,ADG和F/G均呈线性和二次变化(P<0.05)。
表2 多元化饲粮不同CP和SID AA水平对生长猪生长性能的影响

Table 2 Effects of different CP and SID AA levels in diversified diets on growth performance in growing pigs

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels PP-value
16%(100.0%) 15%(100.0%) 14%(75.0%) 14%(87.5%) 14%(100.0%) 14%(112.5%) P1 P2 P3 P4
初重IBW/kg 25.41±1.99 25.40±1.97 25.45±2.06 25.39±2.24 25.40±2.10 25.40±2.14 1.000 1.000 0.970 0.999
末重FBW/kg 51.77±2.53 52.59±1.78 49.97±3.94 51.28±3.83 52.98±3.33 52.18±3.76 0.712 0.543 0.217 0.368
平均日采食量ADFI/(kg/d) 1.83±0.21 1.84±0.08 1.89±0.15 1.88±0.18 1.93±0.14 1.90±0.16 0.495 0.965 0.813 0.963
平均日增重ADG/(kg/d) 0.88±0.06 0.91±0.06 0.82±0.08 0.86±0.06 0.92±0.06 0.89±0.06 0.488 0.067 0.027 0.036
料重比F/G 2.08±0.14 2.04±0.12 2.32±0.14a 2.18±0.09b 2.10±0.08b 2.13±0.15b 0.704 0.018 0.008 0.006

P1表示相同SID AA(100.0% NRC)不同CP水平组间P值,差异显著性采用肩标字母x、y和z表示,不同字母表示差异显著(P<0.05);P2表示相同CP(14%)不同SID AA水平组间P值,差异显著性采用肩标字母a、b和c表示,不同字母表示差异显著(P<0.05);P3表示在14% CP下SID AA水平线性效应P值;P4表示在14% CP下SID AA水平二次效应P值。下表同。

P1 represented P-value between groups with the same SID AA (100.0% NRC) but different CP levels, the significance of difference was indicated by shoulder script letters x, y and z, and different letters indicated significant difference (P<0.05). P2 represents P-value between groups with the same CP (14%) but different SID AA levels, the significance of difference was indicated by shoulder script letters a, b and c, and different letters indicated significant difference (P<0.05). P3 represented P-value of linear effect of SID AA level at 14% CP, and P4 represented P-value of quadratic effect of SID AA level at 14% CP. The same as below.

2.2 多元化饲粮不同CP和SID AA水平对生长猪养分表观消化率的影响

表3可知,当饲粮SID AA水平相同时,14%和15% CP组DM、GE和CP表观消化率均显著高于16% CP组(P<0.05),且14% CP组DM表观消化率显著高于15% CP组(P<0.05);各组间EE表观消化率无显著差异(P>0.05)。当饲粮CP水平相同时,随着饲粮SID AA水平的升高,DM、GE、EE和CP表观消化率均呈线性和二次变化(P<0.05);其中,100.0%和112.5% NRC组DM和GE表观消化率显著高于75.0%和87.5% NRC组(P<0.05),75.0% NRC组EE和CP表观消化率显著低于其他3组(P<0.05),同时87.5% NRC组CP表观消化率显著低于112.5% NRC组(P<0.05)。
表3 多元化饲粮不同CP和SID AA水平对生长猪养分表观消化率的影响

Table 3 Effects of different CP and SID AA levels in diversified diets on nutrient apparent digestibilities in growing pigs %

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels PP-value
16%(100.0%) 15%(100.0%) 14%(75.0%) 14%(87.5%) 14%(100.0%) 14%(112.5%) P1 P2 P3 P4
干物质DM 85.16±0.42z 86.28±0.75y 86.33±0.20b 85.84±0.53b 87.32±0.69ax 87.71±0.47a <0.001 <0.001 <0.001 <0.001
总能GE 85.86±0.31y 87.04±0.77x 86.86±0.13b 86.61±0.44b 87.60±0.73ax 88.42±0.38a <0.001 <0.001 <0.001 <0.001
粗脂肪EE 74.72±0.12 73.93±2.61 69.44±1.50b 72.65±0.61a 74.72±3.03a 74.28±1.04a 0.810 <0.001 <0.001 <0.001
粗蛋白质CP 80.06±1.30y 81.57±0.98x 79.31±1.40c 81.20±1.09b 82.04±0.71abx 83.09±0.80a 0.012 <0.001 <0.001 <0.001

2.3 多元化饲粮不同CP和SID AA水平对生长猪血清氮代谢指标的影响

表4可知,当饲粮SID AA水平相同时,16% CP组生长猪血清UN含量显著高于15%和14% CP组(P<0.05);各组间血清TP和ALB含量无显著差异(P>0.05)。当饲粮CP水平相同时,各组间血清UN和TP含量无显著差异(P>0.05);但随着饲粮SID AA水平的升高,血清ALB含量有升高的趋势(P=0.092),且呈线性和二次变化(P<0.05)。
表4 多元化饲粮不同CP和SID AA水平对生长猪血清氮代谢指标的影响

Table 4 Effects of different CP and SID AA levels in diversified diets on serum nitrogen metabolism indices in growing pigs

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels PP-value
16%(100.0%) 15%(100.0%) 14%(75.0%) 14%(87.5%) 14%(100.0%) 14%(112.5%) P1 P2 P3 P4
尿素氮UN/(mmol/L) 6.26±0.91x 4.89±0.90y 4.32±0.81 3.98±0.34 4.24±1.02y 4.87±1.67 0.007 0.554 0.521 0.520
总蛋白TP/(g/L) 50.09±2.29 51.03±2.78 51.72±1.93 53.52±1.71 51.20±1.75 52.84±2.24 0.676 0.187 0.651 0.854
白蛋白ALB/(g/L) 29.36±0.95 28.73±1.28 27.18±2.12 27.98±0.99 28.83±1.83 29.71±1.65 0.711 0.092 0.009 0.043

2.4 多元化饲粮不同CP和SID AA水平对生长猪氮平衡指标的影响

表5可知,当饲粮SID AA水平相同时,随着饲粮CP水平的降低,粪氮排放量显著降低(P<0.05),摄入氮(P=0.065)和总氮排放量(P=0.086)有降低趋势;15%和16% CP组氮沉积率和氮表观生物学价值显著低于14% CP组(P<0.05)。当饲粮CP水平相同时,各组间摄入氮、尿氮和总氮排放量以及沉积氮均无显著差异(P>0.05),但随着饲粮SID AA水平的升高,粪氮排放量有降低趋势(P=0.095);同时,随着饲粮SID AA水平的升高,氮沉积率呈线性和二次变化(P<0.05),氮表观生物学价值呈先升高后降低的二次变化(P<0.05)。
表5 多元化饲粮不同CP和SID AA水平对生长猪氮平衡指标的影响

Table 5 Effects of different CP and SID AA levels in diversified diets on nitrogen balance indices in growing pigs

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels PP-value
16%(100.0%) 15%(100.0%) 14%(75.0%) 14%(87.5%) 14%(100.0%) 14%(112.5%) P1 P2 P3 P4
摄入氮Nitrogen intake/(g/d) 55.89±4.57 53.20±4.16 46.32±4.20 47.20±3.46 49.56±4.10 48.07±3.89 0.065 0.539 0.503 0.804
粪氮Fecal nitrogen/(g/d) 11.11±0.58x 9.80±0.91y 9.59±1.10 9.23±1.26 8.90±0.44z 8.14±0.89 <0.001 0.095 0.005 0.041
尿氮Urinary nitrogen/(g/d) 16.85±3.84 15.81±3.29 14.70±2.44 12.24±1.73 13.07±4.81 14.48±3.97 0.276 0.570 0.790 0.034
总氮排放量
Total nitrogen emission/(g/d)
27.95±3.85 25.61±4.07 24.29±2.04 21.47±2.48 21.96±5.02 22.61±4.01 0.086 0.560 0.203 0.063
沉积氮
Nitrogen deposition/(g/d)
27.93±3.76 27.59±1.87 22.03±4.50 25.73±2.28 27.60±3.77 25.46±4.65 0.979 0.131 0.046 0.039
氮沉积率
Nitrogen deposition rate/%
52.12±1.82y 53.77±1.23y 49.80±2.37c 53.40±2.17b 58.98±2.12ax 55.72±4.86b <0.001 0.002 0.019 0.002
氮表观生物学价值
Apparent biological value
of nitrogen/%
65.27±2.50y 65.80±1.74y 63.07±2.38c 66.59±2.21bc 72.05±2.94ax 67.18±5.88b 0.001 0.009 0.160 0.009

2.5 多元化饲粮不同CP和SID AA水平对生长猪粪便微生物区系的影响

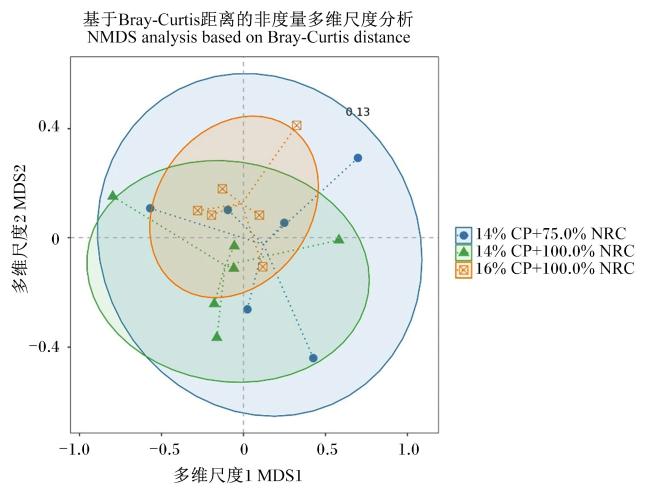
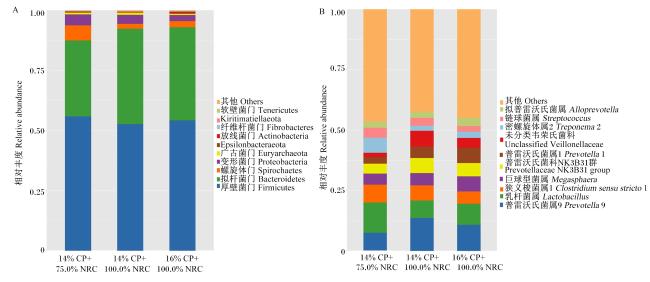
表6可知,饲粮不同CP和SID AA水平对生长猪粪便微生物区系α多样性无显著影响(P>0.05)。结合β多样性分析(图1)发现,3组间粪便微生物聚类重叠度较高,说明饲粮不同CP和SID AA水平对β多样性无显著影响(P>0.05)。如图2-A所示,3组粪便微生物群落优势菌门均为厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidetes);由表7可知,当饲粮SID AA水平相同时,不同CP水平对门水平物种相对丰度无显著影响(P>0.05);当饲粮CP水平相同时,100.0% NRC组拟杆菌门相对丰度显著高于75.0% NRC组(P<0.05)。如图2-B所示,3组粪便微生物群落优势菌属主要为普雷沃氏菌属9(Prevotella 9)、乳杆菌属(Lactobacillus)和狭义梭菌属1(Clostridium sensu stricto 1)等;由表8可知,饲粮不同CP水平对属水平物种相对丰度无显著影响(P>0.05);当饲粮CP水平相同时,100.0% NRC组未分类韦荣氏菌科(unclassified Veillonellaceae)相对丰度显著高于75.0% NRC组(P<0.05)。
表6 生长猪粪便微生物区系α多样性分析

Table 6 α diversity analysis of fecal microbiota in growing pigs

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels PP-value
16%(100.0%) 14%(75.0%) 14%(100.0%) P1 P2
ACE指数ACE index 472.95±84.96 426.97±70.96 412.89±100.78 0.522 0.873
Chao1指数Chao1 index 473.48±85.16 429.44±69.00 412.99±100.93 0.522 1.000
Simpson指数Simpson index 0.98±0.01 0.96±0.01 0.97±0.01 0.628 0.264
Shannon指数Shannon index 4.75±0.28 4.44±0.39 4.50±0.41 0.423 0.749
图1 生长猪粪便微生物区系β多样性分析

14% CP+75.0% NRC表示饲粮CP水平为14%,SID AA水平为75.0% NRC(2012)推荐量;14% CP+100.0% NRC表示饲粮CP水平为14%,SID AA水平为100.0% NRC(2012)推荐量;16% CP+100.0% NRC表示饲粮CP水平为16%,SID AA水平为100.0% NRC(2012)推荐量。图2同。

Fig.1 β diversity analysis of fecal microbiota in growing pigs

14% CP+75.0% NRC indicated that dietary CP level was 14% and SID AA level was 75.0% of NRC (2012) recommendations, 14% CP+100.0% NRC indicated that dietary CP level was 14% and SID AA level was 100.0% of NRC (2012) recommendations, and 16% CP+100.0% NRC indicated that dietary CP level was 16% and SID AA level was 100.0% of NRC (2012) recommendations. The same as Fig.2.

图2 生长猪粪便微生物区系在门(A)和属(B)水平上的组成

Fig.2 Composition of fecal microbiota in growing pigs at phylum (A) and genus (B) levels

表7 生长猪粪便微生物区系在门水平上相对丰度

Table 7 Relative abundance of fecal microbiota in growing pigs at phylum level %

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels PP-value
16%(100.0%) 14%(75.0%) 14%(100.0%) P1 P2
厚壁菌门Firmicutes 54.19±7.50 55.85±9.39 52.59±5.69 1.000 0.522
拟杆菌门Bacteroidetes 38.71±5.88 31.59±4.81b 39.70±4.43a 0.873 0.025
螺旋体门Spirochaetes 2.59±1.63 6.26±6.70 2.07±2.33 0.421 0.262
变形菌门Proteobacteria 2.57±1.58 4.55±6.95 3.73±3.21 0.522 1.000
广古菌门Euryarchaeota 0.50±0.33 0.72±0.47 0.95±0.83 0.575 0.749
Epsilonbacteraeota 0.37±0.30 0.45±0.37 0.21±0.20 0.261 0.204
放线菌门Actinobacteria 0.48±0.47 0.10±0.02 0.14±0.09 0.149 0.377
纤维杆菌门Fibrobacteres 0.15±0.07 0.12±0.06 0.13±0.11 0.520 0.874
Kiritimatiellaeota 0.09±0.15 0.12±0.14 0.16±0.16 0.813 0.630
软壁菌门Tenericutes 0.09±0.04 0.07±0.05 0.06±0.06 0.260 0.518
表8 生长猪粪便微生物区系在属水平上相对丰度

Table 8 Relative abundance of fecal microbiota in growing pigs at genus level %

项目
Items
饲粮CP和SID AA水平Dietary CP and SID AA levels PP-value
16%(100.0%) 14%(75.0%) 14%(100.0%) P1 P2
普雷沃氏菌属9 Prevotella 9 10.80±5.55 7.51±8.99 13.65±9.17 0.337 0.109
乳杆菌属Lactobacillus 8.72±8.02 12.52±7.45 7.24±5.25 0.873 0.150
狭义梭菌属1 Clostridium sensu stricto 1 5.05±1.76 7.41±4.38 6.25±2.61 0.262 0.873
巨球型菌属Megasphaera 6.29±4.32 4.56±4.53 5.10±2.20 0.749 0.631
普雷沃氏菌科NK3B31群
Prevotellaceae NK3B31 group
5.46±1.75 4.11±2.54 6.24±3.24 0.423 0.262
普雷沃氏菌属1 Prevotella 1 6.40±1.71 2.66±0.88 4.75±3.55 0.262 0.423
未分类韦荣氏菌科
Unclassified Veillonellaceae
4.04±3.30 1.83±2.75b 6.51±2.13a 0.200 0.016
密螺旋体属2 Treponema 2 2.59±1.63 6.26±6.70 2.07±2.33 0.418 0.262
链球菌属Streptococcus 2.29±0.69 4.10±4.04 3.24±1.95 0.749 0.873
拟普雷沃氏菌属Alloprevotella 3.46±1.31 2.67±1.78 2.65±0.95 0.625 1.000

2.6 生长猪低蛋白质多元化饲粮适宜SID AA水平

本试验将与饲粮SID AA水平呈显著量效变化的生长性能、EE表观消化率和氮代谢等相关指标进行二次回归分析,结果见表9。根据回归方程可知,以ADG和F/G为评价指标,生长猪低蛋白质多元化饲粮适宜SID AA水平分别为103.46%和98.50% NRC(2012)推荐量,此时最高ADG和最低F/G分别为907.58 g/d和2.23;以EE表观消化率为评价指标,饲粮适宜SID AA水平为105.06% NRC(2012)推荐量,此时最高EE表观消化率为74.63%;以氮沉积率和氮表观生物学价值为评价指标,饲粮适宜SID AA水平分别为101.92%和99.29% NRC(2012)推荐量,此时最高氮沉积率和最高氮表观生物学价值分别为57.03%和70.54%。
表9 饲粮SID AA水平与生长猪生长性能、养分表观消化率和氮平衡指标回归分析

Table 9 Regression analysis of dietary SID AA level with growth performance, apparent nutrient digestibility and nitrogen balance indices in growing pigs

项目
Items
回归方程
Regression equations
P
P-value
决定系数
R2
适宜SID
AA水平
Optimal SID
AA level/%
NRC
指标极值
Index
extremum
生长性能Growth performance
平均日增重ADG/(g/d) y=-0.117 3x2+24.271 0x-347.920 0 0.036 0.92 103.46 907.58
料重比F/G y=0.000 3x2-0.059 1x+5.142 5 0.006 0.99 98.50 2.23
养分表观消化率Nutrient apparent digestibility/%
粗脂肪EE y=-584×10-5x2+1.227 1x+10.171 0 <0.001 0.99 105.06 74.63
氮平衡指标Nitrogen balance indices/%
氮沉积率Nitrogen deposition rate y=-0.011 0x2+2.242 3x-57.237 0 0.002 0.87 101.92 57.03
氮表观生物学价值
Apparent biological value of nitrogen
y=-0.013 4x2+2.661 0x-61.563 0 0.009 0.82 99.29 70.54

3 讨论

3.1 多元化饲粮不同CP和SID AA水平对生长猪生长性能的影响

前人研究发现,适度降低饲粮CP水平对生长猪生长性能无显著影响。于树龙[16]、张俊杰等[17]以及Wang等[18]分别将饲粮CP水平从17%、16%和16%降低3、2和4个百分点并补充限制性氨基酸,均未发现对猪生长性能产生负面影响。本试验同样发现,在保证饲粮SID AA水平满足NRC(2012)推荐量时,将饲粮CP水平从16%降至15%和14%均不会对生长猪生长性能造成不利影响,且其中14% CP组ADFI和ADG数值最高,ADFI甚至高出近100 g/d。这一结果可能源于在多元化饲粮背景下,饲粮CP水平降低2个百分点并补充SID AA至NRC推荐量时并不能完全满足该阶段猪的氮需要,从而导致猪只试图通过提高采食量来补偿蛋白质摄入量的不足,这种现象被称为“蛋白质杠杆”效应[19]。同时,也有研究发现,适量降低饲粮CP水平并补充晶体氨基酸对猪的生长性能有积极影响,其机制可能与低蛋白质饲粮调节猪肠道微生物组成有关[20-21]
与此同时,降低饲粮CP水平并补充不同水平氨基酸对生长猪生长性能有不同影响。Li等[22]研究发现,在低CP饲粮中补充1倍的支链氨基酸(branched-chain amino acids,BCAAs)可显著改善生长猪的生长性能,并促进氨基酸转运蛋白及能量代谢相关调控因子的表达;然而,补充2倍BCAAs虽仍具有促进效应,但效果不及1倍水平补充组,且氨基酸转运蛋白的表达水平降低,提示过量补充BCAAs可能反而不利于氨基酸的吸收效率。Zheng等[23]研究表明,当饲粮CP水平从19.5%降至16.7%时,若同时降低BCAAs水平会导致猪ADFI、ADG和增重耗料比显著降低。本试验结果显示,当饲粮CP水平为14%时,生长猪ADG和F/G与饲粮SID AA水平呈显著二次关系,并分别在NRC(2012)推荐量的103.46%与98.50%时达到最优,说明多元化饲粮的适宜SID AA水平与玉米-豆粕型饲粮存在差异。该差异可能源于多元化饲粮组成的复杂性导致饲粮氨基酸和葡萄糖的释放模式发生变化,进而改变了葡萄糖通过哺乳动物雷帕霉素靶蛋白(mTOR)通路[24],以及刺激胰岛素和瘦素分泌[25-26]等途径对机体蛋白质合成的影响,最终影响了生长性能。

3.2 多元化饲粮不同CP和SID AA水平对生长猪养分表观消化率的影响

于树龙[16]研究表明,降低饲粮CP水平可显著提高生长猪对饲粮GE和DM的表观消化率。窦勇等[27]研究发现,降低饲粮CP水平能显著提高仔猪对CP的表观消化率,同时降低氮排放。Kim等[28]研究也指出,生长阶段饲喂低蛋白质饲粮的猪对CP的表观消化率显著高于饲喂高蛋白质饲粮的猪。本研究结果与上述报道一致,即降低饲粮CP水平显著提高了生长猪对饲粮CP、GE和DM的表观消化率。然而,本试验发现,不同CP水平组间EE表观消化率无显著差异,这可能是因为脂肪消化主要依赖于胆汁酸的乳化作用和脂肪酶的水解作用,而蛋白质水平对其影响较小[29]
与此同时,本试验还发现,当饲粮CP水平为14%时,随着饲粮SID AA水平的升高,DM、GE、EE和CP表观消化率均显著提高。Katsumata等[30]研究发现,赖氨酸可通过调节某些功能性氨基酸的吸收或影响内分泌激素释放,进而参与养分的消化、吸收和代谢过程的调控。适宜的赖氨酸水平有助于动物对饲粮养分的消化。研究显示,适当提高饲粮赖氨酸水平可以改善生长育肥猪对饲粮的养分表观消化率[31]。本试验发现,为实现更优的养分表观消化率,所需饲粮适宜SID AA水平略高于玉米-豆粕型饲粮。这一差异原因可能在于,饲粮SID AA不足会导致消化酶合成减少或活性降低,进而影响养分的消化。此外,本试验所使用的多元化饲粮原料中可能含有较多胰蛋白酶抑制剂等抗营养因子,这些成分会影响胰蛋白酶、胃蛋白酶和淀粉酶等消化酶的活性;同时,小麦、菜籽粕等原料中的植酸易与镁、锌等金属离子结合形成络合物,削弱了这些离子对消化酶的激活作用[32]。另外,非常规饲料原料的蛋白质品质通常较低,也会对养分消化产生不利影响[33]。因此,需要适当提高饲粮SID AA水平,以弥补原料特性带来的消化率差异。

3.3 多元化饲粮不同CP和SID AA水平对生长猪氮代谢的影响

降低饲粮CP水平可从源头减少氮排放,并提高氮沉积率和氮表观生物学价值。前人研究发现,饲粮CP水平每降低1个百分点,氮排放量可减少约8%[34]。本试验中,饲粮CP水平降低1和2个百分点时,总氮排放量分别减少8.4%和21.4%,与前人研究基本一致。氮排放的降低一方面源于总氮摄入量的减少,另一方面可能与饲粮氨基酸更高效地用于合成组织蛋白质有关[35]。此外,本试验中使用了多种非常规原料,在平衡赖氨酸、蛋氨酸、苏氨酸和色氨酸这前4种限制性氨基酸的基础上,进一步平衡了缬氨酸和异亮氨酸,以满足试验猪对必需氨基酸的需求,这种更全面的氨基酸平衡有助于促进机体蛋白质沉积,从而减少氮排放。Malmlof[36]和Brudevold等[37]认为,血清UN含量是反映机体氮代谢状况的重要指标,血清UN含量升高表明氨基酸利用效率降低,反之则表明利用效率提高。本试验发现,饲粮CP水平降低2个百分点可显著降低生长猪血清UN含量,说明该条件下猪只的氮平衡状态更好。研究报道,长期饲粮CP不足会限制体内蛋白质合成原料供应,进而降低血清TP和ALB含量[38]。然而,本试验中降低饲粮CP水平并补充氨基酸并未对生长猪血清TP和ALB含量产生负面影响,表明将饲粮CP水平降低2个百分点并不影响机体蛋白质合成能力。
与此同时,本试验发现,当饲粮CP水平为14%时,随着饲粮SID AA水平的升高,总氮排放量在数值上呈先降低后升高的变化趋势。这表明饲粮SID AA水平过低或者过高均会破坏饲粮氨基酸平衡,降低机体对氮的利用率,从而导致氮排放增加。Zhao等[38]研究也发现,仅补充前4种限制性氨酸的处理组,其氮排放比平衡10种必需氨基酸的处理组高29%。同时,本试验发现,随着饲粮SID AA水平的升高,氮沉积率和氮表观生物学价值均呈先升高后降低的二次变化,二者分别在饲粮SID AA水平为101.92% NRC(2012)和99.29% NRC(2012)时达到最优,平均值为100.61% NRC(2012),说明在多元化饲粮条件下满足最佳氮利用所需的饲粮SID AA水平与NRC(2012)推荐量较为接近。另外,本试验还发现,随着饲粮SID AA水平的升高,血清ALB含量呈上升趋势,这可能是因为饲粮氨基酸是肝脏合成ALB的主要底物,氨基酸供应不足会限制ALB合成,进而影响猪的生长性能,这一点在饲粮SID AA水平为75.0% NRC(2012)组ADG降低的结果中也得到了印证。

3.4 多元化饲粮不同CP和SID AA水平对生长猪粪便微生物区系的影响

本研究显示,饲粮不同CP和SID AA水平并未显著改变生长猪粪便微生物区系的整体多样性,但与低SID AA水平组[75.0% NRC(2012)推荐量]相比,100.0% NRC(2012)推荐量组拟杆菌门和未分类韦荣氏菌科相对丰度较高。该变化趋势与生长性能的结果相一致,可能因为拟杆菌门相对丰度的提高有助于更高效的能量利用和养分代谢。厚壁菌门和拟杆菌门可通过糖酵解过程促进机体的能量吸收和代谢[39]。拟杆菌门细菌有助于降解复杂碳水化合物,从而提高宿主的养分利用率[40]。本试验使用的多种非常规饲料原料中含有不可消化的碳水化合物,拟杆菌门细菌可将其发酵生成短链脂肪酸,尤其是丙酸和丁酸。这些代谢产物不仅为肠上皮细胞提供能量,还可调节肠道pH,抑制有害菌生长[41]。在属水平上,本研究发现,将饲粮SID AA水平从75.0% NRC(2012)推荐量提高至100.0% NRC(2012)推荐量时,会显著提高未分类韦荣氏菌科相对丰度。该菌群是脂质生物合成中的关键前体[42]。尽管生长猪的脂肪沉积较少,但未分类韦荣氏菌科相对丰度的提高可能一定程度上促进机体脂肪沉积,从而改善生长猪ADG,这也可能是100.0% NRC组ADG高于75.0% NRC组的原因之一。

4 结论

本试验条件下,25~50 kg生长猪多元化饲粮适宜CP水平为14%(实测值为13.48%),该水平有助于提高饲粮DM、GE和CP表观消化率,并降低氮排放;此时,以ADG和EE表观消化率为评价指标,该多元化饲粮适宜SID AA水平为NRC(2012)推荐量的103.46%~105.06%;以F/G、氮沉积率和氮表观生物学价值为评价指标,适宜SID AA水平为NRC(2012)推荐量的98.50%~101.92%。综合以上指标,适宜SID AA水平平均值为NRC(2012)推荐量的101.65%。
[1]
谯仕彦, 周俊言, 李晟铠, 等. 低蛋白质低豆粕多元化饲粮是养猪节粮增效的关键技术[J]. 动物营养学报, 2024, 36(6):3401-3412.

DOI

QIAO S Y, ZHOU J Y, LI S K, et al. Diversified diet with low protein and low soybean meal is a key technology for pigs industry to save feed and improve efficiency[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3401-3412. (in Chinese)

DOI

[2]
WANG H L, LONG W T, CHADWICK D, et al. Can dietary manipulations improve the productivity of pigs with lower environmental and economic cost?A global Meta-analysis[J]. Agriculture Ecosystems & Environment, 2020, 289:106748.

[3]
YU C Q, HUANG X, CHEN H, et al. Managing nitrogen to restore water quality in China[J]. Nature, 2019, 567(7749):516-520.

DOI

[4]
张桂杰, 易学武, 鲁宁, 等. 利用净能体系配制低蛋白质日粮对生长和育肥猪生长性能与胴体品质的影响[J]. 动物营养学报, 2010, 22(3):557-563.

ZHANG G J, YI X W, LU N, et al. Effects of low protein diet formulated by net energy system on growth performance and carcass characteristic of growing and finishing pigs[J]. Chinese Journal of Animal Nutrition, 2010, 22(3):557-563. (in Chinese)

[5]
WANG Y M, ZHOU J Y, WANG G, et al. Advances in low-protein diets for swine[J]. Journal of Animal Science and Biotechnology, 2018, 9(1):60.

DOI

[6]
中国饲料工业协会. 生猪低蛋白低豆粕多元化日粮生产技术规范:T/CFIAS 8001—2022[S]. 北京: 中国饲料工业协会, 2022.

China Feed Industry Association. Specification of practice for the diversified diets with low protein and low soybean meal for pigs:T/CFIAS 8001—2022[S]. Beijing: China Feed Industry Association, 2022. (in Chinese)

[7]
徐亚兰, 陈代文, 余冰, 等. 多营养源饲粮对生长育肥猪生长性能、养分表观消化率及肉品质的影响[J]. 动物营养学报, 2017, 29(12):4315-4322.

XU Y L, CHEN D W, YU B, et al. Effects of multi-nutrient source diet on growth performance,nutrient apparent digestibility and meat quality of growing-finishing pigs[J]. Chinese Journal of Animal Nutrition, 2017, 29(12):4315-4322. (in Chinese)

[8]
ABDALLAH A, WANG J, ELEMBA E, et al. Amino acid release patterns of growing pig diets formulated with different dietary protein sources[J]. Journal of Applied Animal Research, 2019, 47(1):417-422.

DOI

[9]
ZHANG S H, QIAO S Y, REN M, et al. Supplementation with branched-chain amino acids to a low-protein diet regulates intestinal expression of amino acid and peptide transporters in weanling pigs[J]. Amino Acids, 2013, 45(5):1191-1205.

DOI PMID

[10]
FUJITA S, DREYER H C, DRUMMOND M J, et al. Nutrient signalling in the regulation of human muscle protein synthesis[J]. The Journal of Physiology, 2007, 582(Pt 2):813-823.

DOI

[11]
周俊言, 曾祥芳, 谯仕彦. 猪低蛋白质饲粮研究进展[J]. 动物营养学报, 2022, 34(10):6146-6151.

DOI

ZHOU J Y, ZENG X F, QIAO S Y. Advances in low-protein diets research for swine[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6146-6151. (in Chinese)

DOI

[12]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料采样:GB/T 14699—2023[S]. 北京: 中国标准出版社, 2023.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Feed sampling:GB/T 14699—2023[S]. Beijing: Standards Press of China, 2023. (in Chinese)

[13]
MA Z Y, ZHANG X M, WANG R, et al. Effects of chemical and mechanical lysis on microbial DNA yield,integrity,and downstream amplicon sequencing of rumen bacteria and protozoa[J]. Frontiers in Microbiology, 2020, 11:581227.

[14]
CALLAHAN B J, MCMURDIE P J, ROSEN M J, et al. DADA2:high-resolution sample inference from Illumina amplicon data[J]. Nature Methods, 2016, 13(7):581-583.

DOI

[15]
QUAST C, PRUESSE E, YILMAZ P, et al. The SILVA ribosomal RNA gene database project:improved data processing and web-based tools[J]. Nucleic Acids Research, 2013, 41(D1):D590-D596.

[16]
于树龙. 低蛋白日粮平衡氨基酸对生长猪生长性能及氮排放的影响研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2015.

YU S L. Effect of dietary amino acid balance on growth performance and nitrogen excretion in growing pigs[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2015. (in Chinese)

[17]
张俊杰, 朱佳良, 任立权, 等. 低蛋白饲粮对杜长大猪生长性能、肉品质和抗氧化的影响[J]. 西北农林科技大学学报(自然科学版), 2023, 51(1):17-23.

ZHANG J J, ZHU J L, REN L Q, et al. Effects of low protein diets on growth performance,meat quality and antioxidant capacity of pigs[J]. Journal of Northwest A&F University (Natural Science Edition), 2023, 51(1):17-23. (in Chinese)

[18]
WANG D, CHEN G S, CHAI M J, et al. Effects of dietary protein levels on production performance,meat quality and flavor of fattening pigs[J]. Frontiers in Nutrition, 2022, 9:910519.

[19]
MINUSSI I, GERRITS W J J, JANSMAN A J M, et al. Amino acid supplementation counteracts negative effects of low protein diets on tail biting in pigs more than extra environmental enrichment[J]. Scientific Reports, 2023, 13(1):19268.

DOI PMID

[20]
JIAO X L, MA W F, CHEN Y R, et al. Effects of amino acids supplementation in low crude protein diets on growth performance,carcass traits and serum parameters in finishing gilts[J]. Animal Science Journal, 2016, 87(10):1252-1257.

DOI

[21]
LIU H, WANG S X, CHEN M X, et al. Effects of Lactobacillus-fermented low-protein diets on the growth performance,nitrogen excretion,fecal microbiota and metabolomic profiles of finishing pigs[J]. Scientific Reports, 2024, 14(1):8612.

DOI

[22]
LI Y H, WEI H K, LI F N, et al. Supplementation of branched-chain amino acids in protein-restricted diets modulates the expression levels of amino acid transporters and energy metabolism associated regulators in the adipose tissue of growing pigs[J]. Animal Nutrition, 2016, 2(1):24-32.

DOI PMID

[23]
ZHENG L F, WEI H K, CHENG C S, et al. Supplementation of branched-chain amino acids to a reduced-protein diet improves growth performance in piglets:involvement of increased feed intake and direct muscle growth-promoting effect[J]. British Journal of Nutrition, 2016, 115(12):2236-2245.

DOI

[24]
ROOS S, LAGERLÖF O, WENNERGREN M, et al. Regulation of amino acid transporters by glucose and growth factors in cultured primary human trophoblast cells is mediated by mTOR signaling[J]. American Journal of Physiology:Cell Physiology, 2009, 297(3):C723-C731.

[25]
DIMITRIADIS G, MITROU P, LAMBADIARI V, et al. Insulin effects in muscle and adipose tissue[J]. Diabetes Research and Clinical Practice, 2011, 93(Suppl.1):S52-S59.

[26]
MAO X B, ZENG X F, HUANG Z M, et al. Leptin and leucine synergistically regulate protein metabolism in C2C12 myotubes and mouse skeletal muscles[J]. British Journal of Nutrition, 2013, 110(2):256-264.

DOI

[27]
窦勇, 彭聚华, 胡佩红, 等. 低蛋白日粮中添加复合酶制剂对仔猪生产性能、表观消化率及氮排放量的影响[J]. 河南农业科学, 2014, 43(9):146-150,155.

DOU Y, PENG J H, HU P H, et al. Effect of compound enzyme preparation added in low protein diets on growth performance,apparent digestibility and nitrogen content in manure of piglets[J]. Journal of Henan Agricultural Sciences, 2014, 43(9):146-150,155. (in Chinese)

[28]
KIM Y J, LEE J H, KIM T H, et al. Effect of low protein diets added with protease on growth performance,nutrient digestibility of weaned piglets and growing-finishing pigs[J]. Journal of Animal Science and Technology, 2021, 63(3):491-500.

DOI

[29]
DENG D, HUANG R L, LI T J, et al. Nitrogen balance in barrows fed low-protein diets supplemented with essential amino acids[J]. Livestock Science, 2007, 109(1/2/3):220-223.

DOI

[30]
KATSUMATA M, KAWAKAMI S, TAKADA R, et al. Differential regulation of porcine hepatic IGF-Ⅰ mRNA expression and plasma IGF-Ⅰ concentration by a low lysine diet[J]. The Journal of Nutrition, 2002, 132(4):688-692.

DOI

[31]
樊潇潇. 饲粮净能和赖氨酸水平对生长育肥猪生长性能、养分消化率和肉品质的影响研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2024.

FAN X X. Effects of dietary net energy and lysine levels on growth performance,nutrient digestibility and meat quality of growing-finishing pigs[D]. Master’s Thesis. Yangling: Northwest A&F University, 2024. (in Chinese)

[32]
KUMAR V, SINHA A K, MAKKAR H P S, et al. Dietary roles of phytate and phytase in human nutrition:a review[J]. Food Chemistry, 2010, 120(4):945-959.

DOI

[33]
LI P, YIN Y L, LI D F, et al. Amino acids and immune function[J]. British Journal of Nutrition, 2007, 98(2):237-252.

DOI PMID

[34]
KERR B J, EASTER R A. Effect of feeding reduced protein,amino acid-supplemented diets on nitrogen and energy balance in grower pigs[J]. Journal of Animal Science, 1995, 73(10):3000-3008.

DOI

[35]
KIM S W, MATEO R D, YIN Y L, et al. Functional amino acids and fatty acids for enhancing production performance of sows and piglets[J]. Asian-Australasian Journal of Animal Sciences, 2007, 20(2):295-306.

DOI

[36]
MALMLOF K. Amino acid in farm animal nutrition metabolism,partition and consequences of imbalance[J]. Swedish Journal of Agriculture Research, 1988, 18:191-193.

[37]
BRUDEVOLD A B, SOUTHERN L L. Low-protein,crystalline amino acid-supplemented,sorghum-soybean meal diets for the 10- to 20-kilogram pig[J]. Journal of Animal Science, 1994, 72(3):638-647.

DOI

[38]
ZHAO Y M, TIAN G, CHEN D W, et al. Effect of different dietary protein levels and amino acids supplementation patterns on growth performance,carcass characteristics and nitrogen excretion in growing-finishing pigs[J]. Journal of Animal Science and Biotechnology, 2019, 10(1):75.

DOI

[39]
GREENHILL C. Firmicutes and Bacteroidetes involved in insulin resistance by mediating levels of glucagon-like peptide 1[J]. Nature Reviews Endocrinology, 2015, 11(5):254.

[40]
BÄCKHED F, DING H, WANG T, et al. The gut microbiota as an environmental factor that regulates fat storage[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(44):15718-15723.

DOI PMID

[41]
ZHANG L, WU W D, LEE Y K, et al. Spatial heterogeneity and co-occurrence of mucosal and luminal microbiome across swine intestinal tract[J]. Frontiers in Microbiology, 2018, 9:48.

[42]
KARA D, LUPPENS S B I, CATE J M. Differences between single- and dual-species biofilms of Streptococcus mutans and Veillonella parvula in growth,acidogenicity and susceptibility to chlorhexidine[J]. European Journal of Oral Sciences, 2006, 114(1):58-63.

DOI

文章导航

/