研究论文

琥珀酸、丁酸钠和异丁酸对哺乳犊牛生长性能、瘤胃发酵参数和瘤胃菌群结构的影响

  • 孔伟豪 , 1 ,
  • 杨双鸣 1 ,
  • 任文义 1 ,
  • 黄亮 2 ,
  • 李作明 2 ,
  • 马玉林 1 ,
  • 徐晓锋 1 ,
  • 张力莉 , 1, *
展开
  • 1 宁夏大学动物科技学院,银川 750021
  • 2 宁夏农垦牛羊肉食品有限公司,银川 750021
* 张力莉,副教授,硕士生导师,E-mail:

孔伟豪(2000—),男,山东济宁人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

收稿日期: 2025-07-16

  网络出版日期: 2026-01-13

基金资助

宁夏回族自治区重点研发项目(2023BCF01034)

Effects of Succinic Acid, Sodium Butyrate and Isobutyric Acid on Growth Performance, Rumen Fermentation Parameters and Rumen Microbiota Structure of Suckling Calves

  • KONG Weihao , 1 ,
  • YANG Shuangming 1 ,
  • REN Wenyi 1 ,
  • HUANG Liang 2 ,
  • LI Zuoming 2 ,
  • MA Yulin 1 ,
  • XU Xiaofeng 1 ,
  • ZHANG Lili , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Agricultural Reclamation Cattle and Sheep Meat Food Co., Ltd., Yinchuan 750021, China
* associate professor, E-mail:

Received date: 2025-07-16

  Online published: 2026-01-13

摘要

本试验旨在探究琥珀酸、丁酸钠和异丁酸对哺乳犊牛生长性能、瘤胃发酵参数和瘤胃菌群结构的影响。选取64头健康、体重相近的哺乳期荷斯坦公犊牛,随机分为4组,分别为对照组(CK组)、琥珀酸组(SA组)、丁酸钠组(SB组)和异丁酸组(IB组),每组16头。各组牛奶供给量相同,SA组、SB组和IB组在牛奶中分别添加1 g/L的琥珀酸、丁酸钠和异丁酸。试验期为56 d。结果表明:1)在第29~56天,SA和SB组的平均日增重显著高于CK和IB组(P<0.05);在第1~56天,SB组的开食料干物质采食量显著高于其余3组(P<0.05)。2)在第42天,SA和SB组的瘤胃液氨态氮(NH3-N)浓度均显著高于CK组(P<0.05);SA和SB组的瘤胃液微生物蛋白(MCP)浓度在第28、42和56天均显著高于CK组(P<0.05);SB组的瘤胃液乙酸浓度在第28和56天均显著高于CK组(P<0.05);在第42天,SB组的瘤胃液丙酸浓度显著高于其余3组(P<0.05);在第56天,CK组的丁酸和总挥发性脂肪酸浓度显著低于其余3组(P<0.05)。3)对于瘤胃菌群,在第28天,与CK组相比,SA组的嗜热脱硫细菌门(Thermodesulfobacteriota)和螺旋体门(Spirochaetota)的相对丰度显著升高(P<0.05);在第56天,SA组的甲烷杆菌门(Methanobacteriota)的相对丰度显著低于CK和IB组(P<0.05)。LEfSe分析表明,在第28天,脱硫弧菌属(Desulfovibrio)和纤维杆菌属(Fibrobacter)显著富集于SA组;理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)和普雷沃氏菌科NK3B31群(Prevotellaceae_NK3B3l_group)显著富集于IB组。在第56天,纤维杆菌属在SA组中显著富集;脱硫弧菌属在SB组中显著富集;互营球菌属(Syntrophococcus)和Ruminococcus_gauvreauii_group在IB组中显著富集。综上所述,牛奶中添加琥珀酸和丁酸钠可以提高哺乳犊牛的生长性能,添加琥珀酸、丁酸钠和异丁酸能够促进瘤胃发育,改变瘤胃菌群结构。综合来看,以丁酸钠的饲喂效果最好,其次是琥珀酸和异丁酸。

本文引用格式

孔伟豪 , 杨双鸣 , 任文义 , 黄亮 , 李作明 , 马玉林 , 徐晓锋 , 张力莉 . 琥珀酸、丁酸钠和异丁酸对哺乳犊牛生长性能、瘤胃发酵参数和瘤胃菌群结构的影响[J]. 动物营养学报, 2026 , 38(1) : 427 -441 . DOI: 10.12418/CJAN2026.034

Abstract

This experiment investigated the effects of succinic acid, sodium butyrate and isobutyric acid on the growth performance, rumen fermentation parameters and rumen microbiota structure of suckling calves. Sixty-four healthy breeding male Holstein calves with similar body weight were selected and randomly assigned to four groups, they were control group (CK group), succinic acid group (SA group), sodium butyrate group (SB group), and isobutyric acid group (IB group), with 16 calves in each group. The experiment period lasted for 56 days. All groups received the same amount of milk, with the SA, SB, and IB groups supplemented with 1 g/L of succinic acid, sodium butyrate, and isobutyric acid in the milk, respectively. The results showed that: 1) from days 29 to 56, calves in the SA and SB groups exhibited significantly higher significantly increased average daily weight gain compared with the CK and IB groups (P<0.05). From days 1 to 56, the starter feed dry matter intake in the SB group was significantly higher than that in the other three groups (P<0.05). 2) At day 42, the concentration of rumen fluid ammonia nitrogen (NH3-N) in the SA and SB groups was significantly higher than that in the CK group (P<0.05); the concentration of rumen fluid microbial protein (MCP) in the SA and SB groups was significantly higher than that in the CK group at days 28, 42 and 56 (P<0.05); the concentration of rumen fluid acetic acid in the SB group was significantly higher than that in the CK group at both days 28 and 56 (P<0.05), while the concentration of rumen fluid propionic acid in the SB group was significantly higher than that in all other groups at day 42 (P<0.05); the concentrations of butyric acid and total volatile fatty acid in the CK group at day 56 were significantly lower than those in the other three groups (P<0.05). 3) For rumen microbiota, at day 28, the SA group exhibited a significantly higher relative abundances of Thermodesulfobacteriota and Spirochaetota compared with the CK group (P<0.05); at day 56, the relative abundance of Methanobacteriota in the SA group was significantly lower than that in the CK and IB groups (P<0.05). LEfSe analysis indicated that, at day 28, Desulfovibrio and Fibrobacter were significantly enriched in the SA group, and the Rikenellaceae_RC9_gut_group and Prevotellaceae_NK3B3l_group were significantly enriched in IB group; at day 56, the Fibrobacter was significantly enriched in the SA group, the Desulfovibrio was significantly enriched in the SB group, and the Syntrophococcus and Ruminococcus_gauvreauii_group were significantly enriched in the IB group. In conclusion, supplementation with succinic acid and sodium butyrate in milk can improve the growth performance of suckling calves. Furthermore, the supplementation with succinic acid, sodium butyrate, and isobutyric acid in milk can promote the ruminal development and change the rumen microbiota structure of suckling calves. Among them, sodium butyrate has the best feeding effect, followed by succinic acid and isobutyric acid.

瘤胃是反刍动物特有的消化器官,对其生长、生产性能与健康具有关键作用[1]。在犊牛阶段,瘤胃结构的发育与微生物群落的定植密切相关,二者共同调控营养物质的消化与吸收,进而直接影响犊牛的营养状况和生长性能[2]。因此,通过调控幼龄反刍动物的瘤胃发酵模式及微生物组成,可有效促进瘤胃发育,并对其后续生产性能产生持续影响。目前常用的调控手段包括调整饲粮组成与物理形态、添加饲料添加剂(植物提取物、益生菌、有机酸等)以及优化饲养管理策略等[3]
琥珀酸又称丁二酸,是一种二羧酸,主要在三羧酸循环中生成。作为一种重要的代谢中间体或终产物,琥珀酸广泛存在于多种肠道微生物的代谢途径中[4]。在骨骼肌中,琥珀酸可通过细胞外信号调节激酶(Erk)/蛋白激酶B(Akt)信号通路促进蛋白质沉积,并借助琥珀酸受体1(SUCNR1)及钙调磷酸酶(CaN)/活化T细胞核因子(NFAT)信号通路参与肌纤维重塑过程[5-6]。此外,琥珀酸还参与机体的糖和脂代谢,对维持葡萄糖稳态具有调节作用[7]。研究表明,在滩羊饲粮中添加1%或2%的琥珀酸可提高其生长性能,促进瘤胃发育并优化菌群结构[8]。丁酸是一种具有特殊气味的短链挥发性脂肪酸。由于其强挥发性,实际应用中常以丁酸盐形式添加,其中丁酸钠最为常见。丁酸对瘤胃发育具有关键作用,尤其在瘤胃上皮的构建与维持中不可或缺。多项研究证实,丁酸盐能够促进哺乳犊牛的瘤胃发育,调节瘤胃菌群结构[9],提升动物生长性能[10],并增强机体免疫力[1]。异丁酸作为一种支链脂肪酸,化学结构与丁酸高度相似,主要由缬氨酸分解产生。研究发现,异丁酸可调节断奶仔猪的肠道微生物组成,并通过激活G蛋白偶联受体43/109A(GPR43/109A)及其下游骨髓分化因子88(MyD88)信号通路来增强肠道屏障功能[11]。在反刍动物中,补充异丁酸有助于改善阉牛的瘤胃菌群结构与酶活性[12],并促进犊牛的瘤胃发育[13]。综上所述,琥珀酸、丁酸钠与异丁酸在调节反刍动物瘤胃发育和生长性能方面均显示出潜在价值。然而,目前关于这3种有机酸在哺乳犊牛中系统应用的研究仍较缺乏。因此,本试验通过在牛奶中分别添加上述3种有机酸,探究其对哺乳犊牛生长性能、瘤胃发酵参数及瘤胃菌群结构的影响,以期为有机酸在犊牛营养调控中的科学应用提供理论依据。

1 材料与方法

1.1 试验材料

本试验所用琥珀酸的纯度不低于99%,该琥珀酸为二元酸,其离解常数(pKa):pKa1=4.20,pKa2=5.60;丁酸钠的纯度不低于98%;异丁酸的纯度不低于95%,其pKa为4.86。试验用哺乳犊牛为荷斯坦奶公犊,由宁夏银川暖泉犊牛场提供。

1.2 试验设计及饲养管理

动物试验方案经宁夏大学动物伦理委员会批准,许可证号:NXU-2024-F-117号。
饲养试验采用单因素完全随机设计,选取64头健康、体重[(43.22±3.15) kg]相近的哺乳期荷斯坦奶公犊,随机分为4组,分别为对照组(CK组)、琥珀酸组(SA组)、丁酸钠组(SB组)和异丁酸组(IB组),每组16头。SA组、SB组和IB组按照每日喂奶量分别添加1 g/L的琥珀酸、丁酸钠和异丁酸,其中CK组、SA组、SB组和IB组饲喂常乳的pH分别为6.55、5.82、6.91和6.17。试验期为56 d。
所有试验犊牛均单独饲养于犊牛岛中,3种有机酸每日分2次混合到常乳中进行饲喂。常乳在1~7日龄饲喂4 L/d,8~12日龄饲喂5 L/d,13~18日龄饲喂6 L/d,19~24日龄饲喂7 L/d,25~29日龄饲喂8 L/d,30~56日龄饲喂10 L/d。犊牛自由采食和饮水,确保岛内保持清洁、干燥,并定期进行消毒工作。开食料由宁夏博瑞科技有限公司提供,其营养水平见表1
表1 开食料营养水平(干物质基础)

Table 1 Nutrient levels of the starter feed (DM basis) %

项目Items 含量Content
粗蛋白质CP 20.46
中性洗涤纤维NDF 45.73
酸性洗涤纤维ADF 11.48
粗脂肪EE 3.85
粗灰分Ash 2.03
钙Ca 0.92
磷P 0.52

表中各营养指标均为参照国标方法所得实测值。

All nutrient indices presented in the table are measured values obtained following the corresponding methods of Chinese National Standards.

1.3 样品采集

试验第21、28、42、56天,于晨饲前通过口腔插管法抽取犊牛的瘤胃液,经4层纱布过滤后,分装到2 mL冻存管中,-80 ℃冰箱保存待测。

1.4 检测指标及方法

1.4.1 生长性能测定

试验期间每天记录每头犊牛的开食料饲喂量和剩料量以及喂奶量和剩奶量,计算平均干物质采食量(ADMI),并于第1、28和56天晨饲前对试验犊牛进行称重,用于计算平均日增重(ADG)和料重比(F/G)。

1.4.2 瘤胃发酵参数测定

瘤胃液在采集后立即使用pH818型便携式pH计测定pH;氨态氮浓度参照冯宗慈等[14]的方法进行测定;微生物蛋白浓度采用考马斯亮蓝法进行测定;挥发性脂肪酸浓度参考Erwin等[15]报道的气相色谱法使用日本岛津GC-2030气相色谱仪进行测定。

1.4.3 瘤胃菌群测定

将试验第28和56天的瘤胃液样品送至广州基迪奥科技有限公司进行16S rDNA基因扩增子测序。使用引物对341F(5'-CCTACGGGNGGCWGCAG-3')和806R(5'-GGACTACHVGGGTATCTAAT-3')扩增16S rDNA基因的V3~V4区。将纯化后的扩增产物连接测序接头,构建测序文库,在Illumina MiSeq PE300测序平台上测序,在基迪奥云平台上进行可视化分析。

1.5 数据处理与分析

试验数据使用Excel 2021进行整理,然后使用SPSS 26.0统计软件的ANOVA程序进行单因素方差分析,并采用Duncan氏法进行多重比较。P<0.05表示差异显著。结果用平均值和均值标准误(SEM)表示。

2 结果与分析

2.1 琥珀酸、丁酸钠和异丁酸对哺乳犊牛生长性能的影响

表2可知,哺乳犊牛的初始体重、终末体重以及各阶段的料重比在CK、SA、SB和IB组之间均无显著差异(P>0.05);在第29~56天,SA和SB组的平均日增重显著高于CK和IB组(P<0.05),SB组的平均干物质采食量显著高于其他3组(P<0.05);在第1~56天,SB组的平均日增重显著高于CK和IB组(P<0.05),平均干物质采食量显著高于其他3组(P<0.05)。
表2 琥珀酸、丁酸钠和异丁酸对哺乳犊牛生长性能的影响

Table 2 Effects of succinic acid, sodium butyrate and isobutyric acid on growth performance of suckling calves

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CK SA SB IB
初始体重IBW/kg 43.31 43.18 42.89 43.49 0.532 0.984
终末体重FBW/kg 86.47 88.64 91.06 86.13 0.841 0.136
平均日增重ADG/(kg/d)
第1~28天Days 1 to 28 0.63 0.57 0.69 0.63 0.015 0.053
第29~56天Days 29 to 56 0.91b 1.05a 1.03a 0.90b 0.022 0.016
第1~56天Days 1 to 56 0.77b 0.81ab 0.86a 0.76b 0.013 0.018
平均干物质采食量ADMI/(kg/d)
第1~28天Days 1 to 28 0.85 0.83 0.89 0.86 0.010 0.120
第29~56天Days 29 to 56 1.41b 1.50b 1.60a 1.45b 0.020 0.002
第1~56天Days 1 to 56 1.13b 1.17b 1.25a 1.16b 0.013 0.006
料重比F/G
第1~28天Days 1 to 28 1.36 1.46 1.32 1.39 0.028 0.341
第29~56天Days 29 to 56 1.55 1.44 1.59 1.63 0.033 0.204
第1~56天Days 1 to 56 1.47 1.44 1.46 1.53 0.021 0.529

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 琥珀酸、丁酸钠和异丁酸对哺乳犊牛瘤胃发酵参数的影响

表3可知,CK、SA、SB和IB组的pH在第21和42天无显著差异(P>0.05),SA和SB组的pH在第28和56天均显著低于CK组(P<0.05);在第42天,SA和SB组的NH3-N浓度显著高于CK组(P<0.05),IB组与CK组无显著差异(P>0.05);CK组的MCP浓度在第21天显著高于SA组(P<0.05),SA和SB组的MCP浓度在第28、42和56天均显著高于CK组(P<0.05),IB组与CK组则差异不显著(P>0.05)。
表3 琥珀酸、丁酸钠和异丁酸对犊牛瘤胃液pH、氨态氮和微生物蛋白浓度的影响

Table 3 Effects of succinic acid, sodium butyrate and isobutyric acid on pH, ammonia nitrogen and microbial protein concentrations in rumen fluid of suckling calves

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CK SA SB IB
pH
第21天Day 21 7.11 7.01 7.13 6.99 0.023 0.083
第28天Day 28 6.88a 6.65b 6.68b 6.90a 0.041 0.001
第42天Day 42 6.94 6.75 6.73 6.83 0.037 0.105
第56天Day 56 6.75a 6.45bc 6.38c 6.61ab 0.037 <0.001
氨态氮NH3-N/(mg/dL)
第21天Day 21 9.54 11.62 10.27 11.50 0.432 0.298
第28天Day 28 13.05 19.59 15.40 15.79 1.078 0.174
第42天Day 42 12.06c 22.07a 18.70b 15.51bc 1.084 <0.001
第56天Day 56 10.15 17.08 16.09 14.80 0.942 0.060
微生物蛋白MCP/(mg/mL)
第21天Day 21 1.77a 1.20b 1.52ab 1.69a 0.067 0.006
第28天Day 28 1.04c 1.40ab 1.62a 1.23bc 0.063 0.004
第42天Day 42 1.00c 1.93a 1.75ab 1.24bc 0.106 0.003
第56天Day 56 1.22c 1.85a 1.67ab 1.41bc 0.074 0.007
表4可知,在第28和56天,SB组的乙酸浓度显著高于CK组(P<0.05),SA组与CK组无显著差异(P>0.05);而对于丙酸浓度来说,在第42天,SB组显著高于其他3组(P<0.05);SB组第28、42和56天的丁酸浓度均显著高于CK组(P<0.05),SA和IB组第56天的丁酸浓度显著高于CK组(P<0.05);SB组第28和42天的总挥发性脂肪酸浓度显著高于CK组(P<0.05),SB、SA和IB组第56天的总挥发性脂肪酸浓度显著高于CK组(P<0.05)。
表4 琥珀酸、丁酸钠和异丁酸对犊牛瘤胃液中挥发性脂肪酸浓度的影响

Table 4 Effects of succinic acid, sodium butyrate and isobutyric acid on volatile fatty acid concentrations in rumen fluid of suckling calves mmol/mL

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CK SA SB IB
乙酸Acetic acid
第21天Day 21 11.98 12.52 11.22 9.81 0.544 0.282
第28天Day 28 10.55b 13.66ab 17.02a 12.91ab 0.827 0.037
第42天Day 42 11.47 14.77 16.33 14.51 0.812 0.131
第56天Day 56 19.54c 21.94bc 27.98a 25.49ab 1.083 0.011
丙酸Propionic acid
第21天Day 21 4.89 6.48 4.30 3.89 0.365 0.085
第28天Day 28 4.53 7.57 8.56 5.69 0.583 0.054
第42天Day 42 3.92b 6.22b 9.54a 6.58b 0.589 0.001
第56天Day 56 8.60b 12.28ab 16.46a 14.46a 0.852 0.002
丁酸Butyric acid
第21天Day 21 1.28ab 1.61ab 1.99a 1.09b 0.118 0.029
第28天Day 28 1.13b 1.60ab 2.24a 1.18b 0.136 0.007
第42天Day 42 0.93c 1.30bc 1.96a 1.58ab 0.108 <0.001
第56天Day 56 1.41b 2.53a 3.05a 2.92a 0.167 <0.001
异丁酸Isobutyric acid
第21天Day 21 0.68 0.58 0.60 0.55 0.022 0.210
第28天Day 28 0.59 0.69 0.52 0.74 0.041 0.240
第42天Day 42 0.62 0.87 0.74 0.63 0.047 0.216
第56天Day 56 1.02 1.12 1.08 0.81 0.080 0.547
总挥发性脂肪酸Total VFAs
第21天Day 21 19.92 22.44 19.16 16.37 0.973 0.157
第28天Day 28 17.63b 25.16ab 30.14a 22.08ab 1.609 0.035
第42天Day 42 19.79b 24.50ab 30.10a 24.47ab 1.461 0.008
第56天Day 56 32.01b 45.37a 54.13a 44.11a 2.390 0.005

2.3 琥珀酸、丁酸钠和异丁酸对哺乳犊牛瘤胃菌群结构的影响

2.3.1 瘤胃菌群操作分类单元(OTUs)数量
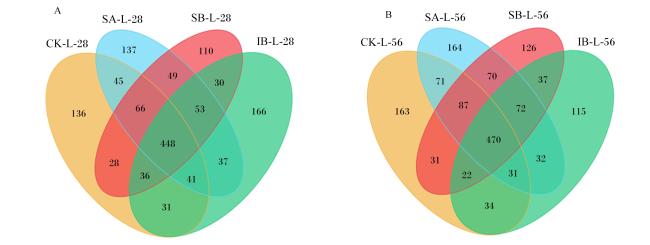
图1中显示了第28和56天各组间特有和共有的OTUs数量。由图1-A可知,在第28天瘤胃液样品共检测出1 413个可用的OTUs,其中4组共有448个OTUs,CK、SA、SB和IB组分别特有136、137、110和166个OTUs;由图1-B可知,相较于第28天瘤胃液样品,第56天瘤胃液样品的OTUs组成发生了些变化,4组共同产生了1 525个OTUs,其中4组共有的OTUs数量为470个,CK、SA、SB和IB组特有的OTUs数量分别为163、164、126和115个。
图1 基于OTUs水平的瘤胃菌群Venn图

A:第28天瘤胃菌群Venn图;B:第56天瘤胃菌群Venn图。

CK-L-28、SA-L-28、SB-L-28、IB-L-28分别表示CK、SA、SB、IB组第28天的样品,CK-L-56、SA-L-56、SB-L-56、IB-L-56分别表示CK、SA、SB、IB组第56天的样品。下图同。

Fig.1 Venn diagram of rumen microbiota based on OTUs level

A: Venn diagram of rumen microbiota at day 28; B: Venn diagram of rumen microbiota at day 56.

CK-L-28, SA-L-28, SB-L-28 and IB-L-28 represented the samples collected on day 28 from the CK, SA, SB and IB groups, respectively. CK-L-56, SA-L-56, SB-L-56 and IB-L-56 represent the samples collected on day 56 from the CK, SA, SB and IB groups, respectively. The same as below.

2.3.2 瘤胃菌群Alpha多样性分析

表5可知,在第28天,4组之间在ACE、Chao、Shannon和Simpson指数上均无显著差异(P>0.05);但到第56天,SB组的ACE指数以及IB组的ACE、Chao、Shannon指数均较CK和SA组显著降低(P<0.05)。
表5 琥珀酸、丁酸钠和异丁酸对哺乳犊牛瘤胃菌群Alpha多样性的影响

Table 5 Effects of succinic acid, sodium butyrate and isobutyric acid on Alpha diversity of rumen microbiota of suckling calves

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CK SA SB IB
第28天Day 28
ACE指数ACE index 1 012.77 1 053.72 1 069.82 1 054.47 11.139 0.315
Chao指数Chao index 989.56 1 023.98 1 029.32 1 014.28 10.597 0.574
Shannon指数Shannon index 4.94 5.26 4.74 5.40 0.095 0.050
Simpson指数Simpson index 0.90 0.92 0.86 0.94 0.011 0.053
第56天Day 56
ACE指数ACE index 1 172.32a 1 203.72a 1 088.38b 1 022.00b 16.984 <0.001
Chao指数Chao index 1 127.17ab 1 150.48a 1 059.47bc 1 001.61c 14.989 <0.001
Shannon指数Shannon index 5.57a 5.57a 5.19ab 5.04b 0.082 0.038
Simpson指数Simpson index 0.94 0.93 0.92 0.91 0.005 0.390

2.3.3 瘤胃菌群Beta多样性分析

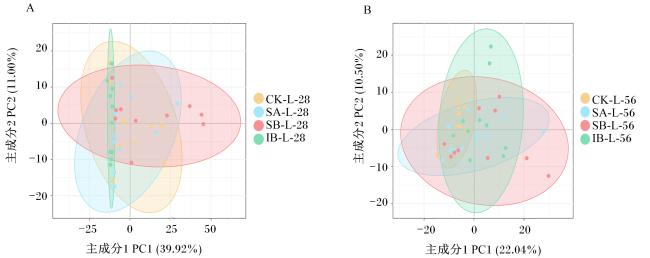
基于OTUs聚类的主成分分析(PCA)表明,在第28天,主成分1(PC1)能解释39.92%的差异性,主成分2(PC2)能解释11.00%的差异性(图2-A);在第56天,PC1能解释22.04%的差异性,PC2能解释10.50%的差异性(图2-B)。在2个时间点的PCA图中,4组间样本点距离较近,说明4组间菌群组成差异不大。
图2 琥珀酸、丁酸钠和异丁酸对哺乳犊牛瘤胃菌群Beta多样性的影响

A:第28天瘤胃菌群主成分分析;B:第56天瘤胃菌群主成分分析。

Fig.2 Effects of succinic acid, sodium butyrate and isobutyric acid on Beta diversity of rumen microbiota of suckling calves

A: PCA of rumen microbiota at day 28; B: PCA of rumen microbiota at day 56.

2.3.4 瘤胃菌群组成分析

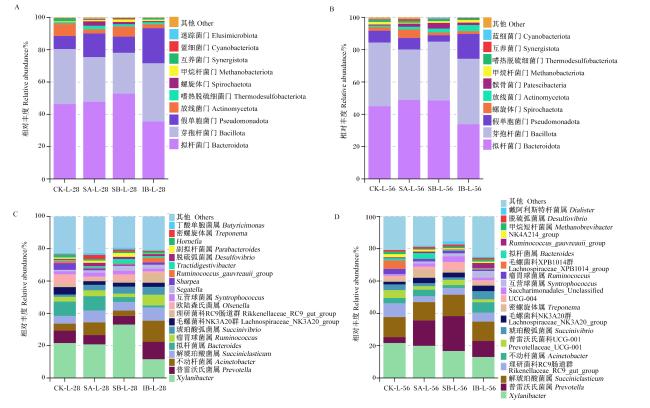
图3-A可知,在第28天,各组的优势菌门均为拟杆菌门(Bacteroidota)、芽孢杆菌门(Bacillota)、假单胞菌门(Pseudomonadota)和放线菌门(Actinomycetota)。其中,CK组假单胞菌门的相对丰度低于其余3组,放线菌门的相对丰度高于其余2组。由图3-B可知,与第28天相似,在第56天各组仍然是拟杆菌门和芽孢杆菌门的相对丰度最高,其次是假单胞菌门、螺旋体门(Spirochaetota)和放线菌门。
图3 瘤胃菌群组成

A:第28天瘤胃菌群门水平组成;B:第56天瘤胃菌群门水平组成;C:第28天瘤胃菌群属水平组成;D:第56天瘤胃菌群属水平组成。

Fig.3 Composition of rumen microbiota

A: composition of rumen microbiota at phylum level at day 28; B: composition of rumen microbiota at phylum level at day 56; C: composition of rumen microbiota at genus level at day 28; D: composition of rumen microbiota at genus level at day 56.

图3-C可知,在第28天,优势菌属为Xylanibacter和普雷沃氏菌属(Prevotella),其次是不动杆菌属(Acinetobacter)、解琥珀酸菌属(Succiniclasticum)、拟杆菌属(Bacteroides)、瘤胃球菌属(Ruminococcus)、琥珀酸弧菌属(Succinivibrio)、毛螺菌科NK3A20群(Lachnospiraceae_NK3A20_group)等。由图3-D可知,随着哺乳犊牛的生长发育,犊牛瘤胃菌群发生了一些变化:与第28天相比,在第56天,哺乳犊牛瘤胃中解琥珀酸菌属和理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)的相对丰度增加,不动杆菌属和拟杆菌属的相对丰度降低,但优势菌属仍是Xylanibacter和普雷沃氏菌属,其次是解琥珀酸菌属和理研菌科RC9肠道群、不动杆菌属、普雷沃氏菌科UCG-001(Prevotellaceae_UCG_001)、琥珀酸弧菌属、毛螺菌科NK3A20群、密螺旋体属(Treponema)和UCG-004等。

2.3.5 瘤胃菌群优势菌门差异分析

表6可知,在第28天,IB组假单胞菌门的相对丰度显著高于CK组(P<0.05),此外,与CK组相比,SA组嗜热脱硫细菌门(Thermodesulfobacteriota)和螺旋体门的相对丰度显著升高(P<0.05);由表7可知,在第56天,IB组拟杆菌门的相对丰度较其他组显著降低(P<0.05),假单胞菌门的相对丰度较其他组显著升高(P<0.05),此外,SA组甲烷杆菌门(Methanobacteriota)的相对丰度显著低于CK和IB组(P<0.05)。
表6 琥珀酸、丁酸钠和异丁酸对第28天犊牛瘤胃优势菌门(前10位)相对丰度的影响

Table 6 Effects of succinic acid, sodium butyrate and isobutyric acid on relative abundance of dominant bacterial phyla (top 10) in rumen of calves at day 28

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CK SA SB IB
拟杆菌门Bacteroidota 46.35ab 47.73ab 52.80a 35.51b 2.251 0.042
芽孢杆菌门Bacillota 34.08 27.70 25.28 36.12 2.019 0.183
假单胞菌门Pseudomonadota 8.09b 14.63ab 10.04b 21.71a 1.638 0.011
放线菌门Actinomycetota 7.30 2.65 6.29 2.41 1.392 0.506
嗜热脱硫细菌门Thermodesulfobacteriota 0.62b 2.14a 1.36ab 1.27b 0.158 0.005
螺旋体门Spirochaetota 0.37b 2.76a 1.39ab 0.71b 0.316 0.031
甲烷杆菌门Methanobacteriota 0.74 0.80 1.52 0.90 0.159 0.286
互养菌门Synergistota 1.92 0.23 0.35 0.96 0.295 0.158
蓝细菌门Cyanobacteriota 0.16 0.50 0.65 0.20 0.123 0.437
迷踪菌门Elusimicrobiota 0.08 0.29 0.12 0.05 0.047 0.265
表7 琥珀酸、丁酸钠和异丁酸对第56天犊牛瘤胃优势菌门(前10位)相对丰度的影响

Table 7 Effects of succinic acid, sodium butyrate and isobutyric acid on relative abundance of dominant bacterial phyla (top 10) in rumen of calves at day 56

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CK SA SB IB
拟杆菌门Bacteroidota 45.00a 48.85a 48.57a 33.87b 1.989 0.018
芽孢杆菌门Bacillota 39.39 31.23 36.40 40.50 1.724 0.231
假单胞菌门Pseudomonadota 7.26b 7.13b 3.94b 15.38a 1.170 0.002
螺旋体门Spirochaetota 2.28 5.27 1.77 1.72 0.669 0.188
放线菌门Actinomycetota 0.93 1.66 2.32 3.74 0.545 0.316
髌骨菌门Patescibacteria 0.69 1.95 3.54 1.52 0.725 0.579
甲烷杆菌门Methanobacteriota 1.50a 0.56b 1.07ab 1.56a 0.133 0.021
嗜热脱硫细菌门Thermodesulfobacteriota 1.10 1.20 1.24 1.02 0.162 0.965
互养菌门Synergistota 0.59 1.09 0.31 0.36 0.201 0.519
蓝细菌门Cyanobacteriota 0.46 0.26 0.72 0.17 0.126 0.434

2.3.6 瘤胃菌群差异菌属LEfSe分析

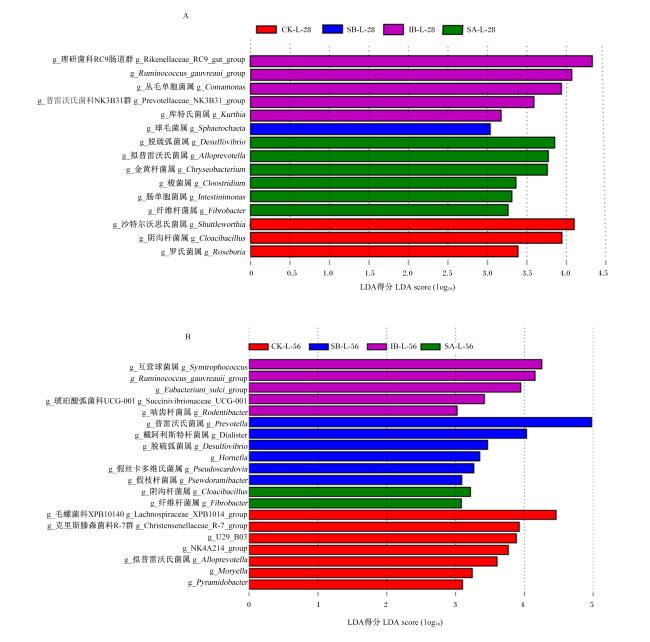
采用LEfSe分析,以线性判别分析(LDA)得分>3和P<0.05为阈值,以鉴定具有显著差异的菌属。由图4-A可知,在第28天,沙特尔沃思氏菌属(Shuttleworthia)、阴沟杆菌属(Cloacibacillus)和罗氏菌属(Roseburia)在CK组中显著富集;脱硫弧菌属(Desulfovibrio)、拟普雷沃氏菌属(Alloprevotella)和纤维杆菌属(Fibrobacter)等6种菌属在SA组中显著富集;球毛菌属(Sphaerochaeta)在SB组中显著富集;理研菌科RC9肠道群、普雷沃氏菌科NK3B31群(Prevotellaceae_NK3B3l_group)等5种菌属在IB组中显著富集。由图4-B可知,在第56天,毛螺菌科XPB1014群(Lachnospiraceae_XPB1014_group)、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)等7个菌属在CK组中显著富集;阴沟杆菌属和纤维杆菌属在SA组中显著富集;普雷沃氏菌属、戴阿利斯特杆菌属(Dialister)和脱硫弧菌属等6种菌属在SB组中显著富集;互营球菌属和Ruminococcus_gauvreauii_group等5种菌属在IB组中显著富集。
图4 瘤胃菌群LDA得分图

A:第28天LDA得分图;B:第56天LDA得分图。

Fig.4 LDA score diagram of rumen microbiota

A: LDA score diagram at day 28; B: LDA score diagram at day 56.

3 讨论

3.1 琥珀酸、丁酸钠和异丁酸对哺乳犊牛生长性能的影响

生长性能(如体重、日增重和采食量等)是评估哺乳期犊牛发育状况的关键指标,其水平高低直接影响犊牛断奶后的生长发育潜力。一般而言,犊牛体重越大、日增重越高,所产生的经济效益也相应越显著[16]。本试验结果表明,在牛奶中添加3种有机酸对哺乳犊牛体重和料重比未产生显著影响,但琥珀酸与丁酸钠的添加显著提高了29~56日龄犊牛的平均日增重。杨靖等[8]报道,在饲粮中添加1%和2%的琥珀酸对滩羊生长性能具有积极促进作用;Liu等[1]的研究也显示,牛奶中添加丁酸钠可提高哺乳犊牛的平均日增重。这说明丁酸钠和琥珀酸作为能量底物可能促进犊牛对营养物质的消化吸收,从而提升日增重。然而,Belli等[17]研究发现,在代乳粉中添加4 g/d丁酸钠并未显著提高犊牛的日增重。这种差异可能与有机酸的添加方式、剂量以及是否采用包被工艺等因素有关。较高的干物质采食量能够为犊牛提供其生长发育所需的能量和蛋白质,并促进断奶后犊牛的生长。哺乳期犊牛的干物质采食量包括牛奶和开食料2部分,在牛奶供给量一致的情况下,开食料干物质采食量的差异将直接导致总干物质采食量的变化[18]。本试验中,SB组在第1~56天期间的平均干物质采食量较其他组显著升高。Kristensen等[19]指出,犊牛对开食料的采食量在很大程度上取决于瘤胃的发育程度,因此SB组开食料干物质采食量的增加可能反映了其瘤胃发育更为完善。由此可知,牛奶中添加1 g/L丁酸钠有助于促进犊牛生长性能,而琥珀酸与异丁酸的作用不显著,二者在哺乳犊牛中的适宜添加量仍有待进一步研究确定。

3.2 琥珀酸、丁酸钠和异丁酸对哺乳犊牛瘤胃发酵参数的影响

瘤胃是反刍动物特有的消化器官,在饲料消化与养分利用过程中发挥关键作用。对于哺乳犊牛而言,瘤胃的发育程度主要受颗粒料采食量及其微生物发酵活动的调控[20]。瘤胃发酵参数是评估瘤胃功能的重要指标,对优化发酵模式与提升能量利用效率具有重要意义。本试验发现,在牛奶中添加3种有机酸对哺乳犊牛瘤胃发酵产生了积极影响。pH是维持瘤胃内环境稳定的关键因素,反刍动物正常瘤胃液pH范围通常在5.5~7.5[21]。本试验中所有组别的瘤胃液pH均处于该适宜范围内,说明有机酸的添加未对瘤胃环境造成不良影响。瘤胃液NH3-N浓度反映了饲粮中氮在瘤胃中的降解与微生物利用效率,其进一步合成微生物蛋白的过程伴随大量的能量消耗[20]。在本试验中,所测得的各组瘤胃液NH3-N浓度均在适宜范围内[22];在第42天,SA和SB组瘤胃液NH3-N浓度较CK组显著升高。这表明琥珀酸和丁酸钠可能会促进饲粮中氮的降解。MCP是反刍动物最重要的氮源,可满足机体40%~80%的蛋白质需求[23]。本试验中,与CK组相比,SA和SB组在第28、42及56天的瘤胃液MCP浓度均显著提升,而IB组无显著变化。该结果与刘文慧[24]关于丁酸钠促进MCP合成的报道一致,说明琥珀酸与丁酸钠可能增强了瘤胃微生物利用NH3-N合成MCP的能力。综上可知,琥珀酸与丁酸钠通过促进氮代谢与MCP合成,对哺乳犊牛瘤胃发酵产生了有益效应。后续研究可进一步探讨这2种有机酸作为外源添加剂,如何通过调控瘤胃菌群结构与代谢活性,精确调节NH3-N生成并促进MCP合成。
挥发性脂肪酸是反刍动物体内最重要的能量来源,其中大部分可直接被瘤胃上皮吸收利用[25]。在瘤胃微生物发酵产生的多种短链脂肪酸中,乙酸、丙酸和丁酸不仅为宿主提供能量,还对瘤胃形态与功能的发育具有重要促进作用[26]。本试验发现,在第56天时,牛奶中丁酸钠或异丁酸的添加显著提高了犊牛瘤胃液中乙酸和丙酸的浓度,而琥珀酸的添加对这2种脂肪酸浓度无显著影响。李新[27]也发现,每日补饲9 g异丁酸能够提升犊牛瘤胃液中乙酸与丙酸浓度,与本试验结果一致。然而,亦有研究指出丁酸钠等有机酸对瘤胃发酵参数无显著影响[28],这种差异可能与有机酸的添加剂量、犊牛日龄及饲养环境等因素有关。丁酸在瘤胃中可进一步转化为β-羟基丁酸,作为能量代谢的关键中间产物[29]。此外,丁酸能够有效刺激瘤胃上皮的发育,其浓度上升时有助于扩大瘤胃上皮吸收表面积,并促进短链脂肪酸在酮体生成途径中的氧化过程[30]。本试验中,SB组自第28天起瘤胃液中丁酸浓度即显著高于CK组,至第42天时IB组丁酸浓度也显著上升,到第56天时所有试验组的丁酸浓度均高于CK组,与前人研究结果[31]相符。SB组早期丁酸浓度的增加可能与其添加的丁酸钠直接进入瘤胃并在其中分解有关;而SA和IB组丁酸浓度的上升,也表明二者在一定程度上具有促进瘤胃发酵与瘤胃上皮发育的潜力。
总挥发性脂肪酸浓度直接影响瘤胃液pH的稳定性,进而促进瘤胃微生物增殖与营养物质的消化吸收。本试验中,在第56天时,SA、SB和IB组瘤胃液中总挥发性脂肪酸浓度均有所升高,这可能与试验组犊牛采食了较多的开食料并促进了碳水化合物在瘤胃中的发酵有关。值得注意的是,本试验所测得的瘤胃液总挥发性脂肪酸浓度低于此前针对哺乳期荷斯坦犊牛的相关报道[27-28],该差异可能与哺乳阶段犊牛开食料采食量的不同有关。在本试验中,犊牛的开食料干物质采食量整体偏低,这可能是导致瘤胃液中总挥发性脂肪酸浓度较低的主要原因。同时,试验期间犊牛的牛奶量供应呈逐步上升趋势,而Zhong等[28]采用的饲喂方案为每日每头犊牛供奶8 L,并每2周递减2 L,直至达到每日4 L,二者在哺乳策略上存在明显差异。本试验中,较高的牛奶供应量可能进一步抑制了犊牛对开食料的摄取,从而也成为总挥发性脂肪酸浓度下降的潜在原因之一。已有研究指出,丁酸钠可能通过促进小肠发育间接影响瘤胃功能[32]。今后研究可进一步聚焦于揭示琥珀酸与异丁酸经牛奶添加后影响瘤胃发育的具体机制。

3.3 琥珀酸、丁酸钠和异丁酸对哺乳犊牛瘤胃菌群结构的影响

瘤胃细菌占瘤胃微生物群落总数的95%以上,在瘤胃内饲粮发酵与养分代谢过程中发挥着关键作用[33]。维持适宜的菌群丰富度与多样性对瘤胃微生态功能的稳定及机体健康具有重要意义[34]。本试验结果显示,在第56天时,SB和IB组的ACE指数较CK组显著降低,且IB组的Chao与Shannon指数也显著低于CK组。该结果与O’hara等[9]的研究结果一致,其使用含丁酸钠的代乳粉饲喂哺乳犊牛,亦发现第56天时丁酸钠组瘤胃菌群丰富度有所下降。这一现象可能与丁酸钠和异丁酸促进纤维分解菌等有益菌群的增殖有关,特定功能菌群的竞争优势可能导致整体菌群丰富度的结构性调整[12]
拟杆菌门与芽孢杆菌门[旧称为厚壁菌门(Firmicutes)]是哺乳犊牛瘤胃中的主要优势菌门[35]。拟杆菌门主要参与非纤维类物质的分解及机体免疫调节,而芽孢杆菌门则在纤维物质降解与能量代谢中发挥关键作用[36-37]。本试验中,在第28和56天,各组的优势菌门均以拟杆菌门、芽孢杆菌门和变形菌门为主;在第28天,IB组拟杆菌门的相对丰度显著低于SB组,表明与异丁酸相比,丁酸钠可能更有利于促进瘤胃中非纤维类物质的分解。
甲烷杆菌门即之前的广古菌门(Euryarchaeota),是一类典型的产甲烷古菌,能够通过氢营养型、甲基营养型及乙酸裂解等多种代谢途径产生甲烷[38]。甲烷作为主要的温室气体之一,当反刍动物排放大量甲烷时会对环境造成潜在影响。本试验发现,在第56天时,SA组甲烷杆菌门的相对丰度显著低于CK组,提示琥珀酸的添加可能在一定程度上抑制了产甲烷菌的增殖,进而有助于减少甲烷的生成。
LEfSe分析首先基于非参数检验确定组间丰度差异显著的物种,再通过线性判别分析计算其LDA得分,最终将LDA得分大于设定阈值的物种定义为该组的潜在生物标志物。LEfSe分析结果显示,在第28天时,罗氏菌属在CK组中显著富集,该菌属隶属于毛螺菌科,是瘤胃中已知的重要丁酸生产者之一[39]。其富集可能促进了瘤胃内丁酸浓度的增加,而丁酸已被证实能够刺激瘤胃上皮细胞增殖并增强营养物质的吸收能力。罗氏菌属在CK组中富集可能是其他组别因为外源有机酸的添加改变了瘤胃微生态环境,促进了其他丁酸生成菌或功能性菌群的生长,从而在整体上维持或提高了丁酸浓度,间接削弱了罗氏菌属的相对竞争优势。本研究发现,脱硫弧菌属在SA组中显著富集。脱硫弧菌属属于硫酸盐还原菌,与硫酸盐代谢密切相关。从热力学和氢利用阈值的角度来看,硫酸盐还原菌对氢的利用具有比产甲烷菌更高的优先级[40]。因此它可以通过异化硫酸盐还原途径与产甲烷菌竞争氢气(H2),从而减少甲烷的生成[41]。但过高浓度的硫化氢(H2S)会对瘤胃产生毒害作用。从第56天试验结果来看,富集的硫酸盐还原菌并未影响SA组的瘤胃发酵。这表明添加琥珀酸可以在一定范围内增加硫酸盐还原菌丰度,减少甲烷的产生。理研菌科RC9肠道群是理研菌科(Rikenellaceae)的一个主属,在碳水化合物和蛋白质的降解中发挥作用[42]。有研究发现,理研菌科RC9肠道群可降低细胞氧化应激,减轻炎症反应[43]。本试验结果表明,异丁酸有利于理研菌科RC9肠道群的早期定植,促进瘤胃发酵;而到第56天,各组富集的菌群则发生了变化;第28和56天时纤维杆菌属均在SA组显著富集,纤维杆菌属是瘤胃中降解和消化纤维素的重要细菌[44],这表明添加琥珀酸促进了犊牛消化利用纤维素;第56天时,脱硫弧菌属在SB组显著富集,这与第28天脱硫弧菌属在SA组富集的结果不同,表明丁酸的长期添加可能会促进脱硫弧菌属的增殖,减少甲烷的产生。普雷沃氏菌属能够发酵蛋白质与淀粉,其代谢终产物乙酸与琥珀酸是宿主重要的能量来源[44]。此外,该菌属还可通过氢化α-亚麻酸参与宿主的脂质代谢调节过程[45]。互营球菌属则主要通过碳水化合物发酵生成乙酸,该过程对早期瘤胃功能的建立与完善具有重要作用[46]。本研究结果表明,普雷沃氏菌属在SB组显著富集,互营球菌属在IB组中显著富集。这表明添加丁酸钠可以促进瘤胃中挥发性脂肪酸的产生,提高饲料利用率和调节脂质代谢,添加异丁酸则可以促进瘤胃发育。

4 结论

在本试验条件下,牛奶中添加琥珀酸和丁酸钠能够提高哺乳犊牛的平均日增重,添加丁酸钠还可以提高哺乳犊牛的平均干物质采食量;此外,牛奶中添加琥珀酸、丁酸钠和异丁酸能够促进哺乳犊牛瘤胃发育,提高瘤胃内挥发性脂肪酸浓度,促进MCP合成;牛奶中添加琥珀酸、丁酸钠和异丁酸还可以改善瘤胃菌群结构,其中添加丁酸钠可以提高瘤胃内普雷沃氏菌属的相对丰度,而添加琥珀酸可以减少甲烷杆菌门的相对丰度。总体来看,以丁酸钠的饲喂效果最好,其次是琥珀酸和异丁酸。
[1]
LIU W H, ZHU LA A L T, EVANS A, et al. Supplementation with sodium butyrate improves growth and antioxidant function in dairy calves before weaning[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):2.

DOI PMID

[2]
FEIZI L K, ZAD S S, JALALI S A H, et al. Fermented soybean meal affects the ruminal fermentation and the abundance of selected bacterial species in Holstein calves:a multilevel analysis[J]. Scientific Reports, 2020, 10(1):12062.

DOI

[3]
DIAO Q Y, ZHANG R, FU T. Review of strategies to promote rumen development in calves[J]. Animals, 2019, 9(8):490.

DOI

[4]
WEI Y H, MA X, ZHAO J C, et al. Succinate metabolism and its regulation of host-microbe interactions[J]. Gut Microbes, 2023, 15(1):2190300.

DOI

[5]
YUAN Y X, XU Y Q, XU J R, et al. Succinate promotes skeletal muscle protein synthesis via Erk1/2 signaling pathway[J]. Molecular Medicine Reports, 2017, 16(5):7361-7366.

DOI PMID

[6]
WANG T, XU Y Q, YUAN Y X, et al. Succinate induces skeletal muscle fiber remodeling via SUCNR1 signaling[J]. EMBO Reports, 2021, 22(6):e53027.

DOI

[7]
WANG K, LIAO M F, ZHOU N, et al. Parabacteroides distasonis alleviates obesity and metabolic dysfunctions via production of succinate and secondary bile acids[J]. Cell Reports, 2019, 26(1):222-235.e5.

DOI

[8]
杨靖, 张宁, 任文义, 等. 饲粮中添加琥珀酸对滩羊生长性能、养分表观消化率、瘤胃发酵参数以及屠宰性能的影响[J]. 动物营养学报, 2024, 36(10):6539-6548.

DOI

YANG J, ZHANG N, REN W Y, et al. Effects of succinic acid supplementation on growth performance,apparent digestibility of nutrients,rumen fermentation parameters and slaughter performance of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6539-6548. (in Chinese)

DOI

[9]
O’HARA E, KELLY A, MCCABE M S, et al. Effect of a butyrate-fortified milk replacer on gastrointestinal microbiota and products of fermentation in artificially reared dairy calves at weaning[J]. Scientific Reports, 2018, 8(1):14901.

DOI PMID

[10]
RICE E M, ARAGONA K M, MORELAND S C, et al. Supplementation of sodium butyrate to postweaned heifer diets:effects on growth performance,nutrient digestibility,and health[J]. Journal of Dairy Science, 2019, 102(4):3121-3130.

DOI

[11]
FANG X Y, WANG Z Y, CHEN Q R, et al. Protective effect of the branched short-chain fatty acid isobutyrate on intestinal damage in weaned piglets through intestinal microbiota remodeling[J]. Journal of the Science of Food and Agriculture, 2025, 105(3):1556-1568.

DOI

[12]
WANG C, LIU Q, ZHANG Y L, et al. Effects of isobutyrate supplementation on ruminal microflora,rumen enzyme activities and methane emissions in Simmental steers[J]. Journal of Animal Physiology and Animal Nutrition, 2015, 99(1):123-131.

DOI

[13]
WANG C, LIU Q, ZHANG Y L, et al. Effects of isobutyrate supplementation in pre- and post-weaned dairy calves diet on growth performance,rumen development,blood metabolites and hormone secretion[J]. Animal, 2017, 11(5):794-801.

DOI

[14]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of colorimetric method for determination of ammonia nitrogen in rumen fluid[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[15]
ERWIN E S, MARCO G J, EMERY E M. Volatile fatty acid analyses of blood and rumen fluid by gas chromatography[J]. Journal of Dairy Science, 1961, 44(9):1768-1771.

DOI

[16]
KIEFER C, MARTINS L P, FANTINI C C. Evaporative cooling for lactating sows under high ambient temperature[J]. Revista Brasileira de Zootecnia, 2012, 41(5):1180-1185.

DOI

[17]
BELLI A L, COELHO S G, CAMPOLINA J P, et al. Effects of supplementing milk replacer with sodium butyrate on dairy calves[J]. Animals, 2024, 14(2):277.

DOI

[18]
KHAN M A, LEE H J, LEE W S, et al. Structural growth,rumen development,and metabolic and immune responses of Holstein male calves fed milk through step-down and conventional methods[J]. Journal of Dairy Science, 2007, 90(7):3376-3387.

DOI

[19]
KRISTENSEN N B, SEHESTED J, JENSEN S K, et al. Effect of milk allowance on concentrate intake,ruminal environment,and ruminal development in milk-fed Holstein calves[J]. Journal of Dairy Science, 2007, 90(9):4346-4355.

DOI

[20]
ZHAO H B, LV F, LIU G H, et al. Characteristics and functions of rumen fermentation parameters and rumen microflora in preweaning lambs[J]. Journal of Animal Physiology and Animal Nutrition, 2025, 109(4):1036-1047.

DOI

[21]
姚海博, 胡晋升, 孙晨旭, 等. 沙葱粉对牦牛瘤胃体外发酵参数、营养物质降解率及微生物区系的影响[J]. 动物营养学报, 2024, 36(6):3739-3755.

DOI

YAO H B, HU J S, SUN C X, et al. Effects of Allium mongolicum regel powder on rumen in vitro fermentation parameters,nutrient degradation rate and microflora of yaks[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3739-3755. (in Chinese)

[22]
ZHANG X, WANG H C, GUO X S. Effects of total mixed ration with various silage on growth performance,serum parameters,ruminal fermentation,and bacteria community profile in beef cattle[J]. Food Science & Nutrition, 2021, 9(11):5959-5970.

DOI

[23]
LI J H, YAN H, CHEN J X, et al. Correlation of ruminal fermentation parameters and rumen bacterial community by comparing those of the goat,sheep,and cow in vitro[J]. Fermentation, 2022, 8(9):427.

DOI

[24]
刘文慧. 丁酸钠与丝兰对哺乳犊牛生长性能、瘤胃发酵及血清指标的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2020:12-16.

LIU W H. Effects of sodium butyrate and Yucca on growth performance,rumen fermentation and serum indices of dairy calves before weaning[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2020:12-16. (in Chinese)

[25]
ZHANG Z G, XU D M, WANG L, et al. Convergent evolution of rumen microbiomes in high-altitude mammals[J]. Current Biology, 2016, 26(14):1873-1879.

DOI PMID

[26]
罗治杰, 马露, 卜登攀, 等. 瘤胃发酵产物乙酸和丙酸比对奶牛生产性能及乳成分影响的荟萃分析[J]. 中国畜牧兽医, 2021, 48(5):1613-1624.

DOI

LUO Z J, MA L, BU D P, et al. Meta-analysis:how the ruminal acetic acid to propionic acid ratio affect the production and milk composition of dairy cow[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(5):1613-1624. (in Chinese)

[27]
李新. 异丁酸对犊牛胃肠发育、瘤胃发酵和纤维分解菌菌群定量表达的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2013:31-33.

LI X. Effects of isobutyric acid on gastrointestinal development,ruminal fermentation and quantitative expression of cellulolytic bacteria in Chinese Holstein bull calves[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2013:31-33. (in Chinese)

[28]
ZHONG H Y, YU W J, WANG M, et al. Sodium butyrate promotes gastrointestinal development of preweaning bull calves via inhibiting inflammation,balancing nutrient metabolism,and optimizing microbial community functions[J]. Animal Nutrition, 2023, 14:88-100.

DOI

[29]
LIU L X, SUN D M, MAO S Y, et al. Infusion of sodium butyrate promotes rumen papillae growth and enhances expression of genes related to rumen epithelial VFA uptake and metabolism in neonatal twin lambs[J]. Journal of Animal Science, 2019, 97(2):909-921.

DOI PMID

[30]
李旺. 瘤胃挥发性脂肪酸的作用及影响因素[J]. 中国畜牧杂志, 2012, 48(7):63-66.

LI W. The effect and influence factors of rumen volatile fatty acid[J]. Chinese Journal of Animal Science, 2012, 48(7):63-66. (in Chinese)

[31]
HERRICK K J, HIPPEN A R, KALSCHEUR K F, et al. Single-dose infusion of sodium butyrate,but not lactose,increases plasma β-hydroxybutyrate and insulin in lactating dairy cows[J]. Journal of Dairy Science, 2017, 100(1):757-768.

DOI

[32]
GÓRKA P, KOWALSKI Z M, PIETRZAK P, et al. Effect of method of delivery of sodium butyrate on rumen development in newborn calves[J]. Journal of Dairy Science, 2011, 94(11):5578-5588.

DOI PMID

[33]
CASTILLO-GONZÁLEZ A R, BURROLA-BARRAZA M E, DOMÍNGUEZ-VIVEROS J, et al. Rumen microorganisms and fermentation[J]. Archivos de Medicina Veterinaria, 2014, 46(3):349-361.

DOI

[34]
ZOU B C, LONG F, XUE F G, et al. Alleviation effects of niacin supplementation on beef cattle subjected to heat stress:a metagenomic insight[J]. Frontiers in Microbiology, 2022, 13:975346.

[35]
WU D L, ZHANG Z H, SHAO K, et al. Effects of sodium butyrate supplementation in milk on the growth performance and intestinal microbiota of preweaning Holstein calves[J]. Animals, 2023, 13(13):2069.

DOI

[36]
QIU Y, ZHANG X P, YING M, et al. A strain of Paenibacillus polysaccharolyticus XY5 promotes fiber component degradation in a co-fermentation system of mulberry leaves and distillers’ grains[J]. Letters in Applied Microbiology, 2025, 78(5):ovaf058.

[37]
GHARECHAHI J, VAHIDI M F, SHARIFI G, et al. Lignocellulose degradation by rumen bacterial communities:new insights from metagenome analyses[J]. Environmental Research, 2023, 229:115925.

[38]
CHEN Q, LYU W T, PAN C L, et al. Tracking investigation of archaeal composition and methanogenesis function from parental to offspring pigs[J]. Science of the Total Environment, 2024, 927:172078.

DOI

[39]
XU Q, YUAN X Y, GU T T, et al. Comparative characterization of bacterial communities in geese fed all-grass or high-grain diets[J]. PLoS One, 2017, 12(10):e0185590.

DOI

[40]
DJEMAI K, DRANCOURT M, TIDJANI ALOU M. Bacteria and methanogens in the human microbiome:a review of syntrophic interactions[J]. Microbial Ecology, 2022, 83(3):536-554.

DOI

[41]
ZHAO Y C, XIE B, GAO J, et al. Dietary supplementation with sodium sulfate improves rumen fermentation,fiber digestibility,and the plasma metabolome through modulation of rumen bacterial communities in steers[J]. Applied and Environmental Microbiology, 2020, 86(22):e01412-e01420.

[42]
SU X L, TIAN Q, ZHANG J, et al. Acetobacteroides hydrogenigenes gen.nov.,sp.nov.,an anaerobic hydrogen-producing bacterium in the family Rikenellaceae isolated from a reed swamp[J]. International Journal of Systematic and Evolutionary Microbiology, 2014, 64(Pt 9):2986-2991.

DOI

[43]
张曼, 王书祥, 程晨旭, 等. 不同亚麻籽水平饲粮对舍饲牦牛生长性能、血清生化指标、瘤胃发酵参数及瘤胃菌群结构的影响[J]. 动物营养学报, 2024, 36(11):7081-7096.

DOI

ZHANG M, WANG S X, CHENG C X, et al. Effects of different flaxseed level diets on growth performance,serum biochemical indexes,rumen fermentation parameters and rumen microbiota structure of house-fed yaks[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7081-7096. (in Chinese)

DOI

[44]
邵鹏阳, 沙玉柱, 刘秀, 等. 黄芪饲料添加剂对羔羊生长性能、血清Ig和瘤胃发酵功能及微生物菌群特征的影响[J]. 中国农业科技导报, 2025, 27(3):83-94.

SHAO P Y, SHA Y Z, LIU X, et al. Effects of Astragalus feed additive on growth performance,serum Ig,rumen fermentation and microbiota of lambs[J]. Journal of Agricultural Science and Technology, 2025, 27(3):83-94. (in Chinese)

[45]
张帅, 陈奎蓉, 许迪, 等. 基于16S rRNA测序分析高低饲料转化率猪粪便微生物的组成差异[J]. 畜牧兽医学报, 2024, 55(4):1605-1614.

DOI

ZHANG S, CHEN K R, XU D, et al. Analysis of microbial composition differences in high and low feed conversion rates pig feces based on 16S rRNA sequencing[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(4):1605-1614. (in Chinese)

DOI

[46]
WANG S, KONG F L, LIU J J, et al. Comparative analysis of rumen microbiota composition in dairy cows with simple indigestion and healthy cows[J]. Microorganisms, 2023, 11(11):2673.

DOI

文章导航

/