研究论文

胆汁酸对牦牛犊牛生长性能、养分消化、瘤胃发酵及微生物区系的影响

  • 邢亚慧 , 1, 2 ,
  • 次旦央吉 2 ,
  • 次桑卓玛 2 ,
  • 古桑德吉 2 ,
  • 德吉曲珍 2 ,
  • 巴桑旺堆 2 ,
  • 程文博 1 ,
  • 韩铖星 1 ,
  • 郭艳丽 , 1, * ,
  • 朱彦宾 , 2, *
展开
  • 1 甘肃农业大学动物科学技术学院,兰州 730070
  • 2 西藏自治区农牧科学院,拉萨 850000
* 郭艳丽,教授,博士生导师,E-mail: ;
朱彦宾,研究员,E-mail:

邢亚慧(2002—),女,甘肃通渭人,硕士研究生,研究方向为反刍动物营养。E-mail:

收稿日期: 2025-07-04

  网络出版日期: 2026-01-13

基金资助

国家重点研发计划-藏区牦牛藏羊选育与高效健康养殖集成示范(2022YFD1302101)

现代农业产业技术体系肉牛牦牛产业技术体系(CARS-37)

Effects of Bile Acids on Growth Performance, Nutrient Digestion, Rumen Fermentation and Microbiota in Yak Calves

  • XING Yahui , 1, 2 ,
  • CIDAN Yangji 2 ,
  • CISANG Zhuoma 2 ,
  • GUSANG Deji 2 ,
  • DEJI Quzhen 2 ,
  • BASANG Wangdui 2 ,
  • CHENG Wenbo 1 ,
  • HAN Chengxing 1 ,
  • GUO Yanli , 1, * ,
  • ZHU Yanbin , 2, *
Expand
  • 1 College of Animal Science and Technology, Gansu Agricultural University, Lanzhou 730070, China
  • 2 Xizang Academy of Agriculture and Animal Husbandry Sciences, Lhasa 850000, China
* GUO Yanli, professor, E-mail: ;
ZHU Yanbin, professor, E-mail:

Received date: 2025-07-04

  Online published: 2026-01-13

摘要

本试验旨在研究胆汁酸对牦牛犊牛生长性能、养分消化、瘤胃发酵及微生物区系的影响。选取6月龄左右、体重[(70.93±2.86) kg]相近的断奶公牦牛27头,随机分为3组,每组9头。对照组(CN组)饲喂基础饲粮,试验组在基础饲粮中分别添加6(DL组)和12 g/(d·头)的胆汁酸(DH组)。预试期10 d,正试期60 d。结果表明:1)DH组的末重、平均日增重(ADG)、平均干物质采食量(ADMI)、中性洗涤纤维消化率及总挥发性脂肪酸、乙酸浓度显著高于CN组(P<0.05)。2)DH组和DL组的瘤胃液微生物Shannon指数、ACE指数和Chao1指数显著高于CN组(P<0.05);瘤胃微生物相对丰度上,DH组的未分类菌门、互养菌门和瘤胃球菌属相对丰度显著高于CN组和DL组(P<0.05);功能预测分析结果显示,脂质代谢通路、碳水化合物代谢通路、能量代谢通路以及脂质转运和代谢通路等在DH组显著富集(P<0.05)。3)相关性分析发现,ADG、ADMI与脂质代谢通路呈显著正相关(P<0.05);ADG、ADMI和乙酸的浓度与瘤胃球菌属相对丰度呈显著正相关(P<0.05)。由此可见,饲粮中添加胆汁酸能够增强牦牛犊牛对养分的消化利用,改善瘤胃微生物区系结构,促进生长发育;本试验条件下,以DH组的效果最好。

本文引用格式

邢亚慧 , 次旦央吉 , 次桑卓玛 , 古桑德吉 , 德吉曲珍 , 巴桑旺堆 , 程文博 , 韩铖星 , 郭艳丽 , 朱彦宾 . 胆汁酸对牦牛犊牛生长性能、养分消化、瘤胃发酵及微生物区系的影响[J]. 动物营养学报, 2026 , 38(1) : 456 -467 . DOI: 10.12418/CJAN2026.036

Abstract

The aim of this experiment was to study the effects of bile acids on growth performance, nutrient digestion, rumen fermentation and microbiota of yak calves. Twenty-seven weaned male yaks of about 6 months of age with similar body weight [(70.93±2.86) kg] were selected and randomly divided into three groups of nine yaks each. The control group (CN group) was fed a basal diet, and the experimental groups was fed the basal diet supplemented with either 6 (DL group) or 12 g/(d·head) (DH group) of bile acids. The pre-feeding period lasted for 10 days, and the main trial period lasted for 60 days. The results showed as follows: 1) the final weight, average daily gain (ADG), average dry matter intake (ADMI), neutral detergent fiber digestibility, total volatile fatty acids, and acetic acid concentrations in the DH group were significantly higher than those in the CN group (P<0.05). 2) The Shannon index, ACE index and Chao1 index of rumen fluid microbiota were significantly higher in DH and DL groups than those in CN group. (P<0.05); in terms of relative abundance of rumen microbial communities, the relative abundance of unclassified_k_norank_d_Bacteria, Synergistetes, and Ruminococcus in the DH group were significantly higher than those in the CN and DL groups (P<0.05). Functional prediction analysis results showed that pathways including lipid metabolism, carbohydrate metabolism, energy metabolism, and lipid transport and metabolism were significantly enriched in the DH group (P<0.05). 3) Correlation analysis found that ADG and ADFI were significantly positively correlated with lipid metabolism pathway (P<0.05), and AA concentration was significantly positively correlated with the relative abundance of Ruminococcus (P<0.05). The above results indicate that dietary supplementation of bile acids can enhance nutrient digestion and utilization, improve rumen microbial structure, and promote growth and development in yak calves. Under the conditions of this experiment, the effect of the DH group is the best.

牦牛作为青藏高原特有的反刍动物,其瘤胃发育和瘤胃微生物是影响生长发育的关键因素。然而,高海拔地区独特的环境条件(低温、低氧、牧草季节性短缺等)导致牦牛普遍存在生长周期长、饲料利用率低等问题。断奶后的牦牛犊牛处于生命周期中的关键阶段,此时瘤胃发育尚未成熟、微生物群落结构不稳定、消化能力较弱[1],难以满足犊牛的正常生长发育需求。因此,通过添加外源性胆汁酸促进脂肪消化、改善肠道功能并增强养分的消化利用能力[2-3],对提高牦牛养殖产业的经济效益具有关键意义。
胆汁酸作为胆固醇衍生的两亲性甾体分子[4],不仅是脂质乳化与吸收的关键介质[5],更是调控宿主代谢和微生物稳态的重要信号分子[6]。研究表明,胆汁酸可通过激活法尼醇X受体(FXR)和G蛋白偶联胆汁酸受体5(TGR5)[7],调节脂质、葡萄糖及能量代谢[8],并参与肠道免疫[9]与炎症反应[10]。Parsaie等[11]研究发现,在肉鸡饲粮中添加胆汁酸可显著提高肉鸡平均日增重(ADG)和平均日采食量,并改善其生长性能。Song等[2]研究发现,在断奶仔猪饲粮中添加鹅去氧胆酸可增加肠道有益菌的相对丰度,降低肠道有害菌的相对丰度,改善仔猪肠道健康,并显著提高末重(FBW)和ADG,降低料重比(F/G),从而促进仔猪生长发育。张航宇等[12]研究发现,在围产期荷斯坦奶牛饲粮中添加20 g(有效含量30%)胆汁酸,能够提升有益菌群双歧杆菌属(Bifidobacterium)和瘤胃球菌属(Ruminococcus)相对丰度,并使后肠道中乙酸(AA)浓度呈现升高趋势。这有效改善了奶牛的后肠道消化功能,从而维护奶牛健康。宋品等[13]研究发现,在亚急性瘤胃酸中毒(SARA)山羊饲粮中添加1.0 g/(d·头)的胆汁酸,能促进SARA山羊的生长发育,改善瘤胃发酵功能,增加瘤胃微生物丰富度和多样性。Zhang等[14]研究发现,饲粮中添加0.04%的胆汁酸可提高羔羊瘤胃内总挥发性脂肪酸(TVFA)、AA和戊酸(VA)浓度,显著富集瘤胃梭菌目和丁酸球菌属。此外,还通过激活3-脱氢胆汁酸酶,将初级胆汁酸转化为猪去氧胆汁酸和6-酮基石胆酸等功能性次级胆汁酸(占35%)。生成的次级胆汁酸进一步调控宿主脂质代谢、氨基酸代谢和葡萄糖代谢。大量研究表明,饲粮中添加胆汁酸对单胃动物生长和养分消化利用具有积极作用[15]。在反刍动物的研究中发现,胆汁酸不仅能改善其生产性能,还能改变肠道微生物区系及功能[16]。但关于胆汁酸在牦牛尤其是犊牛中的研究相对匮乏,鲜见相关报道。笔者推测胆汁酸对牦牛犊牛生长发育和瘤胃微生物区系可能存在积极影响。因此,本试验以6月龄断奶公牦牛作为研究对象,探究在饲粮中添加胆汁酸对其生长性能、养分消化、瘤胃发酵及微生物区系的影响,为胆汁酸在牦牛产业的高效利用提供科学依据。

1 材料与方法

1.1 伦理声明

本研究使用的试验动物和试验设计方案已获得西藏农科院实验动物伦理委员会的批准(审批编号:TAAHS-2023-62)。

1.2 试验材料

本试验所用复合胆汁酸(猪胆酸、猪去氧胆酸和鹅去氧胆酸)纯度≥95%;牦牛犊牛由西藏林周县格桑塘现代农牧产业示范园提供。

1.3 试验设计

试验采用单因素完全随机设计,选取6月龄左右、体重[(70.93±2.86) kg]相近、健康状况良好的断奶公牦牛27头,随机分为3组,每组9个重复,每个重复1头。对照组(CN组)饲喂基础饲粮,试验组在基础饲粮中分别添加6(DL组)和12 g/(d·头)(DH组)胆汁酸。整个试验期70 d,其中预试期10 d,正试期60 d。基础饲粮参照《肉牛饲养标准》(NY/T 815—2004)配制,精粗比为40∶60。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
小麦秸秆Wheat straw 40.00
苜蓿干草Alfalfa hay 20.00
玉米Corn 20.00
豆粕Soybean meal 10.00
麸皮Wheat bran 5.00
膨化大豆Puffed soybean 2.00
食盐NaCl 0.50
磷酸氢钙CaHPO4 0.50
预混料Premix1) 2.00
合计Total 100.00
营养水平Nutrient levels2)
粗蛋白质CP 13.86
中性洗涤纤维NDF 34.19
酸性洗涤纤维ADF 19.61
钙Ca 0.36
磷P 0.31
代谢能ME/(MJ/kg) 6.48

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 14 000 IU,VD3 2 800 IU,VE 40 IU,Cu 15 mg,Fe 50 mg,Zn 30 mg,Mn 50 mg,Se 0.4 mg,I 0.9 mg,Co 0.4 mg。

2)代谢能为计算值,根据《肉牛饲养标准》(NY/T 815—2004)计算,其余均为实测值。ME was a calculated value, according to Standards for Raising Beef Cattle (NY/T 815—2004), while the others were measured values.

1.4 饲养管理

本试验于2024年7—10月在西藏林周县格桑塘现代农牧产业示范园(东经91°11″,北纬29°5″,海拔3 870 m左右)进行。试验开始前对试验牛只进行驱虫和耳号记录,并对试验圈舍进行清扫消毒等工作。所有试验牛均采用单栏饲养。试验期于每日09:00和17:00各饲喂1次,所有牛只自由采食及饮水。圈舍进行定期清理消毒,保证牛况健康。

1.5 样品采集与指标测定

1.5.1 生长性能

分别于正试期第1、60天对试验牛进行空腹称重,记录初重(IBW)和FBW,计算ADG。每天准确记录饲喂量,次日收集剩余料进行称重。每2周对新鲜饲粮和剩余饲粮进行采样,于105 ℃烘箱烘干至恒重,计算饲粮干物质(DM)含量,进而计算平均干物质采食量(ADMI)。通过ADG和ADMI计算F/G。
ADG=(FBW-IBW)/饲喂天数;
ADMI=[(饲喂量-剩料量)×饲粮DM含量]/饲喂天数;
F/G=ADMI/ADG。

1.5.2 养分消化率

采用四分法每7 d收集1次饲粮样品,65 ℃烘干至恒重,制成风干样品后置于-20 ℃保存待测。试验结束前7 d,采用内源指示剂法测定养分消化率。每组随机选取6头试验犊牛,于每日晨饲前及傍晚各采集1次粪便样,连续采集7 d。粪便样品经等比例混合后取总量的5%代表性样品,加入10%稀硫酸溶液用以固氮,另取总量的10%在65 ℃烘箱中烘至恒重,粉碎过40目筛后保存待测。
DM、粗蛋白质(CP)、粗脂肪(EE)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、钙(Ca)、磷(P)和酸不溶灰分(AIA)含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、GB/T 20806—2022、NY/T 1459—2022、GB/T 13885—2017、GB/T 6437—2018和GB/T 23742—2009中方法进行测定。采用AIA法进行养分消化率的计算,公式如下:
饲粮中某养分的消化率(%)=[1-(粪样中该养分含量/饲粮中该养分含量)×(饲粮中AIA含量/粪样中AIA含量)]×100。

1.5.3 瘤胃发酵参数

试验最后1 d晨饲前,每组随机选择6头试验犊牛,采用胃管式瘤胃采样器采集瘤胃液。为减少唾液污染,弃去最初抽取的50 mL瘤胃液,后续抽取的瘤胃液经4层纱布过滤后,分装至5 mL冻存管内,置于液氮罐中带回实验室-80 ℃保存用于瘤胃发酵参数测定。其中氨态氮(NH3-N)浓度参照冯宗慈等[17]比色法测定,挥发性脂肪酸(VFA)浓度采用气相色谱仪(GC-2014,日本岛津公司)测定[18]

1.5.4 瘤胃微生物区系

瘤胃液样品经液氮速冻后干冰运输至实验室,-80 ℃保存,用于瘤胃微生物16S rRNA的测定。采用DNeasy PowerSoil Pro Kit试剂盒(Qiagen,德国)提取微生物总DNA,通过1%琼脂糖凝胶电泳检测DNA完整性和纯度。使用带Illumina测序接头的特异性引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')对细菌16S rRNA基因V3~V4高变区进行PCR扩增。扩增产物经2%琼脂糖凝胶电泳验证后,采用AxyPreP DNA凝胶回收试剂盒(Axygen,美国)进行目的片段纯化。使用Illumina TruSeq Nano DNA LT Library Prep Kit(Illumina,美国)进行测序文库构建,在FLx800型酶标仪(BioTek,美国)使用Quant-iT PicoGreen dsDNA检测试剂盒(Invitrogen,美国)进行文库定量,并利用Agilent 2100生物分析仪(Agilent,美国)评估文库片段分布。最终文库在Illumina NovaSeq 6000测序平台上,采用NovaSeq 6000 SP Reagent Kit(500 cycles)(Illumina,美国)进行双端250 bp(PE 250)测序,单个样本测序数据量≥50 000 reads以确保稀有物种检出效能。原始测序数据经Trimmomatic v0.39进行质控,剔除Phred质量值<20的低质量碱基及引物序列,过滤长度<200 bp的短读长。采用DADA2 v1.24进行序列去噪(denoising)及嵌合体去除,最终获得扩增子序列变体(ASVs)。基于SILVA 138参考数据库,利用QIIME2 v2021.11平台的q2-feature-classifier插件,通过朴素贝叶斯算法对ASV进行物种注释(置信度阈值≥0.8)。Alpha多样性分析包括Shannon指数、Simpson指数、ACE指数和Chao1指数。Beta多样性分析基于Bray-Curtis距离矩阵进行主坐标分析(PCoA)。

1.6 数据整理与分析

试验数据采用Excel 2019进行初步整理后,用SPSS 24.0软件进行单因素方差分析(one-way ANOVA),差异显著时用Duncan氏法进行多重比较,P<0.05表示显著差异。结果以平均值和均值标准误(SEM)表示。

2 结果与分析

2.1 胆汁酸对牦牛犊牛生长性能和养分消化率的影响

表2可知,DH组的FBW、ADG、ADMI和NDF消化率显著高于CN组(P<0.05),但DL组与CN组无显著差异(P≥0.05),其余指标在各组间无显著差异(P≥0.05)。
表2 胆汁酸对牦牛犊牛生长性能和养分消化率的影响

Table 2 Effects of bile acids on growth performance and nutrient digestibility in yak calves

项目
Items
组别Groups SEM P
P-value
CN DL DH
生长性能Growth performance
初重IBW/kg 70.00 72.92 73.75 1.083 0.353
末重FBW/kg 99.33b 104.58ab 112.25a 2.087 0.028
平均日增重ADG/(g/d) 488.89b 527.78b 641.67a 22.866 0.008
平均干物质采食量ADMI/(kg/d) 5.34b 5.75ab 6.69a 0.249 0.046
料重比F/G 11.17 12.69 10.35 0.794 0.536
养分消化率Nutrient digestibility/%
干物质DM 67.67 68.81 68.66 0.345 0.389
有机物OM 70.79 71.04 70.87 0.090 0.578
粗蛋白质CP 71.93 72.21 72.57 0.140 0.175
粗脂肪EE 80.93 81.50 82.11 0.288 0.273
中性洗涤纤维NDF 62.82b 63.88ab 64.89a 0.370 0.043
酸性洗涤纤维ADF 53.91 54.08 54.25 0.179 0.796

同行数据肩标无字母或相同字母表示差异不显著(P≥0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P≥0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 胆汁酸对牦牛犊牛瘤胃发酵参数的影响

表3可知,DH组和DL组的TVFA浓度显著高于CN组(P<0.05),DH组的AA浓度显著高于CN组(P<0.05),其余指标在各组间无显著差异(P≥0.05)。
表3 胆汁酸对牦牛犊牛瘤胃发酵参数的影响

Table 3 Effects of bile acids on ruminal fermentation parameters in yak calves

项目
Items
组别Groups SEM P
P-value
CN DL DH
氨态氮NH3-N/(mg/dL) 10.94 9.97 10.86 0.384 0.585
乙酸AA/% 60.31b 61.11b 62.74a 0.418 0.020
丙酸PA/% 23.68 23.83 22.94 0.702 0.889
丁酸BA/% 12.13 11.54 11.27 0.337 0.633
异丁酸IBA/% 1.69 1.63 1.31 0.084 0.135
异戊酸IVA/% 2.19 1.98 1.74 0.158 0.580
乙丙比A/P 2.55 2.57 2.74 0.043 0.131
总挥发性脂肪酸TVFA/(mmol/L) 69.28b 78.84a 83.29a 2.278 0.006

2.3 胆汁酸对牦牛犊牛瘤胃微生物区系的影响

2.3.1 瘤胃微生物Alpha多样性分析

表4可知,所有试验样本的测序覆盖率均高于99%,所收集的样本能真实地反映瘤胃微生物的变化情况。2个添加剂量组的Shannon指数、ACE指数、Chao1指数显著高于CN组(P<0.05),Simpson指数在各组间无显著差异(P≥0.05)。
表4 胆汁酸对牦牛犊牛Alpha多样性指数的影响

Table 4 Effects of bile acids on alpha diversity indexes in yak calves

项目
Items
组别Groups SEM P
P-value
CN DL DH
Shannon指数Shannon index 5.65b 6.07a 6.17a 0.168 0.006
Simpson指数Simpson index 0.02 0.01 0.01 0.011 0.388
ACE指数ACE index 2 520.90b 3 207.10a 3 359.10a 245.073 0.009
Chao1指数Chao1 index 2 488.70b 3 158.40a 3 287.01a 232.580 0.006
覆盖度Coverage 0.99 0.99 0.99 0.001 0.062

2.3.2 瘤胃微生物Beta多样性分析

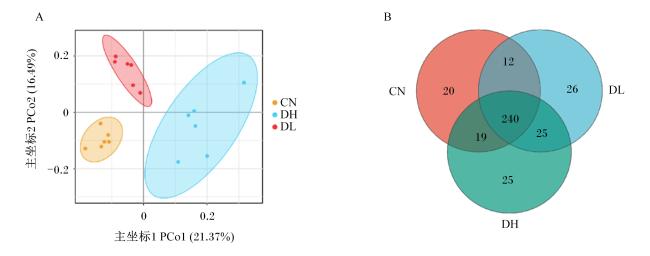
图1-A可知,基于Bray-Curtis距离分析PCoA的主坐标1(PCo1)和主坐标2(PCo2)的微生物结构变异量分别为21.37%和16.49%。各组间和组内相对分离,表明在饲粮中添加胆汁酸对牦牛犊牛瘤胃微生物结构有一定的影响。
图1 胆汁酸对牦牛犊牛瘤胃微生物Beta多样性的影响及Venn图

A:主坐标分析;B:韦恩图。CN:对照组;DL:低剂量组;DH:高剂量组。

Fig.1 Effects of bile acids on Beta diversity of rumen microbiota in yak calves and Venn diagram

A:principal coordinates analysis;B:Venn diagram. CN:control group;DL:low-dose group;DH:high-dose group.

2.3.3 瘤胃微生物分类学分析

图1-B可知,3组共鉴定出392个操作分类单元(OTU),其中3组共有OTU数目为240个,占总数的61.2%。CN、DL和DH组的OTU数目分别是291、303、309个,各组特有的OTU数目分别是20、26、25个。

2.3.4 瘤胃微生物相对丰度

表5可知,在门水平上,3组的瘤胃优势菌门为厚壁菌门和拟杆菌门,相对丰度平均值分别是56.36%和37.23%。DH组的未分类菌门和互养菌门相对丰度显著高于CN组和DL组(P<0.05),其余菌门的相对丰度在各组间差异均不显著(P≥0.05)。
表5 胆汁酸对牦牛犊牛瘤胃微生物相对丰度的影响

Table 5 Effects of bile acids on relative abundance of rumen microbiota in yak calves %

项目
Items
组别Groups SEM P
P-value
CN DL DH
门水平Phylum level
厚壁菌门Firmicutes 55.31 55.58 58.19 1.595 0.743
拟杆菌门Bacteroidetes 37.16 37.12 37.42 1.735 0.997
放线菌门Actinobacteria 1.50 2.08 2.78 0.268 0.150
髌骨细菌门Patescibacteria 1.36 2.02 2.72 0.336 0.269
未分类菌门 0.16b 0.21b 0.33a 0.029 0.036
Unclassified_k_norank_d_Bacteria
纤维杆菌门Fibrobacteres 0.07 0.07 0.08 0.013 0.981
互养菌门Synergistetes 0.008b 0.020b 0.048a 0.006 9 0.041
其他Others 0.011 0.021 0.017 0.005 0 0.732
属水平Genus level
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
12.50 10.17 15.70 1.138 0.136
未明确科的F082 Norank_f_F082 9.76 10.01 10.15 0.922 0.987
克里斯腾森菌科R-7群
Christensenellaceae_R-7_group
8.36 7.68 8.68 0.544 0.767
草酸杆菌属Oxalobacter 7.99 8.93 7.45 1.528 0.937
NK4A214群NK4A214_group 6.55 6.27 7.58 0.359 0.311
毛螺菌科NK3A20群
Lachnospiraceae_NK3A20_group
2.65 2.01 2.21 0.237 0.566
产乙酸糖发酵菌属
Saccharofermentans
1.94 2.43 1.92 0.147 0.286
瘤胃球菌属Ruminococcus 1.39b 1.66b 3.81a 0.443 0.037
其他Others 31.06 32.11 32.87 0.707 0.604
在属水平上,3组的瘤胃优势菌属为理研菌科RC9肠道群和未明确科的F082,相对丰度平均值分别是12.79%和9.97%。DH组的瘤胃球菌属的相对丰度显著高于CN组和DL组(P<0.05),其余菌属的相对丰度各组间差异均不显著(P≥0.05)。

2.3.5 瘤胃微生物代谢途径和功能预测分析

表6可知,在KEGG生物代谢二级通路水平上发现,牦牛犊牛的脂质代谢、氨基酸代谢、碳水化合物代谢、能量代谢通路在DH组显著富集(P<0.05),COG通路富集发现脂质转运和代谢在DH组和DL组显著富集(P<0.05)。

2.3.6 生长性能相关性状和瘤胃发酵参数与瘤胃微生物及代谢通路的相关性分析

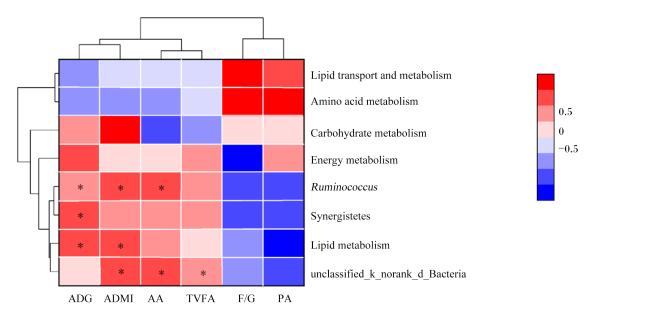
图2可知,ADMI、TVFA和乙酸的浓度与未分类菌门相对丰度呈显著正相关(P<0.05)。ADG和ADMI与脂质代谢呈显著正相关(P<0.05)。ADG、ADMI和AA的浓度与瘤胃球菌属相对丰度呈显著正相关(P<0.05)。
表6 KEGG功能通路和COG功能通路

Table 6 KEGG functional pathway and COG functional pathway

项目
Items
组别Groups SEM P
P-value
CN DL DH
KEGG通路富集分析KEGG pathway enrichment analysis
脂质代谢Lipid metabolism 0.17b 0.19b 0.23a 0.010 0.020
氨基酸代谢Amino acid metabolism 0.48b 0.49b 0.52a 0.007 0.019
碳水化合物代谢Carbohydrate metabolism 0.66b 0.69a 0.75a 0.015 0.025
能量代谢Energy metabolism 0.23b 0.29a 0.30a 0.011 0.013
COG通路富集分析COG pathway enrichment analysis
脂质转运和代谢
Lipid transport and metabolism
2.56b 3.02a 2.93a 0.082 0.023
复制、重组和修复
Replication, recombination and repair
6.16 6.13 6.14 0.271 0.314
图2 生长性能相关性状、瘤胃VFA与瘤胃微生物区系相关性分析

ADG:平均日增重 average daily gain;ADMI:平均干物质采食量 average dry matter intake;AA:乙酸 acetic acid;TVFA:总挥发性脂肪酸 total volatile fatty acid;F/G:料重比 feed to gain ratio;PA:丙酸 propionic acid;unclassified_k_norank_d_Bacteria:未分类菌门;Lipid metabolism:脂质代谢;Synergistetes:互养菌门;Ruminococcus:瘤胃球菌属;Energy metabolism:能量代谢;Carbohydrate metabolism:碳水化合物代谢;Amino acid metabolism:氨基酸代谢;Lipid transport and metabolism:脂质转运和代谢。

*表示显著相关(P<0.05)。* indicates significant correlation (P<0.05).

Fig.2 Correlation analysis of growth performance-related traits, rumen VFA and rumen microbiota

3 讨论

3.1 胆汁酸对牦牛犊牛生长性能和养分消化率的影响

牦牛犊牛阶段是肉用牦牛养殖过程中的重要培育时期,其生长发育状况直接影响后续育肥阶段的生产效率与养殖经济收益。在实际生产中,ADG、ADMI及F/G是反映动物生长性能,评估养殖经济效益的关键指标。本试验中,DH组的FBW、ADG、ADMI显著高于CN组,说明在犊牛饲粮中添加胆汁酸能有效促进其生长发育。原因可能是胆汁酸作为一种天然脂质乳化剂,能够有效地将脂肪乳化形成乳糜微粒,从而增加与脂肪酶的接触面积,促进脂肪的消化吸收,改善动物的生长性能[19]。这与Qiu等[20]在断奶仔猪、Parsaie等[11]在肉鸡、Peng等[21]在鱼上的研究结果一致,即胆汁酸可以显著提高FBW、ADG和ADMI。
养分消化率是衡量动物对饲粮消化、吸收和利用效率的关键指标,能直观反映动物对饲粮的利用能力[22-23]。本试验中,DH组的NDF消化率显著高于CN组。这说明胆汁酸能改善反刍动物瘤胃对纤维类物质的降解能力,进而促进生长性能。原因可能是胆汁酸通过促进小肠内脂肪的乳化与吸收,降低肠道内游离的脂肪酸含量,增加了NDF与对应底物的结合[24],从而导致NDF消化率升高。Geng等[25]研究发现,添加80 mg/kg的胆汁酸对肉仔鸡的DM和CP消化率无显著影响,这与本试验结果一致。但也有研究表明,胆汁酸在断奶仔猪[3]、牛蛙[26]中显著提高了DM、EE、CP的消化率,造成这种差异的原因可能是添加剂量不同或物种不同所导致的。

3.2 胆汁酸对牦牛犊牛瘤胃发酵参数的影响

反刍动物体内70%~80%的能量来源于VFA,瘤胃发酵产生的VFA主要以短链脂肪酸为主,包括AA、丙酸、丁酸等[27]。其中AA占VFA总量的75%,发挥着调控瘤胃代谢和能量平衡的重要作用。VFA浓度的增加促进动物生产性能改善与机体代谢功能增强。此外,VFA的生物合成主要受瘤胃微生物代谢调控[28]。AA浓度的增加有助于改善瘤胃发酵方式,提升能量代谢效率,减少能量损失[29]。本试验中,DH组的TVFA和AA浓度显著高于CN组。Fan等[16]在围产期奶牛饲粮中添加10 g/d的熊去氧胆汁酸和20 g/d的胆汁盐发现,瘤胃中TVFA和AA浓度显著提高。Zhang等[14]研究发现,在羔羊饲粮中添加0.04%胆汁酸能显著提高瘤胃中TVFA和AA浓度,这与本试验研究结果一致。此结果说明胆汁酸可以改善牦牛犊牛瘤胃对养分的发酵,提高对机体能量的供应。本试验中瘤胃纤维降解菌属和互养菌门相对丰度的增加[30-31],也从侧面印证了这一结论。

3.3 胆汁酸对牦牛犊牛瘤胃微生物区系和功能的影响

反刍动物的瘤胃是消化系统中的关键器官,瘤胃内微生物区系的丰富度和结构直接关系到动物对养分的消化、吸收和利用效率。维持瘤胃微生物结构的稳定对于保障动物健康,促进生长发育具有重要意义[32]。在Alpha多样性指数分析中,ACE指数和Chao1指数主要衡量物种丰富度,Shannon指数和Simpson指数主要衡量物种多样性。本试验发现,DH组的Shannon指数、ACE指数及Chao1指数显著高于CN组,这说明胆汁酸能提高瘤胃微生物的丰富度和多样性。这与宋品等[13]在亚急性瘤胃酸中毒山羊中的研究结果一致,即胆汁酸可显著提高Shannon指数和Chao1指数。
在门水平上,本试验发现厚壁菌门和拟杆菌门是牦牛犊牛瘤胃微生物的优势菌门,这与反刍动物典型瘤胃微生物组成一致[33]。其中,厚壁菌门所属细菌主要在纤维素的降解中发挥作用,生成的VFA为反刍动物提供能量[34]。拟杆菌门所属细菌是瘤胃中蛋白质和可溶性碳水化合物的主要分解者[35]。本试验中,DH组的未分类菌门和互养菌门相对丰度显著高于CN组,与本试验中该组的VFA浓度高以及NDF的消化率高的结果一致。Yin等[36]研究发现,饲粮添加胆汁酸导致奶山羊直肠未分类菌门相对丰度升高,与本试验结果一致。现有研究表明,互养菌门是一类具有独特代谢特性的厌氧细菌,可能通过利用其他微生物分解蛋白质和多肽获得氨基酸,经脱氨基等代谢途径生成乙酸[30],维持瘤胃酸性环境,保证瘤胃微生物对饲粮的充分发酵[37]。在属水平上,理研菌科RC9肠道群和未明确科的F082为3组的优势菌属,其相对丰度均有所升高。本试验中,DH组的瘤胃球菌属相对丰度显著高于CN组,这与Zhang等[14]在羔羊上的研究结果一致。瘤胃球菌属作为瘤胃内重要的纤维素降解菌,通过分泌高度结构化的纤维小体,整合多种糖苷水解酶和木聚糖酶,促进纤维素和半纤维素的降解[38]。这一过程可提升木质纤维素的分解效率,进而提高NDF中可降解组分的消化率。最终代谢产物为AA、丙酸和丁酸等VFA[39]。生成的VFA不仅是宿主自身重要的能量来源,还能通过调节瘤胃内pH,维持瘤胃微生物的稳定[40]。综上所述,胆汁酸可能通过改变瘤胃微生物区系结构,维持瘤胃内环境稳态。
通过Picrust2软件比对3组牦牛犊牛瘤胃微生物功能的预测分析发现,代谢产物的差异丰度显著富集于脂质代谢、氨基酸代谢、碳水化合物代谢、能量代谢以及脂质转运和代谢途径。这表明外源性胆汁酸的添加可能主要通过改变瘤胃微生物区系的结构和功能,从而增强微生物对脂质、氨基酸、碳水化合物等养分的代谢能力。一方面可能因为胆汁酸通过瘤胃微生物的酶促反应转化为次级胆汁酸,显著调控微生物区系结构和功能。而次级胆汁酸与瘤胃微生物相互作用或直接进入外周血循环,进而影响宿主的脂质、氨基酸及葡萄糖代谢[12]。另一方面可能是胆汁酸作为信号分子,可以通过激活FXR,上调小异源二聚体伴侣(SHP)的表达,进而抑制胆固醇7α-羟化酶和固醇12α-羟化酶的转录,在脂质代谢、葡萄糖代谢和能量代谢过程中发挥重要的调节作用[41-42]。在棕色脂肪组织中,胆汁酸还可以通过激活G蛋白偶联胆汁酸受体-环磷酸腺苷-2型碘甲腺原氨酸脱碘酶-三碘甲状腺激素(TGR5-cAMP-D2-T3)号通路,将无活性甲状腺激素(T4)转变为有活性T3,从而增加机体的能量消耗,导致机体代谢增强[43]。这些结果表明,胆汁酸可能通过改善瘤胃微生物区系对脂质代谢、能量代谢等进行调控。

3.4 相关性分析

通过对生长性能相关性状与瘤胃微生物的相关性分析发现,ADG、ADMI与脂质代谢呈显著正相关。瘤胃微生物可以将脂质水解为甘油和游离脂肪酸,其中长链脂肪酸通过β-氧化等途径进入三羧酸循环,最终产生大量的ATP为动物生长提供能量[44]。瘤胃球菌属作为重要的产乙酸菌,可以利用纤维素等发酵底物产生大量的乙酸。本试验中,瘤胃球菌属的相对丰度与AA的浓度呈显著正相关,这与常帅飞等[45]和王亚玲等[46]的研究结果一致。瘤胃球菌属作为瘤胃内的主要纤维素降解菌,其中,黄色瘤胃球菌可产生内切葡聚糖酶、外切葡聚糖酶和β-葡萄糖苷酶等纤维素酶,并通过形成高度结构化的纤维小体复合物,共同作用水解纤维素中的β-1,4糖苷键,最终降解为葡萄糖[47-48]。这些葡萄糖经瘤胃微生物发酵后产生VFA,为反刍动物提供更多可利用能量,促进动物生长。综上所述,本试验发现胆汁酸能够提升养分消化、促进瘤胃发酵并调节瘤胃微生物区系的结构,进而促进犊牛生长发育。然而,对于胆汁酸在调控瘤胃微生物生理过程中的具体机制,尤其是胆汁酸与瘤胃微生物之间的互作方式,仍需要深入探索。

4 结论

饲粮中添加胆汁酸一定程度上改变了牦牛犊牛瘤胃微生物多样性和丰富度,提高了瘤胃中未分类菌门、互养菌门以及瘤胃球菌属的相对丰度,并富集脂质代谢、碳水化合物代谢、氨基酸代谢、能量代谢以及脂质转运和代谢等通路;促进了瘤胃发酵,提高了瘤胃VFA浓度和纤维消化,从而提高了犊牛的生长性能。
[1]
孟令宝, 王有帅, 王亚林. 犊牛消化不良性腹泻的成因及防治措施[J]. 畜牧业环境, 2025(4):77-78.

MENG L B, WANG Y S, WANG Y L. Causes and prevention measures for indigestion-related diarrhea in calves[J]. Animal Industry and Environment, 2025(4):77-78. (in Chinese)

[2]
SONG M, ZHANG F L, CHEN L, et al. Dietary chenodeoxycholic acid improves growth performance and intestinal health by altering serum metabolic profiles and gut bacteria in weaned piglets[J]. Animal Nutrition, 2021, 7(2):365-375.

DOI PMID

[3]
QIN J W, WEI X K, CAO M M, et al. Non-12α-hydroxylated bile acids improve piglet growth performance by improving intestinal flora,promoting intestinal development and bile acid synthesis[J]. Animals, 2023, 13(21):3380.

DOI

[4]
KIRIYAMA Y, NOCHI H. Role of microbiota-modified bile acids in the regulation of intracellular organelles and neurodegenerative diseases[J]. Genes, 2023, 14(4):825.

DOI

[5]
HOFMANN A F, HAGEY L R. Bile acids:chemistry, pathochemistry,biology,pathobiology,and therapeutics[J]. Cellular and Molecular Life Sciences, 2008, 65(16):2461-2483.

DOI

[6]
LARABI A B, MASSON H L P, BÄUMLER A J. Bile acids as modulators of gut microbiota composition and function[J]. Gut Microbes, 2023, 15(1):2172671.

DOI

[7]
PATHAK P, XIE C, NICHOLS R G, et al. Intestine farnesoid X receptor agonist and the gut microbiota activate G-protein bile acid receptor-1 signaling to improve metabolism[J]. Hepatology, 2018, 68(4):1574-1588.

DOI PMID

[8]
CAI J W, RIMAL B, JIANG C T, et al. Bile acid metabolism and signaling,the microbiota,and metabolic disease[J]. Pharmacology & Therapeutics, 2022, 237:108238.

[9]
HE Y M, SHAOYONG W K, CHEN Y L, et al. The functions of gut microbiota-mediated bile acid metabolism in intestinal immunity[J/OL]. Journal of Advanced Research, 2025,doi:10.1016/j.jare.2025.05.015.

[10]
FIORUCCI S, MARCHIANO S, DISTRUTTI E, et al. Bile acids and their receptors in hepatic immunity[J]. Liver Research, 2025, 9(1):1-16.

DOI

[11]
PARSAIE S, SHARIATMADARI F, ZAMIRI M J, et al. Influence of wheat-based diets supplemented with xylanase,bile acid and antibiotics on performance,digestive tract measurements and gut morphology of broilers compared with a maize-based diet[J]. British Poultry Science, 2007, 48(5):594-600.

DOI

[12]
张航宇. 日粮添加胆汁酸对围产期荷斯坦奶牛生产性能、血清参数及后肠道微生物区系的影响[D]. 硕士学位论文. 兰州: 兰州大学, 2024.

ZHANG H Y. Effects of dietary bile acid supplementation on performance,serum parameters and gut microbiota of transitional Holstein dairy cows[D]. Master’s Thesis. Lanzhou: Lanzhou University, 2024. (in Chinese)

[13]
宋品, 侯曼曼, 陈悦, 等. 日粮添加胆汁酸对亚急性瘤胃酸中毒山羊生长性能、瘤胃发酵和菌群结构的影响[J]. 畜牧与兽医, 2024, 56(5):51-57.

SONG P, HOU M M, CHEN Y, et al. Effects of dietary bile acids on growth performance,rumen fermentation and microbial community structure of goat under subacute ruminal acidosis[J]. Animal Husbandry & Veterinary Medicine, 2024, 56(5):51-57. (in Chinese)

[14]
ZHANG B Y, JIANG X Z, YU Y, et al. Rumen microbiome-driven insight into bile acid metabolism and host metabolic regulation[J]. The ISME Journal, 2024, 18(1):wrae098.

[15]
LI Y Z, WANG S P, HU Y R, et al. Dietary bile acid supplementation reveals beneficial effects on intestinal healthy status of tongue sole (Cynoglossus semiliaevis)[J]. Fish & Shellfish Immunology, 2021, 116:52-60.

[16]
FAN F X, WU F C, GUO Z Y, et al. Supplementation with ursodeoxycholic acid and bile salt benefits lactation performance,health,and rumen and fecal microbiota of transition dairy cows[J]. Journal of Dairy Science, 2025, 108(6):5982-5996.

DOI

[17]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(S1):37.

FENG Z C, GAO M. Improvement of the method for determination of ammonia-nitrogen content in rumen fluid by colorimetry[J]. Animal Husbandry and Feed Science, 2010, 31(S1):37. (in Chinese)

[18]
TIAN K, LIU J H, SUN Y W, et al. Effects of dietary supplementation of inulin on rumen fermentation and bacterial microbiota,inflammatory response and growth performance in finishing beef steers fed high or low-concentrate diet[J]. Animal Feed Science and Technology, 2019, 258:114299.

[19]
DI GREGORIO M C, CAUTELA J, GALANTINI L. Physiology and physical chemistry of bile acids[J]. International Journal of Molecular Sciences, 2021, 22(4):1780.

DOI

[20]
QIU Y Q, LIU S L, HOU L, et al. Supplemental choline modulates growth performance and gut inflammation by altering the gut microbiota and lipid metabolism in weaned piglets[J]. The Journal of Nutrition, 2021, 151(1):20-29.

DOI

[21]
PENG X R, FENG L, JIANG W D, et al. Supplementation exogenous bile acid improved growth and intestinal immune function associated with NF-κB and TOR signalling pathways in on-growing grass carp (Ctenopharyngodon idella):enhancement the effect of protein-sparing by dietary lipid[J]. Fish & Shellfish Immunology, 2019, 92:552-569.

[22]
杨靖, 张宁, 任文义, 等. 饲粮中添加琥珀酸对滩羊生长性能、养分表观消化率、瘤胃发酵参数以及屠宰性能的影响[J]. 动物营养学报, 2024, 36(10):6539-6548.

DOI

YANG J, ZHANG N, REN W Y, et al. Effects of succinic acid supplementation on growth performance,apparent digestibility of nutrients,rumen fermentation parameters and slaughter performance of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6539-6548. (in Chinese)

DOI

[23]
陈月丽, 罗华东, 梁煜阳, 等. 饲粮磷水平对生长奶水牛生长性能、养分表观消化率和磷排泄的影响[J]. 动物营养学报, 2024, 36(12):7799-7808.

DOI

CHEN Y L, LUO H D, LIANG Y Y, et al. Effects of dietary phosphorus level on growth performance,nutrient apparent digestibility and phosphorus excretion of growing dairy buffaloes[J]. Chinese Journal of Animal Nutrition, 2024, 36(12):7799-7808. (in Chinese)

[24]
吴明海. 奶牛日粮中添加胆汁酸盐饲喂效果研究[D]. 硕士学位论文. 石河子: 石河子大学, 2019.

WU M H. Study on the effects of bile salt in dairy cows diet[D]. Master’s Thesis. Shihezi: Shihezi University, 2019. (in Chinese)

[25]
GENG S X, ZHANG Y X, CAO A Z, et al. Effects of fat type and exogenous bile acids on growth performance,nutrient digestibility,lipid metabolism and breast muscle fatty acid composition in broiler chickens[J]. Animals, 2022, 12(10):1258.

DOI

[26]
胡田恩, 王玲, 张春晓, 等. 饲料中添加胆汁酸对牛蛙生长性能、体组成和营养物质表观消化率的影响[J]. 水生生物学报, 2015, 39(4):677-685.

HU T E, WANG L, ZHANG C X, et al. Effects of dietary bile acid supplementation on the growth,whole-body composition and apparent nutrient digestibility of bullfrog (Rana catesbeiana)[J]. Acta Hydrobiologica Sinica, 2015, 39(4):677-685. (in Chinese)

[27]
汪晓娟, 吕凤, 庞鑫, 等. 早期补饲开食料对羔羊瘤胃组织转录组的影响[J]. 农业生物技术学报, 2022, 30(3):517-527.

WANG X J, LV F, PANG X, et al. Effects of early supplementation with starter on rumen tissue transcriptome in lambs (Ovis aries)[J]. Journal of Agricultural Biotechnology, 2022, 30(3):517-527. (in Chinese)

[28]
OGUNADE I M, MCCOUN M, IDOWU M D, et al. Comparative effects of two multispecies direct-fed microbial products on energy status,nutrient digestibility,and ruminal fermentation,bacterial community,and metabolome of beef steers[J]. Journal of Animal Science, 2020, 98(9):skaa201.

[29]
张漫, 吴钰楠, 张陈红, 等. 乙酸对反刍动物瘤胃代谢及内环境稳态影响的研究进展[J]. 中国畜牧杂志, 2023, 59(12):37-43.

ZHANG M, WU Y N, ZHANG C H, et al. Research progress on the effect of acetic acid on rumen metabolism and homeostasis of ruminants[J]. Chinese Journal of Animal Science, 2023, 59(12):37-43. (in Chinese)

[30]
VARTOUKIAN S R, PALMER R M, WADE W G. The division “Synergistes”[J]. Anaerobe, 2007, 13(3/4):99-106.

DOI

[31]
司振书, 江成. 瘤胃微生物对纤维素的降解及其应用[J]. 微生物学杂志, 2003, 23(6):61-64.

SI Z S, JIANG C. The degradation of cellulose by rumen microbial and its application[J]. Journal of Microbiology, 2003, 23(6):61-64. (in Chinese)

[32]
ROUND J L, MAZMANIAN S K. The gut microbiota shapes intestinal immune responses during health and disease[J]. Nature Reviews Immunology, 2009, 9(5):313-323.

DOI PMID

[33]
GUO W, LI Y, WANG L Z, et al. Evaluation of composition and individual variability of rumen microbiota in yaks by 16S rRNA high-throughput sequencing technology[J]. Anaerobe, 2015, 34:74-79.

DOI PMID

[34]
MYER P R, SMITH T P L, WELLS J E, et al. Rumen microbiome from steers differing in feed efficiency[J]. PLoS One, 2015, 10(6):e0129174.

DOI

[35]
WANG Y J, JIANG M Y, TANG Y M, et al. The effects of soil intake on the growth performance,rumen microbial community and tissue mineral deposition of German Mutton Merino sheep[J]. Ecotoxicology and Environmental Safety, 2023, 263:115368.

[36]
YIN Q Y, YU J J, LI J X, et al. Enhancing milk quality and modulating rectal microbiota of dairy goats in starch-rich diet:the role of bile acid supplementation[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):7.

DOI

[37]
张曼, 王书祥, 程晨旭, 等. 不同亚麻籽水平饲粮对舍饲牦牛生长性能、血清生化指标、瘤胃发酵参数及瘤胃菌群结构的影响[J]. 动物营养学报, 2024, 36(11):7081-7096.

DOI

ZHANG M, WANG S X, CHENG C X, et al. Effects of different flaxseed level diets on growth performance,serum biochemical indexes,rumen fermentation parameters and rumen microbiota structure of house-fed yaks[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7081-7096. (in Chinese)

DOI

[38]
FLINT H J, BAYER E A. Plant cell wall breakdown by anaerobic microorganisms from the Mammalian digestive tract[J]. Annals of the New York Academy of Sciences, 2008, 1125:280-288.

DOI PMID

[39]
穆兰, 徐凤莲, 程占军, 等. 瘤胃微生物厌氧消化降解木质纤维素废弃物技术研究进展[J]. 能源环境保护, 2024, 38(5):78-91.

MU L, XU F L, CHENG Z J, et al. Research progress on anaerobic digestion and degradation of lignocellulosic waste by rumen microorganisms[J]. Energy Environmental Protection, 2024, 38(5):78-91. (in Chinese)

[40]
LIU Y R, WANG C, LIU Q, et al. Effects of branched-chain volatile fatty acids and fibrolytic enzyme on rumen development in pre- and post-weaned Holstein dairy calves[J]. Animal Biotechnology, 2020, 31(6):512-519.

DOI

[41]
SINAL C J, TOHKIN M, MIYATA M, et al. Targeted disruption of the nuclear receptor FXR/BAR impairs bile acid and lipid homeostasis[J]. Cell, 2000, 102(6):731-744.

DOI PMID

[42]
徐旭龙, 赵雪, 沈昕, 等. FXR/SHP通路介导依折麦布改善草甘膦诱导性肝损伤的机制[J]. 湖北科技学院学报(医学版), 2025, 39(6):502-506.

XU X L, ZHAO X, SHEN X, et al. The FXR/SHP pathway mediates the mechanism by which ezetimibe ameliorates glyphosate-induced hepatotoxicity[J]. Journal of Hubei University of Science and Technology (Medical Sciences), 2025, 39(6):502-506. (in Chinese)

[43]
WATANABE M, HOUTEN S M, MATAKI C, et al. Bile acids induce energy expenditure by promoting intracellular thyroid hormone activation[J]. Nature, 2006, 439(7075):484-489.

DOI

[44]
王艳萍, 耿伟涛. 生物化学[M]. 2版. 北京: 中国轻工业出版社, 2021:259.

WANG Y P, GENG W T. Biochemistry[M]. 2nd ed. Beijing: China Light Industry Press, 2021:259. (in Chinese)

[45]
常帅飞, 程雨辰, 任文义, 等. 不同纤维源富集奶牛瘤胃纤维降解菌多样性分析[J]. 动物营养学报, 2024, 36(11):7068-7080.

DOI

CHANG S F, CHENG Y C, REN W Y, et al. Diversity analysis of rumen fiber-degrading bacteria in dairy cows enriched with different fiber sources[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7068-7080. (in Chinese)

DOI

[46]
王亚玲, 孔鹏辉, 袁冬冬, 等. 饲粮添加乙酸钠对奶山羊泌乳性能和瘤胃微生物区系的影响[J]. 动物营养学报, 2023, 35(1):428-438.

DOI

WANG Y L, KONG P H, YUAN D D, et al. Effects of dietary sodium acetate on lactation performance and rumen microbiota of dairy goats[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):428-438. (in Chinese)

DOI

[47]
郑娟善, 张剑搏, 梁泽毅, 等. 瘤胃微生物对木质纤维素降解的研究进展[J]. 动物营养学报, 2020, 32(5):2010-2019.

DOI

ZHENG J S, ZHANG J B, LIANG Z Y, et al. Research progress on degradation of lignocellulose by rumen microorganisms[J]. Chinese Journal of Animal Nutrition, 2020, 32(5):2010-2019. (in Chinese)

[48]
LIANG J S, NABI M, ZHANG P Y, et al. Promising biological conversion of lignocellulosic biomass to renewable energy with rumen microorganisms:a comprehensive review[J]. Renewable and Sustainable Energy Reviews, 2020, 134:110335.

文章导航

/