研究论文

豆粕和玉米蛋白粉不同饲粮蛋白质源对山羊生长性能及胃肠道抗氧化和免疫功能的影响

  • 李樟燕 , 1, 2 ,
  • 赵烨嬋 2 ,
  • 焦金真 , 2, 3, * ,
  • 谭支良 2, 3 ,
  • 李建中 , 1, *
展开
  • 1 湖南师范大学生命科学学院,动物肠道功能调控湖南省重点实验室,长沙 410081
  • 2 中国科学院亚热带农业生态研究所,饲草种质高效设计与利用全国重点实验室,长沙 410125
  • 3 岳麓山实验室,长沙 410128
* 焦金真,副研究员,硕士生导师,E-mail: ;
李建中,教授,博士生导师,E-mail:

李樟燕(2001—),女,湖南衡阳人,硕士研究生,从事反刍动物肉品质调控研究。E-mail:

收稿日期: 2025-05-30

  网络出版日期: 2026-01-13

基金资助

湖南省自然科学基金杰出青年项目(2023JJ10047)

湖南省科技创新计划项目(2022RC1158)

Effects of Different Dietary Protein Sources as Soybean Meal and Corn Gluten Meal on Growth Performance and Gastrointestinal Antioxidant and Immune Functions of Goats

  • LI Zhangyan , 1, 2 ,
  • ZHAO Yechan 2 ,
  • JIAO Jinzhen , 2, 3, * ,
  • TAN Zhiliang 2, 3 ,
  • LI Jianzhong , 1, *
Expand
  • 1 Hunan Provincial Key Laboratory of Animal Intestinal Function and Regulation, College of Life Sciences, Hunan Normal University, Changsha 410081, China
  • 2 State Key Laboratory of Forage Breeding-by-Design and Utilization, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 3 Yuelushan Laboratory, Changsha 410128, China
* JIAO Jinzhen, associate professor, E-mail: ;
LI Jianzhong, professor, E-mail:

Received date: 2025-05-30

  Online published: 2026-01-13

摘要

本试验旨在探究豆粕和玉米蛋白粉2种不同饲粮蛋白质源对山羊生长性能及胃肠道抗氧化和免疫功能的影响。选择24只体况良好、体重[(12.45±1.80) kg]相近的湘东黑山羊,随机分为分别以玉米蛋白粉和豆粕为饲粮蛋白质源的玉米蛋白粉组(CGM组)和豆粕组(SBM组),每组12个重复,每个重复1只羊。预试期10 d,正试期60 d。结果表明:1)与CGM组相比,SBM组山羊平均日增重、干物质采食量、胴体重和屠宰率显著提高(P<0.05),料重比显著降低(P<0.05)。2)与CGM组相比,SBM组瘤胃黏膜过氧化氢酶活性显著提高(P<0.05)。3)与CGM组相比,SBM组瘤胃黏膜白细胞介素-1β(IL-1β)和肿瘤坏死因子-α含量显著降低(P<0.05),结肠黏膜IL-1β和白细胞介素-10(IL-10)含量显著提高(P<0.05)。4)β多样性分析显示,2组间瘤胃和结肠黏膜微生物群落有显著的聚类差异(P<0.05)。与CGM组相比,SBM组瘤胃黏膜脱硫杆菌门I(Desulfobacterota_I)相对丰度显著降低(P<0.05),结肠黏膜普雷沃氏菌属(Prevotella)相对丰度显著提高(P<0.05)。5)相关性分析表明,在瘤胃黏膜中,脱硫弧菌属R_446353(Desulfovibrio_R_446353)相对丰度与谷胱甘肽过氧化物酶活性呈显著负相关[相关系数(r)<-0.5,P<0.05],普雷沃氏菌属相对丰度与白细胞介素-2含量呈显著负相关(r<-0.5,P<0.05),丁酸弧菌属A_168226(Butyrivibrio_A_168226)相对丰度与IL-10含量呈显著正相关(r>0.5,P<0.05);在结肠黏膜中,阿克曼菌属(Akkermansia)相对丰度与IL-1β和IL-10含量呈显著负相关(r<-0.5,P<0.05),丁酸弧菌属A_168226相对丰度与IL-10含量呈显著正相关(r>0.5,P<0.05)。综上所述,与玉米蛋白粉相比,豆粕作为饲粮蛋白质源能显著提高山羊生长性能和屠宰性能,同时通过改善胃肠道黏膜微生物群落组成提升免疫功能。

本文引用格式

李樟燕 , 赵烨嬋 , 焦金真 , 谭支良 , 李建中 . 豆粕和玉米蛋白粉不同饲粮蛋白质源对山羊生长性能及胃肠道抗氧化和免疫功能的影响[J]. 动物营养学报, 2026 , 38(1) : 483 -494 . DOI: 10.12418/CJAN2026.038

Abstract

This experiment aimed to explore the effects of two different dietary protein sources, namely soybean meal and corn gluten meal, on growth performance and gastrointestinal antioxidant and immune functions of goats. Twenty-four Xiangdong black goats with good physical condition and similar body weight of (12.45±1.80) kg were selected and randomly divided into the corn gluten meal group (CGM group) and the soybean meal group (SBM group), with corn gluten meal and soybean meal as the dietary protein sources, respectively. There were 12 replicates in each group, and one goat in each duplicate. The pre-test period was 10 days and the formal test period was 60 days. The results showed as follows: 1) compared with CGM group, the average daily gain, dry matter intake, carcass weight and dressing percentage of goats in SBM group were significantly increased (P<0.05), and the feed to gain ratio was significantly decreased (P<0.05). 2) Compared with CGM group, the catalase activity in rumen mucosa in SBM group was significantly increased (P<0.05). 3) Compared with CGM group, the contents of interleukin-1β (IL-1β) and tumor necrosis factor-α in rumen mucosa in SBM group were significantly decreased (P<0.05), and the contents of IL-1β and interleukin-10 (IL-10) in colonic mucosa were significantly increased (P<0.05). 4) β diversity analysis showed that there were significant clustering differences in microbiota both in rumen and colonic mucosa between the two groups (P<0.05). Compared with CGM group, the Desulfobacterota_I relative abundance in rumen mucosa in SBM group was significantly decreased (P<0.05), and the Prevotella relative abundance in colonic mucosa was significantly increased (P<0.05). 5) The correlation analysis indicated that, in rumen mucosa, the Desulfovibrio_R_446353 relative abundance was significantly negatively correlated with the glutathione peroxidase activity [correlation coefficient (r)<-0.5, P<0.05], the Prevotella relative abundance was significantly negatively correlated with the interleukin-2 content (r<-0.5, P<0.05), and the Butyrivibrio_A_168226 relative abundance was significantly positively correlated with the IL-10 content (r>0.5, P<0.05); in colonic mucosa, the Akkermansia relative abundance was significantly negatively correlated with the contents of IL-1β and IL-10 (r<-0.5, P<0.05), and the Butyrivibrio_A_168226 relative abundance was significantly positively correlated with the IL-10 content (r>0.5, P<0.05). In conclusion, compared with corn gluten meal, soybean meal as a dietary protein source can significantly improve the growth performance and slaughter performance of goats, and at the same time enhance the immune function by improving the microbiota composition in gastrointestinal mucosa.

肉羊生产是畜牧业的重要组成部分,羊肉是百姓“菜篮子”中不可或缺的重要食材。随着居民收入水平的提升和消费观念的转变,羊肉消费需求稳步增长。与此同时,畜禽养殖数量增加,但饲料蛋白质资源短缺限制了畜牧业的发展。豆粕是主要的饲用蛋白质来源,其具有氨基酸组成较为平衡、蛋白质含量高、价格较低和抗营养因子少等优点[1]。从肉羊营养物质表观消化率和有效能值来看,豆粕的品质优于菜籽粕、干酒糟及其可溶物以及棉籽粕等蛋白质原料[2]。豆粕的原料是大豆,而我国的大豆长期依赖进口。2023年,全国范围内大豆产量有2 084.17万t,而大豆的进口数量却有9 861.00万t,表明大豆的供需缺口大[3]。近几年,豆粕价格一直处于高位,2022—2023年其价格突破5 500元/t[4]。饲料成本的增加无疑降低了养殖业的利润。因此,探究多元化蛋白质原料在肉羊饲粮中的应用,对于促进畜牧业可持续发展具有重要意义。
玉米蛋白粉是玉米湿法加工过程的副产品,粗蛋白质含量高达40%~60%,与豆粕相当,主要由玉米蛋白、球蛋白和谷蛋白等植物蛋白质组成。不过,研究表明,玉米蛋白粉的代谢蛋白质组成与豆粕存在显著差异,表现为瘤胃可降解蛋白质(RDP)比例低于豆粕(17% vs 27%),而其瘤胃不可降解蛋白质(RUP)比例却高于豆粕(29% vs 17%)[5]。与此同时,与豆粕的均衡氨基酸组成相比,玉米蛋白粉缺乏赖氨酸和色氨酸等必需氨基酸,这在很大程度上限制了其在饲粮中的应用[5-6]。康金海等[7]通过在肉羊基础饲粮中分别添加20%、40%和60%的发酵玉米蛋白粉,以替代基础饲粮中的豆粕,结果发现20%发酵玉米蛋白粉替代豆粕能提高肉羊的生长性能和屠宰性能,且对肉品质无负面影响。张桂菊等[8]用玉米蛋白粉等氮替代豆粕,结果表明当肉牛全混合日粮中玉米蛋白粉的添加水平为2.5%时,肉牛的生长性能和氮利用率最佳。以上研究表明,适量的玉米蛋白粉可以替代豆粕作为蛋白质源应用到反刍动物养殖过程中。
反刍家畜特异性的胃肠道结构和庞大而复杂的微生物区系,共同决定着宿主的营养和健康平衡[9]。胃肠道黏膜主要通过先天防御和适应性防御来抵御来自细菌及其代谢产物、病毒、寄生虫和环境抗原的挑战,黏膜附着微生物通过与宿主上皮细胞的直接互作,在营养代谢和免疫调控中发挥关键作用[10]。研究表明,山羊胃肠道黏膜微生物主要包括埃希氏菌属(Escherichia)、丁酸弧菌属(Butyrivibrio)、弯曲菌属(Campylobacter)和普雷沃氏菌属(Prevotella)等[11]。Wu等[12]通过整合黏膜微生物组与宿主基因表达谱发现,微生物群落与宿主上皮之间存在阶段特异性的相互作用,表现在早期阶段强调消化和免疫发育,而后期阶段则专注于增强营养代谢。然而,遗憾的是,很少有研究关注反刍动物胃肠道黏膜微生物对于不同蛋白质源饲粮的响应机制。
因此,本研究以湘东黑山羊为试验对象,通过比较豆粕和玉米蛋白粉这2种代谢蛋白质和氨基酸组成不同的饲粮蛋白质源对山羊生长性能及胃肠道抗氧化和免疫功能的影响,并通过16S rRNA基因测序技术分析胃肠道微生物多样性,探究不同饲粮蛋白质源对胃肠道微生物群落的影响,旨在为优化肉羊饲粮配方、促进多元化蛋白质源饲料的合理应用提供科学依据。

1 材料与方法

1.1 试验设计和饲养管理

本试验严格遵循《实验动物管理与使用指南》,并获得中国科学院亚热带农业生态研究所动物伦理委员会的批准(批准号:ISA-R-202206)。动物饲养试验在湖南省娄底市进行。在试验开始前,对所有山羊进行严格的健康检查,以确保其身体状况适合参与试验。试验选取24只体重[(12.45±1.80) kg]相近、处于生长期(6月龄左右)的湘东黑山羊,根据不同饲粮蛋白质源,随机分为2组,分别为玉米蛋白粉组(CGM组)和豆粕组(SBM组),每组12个重复,每个重复1只羊。2组饲粮组成及营养水平见表1。预试期10 d,正试期60 d。
表1 饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of diets (DM basis) %

项目
Items
组别Groups
CGM SBM
原料Ingredients
玉米秸秆Corn stalk 40.00 40.00
玉米Corn 16.00 16.00
玉米蛋白粉Corn gluten meal 12.00
豆粕Soybean meal 4.00 16.00
次粉Wheat middling 7.00 7.00
膨化大豆Extruded soybean 10.00 10.00
乳糖Lactose 4.00 4.00
脂肪粉Fat powder 2.40 2.40
碳酸钙CaCO3 0.10 0.10
磷酸氢钙CaHPO4 2.00 2.00
预混料Premix1) 2.00 2.00
食盐NaCl 0.50 0.50
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 10.00 10.13
中性洗涤纤维NDF 46.44 48.28
粗蛋白质CP 16.10 15.98
瘤胃不可降解蛋白质∶
瘤胃可降解蛋白质
RUP∶RDP
45∶55 35∶65

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:Fe 32.86 mg,Cu 10.10 mg,Zn 51.31 mg,Mn 33.05 mg,I 1.78 mg,Co 0.32 mg,Se 0.32 mg,VA 2 000 IU,VD 480 IU。

2)代谢能和瘤胃不可降解蛋白质∶瘤胃可降解蛋白质为计算值,其余为实测值。ME and RUP∶RDP were calculated values, while the others were measured values.

试验期间,所有山羊均采用单独栏舍饲养,分别于每天08:30和17:30进行2次饲喂,并精确记录每只山羊每日的饲粮摄入量以及次日早晨饲喂前的饲粮剩余量,用于计算其采食量;饲养期间自由饮水,正试期饲喂量以预试期记录的该组山羊最低采食量为基准,精饲料和粗饲料按比例准确称量并混合均匀后饲喂。

1.2 试验样品采集及保存

正试期结束后,次日开始屠宰,屠宰前禁食24 h,禁水2 h。在屠宰过程中,采用无菌采样袋和手术刀采集瘤胃和结肠上皮黏膜样本,液氮速冻后于-80 ℃保存。

1.3 测定指标及方法

1.3.1 生长性能和屠宰性能

正试期开始之前和结束之后保持试验羊空腹并称重,记录初始体重和终末体重,计算平均日增重(ADG);根据采食量计算干物质采食量(DMI),并计算料重比(F/G)。屠宰后记录胴体重,并计算屠宰率。

1.3.2 饲粮营养水平

饲粮干物质含量参照GB/T 6435—2014中方法测定,粗蛋白质含量参照GB/T 6432—2018中方法测定,中性洗涤纤维含量参照GB/T 20806—2022中方法测定;代谢能和瘤胃不可降解蛋白质∶瘤胃可降解蛋白质根据中国饲料数据库(https://www.chinafeeddata.org.cn)中各种饲料原料的值进行计算。代谢能计算公式如下:
代谢能(MJ/kg)=∑(A×B)。
式中:A为某种饲粮原料的代谢能(MJ/kg);B为该饲料原料占饲粮的百分比(%)。

1.3.3 胃肠道黏膜抗氧化指标

瘤胃和结肠黏膜超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPX)和过氧化氢酶(CAT)活性采用试剂盒(北京盒子生工科技有限公司)测定。

1.3.4 胃肠道黏膜炎症因子含量

采用酶联免疫吸附试验(ELISA)法测定瘤胃和结肠黏膜白细胞介素-1β(IL-1β)、白细胞介素-2(IL-2)、肿瘤坏死因子-α(TNF-α)、白细胞介素-4(IL-4)和白细胞介素-10(IL-10)含量,测定方法按照试剂盒[科鹿(武汉)生物科技有限责任公司]说明进行。

1.3.5 胃肠道黏膜微生物群落

采用SENO粪便基因组DNA提取试剂盒(赛诺生物科技有限公司,产品编号SN0240)提取瘤胃和结肠黏膜微生物总DNA;采用Qubit 2.0荧光计对提取的DNA进行定量,并进行归一化处理;将归一化后的DNA样本等摩尔比合并后,采用通用引物27F(5'-AGAGTTTGATCMTGGCTCAG-3')和1492R(5'-ACCTTGTTACGACTT-3')对16S rRNA基因的V1~V9区进行PCR扩增;通过2%琼脂糖凝胶电泳分离并确定PCR产物的目标片段大小,并使用AxyPrep DNA凝胶提取试剂盒进行纯化;最后,采用上海凌恩生物科技有限公司提供的PacBio Sequel Ⅱe平台进行测序。原始数据已上传至国家微生物科学数据中心(NMDC),接受号为NMDC10019956。
参照本团队之前的方法[13]对测序的生物信息数据进行处理,采用SMRT Portal进行质控。采用UPARSE 7.1软件根据99%相似度聚类阈值对序列进行操作分类单元(OTU)聚类,并借助UCHIME工具鉴定及排除嵌合体序列。利用QIIME 2软件,基于RDP classifier贝叶斯算法,以Greengenes 2数据库(2022.10版)为参考,对OTU代表序列进行物种分类注释,置信阈值设定为70%。
通过R语言的vegan包计算α多样性指数,β多样性基于Bray-Curtis距离矩阵进行置换多元方差分析(PERMANOVA)。对门水平(前15)和属水平(前20)的微生物类群进行相对丰度可视化,并使用stats包Mann-Whitney U检验分析差异,以P<0.05为差异显著。选取相对丰度排名前20的菌属,与胃肠道黏膜抗氧化指标和炎症因子含量进行斯皮尔曼(Spearman)相关性分析,以相关系数(r)绝对值>0.5、P<0.05为显著相关。所有分析及可视化均在R 4.4.2中完成。

1.4 数据统计分析

试验数据采用R 4.4.2统计软件进行独立样本t检验,结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著,P>0.05为差异不显著。

2 结果与分析

2.1 不同饲粮蛋白质源对山羊生长性能和屠宰性能的影响

表2可知,在生长性能方面,SBM组山羊终末体重、总增重、ADG和DMI显著高于CGM组(P<0.05),同时F/G显著低于CGM组(P<0.05)。在屠宰性能方面,SBM组山羊胴体重和屠宰率显著高于CGM组(P<0.05),表明豆粕作为饲粮蛋白质源在提高山羊生长性能和屠宰性能方面比玉米蛋白粉更具优势。
表2 不同饲粮蛋白质源对山羊生长性能和屠宰性能的影响

Table 2 Effects of different dietary protein sources on growth performance and slaughter performance of goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CGM SBM
生长性能Growth performance
初始体重IBW/kg 11.80 13.12 0.392 0.091
终末体重FBW/kg 13.19b 17.06a 0.564 <0.001
总增重Total gain/kg 1.39b 3.94a 0.363 <0.001
平均日增重ADG/(g/d) 23.17b 65.61a 6.021 <0.001
干物质采食量DMI/(g/d) 373.41b 506.98a 17.771 <0.001
料重比F/G 21.43a 8.24b 2.784 0.007
屠宰性能Slaughter performance
胴体重Carcass weight/kg 3.97b 5.83a 0.306 0.001
屠宰率Dressing percentage/% 33.58b 39.40a 1.081 0.007

同行数据肩标不同字母表示差异显著(P<0.05),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 不同饲粮蛋白质源对山羊胃肠道黏膜抗氧化指标的影响

表3可知,在山羊瘤胃黏膜中,2组间SOD和GPX活性无显著差异(P>0.05),而SBM组CAT活性显著高于CGM组(P<0.05);在结肠黏膜中,SOD、GPX和CAT活性在2组间均无显著差异(P>0.05)。
表3 不同饲粮蛋白质源对山羊胃肠道黏膜抗氧化指标的影响

Table 3 Effects of different dietary protein sources on antioxidant indices in gastrointestinal mucosa of goats U/g prot

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CGM SBM
瘤胃黏膜Rumen mucosa
超氧化物歧化酶SOD 256.22 232.18 9.053 0.194
谷胱甘肽过氧化物酶GPX 233.94 279.54 13.971 0.112
过氧化氢酶CAT 235.11b 292.57a 11.172 0.005
结肠黏膜Colonic mucosa
超氧化物歧化酶SOD 245.26 251.57 11.883 0.799
谷胱甘肽过氧化物酶GPX 312.16 307.16 29.369 0.937
过氧化氢酶CAT 240.53 229.88 3.723 0.160

2.3 不同饲粮蛋白质源对山羊胃肠道黏膜炎症因子含量的影响

表4可知,SBM组山羊瘤胃黏膜促炎因子IL-1β和TNF-α含量均显著低于CGM组(P<0.05),而瘤胃黏膜IL-2、IL-4和IL-10含量在2组间无显著差异(P>0.05)。在结肠黏膜中,与CGM组相比,SBM组促炎因子IL-1β和抗炎因子IL-10含量均显著提高(P<0.05),而其他炎症因子含量无显著差异(P>0.05)。
表4 不同饲粮蛋白质源对山羊胃肠道黏膜炎症因子含量的影响

Table 4 Effects of different dietary protein sources on inflammatory factor contents in gastrointestinal mucosa of goats pg/mL

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CGM SBM
瘤胃黏膜Rumen mucosa
白细胞介素-1β IL-1β 133.18a 99.08b 9.269 0.014
白细胞介素-2 IL-2 317.10 235.40 34.155 0.160
肿瘤坏死因子-α TNF-α 181.17a 93.55b 16.004 0.007
白细胞介素-4 IL-4 167.94 148.45 14.427 0.970
白细胞介素-10 IL-10 187.85 156.06 14.668 0.211
结肠黏膜Colonic mucosa
白细胞介素-1β IL-1β 100.10b 115.07a 5.071 0.049
白细胞介素-2 IL-2 269.13 281.00 18.481 0.725
肿瘤坏死因子-α TNF-α 115.01 134.07 9.230 0.057
白细胞介素-4 IL-4 158.47 176.97 8.207 0.078
白细胞介素-10 IL-10 117.14b 185.55a 15.385 0.022

2.4 不同饲粮蛋白质源对山羊胃肠道黏膜微生物群落的影响

2.4.1 胃肠道黏膜微生物群落多样性分析
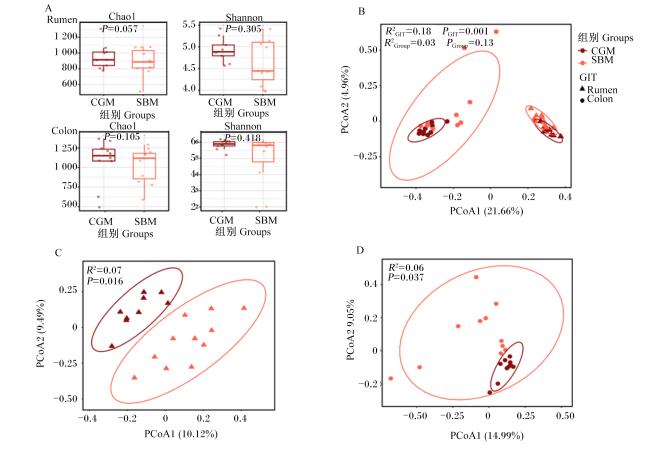
图1-A所示,2组间山羊瘤胃和结肠黏膜微生物群落Chao1指数(丰富度指数)和Shannon指数(多样性指数)均无显著差异(P>0.05),表明不同饲粮蛋白质源对瘤胃和结肠黏膜微生物群落丰富度和多样性未产生显著影响。如图1-B所示,山羊胃肠道黏膜微生物群落β多样性以基于Bray-Curtis距离矩阵的主坐标分析(PCoA)图呈现,结果显示,各组间瘤胃和结肠黏膜微生物群落均有显著的聚类差异(P<0.05)。如图1-C图1-D所示,不同饲粮蛋白质源显著改变了瘤胃和结肠黏膜微生物群落β多样性(P<0.05)。
图1 不同饲粮蛋白质源对山羊胃肠道黏膜微生物群落多样性的影响

A:α多样性 α diversity;B:整体主坐标分析 overall principal coordinate analysis;C:瘤胃黏膜微生物群落主坐标分析 principal coordinate analysis of microbiota in rumen mucosa;D:结肠黏膜微生物群落主坐标分析 principal coordinate analysis of microbiota in colonic mucosa。

CGM:玉米蛋白粉组 corn gluten meal group;SBM:豆粕组 soybean meal group;Rumen:瘤胃;Colon:结肠;Chao1:Chao1指数 Chao1 index;Shannon:Shannon指数 Shannon index;Group:组别;PCoA:主坐标 principal coordinate;GIT:胃肠道 gastrointestinal tract。

Fig.1 Effects of different dietary protein sources on microbiota diversity in gastrointestinal mucosa of goats

2.4.2 胃肠道黏膜微生物群落在门和属水平上组成分析

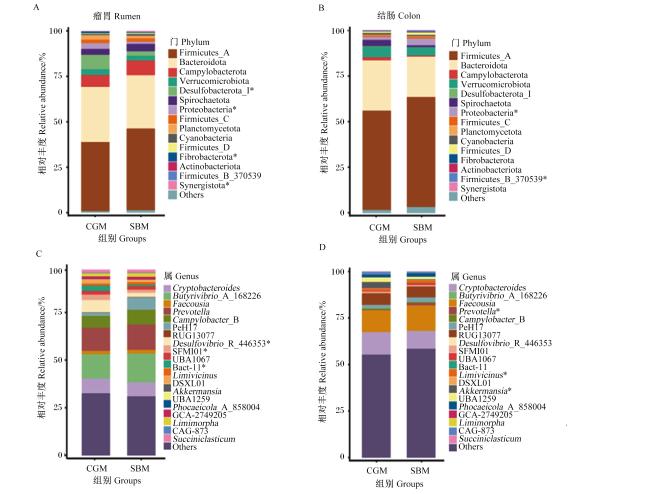
图2-A图2-B所示,在门水平上,对于瘤胃黏膜微生物,与CGM组相比,SBM组脱硫杆菌门I(Desulfobacterota_I)、变形菌门(Proteobacteria)和纤维杆菌门(Fibrobacterota)相对丰度显著降低(P<0.05),而互养菌门(Synergistota)相对丰度显著提高(P<0.05);对于结肠黏膜微生物,与CGM组相比,SBM组变形菌门和厚壁菌门B_370539(Firmicutes_B_370539)相对丰度显著提高(P<0.05)。
图2 不同饲粮蛋白质源对山羊胃肠道黏膜微生物群落在门和属水平上组成的影响

*表示差异显著(P<0.05)。* indicated significant difference (P<0.05).

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Campylobacterota:弯曲菌门;Verrucomicrobiota:疣微菌门;Desulfobacterota_I:脱硫杆菌门I;Spirochaetota:螺旋体门;Proteobacteria:变形菌门;Planctomycetota:浮霉菌门;Cyanobacteria:蓝细菌门; Fibrobacterota:纤维杆菌门;Actinobacteriota:放线菌门;Synergistota:互养菌门;Cryptobacteroides:隐拟杆菌属;Butyrivibrio_A_168226:丁酸弧菌属A_168226;Prevotella:普雷沃氏菌属;Campylobacter_B:弯曲菌属B;Desulfovibrio_R_446353:脱硫弧菌属R_446353;Akkermansia:阿克曼菌属;Succiniclasticum:解琥珀酸菌属;Others:其他。图3同 The same as Fig.3

Fig.2 Effects of different dietary protein sources on microbiota composition at phylum and genus levels in gastrointestinal mucosa of goats

图2-C图2-D所示,在属水平上,对于瘤胃黏膜微生物,与CGM组相比,SBM组脱硫弧菌属R_446353(Desulfovibrio_R_446353)、SFMI01和Bact-11相对丰度显著降低(P<0.05);对于结肠黏膜微生物,与CGM组相比,SBM组普雷沃氏菌属和Limivicinus相对丰度显著提高(P<0.05),而阿克曼菌属(Akkermansia)相对丰度显著降低(P<0.05)。

2.5 胃肠道黏膜微生物群落与抗氧化指标和炎症因子含量相关性分析

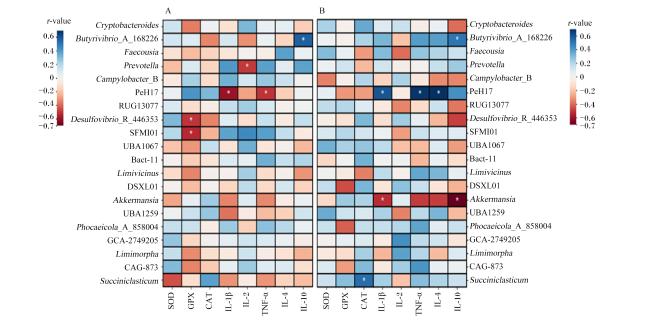
图3-A所示,在瘤胃黏膜中,脱硫弧菌属R_446353相对丰度与GPX活性呈显著负相关(r<-0.5,P<0.05),普雷沃氏菌属相对丰度与IL-2含量呈显著负相关(r<-0.5,P<0.05),丁酸弧菌属A_168226(Butyrivibrio_A_168226)相对丰度与IL-10含量呈显著正相关(r>0.5,P<0.05)。如图3-B所示,在结肠黏膜中,解琥珀酸菌属(Succiniclasticum)与CAT活性呈显著正相关(r>0.5,P<0.05),阿克曼菌属相对丰度与IL-1β和IL-10含量呈显著负相关(r<-0.5,P<0.05),丁酸弧菌属A_168226相对丰度与IL-10含量呈显著正相关(r>0.5,P<0.05)。
图3 胃肠道黏膜微生物群落与抗氧化指标和炎症因子含量相关性分析

*表示显著相关(P<0.05)。* indicated significant correlation (P<0.05).

r-value:相关系数 correlation coefficient;A:瘤胃 rumen;B:结肠 colon;SOD:超氧化物歧化酶 superoxide dismutase;GPX:谷胱甘肽过氧化物酶 glutathione peroxidase;CAT:过氧化氢酶 catalase;IL-1β:白细胞介素-1β interleukin-1β;IL-2:白细胞介素-2 interleukin-2;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-4:白细胞介素-4 interleukin-4;IL-10:白细胞介素-10 interleukin-10。

Fig.3 Correlation analysis between microbiota and antioxidant indices as well as inflammatory factor contents in gastrointestinal mucosa

3 讨论

3.1 不同饲粮蛋白质源对山羊生长性能和屠宰性能的影响

ADG和F/G是衡量反刍动物生长性能的关键指标,其中ADG反映生长速度,F/G反映饲料利用效率;胴体重和屠宰率则是衡量屠宰性能的常用指标。研究表明,在饲粮中添加2.5%的玉米蛋白粉等氮替代豆粕时,肉牛ADG有所提高;但当替代比例增至7.5%且不补充赖氨酸,ADG显著降低且F/G提高[8]。类似地,徐超等[14]研究发现,发酵玉米蛋白粉替代育肥羊饲粮中25%的豆粕可提高其生长性能,但更高比例(50%和75%)则不影响或者降低其生长性能。研究表明,玉米蛋白粉的氨基酸组成具有显著的不平衡性,其中赖氨酸和色氨酸等必需氨基酸含量严重不足[5-6]。赖氨酸作为限制性氨基酸,其含量与动物的生长、生理和繁殖性能相关[15];色氨酸在调控胃肠道黏膜免疫屏障及维持共生微生物稳态中发挥重要作用,可显著改善动物免疫功能和生产性能[16]。本试验结果显示,SBM组山羊ADG显著高于CGM组,F/G显著低于CGM组,同时胴体重和屠宰率也比CGM组表现更优,表明豆粕作为饲粮蛋白质源在促进山羊生长和提高屠宰性能方面优于玉米蛋白粉。玉米蛋白粉由于氨基酸组成不平衡,无法完全替代豆粕;但通过补充限制性氨基酸以平衡其组成,可能实现部分替代,值得深入研究。

3.2 不同饲粮蛋白质源对山羊胃肠道黏膜抗氧化指标的影响

在正常生理条件下,动物体内的自由基含量处于动态平衡状态,当这种平衡被打破时,就会产生大量的自由基,导致氧化应激,对动物的生长性能产生不利影响[17]。动物的抗氧化防御系统包括SOD、GPX和CAT等抗氧化酶。其中,SOD能够催化超氧自由基的歧化反应,生成过氧化氢(H2O2),而GPX和CAT则进一步将H2O2代谢为水[18]。豆粕是大豆油提取后的副产品,含有大豆异黄酮,异黄酮能抑制酪氨酸特异性蛋白激酶和核因子-κB(NF-κB)的转录,从而发挥抗炎和抗氧化作用[19]。丁辉等[20]研究发现,饲粮中添加大豆异黄酮显著提高安格斯肉牛血清中抗氧化酶活性和总抗氧化能力。研究表明,与SPA组(粗蛋白质含量为155.1 g/kg;豆粕含量为0,玉米蛋白粉含量为2.00%)相比,SPB组(粗蛋白质含量为155.7 g/kg;豆粕含量为1.50%,玉米蛋白粉含量为0.15%)胡羊回肠SOD活性显著升高[21]。本试验结果显示,CGM组和SBM组间山羊瘤胃黏膜SOD和GPX活性无显著差异,而SBM组瘤胃黏膜CAT活性显著高于CGM组,提示豆粕作为饲粮蛋白质源能增强山羊瘤胃黏膜的抗氧化能力。

3.3 不同饲粮蛋白质源对山羊胃肠道黏膜炎症因子含量的影响

胃肠道健康与炎症因子含量密切相关,当肠道屏障功能受损导致有害物质(如内毒素)突破黏膜屏障渗入内环境后,会刺激免疫细胞产生促炎细胞因子,进而引发肠道上皮进一步的炎性损伤[22]。TNF-α是肿瘤中炎症过程的最早内源性介质,可促进T细胞的扩散和分化,破坏肠屏障[23]。IL-10是一种抗炎因子,由调节性T细胞和单核巨噬细胞产生,具有参与免疫调节作用[24]。研究发现,与饲喂玉米-豆粕型饲粮相比,饲喂玉米型饲粮显著提高山羊结肠促炎细胞因子TNF-α mRNA相对表达量,有提高IL-1β mRNA相对表达量的趋势[25]。在使用水飞蓟粕替代豆粕饲喂羔羊的试验中,豆粕组血清促炎细胞因子IL-1β和TNF-α含量显著降低[26]。本试验结果显示,由于豆粕较高的RDP比例和均衡的氨基酸组成[5],其作为饲粮蛋白质源对山羊胃肠道免疫调节作用呈现出区段化差异:在瘤胃表现为抗炎作用(促炎因子IL-1β和TNF-α含量显著降低),而在结肠则呈现促炎与抗炎反应并存的免疫平衡状态(促炎因子IL-1β和抗炎因子IL-10含量显著升高)。

3.4 不同饲粮蛋白质源对山羊胃肠道黏膜微生物群落的影响

动物胃肠道内定植着数量庞大且种类丰富的微生物群落,这些微生物与宿主形成了复杂的共生关系。研究表明,胃肠道微生物群落与宿主的生长发育、免疫调节和代谢等生理功能密切相关[27]。在本试验中,β多样性分析提示不同饲粮蛋白质源对胃肠道黏膜微生物群落结构有较大影响。据报道,胃肠道黏膜中的优势菌门为厚壁菌门和拟杆菌门[28-29],与本研究结果类似。研究表明,脱硫杆菌门中包含许多典型的硫酸盐还原菌(sulfate-reducing bacteria,SRB),SRB将硫和含硫化合物还原为硫化氢(H2S),H2S的产生会引发炎症,导致炎症因子含量升高,损伤肠道上皮细胞,不利于肠道健康[30-31]。本试验中,SBM组山羊瘤胃黏膜脱硫杆菌门I相对丰度显著低于CGM组,且SBM组瘤胃黏膜炎症因子含量低于CGM组,表明豆粕作为饲粮蛋白质源可以通过降低潜在有害菌门的相对丰度,改善山羊的瘤胃健康。此外,普雷沃氏菌属可以利用淀粉产生短链脂肪酸[32],短链脂肪酸可诱导T细胞的抗炎特性[33]。本试验中,SBM组山羊结肠黏膜普雷沃氏菌属相对丰度显著高于CGM组,表明豆粕作为饲粮蛋白质源可以促进结肠普雷沃氏菌属的定植,从而维持肠道稳态。

3.5 胃肠道黏膜微生物群落与抗氧化指标和炎症因子含量相关性分析

相关性分析结果显示,山羊瘤胃黏膜脱硫弧菌属R_446353相对丰度与抗氧化酶GPX活性呈显著负相关,这与该菌属作为SRB的特性一致。具体而言,SRB产生的H2S可破坏肠道上皮组织并诱导DNA损伤[34],从而可能抑制宿主的抗氧化和抗炎能力。相反,在瘤胃和结肠黏膜中丁酸弧菌属A_168226相对丰度与抗炎因子IL-10含量呈显著正相关,这一结果支持了既往的研究结论。丁酸弧菌属的成员是瘤胃中普遍存在的重要产丁酸盐细菌,其产生的丁酸盐可能有助于修复SRB产生的硫化物对瘤胃上皮造成的损伤[28]。体外细胞培养试验表明,丁酸盐能调节结肠黏膜增殖并治疗硫化物引起的溃疡性结肠炎[35]。值得注意的是,结肠黏膜阿克曼菌属相对丰度与促炎因子IL-1β和抗炎因子IL-10含量均呈显著负相关,进一步验证了该菌属在炎症性肠病患者肠道中相对丰度降低的现象,提示其可能通过双向调节炎症反应维持肠道稳态[36]

4 结论

综上所述,与玉米蛋白粉相比,豆粕作为具有较高RDP比例和均衡氨基酸组成的饲粮蛋白质源能显著提高山羊生长性能和屠宰性能,同时改善瘤胃和肠道健康。豆粕降低了瘤胃黏膜促炎因子含量,增强了抗氧化酶活性,并降低了潜在有害菌的相对丰度;此外,它还调节了结肠黏膜的炎症因子含量,提高了有益菌的相对丰度,从而有助于维持肠道稳态。
[1]
王心语, 张国睿, 赵永玉, 等. 饲用豆粕减量替代的研究进展及潜在途径展望[J]. 饲料工业, 2025, 46(8):163-172.

WANG X Y, ZHANG G R, ZHAO Y Y, et al. Research progress and prospect on potential pathways for soybean meal reduction and substitution[J]. Feed Industry, 2025, 46(8):163-172. (in Chinese)

[2]
邹郑欣. 不同蛋白原料对肉羊产甲烷特性及能量代谢的研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2023.

ZOU Z X. Study on methanogenesis and energy metabolism of mutton sheep with different protein materials[D]. Master’s Thesis. Harbin: Northeast Agricultural University, 2023. (in Chinese)

[3]
国家统计局. 中国统计年鉴2024[M]. 北京: 中国统计出版社, 2024.

National Bureau of Statistics. China Statistical Yearbook 2024[M]. Beijing: China Statistics Press, 2024. (in Chinese).

[4]
高鹏翔, 潘予琮, 蒋林树, 等. 饲用豆粕减量替代技术的应用及新型蛋白质饲料的开发前景[J]. 动物营养学报, 2023, 35(3):1433-1443.

DOI

GAO P X, PAN Y C, JIANG L S, et al. Application of alternative technology for soybean meal reduction for feed and development prospect of new protein feed[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1433-1443. (in Chinese)

DOI

[5]
ZHU B Y, HE H, HOU T. A comprehensive review of corn protein-derived bioactive peptides:production,characterization,bioactivities,and transport pathways[J]. Comprehensive Reviews in Food Science and Food Safety, 2019, 18(1):329-345.

DOI

[6]
JIAO Y, CHEN H D, HAN H, et al. Development and utilization of corn processing by-products:a review[J]. Foods, 2022, 11(22):3709.

DOI

[7]
康金海, 曹爱玲, 张辉. 发酵玉米蛋白粉对肉羊生长性能、屠宰性能及肉品质的影响[J]. 中国饲料, 2023(20):95-98.

KANG J H, CAO A L, ZHANG H. The effect of fermented corn protein powder on the growth performance,slaughtering performance,and meat quality of meat sheep[J]. China Feed, 2023(20):95-98. (in Chinese)

[8]
张桂菊, 赵登福, 曹学香. 玉米蛋白粉替代豆粕对肉牛生长性能、氮代谢及屠宰性能的影响[J]. 中国饲料, 2024(6):72-75.

ZHANG G J, ZHAO D F, CAO X X. Effect of corn gluten meal replacing soybean meal on growth performance,nitrogen metabolism,and slaughtering performance of beef cattle[J]. China Feed, 2024(6):72-75. (in Chinese)

[9]
JIAO J Z, WU J, ZHOU C S, et al. Ecological niches and assembly dynamics of diverse microbial consortia in the gastrointestine of goat kids[J]. The ISME Journal, 2024, 18(1):wrae002.

[10]
STEELE M A, PENNER G B, CHAUCHEYRAS-DURAND F, et al. Development and physiology of the rumen and the lower gut:targets for improving gut health[J]. Journal of Dairy Science, 2016, 99(6):4955-4966.

DOI

[11]
JIAO J Z, HUANG J Y, ZHOU C S, et al. Taxonomic identification of ruminal epithelial bacterial diversity during rumen development in goats[J]. Applied and Environmental Microbiology, 2015, 81(10):3502-3509.

DOI PMID

[12]
WU J, ZHANG X L, TAN Z L, et al. Microbiome-host co-oscillation patterns in shaping ruminal ecosystem from birth to puberty in a goat model[J/OL]. Science China: Life Sciences, 2025:1-12[2025-09-10].https://doi.org/10.1007/s11427-024-2824-6.

[13]
赵烨嬋, 欧慧敏, 谭支良, 等. 呼伦贝尔羊不同生长阶段瘤胃微生物变化与羊肉膻味相关微生物分析[J]. 动物营养学报, 2024, 36(2):1050-1062.

DOI

ZHAO Y C, OU H M, TAN Z L, et al. Microbial changes in rumen of Hulun Buir sheep at different growth stages and analysis of odor-associated microbial communities[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):1050-1062. (in Chinese)

[14]
徐超, 张昕禹, 贾斌, 等. 发酵玉米蛋白粉对育肥羊生长性能、屠宰性能及瘤胃发酵的影响[J]. 中国畜牧杂志, 2023, 59(5):207-211.

XU C, ZHANG X Y, JIA B, et al. Effects of fermented corn gluten meal on growth performance,slaughter performance and rumen fermentation in finishing sheep[J]. Chinese Journal of Animal Science, 2023, 59(5):207-211. (in Chinese)

[15]
LI Y, BI Y L, DIAO Q Y, et al. The limiting sequence and appropriate amino acid ratio of lysine,methionine,and threonine for seven-to nine-month-old Holstein heifers fed corn-soybean meal-based diet[J]. Animals, 2019, 9(10):750.

DOI

[16]
ROAGER H M, LICHT T R. Microbial tryptophan catabolites in health and disease[J]. Nature Communications, 2018, 9(1):3294.

DOI PMID

[17]
SHANG S L, LI Z, LI J J, et al. Effects of high moisture ear corn on production performance,milk fatty acid composition,serum antioxidant status,and immunity in primiparous dairy cows[J]. Animal Bioscience, 2024, 37(7):1204-1212.

DOI

[18]
GONG J, XIAO M. Effect of organic selenium supplementation on selenium status,oxidative stress,and antioxidant status in selenium-adequate dairy cows during the periparturient period[J]. Biological Trace Element Research, 2018, 186(2):430-440.

DOI

[19]
SMITH B N, DILGER R N. Immunomodulatory potential of dietary soybean-derived isoflavones and saponins in pigs[J]. Journal of Animal Science, 2018, 96(4):1288-1304.

DOI PMID

[20]
丁辉, 刘欣, 王瑞玲, 等. 饲粮中添加大豆异黄酮对安格斯肉牛生产及繁殖性能的影响[J]. 中国畜牧兽医, 2024, 51(7):2871-2879.

DOI

DING H, LIU X, WANG R L, et al. Effect of dietary addition of soy isoflavones on production and reproductive performance of Angus beef cattle[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(7):2871-2879. (in Chinese)

[21]
ZHANG X, ZHANG Z B, SUN Y Q, et al. Antioxidant capacity,inflammatory response,carcass characteristics and meat quality of Hu sheep in response to dietary soluble protein levels with decreased crude protein content[J]. Antioxidants, 2023, 12(12):2098.

DOI

[22]
LAMBERT G P. Stress-induced gastrointestinal barrier dysfunction and its inflammatory effects[J]. Journal of Animal Science, 2009, 87(Suppl.14):E101-E108.

[23]
BILLIET T, RUTGEERTS P, FERRANTE M, et al. Targeting TNF-α for the treatment of inflammatory bowel disease[J]. Expert Opinion on Biological Therapy, 2014, 14(1):75-101.

DOI

[24]
JING Y, LIU X L, WANG J Y, et al. Production of corn protein hydrolysate with glutamine-rich peptides and its antagonistic function in ulcerative colitis in vivo[J]. Foods, 2022, 11(21):3359.

DOI

[25]
CHENG Y, YANG C, CHEN W X, et al. Effects of substituting soybean meal with corn on immune function and gene expression of gut TLR4 pathway of growing goats[J]. PeerJ, 2022, 10:e12910.

[26]
ZHANG T X, REN Y B, YANG C, et al. An integrated transcriptome and microbial community analysis reveals potential mechanisms for increased immune responses when replacing silybum marianum meal with soybean meal in growing lambs[J]. Frontiers in Microbiology, 2023, 14:1093129.

[27]
SOMMER F, BÄCKHED F. The gut microbiota-masters of host development and physiology[J]. Nature Reviews Microbiology, 2013, 11(4):227-238.

DOI

[28]
SHEN J S, LI Z P, YU Z T, et al. Effects of dietary replacement of soybean meal with dried distillers grains with solubles on the microbiota occupying different ecological niches in the rumen of growing Hu lambs[J]. Journal of Animal Science and Biotechnology, 2020, 11:93.

DOI

[29]
韩笑瑛. 日粮瘤胃可降解淀粉调控奶山羊肠道微生物的机制[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2021.

HAN X Y. Effects of dietary rumen degradable starch on intestinal microbiota in dairy goats[D]. Ph.D. Thesis. Yangling: Northwest A & F University, 2021. (in Chinese)

[30]
SCANLAN P D, SHANAHAN F, MARCHESI J R. Culture-independent analysis of desulfovibrios in the human distal colon of healthy,colorectal cancer and polypectomized individuals[J]. FEMS Microbiology Ecology, 2009, 69(2):213-221.

DOI

[31]
温红瑞, 高昌鹏, 杨万彪, 等. 单宁和裂壶藻粉对滩羊生长性能及瘤胃菌群多样性的影响[J]. 动物营养学报, 2023, 35(10):6546-6559.

DOI

WEN H R, GAO C P, YANG W B, et al. Effects of tannin and Schizochytrium powder on growth performance and rumen microflora diversity of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6546-6559. (in Chinese)

[32]
LUO Y H, YANG C, WRIGHT A D G, et al. Responses in ileal and cecal bacteria to low and high amylose/amylopectin ratio diets in growing pigs[J]. Applied Microbiology and Biotechnology, 2015, 99(24):10627-10638.

DOI

[33]
RAU M, REHMAN A, DITTRICH M, et al. Fecal SCFAs and SCFA-producing bacteria in gut microbiome of human NAFLD as a putative link to systemic T-cell activation and advanced disease[J]. United European Gastroenterology Journal, 2018, 6(10):1496-1507.

DOI PMID

[34]
YANG G D. Hydrogen sulfide in cell survival:a double-edged sword[J]. Expert Review of Clinical Pharmacology, 2011, 4(1):33-47.

DOI

[35]
CHRISTL S U, EISNER H D, DUSEL G, et al. Antagonistic effects of sulfide and butyrate on proliferation of colonic mucosa:a potential role for these agents in the pathogenesis of ulcerative colitis[J]. Digestive Diseases and Sciences, 1996, 41(12):2477-2481.

DOI

[36]
DERRIEN M, BELZER C, DE VOS W M. Akkermansia muciniphila and its role in regulating host functions[J]. Microbial Pathogenesis, 2017, 106:171-181.

DOI

文章导航

/