研究论文

饲粮中添加槲皮万寿菊素对热应激条件下母兔繁殖性能、肠道菌群及其仔兔生长性能的影响

  • 赵静 ,
  • 颜畅 ,
  • 王妍雅 ,
  • 于洪基 ,
  • 殷欣彤 ,
  • 王运赵 ,
  • 吴英杰 ,
  • 刘宁 , * ,
  • 秦应和 , *
展开
  • 中国农业大学动物科学技术学院,畜禽营养与饲养全国重点实验室,畜禽育种国家工程实验室,北京 100193
* 刘宁,副教授,硕士生导师,E-mail: ;
秦应和,教授,硕士生导师,E-mail:

赵静(2000—),女,山东烟台人,硕士研究生,从事动物营养与繁殖研究。E-mail:

收稿日期: 2025-05-30

  网络出版日期: 2026-01-13

基金资助

十四五国家重点研发项目(2023YFD1302005)

国家自然科学基金青年基金项目(32000082)

现代农业产业技术体系建设专项资金项目(CARS-43)

中央高校基本科研业务费专项资金资助(2025TC011)

Effects of Dietary Quercetagetin Supplementation on Reproductive Performance, Gut Microbiota of Female Rabbits and Growth Performance of Their Offspring under Heat-Stress Conditions

  • ZHAO Jing ,
  • YAN Chang ,
  • WANG Yanya ,
  • YU Hongji ,
  • YIN Xintong ,
  • WANG Yunzhao ,
  • WU Yingjie ,
  • LIU Ning , * ,
  • QIN Yinghe , *
Expand
  • National Engineering Laboratory for Animal Breeding, State Key Laboratory of Animal Nutrition and Feeding, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
* LIU Ning, associate professor, E-mail: ;
QIN Yinghe, professor, E-mail:

Received date: 2025-05-30

  Online published: 2026-01-13

摘要

本研究旨在探究槲皮万寿菊素(QG)对热应激条件下母兔繁殖性能、肠道菌群及其仔兔生长性能的影响,并筛选出其适宜添加量。选取460只胎次(2~3胎)和体重(3.5~4.5 kg)相近的伊拉母兔,随机分为5组,每组92只,单笼饲养。对照组饲喂基础饲粮,QG100、QG200、QG400、QG600组分别饲喂在基础饲粮中添加100、200、400、600 mg/kg QG的饲粮。试验期71 d,其中预试期6 d,正试期65 d(从配种至仔兔断奶)。结果表明:1)与对照组相比,QG600组母兔的受胎率显著提高(P<0.05),窝产仔数和窝产活仔数显著增加(P<0.05),综合窝产仔数、综合窝产活仔数、初生总窝重、初生活仔窝重以及初生活仔均重也显著增加(P<0.05);QG400和QG600组的仔兔7、14、21、35日龄窝仔数和窝重显著提高(P<0.05)。2)与对照组相比,QG600组母兔妊娠第15天时血清中孕酮(P)和白细胞介素-10(IL-10)含量、谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)活性,以及总抗氧化能力(T-AOC)均显著增加(P<0.05),同时丙二醛(MDA)含量显著降低(P<0.05)。3)与对照组相比,饲粮中添加600 mg/kg QG具有改善热应激条件下母兔肠道菌群多样性的趋势,并在门水平上提高了拟杆菌门(35.06% vs. 31.70%)和疣微菌门(2.61% vs. 1.78%)的相对丰度,在属水平上提高了毛螺菌科的未分类属(unclassified_f_Lachnospiraceae)(9.78% vs. 9.23%)和梭菌目vadinBB60群的未分类属(unclassified_o_Clostridia_vadinBB60_group)(9.32% vs. 7.90%)的相对丰度。综上可知,饲粮中添加600 mg/kg QG可改善热应激条件下母兔的繁殖性能及其仔兔的生长性能,且对母兔肠道菌群具有一定的调控作用。

本文引用格式

赵静 , 颜畅 , 王妍雅 , 于洪基 , 殷欣彤 , 王运赵 , 吴英杰 , 刘宁 , 秦应和 . 饲粮中添加槲皮万寿菊素对热应激条件下母兔繁殖性能、肠道菌群及其仔兔生长性能的影响[J]. 动物营养学报, 2026 , 38(1) : 577 -590 . DOI: 10.12418/CJAN2026.045

Abstract

This study aimed to investigate the effects of dietary quercetagetin (QG) on the reproductive performance and gut microbiota of female rabbits and growth performance of their offspring under heat stress condition, and to determine its optimal supplementation level. A total of 460 female Ira rabbits with the similar parity (from 2 to 3 parities) and body weight (from 3.5 to 4.5 kg) were randomly divided into 5 groups with 92 rabbits per group, and the rabbits were individually raised in cages. The control group was fed a basal diet, while the QG100, QG200, QG400 and QG600 groups were fed the basal diet supplemented with 100, 200, 400 and 600 mg/kg QG, respectively. The experiment lasted for 71 days, including a 6-day adaptation period and a 65-day formal trial (from mating to weaning of kits). The results showed that: 1) compared with the control group, the conception rate of female rabbits in the QG600 group was significantly increased (P<0.05), and the litter size and litter size born alive of female rabbits in the QG600 group were significantly increased (P<0.05); furthermore, the total litter size, total litter size born alive, total litter birth weight, litter weight born alive, and litter weight born alive at birth of female rabbits in the QG600 group were also significantly increased (P<0.05); the number of kits per litter and litter weight at 7, 14, 21 and 35 days of age were significantly higher in the QG400 and QG600 groups (P<0.05). 2) On day 15 of gestation, compared with the control group, the serum contents of progesterone (P) and interleukin-10 (IL-10), the activities of glutathione peroxidase (GSH-Px) and superoxide dismutase (SOD), and total antioxidant capacity (T-AOC) in the QG600 group were significantly increased (P<0.05), while malondialdehyde (MDA) content was significantly decreased (P<0.05). 3) Compared with the control group, dietary supplementation with 600 mg/kg QG showed a tendency to improve the gut microbiota diversity of female rabbits under heat-stress conditions. At the phylum level, dietary supplementation with 600 mg/kg QG increased the relative abundances of Bacteroidota (35.06% vs. 31.70%) and Verrucomicrobiota (2.61% vs. 1.78%). At the genus level, it increased the relative abundances of unclassified_f_Lachnospiraceae (9.78% vs. 9.23%) and unclassified_o_Clostridia_vadinBB60_group (9.32% vs. 7.90%). In conclusion, dietary supplementation with 600 mg/kg QG can improve the reproductive performance of female rabbits and the growth performance of their offspring under heat stress condition, and it also can exert a modulatory effect on the gut microbiota of female rabbits.

热应激是动物在高温环境中因散热失衡所致核心体温异常升高而触发的系统性生理-代谢紊乱[1],可经神经-内分泌轴抑制摄食、削弱免疫并扰乱生殖节律,导致生产性能衰退[2]。研究表明,热应激会引起母兔氧化应激,导致机体炎症水平升高,从而使其发情率、受胎率、产仔数和胎儿初生重显著下降。因此,探究有效措施来改善家兔繁殖性能对提高家兔养殖效益显得尤为重要,近年来,通过营养调控措施改善家兔繁殖性能已被证实为一种高效且易于实施的方法。槲皮万寿菊素(quercetagetin, QG)是一种植物来源的天然抗氧化剂,主要从万寿菊、柑橘等植物中提取[3],具有抗菌、抗炎等多种生物学功能。体外研究证实,QG可显著清除非洲绿猴肾上皮细胞(Vero细胞)内活性氧,缓解过氧化氢诱导的DNA损伤[4];与阿莫西林协同,可降低细菌耐药性并增强抗菌活性[5];可与病毒关键酶结合[6],阻断奇孔肯雅病毒吸附、复制及基因表达[7]。动物试验表明,QG可提升仔猪生长性能、强化免疫并降低腹泻率[8];肉鸡饲粮中添加QG可通过激活核因子E2相关因子2(Nrf2)通路增强抗氧化防御,显著缓解氧化应激所致的体重下降,从而改善生长性能[9]。但目前关于QG对母兔繁殖性能、肠道菌群及其仔兔生长性能的研究较少。因此,本试验以伊拉母兔为研究对象,研究不同添加量的QG对母兔繁殖性能、肠道菌群及其仔兔生长性能的影响,并筛选出QG的适宜添加量,为其作为功能性饲料添加剂在夏季热应激条件下母兔养殖中的应用提供理论依据。

1 材料与方法

1.1 伦理声明

本次动物试验由中国农业大学实验动物中心伦理委员会批准,批准文号:AW40605202-1-03。

1.2 试验设计

选取460只胎次(2~3胎)和体重(3.5~4.5 kg)相近的伊拉母兔,随机分为5组,每组92只,单栏饲养。对照组饲喂基础饲粮,QG100、QG200、QG400、QG600组分别饲喂在基础饲粮中添加100、200、400、600 mg/kg QG(纯度≥80%)的饲粮。试验期71 d,其中预试期6 d,正试期65 d(从配种至仔兔断奶)。基础饲粮参考NRC(1997)[10]家兔营养需求标准配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
玉米Corn 12.00 消化能DE/(MJ/kg) 11.30
次粉Wheat middlings 5.00 干物质DM 91.50
玉米皮Corn bran 5.00 粗蛋白质CP 18.69
小麦麸Wheat bran 8.50 粗脂肪EE 3.37
大豆油Soybean oil 1.50 粗纤维CF 16.13
豆粕Soybean meal 14.00 中性洗涤纤维NDF 37.74
菜籽粕Rapeseed meal 6.00 酸性洗涤纤维ADF 21.23
黑啤酒糟Brewer’s spent grain 9.00 酸性洗涤木质素ADL 5.60
玉米胚芽粕Corn germ meal 6.50 粗灰分Ash 8.72
青蒿粉Artemisia annua powder 1.50 钙Ca 1.12
稻壳粉Rice husk powder 6.00 总磷TP 0.77
花生壳粉Peanut shell powder 5.00 赖氨酸Lys 0.92
艾杆粉Artemisia argyi stem powder 7.00 蛋氨酸+半胱氨酸Met+Cys 0.44
羊草Leymus chinensis hay 8.00 苏氨酸Thr 0.62
预混料Premix1) 5.00
合计Total 100.00

1)预混料为每千克饲粮提供 Premix provided the following per kg of the diet:Zn 70 mg,Mn 10 mg,Co 0.15 mg,Fe 70 mg,Cu 20 mg,I 0.2 mg,Se 0.25 mg,VA 10 000 IU,VE 50 mg,VK2 2 mg,硫胺素 thiamine 2 mg,核黄素 riboflavin 6 mg,泛酸 pantothenic acid 50 mg,吡哆醇 pyridoxine 2 mg,叶酸 folic acid 44 mg,胆碱 choline 1 000 mg,生物素 biotin 0.2 mg,VB12 0.02 mg,烟酸 nicotinic acid 50 mg,VD3 900 IU。

2)消化能、赖氨酸、蛋氨酸+半胱氨酸和苏氨酸为计算值,其余为实测值。DE, Lys, Met+Cys and Thr were calculated values, while the others were measured values.

1.3 饲养管理

饲养试验于2024年7—9月在山东汇富农牧发展有限公司开展。试验期间每天饲喂2次,分别于07:30—08:00及15:00—15:30饲喂,母兔自由采食和饮水。采用延长光照周期来诱导母兔同期发情,随后进行人工授精,同时立即对母兔注射促黄体素释放激素A3促进同步排卵。试验期间的饲养管理按照既定生产标准执行,并持续监测环境温度和相对湿度。

1.4 指标测定

1.4.1 饲粮营养成分测定

赖氨酸(Lys)、蛋氨酸+半胱氨酸(Met+Cys)、苏氨酸(Thr)含量及消化能参照NRC(1997)[10]计算得到;干物质(GB/T 6435—2014)、粗蛋白质(GB/T 6432—2018)、粗灰分(GB/T 6438—2007)、粗脂肪(GB/T 6433—2006)、粗纤维(GB/T 6434—2006)、酸性洗涤木质素(GB/T 20805—2006)、食盐(GB/T 6439—2023)、钙(GB/T 6436—2018)、总磷(GB/T 6437—2018)、酸性洗涤纤维(NY/T 1459—2022)、中性洗涤纤维含量(GB/T 20806—2022)均依据现行国家标准或行业标准测定。

1.4.2 兔舍热应激环境评定方法

本研究以温湿度指数(temperature-humidity index,THI)量化母兔热应激强度,计算公式为:
THI=db-(0.31-0.31×RH)×(db-14.4)。
式中:db为干球温度(℃);RH为相对湿度。
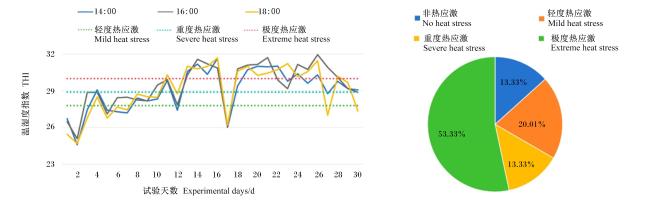
THI分级标准[11]:THI<27.8,表示非热应激状态;27.8≤THI<28.9,表示轻度热应激状态;28.9≤THI<30.0,表示重度热应激状态;THI≥30.0,表示极度热应激状态。当整个动物试验期间有超过50%的时间达到热应激状态,即表明达到热应激的试验条件。

1.4.3 母兔繁殖性能测定

人工授精后15 d进行摸胎,统计各组受胎率。在分娩后统计母兔的繁殖性能,包括分娩率、窝产仔数、窝产活仔数、窝产死胎数、初生总窝重、初生活仔窝重和初生活仔均重等数据,然后计算综合窝产仔数和综合窝产活仔数。
综合窝产仔数=窝产仔数×分娩率;
综合窝产活仔数=窝产活仔数×分娩率。

1.4.4 仔兔生长性能测定

分别记录仔兔在7、14、21和35日龄的窝仔数和窝重,计算仔兔的均重。

1.4.5 母兔血清指标测定

在母兔妊娠第15天,从每组随机挑选6只母兔采集耳中静脉血液,静置1 h后,800×g离心10 min收集血清,用于生殖激素、炎症因子和抗氧化指标测定。其中,孕酮(progesterone,P)、白细胞介素-6(interleukin-6,IL-6)、白细胞介素-10(interleukin-10,IL-10)含量采用酶联免疫吸附检测法测定,雌二醇(estradiol,E2)含量采用放射免疫分析法检测,丙二醛(malondialdehyde,MDA)含量、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)活性、总抗氧化能力(total antioxidant capacity,T-AOC)和超氧化物歧化酶(superoxide dismutase,SOD)活性采用比色法测定,测定所用试剂盒均为南京建成生物工程研究所的商业检测试剂盒,严格按照说明书进行。

1.4.6 母兔肠道菌群16S rRNA测序与分析

采集对照组和QG600组母兔新鲜粪样后,送至广东美格基因科技有限公司完成后续分析。使用MiSeq平台进行16S rRNA高变区扩增子测序:以基因组DNA为模板,采用特异性引物及TaKaRa Premix Taq酶进行PCR扩增;扩增产物经E.Z.N.A.® Gel Extraction Kit纯化,TE缓冲液洗脱,并通过1.5%琼脂糖凝胶电泳检验片段完整性。随后,利用Gene Tools Analysis Software定量,均一化混样后再次纯化。文库构建采用ALFA-SEQ DNA Library Prep Kit,最终在Illumina高通量平台完成测序;下机数据及生物信息学分析均于美格生物云平台完成。
生物信息学分析主要包括:1)数据预处理,对下机数据进行质量控制、去除嵌合体,得到最终有效数据。2)菌群多样性分析,计算每组的α多样性指数(Chao1指数、Shannon指数、Simpson指数)以评估肠道菌群内的多样性;进行主成分分析(PCA),评估组间β多样性的差异。3)菌群结构与组成分析,计算每组在门和属水平的组成及相对丰度;进行LEfSe分析,以|线性判别分析(LDA)得分|>2为阈值,寻找组间具有显著差异的生物标志物,并绘制物种进化分支图以直观展示这些生物标志物在分类学层级中的位置。

1.5 数据统计分析

热应激和非热应激天数占比用Excel 2021软件进行数据分析及绘图,其他数据用SPSS 26.0软件进行分析,其中对受胎率和分娩率数据进行卡方检验,对α多样性指数数据进行t检验,对其他数据进行单因素方差分析(one-way ANOVA),采用Duncan氏法进行组间多重比较,并进行线性和二次回归分析。P<0.05表示差异显著,除受胎率和分娩率外,试验结果数据均以“平均值±标准差”表示。

2 结果与分析

2.1 兔舍热应激环境的评定

图1结果显示,根据兔舍THI统计结果,试验期间母兔遭受到不同程度热应激的比例高达86.67%(THI≥27.8),超过50%;其中,轻度热应激、重度热应激和极度热应激的占比分别为20.0%(27.8≤THI<28.9)、13.33%(28.9≤THI<30.0)和53.33%(THI≥30.0),这表明养殖环境达到热应激的试验条件。
图1 兔舍温湿度指数统计图

Fig.1 Statistical chart of temperature-humidity index in rabbit house

2.2 饲粮中添加QG对热应激条件下母兔采食量的影响

表2可知,与对照组相比,QG200、QG400和QG600组母兔妊娠期平均日采食量显著提高(P<0.05)。此外,与对照组相比,QG600组母兔哺乳期的平均日采食量也显著增加(P<0.05)。线性回归分析表明,QG添加量与平均日采食量呈正相关,特别是在妊娠期,这种促进作用更为显著;同时,二次回归分析显示,在妊娠期,QG添加量对平均日采食量的促进作用存在一定的非线性趋势,但在哺乳期,这种促进作用主要表现为线性增加。综上所述,饲粮中添加600 mg/kg QG对母兔采食量具有积极的促进作用。
表2 饲粮中添加QG对热应激条件下母兔平均日采食量的影响

Table 2 Effects of dietary QG supplementation on ADFI of female rabbits under heat-stress conditions

项目
Items
对照组
Control
group
QG100组
QG100
group
QG200组
QG200
group
QG400组
QG400
group
QG600组
QG600
group
PP-value
方差分析
ANOVA
线性
Linear
二次
Quadratic
妊娠期
Gestation
280.77
±2.83c
287.73
±2.04bc
289.52
±3.32b
298.64
±2.12a
305.67
±2.76a
0.001 0.001 0.023
哺乳期
Lactation
355.94
±3.70b
365.31
±4.01b
359.83
±3.64ab
366.10
±4.61ab
374.18
±4.73a
0.037 0.005 0.659

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.3 饲粮中添加QG对热应激条件下母兔繁殖性能的影响

表3可知,与对照组相比,QG600组的母兔受胎率显著提高15.03个百分点(80.25% vs. 65.22%,P<0.05),而其他试验组差异不显著(P>0.05);窝产仔数方面,QG100和QG600组显著高于对照组(P<0.05),分别增加1.77和0.97只;窝产活仔数方面,QG100、QG200和QG600组显著高于对照组(P<0.05),分别增加2.10、0.40和1.23只;综合窝产仔数方面,所有试验组均显著高于对照组(P<0.05),QG100、QG200、QG400和QG600组分别增多0.53、0.47、0.60和1.63只;综合窝产活仔数方面,所有试验组均显著高于对照组(P<0.05),QG100、QG200、QG400和QG600组分别增多0.73、0.59、0.63和1.74只;窝产死胎数方面,所有试验组与对照组相比,差异均不显著(P>0.05);与对照组相比,QG100、QG400和QG600组初生总窝重显著增加(P<0.05),所有试验组的初生活仔窝重均显著增加(P<0.05),QG400和QG600组的初生活仔均重显著增加(P<0.05)。线性和二次回归分析显示,QG添加量与综合窝产仔数、综合窝产活仔数、初生总窝重、初生活仔窝重和初生活仔均重存在显著的线性和二次关系(P<0.05)。
表3 饲粮中添加QG对热应激条件下母兔繁殖性能的影响

Table 3 Effects of dietary QG supplementation on reproductive performance of female rabbits under heat-stress conditions

项目
Items
对照组
Control
group
QG100组
QG100
group
QG200组
QG200
group
QG400组
QG400
group
QG600组
QG600
group
PP-value
方差分析
ANOVA
线性
Linear
二次
Quadratic
受胎率
Conception rate/%
65.22b 73.81b 62.79b 78.16b 80.25a 0.037(卡方检验Chi-square test)
分娩率
Farrowing rate/%
56.67b 51.61b 61.11b 63.24b 69.23b 0.318(卡方检验Chi-square test)
窝产仔数
Litter size/只
7.43
±0.56c
9.20
±0.55a
7.60
±0.56c
7.57
±0.50c
8.40
±0.49b
<0.001 0.547 0.611
窝产活仔数
Litter size born alive/只
6.80
±0.66d
8.90
±0.71a
7.20
±0.76c
7.03
±0.80cd
8.03
±0.61b
<0.001 0.324 0.354
综合窝产仔数
Total litter size/只
4.16
±0.31c
4.69
±0.28b
4.63
±0.34b
4.76
±0.31b
5.79
±0.34a
<0.001 <0.001 <0.001
综合窝产活仔数
Total litter size born
alive/只
3.80
±0.37c
4.53
±0.36b
4.39
±0.46b
4.43
±0.50b
5.54
±0.42a
<0.001 <0.001 0.007
窝产死胎数
Stillborn kits per
litter/只
0.63
±0.49
0.33
±0.47
0.40
±0.56
0.53
±0.50
0.37
±0.49
0.122 0.262 0.343
初生总窝重
Total litter birth
weight/g
368.67
±26.22c
385.33
±25.15b
372.67
±21.48c
394.33
±20.11b
445.33
±24.17a
<0.001 <0.001 <0.001
初生活仔窝重
Litter weight
born alive/g
337.33
±25.31c
361.67
±28.77b
355.67
±31.69b
367.67
±28.96b
418.33
±33.74a
<0.001 <0.001 <0.001
初生活仔均重
Average weight of
kits born alive/g
49.60
±4.14b
40.60
±3.66c
50.23
±3.43b
52.33
±2.48a
52.10
±3.88a
<0.001 <0.001 <0.001

2.4 饲粮中添加QG对热应激条件下母兔后代仔兔生长性能的影响

表4可知,与对照组相比,QG200组的仔兔7日龄窝仔数以及14、21、35日龄窝仔数和窝重均显著提高(P<0.05);QG400和QG600组的仔兔7、14、21、35日龄窝仔数和窝重显著提高(P<0.05)。线性回归分析发现,各日龄下窝仔数、窝重和均重与QG添加量均存在显著的线性关系(P<0.05)。由上述结果可知,热应激条件下在母兔饲粮中添加400或600 mg/kg QG可改善母兔后代仔兔的生长性能。
表4 饲粮中添加QG对热应激条件下母兔后代仔兔生长性能的影响

Table 4 Effects of dietary QG supplementation on growth performance of offspring rabbits of female rabbits under heat-stress conditions

项目
Items
对照组
Control
group
QG100组
QG100
group
QG200组
QG200
group
QG400组
QG400
group
QG600组
QG600
group
PP-value
方差分析
ANOVA
线性
Linear
二次
Quadratic
7日龄7 days of age
窝仔数
No. of kits per litter/只
5.13
±0.43b
5.37
±0.49ab
5.57
±0.50a
5.63
±0.49a
5.57
±0.50a
<0.001 <0.001 0.027
窝重
Litter weight/g
568.67
±26.61cd
556.33
±27.72d
579.67
±24.28bc
588.33
±25.87ab
594.67
±29.21a
<0.001 <0.001 0.227
均重
Average weight/g
110.83
±4.89a
103.59
±5.13c
104.07
±3.27c
104.51
±3.46c
106.77
±4.82b
<0.001 0.014 <0.001
14日龄14 days of age
窝仔数
No. of kits per litter/只
5.03
±0.49b
5.33
±0.47a
5.53
±0.50a
5.60
±0.56a
5.53
±0.50a
<0.001 <0.001 0.013
窝重
Litter weight/g
1 137.00
±64.17c
1 162.00
±41.72c
1 251.33
±57.75b
1 321.33
±55.13a
1 304.67
±63.82a
<0.001 <0.001 0.014
均重
Average weight/g
228.33
±6.82b
219.93
±8.27c
227.16
±8.68b
237.80
±9.28a
240.00
±7.64a
<0.001 <0.001 <0.001
21日龄21 days of age
窝仔数
No. of kits per litter/只
5.00
±0.37c
5.27
±0.45b
5.50
±0.50ab
5.57
±0.50a
5.47
±0.50ab
<0.001 <0.001 0.006
窝重
Litter weight/g
1 654.00
±86.04b
1 692.67
±121.93b
1 883.00
±99.69a
1 892.33
±100.53a
1 878.33
±73.11a
<0.001 <0.001 <0.001
均重
Average weight/g
332.63
±6.90b
323.74
±5.60c
345.37
±6.98a
342.92
±7.51a
346.61
±7.16a
<0.001 <0.001 0.913
35日龄35 days of age
窝仔数
No. of kits per litter/只
4.97
±0.49c
5.17
±0.37bc
5.47
±0.50a
5.43
±0.56ab
5.33
±0.54ab
<0.001 <0.001 0.007
窝重
Litter weight/g
3 402.67
±324.39c
3 647.67
±110.26b
4 032.67
±243.99a
3 994.33
±255.33a
3 951.00
±274.51a
<0.001 <0.001 <0.001
均重
Average weight/g
693.13
±21.35b
709.12
±37.63b
741.45
±35.74a
741.88
±45.18a
744.56
±35.78a
<0.001 <0.001 0.019

2.5 饲粮中添加QG对热应激条件下母兔妊娠第15天血清中生殖激素、炎症因子和抗氧化指标的影响

表5可知,妊娠第15天时,与对照组相比,QG100、QG200、QG400和QG600组母兔血清中P和IL-10含量、SOD和GSH-Px活性,以及T-AOC均显著提高(P<0.05),同时QG200、QG400和QG600组母兔中血清MDA含量显著降低(P<0.05)。线性回归分析发现,QG添加量与母兔血清中P、IL-6、IL-10含量,SOD、GSH-Px活性以及T-AOC存在显著的线性关系(P<0.05),这表明QG对母兔生殖激素、抗炎反应以及抗氧化能力的调节具有剂量效应。
表5 饲粮中添加QG对热应激条件下母兔妊娠第15天血清中生殖激素、炎症因子和抗氧化指标的影响

Table 5 Effects of dietary QG supplementation on serum reproductive hormones, inflammatory factors and antioxidative indexes on the 15th day of pregnancy of female rabbits under heat-stress conditions

项目
Items
对照组
Control
group
QG100组
QG100
group
QG200组
QG200
group
QG400组
QG400
group
QG600组
QG600
group
PP-value
方差分析
ANOVA
线性
Linear
二次
Quadratic
孕酮
P/(ng/mL)
1.48
±1.60d
8.05
±1.26bc
5.98
±2.18c
10.92
±3.66ab
12.51
±1.89a
<0.001 <0.001 0.627
雌二醇
E2/(pg/mL)
24.36
±11.21
19.25
±4.65
16.98
±8.47
19.00
±3.13
16.44
±3.30
0.663 0.186 0.514
白细胞介素-6
IL-6/(pg/mL)
15.50
±2.17
8.90
±3.05
8.35
±3.07
7.38
±3.68
9.03
±3.53
0.063 0.043 0.028
白细胞介素-10
IL-10/(pg/mL)
4.24
±1.06c
8.40
±0.84b
9.78
±1.86ab
12.58
±4.05a
13.70
±1.35a
0.003 <0.001 0.311
超氧化物歧化酶
SOD/(U/mL)
236.90
±3.25c
279.70
±10.16a
263.37
±5.68b
280.20
±10.83a
289.69
±7.38a
<0.001 <0.001 0.274
总抗氧化能力
T-AOC/(U/mL)
10.51
±0.13b
11.44
±0.73a
12.18
±0.56a
11.97
±0.22a
12.24
±0.34a
0.002 <0.001 0.107
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
1 355.06
±24.68c
1 455.74
±34.97b
1 515.54
±58.57ab
1 532.91
±33.93a
1 554.75
±31.84a
0.004 <0.001 0.036
丙二醛
MDA/(nmol/mL)
5.55
±0.19a
4.84
±0.69a
3.94
±0.44b
3.91
±0.39b
3.58
±0.41b
<0.001 <0.001 0.024

2.6 饲粮中添加QG对热应激条件下母兔肠道菌群的影响

2.6.1 饲粮中添加QG对热应激条件下母兔肠道菌群多样性的影响
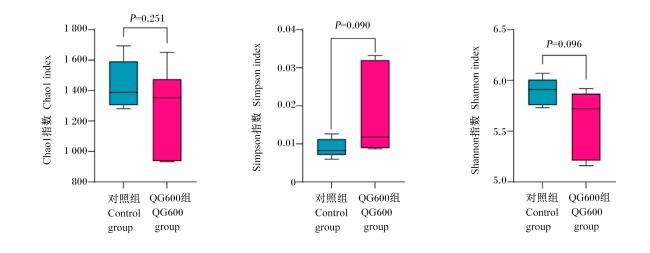
肠道菌群的α多样性指数分析结果(图2)显示,对照组和QG600组的Chao1指数、Simpson指数、Shannon指数均无显著差异(P>0.05),但QG600组的Simpson指数相较于对照组有升高趋势(P=0.090),这说明饲粮中添加600 mg/kg QG对热应激条件下母兔肠道菌群的α多样性具有一定的调节作用。
图2 饲粮中添加QG对热应激条件下母兔肠道菌群α多样性指数的影响

Fig.2 Effects of dietary QG supplementation on gut microbiota α diversity indexes of female rabbits under heat-stress conditions

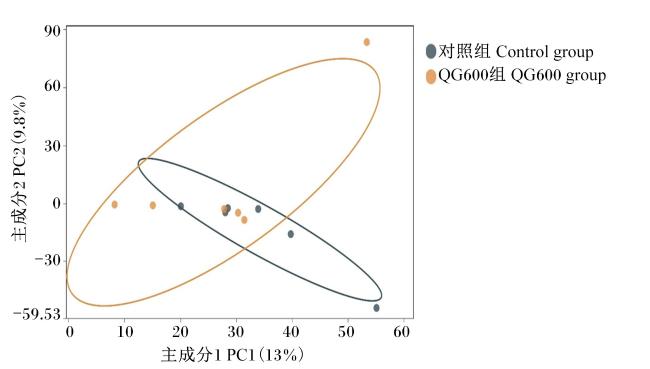
β多样性分析结果显示,PCA图(图3)中对照组内部样本明显聚集,呈现相似菌群;而QG600组内部样本分散,表明组内不同个体之间存在一定的差异性。对照组和QG600组的样本在置信度椭圆上有一定的分散,说明2组之间的肠道菌群呈现一定差异,表明饲粮中添加600 mg/kg QG对热应激条件下母兔肠道菌群的组成具有调节作用。
图3 PCA图

Fig.3 PCA diagram

2.6.2 饲粮中添加QG对热应激条件下母兔肠道菌群结构和组成的影响

2.6.2.1 肠道菌群门和属水平相对丰度分析
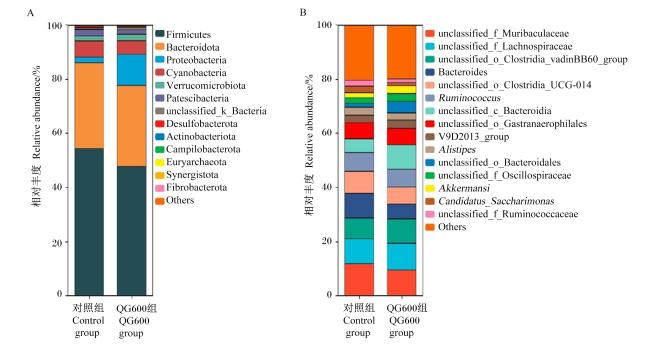
图4-A显示,门水平上,对照组和QG600组的优势菌门主要包括厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、蓝细菌门(Cyanobacteria)、疣微菌门(Verrucomicrobiota)、髌骨菌门(Patescibacteria)和变形菌门(Proteobacteria);与对照组相比,QG600组厚壁菌门(52.55% vs. 54.43%)、蓝藻菌门(5.70% vs. 5.83%)、髌骨菌门(1.26% vs. 2.43%)和变形菌门(1.27% vs. 2.08%)相对丰度降低,而拟杆菌门(35.06% vs. 31.70%)和疣微菌门(2.61% vs. 1.78%)相对丰度升高。图4-B进一步揭示,属水平上,尽管unclassified_f_Muribaculaceae在2组均属优势菌属,但QG600组毛螺菌科的未分类属(unclassified_f_Lachnospiraceae)(9.78% vs. 9.23%)和梭菌目vadinBB60群的未分类属(unclassified_o_Clostridia_vadinBB60_group)(9.32% vs. 7.90%)的相对丰度均高于对照组,提示饲粮中添加600 mg/kg QG重塑了热应激条件下母兔的肠道菌群结构。
图4 饲粮中添加QG对热应激条件下母兔肠道菌群门和属水平相对丰度的影响

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Cyanobacteria:蓝细菌门;Verrucomicrobiota:疣微菌门;Patescibacteria:髌骨菌门;unclassified_k_Bacteria:未分类细菌;Desulfobacterota:脱硫杆菌门;Actinobacteriota:放线菌门;Campilobacterota:弯曲菌门;Euryarchaeota:广古菌门;Synergistota:互氧菌门;Fibrobacterota:纤维杆菌门;unclassified_f_Lachnospiraceae:毛螺菌科的未分类属;unclassified_o_Clostridia_vadinBB60_group:梭菌目vadinBB60群的未分类属;Bacteroides:拟杆菌属;unclassified_o_Clostridia_UCG-014:梭菌目UCG-014的未分类属;Ruminococcus:瘤胃球菌属;unclassified_c_Bacteroidia:拟杆菌纲的未分类属;unclassified_o_Gastranaerophilales:胃厌氧菌目的未分类属;V9D2013_group:V9D2013群;Alistipes:另枝菌属;unclassified_o_Bacteroidales:拟杆菌目的未分类属;unclassified_f_Oscillospiraceae:颤螺菌科的未分类属;Akkermansi:阿克曼氏菌属;Candidatus_Saccharimonas:假定糖单胞菌属;unclassified_f_Ruminococcaceae:瘤胃球菌科的未分类属;others:其他。

A:热应激条件下母兔肠道菌群门水平上物种分布柱状图 species distribution histogram at phylum level of gut microbiota in female rabbits under heat-stress conditions;B:热应激条件下母兔肠道菌群属水平上物种分布柱状图 species distribution histogram at genus level of gut microbiota in female rabbits under heat-stress conditions。

Fig.4 Effects of dietary QG supplementation on relative abundances of gut microbiota at phylum and genus levels of female rabbits under heat-stress conditions

2.6.2.2 肠道菌群LEfSe分析

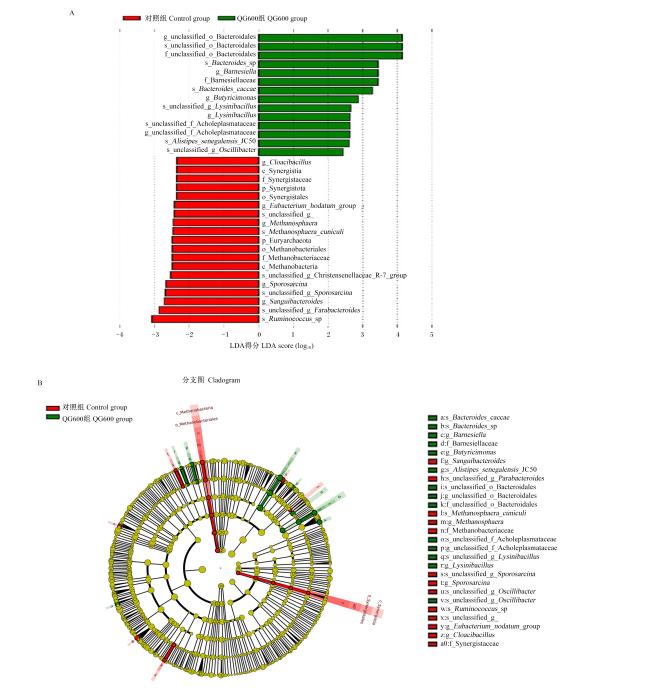
本试验中LEfSe分析(图5-A)以LDA得分>2为阈值,QG600组的特征菌群为赖氨酸芽孢杆菌属(Lysinibacillus)及其未分类种/株、无胆甾原体科(Acholeplasmataceae)及多级未分类的拟杆菌目(Bacteroidales)成员,这表明饲粮中添加600 mg/kg QG选择性促进了这些菌群的生长。相反,对照组中LDA得分<-2的特征菌群为真杆菌结节群(Eubacterium_nodatum_group)、甲烷球形菌属(Methanosphaera)、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)及血杆菌属(Sanguibacteroides),这表明热应激条件会促进这些肠道菌群的增殖。物种进化分支图(图5-B)进一步揭示,QG600组的优势分支集中于拟杆菌目(如g_unclassified_o_Bacteroidales、s_unclassified_o_Bacteroidales等),这些菌群可能通过多糖降解和短链脂肪酸生成参与宿主物质代谢;对照组则富集于产甲烷菌群(如g_Methanosphaera、s_Methanosphaera_cuniculi),这些菌群可能通过甲烷生成途径影响能量损耗与气体累积。进化分支与相对丰度差异的耦合表明,QG600组富集的拟杆菌目及对照组富集的产甲烷菌群各自呈系统发育聚类,提示它们分别拥有适应QG干预或热应激条件的共同进化策略,为解释群落结构差异提供了系统发育层面的依据。
图5 热应激条件下母兔肠道菌群LEfSe分析

g_unclassified_o_Bacteroidales:拟杆菌目的未分类属;s_unclassified_o_Bacteroidales:拟杆菌目的未分类种;f_unclassified_o_Bacteroidales:拟杆菌目的未分类科;s_Bacteroides_sp:拟杆菌属的未鉴定种;g_Barnesiella:巴恩斯氏菌属;f_Barnesiellaceae:巴恩斯氏菌科;s_Bacteroides_caccae:粪拟杆菌;g_Butyricimonas:丁酸单胞菌属;s_unclassified_g_Lysinibacillus:赖氨酸芽孢杆菌属的未分类种;g_Lysinibacillus:赖氨酸芽孢杆菌属;s_unclassified_f_Acholeplasmataceae:无胆甾原体科的未分类种;g_unclassified_f_Acholeplasmataceae:无胆甾原体科的未分类种;s_Alistipes_senegalensis_JC50:塞内加尔艾斯特菌JC50株;s_unclassified_g_Oscillibacter:颤螺菌属的未分类种;g_Cloacibacillus:粪杆菌属;c_Synergistia:互养菌纲;f_Synergistaceae:互养菌科;p_Synergistota:互养菌门;o_Synergistales:互养菌目;g_Eubacterium_hodatum_group:霍氏真杆菌群;s_unclassified_g_:未知菌属的未分类种;g_Methanosphaera:甲烷球菌属;s_Methanosphaera_cuniculi:兔甲烷球形菌;p_Euryarchaeota:广古菌门;o_Methanobacteriales:甲烷杆菌目;f_Methanobacteriaceae:甲烷杆菌科;c_Methanobacteria:甲烷菌纲;s_unclassified_g_Christensenellaceae_R-7_group:克里斯滕森菌科R群的未分类种;g_Sporosarcina:芽孢八叠球菌属;s_unclassified_g_Sporosarcina:芽孢八叠球菌属的未分类种;g_Sanguibacteroides:血杆菌样菌属;s_unclassified_g_Farabacteroides:法拉杆菌属的未分类种;s_Ruminococcus_sp:瘤胃球菌属的未知种;s_Bacteroides_caccae:粪拟杆菌;s_Bacteroides_sp:拟杆菌属的未知种;g_Barnesiella:巴氏菌属;f_Barnesiellaceae:巴氏菌科;g_Butyricimonas:丁酸单胞菌属;g_Sanguibacteroides:血液拟杆菌;s_unclassified_g_Parabacteroides:副拟杆菌属的未分类种;s_unclassified_o_Bacteroidales:拟杆菌目的未分类种;g_unclassified_o_Bacteroidales:拟杆菌目的未分类属;f_unclassified_o_Bacteroidales:拟杆菌目的未分类科; g_Methanosphaera:甲烷球形菌属;f_Methanobacteriaceae:甲烷杆菌科;s_unclassified_f_Acholeplasmataceae:无胆甾支原体科的未分类种;g_unclassified_f_Acholeplasmataceae:无胆甾支原体科的未分类属;s_unclassified_g_Lysinibacillus:溶杆菌属的未分类种;g_Lysinibacillus:溶杆菌属;s_unclassified_g_Sporosarcina:芽孢八叠球菌属的未分类种;g_Sporosarcina:芽孢八叠球菌属;s_unclassified_g_Oscillibacter:颤螺旋菌属的未分类种;s_Ruminococcus_sp:瘤胃球菌属下的某个未指明种;g_Eubacterium_nodatum_group:优杆菌属nodatum群;g_Cloacibacillus:阴沟杆菌属;f_Synergistaceae:协同菌科。

A:LDA柱状图 LDA bar plot;B:物种进化分支图 branching map of species evolution。

Fig.5 LEfSe analysis of gut microbiota of female rabbits under heat-stress conditions

3 讨论

3.1 饲粮中添加QG对热应激条件下母兔繁殖性能及其仔兔生长性能的影响

热应激作为现代畜牧业中不可忽视的环境压力之一,对母兔的繁殖性能产生了显著影响。在高温条件下,母兔的生理机能遭受挑战,导致一系列繁殖性能指标的下滑[12-13]。具体而言,热应激会降低母兔的受胎率,这主要是由于高温环境下母兔体内激素水平紊乱,从而影响了正常的交配后受精卵着床过程[14];热应激还会减少母兔的窝产仔数,影响母兔的繁殖效率,增加养殖成本;更为严重的是,热应激还会增加仔兔的死亡率[15]。研究表明,QG能够有效清除动物体内的自由基,减轻氧化应激反应[16]。本试验选取受胎率、分娩率、窝产活仔数、初生活仔均重、综合窝产仔数以及综合窝产活仔数等来作为评估母兔繁殖性能的主要指标,试验结果发现,不同剂量的QG对这些指标产生了不同程度的影响,在各试验组中,QG600组对母兔繁殖性能的改善效果最为显著,说明在夏季热应激环境条件下,QG能够有效优化母兔的繁殖性能,进而对提升兔场经济效益起到促进作用。
热应激通过多重级联机制损害母体胎盘功能并制约仔兔生长发育。高温抑制胎盘滋养层细胞的增殖与分化,导致胎盘结构异常:血管分支稀疏、管径缩小,胎盘-母体间交换面积锐减,氧气和营养供应效率显著下降[17]。此外,热应激还会导致子宫内营养受限,使胎儿宫内生长迟缓,初生重降低。进入哺乳期后,热应激还会影响母兔泌乳启动与维持能力,导致乳的品质和产量下降,仔兔摄入能量与免疫因子不足,断奶前体重增长缓慢、体型瘦小,进而影响后续育肥性能与胴体等级[18]。本试验结果显示,饲粮中添加600 mg/kg QG可显著提升母兔的窝产仔数和窝产活仔数;与对照组相比,QG600组仔兔7、14、21、35日龄窝仔数和窝重显著提高。综上可知,在夏季热应激环境条件下,母兔饲粮中添加QG可以提高母兔的繁殖性能及其后代的生长性能,进而提高家兔养殖效益。

3.2 饲粮中添加QG对热应激条件下母兔血清生殖激素、炎症因子和抗氧化指标的影响

热应激诱导氧化应激,进而破坏母兔的内分泌稳态及卵巢生理功能[19-20],具体表现为卵巢相对质量下降,颗粒细胞对促卵泡激素的反应性减弱,血浆P含量降低,卵巢细胞核仁结构受损[20-21]。热应激影响母畜体内P和E2的机制主要与下丘脑-垂体-卵巢轴调节相关。高温刺激会激活下丘脑-垂体-肾上腺轴,使促肾上腺皮质激素释放激素分泌增加,进而促进垂体释放促肾上腺皮质激素(adrenocorticotropic hormone,ACTH)的分泌。持续升高的ACTH负反馈抑制下丘脑促性腺激素释放激素的分泌,导致垂体促卵泡素与促黄体素分泌减少,卵泡发育受阻、排卵率下降,E2合成量降低。与此同时,高水平的ACTH还可诱发卵巢囊肿,进一步削弱卵巢类固醇生成能力[22]。此外,热应激通过扰乱下丘脑-垂体-肾上腺轴的激素反馈环,降低血清P和E2的水平[23]。本试验结果发现,夏季热应激环境条件下,饲粮中添加600 mg/kg QG后母兔妊娠第15天血清中P浓度显著提升。据此推断,在母兔饲粮中补充QG,对于缓解热应激对母兔生殖内分泌系统的负面影响具有积极作用。
热应激会打破机体氧化还原的平衡,导致氧化应激,具体表现为活性氧生成和清除机制失衡,导致细胞遭受到氧化损伤。此外,热应激还会抑制家兔体液免疫与细胞免疫的双重应答[24],并扰乱其免疫稳态[25],显著上调促炎细胞因子的表达水平[26]。本试验结果发现,夏季热应激环境条件下,饲粮中添加600 mg/kg QG后母兔妊娠第15天血清中T-AOC、SOD和GSH-Px活性以及IL-10含量显著提升,同时MDA含量显著降低。这表明在热应激条件下,QG在母兔体内发挥着重要的抗氧化和抗炎作用,其可能机制主要是通过增强抗氧化酶活性,提高机体清除自由基的能力;同时,通过减轻脂质过氧化反应,降低了母兔血清MDA含量,进而减少由此引发的炎症反应对机体造成的损伤,最终缓解热应激导致的氧化应激。

3.3 饲粮中添加QG对热应激条件下母兔肠道菌群的影响

畜禽肠道菌群的组成与结构受畜禽的品种、年龄、性别、生理状态、环境和营养水平等多种因素共同影响[27]。研究表明,热应激会导致畜禽肠道菌群生态失衡,显著改变其多样性、物种丰度及代谢功能,具体表现为益生菌(如罗伊氏乳杆菌、丁酸梭菌)丰度显著下降,而条件性致病菌(如沙门氏菌、变形杆菌)及潜在致病菌则过度增殖,同时伴随短链脂肪酸等代谢产物谱系的紊乱,最终导致肠道屏障功能受损及微生物稳态失调[28]。本试验中,α多样性分析显示对照组和QG600组的Chao1指数、Shannon指数和Simpson指数无显著差异,但QG600组的Simpson指数较对照组有所提高,这表明QG可在一定程度上改善了热应激条件下母兔肠道菌群的多样性;β多样性的分析表明,2组间的样本在置信度椭圆上有一定的分散,说明QG的添加对热应激条件下母兔肠道菌群组成产生了影响,但并未形成完全独立的群落结构;在门水平上相对丰度分析发现,QG600组的拟杆菌门和疣微菌门的相对丰度高于对照组,厚壁菌门的相对丰度略低于对照组,这反映了QG对母兔肠道菌群结构的微妙调整;在属水平上相对丰度分析发现,QG600组的unclassified_f_Lachnospiraceae和unclassified_o_Clostridia_vadinBB60_group相对丰度高于对照组,而unclassified_f_Muribaculaceae、拟杆菌属、unclassified_o_Clostridia_UCG-014和瘤胃球菌属的相对丰度低于对照组,这些数据为深入探究QG对肠道菌群的作用机制提供了基础数据;最后,肠道菌群LEfSe分析揭示,QG600组中显著富集的肠道菌群主要包括未分类到较低层级的拟杆菌目以及赖氨酸芽孢杆菌属等,而对照组中显著富集的肠道菌群则包括真杆菌属结节群、甲烷球形菌属等产甲烷微生物,这些差异不仅反映了2组在肠道菌群组成上的差异,还可能暗示了它们在物质代谢、能量代谢等生理功能上的不同。

4 结论

在热应激条件下,饲粮中添加600 mg/kg QG可改善母兔的繁殖性能及其仔兔的生长性能,且对母兔肠道菌群具有一定的调控作用。
[1]
POLSKY L, VON KEYSERLINGK M A G, Invited review:effects of heat stress on dairy cattle welfare[J]. Journal of Dairy Science, 2017, 100(11):8645-8657.

DOI

[2]
SEVI A, ANNICCHIARICO G, ALBENZIO M, et al. Effects of solar radiation and feeding time on behavior,immune response and production of lactating ewes under high ambient temperature[J]. Journal of Dairy Science, 2001, 84(3):629-640.

DOI

[3]
武亚南. 槲皮万寿菊素抑制肉鸡心脏热应激损伤研究[D]. 硕士学位论文. 邯郸: 河北工程大学, 2022.

WU Y N. Inhibition of quercetagetin on heat stress injury in broiler hearts[D]. Master’s Thesis. Handan: Hebei University of Engineering, 2022. (in Chinese)

[4]
YANG X D, KANG S M, JEON B T, et al. Isolation and identification of an antioxidant flavonoid compound from citrus-processing by-product[J]. Journal of the Science of Food and Agriculture, 2011, 91(10):1925-1927.

DOI PMID

[5]
SIRIWONG S, TEETHAISONG Y, THUMANU K, et al. The synergy and mode of action of quercetin plus amoxicillin against amoxicillin-resistant Staphylococcus epidermidis[J]. BMC Pharmacology and Toxicology, 2016, 17(1):39.

DOI

[6]
潘奎. 槲皮万寿菊素抑制AFB1致鸡肝细胞损伤研究[D]. 硕士学位论文. 邯郸: 河北工程大学, 2023.

PAN K. Study on chicken hepatocelular damage cause d by quercetagetin inhibiting AFB1[D]. Master’s Thesis. Handan: Hebei University of Engineering, 2023. (in Chinese)

[7]
LANI R, HASSANDARVISH P, SHU M H, et al. Antiviral activity of selected flavonoids against Chikungunya virus[J]. Antiviral Research, 2016, 133:50-61.

DOI PMID

[8]
郑红青, 田昊伦, 朱小甫, 等. 槲皮万寿菊素对仔猪生长性能、腹泻率及免疫力的影响[J]. 饲料研究, 2024, 47(17):25-29.

ZHENG H Q, TIAN H L, ZHU X F, et al. Effects of quercetagetin on growth performance,diarrhea rate,and immunity of piglets[J]. Feed Research, 2024, 47(17):25-29. (in Chinese)

[9]
梁慧情, 谭凯, 李泽强, 等. 槲皮万寿菊素对氧化应激下肉鸡抗氧化能力和免疫功能的影响[J]. 饲料研究, 2024, 47(10):43-47.

LIANG H Q, TAN K, LI Z Q, et al. Effects of quercetagetin on antioxidant capacity and immune function of broilers under oxidative stress[J]. Feed Research, 2024, 47(10):43-47. (in Chinese)

[10]
National Research Council, Board on Agriculture,Committee on Animal Nutrition. Nutrient requirements of rabbits agriculture[S]. 2nd ed. Washington,D.C.: The National Academies Press, 1977.

[11]
MARAI I F, AYYAT M S, ABD EL-MONEM U M. Growth performance and reproductive traits at first parity of New Zealand white female rabbits as affected by heat stress and its alleviation under Egyptian conditions[J]. Tropical Animal Health and Production, 2001, 33(6):451-462.

DOI PMID

[12]
章澳, 李明晖, 郭志强. 热应激对兔生产性能的影响及其营养调控研究进展[J]. 中国畜牧杂志, 2024, 60(9):15-20,27.

ZHANG A, LI M H, GUO Z Q. Research progress on the effects of heat stress on the production performance of rabbits and its nutritional regulation[J]. Chinese Journal of Animal Science, 2024, 60(9):15-20,27. (in Chinese)

[13]
程菊芬, 张立, 袁家琪, 等. 中药添加剂对热应激生长兔生长性能、屠宰性能、肠道微生态和血清生化指标的影响[J]. 动物营养学报, 2024, 36(3):1867-1877.

DOI

CHENG J F, ZHANG L, YUAN J Q, et al. Effects of Chinese medicine additives on growth performance,slaughter performance,intestinal microecology and serum biochemical indices of heat-stressed growing rabbits[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1867-1877. (in Chinese)

DOI

[14]
张皓翔, 陈红跃, 张晶, 等. 热应激对肉兔的影响及其缓解措施[J]. 中国养兔杂志, 2024(5):33-38,41.

ZHANG H X, CHEN H Y, ZHANG J, et al. Effects of heat stress on meat rabbits and strategies for alleviation[J]. Chinese Journal of Rabbit Farming, 2024(5):33-38,41. (in Chinese)

[15]
MARCO-JIMÉNEZ F, NATURIL-ALFONSO C, PEÑARANDA D S, et al. Maternal exposure to high temperatures disrupts OCT4 mRNA expression of rabbit pre-implantation embryos and endometrial tissue[J]. Reproduction in Domestic Animals, 2013, 48(3):429-434.

DOI

[16]
黄秀琼. 万寿菊抗氧化活性成分及其作用机理探讨[D]. 博士学位论文. 长沙: 湖南农业大学, 2022.

HUANG X Q. Study on the antioxidant components from Tagetes erecta and the corresponding mechanisms[D]. Ph.D.Thesis. Changsha: Hunan Agricultural University, 2022. (in Chinese)

[17]
杨丁凡, 楼鹏, 张然, 等. 环境热应激对家畜胎盘和胎儿影响的研究进展[J]. 中国草食动物科学, 2020, 40(5):56-60.

YANG D F, LOU P, ZHANG R, et al. Research progress on the effect of environmental heat stress on placental function and fetal growth in livestock[J]. China Herbivore Science, 2020, 40(5):56-60. (in Chinese)

[18]
李祺, 梁慧, 龙润泽, 等. 饲粮中添加葡萄籽原花青素对热应激母兔繁殖性能及其仔兔生长性能的影响[J]. 动物营养学报, 2023, 35(12):7988-8000.

DOI

LI Q, LIANG H, LONG R Z, et al. Effects of dietary grape seed procyanidins on reproductive performance of female rabbits and growth performance of offspring under heat stress[J]. Chinese Journal of Animal Nutrition, 2023, 35(12):7988-8000. (in Chinese)

DOI

[19]
SIROTKIN A V, PARKANYI V, PIVKO J. High temperature impairs rabbit viability,feed consumption,growth and fecundity:examination of endocrine mechanisms[J]. Domestic Animal Endocrinology, 2021, 74:106478.

[20]
MUTWEDU V B, NYONGESA A W, ODUMA J A, et al. Thermal stress causes oxidative stress and physiological changes in female rabbits[J]. Journal of Thermal Biology, 2021, 95:102780.

[21]
TANG L P, BAI X, XIE X H, et al. Negative effects of heat stress on ovarian tissue in female rabbit[J]. Frontiers in Veterinary Science, 2022, 9:1009182.

[22]
占今舜, 张彬. 热应激对母猪繁殖性能的影响及应对措施[J]. 养猪, 2013(3):45-48.

ZHAN J S, ZHANG B. Effect of heat stress on reproductive performance of sows and countermeasures[J]. Swine Production, 2013(3):45-48. (in Chinese)

[23]
徐海瑾, 孔斌, 刘晓兵, 等. 热应激对雌性小鼠发情周期及生殖激素分泌的影响[J]. 农业科学研究, 2019, 40(4):17-20,26.

XU H J, KONG B, LIU X B, et al. Effect of heat stress on estrus cycle and reproductive hormone secretion in female mice[J]. Journal of Agricultural Sciences, 2019, 40(4):17-20,26. (in Chinese)

[24]
EL-DESOKY N I, HASHEM N M, GONZALEZ-BULNES A, et al. Effects of a Nanoencapsulated moringa leaf ethanolic extract on the physiology,metabolism and reproductive performance of rabbit does during summer[J]. Antioxidants, 2021, 10(8):1326.

DOI

[25]
ABDELNOUR S A, HASSAN M A E, MOHAMMED A K, et al. The effect of adding different levels of curcumin and its nanoparticles to extender on post-thaw quality of cryopreserved rabbit sperm[J]. Animals, 2020, 10(9):1508.

DOI

[26]
SAGHIR S A M, AL HROOB A M, MAJRASHI K A, et al. Effects of alginates on the growth,haematological,immunity,antioxidant and pro-inflammatory responses of rabbits under high temperature[J]. Research in Veterinary Science, 2023, 155:36-43.

DOI

[27]
KARL J P, HATCH A M, ARCIDIACONO S M, et al. Effects of psychological,environmental and physical stressors on the gut microbiota[J]. Frontiers in Microbiology, 2018, 9:2013.

DOI

[28]
HE Y Q, MALTECCA C, TIEZZI F. Potential use of gut microbiota composition as a biomarker of heat stress in monogastric species:a review[J]. Animals, 2021, 11(6):1833.

DOI

文章导航

/