研究论文

仔猪早期断奶前后空肠组织长链非编码RNA和mRNA表达谱研究

  • 刘淑杰 ,
  • 邓波 ,
  • 李永明 ,
  • 陶新 ,
  • 徐子伟 , *
展开
  • 浙江省农业科学院畜牧兽医研究所,杭州 310021
* 徐子伟,研究员,博士生导师,E-mail:

刘淑杰(1978—),女,内蒙古扎兰屯人,副研究员,博士,主要从事动物健康养殖与分子生物学研究。E-mail:

收稿日期: 2025-06-06

  网络出版日期: 2026-01-13

基金资助

2025年度杭州市重点科研计划项目(2025SZD1B07)

浙江省“领雁”研发攻关计划项目(2024C02004)

国家现代农业产业技术体系建设专项资金(CARS-35)

国家自然基金项目(C170105/31501966)

Expression Profiles of Long Non-Coding RNA and mRNA in Jejunal Tissues of Piglets Before and After Early Weaning

  • LIU Shujie ,
  • DENG Bo ,
  • LI Yongming ,
  • TAO Xin ,
  • XU Ziwei , *
Expand
  • Institute of Animal Husbandry and Veterinary Science, Zhejiang Academy of Agricultural Sciences, Hangzhou 310021, China
* professor, E-mail:

Received date: 2025-06-06

  Online published: 2026-01-13

摘要

本试验旨在研究仔猪断奶前后空肠组织长链非编码RNA(lncRNA)和mRNA谱,探讨lncRNA在断奶仔猪肠道发挥的调控功能,解析与肠道损伤或修复功能密切相关的lncRNA,为通过营养手段调控断奶仔猪肠道健康提供依据。选择18头遗传背景相近、体重为(4.01±0.05) kg的仔猪,随机分为3组,即断奶第0(断奶当天,D0组)、3(D3组)和7天(D7组)组,每组6头(2母,4公)。其中,D3和D7组仔猪21日龄断奶,D0组仔猪继续哺乳,分别在断奶第0、3和7天屠宰各组所有仔猪。结果表明:1)与D0组相比,D3组血清D-乳酸(D-LA)含量和二胺氧化酶活性均显著升高(P<0.05),血清超氧化物歧化酶(SOD)、过氧化氢酶和谷胱甘肽过氧化物酶活性显著降低(P<0.05);D7组血清D-LA含量显著升高(P<0.05),血清SOD活性显著降低(P<0.05)。2)与D0组相比,D3组和D7组空肠绒毛高度(VH)和绒毛高度/隐窝深度(V/C)值显著降低(P<0.05),空肠隐窝深度(CD)显著升高(P<0.05);与D3组相比,D7组空肠VH和V/C值显著升高(P<0.05),空肠CD显著降低(P<0.05)。3)对空肠组织进行转录组测序发现,断奶仔猪空肠共有3 322个lncRNA表达,其中1 772个已注释,1 550个为新发现;同时,鉴定出25 491个mRNA。4)与D0组相比,D3组和D7组差异表达lncRNA分别为727和724个,差异表达mRNA分别为5 035和4 571个;与D3组相比,D7组差异表达lncRNA和mRNA分别为227和2 438个。5)功能富集分析显示,与D0组相比,D3组和D7组差异表达lncRNA靶基因主要富集在炎症性肠病、抗原加工与呈递、细胞黏附分子及核因子-kappa B信号通路等。6)挑选5条差异表达的lncRNA和mRNA,实时荧光定量PCR验证结果与高通量测序结果趋势一致。7)挑选出6对均差异表达且很可能是参与断奶仔猪肠道功能调控的重要lncRNA和靶基因[靶基因分别为密封蛋白10(CLDN10)、DnaJ热休克蛋白家族成员C2(DNAJC2)、C-X-C基序趋化因子配体8(CXCL8)、肝细胞生长因子(HGF)、Toll样受体9(TLR9)和一氧化氮合酶2(NOS2)],涉及肠道通透性、氧化应激、炎症反应及肠道细胞损伤修复等。综上所述,断奶导致仔猪氧化应激、肠道通透性增加、黏膜屏障损伤以及肠道lncRNA和mRNA异常表达,差异表达的lncRNA及靶基因参与肠道损伤及重建过程,本研究为进一步揭示lncRNA在断奶仔猪肠道的调控功能及相关机制提供了参考依据。

本文引用格式

刘淑杰 , 邓波 , 李永明 , 陶新 , 徐子伟 . 仔猪早期断奶前后空肠组织长链非编码RNA和mRNA表达谱研究[J]. 动物营养学报, 2026 , 38(1) : 604 -620 . DOI: 10.12418/CJAN2026.047

Abstract

This experiment aimed to study the long non-coding RNA (lncRNA) and mRNA profiles in jejunal tissues of piglets before and after weaning, explore the regulatory roles of lncRNA in intestine of weaned piglets, identify lncRNA closely associated with intestinal injury or repair, and provide a theoretical foundation for nutritional strategies to improve intestinal health in weaned piglets. A total of 18 piglets with similar genetic background and body weight of (4.01±0.05) kg were selected and randomly divided into 3 groups at post-weaning day 0 (the day of weaning, D0 group), day 3 (D3 group), and day 7 (D7 group), with 6 piglets in each group (2 females and 4 males), respectively. Among them, the piglets in D3 and D7 groups were weaned at 21 days of age, while those in D0 group continued to nurse. The piglets in each group were slaughtered on day 0, day 3 and day 7 after weaning, respectively. The results showed as follows: 1) compared with D0 group, the serum D-lactic acid (D-LA) content and diamine oxidase activity in D3 group were significantly increased (P<0.05), while the activities of serum superoxide dismutase (SOD), catalase and glutathione peroxidase were significantly decreased (P<0.05); the serum D-LA content in D7 group was significantly increased (P<0.05), and the serum SOD activity was significantly decreased (P<0.05). 2) Compared with D0 group, the jejunal villus height (VH) and villus height to crypt depth ratio (V/C) in D3 and D7 groups were significantly decreased (P<0.05), and the jejunal crypt depth (CD) was significantly increased (P<0.05). Compared with D3 group, the jejunal VH and V/C in D7 group were significantly increased (P<0.05), and the jejunal CD was significantly decreased (P<0.05). 3) Transcriptome sequencing of jejunal tissues revealed that a total of 3 322 lncRNA were expressed in jejunum of weaned piglets, among which 1 772 were annotated and 1 550 were novel. Concurrently, 25 491 mRNA were identified. 4) Compared with D0 group, the number of differentially expressed lncRNA in D3 and D7 groups was 727 and 724, and the number of differentially expressed mRNA was 5 035 and 4 571, respectively. Compared with D3 group, the numbers of differentially expressed lncRNA and mRNA in D7 group were 227 and 2 438, respectively. 5) Functional enrichment analysis revealed that, compared with D0 group, the target genes of differentially expressed lncRNA in D3 and D7 groups were predominantly enriched in pathways including inflammatory bowel disease, antigen processing and presentation, cell adhesion molecules, and nuclear factor-kappa B signaling pathway. 6) A total of 5 differentially expressed lncRNA and mRNA were selected, and real-time quantitative PCR verified that the results were consistent with the trend of high-throughput sequencing. 7) Six pairs of lncRNA-target gene transcripts showing differential expression in both components were selected as likely regulators of intestinal function in weaned piglets. Target genes of these lncRNA included claudin 10 (CLDN10), DnaJ heat shock protein family member C2 (DNAJC2), C-X-C motif chemokine ligand 8 (CXCL8), hepatocyte growth factor (HGF), Toll-like receptor 9 (TLR9), and nitric oxide synthase 2 (NOS2), which were involved in intestinal permeability, oxidative stress, inflammatory response, and repair of intestinal cellular damage. In summary, weaning leads to oxidative stress, increases intestinal permeability, disrupts mucosal barrier and causes abnormal expression of intestinal lncRNA and mRNA in piglets. Differentially expressed lncRNA and target genes are involved in the process of intestinal injury and reconstruction. This study provides a reference for further revealing the regulatory roles of lncRNA and related mechanisms in intestine of weaned piglets.

早期断奶是提升母猪繁殖效率、阻断母源疾病传播的重要技术。然而,早期断奶却是仔猪一生中经历最为严重的应激事件,此时仔猪的消化系统和免疫器官尚未发育成熟,还不能适应营养和环境等外界因素突然改变,极易造成肠道损伤、生长迟滞、腹泻,甚至死亡,特别是我国“饲料禁抗”政策的实施使养殖端面临更为严峻的挑战,仔猪肠道健康问题变得更为突出[1]。仔猪早期断奶直接损伤的靶器官是肠道,断奶应激导致仔猪肠道形态改变,消化酶活性降低,屏障功能受损,产生炎症,改变与氧化应激、免疫反应和细胞增殖等相关基因表达水平,造成整个消化系统紊乱,且这种损伤以断奶后1周内最为严重[2-4]。仔猪肠道损伤会触发机体的再生修复机制,激活多种修复因子、功能性物质及细胞活动共同参与,整个过程长短受应激程度、仔猪生理状况和营养水平等因素影响[5]。肠道健康是决定仔猪整体健康和后期生产力水平的关键因素,只有深入解析仔猪断奶后肠道损伤及重建的分子机制,才能够更好制定有效的营养调控策略,加速肠道修复的进程,缓解断奶应激给仔猪造成的重创。
长链非编码RNA(long non-coding RNA,lncRNA)是一类长度大于200 bp且不具有蛋白质编码功能的RNA,被认为是维持机体平衡的广谱调控分子[6]。作为一类新功能分子,lncRNA具有从转录、转录后及表观遗传等多水平调节基因表达的重要作用,参与细胞周期调控、X染色体沉默、信号转导以及转录干扰与转录激活等多种过程,并发挥关键的调控作用[7]。lncRNA的异常表达与肠道疾病的发生、发展密切相关。研究显示,lncGata6能够调控肠细胞的干性,在结肠癌肿瘤干细胞中高表达,从而促进肿瘤发生和发展[8]。lncRNA SNHG1通过招募异质核糖核蛋白D,上调丝氨酸蛋白酶抑制剂家族A成员3表达,促进结直肠癌细胞迁移和侵袭[9]。lncRNA NEAT1通过调节结肠核因子-kappa B(NF-kappa B)p65易位,上调肿瘤坏死因子受体超家族成员1B,促进炎症性肠病(IBD)的炎症反应[10]。仔猪感染猪流行性腹泻病毒(PEDV)后,肠道lncRNA446表达下调引起肠屏障结构受损和通透性增加,其通过抑制Alix蛋白的泛素化降解调节紧密连接的完整性,高表达有利于猪抵抗PEDV感染[11]。由此可知,通过对lncRNA功能进行深入研究,将有助于明确疾病的发病机理及治疗的靶点。
lncRNA具有重要的生物学功能,但关于lncRNA在断奶仔猪肠道损伤及重建过程中的功能调控研究还比较匮乏。鉴于此,本研究主要利用高通量测序技术,分析断奶前后肠道差异表达lncRNA和mRNA谱,解析肠道lncRNA的调控功能及参与调节的重要信号通路,为采取安全、高效的营养措施,从转录组水平对断奶仔猪肠道进行健康调控提供一个新的视角。

1 材料与方法

1.1 试验设计

本动物试验开展获得浙江省农业科学院实验动物福利和伦理委员会批准(批准号:20190530)。试验以浙江省农业科学院海宁科技牧场的杜洛克纯系猪作为研究对象,选择2头来自全同胞且与同一公猪配种的怀孕母猪(预产期相同),并选择所产体重为(4.01±0.05) kg的仔猪共18头,随机分为3组,分别为断奶第0(断奶当天,D0组)、3(D3组)和7天(D7组)组,每组6头(2母,4公)。D0组仔猪继续哺乳直至屠宰前,作为哺乳对照组;D3和D7组仔猪于21日龄断奶,断奶后自由采食和饮水,每天观察仔猪腹泻情况。基础饲粮参照NRC(2012)推荐的猪营养需要配制,其中消化能参照NRC(2012)计算,粗蛋白质、钙和磷含量分别参照GB/T 6432—2018、GB/T 6436—2018和GB/T 6437—2018中方法测定,基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corm 51.00
豆粕Soybean meal 18.00
膨化大豆Extruded soybean 13.00
鱼粉Fish meal 5.00
乳清粉Whey power 10.00
磷酸氢钙CaHPO4 0.80
食盐NaCl 0.30
石粉Limestone 0.50
氯化胆碱Choline chloride 0.10
赖氨酸Lysine (78%) 0.20
蛋氨酸Methionine (98%) 0.08
苏氨酸Threonine (98%) 0.08
预混料Premix1) 0.94
合计Total 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 3.31
粗蛋白质Crude protein 20.00
钙Calcium 0.80
磷Phosphorus 0.65

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 7 500 IU,VD3 750 IU,VE 25 IU,VB1 2.0 mg,VB2 4.0 mg,VB6 10.0 mg,VB12 0.025 mg,VK3 2.5 mg,泛酸 pantothenic acid 16.0 mg,叶酸 folic acid 2.0 mg,烟酸 nicotinic acid 40 mg,生物素 biotin 0.18 mg,Fe (as ferrous sulfate) 100 mg,Mn (as manganese sulfate) 20 mg,Cu (as copper sulfate) 20 mg,I (as calcium iodate) 0.4 mg。

2)消化能为计算值,其余为实测值。DE was a calculated value, while the others were measured values.

在断奶第0、3和7天早晨,相应屠宰各组所有仔猪,屠宰前采集前腔静脉血液,1 000×g离心15 min,分离血清保存于-80 ℃,用于血清生化指标测定。屠宰后每组采集3头仔猪(公)空肠组织并液氮保存,用于高通量测序分析;截取1 cm空肠组织放入10%中性甲醛溶液,用于形态学分析。

1.2 指标测定

1.2.1 血清生化指标

采用分光光度计测定血清D-乳酸(D-LA)、丙二醛(MDA)含量以及二胺氧化酶(DAO)、谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)和超氧化物歧化酶(SOD)活性,试验方法与测定步骤参照试剂盒说明书,试剂盒购自南京建成生物工程研究所。

1.2.2 肠道形态学分析

将空肠组织从中性甲醛溶液中取出,经脱水、透明、包埋等处理后制成蜡块,然后依次经切片、漂浮和烤片处理,制成切片,再经苏木精-伊红(HE)染色后,在显微镜下观察肠道形态并拍照,使用Image-Pro Plus 5.0软件分析绒毛高度(VH)、隐窝深度(CD)及绒毛高度/隐窝深度(V/C)值。

1.2.3 肠道cDNA文库构建及转录组测序

采用TRIzol(美国Invitrogen公司)提取空肠总RNA,用NanoDrop分光光度计(美国Thermo Scientific公司)检测RNA纯度,用Qubit® RNA分析试剂盒(美国Life Technologies公司)检测RNA浓度,并用RNA Nano 6000分析试剂盒(美国Agilent公司)检测RNA完整性。将检测合格样品(每份样品3 μg)送至北京诺禾致源科技股份有限公司,制备cDNA文库并测序。采用NEBNext® UltraTM定向RNA文库制备试剂盒(美国NEB公司)构建文库,利用Agilent-2100核酸分析仪(美国Agilent公司)分析文库纯度及片段大小,构建合格文库通过Illumina HiSeq 2500测序平台测序。

1.2.4 数据分析和lncRNA鉴定

对获得的原始序列(raw reads)进行内部perl脚本处理,去除N比例大于5%、低质量及带接头的reads,分析Q20、Q30和GC含量,获得高质量的有效序列(clean reads)。从Ensemble数据库下载猪参考基因组(Sscrofa11.1)和基因模型注释文件,采用HISAT2软件(2.0.5)将有效序列与参考基因组进行比对分析。利用StringTie软件对转录本进行组装,采用GffCompare程序对组装的转录本进行注释,先过滤掉mRNA、已有注释的lncRNA及小于200 bp的RNA片段。采用CPC、CNCI、PFAM和PhyloCSF 4种方法鉴定候选lncRNA,去除具有编码潜能的转录本,并预测出新的lncRNA。

1.2.5 靶基因预测及差异表达转录本筛选

筛选lncRNA上、下游100 kb区域内的蛋白质编码基因,预测lncRNA的靶基因。利用Cuffdiff软件对mRNA、lncRNA转录本进行定量分析,得到转录本的FPKM值;采用edgeR进行两两比较,分析组合间表达差异;使用Benjamini-Hochberg方法调整P值,校正后P值(q值)<0.05的转录本被认为显著差异表达。

1.2.6 基因本体(GO)和京都基因与基因组百科全书(KEGG)富集分析

为解析断奶应激对仔猪肠道lncRNA表达及功能的影响,利用ClusterProfiler软件(3.8.1)对差异表达lncRNA及其靶基因进行GO(http://geneontology.org)功能注释、KEGG(http://www.kegg.jsp)信号通路富集分析,校正后P值<0.05为显著富集。

1.2.7 实时荧光定量PCR(qRT-PCR)验证测序数据

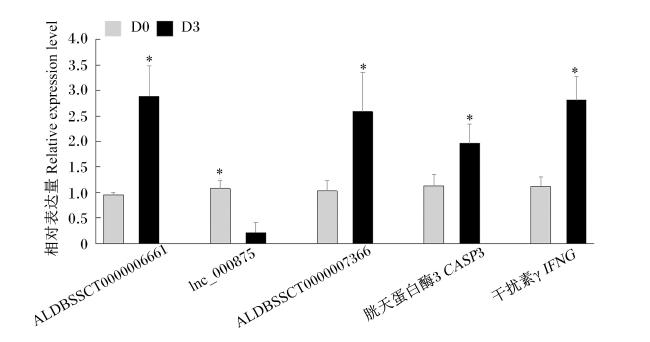
本研究重点关注断奶第3天,从D3组vs D0组中,随机选择3条差异表达lncRNA(ALDBSSCT0000006661、lnc_000875和ALDBSSCT0000007366)及2条差异表达mRNA[干扰素γ(IFNG)和胱天蛋白酶3(CASP3)],进行qRT-PCR检测,验证高通量测序结果,以18S rRNA作为内参基因,引物序列见表2。采用ReverTra Ace反转录试剂盒(日本TOYOBO公司)进行反转录,采用KODSYBR® qPCR Mix试剂盒(日本TOYOBO公司)进行PCR扩增,并采用2-ΔΔCt法计算转录本相对表达量。
表2 实时荧光定量PCR引物序列

Table 2 qRT-PCR primer sequences

引物名称
Primer names
上游引物
Forward primers (5'—3')
下游引物
Reverse primers (5'—3')
lnc_000875 GGGTCCAACCATGTCACTTCTACT GCTGCAGAAGCATGAGGCAC
ALDBSSCT0000007366 CCTAGGCTGCTCTCTTGTGGAA TACACACTCAGGACAAAGCCTTAAA
ALDBSSCT0000006661 GAGTCCTGAGATGTGAGCGTCC CCTGCTGCGATAATAGCAGTTGT
干扰素γ IFNG CCCATTGCTGCCTATTTGAGAC TATCACCTGACACATTCAAGTGCTG
胱天蛋白酶3 CASP3 CCAGTTGAGGCAGACTTCTTGT CAGCCTTTGGAATGGACTGTT
18S rRNA CCCACGGAATCGAGAAAGAG TTGACGGAAGGGCACCA

1.3 数据处理和统计分析

采用SPSS 21.0软件对qRT-PCR检测结果进行t检验,采用单因素方差分析(one-way ANOVA)和Duncan氏法多重比较分析血清生化指标及肠道形态,结果数据以“平均值±标准差”表示,P<0.05为差异显著。

2 结果与分析

2.1 断奶应激对仔猪血清生化指标的影响

表3可知,与D0组相比,D3组仔猪血清D-LA含量和DAO活性均显著升高(P<0.05),D7组血清D-LA含量显著升高(P<0.05);与D3组相比,D7组血清DAO活性显著降低(P<0.05),而与D0组相比无显著差异(P>0.05)。与D0组相比,D3组仔猪血清CAT、GSH-Px和SOD活性显著降低(P<0.05),D7组血清SOD活性显著降低(P<0.05);与D3组相比,D7组血清CAT和GSH-Px活性显著升高(P<0.05);各组间血清MDA含量无显著差异(P>0.05)。上述结果表明,断奶造成仔猪氧化应激,导致肠道屏障功能损伤、通透性增加,且断奶第3天最为严重,而断奶第7天在一定程度上有所改善。
表3 断奶应激对仔猪血清生化指标的影响

Table 3 Effects of weaning stress on serum biochemical indices in piglets

项目
Items
组别Groups
D0 D3 D7
D-乳酸D-LA/(mmol/L) 1.96±0.31b 2.73±0.47a 2.49±0.36a
二胺氧化酶DAO/(U/L) 13.60±1.41b 15.88±2.48a 12.77±0.95b
过氧化氢酶CAT/(U/mL) 36.07±3.73a 26.26±4.49b 31.78±3.74a
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 870.02±71.68a 690.83±53.13b 817.86±47.12a
超氧化物歧化酶SOD/(U/mL) 80.01±4.15a 74.71±3.92b 69.99±5.94b
丙二醛MDA/(nmol/mL) 3.20±0.40 3.80±0.51 3.65±0.60

同行数据肩标不同字母表示差异显著(P<0.05)。表4同。

Values in the same row with different letter superscripts mean significant difference (P<0.05). The same as Table 4.

2.2 断奶应激对仔猪肠道形态的影响

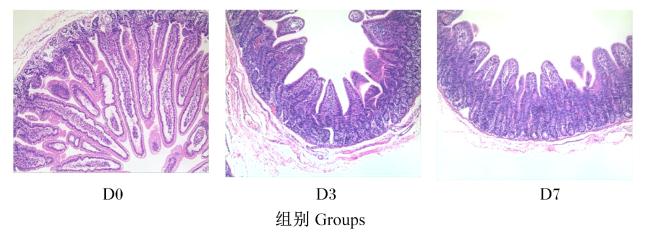
HE染色结果(图1)显示,D0组仔猪空肠结构清晰,绒毛排列整齐,上皮细胞完整;D3组空肠绒毛断裂、变短、排列稀疏;D7组空肠绒毛整齐度和形态与D3组相比有所好转,但尚未达到D0组水平。由表4可知,与D0组相比,D3和D7组仔猪空肠VH和V/C值均显著降低(P<0.05),空肠CD显著升高(P<0.05);与D3组相比,D7组空肠VH和V/C值显著升高(P<0.05),空肠CD显著降低(P<0.05)。上述结果表明,仔猪断奶第3天肠道形态发生显著改变,到断奶第7天肠道形态开始恢复。
图1 断奶仔猪空肠组织形态

D0:断奶第0天;D3:断奶第3天;D7:断奶第7天。图4图11同。

Fig.1 Morphology of jejunum tissues in weaned piglets (50×)

D0: day 0 after weaning; D3: day 3 after weaning; D7: day 7 after weaning. The same as Fig.4 to Fig.11.

表4 断奶应激对仔猪肠道形态的影响

Table 4 Effects of weaning stress on intestinal morphology in piglets

项目
Items
组别Groups
D0 D3 D7
绒毛高度VH/μm 594.56±53.20a 276.84±41.68c 398.45±35.13b
隐窝深度CD/μm 186.84±18.52c 373.03±23.94a 285.05±42.35b
绒毛高度/隐窝深度V/C 3.20±0.52a 0.74±0.12c 1.37±0.28b

2.3 断奶仔猪肠道转录组测序数据质量分析

整个试验期间有2头仔猪腹泻,而用于高通量测序样品不包括这2头,以保证样品相对一致性。由表5可知,利用断奶后不同天数仔猪空肠构建9个cDNA文库,分别为D0_1、D0_2、D0_3、D3_1、D3_2、D3_3、D7_1、D7_2和D7_3,测序获得原始序列为8.80×10⁷~11.34×10⁷,经质控后有效序列为8.47×10⁷~11.09×10⁷。样本Q20约为97%,Q30约为92%;将有效序列与猪参考基因组进行比对,总比对率均在73.44%以上,表明测序数据质量良好,可进一步分析。
表5 断奶仔猪肠道转录组测序数据质量分析

Table 5 Quality analysis of intestinal transcriptome sequencing data in weaned piglets

组别
Groups
样本
Samples
原始序列
Raw reads
有效序列
Clean reads
有效碱基
Clean
bases/Gb
Q20/% Q30/% GC含量
GC
content/%
总比对率
Total mapped
rate/%
D0 D0_1 113 399 986 110 857 738 16.63 97.50 93.61 47.48 81.68
D0_2 87 983 682 84 652 342 12.70 97.56 93.82 47.70 81.89
D0_3 93 840 292 90 361 826 13.55 97.38 93.43 47.23 80.41
D3 D3_1 111 130 366 108 230 492 16.23 95.93 90.16 46.97 76.25
D3_2 96 942 602 94 105 730 14.12 94.09 86.50 46.46 74.48
D3_3 102 069 118 98 793 746 14.82 96.45 91.20 45.62 78.38
D7 D7_1 102 619 324 98 681 058 14.80 97.79 94.30 50.50 73.44
D7_2 100 685 212 98 406 606 14.76 97.49 93.51 49.74 80.31
D7_3 97 469 142 94 287 790 14.14 97.11 92.74 49.38 80.33

2.4 仔猪肠道lncRNA鉴定

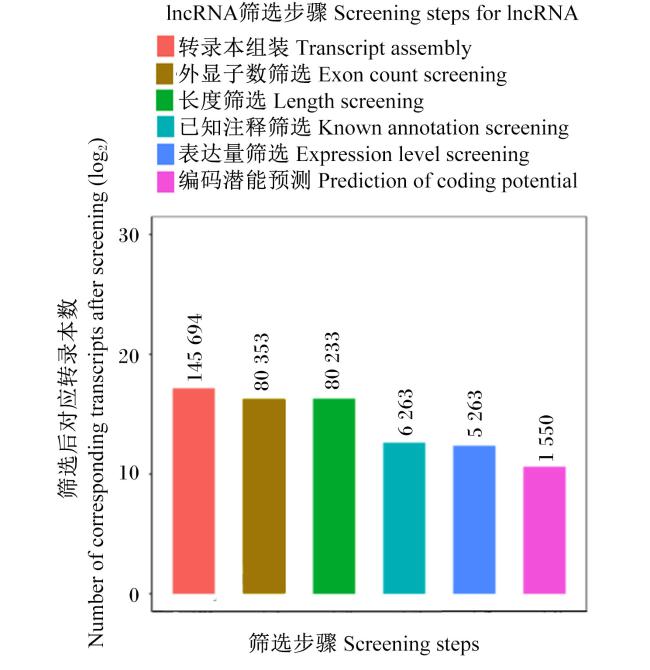
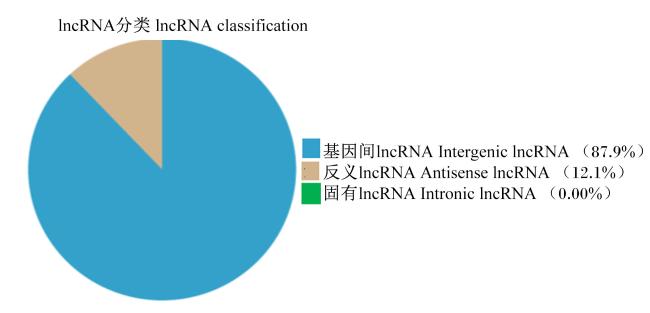
对转录本组装后,将9个文库转录本合并,剔除链方向不确定的转录本,获得145 694个转录本;然后去除长度≤200 bp、内含子数<2、FPKM<0.5的假阳性转录本,将其余转录本与猪基因组进行对比,获得1 772个已注释lncRNA。对拼接余下5 263个转录本,根据是否具有编码潜能作为判断转录本为lncRNA的关键条件,采用CPC、CNCI、PFAM和PhyloCSF工具对转录本的编码潜能进行深度解析,预测得到1 550个肠道lncRNA(图2)。对获得lncRNA进一步分析,发现基因间lncRNA占87.9%,反义lncRNA占12.1%(图3)。同时,鉴定出25 491个肠道mRNA。
图2 lncRNA筛选统计图

Fig.2 Statistical plots of lncRNA screening

图3 仔猪肠道lncRNA分类

Fig.3 Classification of intestinal lncRNA in piglets

2.5 断奶仔猪肠道差异表达lncRNA鉴定

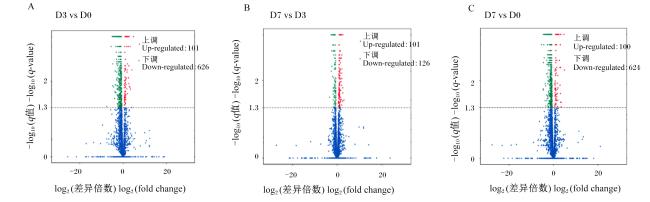
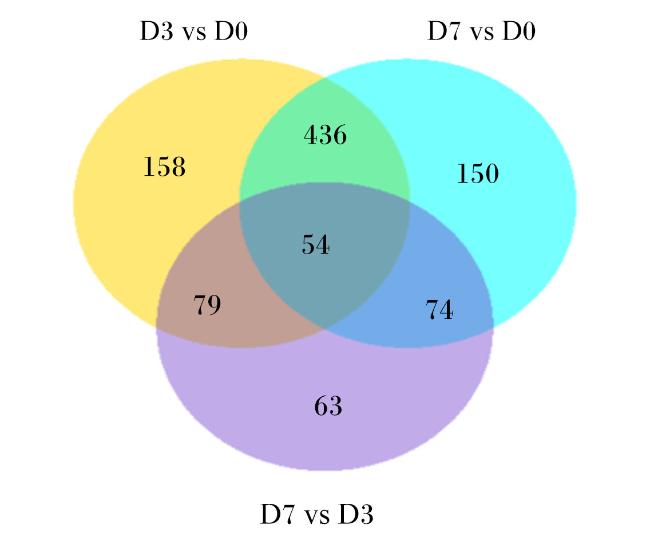
根据|log2(差异倍数)|≥1且校正后P值<0.05为标准筛选差异表达的lncRNA,D3组与D0组相比,共有727个差异表达lncRNA,其中有101个上调,626个下调(图4-A);D7组与D0组相比,共有724个差异表达lncRNA,其中有100个上调,624个下调(图4-C);另外,D7组与D3组相比,共有227个差异表达lncRNA,其中有101个上调,126个下调(图4-B)。从构建的韦恩图(图5)进一步分析可知,3组两两比较共有54个相同的差异表达lncRNA。上述结果表明,早期断奶导致仔猪肠道lncRNA异常表达,且随着断奶时间的延长,多数差异表达lncRNA是不同的。
图4 断奶仔猪肠道差异表达lncRNA

Fig.4 Differentially expressed lncRNA in intestine in weaned piglets

图5 断奶仔猪肠道差异表达lncRNA韦恩图

Fig.5 Venn diagram of differentially expressed lncRNA in intestine in weaned piglets

2.6 断奶仔猪肠道差异表达mRNA鉴定

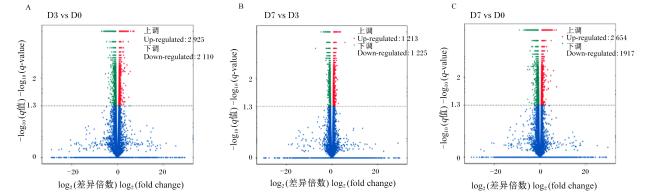
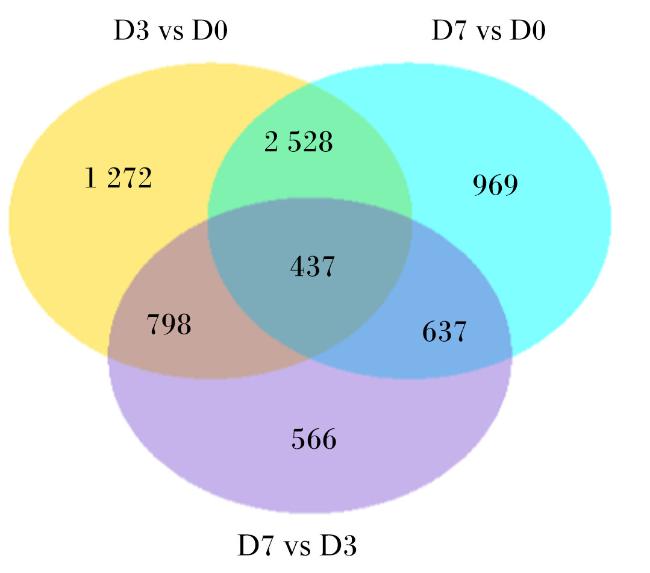
对断奶仔猪肠道差异表达mRNA进行分析发现,D3组与D0组相比,共有5 035个差异表达mRNA,其中有2 925个上调,2 110个下调(图6-A);D7组与D0组相比,共有4 571个差异表达mRNA,其中有2 654个上调,1 917个下调(图6-C);另外,D7组与D3组相比,共有2 438个差异表达mRNA,其中有1 213个上调,1 225个下调(图6-B)。从构建的韦恩图(图7)进一步分析可知,3组两两比较共有437个相同的差异表达mRNA。上述结果表明,早期断奶导致仔猪肠道mRNA异常表达,且随着断奶时间的延长,多数差异表达mRNA是不同的。
图6 断奶仔猪肠道差异表达mRNA

Fig.6 Differentially expressed mRNA in intestine in weaned piglets

图7 断奶仔猪肠道差异表达mRNA韦恩图

Fig.7 Venn diagram of differentially expressed mRNA in intestine in weaned piglets

2.7 差异表达lncRNA的靶基因预测

对lncRNA顺式调控的潜在靶基因进行预测,寻找lncRNA上、下游100 kb区域内的蛋白质编码基因,结果发现,D3组vs D0组592个差异表达lncRNA对应1 828个靶基因;D7组vs D0组598个差异表达lncRNA对应1 913个靶基因,而对D7组vs D3组222个差异表达lncRNA对应702个靶基因。仔猪断奶后3~5 d肠道损伤最为严重,所以表6列出D3组vs D0组差异表达排列前10的lncRNA及预测靶基因,可以看出每条lncRNA能够调节多条靶基因,这10条差异表达lncRNA的靶基因包括细胞因子[白细胞介素34(IL34)、白细胞介素17D(IL17D)]、趋化因子[C-C基序趋化因子配体(CCL)5、CCL8、CCL16]、胰岛素样生长因子1(IGF1)和酪酪肽(PYY)等,推测lncRNA可能通过调节这些靶基因参与仔猪断奶后肠道炎症、肠道损伤或启动重建的过程。
表6 差异表达排列前10的lncRNA及预测靶基因(D3组vs D0组)

Table 6 Top 10 differentially expressed lncRNA and predicted target genes (D3 group vs D0 group)

项目
Items
靶基因数
Number of target genes
预测靶基因
Predicted target genes
XLOC_061457 42 C8ORF46、TLR9、CCL16、GH1、IL17RELZP3、MYL1、MYH1、DHFE1、
RRS1、SLC22A12、CD300LGLIX1、MEF2BGFRA4、MAPK4、
BCL7ALTAIGFBPL1、ZNF70等
ALDBSSCT0000011086 14 IL34、OGAT2、MAP6、UVRAGTRPM4、HOMER2、FBXL16、TMEM88B
LC24A4、SPIRE2、ACVRL1、MOV10L1、SEC16BAGPAT3
ALDBSSCT0000003338 2 GDF5、GPR21
lnc_001119 7 IL17DIGF1、M7、ZBBXLECT2、CST8、GGT1
lnc_000434 2 PYYABHD5
lnc_001502 2 ATF3、CCL8
ALDBSSCT0000003919 10 ARVCFCOMTTXNRD2、GNB1LRANBP1、TRMT2ADGCR8、
TANGO2、CCDC188、ZDHHC8
ALDBSSCT0000005442 12 CCL5、CXCR3、IMAP2、KCNH2、GIMAP6、ATG9BGIMAP4、NOS3、
AOC1、TMEM176ATMEM176BPRF1
lnc_000085 9 GJB7、ATF3、ARAFC10ORF12、CD84、ZC3H12C
CHD1、CFLARR3HDM1
ALDBSSCT0000011407 13 MRPL17、NR4A3、ALG13、MAOARBBP7、CD2、CD84、
ATF3、CHD1、AMBNSLAMF7、FYBCD68

仅注释部分基因名称。TLR9:Toll样受体9;CCL16:C-C基序趋化因子配体16;IL34:白细胞介素34;IL17D:白细胞介素17D;IGF1:胰岛素样生长因子1;PYY:酪酪肽。

Only some gene names were annotated. TLR9: Toll-like receptor 9; CCL16: C-C motif chemokine ligand 16; IL34: interleukin 34; IL17D: interleukin 17D; IGF1: insulin-like growth factor 1; PYY: peptide YY.

2.8 差异表达lncRNA靶基因功能富集分析

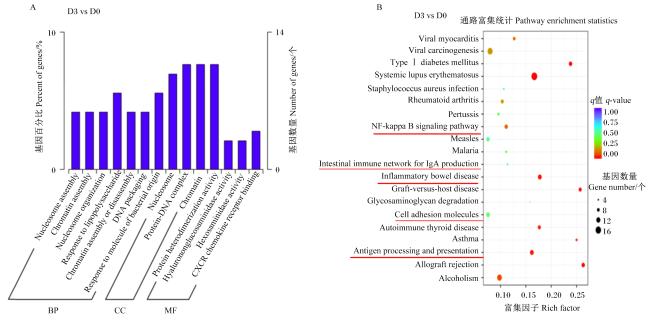
为了进一步明确lncRNA的生物学功能,对其靶基因进行GO和KEGG富集分析,结果发现,D3组vs D0组共有14个GO条目显著富集(校正后P值<0.05,图8-A),主要包括对脂多糖的反应、对细菌来源分子的反应、染色质装配或拆卸、CXCR趋化因子受体结合、核小体装配、染色质装配及DNA包装等;KEGG富集分析显示,有8个信号通路显著富集(校正后P值<0.05,图8-B),排在前列与肠道损伤相关的信号通路主要包括IBD、抗原加工与呈递、细胞黏附分子、产生免疫球蛋白A的肠道免疫网络以及NF-kappa B信号通路等。
图8 差异表达lncRNA靶基因GO和KEGG富集分析(D3组vs D0组)

A:差异表达lncRNA靶基因GO富集 GO enrichment of target genes of differentially expressed lncRNA;B:差异表达lncRNA靶基因KEGG富集 KEGG enrichment of target genes of differentially expressed lncRNA。

Nucleosome assembly:核小体装配;Chromatin assembly:染色质装配;Nucleosome organization:核小体组织;Response to lipopolysaccharide:对脂多糖的反应;Chromatin assembly or disassembly:染色质装配或拆卸;DNA packaging:DNA包装;Response to molecule of bacterial origin:对细菌来源分子的反应;Nucleosome:核小体;Protein-DNA complex:蛋白质-DNA复合体;Chromatin:染色质;Protein heterodimerization activity:蛋白质异源二聚体活性;Hyalurononglucosaminidase activity:透明质酸葡糖胺酶活性;Hexosaminidase activity:己糖胺酶活性;CXCR chemokine receptor binding:CXCR趋化因子受体结合;BP:生物过程 biological process;CC:细胞组分 cellular component;MF:分子功能 molecular function;Viral myocarditis:病毒性心肌炎;Viral carcinogenesis:病毒致癌作用;Type Ⅰ diabetes mellitus:Ⅰ型糖尿病;Systemic lupus erythematosus:系统性红斑狼疮;Staphylococcus aureus infection:金黄色葡萄球菌感染;Rheumatoid arthritis:类风湿性关节炎;Pertussis:百日咳;NF-kappa B signaling pathway:核因子-kappa B信号通路;Measles:麻疹;Malaria:疟疾;Intestinal immune network for IgA production:产生免疫球蛋白A的肠道免疫网络;Inflammatory bowel disease:炎症性肠病;Graft-versus-host disease:移植物抗宿主病;Glycosaminoglycan degradation:糖胺聚糖降解;Cell adhesion molecules:细胞黏附分子;Autoimmune thyroid disease:自身免疫性甲状腺病;Asthma:哮喘;Antigen processing and presentation:抗原加工与呈递;Allograft rejection:同种移植排斥;Alcoholism:酒精中毒。图9图10同 The same as Fig.9 and Fig.10

Fig.8 GO and KEGG enrichment analysis of target genes of differentially expressed lncRNA (D3 group vs D0 group)

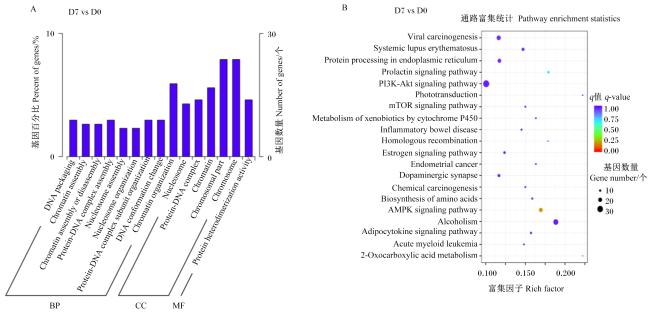
D7组vs D0组共有15个GO条目显著富集(校正后P值<0.05,图9-A),主要包括蛋白质-DNA复合体装配、核小体装配、DNA构象变化、染色质组织、DNA包装、染色质装配或拆卸及蛋白质异源二聚体活性等;KEGG富集分析显示,没有显著富集的信号通路(校正后P值>0.05),对排在前列信号通路(0.05<校正后P值<1.00,图9-B)分析显示,信号通路主要包括氨基酸生物合成、内质网蛋白质加工、哺乳动物雷帕霉素靶蛋白(mTOR)信号通路、脂肪细胞因子信号通路、IBD以及磷脂酰肌醇3-激酶-蛋白激酶B(PI3K-Akt)信号通路等。
图9 差异表达lncRNA靶基因GO和KEGG富集分析(D7组vs D0组)

A:差异表达lncRNA靶基因GO富集 GO enrichment of target genes of differentially expressed lncRNA;B:差异表达lncRNA靶基因KEGG富集 KEGG enrichment of target genes of differentially expressed lncRNA。

Protein-DNA complex assembly:蛋白质-DNA复合体装配;Protein-DNA complex subunit organization:蛋白质-DNA复合体亚基组织;DNA conformation change:DNA构象变化;Chromatin organization:染色质组织;Chromosomal part:染色体部分;Chromosome:染色体;Protein processing in endoplasmic reticulum:内质网蛋白质加工;Prolactin signaling pathway:催乳素信号通路;PI3K-Akt signaling pathway:磷脂酰肌醇3-激酶-蛋白激酶B信号通路;Phototransduction:光传导;mTOR signaling pathway:哺乳动物雷帕霉素靶蛋白信号通路;Metabolism of xenobiotics by cytochrome P450:细胞色素P450对外源性物质的代谢;Homologous recombination:同源重组;Estrogen signaling pathway:雌激素信号通路;Endometrial cancer:子宫内膜癌;Dopaminergic synapse:多巴胺能神经突触;Chemical carcinogenesis:化学致癌;Biosynthesis of amino acids:氨基酸生物合成;AMPK signaling pathway:单磷酸腺苷活化蛋白激酶信号通路;Adipocytokine signaling pathway:脂肪细胞因子信号通路;Acute myeloid leukemia:急性髓系白血病;2-Oxocarboxylic acid metabolism:2-氧代羧酸代谢。图10同 The same as Fig.10

Fig.9 GO and KEGG enrichment analysis of target genes of differentially expressed lncRNA (D7 group vs D0 group)

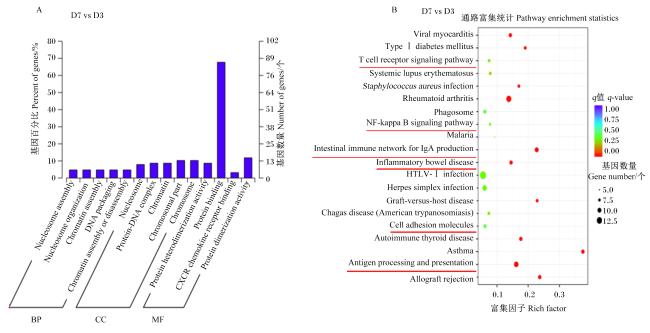
D7组vs D3组共有14个GO条目显著富集(校正后P值<0.05,图10-A),主要包括CXCR趋化因子受体结合、核小体装配、核小体组织、染色质装配或拆卸、蛋白质-DNA复合体及蛋白质异源二聚体活性等;KEGG富集分析显示,有10个信号通路显著富集(校正后P值<0.05,图10-B),排在前列与肠道损伤相关的信号通路主要包括IBD、抗原加工与呈递、产生免疫球蛋白A的肠道免疫网络、NF-kappa B信号通路、T细胞受体信号通路以及细胞黏附分子等。
图10 差异表达lncRNA靶基因GO和KEGG富集分析(D7组vs D3组)

A:差异表达lncRNA靶基因GO富集 GO enrichment of target genes of differentially expressed lncRNA;B:差异表达lncRNA靶基因KEGG富集 KEGG enrichment of target genes of differentially expressed lncRNA。

Protein binding:蛋白质结合;Protein dimerization activity:蛋白质二聚体活性;T cell receptor signaling pathway:T细胞受体信号通路;Phagosome:吞噬体;HTLV-Ⅰ infection:人类嗜T淋巴细胞病毒Ⅰ型感染;Herpes simplex infection:单纯疱疹感染;Chagas disease (American trypanosomiasis):恰加斯病(美洲锥虫病)。

Fig.10 GO and KEGG enrichment analysis of target genes of differentially expressed lncRNA (D7 group vs D3 group)

2.9 qRT-PCR验证

从D3组vs D0组中选择差异表达lncRNA(ALDBSSCT0000006661、lnc_000875和ALDBSSCT0000007366)和mRNA(IFNGCASP3)进行qRT-PCR验证(图11),结果发现D3组空肠ALDBSSCT0000006661、ALDBSSCT0000007366、IFNGCASP3相对表达量均显著高于D0组(P<0.05),而空肠lnc_000875相对表达量显著低于D0组(P<0.05),表明qRT-PCR结果与高通量测序结果趋势一致。
图11 qRT-PCR检测肠道差异表达lncRNA和mRNA

*表示差异显著(P<0.05)。* mean significant difference (P<0.05).

Fig.11 Detection of intestinal differentially expressed lncRNA and mRNA by qRT-PCR

2.10 断奶仔猪空肠特定功能差异表达lncRNA和靶基因筛选

为了进一步分析lncRNA在断奶仔猪肠道损伤及重建初期的特定功能,首先选择与D0组相比,D3组或D7组lncRNA及其靶基因均显著差异表达,且校正后P值<0.01;其次,选择lncRNA靶基因与肠道损伤、损伤修复、炎症或应激相关。通过深入分析,本试验重点挑选出6对lncRNA和靶基因,由表7可知,D3组vs D0组ALDBSSCT0000002026表达显著上调,而其靶基因密封蛋白10(CLDN10)表达显著下调;lnc_000479与靶基因DnaJ热休克蛋白家族成员C2(DNAJC2)、lnc_001464与靶基因C-X-C基序趋化因子配体8(CXCL8)以及lnc_001544与靶基因肝细胞生长因子(HGF)均显著上调;D7组vs D0组lnc_000974与靶基因Toll样受体(TLR)9均显著下调,而lnc_000479与靶基因一氧化氮合酶2(NOS2)均显著上调。根据以上结果,本试验希望通过调节lncRNA表达最终影响靶基因表达水平,从而到达促进仔猪肠道损伤修复进程的目的,但这些lncRNA-靶基因关系、具体调节机制还需要进一步研究。
表7 断奶仔猪空肠特定功能差异表达lncRNA和靶基因

Table 7 Differentially expressed lncRNA and target genes with specific functions in jejunum in weaned piglets

项目
Items
长链非编码RNA lncRNA 靶基因Target genes
名称
Names
log2(差异倍数)
log2(fold change)
q
q-value
名称
Names
log2(差异倍数)
log2(fold change)
q
q-value
D3组vs D0组
D3 group vs D0 group
ALDBSSCT0000002026 3.47 0.005 CLDN10 -2.22 0.001
lnc_000479 1.45 0.001 DNAJC2 1.21 0.001
lnc_001464 1.15 0.006 CXCL8 1.07 0.001
lnc_001544 1.23 0.001 HGF 1.72 0.001
D7组vs D0组
D7 group vs D0 group
lnc_000974 -1.50 0.002 TLR9 -1.20 0.001
lnc_000479 1.56 0.007 NOS2 3.66 0.001

CLDN10:密封蛋白10 claudin 10;DNAJC2:DnaJ热休克蛋白家族成员C2 DnaJ heat shock protein family member C2;CXCL8:C-X-C基序趋化因子配体8 C-X-C motif chemokine ligand 8;HGF:肝细胞生长因子 hepatocyte growth factor;TLR9:Toll样受体9 Toll-like receptor 9;NOS2:一氧化氮合酶2 nitric oxide synthase 2。

3 讨论

早期断奶是仔猪所面临的最大应激事件之一。早期断奶迫使母子分离,仔猪被转移到新的环境,并且摄入的营养由富含蛋白质、乳糖和脂肪的易消化母乳,突然转变为难以消化的固体饲粮;而此时仔猪的消化系统尚未发育成熟,消化酶分泌不足,极易造成肠道损伤、黏膜形态改变、通透性增加,产生炎症,并容易导致仔猪腹泻[12]。在本研究中,有2头仔猪发生断奶腹泻。早期断奶严重破坏了自由基产生与清除之间的平衡,改变了机体稳恒的生理状态,导致仔猪处于严重的氧化应激状态[13]。SOD、GSH-Px和CAT等抗氧化酶构成机体重要的抗氧化防疫系统,能够清除产生的自由基,限制氧化的速度和进程,成为反映机体抗氧化能力的主要指标;而MDA则是脂质过氧化的产物,其含量反映机体脂质过氧化的程度[13]。研究显示,21日龄仔猪断奶后血清SOD活性显著降低,血清MDA、一氧化氮(NO)和过氧化氢(H2O2)含量显著提高[14]。与断奶第0天相比,35日龄断奶五指山仔猪血清GSH-Px活性在断奶第3天显著降低,血清总抗氧化能力在断奶第7天显著升高;并且在断奶后7 d内血清MDA含量无显著变化,而在第10天显著升高[15]。本研究显示,21日龄断奶仔猪断奶第3天血清SOD、CAT和GSH-Px活性显著降低,同时在断奶第7天血清CAT和GSH-Px活性恢复,且在断奶后7 d内血清MDA含量没有显著改变。本研究断奶仔猪血清抗氧化酶活性变化与之前报道略有不同,这可能主要与仔猪断奶日龄、品种、营养水平及饲养管理等因素有关。本研究结果说明,断奶导致仔猪抗氧化功能降低,抗氧化酶活性减弱,仔猪产生严重应激反应,并以断奶第3天最为严重,而在断奶第7天应激有所缓解。
肠道是营养物质消化与吸收的主要场所,也是抵御细菌、病毒和毒素入侵机体的重要屏障,维持肠道屏障功能完整性是保证仔猪健康的首要前提。血液D-LA含量和DAO活性是反映肠道屏障完整性及损伤程度的首要指标,其中D-LA是肠道细菌代谢的终产物,当肠道透性增加或黏膜屏障损伤,D-LA会透过肠黏膜释放至血液中,导致血液D-LA含量升高;DAO是肠道绒毛中具有高度活性的细胞内酶,当肠黏膜细胞损伤时,DAO释放进入血液循环,血液DAO活性显著升高[16]。断奶应激导致仔猪肠道黏膜屏障受损,通透性增加,从而增加毒素、病原菌及其代谢物进入机体的机率,加剧肠道炎症[17]。研究显示,21日龄断奶仔猪血清D-LA含量和DAO活性在断奶第1、4和7天依次显著升高,并且这2个指标显著高于对应时间点的哺乳仔猪,到断奶第14天仔猪肠道形态基本恢复[18]。与报道相似,本研究中,与断奶第0天相比,仔猪断奶第3天血清D-LA含量和DAO活性以及第7天血清D-LA含量显著升高,而断奶第7天血清DAO活性无显著差异。这表明断奶应激导致仔猪肠道损伤、通透性增加,肠道损伤以断奶第3天最为明显,且在断奶第7天在一定程度上有所缓解,说明断奶仔猪肠道重建已经启动。
肠道形态是反映仔猪肠道健康和消化吸收能力的重要指标。本研究中,HE染色结果显示,断奶第0天,仔猪空肠结构清楚,绒毛排列整齐,上皮细胞完整;断奶第3天,仔猪肠道损伤,绒毛断裂、变短、排列稀疏;到断奶第7天,肠道绒毛排列整齐度和形态相比断奶第3天有所好转,但尚未达到第0天形态。绒毛是吸收营养物质的重要结构,VH是细胞增殖的结果,肠道绒毛越高则表明吸收能力越强;CD反映细胞的生成率,隐窝越浅则表明细胞成熟度越好,分泌能力越强;V/C值反映肠道的功能状态,其值增大表明肠道形态改善,消化吸收功能增强[19]。本研究对断奶仔猪肠道形态进一步分析显示,断奶第3和7天仔猪空肠VH和V/C值均显著低于断奶第0天,空肠CD显著高于断奶第0天;而断奶第7天仔猪空肠VH和V/C值均显著高于断奶第3天,空肠CD显著低于断奶第3天。研究显示,14日龄断奶仔猪在断奶第3天空肠VH显著降低,而空肠CD在断奶第7、14和21天显著提高[20]。栾兆双等[18]报道,21日龄断奶仔猪在断奶后24 h肠绒毛萎缩、隐窝增深,肠道形态发生较大改变,在断奶第7天逐渐恢复,到断奶第14天肠道形态基本恢复。本研究结果与上述报道相似,断奶应激导致肠道形态显著改变和肠道损伤,绒毛断裂、变短显著降低了小肠消化吸收面积,导致仔猪消化功能减弱,而大量未消化物质堆积易引起异常发酵,容易造成仔猪腹泻;同时,肠道形态改变以断奶第3天最为明显,第7天有所恢复,这与血清D-LA含量和DAO活性的结果相一致。
lncRNA被认为是维持机体平衡的广谱调控分子,其异常表达与多种疾病发生、发展及痊愈密切相关,被认为是诊断和治疗的新型靶点。为了研究lncRNA在断奶仔猪肠道损伤及重建初期的调控功能,本研究采用高通量测序技术,分析了仔猪断奶前后肠道lncRNA和mRNA表达谱,发现仔猪肠道表达的lncRNA共有3 322个,其中有1 772个已注释,新预测得到1 550个lncRNA;同时,鉴定肠道mRNA为25 491个。从测序结果中挑选3条lncRNA和2条mRNA,经qRT-PCR检测其相对表达量与高通量测序结果趋势一致,说明高通量测序结果正确。进一步对比分析仔猪断奶前后肠道差异表达lncRNA和mRNA谱发现,与断奶第0天相比,仔猪断奶第3和7天,肠道分别有727和724个差异表达lncRNA,以及5 035和4 571个差异表达mRNA,说明断奶应激导致仔猪肠道lncRNA和mRNA异常表达,异常表达的基因很可能在仔猪肠道损伤及重建初期中发挥重要作用。研究显示,断奶同样会导致牛瘤胃及肠道lncRNA表达异常,在奶牛瘤胃中有395个lncRNA仅在断奶前表达,有225个lncRNA仅在断奶后表达[21]。荷斯坦犊牛在断奶前后回肠和瘤胃组织分别有14和525个差异表达lncRNA[22]。对断奶仔猪腹腔注射脂多糖建立肠道损伤炎症模型发现,脂多糖处理后回肠黏膜有112个lncRNA差异表达,其中有58个显著上调,54个显著下调[23]。这些研究说明,lncRNA具有广谱调控作用,肠道疾病或应激均能导致肠道组织lncRNA异常表达,并且异常表达的lncRNA与组织病理状态密切相关。另外,本研究中,与断奶第3天相比,断奶第7天仔猪肠道差异表达的lncRNA有227个,差异表达mRNA有2 438个,差异表达的转录本数量少于仔猪断奶第3天与第0天比较的数量。lncRNA具有组织特异性和时空特异性,断奶后不同点仔猪肠道差异表达lncRNA的数量很可能反映肠道的损伤程度,提示从断奶第0~3天肠道损伤最为严重;而从断奶第3~7天,肠道损伤得到一定程度缓解,并且这个时期很可能是机体启动肠道损伤的修复关键时期,这与断奶仔猪肠道应激程度、肠道形态和通透性指标变化相一致。
本研究重点分析了断奶第3天差异表达lncRNA及其靶基因,对排在前10的差异表达lncRNA进行靶基因预测,发现每个lncRNA能够调节2~42个靶基因,其靶基因主要涉及肠道炎症、肠道发育、细胞增殖以及动物食欲与消化协调等方面。这些靶基因主要包括lnc_000085的靶基因CD84,CD84能够激活多种免疫细胞及其分化,参与先天性和获得性免疫反应,对维持机体免疫平衡至关重要[24]。ALDBSSCT0000011086的靶基因为IL34,IL34能够促进单核细胞与巨噬细胞分化、增殖和存活,促进机体炎症反应[25]。研究显示,IL34在患有IBD小鼠或人类的结肠中显著高表达,其水平与肠道疾病的严重程度呈正相关[26]。lnc_001119的靶基因为IGF1,IGF1能够促进肠上皮细胞增殖与分化,加速肠道创伤愈合,在消化道成熟及抵抗应激方面发挥重要作用,外源补充IGF1能够促进断奶仔猪肠道损伤修复[27]。lnc_000434的靶基因为PYY,作为调节摄食的饱感信号,PYY主要参与调节胃肠道功能、抑制肠道黏膜分泌、促进肠上皮增生、降低食欲及增加能量消耗等功能[28]。研究显示,PYY可抑制巨噬细胞分泌肿瘤坏死因子-α(TNF-α)和白细胞介素6(IL6),通过改善Th1/Th2分化失衡来调节免疫反应,抑制患有IBD小鼠炎症发展[29]。早期断奶导致仔猪肠道损伤、通透性增加、肠道炎症及发育受阻等,很可能与lncRNA及其靶基因异常表达密切相关。
为了进一步明确lncRNA的生物学功能,对lncRNA调控的靶基因进行功能富集分析,结果发现仔猪断奶第3天与第0天相比,肠道差异表达lncRNA靶基因富集的信号通路主要包括IBD、抗原加工与呈递、细胞黏附分子、产生免疫球蛋白A的肠道免疫网络以及NF-kappa B信号通路等;断奶第7天与第3天相比,肠道差异表达lncRNA靶基因主要富集的信号通路基本与断奶第3天与第0天相比一致,另外还包括T细胞受体信号通路。IBD是一种反复发作的慢性炎症性肠道疾病,发病机制与肠道屏障功能受损、免疫系统异常、环境因素及遗传等因素相关,促炎细胞因子[白细胞介素1(IL1)、IL6、TNF-α和IFNG等]和抗炎细胞因子[白细胞介素4、白细胞介素10]在IBD中发挥重要作用[30]。断奶应激造成仔猪肠道形态改变、通透性增加,损伤肠道极易导致病原菌(特别是肠毒素性大肠杆菌)入侵机体,诱发肠道炎症,上述肠道病理变化与细胞黏附分子、抗原加工与呈递、产生免疫球蛋白A的肠道免疫网络等通路密切相关。研究显示,在三硝基苯磺酸诱导的小鼠回肠炎模型中,差异表达基因显著富集在IBD、抗原加工与呈递、细胞黏附分子信号通路[31],与本研究仔猪肠道差异表达lncRNA靶基因富集信号通路相似。NF-kappa B是调控炎症反应与氧化应激的关键分子。断奶可激活NF-kappa B信号通路,促进炎症因子和趋化因子的表达,加剧炎症反应,抑制NF-kappa B活性或其信号通路是缓解肠道炎症的重要途径[32]。以上研究结果说明,断奶仔猪肠道差异表达lncRNA通过多种信号通路在肠道损伤及重建初期发挥重要调节作用。另外,本研究显示,断奶第7天与第0天相比,未有显著富集的KEGG信号通路,这也说明到断奶第7天,仔猪肠道损伤得到改善,在一定程度上接近断奶第0天。
对断奶仔猪肠道lncRNA进行功能分析,最终是希望能够筛选出调控肠道损伤或修复的关键lncRNA及靶基因。首先要求lncRNA及其靶基因均显著差异表达,其次靶基因参与断奶应激、肠道损伤或修复以及炎症反应等过程,以此为条件挑选出6对lncRNA和靶基因,包括ALDBSSCT0000002026/CLDN10、lnc_000479/DNAJC2、lnc_001464/CXCL8、lnc_001544/HGF、lnc_000974/TLR9和lnc_000479/NOS2。密封蛋白(Claudin)家族是构成细胞间紧密连接的组成部分,在维持肠道上皮完整性及屏障功能等发挥重要作用,紧密连接蛋白CLDN10为Claudin家族成员之一,仔猪肠道屏障功能损伤伴随CLDN10基因表达下调[33],提高Claudin蛋白表达水平可增强肠道屏障功能[34]。本研究高通量测序显示,断奶仔猪肠道ALDBSSCT0000002026表达显著上调,而靶基因CLDN10表达显著下调,说明断奶导致仔猪肠道通透性增加和屏障功能损伤,这与血清D-LA含量、DAO活性以及肠道形态的结果一致,因此通过下调ALDBSSCT0000002026表达、提高CLDN10表达很可能是改善肠道通透性的一种方法。热休克蛋白(HSP)是一类遭受逆境刺激后而大量产生的一类蛋白质,DNAJC2属于HSP40成员之一,作为HSP70分子伴侣协助应对各种生物和非生物胁迫,帮助蛋白质正确折叠,加快变性蛋白质的降解,从而提高细胞存活率,缓解应激对生物体的损伤[35]。研究显示,DnaJ热休克蛋白家族基因的过表达可保护蜜蜂免受热应激伤害,提高蜜蜂的存活率[36]。本研究中,断奶应激导致仔猪肠道lnc_000479及其靶基因DNAJC2表达上调,表明lnc_000479/DNAJC2很可能在保护仔猪肠道细胞和屏障功能免受断奶应激损伤中发挥重要作用。HGF是一个多功能生长因子,能够促进多种类型的细胞增殖、迁移、形态的发生以及抗凋亡等,通过调节上皮细胞增殖、迁移及抑制炎症等促进肝脏及肠道的再生,外源给予重组HGF能够促进结肠炎小鼠肠道黏膜损伤修复[37]。本研究中,断奶仔猪肠道lnc_001544及靶基因HGF均显著上调,说明应对断奶应激仔猪启动肠道的重建机制,很可能可以通过lnc_001544调节靶基因HGF的表达,从而促进肠道的损伤修复及再生。当机体遭受内源性炎症细胞因子(如TNF-α、IFNG和IL1)或外界因素(如细菌、病毒)刺激后,一氧化氮合酶被迅速诱导表达,催化NO大量合成,竞争性与谷胱甘肽结合从而加重氧化应激。研究显示,断奶应激导致仔猪肠道内H2O2、NO等氧化产物显著增加,抗氧化酶活性下降,氧化应激破坏肠道屏障功能[14]。本研究测序结果显示,断奶仔猪肠道lnc_000479及靶基因NOS2显著上调,说明断奶应激导致NO产生增多,因此通过下调lnc_000479表达抑制NOS2活性,可能是降低NO生成的一个途径。CXCL8是趋化因子家族成员之一,其能够结合C-X-C基序趋化因子受体1和2等受体,引导中性粒细胞或其他白细胞迁移至炎症部位,参与炎症过程,在炎症和免疫反应中发挥重要作用[38]。研究显示,Vero细胞感染PEDV后CXCL8表达上调,CXCL8通过调节细胞外信号调节激酶、蛋白激酶B信号通路,提高Vero细胞自噬,促进PEDV的感染;而敲除CXCL8可抑制PEDV感染与复制,CXCL8作为促病毒感染因子而发挥作用[39]。本研究中,断奶仔猪lnc_001464及靶基因CXCL8均显著上调,这可能与仔猪断奶后易感染致病菌相关。TLR是动物重要的模式识别受体,TLR9是其家族成员之一,细菌和病毒等入侵机体后,致病菌或其特定成分能够被TLR识别,激活下游信号通路,上调促炎细胞因子或干扰素的表达。研究显示,猪同时感染繁殖与呼吸综合征和猪圆环病毒病时,TLR2、4和8表达上调,而TLR3、7和9表达量下调,并且下调干扰素α及其mRNA表达,TLR3、7和9表达下调可能会影响干扰素α的产生,从而使猪圆环病毒在同时感染猪群中持续复制更长的时间[40]。本研究中,断奶仔猪lnc_000974及靶基因TLR9均显著下调,可能与仔猪断奶后抵抗力减弱、持续感染致病菌相关。以上lncRNA及靶基因很可能在断奶应激、肠道损伤及重建,以及肠道炎症等过程中发挥关键的调控作用,通过调节lncRNA影响其靶基因表达很可能是缓解断奶应激的一个新途径,而lncRNA调节靶基因的作用机制还需要进一步深入研究。

4 结论

早期断奶导致仔猪抗氧化功能降低、肠道通透性增加、VH降低、CD升高,以断奶第3天肠道损伤最为严重,断奶第7天在一定程度上有所恢复;同时,断奶应激导致断奶后不同时间点肠道lncRNA和mRNA异常表达,差异表达lncRNA靶基因显著富集在IBD、抗原加工与呈递、细胞黏附分子及NF-kappa B信号通路等;从测序结果中筛选出6对差异表达lncRNA和靶基因,很可能参与断奶应激、肠道炎症、肠道损伤或修复等过程并发挥调控作用。本研究为进一步揭示lncRNA在断奶仔猪肠道的调控功能及相关机制提供了参考依据。
[1]
LAURIDSEN C. Effects of dietary fatty acids on gut health and function of pigs pre- and post-weaning[J]. Journal of Animal Science, 2020, 98(4):skaa086.

[2]
CHEN Z, YAN Z H, XIA S T, et al. Dietary Isatidis root residue improves diarrhea and intestinal function in weaned piglets[J]. Animals, 2024, 14(19):2776.

DOI

[3]
YUAN C, ZHANG P H, JIN Y X, et al. Single-blinded study highlighting the differences between the small intestines of neonatal and weaned piglets[J]. Animals, 2021, 11(2):271.

DOI

[4]
穆钊坤, 周加义, 昝庚秀, 等. 早期断奶应激影响仔猪肠道发育及其调控的研究进展[J]. 饲料工业, 2025, 46(1):57-63.

MU Z K, ZHOU J Y, ZAN G X, et al. Advancements in early weaning stress affecting intestinal development of piglets and its regulation[J]. Feed Industry, 2025, 46(1):57-63. (in Chinese)

[5]
HUTING A M S, MIDDELKOOP A, GUAN X N, et al. Using nutritional strategies to shape the gastro-intestinal tracts of suckling and weaned piglets[J]. Animals, 2021, 11(2):402.

DOI

[6]
PATEL D, THANKACHAN S, SREERAM S, et al. LncRNA-miRNA-mRNA regulatory axes as potential biomarkers in cervical cancer:a comprehensive overview[J]. Molecular Biology Reports, 2025, 52(1):110.

DOI

[7]
SENMATSU S, HIROTA K. Roles of lncRNA transcription as a novel regulator of chromosomal function[J]. Genes & Genetic Systems, 2020, 95(5):213-223.

[8]
ZHU P P, WU J Y, WANG Y Y, et al. LncGata6 maintains stemness of intestinal stem cells and promotes intestinal tumorigenesis[J]. Nature Cell Biology, 2018, 20(10):1134-1144.

DOI PMID

[9]
YANG H, GONG C L, WU Y Y, et al. LncRNA SNHG1 facilitates colorectal cancer cells metastasis by recruiting HNRNPD protein to stabilize SERPINA3 mRNA[J]. Cancer Letters, 2024, 604:217217.

[10]
PAN S Y, LIU R, WU X, et al. LncRNA NEAT1 mediates intestinal inflammation by regulating TNFRSF1B[J]. Annals of Translational Medicine, 2021, 9(9):773.

DOI PMID

[11]
钦伟云. lncRNA446介导Alix泛素化调控肠道紧密连接蛋白参与PEDV感染的分子机制研究[D]. 博士学位论文. 扬州: 扬州大学, 2021.

QIN W Y. Molecular mechanism of lncRNA446-mediated Alix ubiquitination regulating intestinal tight junction proteins involved in PEDV infection[D]. Ph.D.Thesis. Yangzhou: Yangzhou University, 2021. (in Chinese)

[12]
DENG Q Q, SHAO Y R, WANG Q Y, et al. Effects and interaction of dietary electrolyte balance and citric acid on growth performance,intestinal histomorphology,digestive enzyme activity and nutrient transporters expression of weaned piglets[J]. Journal of Animal Physiology and Animal Nutrition, 2021, 105(2):272-285.

DOI

[13]
PAPATSIROS V G, MARAGKAKIS G, PAPAKONSTANTINOU G I. Stress biomarkers in pigs:current insights and clinical application[J]. Veterinary Sciences, 2024, 11(12):640.

DOI

[14]
ZHU L H, ZHAO K L, CHEN X L, et al. Impact of weaning and an antioxidant blend on intestinal barrier function and antioxidant status in pigs[J]. Journal of Animal Science, 2012, 90(8):2581-2589.

DOI PMID

[15]
余淼, 李妍娇, 赵彦玲, 等. 断奶应激对五指山猪仔猪肠道形态、抗氧化能力及Nrf2信号通路的影响[J]. 中国畜牧兽医, 2025, 52(5):2045-2055.

DOI

YU M, LI Y J, ZHAO Y L, et al. Effects of weaning stress on intestinal morphology,antioxidant capacity and Nrf2 signaling pathway of Wuzhishan piglets[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(5):2045-2055. (in Chinese)

[16]
LIU M, WANG Y H, XU X T, et al. P-hydroxy benzaldehyde attenuates intestinal epithelial barrier dysfunction caused by colitis via activating the HNF-1β/SLC26A3 pathway[J]. Frontiers in Pharmacology, 2024, 15:1448863.

[17]
WANG Y, ZHANG Z T, DU M, et al. Berberine alleviates ETEC-induced intestinal inflammation and oxidative stress damage by optimizing intestinal microbial composition in a weaned piglet model[J]. Frontiers in Immunology, 2024, 15:1460127.

[18]
栾兆双, 姚丽丽, 傅振宁, 等. 断奶应激对仔猪肠形态、肠黏膜屏障和p38丝裂原活化蛋白激酶信号通路的影响[J]. 动物营养学报, 2012, 24(11):2237-2242.

DOI

LUAN Z S, YAO L L, FU Z N, et al. Effects of weaning stress on intestinal morphology,mucosal barrier and p38 MAPK signaling pathway in piglets[J]. Chinese Journal of Animal Nutrition, 2012, 24(11):2237-2242. (in Chinese)

[19]
WANG X, YIN L M, GENG C C, et al. Impact of different feed intake levels on intestinal morphology and epithelial cell differentiation in piglets[J]. Journal of Animal Science, 2025, 103:skae262.

[20]
CAO S T, HOU L, SUN L H, et al. Intestinal morphology and immune profiles are altered in piglets by early-weaning[J]. International Immunopharmacology, 2022, 105:108520.

[21]
TANG W J, LIU J L, MA Y F, et al. Impairment of intestinal barrier function induced by early weaning via autophagy and apoptosis associated with gut microbiome and metabolites[J]. Frontiers in Immunology, 2021, 12:804870.

[22]
MARCEAU A, GAO Y H, BALDWIN Ⅵ R L, et al. Investigation of rumen long noncoding RNA before and after weaning in cattle[J]. BMC Genomics, 2022, 23(1):531.

DOI PMID

[23]
FANG M X, YANG Y, WANG N D, et al. Genome-wide analysis of long non-coding RNA expression profile in porcine circovirus 2-infected intestinal porcine epithelial cell line by RNA sequencing[J]. PeerJ, 2019, 7:e6577.

[24]
RABANI S, GUNES E G, GUNES M, et al. CD84 as a therapeutic target for breaking immune tolerance in triple-negative breast cancer[J]. Cell Reports, 2024, 43(11):114920.

DOI

[25]
LIU Z X, CHEN W J, WANG Y, et al. Interleukin-34 deficiency aggravates development of colitis and colitis-associated cancer in mice[J]. World Journal of Gastroenterology, 2022, 28(47):6752-6768.

DOI

[26]
MONTELEONE G, FRANZÈ E, TRONCONE E, et al. Interleukin-34 mediates cross-talk between stromal cells and immune cells in the gut[J]. Frontiers in Immunology, 2022, 13:873332.

[27]
DOU M Y, AZAD M A K, CHENG Y T, et al. Expressions of insulin-like growth factor system among different breeds impact piglets’ growth during weaning[J]. Animals, 2023, 13(19):3011.

DOI

[28]
GUIDA C, RAMRACHEYA R. PYY,a therapeutic option for type 2 diabetes?[J]. Clinical Medicine Insights:Endocrinology and Diabetes, 2020, 13:1179551419892985.

[29]
李志强. 酪酪肽对炎症性肠病模型小鼠及其相关免疫细胞因子的调控[D]. 硕士学位论文. 长春: 吉林大学, 2014.

LI Z Q. The regulation of PYY on TNBS-induced IBD model mouse and associated cytokines[D]. Master’s Thesis. Changchun: Jilin University, 2014. (in Chinese)

[30]
MASSIRONI S, VIGANÒ C, PALERMO A, et al. Inflammation and malnutrition in inflammatory bowel disease[J]. The Lancet Gastroenterology & Hepatology, 2023, 8(6):579-590.

[31]
AVULA L R, KNAPEN D, BUCKINX R, et al. Whole-genome microarray analysis and functional characterization reveal distinct gene expression profiles and patterns in two mouse models of ileal inflammation[J]. BMC Genomics, 2012, 13:377.

[32]
MA L X, GENG J H, CHEN W, et al. Effects of TLR9/NF-κB on oxidative stress and inflammation in IPEC-J2 cells[J]. Genes & Genomics, 2022, 44(10):1149-1158.

[33]
甘丽娜. 仔猪肠道屏障完整性的评价及其候选基因的筛选[D]. 硕士学位论文. 扬州: 扬州大学, 2018.

GAN L N. Evaluation of piglet intestinal barrier integrity and screening of candidate genes[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2018. (in Chinese)

[34]
张卓亿, 田世成, 谢旖, 等. 鸡Claudin家族基因密码子使用偏好性分析[J]. 安徽农业科学, 2025, 53(9):82-87.

ZHANG Z Y, TIAN S C, XIE Y, et al. Analysis of genetic codon usage preference in chicken Claudin family[J]. Journal of Anhui Agricultural Sciences, 2025, 53(9):82-87. (in Chinese)

[35]
柳芳, 李长忠, 祁洪芳, 等. Cu2+胁迫后青海湖裸鲤DNAJC2及其相关基因的表达分析[J]. 基因组学与应用生物学, 2023, 42(9):962-972.

LIU F, LI C Z, QI H F, et al. Expression analysis of DNAJC2 and related genes in Gymnocypris przewalskii under Cu2+ stress[J]. Genomics and Applied Biology, 2023, 42(9):962-972. (in Chinese)

[36]
王姝威, 夏文丽, 张呈豪, 等. 意大利蜜蜂DnaJC28的生物信息学分析[J]. 蜜蜂杂志, 2024, 44(3):23-31.

WANG S W, XIA W L, ZHANG C H, et al. Bioinformatics analysis of DnaJC28 in Apis mellifera[J]. Journal of Bee, 2024, 44(3):23-31. (in Chinese)

[37]
FUJINO Y, KANMURA S, MORINAGA Y, et al. Hepatocyte growth factor ameliorates dextran sodium sulfate-induced colitis in a mouse model by altering the phenotype of intestinal macrophages[J]. Molecular Medicine Reports, 2023, 27(3):70.

DOI

[38]
刘杰. 炎症因子CXCL8在主动脉夹层发生发展中的作用研究[D]. 硕士学位论文. 广州: 华南理工大学, 2024.

LIU J. The role of inflammatory factor CXCL8 in the occurrence and development of aortic dissection[D]. Master’s Thesis. Guangzhou: South China University of Technology, 2024. (in Chinese)

[39]
郭旭阳. CXCL8在PEDV感染过程中的作用及其分子机制[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2020.

GUO X Y. The role of CXCL8 in the process of PEDV infection and its molecular mechanism[D]. Master’s Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[40]
TU P Y, TSAI P C, LIN Y H, et al. Expression profile of Toll-like receptor mRNA in pigs co-infected with porcine reproductive and respiratory syndrome virus and porcine circovirus type 2[J]. Research in Veterinary Science, 2015, 98:134-141.

DOI

文章导航

/