研究论文

环黄芪醇调节p62-Keap1-Nrf2-NQO1级联反应对抗猪耳缘成纤维细胞冷冻氧化损伤

  • 周旗 , 1, 2 ,
  • 张亮 1, 3 ,
  • 潘雨 1, 3 ,
  • 涂志 1, 3 ,
  • 张利娟 1, 3 ,
  • 唐乙仝 1, 3 ,
  • 潘红梅 1, 3 ,
  • 龙熙 , 1, 3, *
展开
  • 1 重庆市畜牧科学院养猪研究所,重庆 402460
  • 2 西北农林科技大学动物医学院,咸阳 712100
  • 3 国家生猪技术创新中心,重庆 402460
* 龙熙,副研究员,E-mail:

周旗(1999—),女,山西太原人,博士研究生,从事动物繁殖与胚胎工程研究。E-mail:

收稿日期: 2025-05-16

  网络出版日期: 2026-01-13

基金资助

重庆市自然科学基金面上项目(CSTB2024NSCQ-MSX0787)

国家重点研发计划(2021YFD1200303)

重庆现代农业产业技术体系(CQMAITS202312)

重庆市人民政府与中国农业科学院战略合作资金项目(23310)

Cycloastragenol Regulates p62-Keap1-Nrf2-NQO1 Cascade to Protect Frozen-Induced Oxidative Damage in Porcine Ear Margin Fibroblasts

  • ZHOU Qi , 1, 2 ,
  • ZHANG Liang 1, 3 ,
  • PAN Yu 1, 3 ,
  • TU Zhi 1, 3 ,
  • ZHANG Lijuan 1, 3 ,
  • TANG Yitong 1, 3 ,
  • PAN Hongmei 1, 3 ,
  • LONG Xi , 1, 3, *
Expand
  • 1 Institute of Swine Research, Chongqing Academy of Animal Sciences, Chongqing 402460, China
  • 2 College of Veterinary Medicine, Northwest Agriculture and Forestry University, Xianyang 712100, China
  • 3 National Swine Technology Innovation Center, Chongqing 402460, China
* associate professor, E-mail:

Received date: 2025-05-16

  Online published: 2026-01-13

摘要

本研究以猪耳缘成纤维细胞(PEMFs)为模型,评估环黄芪醇(CAG)对PEMFs冷冻损伤的保护作用及分子机制。试验利用细胞计数试剂盒-8(CCK-8)法测定CAG对复苏后第3代(P3)、第6代(P6)和第9代(P9)PEMFs增殖活力的影响,以GraphPad Prism 9.5软件中的非线性回归方法(Hill模型)计算CAG的半数效应浓度(EC50);通过流式细胞术检测线粒体膜电位以及活性氧(ROS)和线粒体超氧化物水平;结合蛋白质免疫印迹、免疫荧光染色和透射电镜结果,解析磷酸酶和张力蛋白同源物诱导激酶1(PINK1)-Parkin通路及自噬标志物轻链3B(LC3B)和p62的表达变化;通过p62抑制剂PTX80和Nrf2抑制剂ML385处理细胞,再次测定细胞ROS和线粒体超氧化物水平,验证p62-Kelch样ECH相关蛋白1(Keap1)-核因子E2相关因子2(Nrf2)-还原型烟酰胺腺嘌呤二核苷酸(磷酸)醌氧化还原酶1(NQO1)级联反应的关键性;最后通过转录组测序进一步探究CAG调控的基因网络及富集通路。结果表明:CAG极显著提高PEMFs的线粒体膜电位(P<0.01),极显著降低ROS和线粒体超氧化物水平以及DNA损伤(P<0.01);虽然PINK1-Parkin介导的线粒体自噬通路受阻,p62和LC3B蛋白表达水平均显著提高(P<0.05),但透射电镜下自噬小体减少,细胞内p62积累促进了核内Nrf2和下游NQO1蛋白表达(P<0.05);在p62或Nrf2特异性抑制后,PEMFs中ROS和线粒体超氧化物水平均显著提高(P<0.05),显示p62-Keap1-Nrf2-NQO1轴在CAG抗氧化保护中的核心作用;转录组测序结果显示,差异表达基因主要富集于抗氧化反应、氧化还原酶活性、自噬调控、细胞衰老、呼吸链、线粒体结构以及DNA修复等功能通路;热图结果显示,CAG处理细胞后,细胞中超氧化物歧化酶、热休克蛋白和过氧化物酶等经典抗氧化基因显著上调,与蛋白及功能试验结果高度一致。综上所述,CAG通过激活p62-Keap1-Nrf2-NQO1信号轴维系线粒体稳态并强化抗氧化和DNA修复能力,为优化猪体细胞冷冻保存策略提供了理论依据。

本文引用格式

周旗 , 张亮 , 潘雨 , 涂志 , 张利娟 , 唐乙仝 , 潘红梅 , 龙熙 . 环黄芪醇调节p62-Keap1-Nrf2-NQO1级联反应对抗猪耳缘成纤维细胞冷冻氧化损伤[J]. 动物营养学报, 2026 , 38(1) : 634 -654 . DOI: 10.12418/CJAN2026.049

Abstract

In this study, we employed the porcine ear margin fibroblasts (PEMFs) as a model system to evaluate the protective effects of cycloastragenol (CAG) against cryoinjury and to elucidate the underlying molecular mechanisms. The cell counting kit-8 (CCK-8) assay was used to determine the effects of CAG on proliferation of thawed PEMFs at passages 3 (P3), 6 (P6), and 9 (P9). The median effect concentration (EC50) of CAG was calculated using nonlinear regression (Hill model) in GraphPad Prism 9.5. Intracellular mitochondrial membrane potential and levels of reactive oxygen species (ROS) and mitochondrial superoxide were quantified via flow cytometry. Western blotting, immunofluorescence, and transmission electron microscopy were integrated to analyze alterations in the phosphatase and tensin homolog-induced putative kinase 1 (PINK1)-Parkin mitophagy pathway and the expression of autophagy markers light chain 3B (LC3B) and p62. To validate the involvement of the p62-Kelch-like ECH-associated protein 1 (Keap1)-nuclear factor E2-related factor 2 (Nrf2)-NAD(P)H quinone dehydrogenase 1 (NQO1) signaling axis, PEMFs were treated with the p62 inhibitor PTX80 and the Nrf2 inhibitor ML385, followed by re-evaluation of ROS and mitochondrial superoxide levels. Finally, transcriptome sequencing (RNA-Seq) was conducted to elucidate the gene networks and pathways modulated by CAG. The results showed that CAG treatment extremely significantly enhanced the mitochondrial membrane potential in PEMFs (P<0.01), while extremely significantly reduced the intracellular levels of ROS and mitochondrial superoxide as well as DNA damage (P<0.01). Although CAG treatment led to suppression of the PINK1-Parkin-mediated mitophagy pathway, it concurrently significantly upregulated the protein expression levels of autophagy markers p62 and LC3B (P<0.05). Transmission electron microscopy revealed a reduction in autophagosome numbers, while intracellular accumulation of p62 promoted nuclear translocation of Nrf2 and elevated protein expression of downstream target NQO1 (P<0.05). Upon specific inhibition of p62 or Nrf2, both ROS and mitochondrial superoxide levels in PEMFs were significantly increased (P<0.05), underscoring the critical role of the p62-Keap1-Nrf2-NQO1 axis in CAG-mediated antioxidative protection. Transcriptomic analysis revealed that differentially expressed genes were predominantly enriched in pathways related to antioxidative response, redox enzyme activity, autophagy regulation, cellular senescence, respiratory chain, mitochondrial structure, and DNA repair mechanisms. Heatmap visualization further demonstrated significant upregulation of canonical antioxidant genes, including superoxide dismutases, heat shock proteins, and peroxiredoxins, consistent with both protein-level and functional assay findings. In conclusion, the present study demonstrates that CAG activates the p62-Keap1-Nrf2-NQO1 signaling axis to maintain mitochondrial homeostasis and strengthen both antioxidant defenses and DNA repair capacity, thereby providing a robust theoretical foundation for optimizing cryopreservation protocols of porcine somatic cells.

近年来,由于外来品种的引入、疾病流行以及政策与经济等多重因素的影响,许多优良纯种地方猪遗传资源正面临严重流失[1]。为保护这些珍贵的资源,主要利用体细胞冷冻技术和体细胞核移植(somatic cell nuclear transfer,SCNT)技术实现种群的快速复原和扩繁[2]。在猪的SCNT研究中,成纤维细胞因其来源广泛、同质分离方法成熟以及遗传稳定性和重编程效率高,成为最常用的供体细胞类型[3-4]。细胞冻存是在极低温度下维持细胞寿命的过程,能够减少因细胞连续传代引起的基因漂变和表型变化[5]。但冷冻过程中不可避免地冰晶、渗透压休克和冷冻保护剂的毒性会导致细胞出现冷冻损伤和功能障碍[6-7]。在猪体细胞克隆的实际操作中,几乎均采用经冻存和复苏的供体细胞[8-9],而猪SCNT胚胎的发育不仅依赖体细胞的核基因组重编程,还与供体细胞所携带的线粒体基因组及其表观遗传调控密切相关[10-12]。基于上述发现,供体细胞的质量(包括增殖能力、线粒体基因组完整性及氧化损伤水平)直接影响克隆胚胎的发育效率和健康水平[13-14]。因此,改善体细胞中的线粒体功能及氧化损伤对于提高猪SCNT克隆效率具有重要意义[15]
线粒体自噬是细胞维持线粒体稳态、清除受损线粒体并降低活性氧(reactive oxygen species,ROS)积累的关键质量控制机制[16]。经典的磷酸酶和张力蛋白同源物诱导激酶1(PINK1)-Parkin依赖性信号通路通过识别并标记损伤线粒体,引导其被自噬小体包裹并降解[17]。其中,自噬小体膜蛋白轻链3B(LC3B)与选择性自噬受体p62/SQSTM1通过轻链3互作区域协同,将泛素化的线粒体蛋白质靶向至自噬小体,实现精准识别与封装[18]。当PINK1-Parkin通路功能受阻时,p62易发生堆积,使自噬流受阻。但p62积聚也为非经典途径抗氧化通路Kelch样ECH相关蛋白1(Keap1)-核因子E2相关因子2(Nrf2)-还原型烟酰胺腺嘌呤二核苷酸(磷酸)醌氧化还原酶1(NQO1)的激活提供了物质基础[19]。多项研究表明,该通路主要通过提高过氧化氢酶[20]、谷胱甘肽过氧化物酶[21]、血红素加氧酶-1(HO-1)[22]、超氧化物歧化酶(SOD)[23]和NQO1[24]等抗氧化酶活性或表达水平,上调Krüppel样因子9[25]、醛酮还原酶、NQO1[26]和谷氨酰-半胱氨酸连接酶抗氧化基因表达,抑制凋亡相关基因和蛋白(B细胞淋巴瘤-2相关X蛋白、B细胞淋巴瘤-2、半胱天冬酶-3、半胱天冬酶-9)表达[20],从而降低细胞的氧化应激水平[27]
近年来,天然植物提取物如色素[28]、类黄酮[29-30]、多酚[31]、肽[32]和多糖[33]等因能够清除自由基、保护线粒体并降低氧化损伤被广泛应用于细胞抗氧化和生物样本冷冻保存中。然而这些提取物往往不是单一存在的,而是与其他成分(如氨基酸、蛋白质、脂质和核酸残基)结合,这使其抗氧化效率和物理化学特性复杂,极易受来源、提取流程、浓度和细胞类型等因素的影响,导致评价结果时常出现矛盾的情况[34]。例如,在2.5~15 μmol/L浓度内,Trolox(一种衍生于水溶性维生素E的抗氧化剂)在HeLa细胞培养物中显示出抗氧化作用,而在较高浓度(40~160 μmol/L)下转化为促氧化剂[35]。百里氢醌是一种具有抗炎、抗氧化和抗肿瘤活性的单萜类化合物,但在存在铜离子(Cu2+)或乙二胺四乙酸亚铁(Fe2+-EDTA)的条件下,百里氢醌会诱发裸露质粒DNA的氧化损伤[34]。研究报道,蒜氨酸在乙醇作用下不能减少线粒体ROS形成以及缓解氧化应激、线粒体肿胀和功能障碍。但另一项研究表明,蒜氨酸是一种很好的羟基自由基清除剂,具有较强的抗氧化活性[36]。因此,迄今为止,只有少数具有药学价值的植物提取物作用机制被完全阐明,成分复杂的植物提取物尚未深入揭示其在细胞内或线粒体中作用的关键靶点和信号通路。
环黄芪醇(cycloastragenol,CAG)是一种来源于传统中草药黄芪、结构明确的三萜苷元[37]。近年来,CAG因具有延缓细胞衰老、激活端粒酶和抗氧化的潜力而备受关注[38]。早期研究表明,CAG通过抑制内质网应激进而阻止线粒体膜通透性转换孔开放,从而发挥心肌细胞线粒体保护作用[39]。在D-半乳糖诱导的衰老小鼠模型中,CAG处理后总抗氧化能力和SOD活性显著上调,羟脯氨酸储存量显著增加,其抗氧化效应可能与分子结构上的羟基密切相关[40]。在帕金森病模型中,CAG能够减少微胶质细胞ROS,减轻线粒体损伤[41]。近期研究表明,CAG在细胞自噬调控方面展示出双重作用:在肺癌细胞系中,CAG通过激活单磷酸腺苷活化蛋白激酶(AMPK)/UNC-51样激酶1(ULK1)/哺乳动物雷帕霉素靶蛋白(mTOR)信号通路诱导保护性自噬,同时触发凋亡,抑制肿瘤细胞增殖[42];但在小鼠模型中,CAG通过抑制自噬减轻哮喘小鼠的气道炎症,抑制炎症细胞浸润和杯状细胞分泌[43]。此外,有研究推测CAG可能通过调节PINK1-Parkin通路参与线粒体自噬,进而维持线粒体质量控制[44-45]。截至目前,尚未有研究证明CAG具有促氧化或者线粒体毒性的研究。基于先前证实CAG抗氧化特性和自噬相关的研究,本研究的主要目的是探究CAG如何影响冻融条件下猪耳缘成纤维细胞(porcine ear margin fibroblasts,PEMFs)的氧化损伤和线粒体自噬。此外,本研究还测定了CAG对于不同代细胞的适宜作用浓度,通过检测PEMFs氧化应激水平、DNA损伤、PINK1-Parkin自噬通路、自噬标志物p62和LC3B及p62-Keap1-Nrf2-NQO1级联反应中相关蛋白的表达变化,为理解CAG调控猪成纤维细胞线粒体自噬及氧化应激响应的分子机制提供理论依据。

1 材料与方法

1.1 试验材料

猪耳缘组织来自重庆市荣昌区双河猪场8月龄荣昌猪,样本采集后经75%酒精消毒30 s并使用杜氏磷酸缓冲液(DPBS)清洗3~5次,放入含有5%青霉素-链霉素-两性霉素B(PB180121,武汉普诺赛生命科技有限公司)的细胞培养液的离心管中,在4 ℃条件下短暂保存,并在采集后6 h内运至实验室。

1.2 细胞培养、冻存和复苏

在超净台中,使用75%酒精清洗耳缘组织30 s,分离获取真皮组织,用添加5%青霉素-链霉素-两性霉素B的DPBS清洗组织10次;然后在0.5 mL细胞完全培养基中将组织剪碎成0.5~1.0 mm3碎片,细胞完全培养基由10%胎牛血清(FBS,10099141C,赛默飞世尔科技公司)、89%最低必需培养基-α(MEM-α,32571036,赛默飞世尔科技公司)和1%青霉素-链霉素-两性霉素B组成。将组织碎片均匀放置在60 mm的培养皿中,在37 ℃、5%二氧化碳(CO2)细胞培养箱中倒置6~8 h。当组织碎片达到半干燥状态时,加入4 mL预热的细胞完全培养基,在细胞培养箱中静置培养。当细胞达到70%~90%融合时,用0.25%胰蛋白酶(25200056,赛默飞世尔科技公司)消化3~5 min,终止消化后离心并保留细胞沉淀,使用新鲜预热的培养液按照1∶2比例传代。
细胞冻存时,用0.25%胰蛋白酶消化细胞5 min,终止消化后离心并得到细胞沉淀,用细胞冷冻液重悬细胞,放在程序降温盒中在-80 ℃进行梯度降温,12 h后放入液氮中进行长期保存。
细胞复苏时,将细胞样本从液氮中迅速转移到37 ℃的水浴中进行1~2 min快速解冻,用预热至37 ℃的细胞完全培养基重悬细胞,并将其接种到新的培养皿中以恢复正常生长,待细胞贴壁后换液。

1.3 培养基的制备

将纯度超过98.0%的CAG(HY-N1485,美国MedChemExpress生物科技公司;相对分子质量为490.72,化学式为C30H50O5)溶解于二甲基亚砜(DMSO)中。为避免DMSO对细胞产生干扰或毒性,制备CAG浓缩原液浓度为125 mmol/L以保证稀释后DMSO在培养液中浓度≤0.1%。将此原液用细胞培养液稀释以获得试验组CAG的最终浓度(25、50、75、100、125、150、175和200 μmol/L)。
将p62抑制剂PTX80(HY-169779,美国MedChemExpress生物科技公司)溶解于无水乙醇中,使用细胞完全培养基稀释,使其终浓度为30 nmol/L;将特异的Nrf2抑制剂ML385(HY-100523,美国MedChemExpress生物科技公司)溶解于DMSO中,使用细胞完全培养基稀释,使其终浓度为10 μmol/L。PTX80和ML385的剂量根据已发表的文章[27-28]和初步筛选确定。

1.4 CAG半数效应浓度(median effect concentration,EC50)计算

将复苏后的第3代(P3)、第6代(P6)和第9代(P9)PEMFs以2×10³细胞/孔的密度接种于96孔板中,次日用DPBS清洗2次,并在含有不同浓度(0、25、50、75、100、125、150、175和200 μmol/L)CAG的细胞完全培养基中培养12 h;向每孔中加入10 μL 细胞计数试剂盒-8(CCK-8,C0037,上海碧云天生物技术股份有限公司),在细胞培养箱中孵育2 h,用酶标仪测定450 nm处吸光度值。通过GraphPad Prism 9.5软件中的非线性回归方法[Hill模型,log(agonist) vs. Response-Variable slope (four parameters)],采用最小二乘法进行曲线拟合,并计算CAG的EC50值。

1.5 氧化应激水平分析

1.5.1 ROS测定

利用10 μmol/L 2',7'-二氯二氢荧光素二乙酸酯(DCFH-DA)探针(S0033S,上海碧云天生物技术股份有限公司)检测细胞内ROS水平。细胞消化离心后获取细胞沉淀,加入探针并在细胞培养箱中孵育20 min;孵育结束后用无血清培养基清洗PEMFs 3次,并用流式细胞仪检测细胞内ROS荧光强度。

1.5.2 线粒体超氧化物水平的评估

利用MitoSOX Red探针(S0061S,上海碧云天生物技术股份有限公司)检测细胞内线粒体超氧化物水平,终浓度为10 μmol/L。将收集的细胞沉淀与探针在室温下孵育30 min;孵育后,将细胞离心,用DPBS清洗2次,重新悬浮于1 mL无血清培养基中,用流式细胞仪测定荧光强度。

1.5.3 线粒体膜电位评估

利用JC-1线粒体膜电位检测试剂盒(C2003S,上海碧云天生物技术股份有限公司)检测细胞内线粒体膜电位。收集细胞沉淀,使用0.5 mL JC-1染色液重悬细胞沉淀,在细胞培养箱中孵育20 min;孵育结束后,离心并保留细胞沉淀,用JC-1染色缓冲液洗涤细胞2次,重悬在0.5 mL的缓冲液中,使用流式细胞仪分析荧光强度。

1.6 免疫荧光染色

利用免疫荧光染色法测定PEMFs中LC3B、p62和磷酸化组蛋白H2A.X(γ-H2A.X)表达。将细胞接种在24孔板中培养至70%汇合度,用DPBS清洗细胞2次,使用免疫染色固定液固定细胞15 min,用免疫染色通透液孵育10 min,并用免疫染色封闭液封闭60 min;然后将PEMFs与p62(T55546S)、LC3B(T55992S)和Phospho-Histone H2A.X (S139) Antibody (M086241S)(稀释比例为1∶500)在4 ℃下孵育12 h以充分结合一抗,抗体均购自艾比玛特医药科技(上海)有限公司。孵育完成后,使用Alexa Fluor 555标记驴抗兔免疫球蛋白G(IgG)(H+L)(A0453,上海碧云天生物技术股份有限公司)(稀释比例为1∶500)作为二抗在37 ℃下避光孵育2 h,最后使用4',6-二脒基-2-苯基吲哚(DAPI)对细胞核进行染色,在荧光倒置显微镜下进行观察分析。

1.7 透射电镜扫描

细胞经2.5%戊二醛预固定,1%四氧化锇再固定;丙酮逐级脱水,脱水剂浓度梯度为30%→50%→70%→80%→90%→95%→100%;脱水剂和Epon-812包埋剂,按照比例分别为3∶1、1∶1和1∶3,依次渗透细胞;使用Epon-812纯包埋剂包埋;用超薄切片机作60~90 nm超薄切片捞至铜网上;先用醋酸铀染色10~15 min,再用柠檬酸铅染色1~2 min,室温下染色。使用透射电镜进行扫描。

1.8 蛋白质免疫印迹

收集PEMFs,用预冷的DPBS清洗1次,并在蛋白质和IP裂解缓冲液与蛋白酶抑制剂(HY-K0010,美国MedChemExpress生物科技公司)的混合物中超声裂解20 min。采用二喹啉甲酸(BCA)蛋白测定试剂盒(P0011,上海碧云天生物技术股份有限公司)测定蛋白浓度,计算所有样本的蛋白量,上样时保持所有孔蛋白量一致。对于免疫印迹,通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离蛋白,转移到0.2 μmol/L聚偏二氟乙烯(PVDF)膜上;在4 ℃条件下分别与500倍稀释的一抗PINK1(PK05715S)、Parkin(T56641S)、LC3B、p62、Keap1(TA5266S)、Nrf2(M086241S)、NQO1(T56710S)、β-肌动蛋白(P30002S)、Histone H3.1 Rabbit pAb(P30266S)孵育12 h,抗体均购于艾比玛特医药科技(上海)有限公司。孵育结束后使用Western洗涤液(P0023C,上海碧云天生物技术股份有限公司)清洗PVDF膜3次,每次5 min。在室温条件下与500倍稀释的辣根过氧化物酶标记山羊抗兔IgG(H+L)(A0208,上海碧云天生物技术股份有限公司)或辣根过氧化物酶标记山羊抗小鼠IgG(H+L)(A0216)孵育2 h。采用增强化学发光(ECL)试剂盒(P0018S,上海碧云天生物技术股份有限公司)进行显色,蛋白质免疫印迹使用化学发光成像仪(ChemiDoc,Bio-Rad,美国)并通过Image Lab 6.0软件对图像进行灰度分析。

1.9 转录组测序

1.9.1 RNA提取和逆转录

在转录组分析中,以P6 PEMFs经CAG处理为试验组,以未处理的细胞为对照组(NC组)。使用Trizol提取细胞总RNA,并使用HiFiScript gDNA Removal RT Master Mix(CW 2020S,北京康为世纪生物科技有限公司)进行逆转录反应。在冰上配制反应体系(表1),涡旋振荡混匀,42 ℃孵育2 min以去除基因组DNA。逆转录反应体系见表2,将液体混匀后短暂离心,37 ℃孵育15 min,85 ℃孵育5 s,反应结束后,置于-20 ℃保存。
表1 去除基因组DNA反应体系

Table 1 Reaction system for removing genomic DNA

试剂Reagents 10 μL反应体系10 μL reaction system
10×gDNA去污剂混合物10×gDNA remover mix 1 μL
RNA模板RNA template 1 μg
无RNA酶水RNase-free water 加至10 μL
表2 逆转录反应体系

Table 2 Reaction system for reverse transcription

试剂Reagents 20 μL反应体系20 μL reaction system
表1反应液Reaction solution in Table 1 10 μL
5×HiFiScript RT主混合液5×HiFiScript RT master mix 4 μL
无RNA酶水RNase-free water 6 μL

1.9.2 转录组测序分析

将提取的RNA样本送至华大基因公司进行测序。采用Illumina HiSeqTM 2500测序平台进行转录组分析。基因本体(GO)和京都基因与基因组百科全书(KEGG)等分析通过华大基因免费在线云平台进行。

1.9.3 实时荧光定量PCR(RT-qPCR)

待测序公司返回RNA剩余样本后,评估10个基因的表达水平以验证其表达,引物由Primer Premier 5.0设计并由苏州金唯智生物科技有限公司合成。使用2×SuperFast Universal SYBR Master Mix(CW3888M,北京康为世纪生物科技有限公司)进行PCR,RT-qPCR反应体系见表3,反应程序见表4。采用2-ΔΔCt法计算基因表达的倍数变化,结果报告为“平均值±标准误”,每个样本测量3次。本研究所使用的所有引物序列见表5
表3 RT-qPCR反应体系

Table 3 RT-qPCR reaction system

试剂
Reagents
20 μL反应体系
20 μL reaction system
终浓度
Final concentration
2×快速通用SYBR主混合液2×SuperFast Universal SYBR master mix 10 μL
正向引物Forward primer (10 μmol/L) 0.4 μL 0.2 μmol/L
反向引物Reverse primer (10 μmol/L) 0.5 μL 0.2 μmol/L
模板DNA Template DNA 100 ng
超纯水ddH2O 加至20 μL
表4 RT-qPCR反应程序

Table 4 RT-qPCR reaction procedure

步骤Steps 温度Temperature/℃ 时间Time/s 循环Cycle
预变性Premutability 95 30 1
变性Mutability 95 10
45
退火/延伸Annealing/extension 60 30
95 15 1
表5 本研究所用引物序列

Table 5 Primer sequences used in this study

引物
Primers
引物序列
Primer sequences
(5'—3')
退火温度
Annealing
temperature/℃
产物大小
Product size/bp
C-X-C基序趋化因子配体2
CXCL2
F:CATGGTGAAGAAAATCATCGAGAA 57.57 68
R:CACACACGGCTAACTTTTTCTTTG 59.50
白细胞介素-11
IL-11
F:CAAATTCCCAGCTGACGGAGA 60.34 127
R:GTAGGAAAACAGGTCTGCTCG 58.66
基质金属蛋白酶3
MMP3
F:GGCCTGCCCAAGTGGAGAAA 62.70 127
R:GCGGAGTCACTTCCTCCCAG 62.20
基质金属蛋白酶1
MMP1
F:TGTTCTCACTCCAGGGAACC 58.94 239
R:TTCCTCCAGGTCCATCAAAG 56.82
趋化因子配体2
CCL2
F:CCTCATCCTCCAGCATGAAGGTCTCTGC 68.21 76
R:CCTCATCCTCCAGCATGAAGGTCTCTGC 68.21
趋化因子配体20
CCL20
F:GGTGCTGCTGCTCTACCTCT 61.61 113
R:GCTGTGTGAAGCCCATGATA 57.96
血小板反应蛋白1
THBS1
F:CAAAGAGTTGGCCAGTGAGC 59.40 153
R:ATGATGGGGCAGGACACTTT 59.29
胰岛素样生长因子结合蛋白4
IGFBP4
F:ACCGCAACGGCAACTTCCA 63.06 89
R:TCCCGTCTTCCGGTCCACA 62.81
胰岛素样生长因子结合蛋白2
IGFBP2
F:TCGTCTGGGCAGGGGTGCTACTG 68.13 63
R:GCTGTGGTTTACTGCATCCG 59.55
胰岛素样生长因子结合蛋白5
IGFBP5
F:GCAAGCCAAGATCGAGAGAG 58.43 102
R:GTGTGCTTGGGTCGGAAGAT 60.32
核因子E2相关因子2
Nrf2
F:GGAGCTGTTGATCTGTTGCG 59.55 132
R:TCCATGTCCCTTGACAGCAA 59.23
p62 F:TGTGTCCCCTTTCCTGTCTC 58.94 150
R:ACCCTCGTGTCACTTGCTCT 61.12
β-肌动蛋白
β-actin
F:TCCCTGGAGAAGAGCTACGA 59.38 187
R:TGTTGGCGTAGAGGTCCTTC 59.39

1.10 数据统计分析

本研究中所有试验至少重复3次。除特殊说明外,结果数据均以“平均值±标准误”表示,并使用GraphPad Prism 9.5对试验数据进行显著性分析,单组间比较采用t检验,多组间比较采用单因素方差分析(one-way ANOVA)或双因素方差分析(two-way ANOVA),统计学显著水平为:P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 CAG效应分析

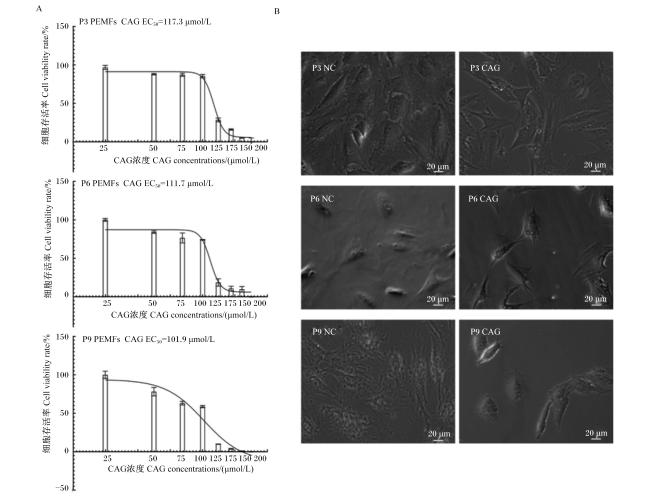
为评估CAG对复苏后PEMFs的作用浓度,将CAG浓度梯度设定为0~200 μmol/L,结果显示(图1-A):剂量-效应曲线呈典型反“S”形分布。CAG对不同代PEMFs的效应浓度存在差异,计算得出CAG在P3 PEMFs中的EC50值为117.3 μmol/L[决定系数(R2)=0.98,自由度(DF)=20],在P6 PEMFs中的EC50值为111.7 μmol/L(R2=0.96,DF=20),在P9 PEMFs中的EC50值为101.9 μmol/L(R2=0.95,DF=20),表明在本试验条件下,CAG具有较高的效力。通过观察细胞形态发现(图1-B),在连续传代过程中(P3~P9),细胞面积明显增大,失去长梭形的形态,变为不规则、扁平的形态,细胞边缘模糊,丝状伪足和板状伪足增多;CAG处理细胞后,细胞极性增强,恢复长梭形形态,伪足形成减少,细胞边缘较为清晰。
图1 CAG剂量-效应曲线(12 h,A)与细胞形态(B)

P3、P6和P9分别表示第3代、第6代和第9代细胞。PEMFs:猪耳缘成纤维细胞;CAG:环黄芪醇;EC50:半数效应浓度;NC:对照。下图同。

Fig.1 CAG dose-response curves (12 h, A) and cell morphology (B)

P3, P6 and P9 represented the 3rd, 6th and 9th generation cells, respectively. PEMFs: porcine ear margin fibroblasts; CAG: cycloastragenol; EC50: median effect concentration; NC: control. The same as below.

2.2 CAG降低PEMFs氧化应激水平

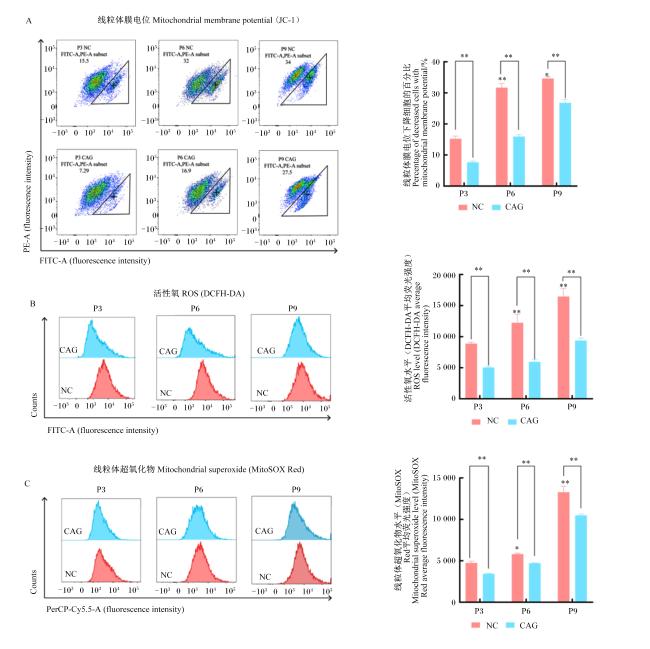
为了研究CAG对细胞氧化应激水平的影响,使用流式细胞术检测了细胞线粒体膜电位、以及ROS和线粒体超氧化物水平,3个不同代次的细胞均在CAG EC50浓度下处理12 h。结果显示(图2),随着代次的升高,具有低线粒体膜电位的细胞比例逐步升高,P3为(15.20±1.58)%;P6为(31.67±3.73)%,极显著高于P3(P<0.01);P9为(34.60±0.56)%,显著高于P6(P<0.05)。与此同时,线粒体超氧化物水平依次显著(P<0.05)和极显著(P<0.01)升高,ROS水平依次极显著升高(P<0.01),表明高代次细胞在复苏后面临着更强的氧化应激。CAG处理细胞后,P3具有低线粒体膜电位的细胞比例下降了49.80%(P<0.01),P6下降了49.70%(P<0.01),P9则下降了22.63%(P<0.01);与此同时,ROS和线粒体超氧化物水平均极显著降低(P<0.01),表明CAG处理有效缓解了细胞的氧化应激反应。
图2 CAG降低PEMFs氧化应激水平

FITC-A:异硫氰酸荧光素标记蛋白A;PE-A:藻红蛋白标记蛋白A;fluorescence intensity:荧光强度;subset:子集;Counts:计数;DCFH-DA:2',7'-二氯二氢荧光素二乙酸酯 2',7'-dichlorodihydrofluorescein diacetate;PerCP-Cy5.5-A:多甲藻黄素-叶绿素-蛋白复合物-Cy5.5标记蛋白A。图6同 The same as Fig.6

*表示P<0.05,**表示P<0.01。* indicates P<0.05, and ** indicates P<0.01.

Fig.2 CAG reduces oxidative stress levels in PEMFs

2.3 CAG修复DNA损伤

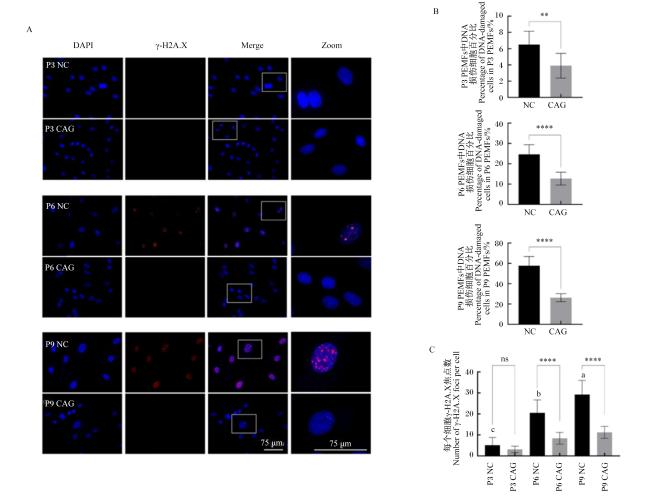
当细胞发生DNA损伤,特别是双链断裂时,组蛋白H2A.X上的丝氨酸139被磷酸化,形成γ-H2A.X。如图3所示,在传代早期的P3 PEMFs中,DNA损伤率和损伤细胞中γ-H2A.X病灶极少;在P6 PEMFs中,DNA损伤率较P3 PEMFs增加,平均每个γ-H2A.X阳性细胞有10个以上的γ-H2A.X病灶;在P9 PEMFs中,50%以上的细胞表达γ-H2A.X,表明1/2以上的细胞均发生了DNA损伤,且损伤细胞中表达超过20个以上的γ-H2A.X病灶。CAG处理后,P3 PEMFs中DNA损伤细胞百分比极显著降低(P<0.01),但损伤细胞中γ-H2A.X病灶的数量没有显著差异(P>0.05);P6和P9 PEMFs中DNA损伤细胞百分比和损伤细胞中γ-H2A.X病灶的数量均极显著降低(P<0.01)。
图3 CAG减轻PEMFs DNA损伤

DAPI:4',6-二脒基-2-苯基吲哚 4',6-diamidino-2-phenylindole;γ-H2A.X:磷酸化组蛋白H2A.X phospho-histone H2A.X;Merge:合并;Zoom:放大。

**表示P<0.01,****表示P<0.000 1,ns表示无显著差异(P>0.05)。数据柱标记不同字母表示差异显著(P<0.05),图6同。

Fig.3 CAG alleviates DNA damage in PEMFs

** indicates P<0.01, **** indicates P<0.000 1, and ns indicates no significant difference (P>0.05). The data column marked with different letters indicates significant differences (P<0.05), the same as Fig.6.

2.4 CAG抑制线粒体自噬

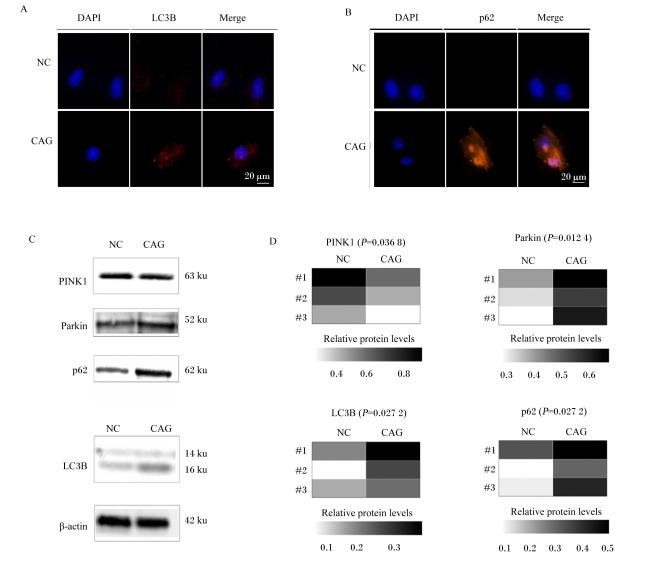
免疫荧光结果显示,相比于NC组,CAG组显示更多LC3B聚集斑点,表明自噬体形成增多(图4-A)。在NC组中未检测到p62荧光信号,结合LC3B的正常分布,说明对照细胞的自噬流畅通且无p62积累(图4-B);而在CAG组中可见明显的p62聚集(图4-B),表示p62降解受阻。蛋白质免疫印迹定量结果显示,CAG处理显著促进了细胞内p62和LC3B的积累(P<0.05),抑制了PINK1-Parkin通路的激活(P<0.05)(图4-C图4-D)。
图4 CAG抑制PINK1-Parkin通路介导的线粒体自噬

DAPI:4',6-二脒基-2-苯基吲哚 4',6-diamidino-2-phenylindole;LC3B:轻链3B light chain 3B;Merge:合并;PINK1:磷酸酶和张力蛋白同源物诱导激酶1 phosphatase and tensin homolog-induced putative kinase 1;β-actin:β-肌动蛋白;Relative protein levels:相对蛋白水平。

#1、#2和#3代表3个重复,图6同。#1, #2 and #3 indicate three repetitions, the same as Fig.6.

Fig.4 CAG inhibits PINK1-Parkin pathway mediated mitophagy

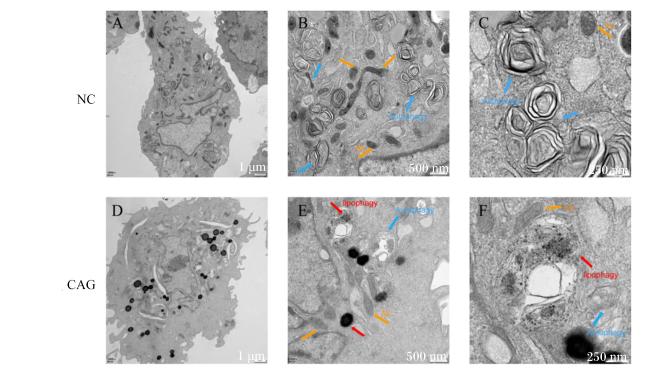
透射电镜可清晰地观察线粒体的形态并分辨自噬体的双层限膜,这一形态特征是定义自噬体的核心标准[25]。电镜结果显示,NC组细胞样本中细胞呈类圆形,细胞核呈不规则形,染色质分布较均匀(图5-A);胞浆中线粒体出现固缩,体积缩小,膜密度增加并且出现大量的自噬小体(图5-B);右侧图放大可见较多的双层膜吞噬泡将胞质内待降解的线粒体等细胞器和部分胞质包裹入内,形成较多的双层膜的自噬小体(图5-C)。CAG组细胞样本中,细胞呈类圆形,细胞核呈不规则形,染色质分布较均匀(图5-D);胞浆中线粒体形态结构较正常,清晰、排列整齐,基质均匀,呈均一的灰色,自噬小体较少,同时观察到细胞中出现较多脂噬,具体表现为融合后脂滴结构被降解,内部电子密度增高(逐渐变暗),脂质结构不清晰(图5-E);脂滴碎片呈现不规则、颗粒状物质(图5-F)。
图5 透射电镜观察线粒体形态和自噬小体

Autophagy:自噬;lipophagy:脂噬;MI:线粒体 mitochondria。

Fig.5 Mitochondrial morphology and autophagosomes observed by transmission electron microscopy

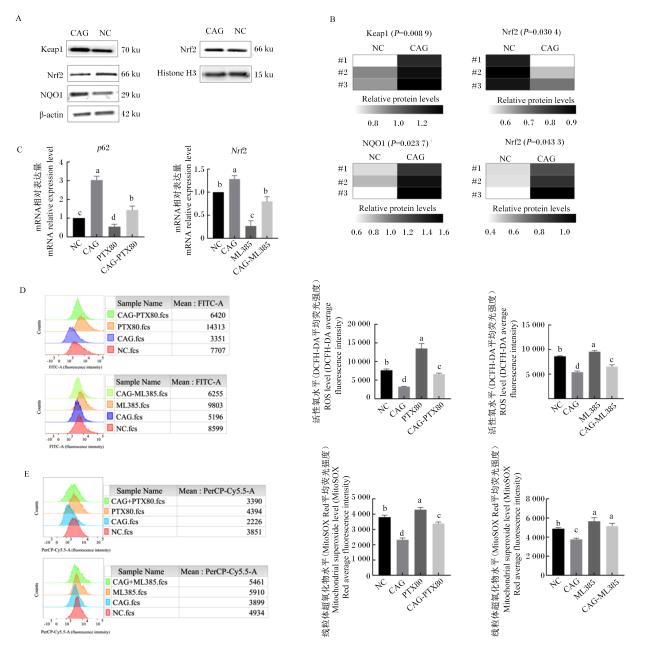
由于传统的线粒体自噬通路被抑制,为了验证CAG是否通过p62积累并激活Keap1-Nrf2-NQO1通路对细胞的抗氧化能力进行调控,通过测定相关蛋白的表达,结果显示,CAG显著提高了PEMFs胞质中Keap1和NQO1蛋白表达(P<0.05),降低了Nrf2蛋白表达(P<0.05);同时,显著提高了核内Nrf2蛋白表达(P<0.05),表明CAG促进了Nrf2从细胞质向细胞核的转位(图6-A图6-B)。然后,在CAG的基础上添加p62抑制剂PTX80和Nrf2抑制剂ML385,通过RT-qPCR证实了对p62和Nrf2的显著抑制效果(P<0.05)(图6-C);同时,细胞产生的ROS和线粒体超氧化物水平在添加PTX80或ML385后均显著提高(P<0.05),表明CAG的保护作用显著减弱(图6-D图6-E)。因此,CAG主要通过p62-Keap1-Nrf2-NQO1级联反应对冷冻损伤的细胞损伤发挥抗氧化保护作用。
图6 CAG激活Keap1-Nrf2-NQO1抗氧化通路

Keap1:Kelch样ECH相关蛋白1 Kelch-like ECH-associated protein 1;Nrf2:核因子E2相关因子2 Nuclear factor E2-related factor 2;NQO1:还原型烟酰胺腺嘌呤二核苷酸(磷酸)醌氧化还原酶1 NAD(P)H quinone dehydrogenase 1;β-actin:β-肌动蛋白;Histone H3:组氨酸H3;Relative protein levels:相对蛋白水平;Sample Name:样本名称;Mean:平均。

Fig.6 CAG activates Keap1-Nrf2-NQO1 antioxidant pathway

2.5 差异表达基因与qPCR验证

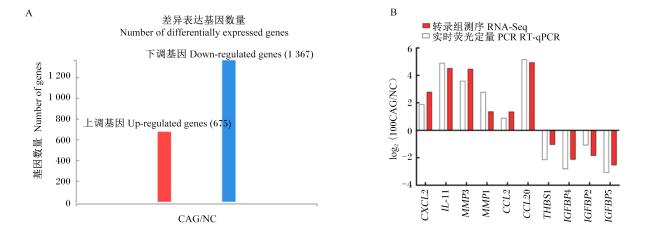
为了进一步阐明CAG在PEMFs中的抗氧化作用,采用转录组测序分析了NC组和CAG组的基因表达谱,共检测到675个显著上调基因和1 367个显著下调基因(图7-A);选取10个具有代表性的差异表达基因并通过RT-qPCR进行验证,发现其表达变化趋势与转录组测序结果一致(图7-B),表明测序数据具有良好的可靠性。
图7 差异表达基因与qPCR验证

CXCL2:C-X-C基序趋化因子配体2 C-X-C motif chemokine ligand 2;IL-11:白细胞介素-11 interleukin-11;MMP:基质金属蛋白酶 matrix metalloproteinase;CCL:趋化因子配体 chemokine ligand;IGFBP:胰岛素样生长因子结合蛋白 insulin-like growth factor binding protein。

Fig.7 Differentially expressed genes and qPCR validation

2.6 差异表达基因富集分析

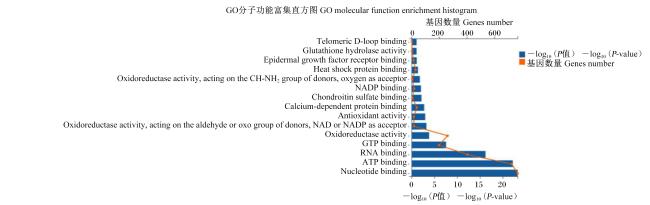
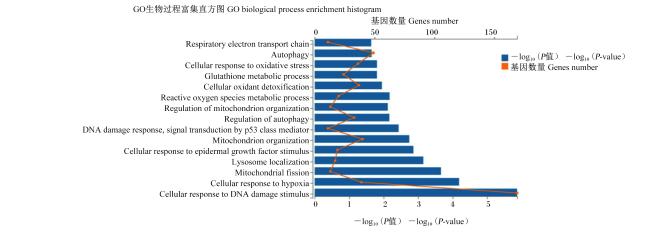
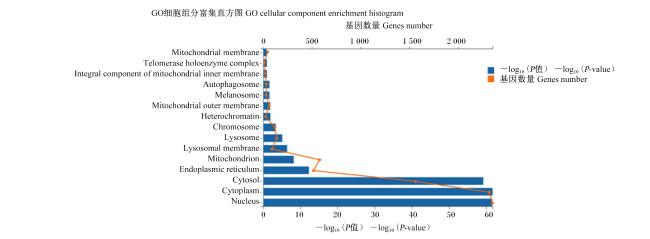
为进一步了解差异表达基因发挥的生物学功能,经GO分子功能富集分析发现(图8),这些基因多参与核苷酸结合、ATP结合和RNA结合等功能;经GO生物过程富集分析发现(图9),这些基因主要聚焦在细胞对DNA损伤刺激的反应、细胞对缺氧的反应以及线粒体分裂等过程;经GO细胞组分富集分析发现(图10),这些基因主要作为细胞核、细胞质和胞质溶胶等的组成成分。
图8 差异表达基因GO分子功能富集分析

Telomeric D-loop binding:端粒D环结合;Glutathione hydrolase activity:谷胱甘肽水解酶活性;Epidermal growth factor receptor binding:表皮生长因子受体结合;Heat shock protein binding:热休克蛋白结合;Oxidoreductase activity, acting on the CH-NH2 group of donors, oxygen as acceptor:氧化还原酶活性,作用于供体CH-NH2基团,氧为受体;NADP binding:烟酰胺腺嘌呤二核苷酸磷酸结合;Chondroitin sulfate binding:硫酸软骨素结合;Calcium-dependent protein binding:钙依赖性蛋白结合;Antioxidant activity:抗氧化活性;Oxidoreductase activity, acting on the aldehyde or oxo group of donors, NAD or NADP as acceptor:氧化还原酶活性,作用于供体醛或氧化基团,烟酰胺腺嘌呤二核苷酸或烟酰胺腺嘌呤二核苷酸磷酸为受体;Oxidoreductase activity:氧化还原酶活;GTP binding:三磷酸鸟苷结合;RNA binding:RNA结合;ATP binding:ATP结合;Nucleotide binding:核苷酸结合。

Fig.8 GO molecular function enrichment analysis of differentially expressed genes

图9 差异表达基因GO生物过程富集分析

Respiratory electron transport chain:呼吸电子传递链;Autophagy:自噬;Cellular response to oxidative stress:细胞对氧化应激的反应;Glutathione metabolic process:谷胱甘肽代谢过程;Cellular oxidant detoxification:细胞氧化解毒;Reactive oxygen species metabolic process:活性氧代谢过程;Regulation of mitochondrion organization:线粒体组织调节;Regulation of autophagy:自噬调节;DNA damage response, signal transduction by p53 class mediator:DNA损伤反应,p53类介质的信号转导;Mitochondrion organization:线粒体组织;Cellular response to epidermal growth factor stimulus:细胞对表皮生长因子刺激的反应;Lysosome localization:溶酶体定位;Mitochondrial fission:线粒体分裂;Cellular response to hypoxia:细胞对缺氧的反应;Cellular response to DNA damage stimulus:细胞对DNA损伤刺激的反应。

Fig.9 GO biological process enrichment analysis of differentially expressed genes

图10 差异表达基因GO细胞组分富集分析

Mitochondrial membrane:线粒体膜;Telomerase holoenzyme complex:端粒酶全酶复合体;Integral component of mitochondrial inner membrane:线粒体内膜不可或缺的组成成分;Autophagosome:自噬体;Melanosome:黑素体;Mitochondrial outer membrane:线粒体外膜;Heterochromatin:异染色质;Chromosome:染色体;Lysosome:溶酶体;Lysosomal membrane:溶酶体膜;Mitochondrion:线粒体;Endoplasmic reticulum:内质网;Cytosol:胞质溶胶;Cytoplasm:细胞质;Nucleus:细胞核。

Fig.10 GO cellular component enrichment analysis of differentially expressed genes

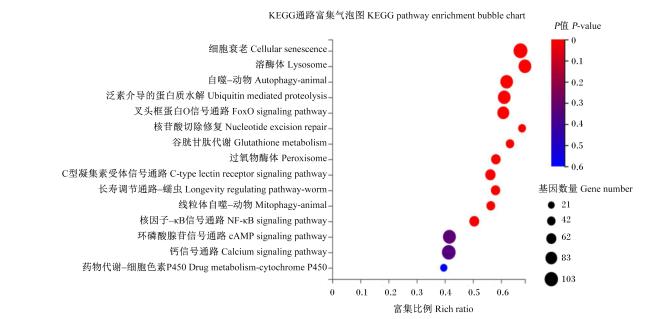
进一步通过KEGG通路富集分析显示(图11),CAG组差异表达基因显著富集于多条与细胞命运和抗氧化应激密切相关的通路,包括细胞衰老、溶酶体和自噬-动物等。
图11 差异表达基因KEGG通路富集分析

Fig.11 KEGG pathway enrichment analysis of differentially expressed genes

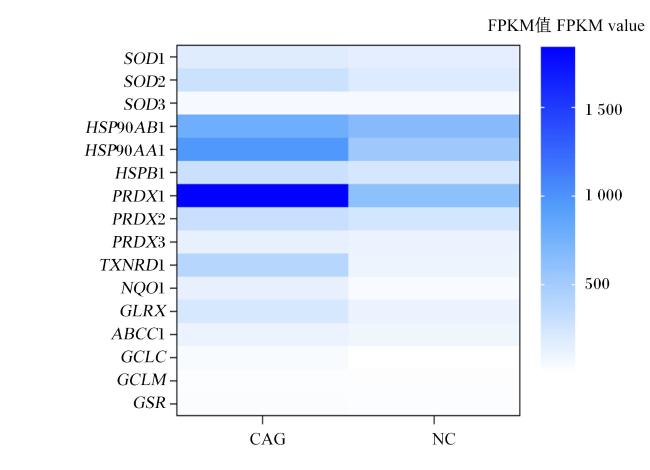
抗氧化酶基因表达热图显示(图12),CAG处理细胞后,SOD家族(SOD1、SOD2、SOD3)、热休克蛋白(HSP)家族(HSPB1)、过氧化物酶(PRDX)家族(PRDX1、PRDX2、PRDX5)、硫氧还蛋白还原酶1(TXNRD1)、NQO1、谷胱甘肽还原酶(GSR)、谷氨酰-半胱氨酸连接酶催化亚基(GCLC)和谷氨酰-半胱氨酸连接酶调节亚基(GCLM)等多种经典抗氧化酶基因的FPKM值均提高。综上所述,富集分析表明,CAG处理后在转录水平上显著调动了以抗氧化、线粒体功能维护、自噬及DNA损伤修复为核心的信号网络,与本研究在蛋白及其功能试验中观察到的现象高度一致。
图12 抗氧化酶基因表达热图

SOD:超氧化物歧化酶 superoxide dismutase;HSP:热休克蛋白 heat shock protein;PRDX:过氧化物酶 peroxiredoxin;TXNRD1:硫氧还蛋白还原酶1 thioredoxin reductase 1;NQO1:还原型烟酰胺腺嘌呤二核苷酸(磷酸)醌氧化还原酶1 NAD(P)H quinone dehydrogenase 1;GLRX:谷氧还蛋白 glutaredoxin;ABCC1:ATP结合盒亚家族C成员1 ATP binding cassette subfamily c member 1;GCLC:谷氨酰-半胱氨酸连接酶催化亚基 glutamate-cysteine ligase catalytic subunit;GCLM:谷氨酰-半胱氨酸连接酶调节亚基 glutamate-cysteine ligase modifier subunit;GSR:谷胱甘肽还原酶 glutathione reductase。

Fig.12 Heatmap of antioxidant enzyme gene expression

3 讨论

3.1 CAG对PEMFs抗氧化损伤和线粒体结构的影响

细胞代次和物种差异对药物敏感性影响显著。早期研究发现,在使用100 μmol/L CAG处理低代次细胞(P6)24 h时,具有显著的抗衰老作用,但相同作用条件会影响高代次细胞(P9)后续的增殖[46]。考虑到细胞复苏后常表现为整体活力下降和增殖能力滞后[47]。本研究采用CCK-8法绘制CAG剂量-效应曲线,以EC50为参考浓度进行试验,以确保CAG在非抑制细胞功能的浓度下发挥作用。
研究表明,ROS大量产生会氧化线粒体内膜脂质和蛋白,破坏膜完整性,诱导线粒体孔开放,导致线粒体结构和膜电位丧失、ATP合成受损,最终引发凋亡或自噬[48]。具有致密、内嵴塌陷特征的“线粒体固缩”常被视为早期凋亡的标志之一[49]。本研究结果显示,EC50的CAG处理不仅显著提升线粒体膜电位,降低细胞整体和线粒体ROS水平,还有效抑制线粒体固缩,稳定其内膜结构和功能。这一作用可能与CAG通过调控p53、Myc、蛋白激酶B(Akt)、Ras及B-Raf原癌基因丝氨酸/苏氨酸激酶(BRAF)等信号通路(正向促进线粒体膜电位与呼吸效率)相关[50]。此前研究已证实,CAG可下调细胞p53表达[46]。此外,ROS也可直接氧化线粒体DNA和核DNA,导致碱基变性、断裂和交联,损害DNA复制和转录[51]。DNA损伤病灶是指细胞内DNA受到损伤后形成的特定区域,常用γ-H2A.X等标记物进行检测。本研究中,P6和P9 PEMFs中DNA损伤病灶数量和发生损伤的细胞比例均显著增加,表明存在DNA双链断裂等严重损伤,这些损伤不仅影响细胞的增殖和分化能力,还可能导致基因组不稳定性,影响细胞后期的克隆效率。通过CAG处理后,细胞中DNA损伤细胞和病灶数量均显著减少。因此,CAG不仅通过其抗氧化能力发挥冷冻保护作用,其更关键的作用在于能够稳定线粒体结构,防止肿胀和固缩,维持线粒体膜电位,从而优化细胞能量代谢并减少DNA损伤。

3.2 CAG对线粒体自噬的影响

线粒体自噬选择性清除受损或功能异常的线粒体,以维持线粒体质量和细胞稳态,是细胞质量控制的核心机制[52]。通过去除低效或损伤的线粒体,线粒体自噬能保持ATP合成效率,降低ROS水平,防止凋亡信号的触发[53]。在典型的PINK1-Parkin依赖性途径中,线粒体膜电位下降时PINK1在线粒体外膜蓄积,磷酸化并招募Parkin,其E3泛素连接酶活性介导外膜蛋白泛素化标记,随后p62/SQSTM1等受体将标记线粒体引入自噬小体,完成清除[54-55]。早期研究表明,在猪颗粒细胞中,促卵泡激素通过缺氧诱导因子-1α(HIF-1α)-PINK1-Parkin激活线粒体自噬,从而抵御缺氧损伤并保持细胞活力[56]。最近也有研究表明,当线粒体自噬被高强度或持续激活时,会清除过多线粒体,严重削减细胞的线粒体储备,导致ATP生成不足,出现能量危机,促进细胞凋亡或死亡[57-59]
在细胞冷冻和复温过程中,膜相变、冰晶形成及渗透压变化损伤线粒体膜通透性,导致电子传递链中断并伴随ROS剧增。过量ROS不仅氧化线粒体蛋白和脂质,还可引发DNA双链断裂,加剧细胞死亡风险[60]。CAG在早期研究中已被证明能够抵抗ROS过量生成,减轻线粒体膜电位丧失及细胞凋亡[61]。然而,CAG对自噬的调控呈细胞特异性:在帕金森病模型中,CAG通过促进自噬缓解神经炎症及氧化应激[41];而在哮喘小鼠模型中,CAG则通过降低LC3B蛋白表达、提高p62蛋白表达抑制自噬,减轻气道中白细胞和嗜酸性粒细胞的总数以及炎性细胞因子(白细胞介素-5、白细胞介素-13和免疫球蛋白E)的分泌[43]。本研究中,免疫荧光和免疫印迹结果显示,CAG处理后,LC3B和p62积累,提示自噬小体合成正常或增强,但后续与溶酶体融合或降解步骤受限,引发自噬流受阻[62];通过检测线粒体自噬的经典通路PINK1-Parkin蛋白的表达发现,PINK1表达下降,Parkin表达上升,但整体PINK1-Parkin通路受阻。通常情况下,该通路受阻后,受损的线粒体无法被清除,导致胞内损伤线粒体叠加,观察到线粒体密度增加和自噬体周围线粒体堆积[63]。前期试验证实,CAG显著降低了细胞的氧化应激水平,电镜下CAG组线粒体形态结构正常,嵴清晰、排列整齐,基质均匀;但是胞浆中仅有少量的自噬和较多的脂噬,脂噬主要通过降解脂滴释放游离脂肪酸供受损线粒体β-氧化,维持ATP生成并抑制ROS堆积[64],这与文献[65-67]中脂噬在线粒体自噬抑制时提供能量补偿的研究结果相符。

3.3 CAG对PEMFs p62-Keap1-Nrf2-NQO1级联反应的影响

研究表明,尽管经典自噬中p62/SQSTM1被认为并非必需因子,其基因敲除小鼠仅表现出成熟期肥胖表型[68]。最近的许多研究表明,p62在调节细胞存活、代谢稳态及应激响应中扮演核心角色[69-71]。同时,p62含有Keap1作用区域位点,当p62磷酸化后可结合并俘获Keap1,使其不能降解Nrf2,从而激活抗氧化转录因子Nrf2,增强细胞对氧化应激的防御能力[72]。已有研究报道,CAG作为Nrf2/抗氧化反应元件(ARE)通路的激活剂,可增强Nrf2核定位并上调抗氧化酶HO-1、谷胱甘肽还原酶(GSR)和GCLC的表达,有效降低过氧化氢(H2O2)诱导的ROS水平[73]。本研究中,通过分子测定结合免疫荧光染色发现,CAG显著上调了p62、Keap1、核内Nrf2和NQO1的表达。为了验证p62和Nrf2在CAG保护作用中的必要性,分别添加p62抑制剂PTX80和Nrf2抑制剂ML385后,CAG的保护作用显著减弱,这直接验证了CAG主要通过激活p62-Keap1-Nrf2-NQO1信号级联实现抗氧化保护。

3.4 CAG对PEMFs基因调控的影响

Nrf2可调节大量抗氧化和解毒酶的表达[74-75]。通过分析转录组数据,Nrf2下游的抗氧化基因SOD2、ATP结合盒亚家族C成员1(ABCC1)、PRDX1、GSRGCLMNQO1和GCLC的转录均上调;其中,极显著上调的PRDX1在早期研究中已经被证实具有防止ROS积累的作用[76]。GO富集分析结果进一步提示,差异表达基因主要富集于线粒体、溶酶体、氧化酶的调控及自噬等途径。线粒体是细胞能量工厂,其功能障碍会诱发ROS过量;而溶酶体和自噬途径则通过降解受损蛋白和细胞器维持细胞稳态,二者协同作用对细胞生存、分化和发育至关重要。自噬则通过溶酶体降解对细胞的存活、分化、发育和稳态至关重要。在抗氧化保护机制方面,CAG可显著抑制过度的线粒体自噬,通过促进p62的积累来激活Keap1-Nrf2-NQO1信号级联,进而上调抗氧化酶表达并提升细胞的抗氧化能力。KEEG富集分析结果显示,泛素介导的蛋白质水解通路中的关键基因[E2泛素连接酶S(UBE2S)和细胞因子信号抑制因子3(SOCS3)]也随CAG处理上调。研究表明,UBE2S催化K48链的延伸,将Parkin等E3泛素连接酶标记的线粒体外膜蛋白修饰成降解型多聚泛素链,促进蛋白质-蛋白酶体途径对受损线粒体蛋白质的去除[77];SOCS3介导的泛素化能够减弱内质网应激所激活的PINK1-Parkin通路,抑制线粒体过度自噬,保护细胞免于过度的线粒体丢失[78-79],这也解释了CAG处理细胞后,PINK1-Parkin通路虽然受到抑制,但胞内的线粒体功能并没有受损。叉头框蛋白O(FoxO)家族是响应氧化应激和营养信号的关键转录因子,与自噬、衰老和代谢紧密相关[80]。此外,DNA损伤应答(p53介导)及核苷酸切除修复等DNA修复通路在转录组中被显著激活,与试验中γ-H2A.X阳性细胞核DNA损伤病灶减少的表型相互验证,表明CAG对冷冻复苏引发的双链断裂具有修复促进作用。

4 结论

CAG能够显著降低PEMFs中ROS和线粒体超氧化物水平,提高线粒体膜电位,并修复DNA损伤,但这种抗冷冻损伤的作用并非通过线粒体经典自噬途径PINK1-Parkin通路,而是通过激活p62-Keap1-Nrf2-NQO1级联反应上调多种抗氧化酶的表达,从而保护细胞。

致谢

感谢西北农林科技大学动物医学院王勇胜课题组对文稿所提的宝贵意见。

[1]
COMIZZOLI P. Biobanking efforts and new advances in male fertility preservation for rare and endangered species[J]. Asian Journal of Andrology, 2015, 17(4):640-645.

DOI PMID

[2]
WAKAYAMA S, ITO D, HAYASHI E, et al. Healthy cloned offspring derived from freeze-dried somatic cells[J]. Nature Communications, 2022, 13(1):3666.

DOI PMID

[3]
LIU C Q, GUO Y, LU T F, et al. Establishment and genetic characteristics analysis of in vitro culture a fibroblast cell line derived from Wuzhishan miniature pig[J]. Cryobiology, 2014, 68(2):281-287.

DOI

[4]
LIU J, WANG L H, WANG Z G, et al. Roles of telomere biology in cell senescence,replicative and chronological ageing[J]. Cells, 2019, 8(1):54.

DOI

[5]
ASGHAR W, EL ASSAL R, SHAFIEE H, et al. Preserving human cells for regenerative,reproductive,and transfusion medicine[J]. Biotechnology Journal, 2014, 9(7):895-903.

DOI

[6]
VERCELLINO I, SAZANOV L A. The assembly,regulation and function of the mitochondrial respiratory chain[J]. Nature Reviews Molecular Cell Biology, 2022, 23(2):141-161.

DOI

[7]
FERNIE A R, CARRARI F, SWEETLOVE L J. Respiratory metabolism:glycolysis,the TCA cycle and mitochondrial electron transport[J]. Current Opinion in Plant Biology, 2004, 7(3):254-261.

DOI

[8]
ESTRADA J, LEE E, PIEDRAHITA J. Cryopreservation of donor cells for nuclear transfer:effect of cell freezing method on the efficiency of somatic cell nuclear transfer in pigs[J]. Reproduction Fertility and Development, 2006, 18(2):125-125.

[9]
LI Z C, SHI J S, LIU D W, et al. Effects of donor fibroblast cell type and transferred cloned embryo number on the efficiency of pig cloning[J]. Cellular Reprogramming, 2013, 15(1):35-42.

DOI PMID

[10]
GORCZYCA G, WARTALSKI K, WIATER J, et al. Anabolic steroids-driven regulation of porcine ovarian putative stem cells favors the onset of their neoplastic transformation[J]. International Journal of Molecular Sciences, 2021, 22(21):11800.

DOI

[11]
LI P, ESTRADA J, ZHANG F, et al. Isolation,characterization,and nuclear reprogramming of cell lines derived from porcine adult liver and fat[J]. Cellular Reprogramming, 2010, 12(5):599-607.

DOI

[12]
SKRZYSZOWSKA M, SAMIEC M, SŁOMSKI R, et al. Development of porcine transgenic nuclear-transferred embryos derived from fibroblast cells transfected by the novel technique of nucleofection or standard lipofection[J]. Theriogenology, 2008, 70(2):248-259.

DOI PMID

[13]
HIENDLEDER S. Mitochondrial DNA inheritance after SCNT[J]. Advances in Experimental Medicine and Biology, 2007, 591:103-116.

PMID

[14]
HOSSEIN M S, YU X F, SON Y B, et al. The resurrection of mabrokan:production of multiple cloned offspring from decade-old vitrified tissue collected from a deceased champion show camel[J]. Animals, 2021, 11(9):2691.

DOI

[15]
MIRANDA M D S, BRESSAN F F, ZECCHIN K G, et al. Serum-starved apoptotic fibroblasts reduce blastocyst production but enable development to term after SCNT in cattle[J]. Cloning and Stem Cells, 2009, 11(4):565-573.

DOI PMID

[16]
YOULE R J, NARENDRA D P. Mechanisms of mitophagy[J]. Nature Reviews Molecular Cell Biology, 2011, 12(1):9-14.

DOI PMID

[17]
LAMARK T, SVENNING S, JOHANSEN T. Regulation of selective autophagy:the p62/SQSTM1 paradigm[J]. Essays in Biochemistry, 2017, 61(6):609-624.

DOI

[18]
KANG C, XU Q K, MARTIN T D, et al. The DNA damage response induces inflammation and senescence by inhibiting autophagy of GATA4[J]. Science, 2015, 349(6255):aaa5612.

[19]
KOMATSU M, KUROKAWA H, WAGURI S, et al. The selective autophagy substrate p62 activates the stress responsive transcription factor Nrf2 through inactivation of Keap1[J]. Nature Cell Biology, 2010, 12(3):213-223.

DOI PMID

[20]
XIAO G Y, YUAN F, DENG Y, et al. Polymyxin B exerts nephrotoxicity effects via inhibition of the Nrf2/NQO1 pathway-mediated antioxidant response[J]. Journal of Biochemical and Molecular Toxicology, 2023, 37(6):e23344.

DOI

[21]
黄迪, 刘克辛. Nrf2信号通路在防治肝、肾损伤中的研究进展[J]. 药物评价研究, 2016, 39(3):453-458.

HUANG D, LIU K X. Research progress in role of Nrf2 singaling pathway in repair of kidney and liver injury[J]. Drug Evaluation Research, 2016, 39(3):453-458. (in Chinese)

[22]
QI J Y, YANG Y K, JIANG C, et al. Exploring the mechanism of Danshensu in the treatment of doxorubicin-induced cardiotoxicity based on network pharmacology and experimental evaluation[J]. Frontiers in Cardiovascular Medicine, 2022, 9:827975.

[23]
SONG Y, ZHU X Y, WANG B B, et al. The total extract of Abelmoschus manihot (L.) medic flowers (TEA) mediated Nrf2-TFAM signalling to regulate mitochondrial antioxidant mechanism[J]. Scientific Reports, 2025, 15(1):1614.

DOI

[24]
AGHAGOLZADEH P, RADPOUR R, BACHTLER M, et al. Hydrogen sulfide attenuates calcification of vascular smooth muscle cells via Keap1/NRF2/NQO1 activation[J]. Atherosclerosis, 2017, 265:78-86.

DOI PMID

[25]
ZUCKER S N, FINK E E, BAGATI A, et al. Nrf2 amplifies oxidative stress via induction of Klf9[J]. Molecular Cell, 2014, 53(6):916-928.

DOI PMID

[26]
LIU H N, CHEN W T, HE M Y, et al. Methyl isoeugenol suppresses NLRP3 inflammasome-mediated pyroptosis via activation of Nrf2/NQO1/HO-1 signaling in cerebral ischemia-reperfusion injury[J]. Biochemical Pharmacology, 2025, 237:116947.

[27]
DENG Z Q, LIM J, WANG Q, et al. ALS-FTLD-linked mutations of SQSTM1/p62 disrupt selective autophagy and NFE2L2/NRF2 anti-oxidative stress pathway[J]. Autophagy, 2019, 16(5):917-931.

DOI

[28]
HU S Z, YIN J Y, NI S P, et al. In vitro evaluation of the antioxidant activities of carbohydrates[J]. Bioactive Carbohydrates and Dietary Fibre, 2016, 7(2):19-27.

DOI

[29]
IMAM S S, ALSHEHRI S, ALTAMIMI M A, et al. Formulation of silymarin-β cyclodextrin-TPGS inclusion complex:physicochemical characterization,molecular docking,and cell viability assessment against breast cancer cell lines[J]. ACS Omega, 2023, 8(38):34898-34907.

DOI

[30]
AHMED H, IJAZ M U, RIAZ M, et al. Taxifolin:a flavonoid in the freezing medium augments post-thaw semen quality and in vivo fertility potential of buffalo bull spermatozoa[J]. Cryobiology, 2024, 117:104980.

[31]
ALQAWASMEH O A, ZHAO M P, CHAN C P, et al. Green tea extract as a cryoprotectant additive to preserve the motility and DNA integrity of human spermatozoa[J]. Asian Journal of Andrology, 2021, 23(2):150-156.

DOI PMID

[32]
ANSARI M S, RAKHA B A, AKHTER S, et al. Effect of glutathione on pre and post-freezing sperm quality of Indian red jungle fowl (Gallus gallus murghi)[J]. Theriogenology, 2021, 172:73-79.

DOI PMID

[33]
KLOSTERHOFF R R, BARK J M, GLÄNZEL N M, et al. Structure and intracellular antioxidant activity of pectic polysaccharide from acerola (Malpighia emarginata)[J]. International Journal of Biological Macromolecules, 2018, 106:473-480.

DOI PMID

[34]
CHEN H X, ZHANG M, QU Z S, et al. Antioxidant activities of different fractions of polysaccharide conjugates from green tea (Camellia Sinensis)[J]. Food Chemistry, 2008, 106(2):559-563.

DOI

[35]
GIORDANO M E, CARICATO R, LIONETTO M G. Concentration dependence of the antioxidant and prooxidant activity of Trolox in HeLa cells:involvement in the induction of apoptotic volume decrease[J]. Antioxidants, 2020, 9(11):1058.

DOI

[36]
SALIMI A, KHEZRI S, AMANI M, et al. Crocin and gallic acid attenuate ethanol-induced mitochondrial dysfunction via suppression of ROS formation and inhibition of mitochondrial swelling in pancreatic mitochondria[J]. Molecular and Cellular Biochemistry, 2025, 480(6):3669-3682.

DOI PMID

[37]
YU Y J, ZHOU L M, YANG Y J, et al. Cycloastragenol:an exciting novel candidate for age-associated diseases (review)[J]. Experimental and Therapeutic Medicine, 2018, 16(3):2175-2182.

[38]
YANG M H, HWANG S T, UM J Y, et al. Cycloastragenol exerts protective effects against UVB irradiation in human dermal fibroblasts and HaCaT keratinocytes[J]. Journal of Dermatological Science, 2023, 111(2):60-67.

DOI PMID

[39]
李璐, 蔡志亮, 贺翼飞, 等. 内质网应激在黄芪甲苷诱导的心肌线粒体保护中的作用[J]. 中国药理学通报, 2017, 33(6):854-858.

LI L, CAI Z L, HE Y F, et al. Role of endoplasmic reticulum stress in astragaloside Ⅳ-induced cardioprotection in H9c2 cardiac cells[J]. Chinese Pharmacological Bulletin, 2017, 33(6):854-858. (in Chinese)

[40]
IDREES M, KUMAR V, KHAN A M, et al. Cycloastragenol activation of telomerase improves β-Klotho protein level and attenuates age-related malfunctioning in ovarian tissues[J]. Mechanisms of Ageing and Development, 2023, 209:111756.

[41]
FENG L J, LO H, ZHENG J H, et al. Cycloastragenol reduces microglial NLRP3 inflammasome activation in Parkinson’s disease models by promoting autophagy and reducing Scrib-driven ROS[J]. Phytomedicine, 2024, 135:156210.

[42]
ZHU L H, LIANG Y P, YANG L, et al. Cycloastragenol induces apoptosis and protective autophagy through AMPK/ULK1/mTOR axis in human non-small cell lung cancer cell lines[J]. Journal of Integrative Medicine, 2024, 22(4):503-514.

DOI

[43]
ZHU X Y, CAO Y X, SU M Y, et al. Cycloastragenol alleviates airway inflammation in asthmatic mice by inhibiting autophagy[J]. Molecular Medicine Reports, 2021, 24(5):805.

DOI

[44]
聂佩, 顾崇怀, 乔锐, 等. 黄芪甲苷通过调控线粒体自噬抑制血管紧张素Ⅱ诱导的心肌纤维化[J/OL]. 中药药理与临床, 2025:1-16[2025-05-14].https://doi.org/10.13412/j.cnki.zyyl.20250511.005.

NIE P, GU C H, QIAO R, et al. Inhibition of angiotensin Ⅱ-induced myocardial fibrosis by astragaloside Ⅳ via regulation of mitochondrial autophagy[J/OL]. Pharmacology and Clinics of Chinese Materia, 2025:1-16[2025-05-14].https://doi.org/10.13412/j.cnki.zyyl.20250511.005. (in Chinese)

[45]
ZHOU D Z, SUN Y, DONG C X, et al. Folic acid alleviated oxidative stress-induced telomere attrition and inhibited apoptosis of neurocytes in old rats[J]. European Journal of Nutrition, 2024, 63(1):291-302.

DOI

[46]
周旗. 环黄芪醇延缓猪成纤维细胞衰老并促进体细胞核移植胚胎发育作用探究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2024.

ZHOU Q. Effects of Cycloastragenol on delaying porcine fibroblast senescence and promoting embryonic development of somatic cell nucleus transfer[D]. Master’s Thesis. Yangling: Northwest A&F University, 2024. (in Chinese)

[47]
BAUST J M, SNYDER K K, VAN BUSKIRK R G, et al. Assessment of the impact of post-thaw stress pathway modulation on cell recovery following cryopreservation in a hematopoietic progenitor cell model[J]. Cells, 2022, 11(2):278.

DOI

[48]
LEBIEDZINSKA M, KARKUCINSKA-WIECKOWSKA A, GIORGI C, et al. Oxidative stress-dependent p66Shc phosphorylation in skin fibroblasts of children with mitochondrial disorders[J]. Biochimica et Biophysica Acta:Bioenergetics, 2010, 1797(6/7):952-960.

DOI

[49]
SUSKI J M, LEBIEDZINSKA M, BONORA M, et al. Relation between mitochondrial membrane potential and ROS formation[J]. Methods in Molecular Biology, 2012, 810:183-205.

DOI PMID

[50]
BEGUM H M, SHEN K. Intracellular and microenvironmental regulation of mitochondrial membrane potential in cancer cells[J]. WIREs Mechanisms of Disease, 2023, 15(3):e1595.

DOI

[51]
CAO B J, QIN J P, PAN B, et al. Oxidative stress and oocyte cryopreservation:recent advances in mitigation strategies involving antioxidants[J]. Cells, 2022, 11(22):3573.

DOI

[52]
LU Y Y, LI Z J, ZHANG S Q, et al. Cellular mitophagy:mechanism,roles in diseases and small molecule pharmacological regulation[J]. Theranostics, 2023, 13(2):736-766.

DOI

[53]
KERR J S, ADRIAANSE B A, GREIG N H, et al. Mitophagy and Alzheimer’s disease:cellular and molecular mechanisms[J]. Trends in Neurosciences, 2017, 40(3):151-166.

DOI

[54]
PENG S Z, CHEN X H, CHEN S J, et al. Phase separation of Nur77 mediates celastrol-induced mitophagy by promoting the liquidity of p62/SQSTM1 condensates[J]. Nature Communications, 2021, 12(1):5989.

DOI

[55]
HWANG I, KIM B S, LEE H Y, et al. PA2G4/EBP1 ubiquitination by PRKN/PARKIN promotes mitophagy protecting neuron death in cerebral ischemia[J]. Autophagy, 2024, 20(2):365-379.

DOI

[56]
LI C Y, ZHOU J Q, LIU Z J, et al. FSH prevents porcine granulosa cells from hypoxia-induced apoptosis via activating mitophagy through the HIF-1α-PINK1-Parkin pathway[J]. FASEB Journal, 2020, 34(3):3631-3645.

DOI PMID

[57]
WANG S L, LONG H J, HOU L J, et al. The mitophagy pathway and its implications in human diseases[J]. Signal Transduction and Targeted Therapy, 2023, 8(1):304.

DOI PMID

[58]
XIE Q E, WANG M Y, CAO Z P, et al. Melatonin protects against excessive autophagy-induced mitochondrial and ovarian reserve function deficiency though ERK signaling pathway in Chinese hamster ovary (CHO) cells[J]. Mitochondrion, 2021, 61:44-53.

DOI

[59]
LIN J N, CHEN X Y, DU Y Y, et al. Mitophagy in cell death regulation:insights into mechanisms and disease implications[J]. Biomolecules, 2024, 14(10):1270.

DOI

[60]
LIVINGSTON M J, WANG J H, ZHOU J L, et al. Clearance of damaged mitochondria via mitophagy is important to the protective effect of ischemic preconditioning in kidneys[J]. Autophagy, 2019, 15(12):2142-2162.

DOI PMID

[61]
IKRAM M, JO M H, CHOE K, et al. Cycloastragenol,a triterpenoid saponin,regulates oxidative stress,neurotrophic dysfunctions,neuroinflammation and apoptotic cell death in neurodegenerative conditions[J]. Cells, 2021, 10(10):2719.

DOI

[62]
LIEBL M P, MEISTER S C, FREY L, et al. Robust LC3B lipidation analysis by precisely adjusting autophagic flux[J]. Scientific Reports, 2022, 12(1):79.

DOI PMID

[63]
HAN R, LIU Y T, LI S H, et al. PINK1-PRKN mediated mitophagy:differences between in vitro and in vivo models[J]. Autophagy, 2025, 19(5):1396-1405.

DOI

[64]
KHAWAR M B, ABBASI M H, RAFIQ M, et al. A decade of mighty lipophagy:what we know and what facts we need to know?[J]. Oxidative Medicine and Cellular Longevity, 2021, 2021(1):5539161.

DOI

[65]
SINGH R, KAUSHIK S, WANG Y J, et al. Autophagy regulates lipid metabolism[J]. Nature, 2009, 458(7242):1131-1135.

DOI

[66]
RAMBOLD A S, COHEN S, LIPPINCOTT-SCHWARTZ J. Fatty acid trafficking in starved cells:regulation by lipid droplet lipolysis,autophagy,and mitochondrial fusion dynamics[J]. Developmental Cell, 2015, 32(6):678-692.

DOI

[67]
KIEN B, KOLLERITSCH S, KUNOWSKA N, et al. Lipid droplet-mitochondria coupling via perilipin 5 augments respiratory capacity but is dispensable for FA oxidation[J]. Journal of Lipid Research, 2022, 63(3):100172.

DOI

[68]
KUMA A, KOMATSU M, MIZUSHIMA N. Autophagy-monitoring and autophagy-deficient mice[J]. Autophagy, 2017, 13(10):1619-1628.

DOI PMID

[69]
CHOI E J, OH H T, LEE S H, et al. Metabolic stress induces a double-positive feedback loop between AMPK and SQSTM1/p62 conferring dual activation of AMPK and NFE2L2/NRF2 to synergize antioxidant defense[J]. Autophagy, 2024, 20(11):2490-2510.

DOI

[70]
WANG X X, LI M, XU X W, et al. BNIP3-mediated mitophagy attenuates hypoxic-ischemic brain damage in neonatal rats by inhibiting ferroptosis through p62-Keap1-NRF2 pathway activation to maintain iron and redox homeostasis[J]. Acta Pharmacologica Sinica, 2025, 46(1):33-51.

DOI

[71]
SUN R L, LIU M M, XIONG F, et al. Polystyrene micro- and nanoplastics induce gastric toxicity through ROS mediated oxidative stress and p62/Keap1/Nrf2 pathway[J]. Science of the Total Environment, 2024, 912:169228.

[72]
JEONG S J, ZHANG X Y, RODRIGUEZ-VELEZ A, et al. p62/SQSTM1 and selective autophagy in cardiometabolic diseases[J]. Antioxidants & Redox Signaling, 2019, 31(6):458-471.

[73]
YILMAZ S, BEDIR E, BALLAR KIRMIZIBAYRAK P, The role of cycloastragenol at the intersection of NRF2/ARE,telomerase,and proteasome activity[J]. Free Radical Biology and Medicine, 2022, 188:105-116.

DOI

[74]
KWON J, HAN E, BUI C, et al. Assurance of mitochondrial integrity and mammalian longevity by the p62-Keap1-Nrf2-NQO1 cascade[J]. EMBO Reports, 2012, 13(2):150-156.

DOI PMID

[75]
GUREEV A P, SADOVNIKOVA I S, STARKOVA N N, et al. p62-Nrf2-p62 mitophagy regulatory loop as a target for preventive therapy of neurodegenerative diseases[J]. Brain Sciences, 2020, 10(11):847.

DOI

[76]
LI J W, WANG Q Q, CAI H X, et al. FGF1 improves functional recovery through inducing PRDX1 to regulate autophagy and anti-ROS after spinal cord injury[J]. Journal of Cellular and Molecular Medicine, 2018, 22(5):2727-2738.

DOI PMID

[77]
IORIO R, CELENZA G, PETRICCA S. Mitophagy:molecular mechanisms,new concepts on parkin activation and the emerging role of AMPK/ULK1 axis[J]. Cells, 2021, 11(1):30.

DOI

[78]
BERNARDINI J P, BROUWER J M, TAN I K, et al. Parkin inhibits BAK and BAX apoptotic function by distinct mechanisms during mitophagy[J]. The EMBO Journal, 2019, 38(2):e99916.

DOI

[79]
DELLORUSSO P V, PROVEN M A, CALERO-NIETO F J, et al. Autophagy counters inflammation-driven glycolytic impairment in aging hematopoietic stem cells[J]. Cell Stem Cell, 2024, 31(7):1020-1037.e9.

DOI PMID

[80]
GÓMEZ-PUERTO M C, VERHAGEN L P, BRAAT A K, et al. Activation of autophagy by FOXO3 regulates redox homeostasis during osteogenic differentiation[J]. Autophagy, 2016, 12(10):1804-1816.

DOI

文章导航

/