研究论文

烟酸和烟酰胺对非酯化脂肪酸诱导的奶牛肝细胞氧化应激和脂质代谢的影响

  • 马心如 ,
  • 张源洁 ,
  • 胡海涛 ,
  • 王腊梅 ,
  • 姚军虎 ,
  • 张瑞 ,
  • 张俊 ,
  • 王砀砀 ,
  • 曹阳春 , *
展开
  • 西北农林科技大学动物科技学院,咸阳 712100
* 曹阳春,教授,博士生导师,E-mail:

马心如(1999—),女,青海西宁人,硕士研究生,从事动物营养与健康养殖应用研究。E-mail:

收稿日期: 2025-06-24

  网络出版日期: 2026-01-13

基金资助

国家重点研发计划(2021YFD130)

杰出青年科学基金(2024JC-JCQN-25)

肉牛能繁母牛精准营养与高效养殖关键技术研究项目(2023BFC01036)

Effects of Niacin and Nicotinamide on Oxidative Stress and Lipid Metabolism of Hepatocytes Induced by Non-Esterified Fatty Acid of Dairy Cows

  • MA Xinru ,
  • ZHANG Yuanjie ,
  • HU Haitao ,
  • WANG Lamei ,
  • YAO Junhu ,
  • ZHANG Rui ,
  • ZHANG Jun ,
  • WANG Dangdang ,
  • CAO Yangchun , *
Expand
  • College of Animal Science and Technology, Northwest A&F University, Xianyang 712100, China
* associate professor, E-mail:

Received date: 2025-06-24

  Online published: 2026-01-13

摘要

本研究通过体外细胞模型探究烟酸(NA)和烟酰胺(NAM)对非酯化脂肪酸(NEFA)诱导的奶牛肝细胞氧化应激和脂质代谢的影响。试验通过不同浓度NEFA(0、0.4、0.8、1.2、1.6、2.0 mmol/L)处理奶牛肝细胞12 h,筛选出构建围产期能量负平衡(NEB)模型的最适NEFA浓度。在最适NEFA浓度构建的NEB模型的基础上,分别添加0、0.5、1.0、2.0、4.0、8.0 mmol/L的NA以及0、3、6、9、12、15 mmol/L的NAM,每个浓度设3个重复,处理12 h。结果表明:1)与未添加NEFA组相比,1.2 mmol/L NEFA组肝细胞内甘油三酯(TG)含量极显著升高(P<0.01),培养液中乳酸脱氢酶(LDH)活性显著上升(P<0.05),细胞活力显著降低(P<0.05)。因此,1.2 mmol/L NEFA为构建NEB模型的最适浓度。2)与未添加NA或NAM相比,添加1 mmol/L NA或9 mmol/L NAM可显著或极显著降低培养液中LDH活性和肝细胞内丙二醛(MDA)含量(P<0.05或P<0.01),显著或极显著提升肝细胞内谷胱甘肽(glutathione GSH)含量(P<0.05或P<0.01);添加1 mmol/L NA或10 mmol/L NAM可极显著增加提升细胞活力(P<0.01)。因此,1 mmol/L NA或10 mmol/L NAM为最佳处理浓度。3)与NEFA相比,NA、NAM的添加极显著升高了肝细胞内GSH含量(P<0.01);与NA相比,NAM的添加显著升高了肝细胞内GSH含量(P<0.05)。与NEFA相比,NA和NAM的添加极显著降低了肝细胞内MDA含量(P<0.01);与NAM相比,NA的添加显著降低了奶牛肝细胞内MDA含量(P<0.05)。与NEFA相比,NA的添加极显著升高了奶牛肝细胞内G蛋白偶联受体109A(GPR109A)、脂肪酸去饱和酶2(FADS2)、肉毒碱棕榈酰基转移酶1(CPT1)、过氧化物酶体增殖受体γ辅激活因子-1α(PGC-1α)、过氧化物酶体增殖物激活受体α(PPARα)的mRNA相对表达水平(P<0.01);与NA相比,NAM的添加显著或极显著降低了奶牛肝细胞内GPR109AFADS2、CPT1、PGC-1αPPARα的mRNA相对表达水平(P<0.05或P<0.01)。与NEFA相比,NA的添加极显著降低了奶牛肝细胞内二酰基甘油酰基转移酶2(DGAT2)、脂肪酸合成酶(FASN)、沉默信息调节因子1(SIRT1)的mRNA相对表达水平(P<0.01);与NA相比,NAM的添加极显著升高了奶牛肝细胞内DGAT2、FASNSIRT1的mRNA相对表达水平(P<0.01)。由此可见,NA和NAM均能有效缓解NEFA诱导的奶牛肝细胞脂质沉积,但NA在综合调控脂质代谢、减轻氧化损伤及提升细胞功能方面更具潜力。

本文引用格式

马心如 , 张源洁 , 胡海涛 , 王腊梅 , 姚军虎 , 张瑞 , 张俊 , 王砀砀 , 曹阳春 . 烟酸和烟酰胺对非酯化脂肪酸诱导的奶牛肝细胞氧化应激和脂质代谢的影响[J]. 动物营养学报, 2026 , 38(1) : 667 -681 . DOI: 10.12418/CJAN2026.051

Abstract

This study was conducted to investigate the effects of niacin (NA) and nicotinamide (NAM) on oxidative stress and lipid metabolism of hepatocytes induced by non-esterified fatty (NEFA) acid of dairy cows through an in vitro cell model. The experiment treated hepatocytes of dairy cows with different concentrations of NEFA (0, 0.4, 0.8, 1.2, 1.6, 2.0 mmol/L) for 12 h, to select the optimal NEFA concentration for constructing a negative energy balance (NEB) model during the perinatal period. Based on the NEB model constructed at the optimal NEFA concentration, added NA at concentrations of 0, 0.5, 1.0, 2.0, 4.0 and 8.0 mmol/L, as well as NAM at concentrations of 0, 3, 6, 9, 12 and 15 mmol/L, respectively, each concentration set 3 replicates and treated for 12 h. The results showed as follows: 1) compared with the no added NEFA group, the hepatocytes triglyceride (TG) content of 1.2 mmol/L NEFA group was extremely significantly increased (P<0.01), the culture medium lactate dehydrogenase (LDH) activity was significantly increased (P<0.05), and the cell viability was significantly decreased (P<0.05). Therefore, 1.2 mmol/L NEFA was the optimal concentration for constructing the NEB model. 2) Compared with the no added NA or NAM, added 1 mmol/L NA or 9 mmol/L NAM significantly or extremely significantly decreased the activity of LDH in culture medium and content of malondialdehyde (MDA) in hepatocytes (P<0.05 or P<0.01), significantly or extremely significantly increased the content of glutathione (GSH) in hepatocytes (P<0.05 or P<0.01); added 1 mmol/L NA or 10 mmol/L NAM significantly or extremely significantly increased the cell viability (P<0.01). Therefore, 1 mmol/L NA or 10 mmol/L NAM were the optimal treated concentration. 3) Compared with the NEFA, added NA and NAM extremely significantly increased the content of GSH in hepatocytes (P<0.01); compared with the NA, added NAM significantly increased the content of GSH in hepatocytes (P<0.05). Compared with the NEFA, added NA and NAM extremely significantly decreased the content of MDA in hepatocytes (P<0.01); compared with the NAM, added NA significantly decreased the content of MDA in hepatocytes (P<0.05). Compared with the NEFA, added NA extremely significantly increased the mRNA relative expression level of G protein coupled receptor 109A (GPR109A), fatty acid desaturase 2 (FADS2), carnitine palmitoyltransferase 1 (CPT1), peroxisome proliferator-activated receptor γ coactivator-1α (PGC-1α) and peroxisome proliferator activated receptor α (PPARα) in hepatocytes (P<0.01); compared with the NA, added NAM significantly or extremely significantly decreased the mRNA relative expression level of GPR109A, fFADS2, CPT1, PGC-1α and PPARα in hepatocytes (P<0.05 or P<0.01). Compared with the NEFA, added NA extremely significantly decreased the mRNA relative expression level of diacylglycerol acyltransferase 2 (DGAT2), fatty acid synthase (FASN) and sirtuin 1 (SIRT1) in hepatocytes (P<0.01); compared with the NA, added NAM extremely significantly increased the mRNA relative expression level of DGAT2, FASN and SIRT1 in hepatocytes (P<0.01). In conclusion, both NA and NAM can effectively alleviate lipid deposition in hepatocytes of dairy cows induced by NEFA, but NA has greater potential in comprehensive regulation of lipid metabolism, reduction of oxidative damage and enhancement of cell function.

自2020年以来,我国奶牛产奶量延续着高速增长的态势,奶源自给率持续提升。奶牛产奶量的不断增加,导致其繁殖率下降、产犊间隔延长和营养代谢疾病等问题日趋严重[1]。在奶牛的围产期,由于饲料摄入的减少和代谢需求的增加,奶牛常常面临能量负平衡(negative energy balance,NEB)问题[2]。NEB会导致体内非酯化脂肪酸(non-esterified fatty acid,NEFA)浓度升高,进而影响肝脏的脂质代谢,增加脂肪肝等疾病的风险[3]。同时还会导致氧化应激、蛋白质代谢失衡、免疫炎症等[4],进而影响奶牛的产奶性能、生殖能力以及机体的免疫力等,造成严重的经济损失[5]。肝脏作为脂质代谢的关键器官,在调节奶牛的能量平衡和脂质代谢中发挥着至关重要的作用。因此,改善肝脏的脂质代谢对于维护围产期奶牛的健康至关重要。
烟酸(niacin,NA)及其衍生物烟酰胺(niacinamide,NAM)是水溶性维生素B3的2种活性形式,又称维生素PP,在调节能量代谢和脂质代谢中扮演着重要角色,不仅可以减少肝脏脂质沉积,降低脂肪肝和酮病的发病率,同时还能缓解奶牛热应激等其他方面的疾病[6]。Shi等[7]通过饲喂高碳水化合物饮食,发现添加NAM通过介导沉默信息调节因子1(sirtuin 1,SIRT1)的转录和脂质代谢有关的基因,以及刺激葡萄糖运输、糖原和脂肪酸氧化发生,抑制脂肪生成。有研究表明,补充NA或NAM后,绵羊血液中仅存在NAM[8]。所以NA、NAM摄入消化后可能在小肠和肝脏中以扩散方式被吸收后与蛋白质结合转化生成烟酰胺腺嘌呤二核苷酸(nicotinamide adenine dinucleotide,NAD,辅酶Ⅰ)和烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate,NADP,辅酶Ⅱ),然后被切割成NAM,进入血液中,在肝脏外组织再形成含有NA的辅酶;但是在瘤胃中NAM可以转化为NA被瘤胃壁吸收利用,其吸收浓度随NA额外添加量的增加而升高;最后机体内多余的NA、NAM以尿液或汗液的形式排出[9-11]
瘤胃微生物的合成途径也是NA、NAM的主要来源之一,但是瘤胃中存在大量原虫,原虫自身无法合成NA和NAM,只能吸取外部游离的NA、NAM为其生长繁殖提供营养,有学者认为添加NA会抑制瘤胃中乳酸的合成,调节瘤胃pH环境,改变瘤胃微生物蛋白的组成,使原虫数量增加,提高饲喂高精料饲粮时的纤维消化率[12]。但这也使得到达反刍动物肠道的NA、NAM变得更少,为了提高两者的生物利用率,会选择过瘤胃NA、NAM作为饲料添加剂[13]。除此之外,近些年来还采用皱胃灌注等技术为反刍动物补充NA、NAM,达到防止NA、NAM被瘤胃微生物降解的目的[14]
还有学者探究NA对我国杂交育肥阉牛胴体性状、血液代谢物和脂肪沉积的影响,发现NA在改变牛脂质代谢中起重要作用[15]。围产期奶牛体内NA、NAM浓度的升高可以显著降低血浆中NEFA浓度,进而减少肝脏甘油三酯(triglyceride,TG)的沉积[14]。除此之外,NA和NAM作为能量代谢辅酶重要前体物参与调控能量代谢等相关途径。相对于反刍动物庞大的营养需求,NA、NAM这类营养素仅靠自身合成是无法满足的,大部分来源于饲料补充。Morey等[14]报道,在围产期奶牛基础饲粮中添加24 g/d过瘤胃NA,降低了奶牛产后血浆中NEFA浓度。较高的NEFA浓度极有可能伴随着酮病和脂肪肝的发生,是酮病和脂肪肝的重要指示因子。围产期奶牛脂肪堆积引发更高水平的活性氧(reactive oxygen species,ROS),导致抗氧化系统失去平衡,从而导致氧化应激[16]。补充膳食NA可以有效促进氧化应激指标的正常恢复,因为NA、NAM作为氧化代谢酶辅酶的前体,对于激活酶发挥作用是必要的[17]。魏筱诗等[9]研究发现,加NAM会改变不饱和脂肪酸的生物合成代谢以及改善谷胱甘肽(glutathione,GSH)代谢,表明NAM对氧化应激具有缓解作用[18]
大量研究证明了NA、NAM作为2种相似的营养素,在脂肪代谢方面发挥重要作用,其营养调控机制也受到广泛关注,然而二者缓解肝脏脂质沉积能力的差异还不够明晰,需要进一步探究。因此,本研究利用NEFA处理奶牛肝脏细胞,建立围产期奶牛脂肪肝模型,通过评估不同浓度NEFA对奶牛肝细胞脂质代谢的影响,筛选出最佳NEFA浓度;在脂肪肝模型上探究不同浓度NA和NAM对NEFA诱导的奶牛肝细胞脂质沉积、氧化应激和细胞损伤的影响;比较最佳NA和NAM浓度在降低TG含量、调节氧化应激相关指标和脂质代谢相关基因表达能力方面的差异,进而筛选出更有效的添加剂。本研究以期为深入理解NEFA、NA和NAM在奶牛肝细胞脂质代谢中的作用提供重要信息,为开发更加高效的营养添加剂提供理论支持,为围产期奶牛的营养管理和健康状况提供新的视角。

1 材料与方法

1.1 试验材料

胎牛血清(FBS)购自美国Gibco Life Sciences公司,牛血清白蛋白(BSA)购自上海北诺生物科技有限公司,磷酸盐缓冲液(PBS)购自北京沃比森科技有限公司,青霉素-链霉素购自美国Gibco Life Sciences公司,DMEM高糖培养基购自美国Gibco Life Sciences公司产品,胰蛋白酶购自美国Gibco Life Sciences公司,NA购自美国Sigma-Aldrich公司,NAM购自美国Sigma-Aldrich公司。

1.2 试剂组成及配制

NEFA母液:参考史晓霞[19]描述的方法配制。
完全培养基:90% DMEM高糖培养基+10% FBS+1%双抗。
饥饿培养基:90% DMEM高糖培养基+1%双抗。
处理培养基:在添加了NEFA的完全培养基基础上添加3.6%的BSA。
NEFA梯度培养基:根据计算,向完全培养基中加入不同体积的NEFA母液,使培养基中NEFA的终浓度分别0(空白对照,不加NEFA母液)、0.4、0.8、1.2、1.6、2.0 mmol/L。施加处理前配制,现用现配[20]
NA母液:称取0.6155 g的NA溶于50 mL超纯水中搅拌至液体澄清,在无菌操作台用0.45 μm的无菌过滤器和针头进行过滤、分装,最终所得溶液即为100 mmol/L NA母液(储备液),于-4 ℃保存,有效期3个月。
NAM母液:称取6.106 0 g的NAM溶于50 mL超纯水中搅拌至液体澄清,在无菌操作台用0.45 μm的无菌过滤器和针头进行过滤、分装,最终所得溶液即为1 000 mmol/L NAM母液(储备液),于-4 ℃保存备用。
NA梯度培养基:根据计算,向处理培养基中加入不同体积的NA母液,使培养基中NA的终浓度分别0(空白对照,不加NEFA母液)、0.5、1.0、2.0、4.0、8.0 mmol/L。施加处理前配制,现用现配。
NAM梯度培养基:根据计算,向处理培养基中加入不同体积的NAM母液,使培养基中NAM的终浓度分别0(空白对照,不加NEFA母液)、3、6、9、12、15 mmol/L。施加处理前配制,现用现配。

1.3 奶牛原代肝细胞分离培养

采用三步灌流法进行细胞分离。首先,从奶牛场采集1只1日龄健康犊牛的肝脏尾状突,迅速装进提前准备好的无菌烧杯中,用50 mL无菌注射器插入门静脉灌流提前4 ℃预冷的灌流液A进行第1步灌流,保持灌流速度在50 mL/min,灌注约500 mL后,将肝脏组织整体浸入到灌流液A[无菌过滤]的无菌容器中,放入冷藏箱中,并快速转移至实验室。进入无菌操作台,将肝组织置于无菌托盘中,用37 ℃预温好的灌流液B(含140 mmol/L NaCl、6.7 mmol/L KCl、2.5 mmol/L葡萄糖、30 mmol/L HEPES、5 mmol/L CaCl2,pH 7.4,无菌过滤)进行第2步灌流,灌流约3 min至流出的液体变清澈;接着用37 ℃预温好的含有Ⅳ型胶原酶的灌流液C进行第3步消化灌流,灌流速度保持在50 mL/min,保证消化充分,待流出液体变浑浊后,立即停止灌流,将肝脏组织置于培养皿中快速剪碎。然后,用血清终止消化,用细胞筛(80和200目)进行过滤,倒入离心管,加入无血清的1640基础培养基,4 ℃、50×g离心2 min,离心2次。最后,加入贴壁培养基进行重悬,接入6孔板中,调整细胞密度为1.5×10⁶个/mL,置入37 ℃,含5% CO2的恒温培养箱中,贴壁培养4 h后,换液,用生长培养基进行培养,每24 h更换1次培养基。

1.4 试验设计与试验方法

奶牛肝细胞系由西北农林科技大学动物医学院动物营养代谢病研究组提供,将奶牛肝细胞复苏在完全培养基中培养72 h,用饥饿培养基对细胞进行饥饿处理6 h后,换液完全培养基添加不同浓度(0、0.4、0.8、1.2、1.6、2.0 mmol/L)NEFA,每个浓度设3个重复,处理12 h。检测TG含量、氧化应激指标、细胞增殖和毒性等指标。此外,添加不同浓度(0、0.3、0.6、0.9、1.2、1.5、1.8、2.1、2.4、2.7 mmol/L)NEFA,测定细胞活力。
通过上述试验结果选择添加最佳浓度NEFA处理模拟奶牛围产期肝细胞细胞状态,用饥饿培养基对细胞进行饥饿处理6 h后,换处理培养基并添加0、0.5、1.0、2.0、4.0、8.0 mmol/L的NA,0、3、6、9、12、15 mmol/L的NAM,每个浓度设3个重复,处理12 h。检测TG含量、氧化应激指标及乳酸脱氢酶(lactate dehydrogenase,LDH)活性等。此外,添加不同浓度(0、0.6、0.8、1.0、1.2、1.4、1.6、1.8、2.0、2.2 mmol/L)NA和不同浓度(0、2、4、6、8、10、12、14、16、18 mmol/L)NAM,测定细胞活力。
在得到NA和NAM的最佳浓度后,为比较相关脂质代谢指标筛选更有效果的营养素,用饥饿培养基对细胞进行饥饿处理6 h后,换处理培养基处理12 h,每组设3个重复,检测TG含量、氧化应激相关指标、脂质代谢相关基因表达等指标。

1.5 指标测定

1.5.1 细胞裂解液中指标检测

细胞中TG和总蛋白(total protein,TP)含量的测定采用北京普利莱基因技术有限公司试剂盒测定,GSH和丙二醛(malondialdehyde,MDA)含量的测定采用南京建成生物工程研究所试剂盒测定,均参照其说明书方法进行操作。

1.5.2 细胞培养液中LDH活性及NAD和NADP含量检测

细胞培养液中LDH活性测定采用南京建成生物工程研究所试剂盒,NAD和NADP含量测定采用北京普利莱基因技术有限公司试剂盒,均参照其说明书方法进行操作。

1.5.3 细胞活力检测

使用CCK-8法测定细胞活力,试剂盒购于美国Zeta Life公司,具体操作步骤参照其说明书。

1.5.4 实时荧光定量PCR(RT-qPCR)检测相关基因表达量

采用南京诺唯赞生物技术有限公司ChamQ Universal SYBR qPCR Master Mix通用型PCR试剂盒,根据说明书进行RT-qPCR,扩增反应体系如下:5.0 μL的12×SYBR® Green Pro Taq HS Premix,0.2 μL的上游引物(10 μmol/L),0.2 μL的下游引物(10 μmol/L),4.6 μL的cDNA。反应条件采用两步法:首先95 ℃预变性30 s,随后进行40个循环的95 ℃变性5 s和60 ℃退火延伸30 s;熔解曲线测定条件为95 ℃ 10 s,65 ℃ 60 s。管家基因选择β-肌动蛋白(β-actin),目的基因包括肉毒碱棕榈酰基转移酶1A(CPT1)、SIRT1、过氧化物酶体增殖物激活受体α(PPARα)、G蛋白偶联受体109A(GPR109A)、脂肪酸去饱和酶2(FADS2)、二酰基甘油酰基转移酶2(DGAT2)、过氧化物酶体增殖受体γ辅激活因子-1α(PGC-1α)和脂肪酸合成酶(FASN),通过NormFinder软件分析其表达稳定性,剔除变异系数(CV)>15%的基因,数据归一化方法ΔΔCt法,对目标基因和内参基因分别制作标准曲线,计算拷贝数比值。引物序列在NCBI(https://www.ncbi.nlm.nih.gov/)设计,引物合成由上海生工生物工程有限公司完成,引物序列见表1
表1 引物序列

Table 1 Primer sequence

基因
Genes
引物序列
Primer sequence(5'—3')
产物大小
Ptoduct size/bp
肉毒碱棕榈酰基转移酶1A
CPT1
F:GGAATCTGTGAAGCCTCTTATGAA
R:GCCTGGATGTGAGTCGGTAT
246
沉默信息调节因子1
SIRT1
F:CAGCTAGACTTGCAAAGGAGC
R:CTGCCGCAAGAACTAGAGGA
145
过氧化物酶体增殖物激活受体α
PPARα
F:GCGGATCTCAAGTCTCTGGC
R:TCTTCTCGGCCATACACAGC
157
G蛋白偶联受体109A
GPR109A
F:AGATTTAGGGCATCGGTGTG
R:CAAGTCTCAGGCAGGTGACA
233
脂肪酸去饱和酶2
FADS2
F:GGTCATCGATCGCAAGGTCT
R:ACAGGTTCATGTCCTCAGCG
266
二酰基甘油酰基转移酶2
DGAT2
F:CACCGATTGCTGGCTCATTG
R:AGTTTCGGACCCACTGTGAC
101
过氧化物酶体增殖受体γ辅激活因子-1α
PGC-1α
F:GACAGCTCCACCAACATCCA
R:TCCCTGCTTGCACATCTCTC
135
脂肪酸合成酶
FASN
F:ACAGCCTCTTCCTGTTTGACG
R:CTCTGCACGATCAGCTCGAC
226

1.6 数据统计分析

使用GraphPad Prism 8.0.1软件采用单因素方差分析对指标检测结果、基因表达量进行统计学分析。P<0.01表示差异极显著,P<0.05表示差异显著,P>0.05表示无显著差异。

2 结果与分析

2.1 不同浓度NEFA对奶牛肝细胞TG沉积、培养液中LDH活性及细胞活力的影响
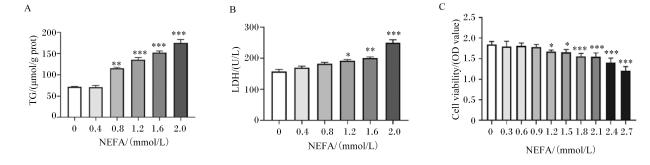
图1-A所示,随着NEFA浓度增大,奶牛肝细胞内TG含量逐渐升高,与未添加NEFA组相比,0.8、1.2、1.6、2.0 mmol/L NEFA组奶牛肝细胞内TG含量极显著升高(P<0.01)。如图1-B所示,随着NEFA浓度增大,奶牛肝细胞培养液中LDH活性逐渐升高,与未添加NEFA组相比,1.2 mmol/L NEFA组奶牛肝细胞培养液中LDH活性显著升高(P<0.05),1.6、2.0 mmol/L NEFA组奶牛肝细胞培养液中LDH活性极显著升高(P<0.01)。如图1-C所示,随着NEFA浓度增大,奶牛肝细胞活力逐渐降低,与未添加NEFA组相比,1.2、1.5 mmol/L NEFA组奶牛肝细胞活力显著降低(P<0.05),1.8、2.1、2.4、2.7 mmol/L NEFA组奶牛肝细胞活力极显著降低(P<0.01)。综合上述试验结果,结合奶牛围产期NEB状态,本试验选择1.2 mmol/L NEFA构建NEB奶牛肝细胞模型,因为在此浓度发现奶牛肝细胞脂质沉积较多,细胞数量及质量也满足后续试验的指标检测。
图1 不同浓度NEFA对奶牛肝细胞TG含量、培养液中LDH活性及细胞活力的影响

*表示差异显著(P<0.05),**和***表示差异极显著(P<0.01)。下图同。* indicated significant difference (P<0.05), ** and *** indicated extremely significant difference (P<0.01). The same as below.

NEFA:非酯化脂肪酸 non-esterified fatty acid;TG:甘油三酯 triglyceride;LDH:乳酸脱氢酶 lactate dehydrogenase;Cell viability:细胞活力;OD value:光密度值 optical density value。

Fig.1 Effects of different concentrations of NEFA on hepatocytes TG content, culture medium LDH activity and cell viability of dairy cows

2.2 不同浓度NA、NAM对奶牛肝细胞TG沉积的影响

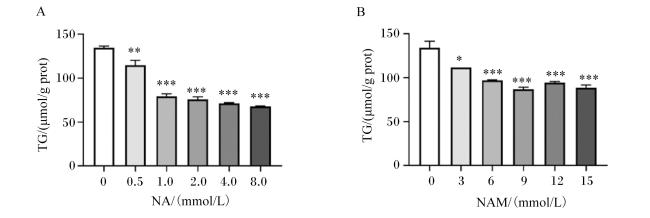
图2-A所示,在1.2 mmol/L NEFA构建的NEB奶牛肝细胞模型的基础上,随着NA浓度增大,奶牛肝细胞内TG含量逐渐降低,与未添加NA组相比,0.5、1.0、2.0、4.0、8.0 mmol/L NA组奶牛肝细胞内TG含量极显著降低(P<0.01)。如图2-B所示,与未添加NAM组相比,3 mmol/L NAM组奶牛肝细胞内TG含量显著降低(P<0.05),6、9、12、15 mmol/L NAM组奶牛肝细胞内TG含量极显著降低(P<0.01)。
图2 不同浓度NA、NAM对奶牛肝细胞内TG沉积影响

NA:烟酸 niacin;NAM:烟酰胺 niacinamide;TG:甘油三酯 triglyceride。

Fig.2 Effects of different concentrations of NA and NAM on hepatocytes TG deposition of dairy cows

2.3 不同浓度NA、NAM对奶牛肝细胞培养液中LDH活性的影响

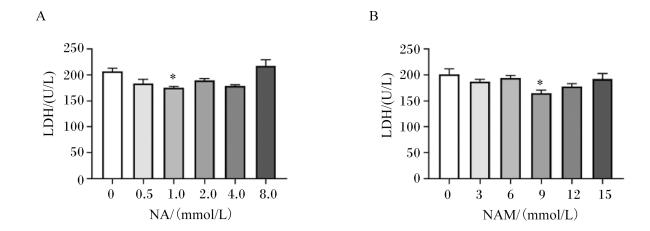
图3-A所示,在1.2 mmol/L NEFA构建的NEB奶牛肝细胞模型的基础上,与未添加NA组相比,1 mmol/L NA组奶牛肝细胞培养液中LDH活性显著降低(P<0.05),其余各组奶牛肝细胞培养液中LDH活性无显著差异(P>0.05);与未添加NAM组相比,9 mmol/L NAM组奶牛肝细胞培养液中LDH活性显著降低(P<0.05),其余各组奶牛肝细胞培养液中LDH活性无显著差异(P>0.05)。
图3 不同浓度NA、NAM对奶牛肝细胞培养液中LDH活性的影响

NA:烟酸 niacin;NAM:烟酰胺 niacinamide;LDH:乳酸脱氢酶 lactate dehydrogenase。

Fig.3 Effects of different concentrations of NA and NAM on hepatocytes culture medium LDH activity of dairy cows

2.4 不同浓度NA、NAM对奶牛肝细胞氧化应激指标的影响

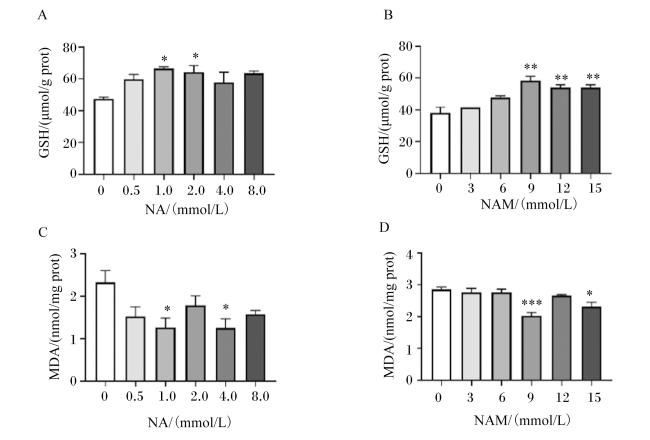
图4-A图4-B所示,在1.2 mmol/L NEFA构建的NEB奶牛肝细胞模型的基础上,与未添加NA组相比,1.0和2.0 mmol/L NA组奶牛肝细胞内GSH含量显著升高(P<0.05),0.5、4.0和8.0 mmol/L NA组奶牛肝细胞GSH含量差异不显著(P>0.05);随着NAM浓度增大,奶牛肝细胞内GSH含量先升高再降低,与未添加NAM组相比,3和6 mmol/L NAM组奶牛肝细胞内GSH含量差异不显著(P>0.05),9、12、15 mmol/L NAM组奶牛肝细胞内GSH含量极显著升高(P<0.01)。如图4-C图4-D所示,与未添加NA组相比,0.5、2.0和8.0 mmol/L NA组奶牛肝细胞内MDA含量差异不显著(P>0.05),1.0和4.0 mmol/L NA组奶牛肝细胞内MDA含量显著降低(P<0.05);与未添加NAM组相比,3、6和12 mmol/L NAM组奶牛肝细胞内MDA含量差异不显著(P>0.05),9 mmol/L NAM组奶牛肝细胞内MDA含量极显著降低(P<0.01),15 mmol/L NAM组奶牛肝细胞内MDA含量显著降低(P<0.05)。
图4 不同浓度NA、NAM对奶牛肝细胞氧化应激指标的影响

NA:烟酸 niacin;NAM:烟酰胺 niacinamide;GSH:谷胱甘肽 glutathione;MDA:丙二醛 malondialdehyde。

Fig.4 Effects of different concentrations of NA and NAM on hepatocytes oxidative stress indexes of dairy cows

2.5 不同浓度NA、NAM对奶牛肝细胞活力的影响

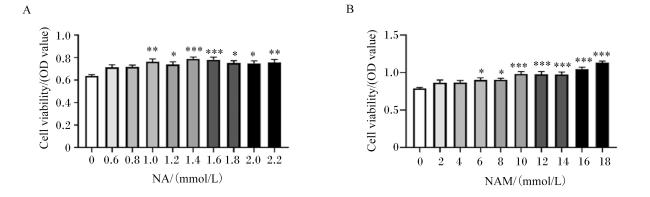
图5-A图5-B所示,与未添加NA组相比,1.0、1.4、1.6和2.0 mmol/L NA组奶牛肝细胞活力极显著增加(P<0.01),1.2、1.8和2.0 mmol/L NA组奶牛肝细胞活力显著增加(P<0.05);与未添加NAM组相比,6、8 mmol/L NAM组奶牛肝细胞活力显著增加(P<0.05),10、12、14、16和18 mmol/L NAM组奶牛肝细胞活力极显著增加(P<0.01)。
图5 不同浓度NA、NAM对奶牛肝细胞活力的影响

NA:烟酸 niacin;NAM:烟酰胺 niacinamide;Cell viability:细胞活力;OD value:光密度值 optical density value。

Fig.5 Effects of different concentrations of NA and NAM on hepatocytes viability of dairy cows

2.6 不同浓度NA、NAM对奶牛肝细胞脂质代谢关键基因表达的影响

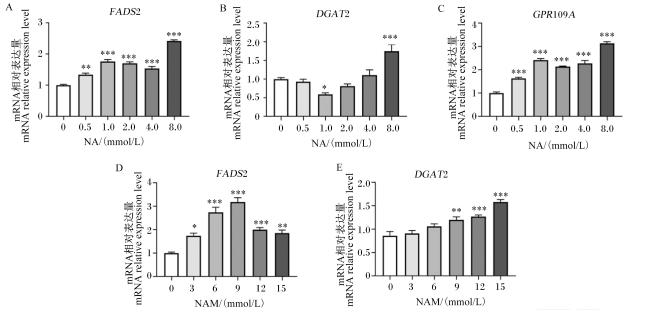
图6-A图6-B图6-C所示,与未添加NA组相比,0.5、1.0、2.0、4.0和8.0 mmol/L NA组FADS2的mRNA相对表达水平极显著升高(P<0.01);1.0 mmol/L NA组DGAT2的mRNA相对表达水平显著降低(P<0.05),8.0 mmol/L NA组DGAT2的mRNA相对表达水平极显著升高(P<0.01);0.5、1.0、2.0、4.0和8.0 mmol/L NA组GPR109A的mRNA相对表达水平极显著升高(P<0.01)。如图6-D图6-E所示,与未添加NAM组相比,3 mmol/L NAM组FADS2的mRNA相对表达水平显著增加(P<0.05),6、9、12和15 mmol/L NAM组FADS2的mRNA相对表达水平极显著增加(P<0.01);9、12和15 mmol/L NAM组DGAT2的mRNA相对表达水平极显著增加(P<0.01)。
图6 不同浓度NA、NAM对奶牛肝细胞脂质代谢关键基因表达的影响

NA:烟酸 niacin;NAM:烟酰胺 niacinamide;FADS2:脂肪酸去饱和酶2 fatty acid desaturase 2;DGAT2:二酰基甘油酰基转移酶2 diacylglycerol acyltransferase 2;GPR109A:G蛋白偶联受体109A G protein coupled receptor 109A。

Fig.6 Effects of different concentrations of NA and NAM on expression of lipid metabolism key genes in hepatocytes of dairy cows

2.7 最适浓度NA、NAM对奶牛肝细胞TG沉积的影响

因为NA、NAM最佳浓度的筛选需要满足:1)细胞TG含量减少;2)改善细胞氧化应激状态;3)细胞活力升高,数量较多方便后期试验进行;4)肝细胞脂质代谢关键基因发挥显著作用。综上所述,NA选择1 mmol/L作为最佳处理浓度,NAM选择10 mmol/L作为最佳处理浓度。
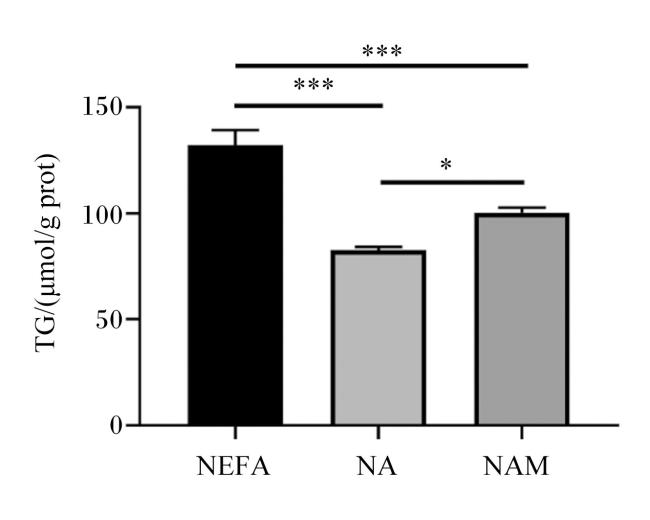
图7所示,与NEFA相比,NA、NAM的添加极显著降低了奶牛肝细胞内TG含量(P<0.01);与NAM相比,NA的添加显著降低了奶牛肝细胞内TG含量(P<0.05)。
图7 比较NA、NAM对奶牛肝细胞TG沉积的影响

NEFA:非酯化脂肪酸 non-esterified fatty acid;NA:烟酸 niacin;NAM:烟酰胺 niacinamide;TG:甘油三酯 triglyceride。

Fig.7 Comparison of effects of NA and NAM on TG deposition in hepatocytes of dairy cows

2.8 最适浓度NA、NAM对奶牛肝细胞培养液中LDH活性的影响

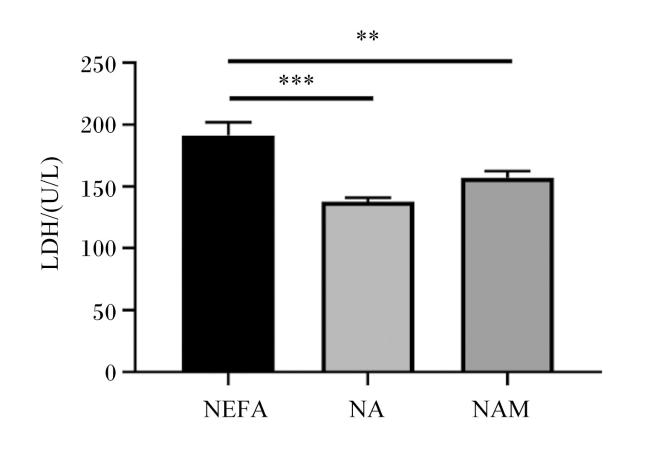
图8所示,与NEFA相比,NA、NAM的添加极显著降低了奶牛肝细胞培养液中LDH活性(P<0.01);与NAM相比,NA的添加有降低奶牛肝细胞培养液中LDH活性的趋势,但无显著差异(P>0.05)。
图8 比较NA、NAM对奶牛肝细胞培养液中LDH活性的影响

NEFA:非酯化脂肪酸 non-esterified fatty acid;NA:烟酸 niacin;NAM:烟酰胺 niacinamide;LDH:乳酸脱氢酶 lactate dehydrogenase。

Fig.8 Comparison of effects of NA and NAM on LDH activity in hepatocytes culture medium of dairy cows

2.9 最适浓度NA、NAM对奶牛肝细胞氧化应激指标的影响

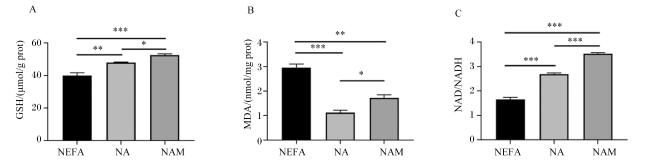
图9-A所示,与NEFA相比,NA、NAM的添加极显著升高了奶牛肝细胞内GSH含量(P<0.01);与NA相比,NAM的添加显著升高了奶牛肝细胞内GSH含量(P<0.05)。如图9-B所示,与NEFA相比,NA和NAM的添加极显著降低了奶牛肝细胞内MDA含量(P<0.01);与NAM相比,NA的添加显著降低了奶牛肝细胞内MDA含量(P<0.05)。如图9-C所示,与NEFA相比,NA、NAM的添加极显著升高了奶牛肝细胞内NAD/NADP(P<0.01);与NA相比,NAM的添加极显著升高了奶牛肝细胞内NAD/NADP(P<0.01)。
图9 比较NA、NAM对奶牛肝细胞氧化应激指标的影响

NA:烟酸 niacin;NAM:烟酰胺 niacinamide;GSH:谷胱甘肽 glutathione;MDA:丙二醛 malondialdehyde;NAD:烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide;NADP:烟酰胺腺嘌呤二核苷酸磷酸 nicotinamide adenine dinucleotide phosphate。

Fig.9 Comparison of effects of NA and NAM on oxidative stress indexes in hepatocytes of dairy cows

2.10 最适浓度NA、NAM对奶牛肝细胞脂质代谢关键基因表达的影响

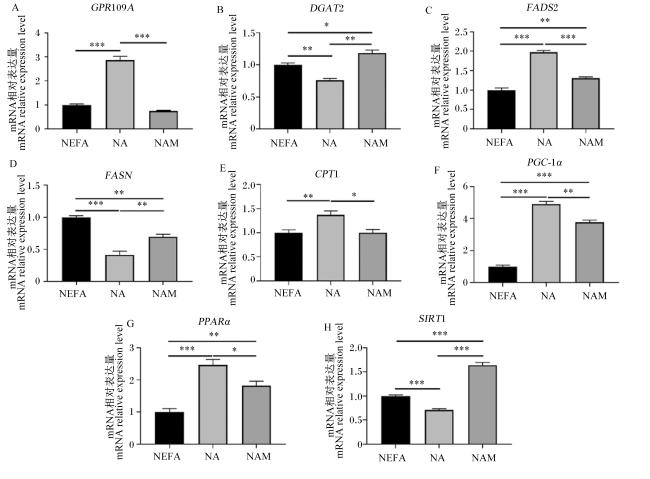
图10-A图10-H所示,与NEFA相比,NA的添加极显著升高了奶牛肝细胞内GPR109AFADS2、CPT1、PGC-1αPPARα的mRNA相对表达水平(P<0.01),NAM的添加极显著升高了奶牛肝细胞内FADS2、PGC-1αPPARα的mRNA相对表达水平(P<0.01);与NA相比,NAM的添加显著或极显著降低了奶牛肝细胞内GPR109AFADS2、CPT1、PGC-1αPPARα的mRNA相对表达水平(P<0.05或P<0.01)。与NEFA相比,NA的添加极显著降低了奶牛肝细胞内DGAT2、FASNSIRT1的mRNA相对表达水平(P<0.01),NAD的添加显著或极显著升高了奶牛肝细胞内DGAT2、SIRT1的mRNA相对表达水平(P<0.05或P<0.01),NAD的添加极显著降低了奶牛肝细胞内FASN的mRNA相对表达水平(P<0.01);与NA相比,NAM的添加极显著升高了奶牛肝细胞内DGAT2、FASNSIRT1的mRNA相对表达水平(P<0.01)。
图10 比较NA、NAM对奶牛肝细胞脂质代谢关键基因表达的影响

NEFA:非酯化脂肪酸 non-esterified fatty acid;NA:烟酸 niacin;NAM:烟酰胺 niacinamide;GPR109A:G蛋白偶联受体109A G protein coupled receptor 109A;DGAT2:二酰基甘油酰基转移酶2 diacylglycerol acyltransferase 2;FADS2:脂肪酸去饱和酶2 fatty acid desaturase 2;FASN:脂肪酸合成酶 fatty acid synthase;CPT1:肉毒碱棕榈酰基转移酶1 carnitine palmitoyltransferase 1;PGC-1α:过氧化物酶体增殖受体γ辅激活因子-1α peroxisome proliferator-activated receptor γ coactivator-1α;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator activated receptor α;SIRT1:沉默信息调节因子1 sirtuin 1。

Fig.10 Comparison of effects of NA and NAM on expression of lipid metabolism key genes in hepatocytes of dairy cows

3 讨论

3.1 不同浓度NEFA对奶牛肝细胞脂质代谢的影响

围产期奶牛体内激素分泌和免疫系统发生巨大变化,动用体脂来弥补胎儿生长和牛奶合成所需的能量致使奶牛出现NEB[21],而NEFA是该过程的主要产物之一,肝脏作为能量转换的工厂中心不得不摄取NEFA来合成转运TG,但是过量的NEFA来不及完全被氧化则导致脂肪堆积,最终形成脂肪肝[22];大大损伤了机体健康,造成能量代谢紊乱,从而导致产犊间隔延长、产奶量下降和奶牛平均寿命缩短,给乳制品行业造成巨大经济损失[23]。此外,NEFA通过抑制β氧化途径,迫使细胞依赖糖酵解供能,导致LDH活性增强。例如,在奶牛酮病模型中,高浓度NEFA通过激活腺苷酸激活蛋白激酶(adenosine 5'-monophosphate activated protein kinase,AMPK)信号通路,促进糖酵解关键酶的活性,间接上调LDH活性以维持ATP生成。此外,NEFA与胆固醇的协同作用可加剧肝细胞脂质蓄积,进一步抑制线粒体功能,增强LDH驱动的无氧代谢。
目前,有几种牛肝脂肪变性模型可用,包括原代肝细胞、肝切片和动物模型。受模型数量和成本的限制[24],阐明单一营养素对奶牛肝脏表型变化、基因表达影响的研究并不完善。而细胞系的持续分裂和扩增大大满足科研需求,并且由于其稳定性确保了试验的可重复性[25]。因此,使用奶牛肝细胞通过添加不同浓度NEFA来摸索构建模拟奶牛围产期NEB状态更符合试验需求。
围产期奶牛动用体脂供能,血液中NEFA浓度升高对肝脏造成显著代谢压力,此时肝脏的TG含量成为衡量脂化程度的重要指标[26]。在探索不同浓度NEFA对奶牛肝细胞脂质代谢影响的过程中,发现检测细胞中的TG含量可以直观观察到细胞脂质沉积,而过度沉积的脂质严重破坏细胞形态和数量[27],所以选择适量的NEFA浓度既可以保障不丧失功能的情况下实现脂质积累又满足后续试验的数量需求。在细胞受到严重刺激时,细胞膜损坏,胞浆中的LDH排放到细胞培养液,因此细胞培养液的LDH活性是反映细胞处理状态的重要指标;细胞活力则主要反映细胞增殖与毒性情况,NEFA存在较强毒性,高浓度NEFA刺激细胞损害线粒体功能,减少脂肪氧化,破坏细胞功能[28],致使脂质沉积越来越多;综合以上结果与相关研究,最终选择1.2 mmol/L的NEFA处理作为最佳浓度。

3.2 不同浓度NA、NAM对奶牛肝细胞氧化应激和脂质代谢的影响

围产期奶牛代谢疾病频发的主要原因是机体无法氧化分解过量的NEFA,因此改善此时奶牛的健康状态,降低疾病发生,是保障奶牛生产的关键。合适的饲料添加剂可以提高奶牛围产期的营养水平,改善健康状态,从而做到奶牛围产期平稳过渡。NA和NAM是动物不可缺少的营养成分,作为饲料添加剂也被广泛应用。
NA和NAM是能量代谢辅酶重要前体物,均可调控糖和脂质代谢相关途径,减少肝脏脂质沉积,不仅可以降低围产期奶牛脂肪肝的发病率,同时对奶牛热应激等其他方面的疾病也有很好的改善作用[6,18]。由本试验结果可知,随着浓度的增加,NA、NAM都极大程度降低了奶牛肝细胞内TG含量,NA以其通过NA受体GPR109A发挥抗脂解作用而出名[29],Blond等[30]对小鼠原代肝细胞添加NA处理,发现TG含量降低了28%,这与在奶牛肝细胞上的试验结果一致;关于NAM体外模型的相关研究目前还很少,但从上述结果不难发现NAM存在调控肝细胞脂质降低的功能,需要后续进一步深入探究。但作为饲料添加剂,额外饲喂NA给围产期奶牛,Titgemeyer等[31]认为NA通过抑制牛的脂肪分解导致血浆NEFA浓度显著降低,与之呈正相关的是肝脏TG也无法沉积;与NA不同的是,NAM可能通过促进脂质合成来降低血液中的脂肪酸含量,围产期补充NAM有利于瘤胃发酵模式向丙酸型转变,不仅提高了肝脏能量代谢效率,还能促进脂质代谢[16]
LDH活性结果并不是很显著,这也反映出NA、NAM的添加对细胞毒性刺激影响不大,适量添加还会降低NEFA的脂毒性。NAM往往作为NAD前体底物来发挥作用,外源性添加适量NAM可以激活肝细胞中SIRT1的自噬诱导,防止肝细胞的脂毒性,但高剂量NAM反而抑制SIRT1表达[32]。除此之外,围产期奶牛脂肪堆积引发更高水平的ROS,导致抗氧化系统失去平衡,从而导致氧化应激[33]。补充膳食NA可以有效促进氧化应激指标的正常恢复,因为NA、NAM作为氧化代谢酶辅酶的前体,对于激活酶并发挥作用是必要的[17]。GSH是肝脏重要的抗氧化物,是抵御氧化损伤的第1道防线[34],不同浓度的NA、NAM增加GSH含量,提升肝细胞的抗氧化能力,保护细胞免受损伤;MDA作为脂质过氧化的终产物,反映氧化应激损伤程度[33],添加药物剂量的NA、NAM减少了这种损失。为了进行后续体外验证,必须保证有足够的细胞增殖满足指标检测,用于反映细胞活力,随着NA、NAM浓度的增加,肝细胞的细胞活力升高。
基于上述工作,为了更全面的探究不同浓度的NA、NAM对肝细胞脂质代谢的影响,从特定基因表达观察营养素是否发挥作用,GPR109A是NA受体且对NAM完全不敏感,NA激活GPR109A导致肾上腺素环化酶活性的抑制,导致细胞中环磷酸腺苷(cAMP)浓度降低。脂肪细胞中cAMP浓度的降低导致蛋白激酶A失活,激素敏感性脂肪酶磷酸化减少,从而减少脂肪分解[35]。DGAT2是TG合成的限速酶,NA在肝脏中非特异性抑制DGAT2的表达从而减少肝脏TG合成堆积,但随着NA浓度增加,这种非特异性抑制效果似乎不起作用。因此本研究认为,在1.2 mmol/L NEFA构建的NEB奶牛肝细胞模型的基础上,添加适量浓度的NA、NAM的可以减少肝细胞的脂质沉积,改善NEB状态下的氧化应激,促进细胞增殖。NA选择1 mmol/L,NAM选择10 mmol/L作为最佳处理浓度。

3.3 比较NA、NAM对NEB奶牛肝细胞氧化应激和脂质代谢的影响

本试验在对NEB状态的奶牛肝细胞添加NA、NAM最佳处理浓度后,比较了细胞脂质代谢相关指标。单从奶牛肝细胞TG含量和配培养液中LDH活性结果来看,NA处理的效果更好一些。虽然NA、NAM都可以作为2种重要辅酶NAD和NADP的前体,在调节基因表达和细胞周期进程中发挥重要作用,特别是在脂质代谢方面[9];但NA处理浓度仅为NAM的1/10,且各指标结果显示效果更好,可能是因为NA还能介导特异性受体GPR109A从而调控其他脂质代谢通路,这是同浓度NAM无法做到的。但NAM比NA在缓解氧化应激和炎症方面做的更好,这可能与NA在体内发挥作用时一般需要先转化为NAM而后直接分解为NAD进行后续工作有关,较高浓度的NAM则被直接转化为辅酶缓解氧化应激、提高免疫能力、减少炎症因子的表达。从脂质代谢相关基因的表达可以了解到NA抑制脂肪合成基因(FASNDGAT2)并且促进脂质氧化基因(CPT1)的表达,从而来减少肝脏脂质沉积。PGC-1α通过协调参与葡萄糖和脂肪酸代谢的多种基因的表达,在响应营养代谢重编程中发挥重要作用[36]PGC-1α的表达受长期能量供应的控制,在高脂环境下PGC-1α表达下调。而NA显著上调了PGC-1α的表达,维护了机体能量代谢的平衡;同样作为营养作用靶点的PPARα,在调节各种组织中的脂质和碳水化合物代谢等生理稳态中起关键作用[37],NA与NAM可能促进其表达来缓解代谢疾病,但NA似乎更胜一筹。相比于NA,关于NAM的研究较少,但有学者证明NAM通过生成NAD刺激明星因子SIRT1调控基因转录、线粒体生物发生、胰岛素分泌以及葡萄糖和脂质代谢[38-39],NAM不仅作为SIRT1的底物,还可能通过影响NAD含量间接调节SIRT1活性,进而影响其基因表达。研究表明,NAM通过增加细胞内NAD含量,可能对SIRT1活性产生抑制作用,进而影响SIRT1基因的表达。此外,NA作为NAM的前体,可能通过转化为NAM间接影响SIRT1。然而,NA和NAM对SIRT1基因表达的具体影响机制仍需进一步研究[38]。本试验通过检测肝细胞的SIRT1基因表达情况,发现NAM的刺激效果好于NA。综合上述结果并结合生产应用,可知NA更适合于改善围产期奶牛NEB状态,减少肝脏脂质沉积。

4 结论

NA、NAM均可有效缓解NEFA诱导的奶牛肝细胞的脂质沉积,改善奶牛NEB状态下的氧化应激及免疫情况,促进细胞增殖。在1.2 mmol/L NEFA构建的NEB奶牛肝细胞模型的基础上,NA的最佳浓度为1 mmol/L,NAM的最佳浓度为10 mmol/L,但对比两者的添加效果,结合生产应用,NA在改善肝脏脂质代谢和氧化应激方面效果更好。
[1]
张帆, 呙于明, 熊本海. 围产期奶牛能量负平衡营养调控研究进展[J]. 动物营养学报, 2020, 32(7):2966-2974.

DOI

ZHANG F, GUO Y M, XIONG B H. Research progress on nutritional regulation of negative energy balance in dairy cows during transition period[J]. Chinese Journal of Animal Nutrition, 2020, 32(7):2966-2974. (in Chinese)

[2]
DRACKLEY J K. ADSA foundation scholar award.Biology of dairy cows during the transition period:the final frontier?[J]. Journal of Dairy Science, 1999, 82(11):2259-2273.

DOI

[3]
BELL A W. Regulation of organic nutrient metabolism during transition from late pregnancy to early lactation[J]. Journal of Animal Science, 1995, 73(9):2804-2819.

DOI PMID

[4]
LUO Z Z, YONG K, DU Z L, et al. Association between tryptophan metabolism and inflammatory biomarkers in dairy cows with ketosis[J]. Metabolites, 2023, 13(3):333.

DOI

[5]
MEKURIAW Y. Negative energy balance and its implication on productive and reproductive performance of early lactating dairy cows:review paper[J]. Journal of Applied Animal Research, 2023, 51(1):220-228.

DOI

[6]
潘龙, 卜登攀, 程建波, 等. 烟酸对奶牛瘤胃发酵及缓解热应激的影响[J]. 中国饲料, 2013(7):25-27,31.

PAN L, BU D P, CHENG J B, et al. Effects of niacin on rumen fermentation and relief of heat stress in dairy cows[J]. China Feed, 2013(7):25-27,31. (in Chinese)

[7]
SHI H J, LI X F, XU C, et al. Nicotinamide improves the growth performance,intermediary metabolism and glucose homeostasis of blunt snout bream Megalobrama amblycephala fed high-carbohydrate diets[J]. Aquaculture Nutrition, 2020, 26(4):1311-1328.

DOI

[8]
KOLLENKIRCHEN U, KUHNIGK C, BREVES G, et al. Effect of niacin supplementation on the concentration of niacin in rumen and duodenal digesta and in whole blood of sheep[J]. Zentralblatt fur Veterinarmedizin, 1992, 39(9):696-703.

[9]
魏筱诗, 姚军虎, 王翀. 烟酸和烟酰胺在反刍动物机体代谢及生产研究中的异同性[J]. 动物营养学报, 2020, 32(12):5509-5515.

DOI

WEI X S, YAO J H, WANG C. Similarities and differences of niacin and niacinamide in study on metabolism and production of ruminant[J]. Chinese Journal of Animal Nutrition, 2020, 32(12):5509-5515. (in Chinese)

[10]
吴宇春, 褚海燕. 烟酸在反刍动物营养中的研究进展[J]. 饲料博览, 2011(8):42-44.

WU Y C, CHU H Y. Research progress of nicotinic acid in ruminant nutrition[J]. Feed Review, 2011(8):42-44. (in Chinese)

[11]
杨艳, 瞿明仁, 欧阳克蕙, 等. 烟酸对反刍动物作用的研究进展[J]. 江西畜牧兽医杂志, 2020(3):1-3.

YANG Y, QU M R, OUYANG K H, et al. Research progress on the effects of niacin on ruminants[J]. Jiangxi Journal of Animal Husbandry & Veterinary Medicine, 2020(3):1-3. (in Chinese)

[12]
柳君辉, 董国忠, 田可. 高精料饲粮对反刍动物胃肠道微生物区系的影响及调控[J]. 动物营养学报, 2018, 30(12):4821-4827.

LIU J H, DONG G Z, TIAN K. Effects of high concentrate diets on gastrointestinal microflora in ruminants and its regulation[J]. Chinese Journal of Animal Nutrition, 2018, 30(12):4821-4827. (in Chinese)

[13]
RINGSEIS R, ZEITZ J O, WEBER A, et al. Hepatic transcript profiling in early-lactation dairy cows fed rumen-protected niacin during the transition from late pregnancy to lactation[J]. Journal of Dairy Science, 2019, 102(1):365-376.

DOI PMID

[14]
MOREY S D, MAMEDOVA L K, ANDERSON D E, et al. Effects of encapsulated niacin on metabolism and production of periparturient dairy cows[J]. Journal of Dairy Science, 2011, 94(10):5090-5104.

DOI PMID

[15]
YANG Z Q, BAO L B, ZHAO X H, et al. Nicotinic acid supplementation in diet favored intramuscular fat deposition and lipid metabolism in finishing steers[J]. Experimental Biology and Medicine, 2016, 241(11):1195-1201.

DOI

[16]
WEI X S, YIN Q Y, ZHAO H H, et al. Nicotinamide supplementation during postpartum and peripartum modulates hepatic energy and lipid metabolism, oxidative status,and metabolomics profile,as well as lipids in the adipose tissue of goats[J]. Animal Feed Science and Technology, 2021, 274:114849.

[17]
ABDULLAH K M, ALAM M M, IQBAL Z, et al. Therapeutic effect of vitamin B3 on hyperglycemia,oxidative stress and DNA damage in alloxan induced diabetic rat model[J]. Biomedecine & Pharmacotherapie, 2018, 105:1223-1231.

[18]
WEI X S, CAI C J, HE J J, et al. Effects of biotin and nicotinamide supplementation on glucose and lipid metabolism and milk production of transition dairy cows[J]. Animal Feed Science and Technology, 2018, 237:106-117.

DOI

[19]
史晓霞. NEFAs和BHBA诱导氧化应激对奶牛肝细胞NF-κB信号通路影响的研究[D]. 硕士学位论文. 长春: 吉林大学, 2014.

SHI X X. Study on the effect of NEFAs and BHBA inducing oxidative stress on the NF-κB signaling pathway in bovine hepatocytes[D]. Master’s Thesis. Changchun: Jilin University, 2014. (in Chinese)

[20]
刘喆佳. 胆碱调控奶牛肝细胞脂代谢的机制研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2022.

LIU Z J. Study on the mechanism of choline regulation of lipid metabolism in bovine hepatocytes[D]. Master’s Thesis. Yangling: Northwest A&F University, 2022. (in Chinese)

[21]
ALERI J W, HINE B C, PYMAN M F, et al. Periparturient immunosuppression and strategies to improve dairy cow health during the periparturient period[J]. Research in Veterinary Science, 2016, 108:8-17.

DOI PMID

[22]
BUSATO S, FORD H R, ABDELATTY A M, et al. Peroxisome proliferator-activated receptor activation in precision-cut bovine liver slices reveals novel putative PPAR targets in periparturient dairy cows[J]. Frontiers in Veterinary Science, 2022, 9:931264.

[23]
WANG J G, ZHU X Y, SHE G H, et al. Serum hepatokines in dairy cows:periparturient variation and changes in energy-related metabolic disorders[J]. BMC Veterinary Research, 2018, 14(1):236.

DOI

[24]
REICHELT K, NIEBISCH A M, KACZA J, et al. The bovine hepatic cell line BFH12 as a possible model for hepatosteatosis in dairy cows[J]. Frontiers in Veterinary Science, 2022, 9:840202.

[25]
NAGARAJAN S R, PAUL-HENG M, KRYCER J R, et al. Lipid and glucose metabolism in hepatocyte cell lines and primary mouse hepatocytes:a comprehensive resource for in vitro studies of hepatic metabolism[J]. American Journal of Physiology:Endocrinology and Metabolism, 2019, 316(4):E578-E589.

[26]
MOOLI R G R, RAMAKRISHNAN S K. Emerging role of hepatic ketogenesis in fatty liver disease[J]. Frontiers in Physiology, 2022, 13:946474.

[27]
BOBE G, YOUNG J W, BEITZ D C. Invited review:pathology, etiology, prevention,and treatment of fatty liver in dairy cows[J]. Journal of Dairy Science, 2004, 87(10):3105-3124.

DOI

[28]
SONG Y X, LOOR J J, LI C Y, et al. Enhanced mitochondrial dysfunction and oxidative stress in the mammary gland of cows with clinical ketosis[J]. Journal of Dairy Science, 2021, 104(6):6909-6918.

DOI PMID

[29]
CHEN J C, YANG Z G, DONG G Z. Niacin nutrition and rumen-protected niacin supplementation in dairy cows:an updated review[J]. British Journal of Nutrition, 2019, 122(10):1103-1112.

DOI

[30]
BLOND E, RIEUSSET J, ALLIGIER M, et al. Nicotinic acid effects on insulin sensitivity and hepatic lipid metabolism:an in vivo to in vitro study[J]. Hormone and Metabolic Research, 2014, 46(6):390-396.

DOI

[31]
TITGEMEYER E C, SPIVEY K S, MAMEDOVA L K, et al. Effects of pharmacological amounts of nicotinic acid on lipolysis and feed intake in cattle[J]. International Journal of Dairy Science, 2011, 6(2):134-141.

DOI

[32]
SHEN C, DOU X B, MA Y, et al. Nicotinamide protects hepatocytes against palmitate-induced lipotoxicity via SIRT1-dependent autophagy induction[J]. Nutrition Research, 2017, 40:40-47.

DOI PMID

[33]
ZHANG C, LI C X, SHAO Q, et al. Antioxidant monoammonium glycyrrhizinate alleviates damage from oxidative stress in perinatal cows[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(2):475-484.

DOI

[34]
ZOU L F, LIANG B, GAO Y Z, et al. Nicotinic acid riboside regulates Nrf-2/P62-related oxidative stress and autophagy to attenuate doxorubicin-induced cardiomyocyte injury[J]. BioMed Research International, 2022, 2022:6293329.

[35]
PETROVIĆ K, DJOKOVIĆ R, CINCOVIĆ M, et al. Niacin status indicators and their relationship with metabolic parameters in dairy cows during early lactation[J]. Animals, 2022, 12(12):1524.

DOI

[36]
LIANG H Y, WARD W F. PGC-1alpha:a key regulator of energy metabolism[J]. Advances in Physiology Education, 2006, 30(4):145-151.

DOI

[37]
HU P, LI K Q, PENG X X, et al. Nuclear receptor PPARα as a therapeutic target in diseases associated with lipid metabolism disorders[J]. Nutrients, 2023, 15(22):4772.

DOI

[38]
RYMARCHYK S, KANG W J, CEN Y N. Substrate-dependent sensitivity of SIRT1 to nicotinamide inhibition[J]. Biomolecules, 2021, 11(2):312.

DOI

[39]
YANG Y P, HUANG J Y, XIE L J, et al. Nicotinamide protects against diabetic kidney disease through regulation of SIRT1[J]. Endocrine, 2024, 85(2):638-648.

DOI PMID

文章导航

/