研究论文

黄色瘤胃球菌阿拉伯呋喃糖苷酶基因α-ara的异源表达与酶学性质研究

  • 毕海红 ,
  • 胡馨元 ,
  • 夏呈强 , *
展开
  • 山西农业大学动物科学学院,晋中 030801
* 夏呈强,副教授,硕士生导师,E-mail:

毕海红(2001—),女,河南三门峡人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

收稿日期: 2025-06-29

  网络出版日期: 2026-01-13

基金资助

国家自然科学基金青年项目(32002143)

国家重点研发计划专项子课题(2022YFD1300705)

山西农业大学科技创新提升工程(CXGC2025005)

Heterologous Expression and Enzymatic Properties of Arabinofuranosidase Gene α-ara Derived from Ruminococcus flavefaciens

  • BI Haihong ,
  • HU Xinyuan ,
  • XIA Chengqiang , *
Expand
  • College of Animal Science, Shanxi Agricultural University, Jinzhong 030801, China
* associate professor, E-mail:

Received date: 2025-06-29

  Online published: 2026-01-13

摘要

本研究旨在克隆黄色瘤胃球菌阿拉伯呋喃糖苷酶基因α-ara并在大肠杆菌表达系统中实现其可溶性表达,同时探讨其表达产物阿拉伯呋喃糖苷酶α-Ara的酶学性质。以黄色瘤胃球菌基因组DNA为模板,通过PCR技术扩增目的基因α-ara,将其与表达载体pET28a连接构建重组载体pET28a-α-ara,转化至大肠杆菌BL21(DE3)后,经异丙基-β-D-硫代半乳糖苷(IPTG)诱导表达,采用镍离子亲和层析柱纯化获得目标酶,对其进行生物信息学分析与酶学性质表征。结果显示:α-Ara的蛋白理论分子质量为106.87 ku,预测等电点为4.96,含有信号肽序列、1个纤维小体Dockerin结构域及3个催化结构域,属于糖苷水解酶43(GH43)家族。该酶的最适pH为6.0,在pH 6.0~9.0时具有较好的稳定性;最适温度为50 ℃,在温度≤50 ℃时能维持80%以上酶活性;镁离子(Mg2+)、钾离子(K+)、钴离子(Co2+)、钠离子(Na+)、钡离子(Ba2+)和锰离子(Mn2+)对其有较好的激活效果,而铜离子(Cu2+)、镍离子(Ni2+)和乙二胺四乙酸(EDTA)则表现出明显抑制效应;以对硝基苯-α-L-阿拉伯呋喃糖苷为底物(浓度1.0~6.0 mmol/L)时,其米氏常数(Km)为5.093 mmol/L,最大反应速度(Vmax)为9.234 μmol/(min·mg),催化常数(kcat)为0.632 5 s-1,酶比活性达8.760 U/mg。综上可知,本研究成功克隆并表达了黄色瘤胃球菌阿拉伯呋喃糖苷酶α-Ara,该酶最适温度为50 ℃、最适pH为6.0,兼具中温稳定性、宽pH(6.0~9.0)耐受特性及对多种金属离子的响应活性。

本文引用格式

毕海红 , 胡馨元 , 夏呈强 . 黄色瘤胃球菌阿拉伯呋喃糖苷酶基因α-ara的异源表达与酶学性质研究[J]. 动物营养学报, 2026 , 38(1) : 738 -750 . DOI: 10.12418/CJAN2026.057

Abstract

This study aimed to clone the arabinofuranosidase gene α-ara from Ruminococcus flavefaciens and achieve its soluble expression in an Escherichia coli expression system, as well as to investigate the enzymatic properties of its expression product arabinofuranosidase α-Ara. Using the genomic DNA of Ruminococcus flavefaciens as the template, the target gene α-ara was amplified by PCR. The amplified fragment was ligated into the expression vector pET28a to construct the recombinant plasmid pET28a-α-ara, which was then transformed into Escherichia coli BL21(DE3). Expression of the recombinant enzyme was induced by isopropyl β-D-thiogalactopyranoside (IPTG), and the target enzyme was purified by nickel ion affinity chromatography. Bioinformatics analysis and enzymatic characterization were subsequently performed. The results showed that α-Ara had a theoretical molecular mass of 106.87 ku and a predicted isoelectric point of 4.96. It contained a signal peptide sequence, one cellulosomal Dockerin domain and three catalytic domains, belonging to the glycoside hydrolase family 43 (GH43). The optimal pH of α-Ara was 6.0, and it exhibited good stability within the pH range of 6.0 to 9.0. The optimal temperature was 50 ℃, and the enzyme can retain more than 80% of its activity at temperatures≤50 ℃. Metal ions including Mg2+, K+, Co2+, Na+, Ba2+ and Mn2+ significantly activated the enzyme, while Cu2+, Ni2+ and ethylenediaminetetraacetic acid (EDTA) showed obvious inhibitory effects. Using p-nitrophenyl α-L-arabinofuranoside as the substrate (concentrations of 1.0 to 6.0 mmol/L), the Michaelis constant (Km) was 5.093 mmol/L, the maximum reaction rate (Vmax) was 9.234 μmol/(min·mg), the catalytic constant (kcat) was 0.632 5 s-1 and the specific enzyme activity reached 8.760 U/mg. In conclusion, this study successfully cloned and expressed the arabinofuranosidase α-Ara from Ruminococcus flavefaciens. This enzyme has an optimal temperature of 50 ℃ and an optimal pH of 6.0, exhibiting moderate thermal stability, broad pH tolerance (6.0 to 9.0), and responsive activity to various metal ions.

全球畜牧业的持续快速发展使得对于优质饲料资源的需求显著增加。然而,传统优质饲料资源(如谷物)的供应日趋紧张且价格波动较大,已成为制约畜牧业高效、可持续发展及保障动物产品供给安全的关键瓶颈之一[1]。我国作为农业大国,农业副产物资源非常丰富,仅小麦秸秆、玉米秸秆和玉米芯等主要农业副产物的年产量就超过7亿t[2]。这类资源富含碳水化合物(如纤维素、半纤维素)及多种微量元素[3-5],理论上具备作为畜禽(尤其是反刍动物)粗饲料补充来源的潜力,有助于缓解饲料粮供需压力[6]。然而,其实际利用效率远低于理论值,造成了严重的资源浪费。限制农业副产物饲料化利用效率的核心因素在于其富含难以被单胃动物(如猪、禽)乃至反刍动物充分降解的木质纤维素。木质纤维素是由纤维素、半纤维素和木质素通过复杂交联形成的顽固结构[7],其中半纤维素作为重要的基质多糖,其分支结构(如阿拉伯糖、半乳糖、甘露糖等形成的侧链)通过与纤维素和木质素的连接,构成了阻碍核心多糖(如木聚糖、葡聚糖)被酶水解的关键屏障[8-10]。因此,高效降解半纤维素,特别是其复杂的侧链结构,是提高木质纤维素整体消化率与饲料利用效率的核心策略。
针对上述挑战,国内外研究者围绕外源酶制剂的开发与应用开展了大量研究工作。多项研究表明,在畜禽饲料中添加纤维素酶(降解纤维素主链的核心酶)和木聚糖酶(降解半纤维素主链的核心酶)能有效破坏植物细胞壁结构,显著提高饲料中能量和养分的释放率,改善动物生长性能及饲料转化效率[11-12]。近年来,研究焦点逐步从纤维素/半纤维素主链降解酶拓展至半纤维素侧链降解酶。其中,α-L-阿拉伯呋喃糖苷酶(AFases,EC 3.2.1.55)作为一类关键的糖苷水解酶(glycoside hydrolase,GH),能够特异性水解半纤维素(尤其是阿拉伯木聚糖)主链上阿拉伯糖残基末端的α-1,2、α-1,3和α-1,5糖苷键,从而移除阿拉伯呋喃糖侧链[13]。AFases的作用至关重要,阿拉伯糖侧链的移除不仅可以暴露更多的主链酶(如木聚糖酶)作用位点,还能破坏半纤维素与木质素之间的阿魏酸交联,从而进一步提升木聚糖酶等主链酶对多糖底物的可及性与协同降解效率[14-15]。目前,研究人员已在AFases的酶学特性、结构功能、基因挖掘(主要来源于真菌及好氧细菌)及其在生物质转化(如生物燃料生产)中的应用方面取得显著进展[16-18]。在酶制剂开发方面,国外酶制剂公司(如Novozymes、DSM)已开发出含有AFases的复合酶产品,并证实其在改善畜禽对含阿拉伯木聚糖谷物(如小麦、大麦)饲料的利用上效果显著[19-20]。国内研究也紧随其后,例如Lei等[21]在肉鸡饲粮中添加含木聚糖酶、AFases和阿魏酸酯酶的复合酶制剂,证实其协同作用能有效降解阿拉伯木聚糖,改善肉鸡生长性能与肠道健康。然而,现有商品化AFases主要来源于好氧真菌(如曲霉属)或细菌,其在饲料加工过程(如高温制粒)及动物消化道环境下的稳定性、活性以及成本效益仍有待进一步优化。
反刍动物(如牛、羊)的瘤胃是一个高效的天然木质纤维素降解系统,其中蕴藏着极其丰富且尚未充分开发的厌氧微生物资源(包括细菌、真菌和原生动物),这些微生物在长期的进化中形成了高效的木质纤维素降解酶系。黄色瘤胃球菌(Ruminococcus flavefaciens)是瘤胃中一种重要的革兰氏阳性纤维降解细菌,隶属于厚壁菌门[22]。基因组测序分析结果显示,该菌编码大量且多样的GH,预测至少包含14个不同GH家族的酶,展现出强大的木质纤维素降解潜力[23-24]。尤为重要的是,瘤胃厌氧微生物来源的酶类通常具备适应瘤胃温和温度与中性pH环境的特性,且可能对饲料中的抑制剂具有耐受性,这些特性使其在饲料中的应用具有潜在优势[25-26]。然而,与广泛研究的真菌或好氧细菌来源的酶相比,目前针对黄色瘤胃球菌等瘤胃厌氧细菌来源的AFases,在系统挖掘、异源表达、酶学表征及其饲料应用潜力评估方面的研究报道仍然较少。充分挖掘这一特殊生境中高效、稳定的AFases资源,将成为开发具有自主知识产权、性能更优的新型饲料酶制剂的重要方向。
因此,本研究拟从黄色瘤胃球菌基因组DNA中鉴定并克隆潜在的AFases基因,利用高效的大肠杆菌表达系统实现其可溶性异源表达,并进行蛋白纯化、酶学性质表征、底物特异性与动力学参数测定。通过本研究,期望获得一种具有良好活性、稳定性和应用潜力的新型AFases,为丰富饲料酶制剂资源库、提高粗饲料利用率、推动畜牧业可持续发展提供新的酶源选择和科学依据。

1 材料与方法

1.1 菌株与质粒

黄色瘤胃球菌为山西农业大学动物科学学院动物营养与饲料科学实验室先前保存菌株,菌株编号为DSM25089。载体pET28a、大肠杆菌DH5α和BL21(DE3)均购自苏州北纳创联生物技术有限公司。

1.2 主要试剂

硫酸卡那霉素、异丙基-β-D-硫代半乳糖苷(IPTG)、基因组提取试剂盒和十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶制备试剂盒购自北京索莱宝科技有限公司;琼脂糖凝胶回收试剂盒和质粒提取试剂盒购自美国Omega公司;限制性内切酶EcoR Ⅰ和Not Ⅰ购自日本TaKaRa公司;Blue Plus Ⅱ Protein Marker购自北京全式金生物技术股份有限公司;DNA Marker(D8000、D5000)购自天根生化科技(北京)有限公司;镍柱(HisTrap HP)购自美国GE公司。

1.3 基因序列分析与重组载体的构建

1.3.1 基因序列分析

通过在线分析网站RAST(https://rast.nmpdr.org)对黄色瘤胃球菌基因组进行注释,基于注释结果筛选目标阿拉伯呋喃糖苷酶基因α-ara(该基因的表达产物命名为α-Ara)作为异源表达对象。利用Expasy(https://web.expasy.org)预测α-Ara的等电点和蛋白理论分子质量,使用SignalP 4.1(https://services.healthtech.dtu.dk/services/SignalP-4.1)预测α-Ara的信号肽编码序列,使用PSIPRED(http://bioinf.cs.ucl.ac.uk/psipred)预测α-Ara的蛋白质二级结构,并利用SWISS-MODEL(https://swissmodel.expasy.org)预测α-Ara的蛋白质三维结构。

1.3.2 重组载体的构建

设计引物对ara-F:5'-CG GAATTCGCTGTTACTGCCGGCTATGCCG-3'和ara-R:5'-CC CTCGAGGCCTACAATAACTCTGGCTGTT-3'(下划线为EcoR Ⅰ和Not Ⅰ识别位点),以黄色瘤胃球菌基因组DNA为模板进行PCR扩增,扩增产物经琼脂糖凝胶回收试剂盒纯化后,与载体pET28a进行酶切连接,将连接产物转化至大肠杆菌DH5α中,筛选获得重组质粒pET28a-α-ara。提取重组质粒后送至生工生物工程(上海)股份有限公司进行Sanger测序,验证目的基因的完整性与序列准确性。将测序正确的重组质粒进一步转化至大肠杆菌BL21(DE3)中进行蛋白表达。

1.4 重组蛋白的诱导表达与纯化

将含有重组质粒的大肠杆菌BL21(DE3)细胞接种于添加了硫酸卡那霉素(50 μg/mL)的LB培养液中,37 ℃、200 r/min下培养至600 nm波长处吸光度值(OD600 nm)为0.5~0.6。随后用0.5 mmol/L IPTG在16 ℃下诱导24 h,诱导结束后4 ℃、15 616×g离心10 min,收集菌体沉淀,然后用100 mmol/L Tris-NaCl缓冲液(含50 mmol/L Tris和150 mmol/L NaCl,pH 8.0)洗涤2次。将细胞重悬于Tris-NaCl缓冲液中,超声破碎菌体(50%振幅,工作2 s,间隔4 s,15 min),超声结束后4 ℃、15 616×g离心15 min,所得上清液即为粗酶液。
参照钮慧晶[27]的方法用Ni-NTA His-Bind金属螯合柱纯化粗酶,并用Tris-NaCl缓冲液平衡,在Tris-NaCl缓冲液中以0.5 mL/min流速分别用30、300和500 mmol/L咪唑洗脱粗酶。然后,使用5 mL Amicon Ultra离心过滤器(10 ku,美国Millipore公司)对活性组分进行离心脱盐,获得纯化酶液,并用NanoDrop 2000进行蛋白浓度测定。吸取粗酶液与纯化酶液制备蛋白样品,进行SDS-PAGE检测。

1.5 酶活性的测定

以对硝基苯-α-L-阿拉伯呋喃糖苷为底物,采用酶标仪测定α-Ara的活性,每个反应均设置3个平行。反应体系为50 μL底物溶液(2 mmol/L对硝基苯α-L-阿拉伯呋喃糖苷溶于50 mmol/L磷酸钠缓冲液中,pH 6.0)和100 μL适当稀释的酶溶液(稀释液为50 mmol/L磷酸钠缓冲液,pH 6.0)。反应混合物在30 ℃下孵育30 min,然后加入150 μL 1 mol/L碳酸钠溶液终止反应。其中,空白对照组先添加50 μL底物溶液和150 μL 1 mol/L碳酸钠溶液,随后添加100 μL稀释后酶溶液,其余反应条件同试验组。通过测定420 nm波长处吸光度值(OD420 nm)来计算反应中释放的对硝基苯酚含量;酶活性单位定义为:在上述反应条件下,每分钟催化产生1 μmol对硝基苯酚所需的酶量。

1.6 酶学性质分析

1.6.1 最适pH及pH稳定性

最适pH:将酶液置于pH分别为3.0、4.0、5.0、6.0、7.0、8.0、9.0、10.0、11.0的反应体系中,30 ℃条件下反应30 min,以最高酶活性为100%,通过相对酶活性分析确定α-Ara的最适pH。不同pH对应的缓冲液体系分别为:20 mmol/L乙酸-乙酸钠缓冲液(pH 3.0~5.0)、20 mmol/L磷酸氢二钠-磷酸二氢钠缓冲液(pH 6.0~8.0)、20 mmol/L Tris-HCl缓冲液(pH 9.0)及20 mmol/L碳酸氢钠-氢氧化钠缓冲液(pH 10.0~11.0)。
pH稳定性:在无底物的情况下,将酶液置于不同pH(4.0~10.0)下,30 ℃预孵育60 min,在最佳反应条件下(50 ℃、pH=6.0,30 min)测定残余酶活性(以未处理的酶液酶活性为100%)。

1.6.2 最适温度及温度稳定性

最适温度:在不同温度(30、35、40、45、50、55、60、65、70 ℃)条件下,将纯化后的酶液分别置于pH=6.0的反应体系中(对硝基苯-α-L-阿拉伯呋喃糖苷为底物,50 mmol/L磷酸钠缓冲液为稀释液)反应30 min,以最高酶活性为100%,通过相对酶活性来判断α-Ara的最适温度。
温度稳定性:将酶液分别置于20、30、40、50、60、70、80、90 ℃条件下孵育60 min,测定残余酶活性(以未处理的酶液酶活性为100%)。

1.6.3 金属离子及金属离子螯合剂对酶活性的影响

将纯化后的α-Ara酶液分别置于含有1或10 mmol/L氯化钙(CaCl2)、氯化镁(MgCl2)、氯化锰(MnCl2)、氯化锌(ZnCl2)、氯化铁(FeCl3)、硫酸铜(CuSO4)、氯化钡(BaCl2)、氯化镍(NiCl2)、氯化钴(CoCl2)、氯化钾(KCl)、氯化钠(NaCl)和乙二胺四乙酸(EDTA)的反应混合物中,在40 ℃下孵育60 min,在最佳反应条件下(50 ℃、pH=6.0,30 min)测定残余酶活性。以未添加金属离子或EDTA溶液的样品为对照,其酶活性设为100%。

1.6.4 底物特异性

将纯化后的α-Ara酶液分别以对硝基苯-α-L-阿拉伯呋喃糖苷、对硝基苯-α-L-阿拉伯吡喃糖苷、对硝基苯-α-D-半乳糖苷、对硝基苯-β-D-半乳糖苷、对硝基苯-α-D-甘露糖苷、对硝基苯-β-D-木糖苷、对硝基苯-β-D-葡萄糖苷和对硝基苯-α-L-岩藻糖苷为底物(底物浓度均为2 mmol/L),于最适条件下(50 ℃、pH=6.0,30 min)测定酶的比活性。酶比活性单位定义为:在上述最适反应条件下,每毫克蛋白质所含的酶活力单位数,以U/mg表示。

1.6.5 动力学参数

以浓度为1.0~6.0 mmol/L的对硝基苯-α-L-阿拉伯呋喃糖苷为底物,在最佳反应条件下(反应体系为50 μL底物溶液和100 μL稀释后酶液,150 μL 1 mol/L碳酸钠溶液终止反应;反应条件为50 ℃,pH 6.0,30 min)测定α-Ara的动力学参数,米氏常数(Km)和最大反应速度(Vmax)由Lineweavere-Burk方程[28]确定。

1.7 数据处理

采用Excel 2021对酶学性质相关数据进行整理,采用GraphPad Prism 10.4.1进行绘图。

2 结果与分析

2.1 生物信息学分析与重组载体的构建

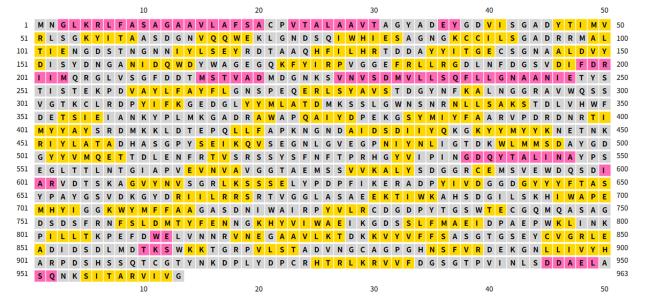
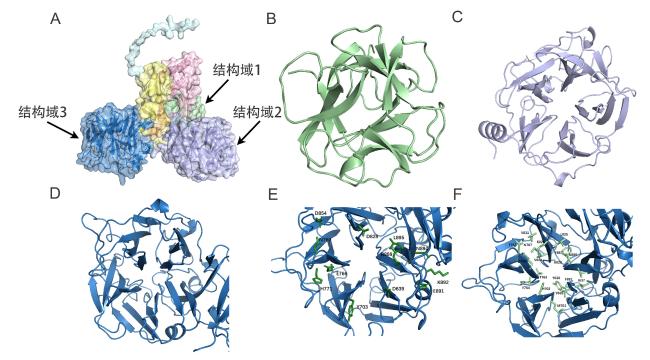
阿拉伯呋喃糖苷酶α-Ara(序列号:WP_037299427.1)共由963个氨基酸组成,预测等电点为4.96,含有信号肽序列(氨基酸残基1~27),蛋白理论分子质量为106.87 ku。NCBI保守域分析表明,α-Ara含有1个纤维小体Dockerin结构域(氨基酸残基187~240)和2个糖苷水解酶43(GH43)家族结构域(氨基酸残基289~548和633~902)。SIPRED二级结构预测结果(图1)显示,该蛋白中α-螺旋占比为4.36%(粉色),β-折叠占比为40.50%(黄色),无规卷曲占比为55.14%(灰色)。通过SWISS-MODEL构建的三维结构模型(图2-A)表明,α-Ara是由2个非催化结构域(黄色和粉色)连接3个催化结构域(绿色、紫色和蓝色)的“双区协同”α-L-阿拉伯呋喃糖苷酶。其中,纤维小体Dockerin结构域位于非催化结构域中的粉色部分,主体是由3个α-螺旋构成;催化结构域1(绿色,图2-B)朝向蛋白质内部,推测其活性较低或无活性;催化结构域2(紫色,图2-C)和催化结构域3(蓝色,图2-D)均呈现典型的五叶片β-螺旋桨折叠构象,其中心通道形似“空竹”,两端较宽而中间较窄,活性位点空腔呈锥形,外侧开阔而内部狭窄,深而窄的口袋限制了底物的进入。以催化结构域3为例(蓝色,图2-D图2-F),其外侧由12个氨基酸残基构成,内侧则由18个氨基酸残基构成。活性中心位于一个弯曲的底物结合槽深处,由四联体残基[谷氨酸191(Glu191)-谷氨酰胺244(Gln244)-天冬氨酸138(Asp138)-谷氨酸81(Glu81)]协同驱动底物的外切。
图1 PSIPRED预测的α-Ara蛋白质二级结构

粉色表示α-螺旋;黄色表示β-折叠;灰色表示无规卷曲。Pink indicated α-helix; yellow indicated β-strand; gray indicated random coil.

M:甲硫氨酸 methionine;G:甘氨酸 glycine;L:亮氨酸 leucine;K:赖氨酸 lysine;R:精氨酸 arginine;F:苯丙氨酸 phenylalanine;A:丙氨酸 alanine;S:丝氨酸 serine;V:缬氨酸 valine;C:半胱氨酸 cysteine;P:脯氨酸 proline;T:苏氨酸 threonine;Y:酪氨酸 tyrosine;I:异亮氨酸 isoleucine;Q:谷氨酰胺 glutamine;W:色氨酸 tryptophan;E:谷氨酸 glutamic acid;D:天冬氨酸 aspartic acid;N:天冬酰胺 asparagine;H:组氨酸 histidine。图2同 The same as Fig.2

Fig.1 α-Ara protein secondary structure predicted by PSIPRED

图2 SWISS-MODEL预测的α-Ara蛋白质三维结构及其催化结构域

图A为预测的蛋白质三维结构,其中黄色和粉色部分为预测的非催化结构域,绿色、紫色和蓝色部分分别为预测的催化结构域1、催化结构域2和催化结构域3;图B为预测的催化结构域1(对应A图中绿色部分);图C为预测的催化结构域2(对应A图中紫色部分);图D为预测的催化结构域3(对应A图中蓝色部分);图E为催化结构域3外侧结构(由12个氨基酸残基组成);图F为催化结构域3内侧结构(由18个氨基酸残基组成)。

Fig.2 α-Ara protein three-dimensional structure and catalytic domains predicted by SWISS-MODEL

Figure A showed the predicted protein three-dimensional structure, where the yellow and pink regions represented the predicted non-catalytic domains, and the green, purple and blue regions represented the predicted catalytic domain 1, catalytic domain 2 and catalytic domain 3, respectively; figure B showed the predicted catalytic domain 1 (corresponding to the green region in figure A); figure C showed the predicted catalytic domain 2 (corresponding to the purple region in figure A); figure D presented the predicted catalytic domain 3 (corresponding to the blue region in figure A); figure E showed the outer structure of catalytic domain 3 (composed of 12 amino acid residues); figure F showed the inner structure of catalytic domain 3 (composed of 18 amino acid residues).

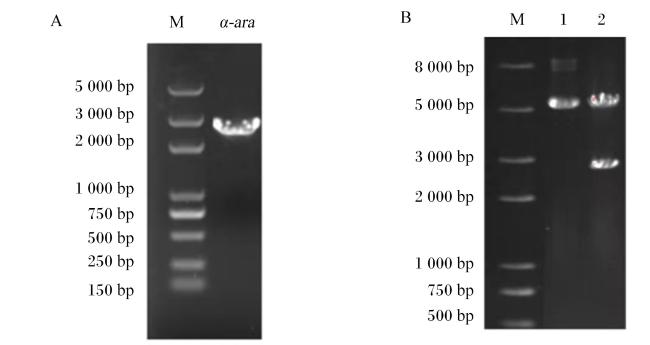
以黄色瘤胃球菌基因组DNA为模板,对目的基因α-ara进行PCR扩增,扩增结果(图3-A)表明,DNA条带长度约为2 700 bp,与α-ara基因的理论长度(2 754 bp)相近;同时,Sanger测序结果证实该DNA片段的序列与理论序列一致。上述结果表明,本研究成功克隆获得黄色瘤胃球菌阿拉伯呋喃糖苷酶基因α-ara,可用于后续重组表达载体的构建。用限制性核酸内切酶EcoR Ⅰ(GAATTC)和Not Ⅰ(CTCGAG)通过双酶切法对α-ara基因片段和空载载体pET28a进行酶切处理。连接回收的基因片段与载体片段,导入大肠杆菌感受态细胞DH5α中。通过PCR对转化产物进行酶切验证,结果(图3-B)显示酶切产物的片段大小与预期相符,表明重组表达载体pET28a-α-ara构建成功。
图3 α-ara基因PCR扩增产物(A)及重组质粒酶切产物(B)琼脂糖凝胶电泳结果

图A中,M代表D5000 DNA marker,α-ara代表α-ara基因;图B中,M代表D8000 DNA marker,1代表重组质粒,2代表重组质粒酶切产物。

Fig.3 Agarose gel electrophoresis results of PCR amplification product of α-ara gene (A) and restriction enzyme digestion product of recombinant plasmid (B)

In figure A, M represented D5000 DNA marker and α-ara represented α-ara gene; in figure B, M represented D8000 DNA marker, 1 represented recombinant plasmid and 2 represented digestion product of recombinant plasmid.

2.2 重组蛋白的诱导表达与纯化

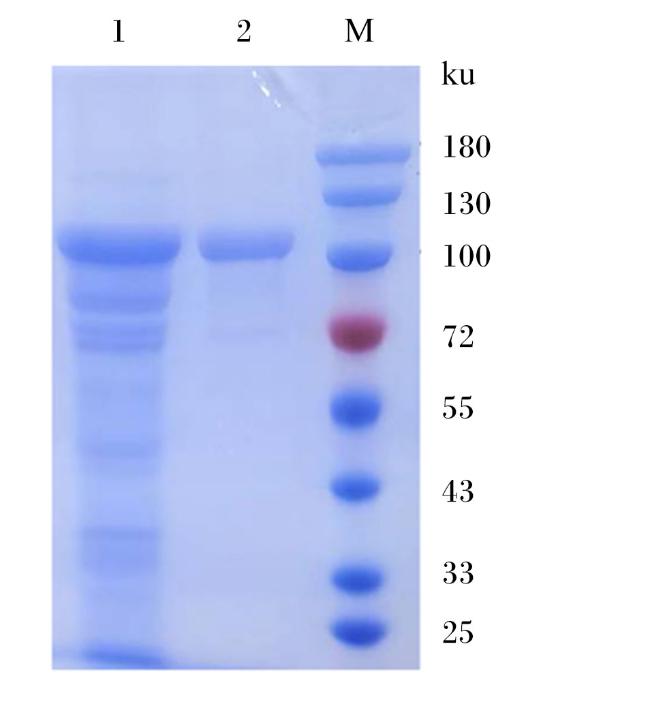
对含有重组质粒的大肠杆菌BL21(DE3)进行诱导表达,收集菌体并破碎后获得粗酶液,将粗酶液过滤、镍柱纯化及透析处理后,最终得到α-Ara的纯化蛋白。SDS-PAGE结果如图4所示,在约110 ku处,粗酶液与纯化后的酶液均显示出清晰的蛋白条带,与该蛋白的理论分子质量(106.87 ku)相近。
图4 重组蛋白SDS-PAGE电泳图

M代表代表蛋白质分子质量标准,1代表粗酶液,2代表纯化后酶液。

Fig.4 Recombinant protein SDS-PAGE electrophoretogram

M represented protein molecular weight marker, 1 represented crude enzyme solution and 2 represented purified enzyme solution.

2.3 酶学性质分析

2.3.1 最适pH及pH稳定性

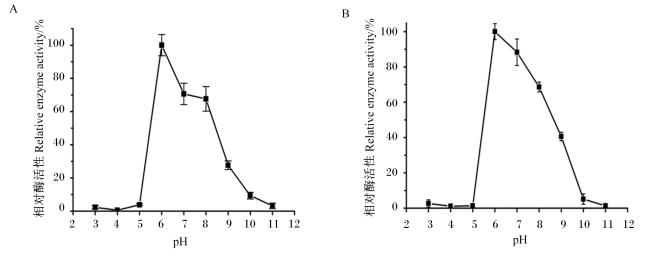
图5-A可知,α-Ara的最适pH为6.0,在此pH条件下酶活性达到峰值;当pH<6.0或pH>8.0时,其维持的酶活性均低于50%。α-Ara的pH稳定性分析结果如图5-B所示,该酶在pH为6.0~7.0时稳定性最高,经过1 h孵育后仍然保持超过80%的酶活性。此外,当pH在8.0~9.0时,α-Ara也能维持至少40%的酶活性,而当pH在3.0~5.0或10.0~11.0时,其残余酶活性下降至5%以下。
图5 α-Ara最适pH(A)及pH稳定性(B)

Fig.5 Optimal pH (A) and pH stability (B) of α-Ara

2.3.2 最适温度及温度稳定性

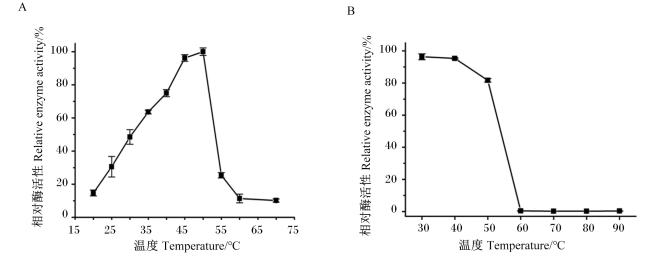
通过测定不同温度下α-Ara的酶活性,绘制了相对酶活性随反应温度的变化曲线(图6)。由图6-A可知,α-Ara在50 ℃时酶活性最高,进一步分析显示,在20~50 ℃范围内,随着温度升高,其酶活性逐渐增强,并在50 ℃达到峰值;当温度超过55 ℃后,相对酶活性迅速下降至20%以下。由图6-B可知,在30~50 ℃条件下孵育1 h后,α-Ara能维持80%以上的酶活性;而当温度超过60 ℃时,其残余酶活性极低。
图6 α-Ara最适温度(A)及温度稳定性(B)

Fig.6 Optimum temperature (A) and temperature stability (B) of α-Ara

2.3.3 金属离子及EDTA对酶活性的影响

不同金属离子及金属螯合剂EDTA对α-Ara活性的影响如表1所示。低浓度(1 mmol/L)条件下,镁离子(Mg2+)、钾离子(K+)、钴离子(Co2+)、钠离子(Na+)、钡离子(Ba2+)和锰离子(Mn2+)对α-Ara的激活效果比较明显,相对酶活性为122.76%~165.41%;而相同浓度的铜离子(Cu2+)、镍离子(Ni2+)、锌离子(Zn2+)和EDTA则对该酶活性具有明显抑制效应,相对酶活性仅为22.20%~74.62%。高浓度(10 mmol/L)条件下,Mg2+、K+、Co2+、Na+、Mn2+和Ba2+对α-Ara仍有较明显的激活效果;而Cu2+、Ni2+、Zn2+、钙离子(Ca2+)、铁离子(Fe3+)和EDTA则呈现明显抑制效应。
表1 金属离子及EDTA对α-Ara酶活性的影响

Table 1 Effects of metal ions and EDTA on enzymatic activity of α-Ara %

项目
Items
相对酶活性Relative enzyme activity
1 mmol/L 10 mmol/L
对照Control 100.00±5.04 100.00±6.46
镁离子Mg2+ 147.42±6.14 128.07±9.44
钾离子K+ 134.69±1.72 159.92±14.90
钴离子Co2+ 158.96±12.84 119.60±11.24
钠离子Na+ 132.32±7.64 145.79±5.24
铜离子Cu2+ 22.20±2.58 13.68±4.62
镍离子Ni2+ 74.62±6.25 34.24±5.43
锰离子Mn2+ 165.41±9.43 109.36±7.68
钡离子Ba2+ 122.76±2.66 149.89±10.44
锌离子Zn2+ 33.85±5.67 31.72±5.05
钙离子Ca2+ 108.08±2.50 51.27±6.96
铁离子Fe3+ 113.25±10.47 23.27±2.48
乙二胺四乙酸EDTA 46.56±2.40 26.98±5.27

2.3.4 底物特异性

α-Ara的底物特异性试验结果如表2所示,当以对硝基苯-α-L-阿拉伯呋喃糖苷为底物时,α-Ara表现出最高酶比活性,达(8.760±0.430) U/mg。对于其他底物的反应结果显示,其能够催化底物对硝基苯-β-D-半乳糖苷[(5.800±0.330) U/mg]、对硝基苯-α-L-阿拉伯吡喃糖苷[(0.043±0.002) U/mg]以及对硝基苯-α-D-半乳糖苷[(0.017±0.001) U/mg]的水解反应,而对于对硝基苯-β-D-木糖苷、对硝基苯-β-D-葡萄糖苷、对硝基苯-α-D-甘露糖苷以及对硝基苯-α-L-岩藻糖苷,α-Ara并没有表现出催化活性。
表2 α-Ara对不同底物的酶比活性

Table 2 Enzymatic specific activity of α-Ara against different substrates U/mg

底物Substrates 酶比活性Enzyme specific activity
对硝基苯-α-L-阿拉伯呋喃糖苷pNP-α-L-Araf 8.760±0.430
对硝基苯-β-D-半乳糖苷pNP-β-D-Gal 5.800±0.330
对硝基苯-α-L-阿拉伯吡喃糖苷pNP-α-L-Arap 0.043±0.002
对硝基苯-α-D-半乳糖苷pNP-α-D-Gal 0.017±0.001
对硝基苯-β-D-木糖苷pNP-β-D-Xyl -
对硝基苯-β-D-葡萄糖苷pNP-β-D-Glc -
对硝基苯-α-D-甘露糖苷pNP-α-D-Man -
对硝基苯-α-L-岩藻糖苷pNP-α-L-Fuc -

2.3.5 动力学参数

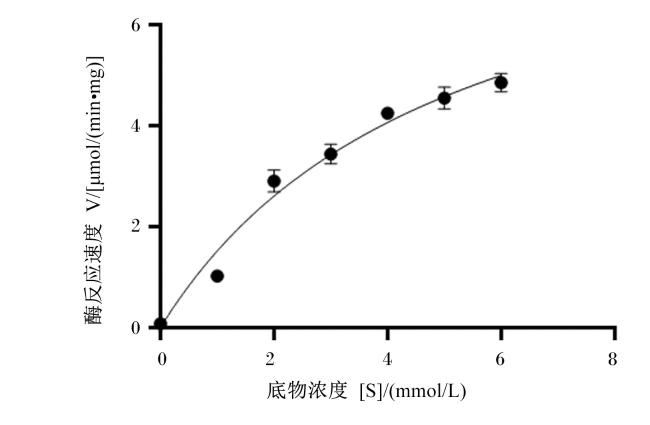
α-Ara酶反应动力学曲线如图7所示,在底物浓度为1.0~6.0 mmol/L时,α-Ara水解对硝基苯-α-L-阿拉伯呋喃糖苷的Km为5.093 mmol/L,Vmax为9.234 μmol/(min·mg),催化常数(kcat)为0.632 5 s-1
图7 α-Ara酶反应动力学曲线

Fig.7 α-Ara enzyme reaction kinetic curve

3 讨论

AFases作为一类半纤维素支链降解酶,可以通过与其他半纤维素酶类协同作用来降解木质纤维素。在饲料中添加AFases可以使动物更好的利用植物细胞壁中的多糖,提高其对饲料中纤维物质的消化率,提高生产性能,增加经济效益[29]。因此,开发具备稳定活性的AFases并探明其酶学特性对于其后续作为饲料酶制剂的应用具有重要意义。
本研究成功从黄色瘤胃球菌基因组DNA中克隆并表达了一种阿拉伯呋喃糖苷酶,命名为α-Ara。序列分析表明,α-Ara属于GH43家族,该家族酶以其水解阿拉伯呋喃糖苷键的核心功能而闻名。此外,该家族部分成员还兼具木糖苷酶(EC 3.2.1.37)、半乳糖苷酶(EC 3.2.1.23)、木聚糖酶(EC 3.2.1.8)或果胶酶(EC 3.2.1.99)等多功能活性,广泛参与植物细胞壁半纤维素(尤其是阿拉伯木聚糖和阿拉伯聚糖)的降解过程[30-31]。生物信息学分析显示,α-Ara的预测等电点为4.96,表明其在弱酸性环境下可能表现出较优的溶解性和稳定性;该酶N端包含典型信号肽序列(氨基酸残基1~27),与其在黄色瘤胃球菌中作为分泌蛋白的功能定位相符;其蛋白理论分子量为106.87 ku,SDS-PAGE电泳检测结果(约110 ku)与理论值高度吻合,证实重组酶表达正确且未发生明显异常翻译后修饰。
α-Ara最显著的结构特征之一是其包含1个位于氨基酸残基187~240的纤维小体Dockerin结构域,该结构域是瘤胃细菌(如黄色瘤胃球菌)纤维素酶系统的标志性组件[32]。Dockerin结构域能够特异性地结合到支架蛋白(Scaffoldin)上的黏附素(Cohesin)结构域上,从而将α-Ara有效地整合到纤维小体这一大型多酶复合物中[32]。这种精密的超分子组装机制使得多种具有互补活性的酶(如纤维素酶、木聚糖酶、阿拉伯呋喃糖苷酶等)能够在空间上紧密协作,显著提高对复杂且高度结晶的木质纤维素底物的协同降解效率[33]。这种源于厌氧细菌(如黄色瘤胃球菌)的天然多酶复合物策略,为构建人工仿生酶复合物或优化酶鸡尾酒配方提供了绝佳的模板和组件[34]。因此,本研究中的α-Ara天然具备高效参与天然纤维小体降解体系的能力,这是许多游离表达的阿拉伯呋喃糖苷酶所不具备的关键优势。
α-Ara另一个值得关注的结构特点是其含有3个独立的GH43催化结构域,这种三催化结构域的构型在GH43家族酶中并不普遍。大多数已报道的细菌来源GH43家族阿拉伯呋喃糖苷酶通常只包含1个催化结构域[35-37]。例如,来自嗜热脂肪芽孢杆菌(Geobacillus stearothermophilus)的GH43家族阿拉伯呋喃糖苷酶AbnB,预测仅由1个五叶β-螺旋桨折叠催化结构域组成,该结构域内包含了所有关键的催化残基[天冬氨酸27(Asp27)、谷氨酸201(Glu201)、天冬氨酸147(Asp147)],并形成了1个可以容纳至少5个糖单元的活性位点裂隙,整个酶的催化功能完全由这个单一的结构域执行[36];来源于地衣芽孢杆菌(Bacillus licheniformis)的GH43家族阿拉伯呋喃糖苷酶BlAbn1,仅含有1个预测的GH43催化结构域,未发现其他功能结构域[37]。本研究在不同底物降解试验中发现,α-Ara不仅可以催化对硝基苯-α-L-阿拉伯呋喃糖苷以及对硝基苯-α-L-阿拉伯吡喃糖苷底物的水解反应,还可以催化对硝基苯-α-D-半乳糖苷和对硝基苯-β-D-半乳糖苷的水解反应,这可能与该酶具有3个催化功能域有关。这种潜在的多功能性结构域,或许使其在降解复杂且高度分支的阿拉伯木聚糖(如谷物麸皮中的阿拉伯木聚糖)时可能比单结构域的酶更具优势[14]
温度与pH是影响酶活性的关键因素,明确α-Ara的最适作用条件对其后续应用至关重要。目前报道的AFases最适温度多集中于40~50 ℃(如多数中温微生物来源酶),仅少数嗜热菌源酶[如火山地芽孢杆菌(Geobacillus vulcani)GS90的GvAbf52]可在70 ℃维持高活性[38]。本研究发现α-Ara的最适温度为50 ℃,在温度≤50 ℃时能保留80%以上酶活性,但温度超过60 ℃后酶活性骤降至不足5%,表明其热稳定性与多数AFases相当,适用于中低温环境。这一特性与其来源密切相关,α-Ara源自反刍动物瘤胃中专性厌氧菌黄色瘤胃球菌,该环境温度稳定(约39 ℃)且底物复杂(如富含阿拉伯木聚糖的牧草)[39]。尽管其耐热性显著低于嗜热菌GH43家族酶[栖热袍菌属(Thermotoga spp.)或热解纤维素菌属(Caldicellulosiruptor spp.)来源酶,最适温度70~90 ℃][40-41],但α-Ara在温和条件(37~50 ℃,近中性pH)下对底物的降解效率更具应用优势,尤其适用于无需高温能耗的生物转化过程。
在pH适应性方面,α-Ara展现出独特的耐碱特性。其最适pH为6.0,与陈金铃等[42]报道一致,且在pH为6.0~9.0时仍能维持40%以上酶活性。这一特性显著优于多数已报道AFases,例如,真菌源AFases最适pH常为酸性(pH 4.0~5.5),在碱性条件下失活迅速[14];而部分细菌酶[如地芽孢杆菌属(Geobacillus sp.)GeoARA]虽耐碱(最适pH 7.0),但pH>8.0时活性衰减明显[43]。相比之下,α-Ara在弱酸性至碱性环境(pH 6.0~9.0)中活性稳定,可以适应饲料加工(pH 6.5~7.5)、生物精炼(pH 7.0~8.5)等多样化的工业场景,减少反应体系的pH调节成本,在天然底物降解体系中具有独特优势。
本研究发现,添加不同种类的金属离子显著影响α-Ara的活性,揭示了其催化活性中心对金属离子环境的敏感性。多种二价和一价阳离子(Mg2+、Mn2+、Co2+、Ba2+、K+、Na+)对α-Ara表现出激活作用,这相较于许多文献报道的酶更具优势。例如,An等[44]从嗜热丝状真菌埃默森拉萨姆逊菌(Rasamsonia emersonii)中纯化的AFases对K+和Mg2+无显著反应;Numan等[45]的综述也指出,许多微生物来源的AFases对常见的二价金属离子(如Ca2+、Mg2+、Mn2+)通常表现为不敏感或轻微抑制。此外,本研究发现,Ca2+和Fe3+在较低浓度(1 mmol/L)时对α-Ara酶活性影响不显著,但当浓度升高至10 mmol/L时,则表现出抑制作用。这种高浓度抑制现象很可能源于金属离子竞争性地占据了酶的关键位点,干扰了酶与阿拉伯呋喃糖苷底物的正常结合或水解过程[46]。尤为值得注意的是,Cu2+、Ni2+以及金属螯合剂EDTA对α-Ara表现出强烈的抑制作用。在高浓度(10 mmol/L)Cu2+存在下,α-Ara的相对酶活性急剧下降至13.68%,但对比一些文献,其耐受性可能仍具相对优势。例如,De Vries等[47]报道的黑曲霉源AFases对低浓度Cu2+极为敏感,1 mmol/L的Cu2+即可导致90%以上的酶活性损失。
综上所述,本研究从黄色瘤胃球菌中获得的阿拉伯呋喃糖苷酶α-Ara,凭借其天然的纤维小体Dockerin结构域和独特的三GH43催化结构域,在结构上显著区别于许多已知的GH43家族酶。这种结构赋予了它潜在的多功能性以及在纤维小体介导下对天然木质纤维素底物进行高效协同降解的核心优势。此外,α-Ara凭借中温高效性以及宽pH耐受性(尤其碱性环境),在节能型生物催化领域具有明确的应用潜力。以上优势使其在饲料添加剂、生物能源、功能性寡糖生产和生物质精炼等领域展现出诱人的应用前景。未来的研究应着重于深入表征其结构域的具体功能分工、验证其作为纤维小体组分的协同效率,并探索其在上述应用场景中的实际效果。

4 结论

本研究成功克隆并表达了来源于黄色瘤胃球菌的阿拉伯呋喃糖苷酶α-Ara。生物信息学分析表明,该酶为含有纤维小体Dockerin结构域以及3个催化模块的α-L-阿拉伯呋喃糖苷酶,这些结构使其在降解复杂且高度分支的天然木质纤维素底物时可能比单结构域的酶更具优势。酶学特性分析发现,α-Ara最适温度为50 ℃(温度≤50 ℃时,保留80%以上酶活性),最适pH为6.0,且在pH 6.0~9.0的宽范围内保持>40%酶活性。这种中温高效性与宽pH(尤其耐碱)适应性,使其非常适用于无需高温调控、环境多变的饲料加工及生物转化过程。此外,α-Ara在金属离子响应特性上展现出显著特点,多种金属离子(Mg2+、Mn2+、Co2+、Ba2+、K+、Na+)可激活其活性,且对Cu2+的抑制具有相对耐受性。以上优势使其在饲料添加剂、生物能源、功能性寡糖生产和生物质精炼等领域展现出广阔的应用前景。
[1]
Food and Agriculture Organization of the United Nations. World food and agriculture-statistical yearbook 2023[M]. Rome: Food and Agriculture Organization of the United Nations. 2023.

[2]
荣元江, 张明均, 申李, 等. 秸秆饲料化生物处理技术研究进展[J]. 黑龙江畜牧兽医, 2025,(11):26-32.

RONG Y J, ZHANG M J, SHEN L, et al. Research progress on biological treatment technology for straw feed[J]. Heilongjiang Animal Science and Veterinary Medicine, 2025,(11):26-32. (in Chinese)

[3]
WANG X, YANG Z, LIU X, et al. The composition characteristics of different crop straw types and their multivariate analysis and comparison[J]. Waste Management, 2020, 110:87-97.

DOI PMID

[4]
朱金霞, 孔德杰, 尹志荣. 农作物秸秆主要化学组成及还田后对土壤质量提升影响的研究进展[J]. 北方园艺, 2020,(5):146-153.

ZHU J X, KONG D J, YIN Z R. Research progress on the main chemical composition of crop straw and its impact on soil quality improvement after returning to the field[J]. Northern Horticulture, 2020,(5):146-153. (in Chinese)

[5]
CHEN B, MOHRMANN S, LI H T, et al. Research and application progress of straw[J]. Journal of Renewable Materials, 2023, 11(2):599-623.

DOI

[6]
MAKKAR H P S. Animal nutrition in a 360-degree view and a framework for future R&D work:towards sustainable livestock production[J]. Animal Production Science, 2016, 56(10):1561-1568.

DOI

[7]
HIMMEL M E, DING S Y, JOHNSON D K, et al. Biomass recalcitrance:engineering plants and enzymes for biofuels production[J]. Science, 2007, 315(5813):804-807.

DOI

[8]
SCHELLER H V, ULVSKOV P. Hemicelluloses[J]. Annual Review of Plant Biology, 2010, 61:263-289.

DOI PMID

[9]
ABURAYA S, ESAKA K, MORISAKA H, et al. Elucidation of the recognition mechanisms for hemicellulose and pectin in Clostridium cellulovorans using intracellular quantitative proteome analysis[J]. AMB Express, 2015, 5:29.

[10]
ALCÁNTARA M Á B, DOBRUCHOWSKA J, AZADI P, et al. Recalcitrant carbohydrates after enzymatic hydrolysis of pretreated lignocellulosic biomass[J]. Biotechnology for Biofuels, 2016, 9(1):207.

DOI

[11]
屈海珠, 高明艳, 祁军英, 等. 复合纤维素酶制剂对育肥羊增重效果的分析[J]. 畜禽业, 2020, 31(12):18-19.

QU H Z, GAO M Y, QI J Y, et al. Analysis of the effect of compound cellulase preparation on the weight gain of fattening sheep[J]. Livestock and Poultry Industry, 2020, 31(12):18-19. (in Chinese)

[12]
KIARIE E, ROMERO L F, NYACHOTI C M. The role of added feed enzymes in promoting gut health in swine and poultry[J]. Nutrition Research Reviews, 2013, 26(1):71-88.

DOI PMID

[13]
KAJI A. L-arabinosidases[J]. Advances in Carbohydrate Chemistry and Biochemistry, 1984, 42:383-394.

[14]
SAHA B C. α-L-arabinofuranosidases:biochemistry,molecular biology,and application in biotechnology[J]. Biotechnology Advances, 2000, 18(5):403-423.

DOI

[15]
BIELY P, SINGH S, PUCHART V. Towards enzymatic breakdown of complex plant xylan structures:state of the art[J]. Biotechnology Advances, 2016, 34(7):1260-1274.

DOI

[16]
WILKENS C, ANDERSEN S, DUMON C, et al. GH62 arabinofuranosidases:structure,function and applications[J]. Biotechnology Advances, 2017, 35(6):792-804.

DOI

[17]
LONG L, LIN Q, WANG J, et al. Microbial α-L-arabinofuranosidases:diversity,properties,and biotechnological applications[J]. World Journal of Microbiology and Biotechnology, 2024, 40:84.

[18]
PORIA V, SAINI J K, SINGH S, et al. Arabinofuranosidases:characteristics,microbial production,and potential in waste valorization and industrial applications[J]. Bioresource Technology, 2020, 304:123019.

[19]
BEDFORD M R, PARTRIDGE G G. Enzymes in farm animal nutrition[M]. 2nd ed.London: CABI, 2010.

[20]
COLOMBATTO D, MOULD F L, BHAT M K, et al. Use of fibrolytic enzymes to improve the nutritive value of ruminant diets:a biochemical and in vitro rumen degradation assessment[J]. Animal Feed Science and Technology, 2003, 107(1-4):201-209.

DOI

[21]
LEI Z, SHAO Y X, YIN X N, et al. Combination of xylanase and debranching enzymes specific to wheat arabinoxylan improve the growth performance and gut health of broilers[J]. Journal of Agricultural and Food Chemistry, 2016, 64(24):4932-4942.

DOI PMID

[22]
DASSA B, BOROVOK I, RUIMY-ISRAELI V, et al. Rumen cellulosomics:divergent fiber-degrading strategies revealed by comparative genome-wide analysis of six ruminococcal strains[J]. PLoS One, 2014, 9(7):e99221.

DOI

[23]
BRYANT M P, SMALL N, BOUMA C, et al. Characteristics of ruminal anaerobic cellulolytic cocci and Cillobacterium cellulosolvens n.sp[J]. Journal of Bacteriology, 1958, 76(5):529-537.

DOI PMID

[24]
GAVANDE P V, KUMAR K, AHMED J, et al. Multifunctionality and mechanism of processivity of family GH5 endoglucanase,RfGH5_4 from Ruminococcus flavefaciens on lignocellulosic polymers[J]. International Journal of Biological Macromolecules, 2023, 224:1395-1411.

DOI

[25]
HESS M, SCZYRBA A, EGAN R, et al. Metagenomic discovery of biomass-degrading genes and genomes from cow rumen[J]. Science, 2011, 331(6016):463-467.

DOI PMID

[26]
FERRER M, GOLYSHINA O V, CHERNIKOVA T N, et al. Novel hydrolase diversity retrieved from a metagenome library of bovine rumen microflora[J]. Environmental Microbiology, 2005, 7(12):1996-2010.

PMID

[27]
钮慧晶. Swollenin的异源表达及其与纤维素酶对玉米秸秆青贮品质和体外发酵的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2023.

NIU H J. Heterologous expression of Swollenin and its effect with cellulase on corn straw silage quality and in vitro rumen fermentation[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2023. (in Chinese)

[28]
LINEWEAVER H, BURK D. The determination of enzyme dissociation constants[J]. Journal of the American Chemical Society, 1934, 56(3):658-666.

DOI

[29]
RAVN J L, GLITSØ V, PETTERSSON D, et al. Combined endo-β-1,4-xylanase and α-L-arabinofuranosidase increases butyrate concentration during broiler cecal fermentation of maize glucurono-arabinoxylan[J]. Animal Feed Science and Technology, 2018, 236:159-169.

DOI

[30]
BULMER G S, YUEN F W, BEGUM N, et al. Biochemical characterization of a glycoside hydrolase family 43 β-D-galactofuranosidase from the fungus Aspergillus niger[J]. Enzyme and Microbial Technology, 2023, 164:110170.

[31]
GOMES B M, DE OLIVEIRA G S, DE MELO V S, et al. Structural and functional characterization of a bifunctional GH43 α-L-arabinofuranosidase/β-xylosidase from the metagenome of Pseudacanthotermes militaris gut[J]. International Journal of Biological Macromolecules, 2025, 329(Part 2):147909.

DOI

[32]
BAYER E A, BELAICH J P, SHOHAM Y, et al. The cellulosomes: multienzyme machines for degradation of plant cell wall polysaccharides[J]. Annual Review of Microbiology, 2004, 58:521-554.

PMID

[33]
FONTES C M G A, GILBERT H J. Cellulosomes:highly efficient nanomachines designed to deconstruct plant cell wall complex carbohydrates[J]. Annual Review of Biochemistry, 2010, 79:655-681.

DOI

[34]
ATRZI L, BAYER E A, MORAIS S. Cellulosomes:bacterial nanomachines for dismantling plant polysaccharides[J]. Nature Reviews Microbiology, 2017, 15(2):83-95.

DOI

[35]
GILEAD S, SHOHAM Y. Purification and characterization of alpha-L-arabinofuranosidase from Bacillus stearothermophilus T-6[J]. Applied and Environmental Microbiology, 1995, 61(1):170-174.

DOI

[36]
ALHASSID A, BEN-DAVID A, TABACHNIKOV O, et al. Crystal structure of an inverting GH43 1,5-α-L-arabinanase from Geobacillus stearothermophilus complexed with its substrate[J]. Biochemical Journal, 2009, 422(1):73-82.

DOI

[37]
FARRO E G S, LEITE A E T, SILVA I A, et al. GH43 endo-arabinanase from Bacillus licheniformis:structure,activity and unexpected synergistic effect on cellulose enzymatic hydrolysis[J]. International Journal of Biological Macromolecules, 2018, 117:7-16.

DOI

[38]
SÜRMELI Y, ŞANLI-MOHAMED G. Structural and functional analyses of GH51 α-L-arabinofuranosidase of Geobacillus vulcani GS90 reveal crucial residues for catalytic activity and thermostability[J]. Biotechnology and Applied Biochemistry, 2023, 70(3):1100-1108.

DOI

[39]
FLINT H J, BAYER E A, RINCON M T, et al. Polysaccharide utilization by gut bacteria:potential for new insights from genomic analysis[J]. Nature Reviews Microbiology, 2008, 6(2):121-131.

DOI

[40]
ZVERLOV V V, SCHANTZ N, SCHWARZ W H. A major new component in the cellulosome of Clostridium thermocellum is a processive endo-β-1,4-glucanase producing cellotetraose[J]. FEMS Microbiology Letters, 2005, 249(2):353-358.

DOI

[41]
DODD D, CANN I K O. Enzymatic deconstruction of xylan for biofuel production[J]. Global Change Biology Bioenergy, 2009, 1(1):2-17.

DOI

[42]
陈金玲, 杨杰, 魏真. 微生物来源的α-L-阿拉伯呋喃糖苷酶的研究进展[J]. 食品工业科技, 2024, 45(6):343-351.

CHEN J L, YANG J, WEI Z. Research progress of α-L-arabinofuranosidase from microorganisms[J]. Science and Technology of Food Industry, 2024, 45(6):343-351. (in Chinese)

[43]
DE MELO V S, GOMES B M, GAZIRI T, et al. Biochemical characterization and molecular dynamics study of a thermostable endo-1,5-α-arabinanase[J]. Protein Expression and Purification, 2025, 231:106720.

[44]
AN I L, XU W Q, MENG X F, et al. Biochemical characterization of a thermophilic exo-arabinanase from the filamentous fungus Rasamsonia emersonii[J]. Journal of Bioscience and Bioengineering, 2022, 133(4):316-322.

DOI

[45]
NUMAN M T, BHOSLE N B. α-L-arabinofuranosidases:the potential applications in biotechnology[J]. Journal of Industrial Microbiology & Biotechnology, 2006, 33(4):247-260.

[46]
PURICH D L. Enzyme kinetics:catalysis and control[M]. New York: Academic Press,2010:53-169.

[47]
DE VRIES R P, KESTER H C M, POULSEN C H, et al. Synergy between enzymes from Aspergillus involved in the degradation of plant cell wall polysaccharides[J]. Carbohydrate Research, 2000, 327(4):401-410.

DOI

文章导航

/