研究论文

不同剂量胆汁酸对山羊瘤胃微生物和发酵特征的影响

  • 邹心悦 , 1 ,
  • 邱时秀 2 ,
  • 王之盛 1 ,
  • 薛白 1 ,
  • 王立志 1 ,
  • 胡瑞 1 ,
  • 肖鉴鑫 1 ,
  • 姜雅慧 1 ,
  • 邹华围 1 ,
  • 许祯莹 , 2, ** ,
  • 彭全辉 , 1, **
展开
  • 1 四川农业大学动物营养研究所,教育部抗病营养重点实验室,成都 611130
  • 2 成都市农林科学院,成都 611130
** 许祯莹,正高级畜牧师,E-mail: ;
彭全辉,副教授,硕士生导师,E-mail:

*同等贡献作者

邹心悦(2000—),女,四川巴中人,硕士研究生,畜牧专业。E-mail:

收稿日期: 2025-07-04

  网络出版日期: 2026-01-13

基金资助

四川省科技教育联合基金(2025NSFSC2127)

国家现代农业产业技术体系四川省肉羊创新团队(SCCXTD-2024-14)

成都市科技局重点研发支撑计划(2025-YF05-00548-SN)

Effects of Different Doses of Bile Acids on Rumen Microbiota and Fermentation Characteristics of Goats

  • ZOU Xinyue , 1 ,
  • QIU Shixiu 2 ,
  • WANG Zhisheng 1 ,
  • XUE Bai 1 ,
  • WANG Lizhi 1 ,
  • HU Rui 1 ,
  • XIAO Jianxin 1 ,
  • JIANG Yahui 1 ,
  • ZOU Huawei 1 ,
  • XU Zhenying , 2, ** ,
  • PENG Quanhui , 1, **
Expand
  • 1 Key Laboratory of Animal Disease-Resistance Nutrition, Ministry of Education, Institute of Animal Nutrition,Sichuan Agricultural University, Chengdu 611130, China
  • 2 Chengdu Academy of Agriculture and Forestry Sciences, Chengdu 611130, China
** XU Zhenying, senior animal husbandry engineer, E-mail: ;
PENG Quanhui, associate professor, E-mail:

*Contributed equally

Received date: 2025-07-04

  Online published: 2026-01-13

摘要

本试验旨在探究饲粮添加不同剂量胆汁酸对山羊瘤胃微生物和发酵特征的影响。选择15只初始体重为(31.18±0.14) kg的10月龄健康川中黑山羊,随机分为3组,每组5个重复,每个重复1只。对照组(CON组)饲喂基础饲粮,低剂量胆汁酸组(LBA组)饲喂基础饲粮+1.5 g/kg DM胆汁酸,高剂量胆汁酸组(HBA组)饲喂基础饲粮+4.5 g/kg DM胆汁酸。预试期7 d,正试期60 d。结果表明:1)与CON组相比,HBA组终末体重显著提高(P<0.05)。2)与CON组相比,HBA组瘤胃乙酸浓度显著提高(P<0.05),LBA组和HBA组瘤胃丙酸浓度显著降低(P<0.05)。3)与CON组相比,HBA组瘤胃微生物群落Chao1和Shannon指数均显著提高(P<0.05);置换多元方差分析(PERMANOVA)表明,各组间瘤胃微生物群落结构存在显著差异(P<0.05)。4)与CON组相比,在门水平上,LBA组和HBA组瘤胃芽孢杆菌门(Bacillota)相对丰度显著提高(P<0.05),HBA组瘤胃纤维杆菌门(Fibrobacterota)相对丰度显著提高(P<0.05);在属水平上,LBA组和HBA组瘤胃普雷沃氏菌属(Prevotella)相对丰度显著降低(P<0.05),HBA组瘤胃纤维杆菌属(Fibrobacter)相对丰度显著提高(P<0.05)。5)京都基因与基因组百科全书同源基因(KO)功能注释显示,与CON组相比,LBA组和HBA组其他次级代谢物生物合成通路相对丰度显著提高(P<0.05);同时,HBA组K01179(内切葡聚糖酶)相对丰度显著提高(P<0.05),LBA组和HBA组K00625(磷酸乙酰转移酶)相对丰度显著降低(P<0.05)。综上所述,胆汁酸可通过调节瘤胃菌群结构和代谢功能,增强纤维降解能力,提高乙酸产量,改变瘤胃发酵模式,且高剂量胆汁酸(4.5 g/kg DM)作用更显著。

本文引用格式

邹心悦 , 邱时秀 , 王之盛 , 薛白 , 王立志 , 胡瑞 , 肖鉴鑫 , 姜雅慧 , 邹华围 , 许祯莹 , 彭全辉 . 不同剂量胆汁酸对山羊瘤胃微生物和发酵特征的影响[J]. 动物营养学报, 2026 , 38(1) : 506 -519 . DOI: 10.12418/CJAN2026.040

Abstract

This experiment aimed to explore the effects of dietary supplementation with different doses of bile acids on rumen microbiota and fermentation characteristics of goats. Fifteen 10-month-old healthy Chuanzhong black goats with an initial body weight of (31.18±0.14) kg were selected and randomly divided into 3 groups, with 5 replicates in each group and 1 goat in each replicate. The control group (CON group) was fed with a basal diet, while the low-dose bile acid group (LBA group) was fed with the basal diet+1.5 g/kg DM bile acid, and the high-dose bile acid group (HBA group) was fed with the basal diet+4.5 g/kg DM bile acid. The experiment lasted for 60 days after a 7-day adaptation. The results showed as follows: 1) compared with CON group, the final body weight in HBA group was significantly increased (P<0.05). 2) Compared with CON group, the rumen acetate concentration in HBA group was significantly increased (P<0.05), while the rumen propionate concentration in LBA group and HBA group was significantly decreased (P<0.05). 3) Compared with CON group, the Chao1 and Shannon indices of rumen microbiota in HBA group were significantly increased (P<0.05); permutational multivariate analysis of variance (PERMANOVA) indicated that there were significant differences in rumen microbiota structure among the groups (P<0.05). 4) Compared with CON group, at the phylum level, the rumen Bacillota relative abundance in LBA group and HBA group was significantly increased (P<0.05), and the rumen Fibrobacterota relative abundance in HBA group was significantly increased (P<0.05); at the genus level, the rumen Prevotella relative abundance in LBA group and HBA group was significantly decreased (P<0.05), while the rumen Fibrobacter relative abundance in HBA group was significantly increased (P<0.05). 5) The function annotation of Kyoto Encyclopedia of Genes and Genomes Orthology (KO) showed that compared with CON group, the relative abundance of biosynthesis of other secondary metabolites pathway in LBA group and HBA group was significantly increased (P<0.05); meanwhile, the K01179 (endoglucanase) relative abundance in HBA group was significantly increased (P<0.05), while the K00625 (phosphate acetyltransferase) relative abundance in LBA group and HBA group was significantly decreased (P<0.05). In conclusion, bile acids can enhance fiber degradation capacity, increase acetate production, and alter rumen fermentation patterns by regulating the structure and metabolic function of rumen microbiota. Moreover, high-dose bile acids (4.5 g/kg DM) have a more significant effect.

在反刍动物中,瘤胃是主要的微生物发酵场所,其微生物群落可将植物性多糖转化为挥发性脂肪酸(volatile fatty acid,VFA)等能量物质[1]。VFA支持反刍动物高达85%的日常能量需要[2],而饲粮组成和饲料添加剂均会影响瘤胃发酵模式,从而导致动物能量利用效率和饲料利用率发生变化[3]
胆汁酸作为脂质代谢和免疫稳态的核心调控因子,通过肠肝循环与全身多器官受体互作,在营养吸收和代谢调控中发挥关键作用[4]。近年的研究表明,胆汁酸不仅通过乳化膳食脂肪促进脂质吸收,更能通过重塑胃肠道菌群结构、激活过氧化物酶体增殖物活化受体(PPAR)等信号通路,实现对免疫功能和能量代谢的系统性调节[5]。有研究指出,外源胆汁酸的添加可改善反刍动物生产性能和健康状况。Zhang等[6]在羔羊中观察到,胆汁酸有助于脂肪再分配,提高瘦肉率,减少皮下及尾部脂肪沉积,显著改善胴体品质;在奶山羊中则通过调节瘤胃-宿主的双向生理过程,提升机体健康水平[7]。陈悦等[8]研究也证实,胆汁酸可改变瘤胃微生物区系,提高瘤胃pH和乙酸浓度,缓解山羊亚急性瘤胃酸中毒,从而提高山羊生长性能。
Yin等[9]研究表明,添加4 g/d胆汁酸可以显著提高奶山羊产奶量,优化奶山羊乳脂组成。Hou等[10]研究发现,添加3 g/d胆汁酸可以改变亚急性瘤胃酸中毒山羊肝脏代谢和肠道微生物群落组成,激活PPAR信号通路,并最终改善肠道黏膜屏障损伤。然而,胆汁酸对正常生长状态下肉用山羊瘤胃微生物组成及代谢的影响目前尚不清楚。因此,本研究以川中黑山羊为研究对象,探究添加不同剂量胆汁酸对瘤胃微生物群落结构和功能以及瘤胃发酵特征的影响,以期揭示其潜在的营养调控机制并为胆汁酸的科学应用提供依据。

1 材料与方法

1.1 伦理声明

本研究使用的试验动物和试验设计方案已通过四川农业大学动物伦理委员会批准(伦理批准号:20240112)。

1.2 试验材料

本试验所用胆汁酸混合物由21.96%猪去氧胆酸、5.94%鹅去氧胆酸和1.17%猪胆酸组成,胆汁酸纯度≥30%。试验设计中所称胆汁酸均以纯成分计,实际添加量已根据纯度换算。

1.3 试验设计和饲养管理

选择15只初始体重为(31.18±0.14) kg的10月龄健康川中黑山羊,按照完全随机试验设计分为3组,每组5个重复,每个重复1只。对照组(CON组)饲喂基础饲粮,低剂量胆汁酸组(LBA组)饲喂基础饲粮+1.5 g/kg DM胆汁酸,高剂量胆汁酸组(HBA组)饲喂基础饲粮+4.5 g/kg DM胆汁酸。基础饲粮参考《肉羊营养需要量》(NY/T 816—2021)配制,为全混合日粮,其组成及营养水平见表1。试验共67 d,其中预试期7 d(各组统一饲喂基础饲粮),正试期60 d(各组饲喂相应试验设计饲粮)。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
苜蓿草粉Alfalfa grass meal 16.20
稻草秸秆Rice straw 19.40
玉米Corn 40.66
麦麸Wheat bran 4.30
豆粕Soybean meal 9.50
棉籽粕Cottonseed meal 3.10
菜籽粕Rapeseed meal 3.00
碳酸钙CaCO3 0.80
磷酸氢钙CaHPO4 0.54
碳酸氢钠NaHCO3 1.00
食盐NaCl 0.50
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
干物质DM 87.73
代谢能ME/(MJ/kg) 11.21
粗蛋白质CP 14.06
粗脂肪EE 2.59
中性洗涤纤维NDF 32.07
酸性洗涤纤维ADF 18.20
钙Ca 0.84
磷P 0.41

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:VA 6 000 IU,VD3 1 500 IU,VE 50 mg,Cu (as copper sulfate) 9 mg,Fe (as ferrous sulfate) 40 mg,Mn (as manganese sulfate) 50 mg,Zn (as zinc sulfate) 60 mg,I (as potassium iodide) 0.5 mg,Se (as sodium selenite) 0.2 mg,Co (as cobalt chloride) 0.2 mg。

2)代谢能为计算值,参考《肉羊营养需要量》(NY/T 816—2021)计算;其余均为实测值。ME was a calculated value according to Nutrient Requirements of Meat-Type Sheep and Goat (NY/T 816—2021), while the others were measured values。

试验地点位于四川农业大学雅安市教学科研基地。试验期间,每天饲喂2次(08:00和16:00各1次),试验羊自由采食和饮水。在试验开展前,对羊舍进行全面清洁和消毒处理,同时对供水装置等配套设施进行功能检测。所有试验羊在试验开始前均已完成驱虫。

1.4 测定指标及方法

1.4.1 饲粮营养水平

按照GB/T 14699.1—2005采集饲粮样品,经干燥、粉碎处理后,参照GB/T 6435—2014测定干物质(DM)含量,参照GB/T 6432—2018测定粗蛋白质(CP)含量,参照GB/T 6433—2006测定粗脂肪(EE)含量,分别参照GB/T 20806—2022和NY/T 1459—2022测定中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量,分别参照GB/T 13885—2017和GB/T 6437—2018测定钙(Ca)和磷(P)含量。

1.4.2 生长性能

于正试期第1天和第60天晨饲前对试验羊进行称重,分别作为初始体重和终末体重(FBW);正试期间每天记录试验羊采食量,计算平均日采食量(ADFI)、平均日增重(ADG)和料重比(F/G)。计算公式如下:
ADG=(终末体重-初始体重)/饲养天数;
ADFI=总采食量/饲养天数;
F/G=ADFI/ADG。

1.4.3 瘤胃液和瘤胃内容物采集

试验结束后,所有试验羊禁食12 h进行屠宰,屠宰后采集瘤胃内容物,通过4层无菌医用纱布(孔径100 μm)过滤后,将滤液分装至3支15 mL无菌离心管中,每管体积约10 mL,用于瘤胃发酵参数的测定;取滤后固相食糜样本约5 g,分装至3支5 mL无菌冻存管中,用于瘤胃微生物宏基因组测序。所有样本于液氮中速冻2 min后转移至-80 ℃超低温冰箱中保存。

1.4.4 瘤胃发酵参数测定

采用便携式pH计(PHS-3C,雷磁)测定瘤胃液pH。
瘤胃VFA浓度参照Erwin等[11]的方法进行测定。将瘤胃液样品自然解冻后充分混匀,取2 mL于离心管中,以7 155×g离心15 min,取1 mL上清液置于1.5 mL离心管中,加入0.2 mL 25%(w/v)偏磷酸溶液和40 μL 210 mmol/L巴豆酸内标溶液,旋涡混匀后于室温静置30 min,再以11 180×g离心10 min;取上清液0.1 mL加入0.9 mL甲醇,继续离心(11 180×g,5 min),过滤后使用气相色谱仪(CP-3800,Varian,美国)进行分析。
瘤胃氨态氮(NH3-N)浓度采用苯酚-次氯酸钠比色法进行测定。瘤胃液样品4 ℃离心后(16 099×g,15 min),取上清,在625 nm波长下于紫外分光光度计(Ultrospec 6300,Amersham,英国)上读取吸光度值;以标准NH3-N溶液绘制标准曲线,计算样品NH3-N浓度。
瘤胃微生物蛋白(microbial crude protein,MCP)浓度参考Makkar等[12]的方法进行测定。取瘤胃液5 mL,加入等体积的5%三氯乙酸,4 ℃静置30 min后4 ℃、16 099×g离心15 min,取沉淀后以考马斯亮蓝法[13]测定其蛋白质含量;以牛血清白蛋白为标准建立标准曲线,计算MCP浓度,结果以mg/mL表示。

1.4.5 瘤胃微生物宏基因组测序

1.4.5.1 DNA提取

采用十六烷基三甲基溴化铵(CTAB)对15份山羊瘤胃内容物样本进行基因组DNA提取,使用片段分析仪(Agilent 5400,美国)对DNA浓度、完整性以及纯度进行检测。

1.4.5.2 文库构建和高通量测序

采用NEB Next® UltraTM DNA Library Prep Kit for Illumina(E7370L,NEB,美国)构建DNA文库。DNA样品检测合格后(15份均合格),使用超声波破碎仪(M220,Covaris,美国)将样品碎片化至350 bp的大小,再经末端修复、加A尾、加测序接头、片段筛选、PCR扩增和纯化步骤完成整个文库制备工作。然后进一步进行PCR扩增,PCR产物通过AMPure XP系统(Beverly,美国)进行纯化,并用片段分析仪(Agilent 5400,美国)评估文库质量,最后通过qPCR(1.5 nmol/L)对文库浓度进行定量。

1.4.5.3 上机测序

采用单样独立策略(无混样)在Illumina NovaSeq平台上进行PE150双端测序。

1.4.5.4 数据质量控制和去宿主序列

利用Illumina NovaSeq高通量测序平台进行宏基因组测序,获得山羊瘤胃内容物样品中细菌、真菌和病毒等的宏基因组原始数据(raw data)。原始数据(FASTQ格式)的质量控制和宿主污染去除通过KneadData工具完成(整合Trimmomatic和Bowtie2)[14-16]。去除原始数据中的接头序列(基于Trimmomatic,参数:ILLUMINACLIP:adapters_path:2:30:10)、低质量(默认质量分阈值≤20)序列(基于Trimmomatic,参数:SLIDINGWINDOW:4:20)以及最终长度小于50 bp的序列(基于Trimmomatic,参数:MINLEN:50),使用Bowtie2(参数:--very-sensitive)将reads比对至Capra hircus参考基因组,去除宿主来源序列;利用FastQC对质控前后的数据进行质量评估[14,17]。处理后获得的clean reads被用于后续物种组成和功能注释分析。本研究的宏基因组原始测序数据已提交至美国国家生物技术信息中心(NCBI)SRA数据库(项目登录号:PRJNA1290290;序列登录号:SRP600120)。

1.4.5.5 物种注释分析

使用Kraken2(--confidence 0.2)结合自建微生物核酸数据库(基于NCBI NT和RefSeq中提取的细菌、真菌、古菌和病毒序列)对clean reads进行物种注释[17-18]。为提高丰度估计的准确性,采用Bracken对Kraken2的分类结果进行贝叶斯后处理。

1.4.5.6 功能注释分析

使用MEGAHIT软件[19]将所有样本的clean reads组装生成contigs,经Prodigal[20]预测基因序列(参数:-p meta);通过CD-HIT对基因去冗余(相似度阈值95%,参数:-c 0.95 -G 1),使用Salmon定量获取TPM值;将去冗余基因翻译为蛋白序列后,仅通过eggnog-mapper(参数:--seed_ortholog_evalue 0.00001)提取京都基因与基因组百科全书同源基因(KEGG Orthology,KO)数据库的注释信息,生成KO编号及功能描述表;将归属相同KO编号的基因TPM值加和,构建KO功能基因丰度矩阵,用于后续差异分析。

1.5 数据统计和分析

试验数据采用Excel 2016进行初步整理,然后采用SPSS 27.0软件进行单因素方差分析(one-way ANOVA),并采用Tukey法进行多重比较。针对宏基因组学中非正态分布的数据,采用Kruskal-Wallis非参数检验进行处理,同时通过Spearman相关性分析探讨瘤胃发酵参数与细菌群落相对丰度的相关性。可视化呈现借助Origin 2022实现。结果数据以平均值和均值标准误(SEM)表示,其中P<0.05表示差异显著,0.05≤P<0.10表示存在显著差异趋势。

2 结果与分析

2.1 不同剂量胆汁酸对山羊生长性能的影响

表2可知,HBA组山羊终末体重显著高于CON组和LBA组(P<0.05);与CON组相比,LBA组和HBA组ADG(P=0.064)和ADFI(P=0.058)有显著提高趋势。
表2 不同剂量胆汁酸对山羊生长性能的影响

Table 2 Effects of different doses of bile acids on growth performance of goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LBA HBA
初始体重IBW/kg 30.93 31.40 31.23 0.137 0.980
终末体重FBW/kg 37.27b 38.63b 40.18a 0.840 0.004
平均日增重ADG/(g/d) 130.37 171.07 199.07 19.940 0.064
平均日采食量ADFI/(g/d) 1 327.17 1 594.37 1 622.42 81.564 0.058
料重比F/G 10.18 9.32 8.15 0.478 0.241

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 不同剂量胆汁酸对山羊瘤胃发酵参数的影响

表3可知,HBA组山羊瘤胃乙酸浓度显著高于CON组(P<0.05),而LBA组瘤胃乙酸浓度与其他2组相比无显著差异(P>0.05);与CON组相比,LBA组和HBA组瘤胃丙酸浓度显著降低(P<0.05),瘤胃乙酸/丙酸(A/P)值有显著提高趋势(P=0.057);与CON组和LBA组相比,HBA组瘤胃NH3-N浓度有提高趋势(P=0.054)。
表3 不同剂量胆汁酸对山羊瘤胃发酵参数的影响

Table 3 Effects of different doses of bile acids on rumen fermentation parameters of goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LBA HBA
pH 6.02 6.57 6.41 0.144 0.277
总挥发性脂肪酸TVFA/(mmol/L) 78.41 81.35 86.29 1.721 0.146
乙酸Acetate/(mmol/L) 55.33b 61.53ab 64.92a 1.533 0.022
丙酸Propionate/(mmol/L) 17.66a 14.73b 14.32b 0.760 0.035
丁酸Butyrate/(mmol/L) 3.91 3.63 4.04 0.161 0.304
戊酸Valerate/(mmol/L) 0.53 0.54 0.41 0.121 0.360
异丁酸Isobutyrate/(mmol/L) 0.47 0.61 0.37 0.080 0.178
异戊酸Isovalerate/(mmol/L) 0.47 0.40 0.42 0.020 0.441
乙酸/丙酸A/P 3.42 4.09 4.15 0.144 0.057
氨态氮NH3-N/(mg/dL) 11.38 11.47 13.93 0.513 0.054
微生物蛋白MCP/(mg/dL) 38.81 40.65 43.27 0.681 0.093

2.3 不同剂量胆汁酸对山羊瘤胃微生物区系的影响

2.3.1 瘤胃微生物操作分类单元(OTU)分析
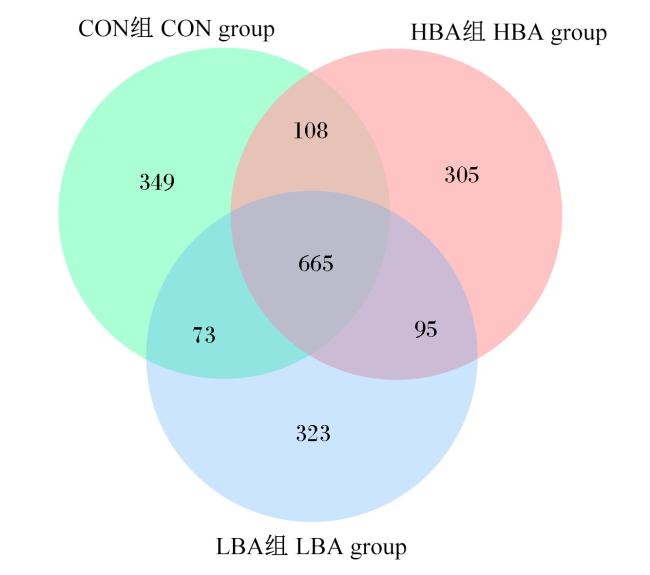
通过对各组山羊瘤胃微生物进行OTU分析,结果发现(图1),CON组特有的OTU数为349个,LBA组特有的OTU数为323个,HBA组特有的OTU数为305个,而3组共有的OTU数为665个。
图1 山羊瘤胃微生物OTU韦恩图

Fig.1 Venn diagram of OTU in rumen microbiota of goats

2.3.2 瘤胃微生物多样性分析

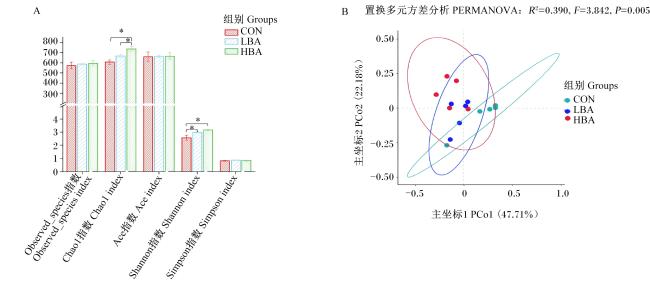
图2-A所示,α多样性分析结果表明,HBA组Chao1指数显著高于CON组和LBA组(P<0.05),LBA组和HBA组Shannon指数均显著高于CON组(P<0.05)。图2-B所示,主坐标分析(PCoA)结果表明,主坐标1的贡献率为47.71%,主坐标2的贡献率为22.18%;置换多元方差分析(PERMANOVA)表明,各组间瘤胃微生物群落结构存在显著差异(P<0.05)。
图2 不同剂量胆汁酸对山羊瘤胃微生物多样性的影响

数据柱标记*表示差异显著(P<0.05),图5同。Data columns marked with * indicated significant difference (P<0.05), the same as Fig.5.

A:α多样性分析 α diversity analysis;B:主坐标分析 PCoA。

Fig.2 Effects of different doses of bile acids on rumen microbiota diversity of goats

2.3.3 瘤胃微生物组成分析

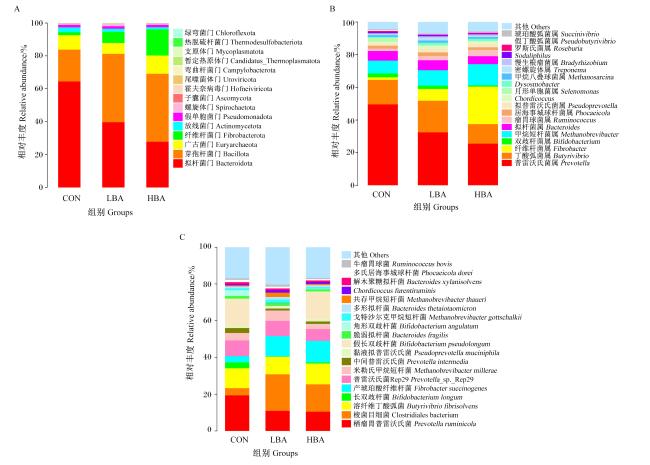
图3-A所示,在门水平上,3组瘤胃优势菌门为拟杆菌门(Bacteroidota)、芽孢杆菌门(Bacillota,原厚壁菌门)等。由表4可知,筛选瘤胃微生物中相对丰度≥0.01的优势菌门进行比较,结果显示,LBA组和HBA组瘤胃拟杆菌门相对丰度有显著低于CON组的趋势(P=0.057),而瘤胃芽孢杆菌门相对丰度显著高于CON组(P<0.05);HBA组瘤胃纤维杆菌门(Fibrobacterota)相对丰度显著高于CON组和LBA组(P<0.05)。
图3 不同剂量胆汁酸对山羊瘤胃微生物组成的影响

A:门水平 phylum level;B:属水平 genus level;C:种水平 species level。

Fig.3 Effects of different doses of bile acids on rumen microbiota composition of goats

表4 山羊瘤胃微生物在门水平上的组成(相对丰度≥0.01)

Table 4 Rumen microbiota composition of goats at phylum level (relative abundance≥0.01)

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LBA HBA
拟杆菌门Bacteroidota 0.36 0.23 0.17 0.023 0.057
芽孢杆菌门Bacillota 0.11b 0.25a 0.26a 0.023 <0.001
广古菌门Euryarchaeota 0.05 0.04 0.07 0.011 0.559
纤维杆菌门Fibrobacterota 0.01b 0.04b 0.10a 0.012 0.001
放线菌门Actinomycetota 0.01 0.01 0.01 0.002 0.160
图3-B所示,在属水平上,3组瘤胃优势菌属为普雷沃氏菌属(Prevotella)、丁酸弧菌属(Butyrivibrio)等。由表5可知,筛选瘤胃微生物中相对丰度>0.001的优势菌属进行比较,结果显示,LBA组和HBA组瘤胃普雷沃氏菌属相对丰度显著低于CON组(P<0.05),同时HBA组瘤胃纤维杆菌属(Fibrobacter)相对丰度显著高于CON组和LBA组(P<0.05)。
表5 山羊瘤胃微生物在属和种水平上的组成(相对丰度>0.001)

Table 5 Rumen microbiota composition of goats at genus and species levels (relative abundance>0.001)

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LBA HBA
属水平Genus level
普雷沃氏菌属Prevotella 0.286a 0.148b 0.141b 0.026 9 0.043
丁酸弧菌属Butyrivibrio 0.087 0.088 0.066 0.017 0 0.857
纤维杆菌属Fibrobacter 0.009b 0.033b 0.127a 0.018 8 0.006
双歧杆菌属Bifidobacterium 0.014 0.009 0.004 0.002 0 0.408
甲烷短杆菌属Methanobrevibacter 0.045 0.043 0.072 0.011 9 0.100
拟杆菌属Bacteroides 0.034 0.028 0.027 0.003 5 0.891
瘤胃球菌属Ruminococcus 0.008 0.012 0.021 0.000 3 0.698
居海事城球杆菌属Phocaeicola 0.011 0.010 0.009 0.001 6 0.162
拟普雷沃氏菌属Pseudoprevotella 0.009 0.010 0.011 0.000 8 0.698
Chordicoccus 0.005 0.008 0.009 0.000 7 0.077
月形单胞菌属Selenomonas 0.003 0.003 0.002 0.001 6 0.889
Dysosmobacter 0.004 0.006 0.007 0.000 5 0.077
甲烷八叠球菌属Methanosarcina 0.006 0.006 0.006 0.000 5 0.580
种水平Species level
栖瘤胃普雷沃氏菌Prevotella ruminicola 0.141 0.068 0.076 0.019 8 0.273
梭菌目细菌Clostridiales bacterium 0.028 0.125 0.108 0.018 4 0.060
长双歧杆菌Bifidobacterium longum 0.023 0.001 0.004 0.006 5 0.355
溶纤维丁酸弧菌Butyrivibrio fibrisolvens 0.079 0.060 0.083 0.016 0 0.842
产琥珀酸纤维杆菌Fibrobacter succinogenes 0.025b 0.069ab 0.085a 0.010 4 0.035
普雷沃氏菌Rep29 Prevotella_sp._Rep29 0.062 0.052 0.047 0.005 9 0.628
米勒氏甲烷短杆菌Methanobrevibacter millerae 0.030 0.035 0.020 0.007 0 0.710
中间普雷沃氏菌Prevotella intermedia 0.019 0.006 0.009 0.002 9 0.167
黏液拟普雷沃氏菌Pseudoprevotella muciniphila 0.008 0.010 0.009 0.000 8 0.698
脆弱拟杆菌Bacteroides fragilis 0.010 0.008 0.008 0.001 1 0.849
戈特沙尔克甲烷短杆菌
Methanobrevibacter gottschalkii
0.007 0.011 0.006 0.002 2 0.661
多形拟杆菌Bacteroides thetaiotaomicron 0.007 0.008 0.008 0.001 1 0.948
共存甲烷短杆菌Methanobrevibacter thaueri 0.003 0.015 0.004 0.003 6 0.395
Chordicoccus furentiruminis 0.005 0.008 0.007 0.000 7 0.162
解木聚糖拟杆菌Bacteroides xylanisolvens 0.007 0.005 0.006 0.001 2 0.809
多氏居海事城球杆菌Phocaeicola dorei 0.008 0.005 0.005 0.001 2 0.487
牛瘤胃球菌Ruminococcus bovis 0.006 0.007 0.004 0.001 4 0.702
图3-C所示,在种水平上,3组瘤胃优势菌种为栖瘤胃普雷沃氏菌(Prevotella ruminicola)等。由表5可知,筛选瘤胃微生物中相对丰度>0.001的优势菌种进行比较,结果显示,HBA组瘤胃产琥珀酸纤维杆菌(Fibrobacter succinogenes)相对丰度显著高于CON组(P<0.05)。

2.3.4 瘤胃微生物KO功能注释分析

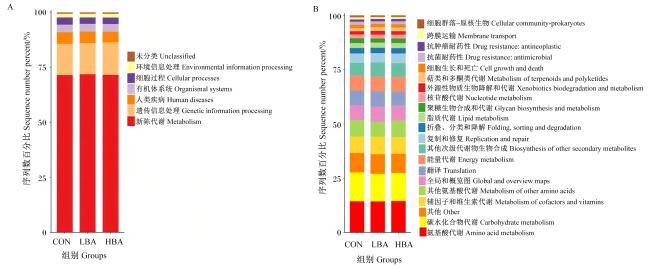
为了进一步揭示3组山羊瘤胃微生物群落的功能变化,基于KO数据库的基因功能注释结果如图4所示,在1级类目中,所能注释基因数目最多的功能是新陈代谢,其他途径为遗传信息处理、环境信息处理、细胞过程、有机体系统和人类疾病;3组间在1级类目功能中无显著差异(P>0.05)。在2级类目中,本研究选择了相对丰度前20的注释结果,发现注释基因数目最多的功能为氨基酸代谢,其次为碳水化合物代谢、辅因子和维生素代谢等。由表6可知,LBA组和HBA组辅因子和维生素代谢通路相对丰度有显著高于CON组的趋势(P=0.063),其他次级代谢物生物合成通路相对丰度显著高于CON组(P<0.05);LBA组萜类和多酮类代谢通路相对丰度显著低于CON组(P<0.05)。
图4 山羊瘤胃微生物KO功能注释分析

A:1级类目 primary category;B:2级类目 secondary category。

Fig.4 Analysis of KO function annotation in rumen microbiota of goats

表6 不同剂量胆汁酸对山羊瘤胃微生物KO功能注释的影响

Table 6 Effects of different doses of bile acids on KO function annotation in rumen microbiota of goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LBA HBA
辅因子和维生素代谢
Metabolism of cofactors and vitamins
0.07 0.08 0.08 0.001 0.063
其他次级代谢物生物合成
Biosynthesis of other secondary metabolites
0.52b 0.54a 0.56a 0.001 0.004
萜类和多酮类代谢
Metabolism of terpenoids and polyketides
0.05a 0.03b 0.04ab 0.003 0.040
外源性物质生物降解和代谢
Xenobiotics biodegradation and metabolism
0.014 0.016 0.017 0.005 9 0.083

2.3.5 瘤胃微生物关键KO功能基因相对丰度

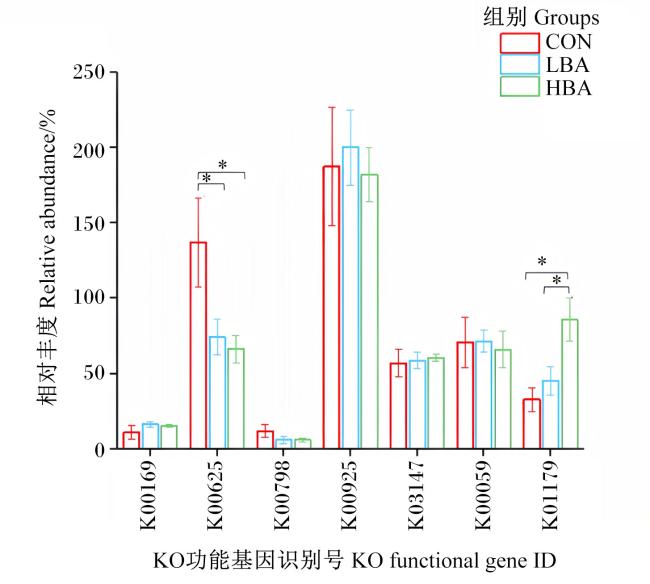
图5所示,与CON组和LBA组相比,HBA组山羊瘤胃微生物中与纤维降解相关的基因K01179[内切葡聚糖酶(endoglucanase)]相对丰度显著提高(P<0.05);与CON组相比,LBA组和HBA组瘤胃微生物中与丙酸代谢相关的基因K00625[磷酸乙酰转移酶(phosphate acetyltransferase)]相对丰度显著降低(P<0.05)。
图5 不同剂量胆汁酸对山羊瘤胃微生物关键KO功能基因相对丰度的影响

Fig.5 Effects of different doses of bile acids on relative abundances of key KO functional genes in rumen microbiota of goats

2.4 山羊瘤胃微生物与瘤胃发酵参数的相关性分析

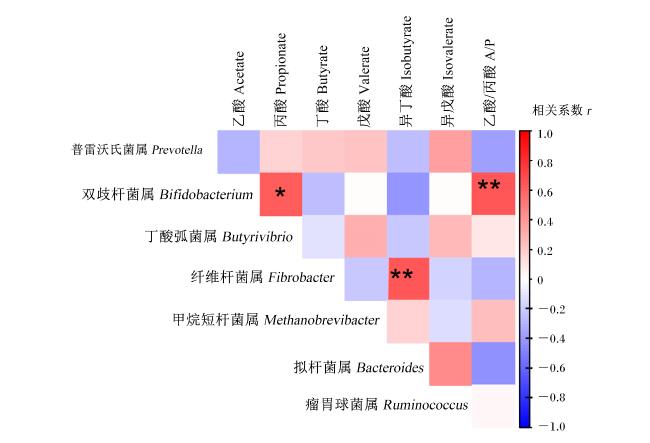
图6所示,山羊瘤胃双歧杆菌属(Bifidobacterium)相对丰度与丙酸浓度呈显著正相关[P<0.05,相关系数(r)=0.50],与A/P值呈极显著正相关(P<0.01,r=0.75);瘤胃纤维杆菌属相对丰度与异丁酸浓度呈极显著正相关(P<0.01,r=0.70)。
图6 山羊瘤胃微生物与瘤胃发酵参数相关性热图

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.6 Correlation heat map of microbiota and fermentation parameters in rumen of goats

* indicated significant correlation (P<0.05), and ** indicated extremely significant correlation (P<0.01).

3 讨论

3.1 不同剂量胆汁酸对山羊生长性能的影响

在生产中,生长性能是衡量养殖经济效益的重要参考。胆汁酸作为胆固醇代谢的终产物,在调节脂质稳态、促进脂肪乳化与吸收以及增强免疫功能等方面发挥重要作用,其通过乳化脂肪、增强脂肪酶活性来提高饲粮能量的利用率。本研究表明,HBA组山羊终末体重显著高于CON组和LBA组,同时ADG和ADFI最高。这表明,适量胆汁酸可能通过改善营养物质吸收效率、提高能量利用率,进而促进山羊的生长。在其他动物中已有较多证据支持胆汁酸促进生长的作用,例如马欣欣等[21]在肉鸡饲粮中添30~120 mg/kg胆汁酸可显著提高肉鸡ADG;陈张华等[22]在仔猪饲粮中添加500 g/t胆汁酸能显著提高断奶仔猪生长性能;泌乳奶山羊补充4 g/d(1.8~3.0 g/kg DM)胆汁酸能够提高产奶量,并引起肠道微生物群落的显著变化,有利于特定微生物的富集并改变微生物种群的平衡[9]。而不同物种之间胆汁酸添加剂量的差异主要源于反刍动物瘤胃环境易导致胆汁酸生物利用度降低,需通过提高剂量补偿其在肠肝循环中的损耗。

3.2 不同剂量胆汁酸对山羊瘤胃发酵参数的影响

pH是评估动物消化系统健康状态的重要指标,一般瘤胃液正常的pH为6.0~7.5[9]。本试验结果显示,各组间山羊瘤胃pH无显著差异,且均在正常范围内。添加剂能否发挥作用与胆汁酸添加量密切相关。本研究中,与CON组相比,HBA组山羊瘤胃乙酸浓度显著提高,而LBA组无显著差异,这表明胆汁酸对瘤胃微生物群落的调控存在剂量依赖性。研究表明,胆汁酸可通过激活法尼酯X受体(FXR)信号通路,促进芽孢杆菌门增殖,而芽孢杆菌门可通过乙酰辅酶A途径将纤维底物转化为乙酰辅酶A,并进一步生成乙酸[23-24]。乙酸是反刍动物主要的能量来源,占总VFA的60%~70%,其浓度升高可提高宿主对粗饲料的能量利用效率[25]。高剂量胆汁酸可能通过增强纤维降解菌的生长能力或抑制产乳酸菌的生长,优化纤维发酵环境,从而显著提升乙酸浓度。此外,LBA组和HBA组瘤胃丙酸浓度均显著低于CON组。乙酸浓度和A/P值升高,表明瘤胃发酵模式向乙酸型转变,这种转变可能有利于维持瘤胃pH稳定和反刍动物的能量代谢稳态。本研究结果与Zhang等[6]和Fan等[26]在饲粮中添加胆汁酸的研究结果一致,表明胆汁酸可能通过调控瘤胃菌群组成提高乙酸浓度,进而改变发酵模式。

3.3 不同剂量胆汁酸对山羊瘤胃微生物区系的影响

本研究结果表明,饲粮添加胆汁酸可显著影响山羊瘤胃微生物群落结构及多样性,尤其在HBA组,Shannon指数和Chao1指数均显著高于CON组,表明菌群丰富度和均匀性均得到明显改善;LBA组Shannon指数亦显著高于CON组,提示即使低剂量也具有一定的调控作用,但幅度相对较小,反映胆汁酸瘤胃微生态的调节作用具有剂量依赖性。
拟杆菌门和芽孢杆菌门是瘤胃的优势菌门,对植物多糖的降解和VFA合成至关重要[27-28]。拟杆菌门作为瘤胃核心菌群(占比>50%),已进化出广泛的降解机制,能够驱动广泛的碳水化合物多糖降解[29]。芽孢杆菌门通过游离酶和多酶复合物2种系统协同降解植物细胞壁,其中部分菌株可分泌细胞外纤维素小体,有效分解纤维素微纤维[30]。此外,纤维杆菌门因其在食草动物肠道中广泛的纤维素分解活性而得名[31]。本研究发现,外源胆汁酸显著改变了山羊瘤胃菌群结构,尤其表现为芽孢杆菌门和纤维杆菌门相对丰度升高,而拟杆菌门相对丰度降低,这与Liu等[32]关于外源胆汁酸可提升芽孢杆菌门相对丰度的研究结果相一致。同样,Xiong等[33]也发现,饲粮中使用不同类型胆盐可以影响肠道菌群的组成,添加初级胆汁酸可以提高肠道菌群多样性,而添加次级胆汁酸则可提高芽孢杆菌门/拟杆菌门值。
在属水平上,外源胆汁酸降低了山羊瘤胃普雷沃氏菌属相对丰度,而提高了瘤胃纤维杆菌属相对丰度。普雷沃氏菌属是成年反刍动物瘤胃中的优势菌,能够通过利用纤维素、淀粉和蛋白质等多种底物产生乙酸盐和琥珀酸盐[34],且其相对丰度与瘤胃乙酸浓度呈正相关[35]。纤维杆菌属是瘤胃中关键的纤维降解菌,可分泌纤维素酶和木聚糖酶,将植物细胞壁多糖分解为短链脂肪酸[5]。此外,在本研究中,HBA组瘤胃产琥珀酸纤维杆菌相对丰度显著高于CON组。产琥珀酸纤维杆菌是一种纤维素分解细菌,在瘤胃生态系统的植物纤维降解中起着至关重要的作用,它将纤维素聚合物转化为细胞内糖原,主要发酵产物包括琥珀酸、乙酸和甲酸[36]。因此,本研究结果表明,在山羊饲粮中添加胆汁酸(尤其是高剂量胆汁酸)能够优化关键功能菌的结构组成,并通过提高有益菌的相对丰度提升对纤维饲料的降解效率。

3.4 不同剂量胆汁酸对山羊瘤胃微生物代谢通路的影响

KO功能注释分析进一步证实,胆汁酸诱导的瘤胃微生态重构在代谢功能层面具有深远影响。在HBA组中,辅因子和维生素代谢通路相对丰度有显著上升趋势,其他次级代谢物生物合成通路显著富集。Gonzalez等[37]研究表明,结合和非结合胆汁酸在小肠中形成胶束,能够促进膳食脂质和脂溶性维生素吸收。此外,已有研究表明,瘤胃微生物能够将初级胆汁酸转化为次级胆汁酸,这些转化后的次级胆汁酸可能与瘤胃微生物相互作用或直接进入外周血液循环,影响宿主在葡萄糖、氨基酸和脂质中的代谢,并促进宿主与瘤胃微生物之间的复杂互作[7]。这种代谢重构可形成正向循环,最终提升宿主对营养物质的利用效率。
内切葡聚糖酶是纤维素酶的重要成分,在纤维素水解过程中水解纤维素多糖链的非定形区域,释放纤维寡糖[38]。高剂量胆汁酸能够促进纤维杆菌门增殖,提升内切葡聚糖酶活性,进而增强碳水化合物代谢通路并提高乙酸产量[39-41]。因此,本研究中基因K01179相对丰度的升高意味着微生物对纤维性碳源的降解能力增强,有利于释放更多葡萄糖。磷酸乙酰转移酶是丙酸合成的关键酶[42],淀粉水解后经糖酵解途径将葡萄糖转化为丙酮酸,丙酮酸经过丁酰辅酶A脱氢酶转化为丙酰辅酶A,再经磷酸乙酰转移酶转化为丙酰磷酸酯,最后经关键酶乙酸激酶转化为丙酸[43]。本研究中,HBA组瘤胃基因K00625相对丰度显著降低,提示丙酸合成降低,从而改变能量代谢效率。
综合微生物群落结构、功能通路及代谢产物的变化,本文提出以下机制假设:外源胆汁酸可通过提升瘤胃中纤维降解菌(如芽孢杆菌门和纤维杆菌门)相对丰度,抑制糖源代谢优势菌(如普雷沃氏菌属),重塑瘤胃菌群结构;在此基础上,上调关键纤维酶基因表达,显著富集次级代谢物合成等功能通路,从而提高乙酸产量和A/P值,推动瘤胃发酵转变为乙酸型。该机制有助于提高反刍动物对粗纤维的降解效率和能量获取能力。因此,胆汁酸作为功能性添加剂,在调控瘤胃微生态、促进结构性饲料降解方面具有重要的应用潜力。未来可结合转录组和代谢组学等技术进一步揭示其作用机制,为反刍动物养殖提质增效提供理论支撑。

4 结论

饲粮添加高剂量胆汁酸(4.5 g/kg DM)可提高山羊生长性能,同时优化瘤胃微生物群落结构,增强纤维素降解能力和次级代谢物合成潜力,提升瘤胃乙酸浓度及A/P值,并上调内切葡聚糖酶功能基因表达和下调磷酸乙酰转移酶功能基因表达,从而驱动瘤胃发酵模式向乙酸型转变。
[1]
WEIMER P J. Degradation of cellulose and hemicellulose by ruminal microorganisms[J]. Microorganisms, 2022, 10(12):2345.

DOI

[2]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

DOI PMID

[3]
BADHAN A, WANG Y, TERRY S, et al. Invited review:interplay of rumen microbiome and the cattle host in modulating feed efficiency and methane emissions[J]. Journal of Dairy Science, 2025, 108(6):5489-5501.

DOI

[4]
MOHANTY I, ALLABAND C, MANNOCHIO-RUSSO H, et al. The changing metabolic landscape of bile acids-keys to metabolism and immune regulation[J]. Nature Reviews Gastroenterology & Hepatology, 2024, 21(7):493-516.

[5]
THAPA S, ZHOU S P, O'HAIR J, et al. Exploring the microbial diversity and characterization of cellulase and hemicellulase genes in goat rumen:a metagenomic approach[J]. BMC Biotechnology, 2023, 23(1):51.

DOI

[6]
ZHANG B Y, SUN Z Q, YU Z, et al. Transcriptome and targeted metabolome analysis provide insights into bile acids’ new roles and mechanisms on fat deposition and meat quality in lamb[J]. Food Research International, 2022, 162(Pt A):111941.

[7]
ZHANG B Y, JIANG X Z, YU Y, et al. Rumen microbiome-driven insight into bile acid metabolism and host metabolic regulation[J]. The ISME Journal, 2024, 18(1):wrae098.

[8]
陈悦, 宋品, 侯曼曼, 等. 饲喂胆汁酸对亚急性瘤胃酸中毒山羊回肠黏膜形态、菌群组成和IFN-γ mRNA相对表达量的影响[J]. 草业学报, 2024, 33(12):188-200.

DOI

CHEN Y, SONG P, HOU M M, et al. Effects of dietary supplementation with bile acid on ileal epithelial morphology,microflora composition,and relative transcript levels of IFN-γ in the ileal mucosa of goats with subacute ruminal acidosis[J]. Acta Prataculturae Sinica, 2024, 33(12):188-200. (in Chinese)

DOI

[9]
YIN Q Y, YU J J, LI J X, et al. Enhancing milk quality and modulating rectal microbiota of dairy goats in starch-rich diet:the role of bile acid supplementation[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):7.

DOI

[10]
HOU M M, SONG P, CHEN Y, et al. Bile acids supplementation improves colonic mucosal barrier via alteration of bile acids metabolism and gut microbiota composition in goats with subacute ruminal acidosis (SARA)[J]. Ecotoxicology and Environmental Safety, 2024, 287:117313.

[11]
ERWIN E S, MARCO G J, EMERY E M. Volatile fatty acid analyses of blood and rumen fluid by gas chromatography[J]. Journal of Dairy Science, 1961, 44(9):1768-1771.

DOI

[12]
MAKKAR H P, SHARMA O P, DAWRA R K, et al. Simple determination of microbial protein in rumen liquor[J]. Journal of Dairy Science, 1982, 65(11):2170-2173.

PMID

[13]
BRADFORD M M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding[J]. Analytical Biochemistry, 1976, 72:248-254.

PMID

[14]
KECHIN A, BOYARSKIKH U, KEL A, et al. CutPrimers:a new tool for accurate cutting of primers from reads of targeted next generation sequencing[J]. Journal of Computational Biology, 2017, 24(11):1138-1143.

DOI

[15]
SCHMIEDER R, EDWARDS R. Quality control and preprocessing of metagenomic datasets[J]. Bioinformatics, 2011, 27(6):863-864.

DOI PMID

[16]
LANGMEAD B, SALZBERG S L. Fast gapped-read alignment with bowtie 2[J]. Nature Methods, 2012, 9(4):357-359.

DOI PMID

[17]
WOOD D E, SALZBERG S L. Kraken:ultrafast metagenomic sequence classification using exact alignments[J]. Genome Biology, 2014, 15(3):R46.

[18]
LU J, BREITWIESER F P, THIELEN P, et al. Bracken:estimating species abundance in metagenomics data[J]. PeerJ Computer Science, 2017, 3:e104.

[19]
LI D H, LIU C M, LUO R B, et al. MEGAHIT:an ultra-fast single-node solution for large and complex metagenomics assembly via succinct de Bruijn graph[J]. Bioinformatics, 2015, 31(10):1674-1676.

DOI

[20]
HYATT D, CHEN G L, LOCASCIO P F, et al. Prodigal:prokaryotic gene recognition and translation initiation site identification[J]. BMC Bioinformatics, 2010, 11(1):119.

DOI

[21]
马欣欣, 秦国栋, 李雪静, 等. 不同水平胆汁酸对肉鸡生长性能、屠宰性能、肌肉风味物质含量和养分利用率的影响[J]. 中国畜牧杂志, 2025, 61(5):281-286.

MA X X, QIN G D, LI X J, et al. Effects of different bile acid levels on growth performance,slaughter performance,muscle flavor compounds and nutrient utilization rate in broilers[J]. Chinese Journal of Animal Science, 2025, 61(5):281-286. (in Chinese)

[22]
陈张华, 王亚超, 张玲, 等. 胆汁酸对断奶仔猪生长性能、免疫功能和抗氧化能力的影响[J]. 动物营养学报, 2024, 36(2):823-832.

DOI

CHEN Z H, WANG Y C, ZHANG L, et al. Effects of bile acid on growth performance,immune function and antioxidant capacity of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):823-832. (in Chinese)

[23]
FRIEDMAN E S, LI Y, SHEN T C D, et al. FXR-dependent modulation of the human small intestinal microbiome by the bile acid derivative obeticholic acid[J]. Gastroenterology, 2018, 155(6):1741-1752.e5.

DOI PMID

[24]
何方, 李金星, 吴思谋. 肠源性短链脂肪酸生成机制及其饮食调控[J]. 食品科学技术学报, 2023, 41(1):10-21.

HE F, LI J X, WU S M. Generation mechanism of gut-derived short chain fatty acids and its dietary regulation[J]. Journal of Food Science and Technology, 2023, 41(1):10-21. (in Chinese)

[25]
潘月婷, 李化轩, 陈帅成, 等. 基于不同背膘厚的秦川牛瘤胃发酵性能与微生物组成及功能分析[J]. 动物营养学报, 2025, 37(6):3863-3876.

DOI

PAN Y T, LI H X, CHEN S C, et al. Analysis of rumen fermentation performance and microbial composition and function of Qinchuan cattle based on different backfat thickness[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):3863-3876. (in Chinese)

[26]
FAN F X, WU F C, GUO Z Y, et al. Supplementation with ursodeoxycholic acid and bile salt benefits lactation performance,health,and rumen and fecal microbiota of transition dairy cows[J]. Journal of Dairy Science, 2025, 108(6):5982-5996.

DOI

[27]
HENDERSON G, COX F, GANESH S, et al. Rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2015, 5(1):14567.

DOI

[28]
HENDERSON G, COX F, GANESH S, et al. Erratum:rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2016, 6(1):19175.

DOI

[29]
GRONDIN J M, TAMURA K, DÉJEAN G, et al. Polysaccharide utilization loci:fueling microbial communities[J]. Journal of Bacteriology, 2017, 199(15):e00860-16.

[30]
MCKEE L S, LA ROSA S L, WESTERENG B, et al. Polysaccharide degradation by the bacteroidetes:mechanisms and nomenclature[J]. Environmental Microbiology Reports, 2021, 13(5):559-581.

DOI

[31]
GHARECHAHI J, VAHIDI M F, SHARIFI G, et al. Lignocellulose degradation by rumen bacterial communities:new insights from metagenome analyses[J]. Environmental Research, 2023, 229:115925.

[32]
LIU M J, YANG J Y, YAN Z H, et al. Recent findings in Akkermansia muciniphila-regulated metabolism and its role in intestinal diseases[J]. Clinical Nutrition, 2022, 41(10):2333-2344.

DOI

[33]
XIONG F, WU S G, ZHANG J, et al. Dietary bile salt types influence the composition of biliary bile acids and gut microbiota in grass carp[J]. Frontiers in Microbiology, 2018, 9:2209.

DOI PMID

[34]
AVGUSTIN G, WALLACE R J, FLINT H J. Phenotypic diversity among ruminal isolates of Prevotella ruminicola:proposal of Prevotella brevis sp.nov.,Prevotella bryantii sp.nov.,and Prevotella albensis sp.nov. and redefinition of Prevotella ruminicola[J]. International Journal of Systematic Bacteriology, 1997, 47(2):284-288.

DOI

[35]
WANG D D, CHEN L Y, TANG G F, et al. Multi-omics revealed the long-term effect of ruminal keystone bacteria and the microbial metabolome on lactation performance in adult dairy goats[J]. Microbiome, 2023, 11(1):215.

DOI PMID

[36]
FAKIH I, GOT J, ROBLES-RODRIGUEZ C E, et al. Dynamic genome-based metabolic modeling of the predominant cellulolytic rumen bacterium Fibrobacter succinogenes S85[J]. mSystems, 2023, 8(3):e0102722.

DOI

[37]
GONZALEZ F J, JIANG C T, PATTERSON A D. An intestinal microbiota-farnesoid X receptor axis modulates metabolic disease[J]. Gastroenterology, 2016, 151(5):845-859.

DOI PMID

[38]
ZHANG S S, XU Z S, WANG T, et al. Endoglucanase improve the growth of homofermentative Lactobacillus spp. in ensilages[J]. Journal of Biotechnology, 2019, 295:55-62.

DOI

[39]
SUEN G, WEIMER P J, STEVENSON D M, et al. The complete genome sequence of Fibrobacter succinogenes S85 reveals a cellulolytic and metabolic specialist[J]. PLoS One, 2011, 6(4):e18814.

DOI

[40]
ZHANG X L, ZHONG R Z, WU J, et al. Dietary selection of distinct gastrointestinal microorganisms drives fiber utilization dynamics in goats[J]. Microbiome, 2025, 13(1):118.

DOI

[41]
KOH A, DE VADDER F, KOVATCHEVA-DATCHARY P, et al. From dietary fiber to host physiology:short-chain fatty acids as key bacterial metabolites[J]. Cell, 2016, 165(6):1332-1345.

DOI

[42]
杨雪, 陈雪婷, 张彩飞, 等. 鼠李糖乳酪杆菌和地衣芽孢杆菌对酱酒糙沙轮次影响研究[J/OL]. 食品与发酵工业, 2025:1-13[2025-12-01].https://doi.org/10.13995/j.cnki.11-1802/ts.043986.

YANG X, CHEN X T, ZHANG C F, et al. Investigating the effects of Lacticaseibacillus rhamnosus and Bacillus licheniformis on the Zaosha round of Jiang-flavour Baijiu[J]. Food and Fermentation Industries, 2025:1-13[2025-12-01].https://doi.org/10.13995/j.cnki.11-1802/ts.043986. (in Chinese)

[43]
丁美洁, 何万领, 丁小伟, 等. 丙酸杆菌及代谢产物在畜牧业中的研究进展[J]. 家畜生态学报, 2023, 44(9):1-5.

DING M J, HE W L, DING X W, et al. Research progress on Propionibacterium and its metabolites in animal husbandry[J]. Journal of Domestic Animal Ecology, 2023, 44(9):1-5. (in Chinese)

文章导航

/