研究论文

添饲葡萄糖引起的家蚕脂肪体蛋白质组差异分析

  • 贾漫丽 , 1, 2, 3 ,
  • 刘芳秀 4 ,
  • 宋雯楠 4 ,
  • 范伟 1, 2, 3 ,
  • 谢岩 1, 2, 3 ,
  • 李季生 1, 2, 3 ,
  • 李娜 , 1, 2, 3, *
展开
  • 1 承德医学院蚕业研究所,承德 067000
  • 2 河北省高校特色蚕桑技术应用研发中心,承德 067000
  • 3 河北省蚕桑产业技术创新中心,承德 067000
  • 4 承德医学院生物科学与技术系,承德 067000
* 李 娜,副研究员,硕士生导师,E-mail:

贾漫丽(1982—),女,河北承德人,副研究员,硕士,研究方向为桑源产物功能性研究与新产品开发。E-mail:

Office editor: 菅景颖

收稿日期: 2025-05-20

  网络出版日期: 2026-02-12

基金资助

河北省中医药管理局项目(2025085)

承德市科技计划项目(202305B098)

承德市科学技术局项目(202404B034)

承德医学院校级研究项目(202117)

Differential Analysis of Fat Body Proteome in Silkworms Following Dietary Glucose Supplementation

  • JIA Manli , 1, 2, 3 ,
  • LIU Fangxiu 4 ,
  • SONG Wennan 4 ,
  • FAN Wei 1, 2, 3 ,
  • XIE Yan 1, 2, 3 ,
  • LI Jisheng 1, 2, 3 ,
  • LI Na , 1, 2, 3, *
Expand
  • 1 Institute of Sericulture, Chengde Medical University, Chengde 067000, China
  • 2 Applied Technology R&D Center for Special Sericulture of Hebei Province Universities, Chengde 067000, China
  • 3 Hebei Sericulture Industry Technology Innovation Center, Chengde 067000, China
  • 4 Department of Biological Science and Technology, Chengde Medical University, Chengde 067000, China
* associate professor, E-mail:

Received date: 2025-05-20

  Online published: 2026-02-12

摘要

本试验旨在研究添饲葡萄糖对家蚕体重、血淋巴生化指标和脂肪体蛋白质组的影响。试验选取5龄家蚕(菁松×皓月)幼虫600头,随机分为1个对照组和3个添饲葡萄糖组,每组3个重复,每个重复50头。3个添饲葡萄糖组分别采用浓度为0.2%、2.0%、20.0%的葡萄糖均匀涂抹新鲜桑叶,对照组则用清水喷施桑叶,将桑叶晾干后饲喂家蚕。试验期6 d,每天称量家蚕体重。于5龄第6天选择对照组和添饲2.0%葡萄糖组作为研究对象,采集血淋巴检测其血淋巴中酶、葡萄糖、尿酸、甘油三酯等生化指标;收集脂肪体组织,通过iTRAQ标记技术进行定量蛋白质组学分析,筛选差异表达蛋白(差异倍数≥1.5或≤0.67且P<0.05),并进行GO功能注释与KEGG通路富集分析。结果显示:1)添饲2.0%葡萄糖组家蚕第6天的体重是第0天体重(初始体重)的7.183倍,试验后期(第4~6天)体重加速增长;2)添饲2.0%葡萄糖组家蚕血淋巴中葡萄糖浓度达2.207 mmol/L,较对照组显著升高16.724%(P<0.05);尿酸、甘油三酯、游离脂肪酸、总胆固醇及高密度脂蛋白、低密度脂蛋白浓度分别较对照组显著提高11.828%、258.291%、88.834%、179.565%、28.488%、72.648%(P<0.05);果糖-6-磷酸激酶、丙酮酸激酶、黄嘌呤氧化酶活性分别较对照组显著升高58.025%、279.147%、22.940%(P<0.05),己糖激酶活性较对照组显著降低63.604%(P<0.05)。3)蛋白质组学分析共鉴定肽段16 170种、蛋白2 172个,筛选出115个差异表达蛋白(55个上调,60个下调)进行了功能聚类分析。4)通过GO功能注释显示差异表达蛋白参与细胞组分、分子功能及生物学过程。其中,参与的细胞组分包括细胞内细胞器、细胞膜、细胞外基质;参与的分子功能包括结合功能、结构分子活性、氧化还原酶催化活性等;参与的生物学过程包括各类代谢过程(有机物、细胞、氮化合物、小分子代谢及生物合成)、生物调节、应激反应、细胞稳态。5)KEGG通路富集分析表明,80个差异表达蛋白映射到110个三级通路,最终概括为代谢、遗传信息处理、环境信息处理、细胞过程、生物机体系统及人类疾病等6个一级功能分类。这些差异表达蛋白主要富集于物质能量代谢(20.87%)、信号转导与互作(15.65%)、角质层结构与功能(11.30%)等关键生物学过程。6)通过对115个差异表达蛋白进行蛋白质-蛋白质互作网络分析,筛选出10个高中心度的关键蛋白,其中核糖体蛋白S9、核糖体蛋白S18和核糖体蛋白L10A处于网络核心枢纽位置,表明核糖体蛋白在家蚕响应葡萄糖持续添饲的生理调控中起核心作用。综上所述,添饲2.0%葡萄糖通过激活脂肪体能量代谢通路加重家蚕糖和脂代谢负担,并诱导核糖体蛋白S9与腺苷酸激酶表达紊乱,该结果可为解析家蚕脂肪体代谢调控机制提供参考。

本文引用格式

贾漫丽 , 刘芳秀 , 宋雯楠 , 范伟 , 谢岩 , 李季生 , 李娜 . 添饲葡萄糖引起的家蚕脂肪体蛋白质组差异分析[J]. 动物营养学报, 2026 , 38(2) : 1297 -1311 . DOI: 10.12418/CJAN2026.104

Abstract

This experiment aimed to investigate the effects of dietary glucose supplementation on the body weight, hemolymph biochemical indices and fat body proteome of silkworms (Bombyx mori). A total of 600 fifth-instar larvae (Jingsong×Haoyue) were randomly divided into one control group and three glucose supplementation groups, with three replicates per group and 50 larvae per replicate. Fresh mulberry leaves were uniformly coated with glucose solutions at concentrations of 0.2%, 2.0% and 20.0% for the three glucose supplementation groups, respectively, while the control group received leaves sprayed with an equal amount of distilled water. After air-drying, the leaves were fed to the silkworms. The trial lasted for 6 days, during which the body weight of the silkworms was measured daily. On day 6 of the fifth instar, the control group and 2.0% glucose supplementation group were selected for further analysis. Hemolymph was collected to determine biochemical indices including enzymes, glucose, uric acid, and triglyceride, etc. Fat body tissues were harvested for quantitative proteomic analysis using iTRAQ labeling technique. Differentially expressed proteins (defined as those with fold change≥1.5 or ≤0.67 and P<0.05) were screened and subjected to GO functional annotation and KEGG pathway enrichment analysis. The results showed that: 1) the 2.0% glucose supplementation group exhibited a 7.183-fold increase in body weight from day 0 (initial) to day 6, with accelerated weight gain during the later stage of the experiment (days 4 to 6). 2) The hemolymph glucose concentration in the 2.0% glucose supplementation group reached 2.207 mmol/L, which was significantly increased by 16.724% compared with the control group (P<0.05). The concentrations of uric acid, triglycerides, free fatty acids, total cholesterol, high-density lipoprotein and low-density lipoprotein were significantly elevated by 11.828%, 258.291%, 88.834%, 179.565%, 28.488% and 72.648%, respectively, compared with the control group (P<0.05). The activities of fructose-6-phosphate kinase, pyruvate kinase and xanthine oxidase were significantly increased by 58.025%, 279.147% and 22.940%, respectively (P<0.05), while hexokinase activity was significantly decreased by 63.604% (P<0.05), compared with the control group. 3) Proteomic analysis identified 16 170 peptides and 2 172 proteins, among which 115 differentially expressed proteins (55 up-regulated and 60 down-regulated) were screened for functional clustering analysis. 4) GO annotation revealed that the differentially expressed proteins were involved in cellular components, molecular functions, and biological processes. Specifically, the associated cellular components included intracellular organelles, cell membranes, and the extracellular matrix; the molecular functions included binding, structural molecular activity, and oxidoreductase catalytic activity; and the biological processes involved various metabolic processes (organic substance, cellular, nitrogen compound, small molecule metabolism, and biosynthesis), biological regulation, stress response, and cellular homeostasis. KEGG pathway enrichment analysis mapped the 80 differentially expressed proteins to 110 tertiary pathways that fall under six primary functional categories: metabolism, genetic information processing, environmental information processing, cellular processes, organismal systems, and human diseases. They were markedly enriched in substance energy metabolism (20.87%), signal transduction interaction (15.65%), and cuticle structure function (11.30%), underscoring key biological processes. 6) Protein-protein interaction network analysis of the 115 differentially expressed proteins identified ten high degree centrality proteins. Among them, ribosomal protein S9, ribosomal protein S18, and ribosomal protein L10A occupied the core positions of the network, indicating that ribosomal proteins played central roles in the physiological regulation of silkworm responding to continuous glucose supplementation. In summary, dietary supplementation with 2.0% glucose exacerbates the metabolic burden of sugar and lipids in silkworms by activating energy metabolism pathways in the fat body and induces the disordered expression of ribosomal protein S9 and adenylate kinase. These findings provide a reference for elucidating the metabolic regulatory mechanism of silkworm fat body.

糖尿病作为一种以慢性高血糖为核心病理特征的全球性代谢性疾病,其发病率逐年攀升,2021年全球糖尿病患者总数已突破5.29亿。在我国,糖尿病已成为导致死亡的主要疾病之一,对公共卫生构成了严峻挑战[1]。研究表明,糖尿病的发生和发展与能量代谢紊乱、脂肪体功能异常以及蛋白质表达调控失衡有关。脂肪体作为机体葡萄糖与脂质代谢的核心调控器官,其功能稳态对维持血糖平衡至关重要。脂肪体功能异常可导致胰岛β细胞凋亡和胰高血糖素分泌失调[2],进而引发血糖代谢紊乱,增加糖尿病的发病风险。因此,系统解析脂肪体在高糖应激中的代谢调控机制,对阐明糖尿病发生发展的分子机制具有关键意义。目前,国内外普遍以小鼠、兔等哺乳动物作为糖尿病研究的动物模型,这类模型虽然能提供较为稳定的试验结果,但面临试验成本高昂、样本需求量大、操作流程复杂以及试验周期漫长等挑战[3]。家蚕(Bombyx mori)作为典型鳞翅目模式昆虫,在糖尿病研究中展现出独特的应用价值[4]。自1992年Ryu等[5]首次证实家蚕全蚕粉具有显著降血糖作用以来,后续研究进一步明确了家蚕体内多种活性物质的降糖功效,其中包括黄酮类化合物、1-脱氧野尻霉素(DNJ)、蜕皮激素(MH)、三碘甲腺原氨酸(T3)、蚕素(PTTH)等[6],这一系列发现为家蚕在糖尿病研究中的应用开辟了全新方向。
与此同时,家蚕具备饲养操作简便、生命周期短、生长速率快以及便于开展批量重复性试验等优势,使其逐渐成为研究糖尿病及其相关代谢疾病的理想模型动物[7]。近年来,随着蛋白质组学技术的不断发展,家蚕在血淋巴、丝腺、中肠、胚胎、脂肪体、雌性附腺等组织器官的研究中已取得阶段性进展[8]。其中,脂肪体作为家蚕体内营养物质贮存和代谢的核心器官,既是激素作用的靶组织,又与血淋巴维持着密切的物质交换[9]。该组织中营养物质的贮藏与释放过程直接调控着家蚕的生长速度、变态发育和繁殖功能。因此,深入解析家蚕脂肪体的代谢调控机制,不仅可为阐明家蚕的生长发育规律提供理论依据,还可为探索糖尿病等代谢性疾病的发病机制提供新的研究思路和模型系统。
本试验对5龄家蚕添饲不同浓度的葡萄糖,连续6 d测定家蚕体重变化,选择与饲喂正常桑叶的对照组家蚕体重差异最为显著的添饲葡萄糖组,采集血淋巴进行生化指标测定,并收集脂肪体组织,采用iTRAQ标记技术对其蛋白表达谱进行系统分析,重点比较家蚕在饲喂正常桑叶与添饲葡萄糖桑叶时脂肪体蛋白质组的表达差异,进而对筛选获得的差异表达蛋白进行GO功能注释及KEGG通路富集分析。通过上述研究,旨在获取高糖饲喂条件下家蚕脂肪体的特征性蛋白表达信息,为深入解析家蚕脂肪体蛋白质代谢调控机制提供试验依据和理论参考。

1 材料与方法

1.1 供试家蚕

供试家蚕品种为山东广通集团提供的菁松×皓月(Jingsong×Haoyue),保存于承德医学院蚕业研究所中心实验室。

1.2 试验设计

蚕卵孵化后正常饲养至5龄眠起,选取发育整齐的家蚕幼虫600头,随机分为1个对照组和3个添饲葡萄糖组,每组3个重复,每个重复50头。称取桑叶20 g,3个添饲葡萄糖组用6 mL质量分数分别为0.2%、2.0%、20.0%的葡萄糖溶液均匀涂抹于叶面,对照组以等量清水处理。将经不同处理的桑叶晾干后饲喂对应组别的家蚕,每日定量饲喂3次,共饲喂6 d。试验期间保持温度为(25±1) ℃,自然光周期,相对湿度75%,每日观察家蚕生长状态并称量体重。

1.3 血淋巴生化指标分析

家蚕血淋巴样本采集:在5龄第6天分别从对照组与添饲2.0%葡萄糖组各选取10头家蚕,进行固定消毒,在消毒部位轻轻刺破体壁(深度0.5~1.0 mm),用微量吸管将血淋巴吸入含抗凝剂的离心管中,置于4 ℃冰箱待测。
血淋巴生化指标使用南京建成生物工程研究所生产的试剂盒进行测定,包括果糖-6-磷酸激酶(PFK,A129-1-1)、丙酮酸激酶(PK,A076-1-1)、己糖激酶(HK,A077-3-1)、游离脂肪酸(FFA,A042-1-1)、葡萄糖(F006-1-1)、尿酸(UA,C012-1-1)、甘油三酯(TRIG,A110-2-1)、黄嘌呤氧化酶(XOD,A002-1-1)、低密度脂蛋白(LDL,A113-1-1)、高密度脂蛋白(HDL,A112-1-1)、总胆固醇(TC,A111-2-1)浓度或活性。

1.4 家蚕脂肪体蛋白质组分析

1.4.1 家蚕脂肪体的收集

在5龄第6天,于对照组与添饲2.0%葡萄糖组分别选取5头家蚕,解剖后合并收集脂肪体组织2 g左右至1.5 mL离心管中,将分离的脂肪体浸入预冷的磷酸盐缓冲液(PBS)中,轻柔振荡去除残留的血淋巴,取出后吸干水分并在冰上切成小块。将脂肪体组织块放入冻存管后,迅速投入液氮速冻5 min,然后置于-80 ℃冰箱中保存备用。

1.4.2 家蚕总蛋白的提取

取脂肪体样品100 mg,加液氮充分研磨,随后按1∶10(W/V)加入预冷的三氯乙酸(TCA)-冰丙酮,-20 ℃沉淀2 h,4 ℃条件下20 000×g离心30 min取沉淀。在沉淀中再加入预冷的纯丙酮,-20 ℃沉淀30 min,再在4 ℃条件下20 000×g离心30 min取沉淀,重复操作至沉淀为白色。在沉淀中加入裂解液[含8 mol/L尿素,30 mmol/L 4-羟乙基哌嗪乙磺酸(HEPES),1 mmol/L苯甲基磺酰氟(PMSF),2 mmol/L乙二胺四乙酸(EDTA),10 mmol/L二硫苏糖醇(DTT)],超声(细胞破碎仪自动循环“2 s发射→3 s暂停”,180W)处理5 min助溶后,20 000×g离心30 min取上清;加入DTT使其终浓度保持在10 mmol/L,在56 ℃下还原1 h,迅即加入碘乙酰胺(IAM)并使其终浓度为55 mmol/L,避光烷化1 h;继续加入4倍体积的预冷丙酮,-20 ℃下沉淀3 h以上;4 ℃下经20 000×g离心30 min取沉淀,加入复溶buffer 600 μL,使其终浓度为50%三乙基碳酸氢铵(TEAB)、0.1%十二烷基硫酸钠(SDS);超声3 min助溶后,4 ℃条件下20 000×g离心30 min,取上清;使用Bradford法及十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)对所提总蛋白分别进行定量及完整性检测。

1.4.3 蛋白质的消化和肽段的标记

从提取的总蛋白样品中取100 μg,加入到10K超滤管中,4 ℃下14 000×g离心40 min,弃废液;加入200 μL 50 mmol/L的TEAB,4 ℃下14 000×g离心40 min,弃废液;上述步骤重复2遍;加入1 μg/μL的胰蛋白酶(trypsin),每100 μg蛋白质底物加入3.3 μg的酶,37 ℃水浴24 h;冻干消化液,然后每管加入30 μL TEAB溶液(水∶TEAB=1∶1)复溶肽段;将标记试剂平衡至室温,每管标记试剂中加入70 μL异丙醇,混匀1 min,离心甩至管底;将混好的标记试剂加入到肽段中,样品分别用不同大小的同位素标记,对标记后的肽段进行真空抽干用于后续试验。

1.4.4 肽段的分离及纯化

预分离采用高效液相色谱法(安捷伦1100高效液相色谱仪)对样品进行分离,色谱柱(SCX,250 mm×4.60 mm,5 μm)为强阳离子交换柱,流动相:A液(含10 mmol/L KH2PO4、25%乙腈,pH为3.0),B液(含10 mmol/L KH2PO4、2 mol/L KCl、25%乙腈,pH为3.0)。标记后的样品用A液稀释10倍,磷酸盐缓冲液调pH至3.0,15 000×g离心10 min,取上清,进行梯度洗脱,分离肽段。上清液用纳升液相色谱仪(Dionex ultimate 3000 Nano LC system)进行分离;采用Q Exactive质谱仪(Thermo Fisher Scientific)进行液相色谱-串联质谱(LC-MS/MS)检测,质谱信号参数设置:离子源电压1 800 V,母离子扫描范围350~2 000 Da,二级分辨率17 500,毛细管温度320 ℃,离子模式为正离子模式。

1.4.5 蛋白质的鉴定和定量分析

应用Proteome Discoverer 1.3软件,并以Mascot 2.3.01为搜索引擎,对质谱图进行检索与分析,并比对NCBI或Uniprot数据库进行蛋白质的定性和定量分析,筛选差异表达蛋白,筛选条件为:段数≥2,差异倍数(FC)≥1.5(上调)或≤0.67(下调)且P<0.05。选择注释工具WEGO(http://wego.genomics.org.cn)对差异表达蛋白进行GO功能注释,通过KEGG数据库获取差异表达蛋白参与的代谢通路,并对这些代谢通路进行信息注释。结合STRING数据库构建蛋白质-蛋白质互作(protein-protein interaction,PPI)网络,并通过Cytoscape可视化呈现。

1.5 数据统计分析

采用SPSS 23.0软件对数据进行统计分析,其中体重数据采用单因素方差分析和Duncan氏法进行分析,血淋巴生化指标数据采用t检验法进行分析,数据均表示为平均值±标准差,差异显著水平为P<0.05。利用GraphPad Prism 10.1.2软件作图。

2 结果与分析

2.1 添饲葡萄糖后家蚕体重变化

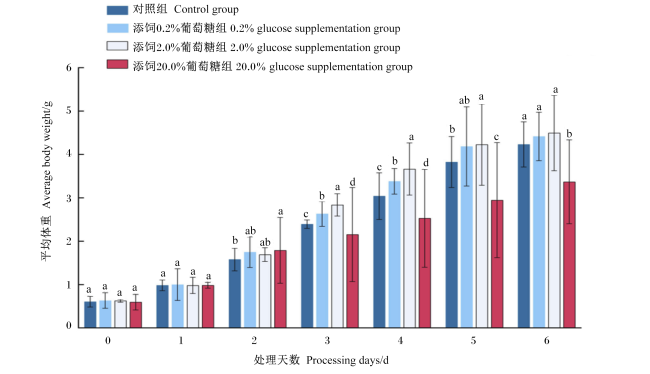
图1可知,随着饲喂时间的延长,各组家蚕的体重均呈现上升趋势;添饲0.2%葡萄糖组家蚕第6天体重(4.416 g)是第0天体重(初始体重,0.631 g)的6.998倍;添饲2.0%葡萄糖组家蚕第6天体重是第0天体重的7.183倍,试验后期(第4~6天)体重加速增长,由3.664 g增至4.497 g,增长率为22.734%;添饲20.0%葡萄糖组家蚕全程生长迟缓,第3天的体重(2.154 g)显著低于添饲2.0%葡萄糖组(2.839 g)和添饲0.2%葡萄糖组(2.631 g)(P<0.05),第6天的体重较对照组低25.646%(P<0.05),较添饲2.0%葡萄糖组低33.393%(P<0.05);第3~6天时,添饲20.0%葡萄糖组家蚕的体重从2.154 g增长到3.369 g,仅增长1.564倍,表明高浓度葡萄糖对家蚕后期生长具有显著抑制作用。因此,后续选择添饲2.0%葡萄糖组家蚕作为研究对象,进行血淋巴生化指标和脂肪体蛋白质组分析。
图1 添饲不同浓度葡萄糖对家蚕体重增长趋势的影响

同一时期,数据柱标有不同小写字母表示组间差异显著(P<0.05),标有相同字母或无字母表示组间差异不显著(P>0.05)。

Fig.1 Effects of supplementation with different concentrations of glucose on body weight growth trend of silkworms

At the same period, data bars with different lowercase letters indicate significant difference between groups (P<0.05), while with the same letters or no letters indicate no significant difference between groups (P>0.05).

2.2 添饲葡萄糖后家蚕血淋巴生化指标变化

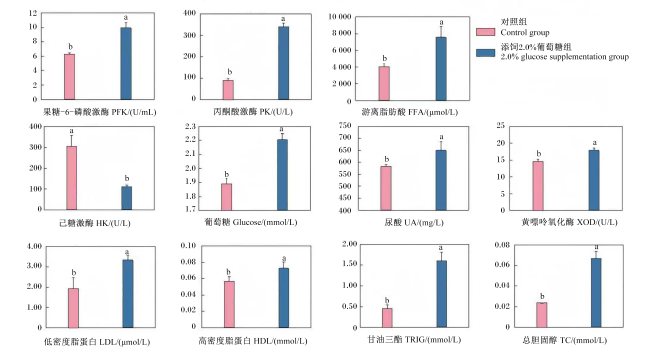
图2可知,添饲2.0%葡萄糖组家蚕血淋巴中葡萄糖浓度达到2.207 mmol/L,比对照组显著升高16.724%(P<0.05);添饲2.0%葡萄糖组家蚕血淋巴中糖酵解途径3个限速酶的活性相较于对照组有显著变化(P<0.05),其中果糖-6-磷酸激酶活性提高58.025%,己糖激酶活性降低63.604%,丙酮酸激酶活性提高279.147%;添饲2.0%葡萄糖组家蚕血淋巴中甘油三酯、总胆固醇、低密度脂蛋白、高密度脂蛋白、游离脂肪酸、尿酸浓度及黄嘌呤氧化酶活性均显著高于对照组(P<0.05),分别提高258.291%、179.565%、72.648%、28.488%、88.834%、11.828%和22.940%。
图2 添饲葡萄糖对家蚕血淋巴生化指标的影响

数据柱标有不同小写字母表示添饲2.0%葡萄糖组与对照组之间差异显著(P<0.05)。

Fig.2 Effects of glucose supplementation on hemolymph biochemical indices of silkworms

Data bars with different lowercase letters indicate significant difference between the 2.0% glucose supplementation group and the control group (P<0.05).

2.3 添饲葡萄糖后家蚕脂肪体蛋白质组表达差异分析

2.3.1 家蚕脂肪体提取的总蛋白的质量

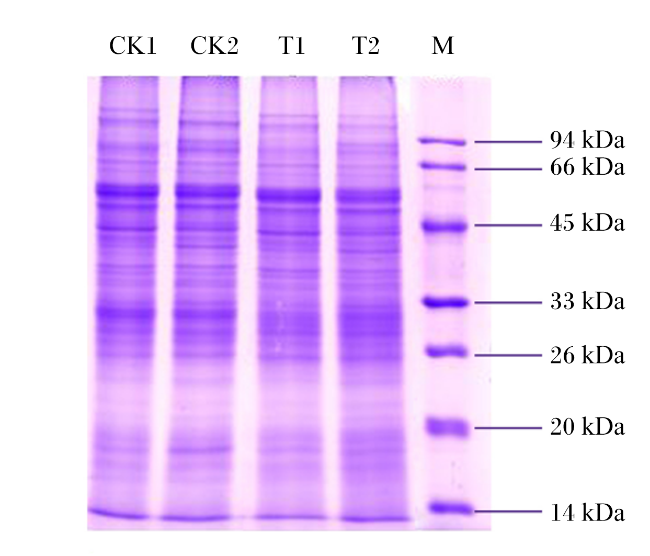
采用Bradford法对提取的总蛋白进行定量,标准曲线如下:y=0.183 1x-0.023 1,R2=0.992 9,各样品提取的总蛋白的定量结果如表1所示。采用SDS-PAGE检测提取的总蛋白电泳条带清晰,蛋白完整性较好,无降解(图3)。
表1 总蛋白定量结果

Table 1 Quantitative results of total protein

样品编号
Sample No.
总蛋白Total protein
浓度
Concentration/(μg/μL)
体积
Volume/μL
总量
Total mass/μg
CK1 1.27 600 765
CK2 1.09 600 657
T1 1.48 600 890
T2 1.02 600 613

CK1和CK2为对照组的样品,T1和T2为添饲2.0%葡萄糖组的样品。

CK1 and CK2 are samples from the control group, while T1 and T2 are samples from the 2.0% glucose supplementation group.

图3 家蚕脂肪体总蛋白SDS-PAGE图

泳道1~4分别为家蚕脂肪体样品CK1、CK2、T1、T2,其中CK1、CK2为对照组的样品,T1、T2为添饲2.0%葡萄糖组的样品,泳道M为蛋白质Marker(14~94 kDa) 。

Fig.3 Total protein SDS-PAGE image of fat body in silkworms

Lanes 1 to 4 correspond to silkworm fat body samples CK1, CK2, T1, and T2, respectively, CK1, CK2 are samples from the control group, and T1 and T2 are samples from the 2.0% glucose supplementation group, while lane M is the protein Marker (14 to 94 kDa).

2.3.2 家蚕脂肪体蛋白质谱鉴定、功能注释及聚类分析

通过质谱扫描、Proteome Discoverer 1.3筛选和Mascot 2.3.01匹配,对鉴定到的蛋白依据其质量进行统计,通过质谱分析,使用Mascot 2.3.01搜索引擎进行肽段鉴定,并利用Proteome Discoverer 1.3软件(肽段置信度>99%,FDR<1%)对结果进行筛选与验证,最终共鉴定到16 170 条独特的肽段和2 172个蛋白。设置差异倍数(FC)≥1.5或≤0.67且P<0.05为筛选条件,共获得115个差异表达蛋白,相对于对照组,添饲2.0%葡萄糖组中上调的差异表达蛋白有55个,下调的差异表达蛋白有60个。
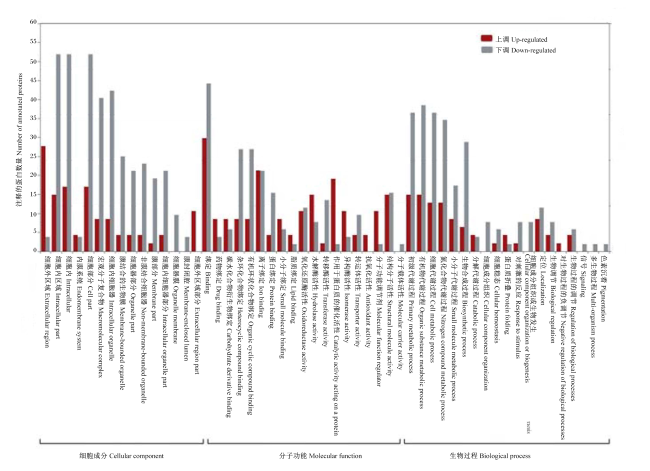
选取FC≥1.5的上调差异表达蛋白(55个)和FC≤0.67的下调差异表达蛋白(60个)进行功能聚类分析,通过比对UniProtKB、NCBI、STRING等数据库,对这些差异表达蛋白的基本信息和功能进行注释,93个蛋白均能注释到基因名称、蛋白名称和功能概述中的至少1条信息。对差异表达蛋白进行GO功能注释(图4),结果发现:1)26个差异表达蛋白参与15种细胞组分,其中组成细胞内细胞器的蛋白最多,部分蛋白存在于细胞膜上,参与物质跨膜运输等过程,少量蛋白分布于细胞外基质;2)36个差异表达蛋白参与19个分子功能,绑定、有机环状化合物绑定、离子绑定、蛋白绑定、结构分子活性、氧化还原酶催化活性富集到的蛋白较多;3)31个差异表达蛋白参与19个生物学过程,其中参与有机物代谢过程、初级代谢过程、细胞代谢过程、氮化合物代谢过程、小分子代谢过程、生物合成过程的蛋白数量明显高于其他过程,其次富集到蛋白较多的过程为生物过程的调节、生物调节、对应激的反应、细胞稳态。
图4 添饲葡萄糖家蚕脂肪体差异表达蛋白GO功能注释

Fig.4 GO functional annotation of differentially expressed proteins in fat body of silkworms fed with glucose

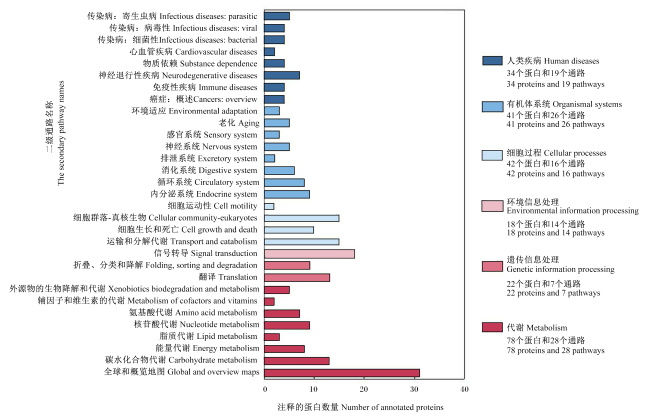
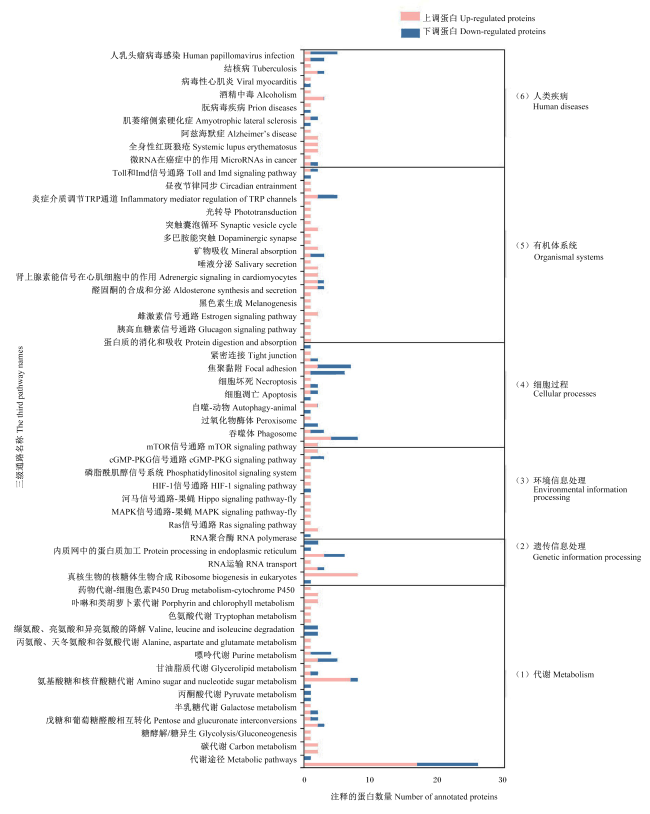
115个差异表达蛋白通过KEGG的Blast KOALA得到通路注解,其中80个差异表达蛋白通过注释映射到的三级通路有110个,进一步对相似蛋白归纳形成二级通路31个,最终概括为6个一级功能,包括代谢(metabolism)、遗传信息处理(genetic information processing)、环境信息处理(environmental information processing)、细胞过程(cellular processes)、生物机体系统(organismal systems)和人类疾病(human diseases)(图5)。其中,在代谢上注释到蛋白78个,通路28个;在细胞过程上注释到蛋白42个,通路16个;在有机体系统上注释到蛋白41个,通路26个;在人类疾病上注释到的蛋白34个,通路19个。图6为差异表达蛋白的KEGG三级通路、一级功能的聚类信息。
图5 添饲葡萄糖家蚕脂肪体差异表达蛋白KEGG通路类型分布图

Fig.5 Distribution diagram of KEGG pathway types for differentially expressed proteins in fat body of silkworms fed with glucose

图6 添饲葡萄糖家蚕脂肪体差异表达蛋白KEGG通路注释

Fig.6 KEGG pathway annotation of differentially expressed proteins in fat body of silkworms fed with glucose

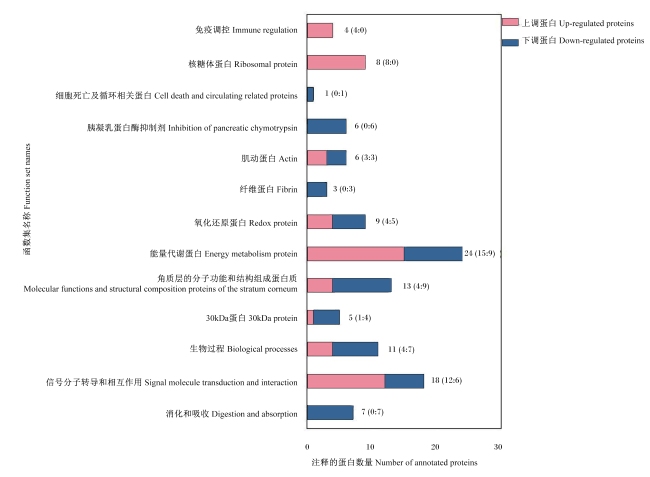
由GO和KEGG综合分析富集了一批相似蛋白的集合,分别涉及物质代谢、信号转导、细胞群落、免疫、对刺激反应等,根据基因功能注释信息进行汇总分类,见图7。这些蛋白按数量排序依次参与了物质能量代谢、信号分子转导与相互作用、角质层的分子功能和结构组成、生物过程、氧化还原、核糖体、消化和吸收等。此外,还发现一批结构和功能相似的蛋白家族成员,如30 kDa蛋白、肌动蛋白、胰凝乳蛋白酶抑制剂、免疫调节蛋白、纤维蛋白、细胞死亡及循环相关蛋白等。
图7 家蚕脂肪体差异表达蛋白的功能注释

Fig.7 Functional annotation of differentially expressed proteins in fat body of silkworms

注释到参与物质能量代谢的蛋白有24个,占差异表达蛋白总数的20.87%,包括已知的糖、脂类和能量代谢蛋白——葡糖醛酸基转移酶(UDP-glucuronosyltransferase)(G9LPV4)、V型质子ATP酶G亚基(V-type proton ATPase subunit G)(Q2F5J4)、V型质子ATP酶E亚基(V-type proton ATPase subunit E)(Q1HPS9)、Rab5小GTP结合蛋白(small GTP binding protein Rab5)(Q19N36)、线粒体ATP合酶耦合因子6(mitochondrial ATP synthase coupling factor 6)(Q1HPM6)、转醛醇酶(transaldolase)(H9IUJ6)等;注释到参与信号分子转导和互作的蛋白有18个,占差异表达蛋白总数的15.65%,包括钙调蛋白(calmodulin)(Q2F5T2)、σ型谷胱甘肽S-转移酶(glutathione S-transferase sigma)(Q5CCJ4)、核苷二磷酸激酶(nucleoside diphosphate kinase)(H9JDV4)、组蛋白H4(histone H4)(B9X1S5)、组蛋白H3(histone H3)(H9JJE7)等;注释到参与角质层的分子功能与结构组成的蛋白有13个,占差异表达蛋白总数的11.30%,包括假定表皮蛋白(putative cuticle protein)(C0H6E3)、前折叠素β亚基(prefoldin beta subunit)(Q2F5V5)、假定表皮蛋白(putative cuticle protein)(C0H6R0)、假定表皮蛋白(putative cuticle protein)(C0H6R2)等;注释到参与生物过程的蛋白有11个,占差异表达蛋白总数的9.57%,包括热休克蛋白20.8(heat shock protein 20.8)(Q9GN07)、真核翻译起始因子3亚基H(eukaryotic translation initiation factor 3 subunit H,eIF3h)(Q9GV27)、法尼基二磷酸合酶(farnesyl diphosphate synthase)(A5A7A4)等;注释到参与氧化还原的蛋白有9个,占差异表达蛋白总数的7.83%,包括醛酮还原酶(aldo-keto reductase)(E5EVW4)等、3-脱氢蜕皮激素-3β-还原酶(3-dehydroecdysone 3β-reductase)(A0A1B2G267)等、铜-锌超氧化物歧化酶(Cu-Zn superoxide dismutase)(P82205)等。

2.3.3 家蚕脂肪体差异表达蛋白的互作关系

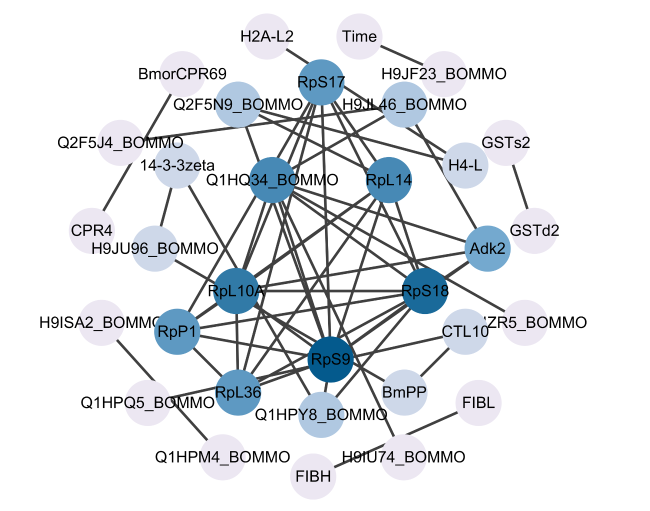
115个差异表达蛋白通过STRING的多序列搜索(multiple sequences search)获得32个蛋白,形成46对互作关系,将互作信息文件导入到Cytoscape中构建可视网络图,并计算各节点(网络中各个蛋白)特征,PPI网络如图8所示。使用基于MCC算法的Cytohubba插件筛选对各节点中心度进行分析,获得10个高中心度的关键蛋白——核糖体蛋白S9(ribosomal protein S9,RpS9)、核糖体蛋白S18(ribosomal protein S18,RpS18)、核糖体蛋白L10A(ribosomal protein L10A,RpL10A)、核糖体蛋白L14(ribosomal protein L14,RpL14)、F型ATP酶δ亚基(F-type ATPase delta subunit)、核糖体蛋白S17(ribosomal protein S17,RpS17)、核糖核酸酶P1(acidic ribosomal protein P1,RpP1)、核糖体蛋白L36(ribosomal protein L36,RpL36)、腺苷酸激酶2(adenylate kinase 2,ADK2)、V型质子泵ATP酶亚基Vha26(V-type proton ATPase subunit Vha26,V-ATPase)。子网络分析和网络中心度分析均显示RpS9、RpS18和RpL10A处于网络中心,与其他蛋白的互作关系较多。
图8 蛋白质-蛋白质互作网络

限于篇幅,仅对中心度排在前10的关键蛋白进行注释 Due to space limitations, only the top 10 key proteins in terms of centrality were annotated。RpS9:核糖体蛋白S9 ribosomal protein S9;RpS18:核糖体蛋白S18 ribosomal subunit protein S18;RpL10A:核糖体蛋白L10A ribosomal protein L10A;RpL14:核糖体蛋白L14 ribosomal protein L14;Q1HQ34_BOMMO:F型ATP酶δ亚基 F-type ATPase delta subunit;RpS17:核糖体蛋白S17 ribosomal protein S17;RpP1:核糖核酸酶P蛋白亚基1 ribonuclease P protein subunit 1;RpL36:核糖体蛋白L36 ribosomal protein L36;Adk2:腺苷酸激酶2 adenosine kinase 2;H9JL46_BOMMO:V型质子泵ATP酶亚基Vha26 V-type proton ATPase subunit Vha26。

Fig.8 Protein-protein interaction network

3 讨论

3.1 家蚕添饲葡萄糖与体重增长的关系

夏定国等[10]对5龄家蚕添饲4%的葡萄糖,发现饱食区家蚕的蛹重比对照区提高了3%~4%,说明家蚕添饲葡萄糖后,体内更多的脂肪体细胞参与糖酵解过程,最终提高了家蚕的体重和蛹重。卢忠燕等[11]用高糖饲料饲养5龄家蚕,结果显示家蚕血淋巴中葡萄糖、海藻糖浓度均上升;脂肪体中的脂肪球显著增大、增多,甘油三酯积累;家蚕的体重却显著降低,生长受到影响。本试验采用新鲜桑叶,添饲2.0%的葡萄糖2 d后家蚕的体重增加显著。该结果与夏定国等[10]研究得出的家蚕体重变化趋势一致,但与卢忠燕等[11]的研究结果不同,可能是因为桑叶本身可溶性糖含量较高,其中单糖和双糖更易于5龄家蚕吸收,吸收效率在92%~94%,可为细胞生长快速供能,而葡萄糖也为单糖,添加较高浓度的葡萄糖反而加重家蚕体内的糖代谢负担,进而影响了家蚕摄食,最终导致体重下降;此外,人工饲料和新鲜桑叶间物理成分的差异可能也是影响家蚕体重的一个重要因素。

3.2 添饲葡萄糖对家蚕体内糖和尿酸代谢的影响

葡萄糖作为单糖可直接被家蚕中肠吸收,迅速提升血淋巴中葡萄糖浓度,激活糖酵解和三羧酸循环,为幼虫生长发育提供额外能量。已有研究表明,短期添饲葡萄糖可使家蚕体重增长率和茧层率显著提高,这可能与其促进糖原合成及能量储备有关[10]。葡萄糖可能通过反馈机制调节代谢酶活性,丙酮酸激酶、己糖激酶、果糖-6-磷酸激酶是糖酵解途径中的关键酶[12],也是调节糖酵解过程的关键限速酶,其活性可能被葡萄糖浓度升高所激活,加速葡萄糖分解。己糖激酶催化葡萄糖最终转变成果糖-6-磷酸激酶,果糖-6-磷酸激酶催化6-磷酸果糖转变为1,6-二磷酸果糖,丙酮酸激酶催化磷酸烯醇丙酮酸酯和ADP转变成ATP的磷酸基转移酶和丙酮酸,3个酶促反应均不可逆。因此,3种酶的变化说明了葡萄糖在家蚕体内的变动原因。本研究中,给5龄家蚕添饲葡萄糖6 d后,家蚕血淋巴中葡萄糖浓度以及己糖激酶、果糖-6-磷酸激酶和黄嘌呤氧化酶活性与对照组相比均显著升高,甘油三酯、总胆固醇浓度显著增加,说明添饲葡萄糖可直接导致家蚕血糖浓度升高与脂肪积累,这与已发现的动物脂肪体中甘油三酯的积累是由饮食直接导致的结果[13]相类似。
尿酸是昆虫嘌呤代谢的终产物。家蚕添饲葡萄糖后血淋巴中尿酸浓度显著升高,说明添饲葡萄糖很可能加重了家蚕糖和尿酸代谢的压力。一方面,葡萄糖代谢中间产物(如5-磷酸核糖)可作为嘌呤合成的前体,导致尿酸生成增加;另一方面,尿酸氧化酶活性可能被葡萄糖抑制,阻碍尿酸进一步分解为尿囊素,导致尿酸积累。已有研究发现,家蚕尿酸转运蛋白(如ATP结合盒转运蛋白G亚家族)的表达可能受葡萄糖调控。高糖环境下家蚕尿酸排泄量增加,推测葡萄糖可能通过渗透效应或能量供应增强排泄功能,高糖水平调节细胞能量感知,抑制自噬并促进合成代谢,从而影响糖与尿酸代谢的平衡。

3.3 添饲葡萄糖家蚕脂肪体差异表达蛋白的功能聚类

本研究将添加了葡萄糖的桑叶饲喂5龄家蚕,并利用iTRAQ标记学技术定量分析了家蚕脂肪体中蛋白表达谱的差异,发现与物质能量代谢相关的差异表达蛋白24个(15个上调、9个下调),包括葡糖醛酸基转移酶(G9LPV4)、V型质子ATP酶G亚基(Q2F5J4)、V型质子ATP酶E亚基(Q1HPS9)、线粒体ATP合酶耦合因子6(Q1HPM6)、Rab5小GTP结合蛋白(Q19N36)等。在生物有机体中,ATP合成酶参与生物体的氧化磷酸化,这是合成ATP的主要生化反应之一,其间的能量交换关键取决于ATP合酶的活性。研究表明,高糖饲养母猪肝脏中ATP相关基因的表达水平显著升高[14],说明家蚕在持续添饲葡萄糖的刺激下,其差异表达蛋白的功能显著集中在物质的结合、转运与代谢上,细胞通过调整相关蛋白的表达水平,积极应对葡萄糖输入所引发的物质与能量代谢变化,以维持新的细胞稳态。
添饲葡萄糖家蚕脂肪体中参与生物过程的2个真核细胞翻译起始因子——真核细胞翻译起始因子5C(A0FDQ2)和真核生物翻译起始因子3(eIF3)(Q9GV27)表达均上调。真核细胞翻译起始因子是翻译起始阶段的核心调控因子,在稳定复合体结构、调控mRNA结合、在细胞应激(如氧化应激或病毒感染)时通过调控翻译起始响应环境变化中发挥重要作用,能够刺激核糖体发挥功能[15],并参与生物能量的代谢[16]
添饲葡萄糖家蚕脂肪体中参与信号分子转导与相互作用的钙调蛋白表达上调。钙调蛋白即钙调素,是一种多功能蛋白质,能与钙离子结合[17],较广泛的参与细胞内信号转导,尤其对Ca2+依赖性信号转导途径至关重要,能够响应广泛的Ca2+浓度,并向下游传递信号。钙调蛋白在调节细胞增殖和细胞周期的过程中发挥重要作用[18]。由此可见,摄入添加葡萄糖的桑叶后,蚕体通过增加细胞体积和数量的方式达到细胞增殖进而增加体重的目的。肌动蛋白与肥胖相关,高脂小鼠模型中肌动蛋白基因表达水平明显升高[19]。本研究中,肌动蛋白解聚因子(actin depolymerizing factor)(Q1HPP5)、胸腺素异构体2(thymosin isoform 2)(Q1HPK4)、原肌球蛋白-2(tropomyosin-2)(Q1HPQ0)的表达均上调,原肌凝蛋白与肌钙蛋白复合物结合原肌球蛋白-2发挥调节肌肉收缩的中心作用,肌动蛋白解聚因子承担肌动蛋白丝解聚作用,胸腺素异构体2具有肌动蛋白单体绑定功能。
添饲葡萄糖家蚕脂肪体中谷胱甘肽硫转移酶(GST)(Q5CCJ4)的表达上调。GST是一类广泛存在的多功能酶家族,在解毒代谢、抗氧化应激及细胞信号调节中起关键作用[20],主要功能是在肝脏生物转化过程中催化解毒反应,参与抗氧化防御、解毒环境毒物、药物代谢等多个生物学过程。家蚕脂肪体功能与动物肝脏相似,说明添饲葡萄糖给家蚕的脂代谢带来了一定的影响。添饲葡萄糖家蚕脂肪体中3-脱氢蜕皮激素-3β-还原酶(A0A1B2G267)、铜-锌超氧化物歧化酶(P82205)、抗糜蛋白酶-Ⅱ(ACHY-Ⅱ)(P80034)、酪氨酸酶(Q27451)均下调,醛酮还原酶(E5EVW4)表达上调。动植物的生命活动都需要物质和能量,在家蚕添饲葡萄糖后用于生长发育的物质和能量增加,而氧化应激及免疫水平均相应有所下降,以降低应激、免疫等过程的物质能量消耗。

3.4 对葡萄糖添饲响应的家蚕脂肪体关键蛋白

通过分析差异表达蛋白互作中的子网络和网络中心度,发现表达上调的核糖体蛋白RpS9(Q5UAN5)与其他蛋白的关联度较高。核糖体蛋白参与蛋白质合成,通过与翻译起始因子(如eIF3)互作,调节翻译起始速率,适应家蚕不同发育阶段的蛋白质需求;核糖体蛋白的合成量与家蚕幼虫的发育相关;此外,核糖体蛋白参与蚕丝合成、应激响应与免疫、细胞凋亡调控,影响家蚕组织更新[21]。本研究在添饲葡萄糖家蚕脂肪体中共发现了7种差异表达核糖体蛋白(RpS9、RpL14、RpL10A、RpL36、RpS18、RpS17、RpP1)。已有研究通过对高温条件下家蚕后部丝腺的蛋白质组进行分析,发现核糖体蛋白(RpP0、RpP1、RpP2)与茧丝合成相关,主要参与能量代谢和丝蛋白合成[22-23]。本研究中,添饲2.0%的葡萄糖后,家蚕脂肪体内核糖体蛋白表达上调,可能暗示了葡萄糖能促进家蚕脂肪体中蛋白质的生物合成,有助于阐释葡萄糖添饲导致家蚕体重上升这一现象。此外,添饲葡萄糖家蚕脂肪体中RpS18与其他蛋白的联系度较高,说明其在营养物质及能量代谢中十分关键。RpS18作为40S小亚基的必需结构蛋白,在蛋白质合成的起始阶段与其他核糖体蛋白及核糖体RNA(rRNA)协同作用,形成稳定的核糖体小亚基,为翻译过程提供基础结构平台,以确保蛋白质合成的准确性和效率。本研究表明,家蚕体内的核糖体蛋白对持续添饲葡萄糖表现出敏感性,可作为研究家蚕在高糖饲养条件下机体变化机制的切入点。

4 结论

① 给5龄家蚕添饲2.0%葡萄糖可显著促进体重增长。
② 添饲2.0%葡萄糖促进家蚕能量代谢,但糖供给过量导致家蚕血淋巴中葡萄糖、尿酸、甘油三酯等代谢物浓度显著升高,糖酵解关键酶活性改变,表明糖和脂代谢负担加重。
③ 添饲2.0%葡萄糖后,在家蚕脂肪体中共鉴定出115个差异表达蛋白,功能富集分析显示这些蛋白主要参与物质能量代谢、信号转导、细胞结构与应激响应等生物学过程。
④ PPI网络分析识别出10个高中心度关键蛋白,其中RpS9、RpS18、RpL10A处于网络核心,提示核糖体功能及蛋白质合成在家蚕响应高糖刺激中起枢纽作用。
⑤ 综上可知,添饲2.0%葡萄糖通过激活能量代谢通路、加重糖和脂代谢负荷,并扰动核糖体蛋白表达,系统影响家蚕生理状态,该研究结果可为解析昆虫脂肪体代谢调控机制及开发家蚕糖尿病模型提供理论基础。
[1]
殷智晔, 侯永华, 于丽微, 等. 人参皂苷Rg3对Ⅱ型糖尿病大鼠肺损伤的保护作用及其机制[J/OL]. 特产研究, 2025,[2025-04-01].doi:10.16720/j.cnki.tcyj.2025.032.

YIN Z Y, HOU Y H, YU L W, et al. Protective effect of ginsenoside Rg3 on lung injury in type 2 diabetic rats and its mechanism[J/OL]. Special Wild Economic Animal and Plant Research, 2025,[2025-04-01].doi:10.16720/j.cnki.tcyj.2025.032. (in Chinese)

[2]
孙琰, 王文娇, 吴斌. 不同部位脂肪组织对胰岛β细胞凋亡影响的研究进展[J]. 中国糖尿病杂志, 2024, 32(12):951-953.

SUN Y, WANG W J, WU B. Research progress on the effect of adipose tissue from different sites on islet β cell apoptosis[J]. Chinese Journal of Diabetes, 2024, 32(12):951-953. (in Chinese)

[3]
侯嘉铭. 基于16-20摄氏度饲养环境通过葡萄糖诱导家蚕建立糖尿病模型的研究[D]. 硕士学位论文. 百色: 右江民族医学院, 2024.

HOU J M. Study on the establishment of diabetes model of silkworm by glucose induction based on the feeding environment of 16-20 ℃[D]. Master’s Thesis. Baise: Youjiang Medical University for Nationalities, 2024. (in Chinese)

[4]
何芬. 家蚕新突变体淡红卵rep的定位分析[D]. 硕士学位论文. 镇江: 江苏科技大学, 2017.

HE F. Mapping analysis of the new mutant pale red egg (rep) in the silkworm,Bombyx mori[D]. Master’s Thesis. Zhenjiang: Jiangsu University of Science and Technology, 2017. (in Chinese)

[5]
RYU K S, KIM H S, LEE C H. Antihyperglycemic effects of powdered silkworm (Bombyx mori) in alloxan-induced diabetic rats[J]. The Korean Journal of Sericultural Science, 1992, 34(2):123-127.

[6]
赵淑飞. 基于胰岛保护与逆转胰岛素抵抗的家蚕抗糖尿病作用研究[D]. 硕士学位论文. 福州: 福建中医药大学, 2018.

ZHAO S F. Based on islet protection and reversal of insulin resistance of silkworm anti-diabetes effect research[D]. Master’s Thesis. Fuzhou: Fujian University of Traditional Chinese Medical, 2018. (in Chinese)

[7]
马雪云. 家蚕治疗糖尿病的抗氧化药效成分分析[D]. 硕士学位论文. 福州: 福建中医药大学, 2018.

MA X Y. Analysis of antioxidant effective composition of silkworm treating diabetes mellitus[D]. Master’s Thesis. Fuzhou: Fujian University of Traditional Chinese Medical, 2018. (in Chinese)

[8]
刘培刚, 李卫国, 王永强. 家蚕蛋白质组学研究进展[J]. 浙江农业学报, 2010, 22(1):124-129.

LIU P G, LI W G, WANG Y Q. Progress of proteomics research in silkworm (Bombyx mori)[J]. Acta Agriculturae Zhejiangensis, 2010, 22(1):124-129. (in Chinese)

[9]
王举梅. 家蚕在菊酯类农药诱导后的脂肪体蛋白表达谱研究[D]. 硕士学位论文. 苏州: 苏州大学, 2010.

WANG J M. The study of protein expression profiling of fat body in Bombyx mori induced by cypermethrin[D]. Master’s Thesis. Suzhou: Soochow University, 2010. (in Chinese)

[10]
夏定国, 张国政, 赵巧玲, 等. 葡萄糖添食对家蚕磷酸果糖激酶及茧质的影响[C]// 中国蚕学会第六届家蚕和柞蚕遗传育种暨蚕桑产业技术体系遗传育种学术研讨会. 海拉尔: 中国蚕学会,2009:310-313.

XIA D G, ZHANG G Z, ZHAO Q L, et al. The effect of glucose supplementation on phosphofructokinase and cocoon quality in silkworms[C]// The 6th Academic Symposium on Genetic Breeding of Silkworms and Tussah and Genetic Breeding of Sericulture Industry Technology System by the Chinese Silkworm Society. Hailar: Chinese Silkworm Society,2009:310-313. (in Chinese)

[11]
卢忠燕, 温阳丽, 张振, 等. 高糖饲料饲养对家蚕的血糖浓度和脂肪体中的甘油三酯含量影响[J]. 蚕业科学, 2014, 40(5):933-937.

LU Z Y, WEN Y L, ZHANG Z, et al. Effects of high carbohydrate diet on serum sugar level and fat body triglyceride content in silkworm,Bombyx mori[J]. Acta Sericologica Sinica, 2014, 40(5):933-937. (in Chinese)

[12]
马月, 马旺博, 周智华, 等. 槲皮素干预肾间质成纤维细胞糖酵解抗肾间质纤维化机制研究[J]. 中国临床药理学与治疗学, 2023, 28(2):121-129.

MA Y, MA W B, ZHOU Z H, et al. Intervention of quercetin in glycolysis of renal interstitial fibroblasts against interstitial fibrosis mechanism[J]. Chinese Journal of Clinical Pharmacology and Therapeutics, 2023, 28(2):121-129. (in Chinese)

[13]
李苗苗. 家蚕脂肪体中响应蜕皮激素诱导的lncRNA482的鉴定和功能探究[D]. 硕士学位论文. 郑州: 郑州大学, 2022.

LI M M, Based on islet protection and reversal of insulin resistance of silkworm anti-diabetes effect research[D]. Master’s Thesis. Zhengzhou: Zhengzhou University, 2022. (in Chinese)

[14]
谭现义. 能量水平和来源对后备母猪不同组织器官ATP合酶、UCP2、Na+-K+-ATP酶基因表达的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2007.

TAN X Y. Effect of dietary energy level ang source the expression of ATP5A1,UCP2,Na+-K+-ATPase mRNA in different tissue and organs of gilts[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2007. (in Chinese)

[15]
MERRICK W C, KEMPER W M, KANTOR J A, et al. Purification and properties of rabbit reticulocyte protein synthesis elongation factor 2[J]. Journal of Biological Chemistry, 1975, 250(7):2620-2625.

PMID

[16]
苏丹. 真核翻译起始因子3调控能量代谢相关蛋白的合成[D]. 硕士学位论文. 厦门: 厦门大学, 2017.

SU D. elF3 regulate translation control of metabolic energy[D]. Master’s Thesis. Xiamen: Xiamen University, 2017. (in Chinese)

[17]
ZHANG M, ABRAMS C, WANG L P, et al. Structural basis for calmodulin as a dynamic calcium sensor[J]. Structure, 2012, 20(5):911-923.

DOI PMID

[18]
李庆伟, 张撼, 逄越. 钙调蛋白结构、性质及其细胞生物学功能的研究进展[J]. 辽宁师范大学学报(自然科学版), 2017, 40(1):74-82.

LI Q W, ZHANG H, PANG Y. The structure,properties and celluar biological functions of CaM[J]. Journal of Liaoning Normal University (Natural Science Edition), 2017, 40(1):74-82. (in Chinese)

[19]
仝琳鸽, 杨洋, 叶圣莹, 等. 胃饥饿素对非酒精性脂肪性肝炎小鼠抗纤维化作用的研究[J]. 中华肝脏病杂志, 2023, 31(12):1283-1289.

TONG L G, YANG Y, YE S Y, ea al. A study of the anti-fibrotic effect of ghrelin on mice with nonalcoholic steatohepatitis[J]. Chinese Journal of Hepatology, 2023, 31(12):1283-1289. (in Chinese)

[20]
刘燕飞, 段伟科, 唐凯, 等. 辣椒GST基因家族鉴定及进化与表达分析[J/OL]. 西北农业学报, 2025:1-12(2025-04-18)[2025-04-18].https://doi.org/10.7606/j.issn.1004-1389.2026.01.001.

LIU Y F, DUAN W K, TANG K, et al. Identification of the GST gene family in peppers and its evolution and expression analysis[J/OL]. Acta Agriculturae Boreali-Occidentalis Sinica, 2025:1-12(2025-04-18)[2025-04-18].https://doi.org/10.7606/j.issn.1004-1389.2026.01.001. (in Chinese)

[21]
李奕竺, 刘博文, 钱荷英, 等. 真核生物翻译延伸因子eEF1A的功能及在家蚕中的研究进展[J]. 中国蚕业, 2024, 45(4):47-54.

LI Y Z, LIU B W, QIAN H Y, et al. The function of eukaryotic translation extension factor eEF1A and its research progress in silkworms[J]. China Sericulture, 2024, 45(4):47-54. (in Chinese)

[22]
LI J S, YE L P, LAN T Y, et al. Comparative proteomic and phosphoproteomic analysis of the silkworm (Bombyx mori) posterior silk gland under high temperature treatment[J]. Molecular Biology Reports, 2012, 39(8):8447-8456.

DOI PMID

[23]
夏爱华, 李季生, 李娜, 等. 热激对家蚕后部丝腺磷酸化蛋白质组的影响[J]. 河南农业科学, 2016, 45(2):127-133,137.

XIA A H, LI J S, LI N, et al. Effect of heat shock on phosphorylation proteins of silkworm posterior silk gland[J]. Journal of Henan Agricultural Sciences, 2016, 45(2):127-133,137. (in Chinese)

文章导航

/