研究论文

胃肠道寄生虫感染对妊娠期绵羊血浆外泌体miRNA表达规律的影响

  • 向海 , 1, 2 ,
  • 赵子骄 1 ,
  • 刘金娣 1, 2 ,
  • 韩馨雨 1 ,
  • 孙明远 3 ,
  • 钟荣珍 , 1, *
展开
  • 1 中国科学院东北地理与农业生态研究所,黑土地保护与利用全国重点实验室,吉林省饲料加工与草食家畜精准饲养跨区域合作科技创新中心,长春 130102
  • 2 中国科学院大学现代农业科学学院,北京 101408
  • 3 吉林格润佳生物科技有限公司,长春 130000
* 钟荣珍,研究员,博士生导师,E-mail:

向 海(1996—),女,湖南湘阴人,博士研究生,从事动物营养与农牧循环研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-04-22

  网络出版日期: 2026-02-12

基金资助

国家自然科学基金区域创新发展联合基金(U23A20234)

国家重点研发计划子课题(2024YFD1301102)

国家重点研发计划子课题(2024YFD1301105)

“科技兴蒙”行动重点专项课题(2022EEDSKJXM001)

高校院所中试遴选项目(24GXYSZZ11)

吉林省与中国科学院科技合作高技术产业化专项资金项目(2024SYHZ0003)

Effects of Gastrointestinal Parasitic Infection on Plasma Exosomal miRNA Expression Patterns in Pregnant Sheep

  • XIANG Hai , 1, 2 ,
  • ZHAO Zijiao 1 ,
  • LIU Jindi 1, 2 ,
  • HAN Xinyu 1 ,
  • SUN Mingyuan 3 ,
  • ZHONG Rongzhen , 1, *
Expand
  • 1 Jilin Province Feed Processing and Ruminant Precision Breeding Cross Regional Cooperation Technology Innovation Center, Northeast Institute of Geography and Agroecology, Chinese Academy of Sciences, Changchun 130102, China
  • 2 College of Advanced Agricultural Sciences, University of Chinese Academy of Sciences, Beijing 101408, China
  • 3 Jilin Gerunjia Biotechnology Co., Ltd., Changchun 130000, China
* professor, E-mail:

Received date: 2025-04-22

  Online published: 2026-02-12

摘要

本试验旨在研究妊娠期绵羊捻转血矛线虫感染过程中血浆外泌体miRNA表达规律及其作用。选取平均体重为(35.0±1.2) kg的(160±11)日龄呼伦贝尔绵羊20只,进行化学驱虫、同期发情和人工授精,人工授精28 d后挑选授精成功的绵羊12只,随机分为2组(对照组和感染组,n=6),对照组不进行处理,感染组口服约10 000条感染性捻转血矛线虫。从人工授精开始计算,整个试验共计126 d。试验期间通过颈静脉采集绵羊血液,离心后获得上层血浆,用于外泌体miRNA的提取、鉴定和测序;收集全血,用于血细胞计数。试验采样共分为5个时期,分别为妊娠第28(捻转血矛线虫感染第1天)、56(捻转血矛线虫感染第28天)、70(捻转血矛线虫感染第42天)、98(捻转血矛线虫感染第70天)和126天(捻转血矛线虫感染第84天)。结果显示:在5个不同妊娠时期,相对于妊娠第56天和第98天,对照组和感染组绵羊之间在妊娠第28、70和126天具有更多的外泌体差异表达miRNA。在绵羊妊娠早期时,捻转血矛线虫感染导致更多血浆外泌体miRNA表达量上调,而在绵羊妊娠后期,捻转血矛线虫感染导致更多血浆外泌体miRNA表达量下调。对外泌体差异表达miRNA的靶基因进行功能注释,发现它们主要富集在宿主动物的免疫过程上,包括溶酶体、吞噬体、蛋白酶体、抗体加工和呈递以及腺苷酸活化蛋白激酶(AMPK)信号通路等。同时,在感染初期至感染高峰期,这些差异表达miRNA主要与绵羊血液中免疫细胞数量存在显著相关(P<0.05),而在感染后期,这些差异表达miRNA主要与绵羊血液中红细胞和血小板数量存在显著相关(P<0.05)。其中,bta-miR-7可能是妊娠期母羊捻转血矛线虫感染高峰期的潜在生物标志物,因为在妊娠第56和70天时bta-miR-7的表达量与绵羊血液中部分免疫细胞数量呈显著负相关(P<0.05)。本研究结果可为miRNA作为检测动物寄生虫感染的潜在生物标志物和疫苗治疗靶点提供理论基础,有助于为寄生虫病的治疗提供新的参考依据。

本文引用格式

向海 , 赵子骄 , 刘金娣 , 韩馨雨 , 孙明远 , 钟荣珍 . 胃肠道寄生虫感染对妊娠期绵羊血浆外泌体miRNA表达规律的影响[J]. 动物营养学报, 2026 , 38(2) : 1312 -1331 . DOI: 10.12418/CJAN2026.105

Abstract

This experiment aimed to study the expression patterns and roles of plasma exosomal miRNA in pregnant sheep infected with Haemonchus contortus (H. contortus). Twenty Hulunbuir sheep aged (160±11) days with an average body weight of (35.0±1.2) kg were selected and underwent chemical deworming, estrus synchronization, and artificial insemination. Twenty-eight days after artificial insemination, 12 successfully impregnated sheep were selected and randomly divided into two groups (control group and infection group, n=6). The sheep from infection group orally administered of 10 000 infectious H. contortus while the control group did not. Calculation started with artificial insemination, and the entire experiment lasted for 126 days. During the experiment, blood samples were collected from the sheep via the jugular vein. After centrifugation, the upper plasma was obtained for the extraction, identification, and sequencing of exosomal miRNA; whole blood was collected for blood cell counting. The experimental sampling was divided into 5 periods, which were day 28 of pregnancy (day 1 of H. contortus infection), day 56 of pregnancy (day 28 of H. contortus infection), day 70 of pregnancy (day 42 of H. contortus infection), day 98 of pregnancy (day 70 of H. contortus infection), and day 126 of pregnancy (day 84 of H. contortus infection). The results showed as follows: during these 5 different pregnancy periods, there were more exosomal differentially expressed miRNA of sheep between the control group and infection group on day 28, 70 and 126 compared with day 56 and 98 after pregnancy. In the early stages of sheep pregnancy, H. contortus infection led to an upregulation in the expression of more exosomal miRNA in plasma; in the late stages of sheep pregnancy, it led to a downregulation in the expression of more exosomal miRNA in plasma. Functional annotation of the target genes of the exosomal differentially expressed miRNA revealed that these genes were mainly enriched in the immune process of host animals, including lysosomes, phagosomes, proteasomes, antibody processing and presentation, and adenosine monophosphate-activated protein kinase (AMPK) signaling pathways. Meanwhile, from the early stage of infection to the peak stage of infection, these differentially expressed miRNA were mainly significantly correlated with the counts of immune cells in the blood of sheep (P<0.05); in the late stage of infection, these differentially expressed miRNA were mainly significantly correlated with the counts of red blood cells and platelets in the blood of sheep (P<0.05). Among them, bta-miR-7 might be a potential biomarker for the peak period of H. contortus infection in pregnant ewes, because the expression level of bta-miR-7 on days 56 and 70 of pregnant was significantly negative correlated with the hemoglobin content and the counts of some immune cells in the blood of sheep (P<0.05). The findings of this study provide a theoretical basis for using miRNA as potential biomarkers for detecting parasitic infection in animals and as targets for vaccine therapy, which helps to provide a new reference for the treatment of parasitic diseases.

动物胃肠道寄生虫感染十分普遍,特别是在热带和亚热带地区,我国部分地区的感染率高达100%[1-2]。其中,捻转血矛线虫(Haemonchus contortus)被列为危害全球畜牧业最重要的寄生虫之一[3]。捻转血矛线虫主要寄生在反刍动物的皱胃中,偶见于十二指肠前端,通过吸食其寄生部位毛细血管的血液为生[4-5]。宿主动物感染严重时大量失血,导致低蛋白血症和贫血等症状,并伴随眼睑苍白、腹泻、食欲不振、消化不良、活重减轻,甚至死亡,因此捻转血矛线虫感染给畜牧业造成巨大经济损失[6]
妊娠期动物对各种营养素的需求量更大,因而更容易受到胃肠道寄生虫的入侵[7]。这些胃肠道寄生虫对雌性动物造成的损失包括但不限于存活率和活体重减少、产奶量和繁殖性能下降[8]。增加膳食营养(如蛋白质)可以显著改善妊娠期动物的体重和体况评分,并减轻捻转血矛线虫感染程度,增强其恢复力[9]。胃肠道寄生虫不仅对宿主动物的饲粮营养利用有显著负面影响,还通过增加母体胎盘及全身炎症,进而影响其子代发育[9-10]
动物妊娠期受到多种激素的调控,捻转血矛线虫感染已被证明能导致宿主动物多种血清激素紊乱,如瘦素、促性腺激素释放激素、促卵泡激素和黄体生成素等[10-11]。诸多研究已表明血液中的外泌体miRNA与妊娠期相关的激素水平密切相关。外泌体是由各种细胞释放到细胞外液的微小囊泡,直径为30~200 nm,包含核酸、脂质和蛋白质等多种具有生物功能的小分子物质,是细胞间的通讯工具[12-13]。外泌体在动物妊娠期呈现增加的趋势,主要通过调节母体免疫反应和代谢过程介导母体胚胎和子宫内膜之间的信息交流和物质传递[14]。与蛋白质和脂质以及其他小分子物质相比,外泌体中的miRNA受生物膜的保护而免受降解。外泌体中的miRNA等非编码RNA广泛存在于生殖器官中,可以影响靶细胞的基因表达,并与繁殖性状高度相关[15-18]
外泌体作为细胞间的通讯工具,其在胃肠道寄生虫感染过程中发挥的调控作用逐渐被揭示。多种寄生虫,如利什曼原虫、疟原虫、血吸虫、捻转血矛线虫等,均可以产生外泌体,外泌体可作为转运小体将寄生虫核酸、蛋白质及其他类型的小分子物质从寄生虫转运到宿主并发挥调控作用[19-20]。寄生虫的外泌体miRNA主要通过抑制宿主动物抗炎因子的表达,破坏宿主动物的免疫应答反应,从而使自身实现免疫逃逸[20-22]。寄生虫除了自身能产生外泌体外,还能通过感染宿主动物刺激宿主细胞产生宿主源外泌体。宿主源外泌体可调控宿主免疫反应相关基因表达,增强免疫反应,进而促进体内寄生虫排出[23]
然而,目前很少有研究聚焦于妊娠期宿主动物感染捻转血矛线虫的过程中血浆外泌体miRNA的表达规律及其作用。鉴于此,本研究以人工感染捻转血矛线虫的妊娠期呼伦贝尔羊为模型,鉴定捻转血矛线虫感染后宿主绵羊不同妊娠时期血浆外泌体的差异miRNA,旨在探究捻转血矛线虫如何调控妊娠绵羊血浆外泌体miRNA,揭示外泌体miRNA在捻转血矛线虫感染过程中发挥的作用,以期为外泌体miRNA作为捻转血矛线虫感染的潜在生物标志物研究提供理论基础,为捻转血矛线虫感染的疫苗作用靶点研究提供新思路。

1 材料与方法

1.1 捻转血矛线虫

捻转血矛线虫在无线虫的绵羊中连续传代,保存在中国科学院地理与农业生态研究所吉林省草地养殖重点实验室。根据Xiang等[6]的方法,在25~28 ℃条件下,将绵羊粪便中的虫卵孵育14 d,获得具有感染性的捻转血矛线虫。

1.2 试验设计

试验动物的使用和试验程序已经中国科学院地理与农业生态研究所实验动物福利伦理委员会批准(No. GF2019003),所有动物均按照实验动物福利伦理委员会制定的实验动物使用指导方针进行护理。选取平均体重为(35.0±1.2) kg的(160±11)日龄呼伦贝尔母羊20只。所有母羊均单独饲养并使用化学驱虫剂(阿苯达唑伊维菌素复合粉,河南华畜有限公司)驱虫,以确保在人工授精之前所有母羊都没有胃肠道寄生虫。驱虫后,试验母羊进行同期发情处理。在母羊发情当天。采用电激法采集呼伦贝尔公羊的精子,在光学显微镜下观察精子的活力和数量,将装有高活力和有效浓度精液的人工授精管插入试验母羊的宫颈深部,进行人工授精。人工授精28 d后,使用便携式B超仪判断试验母羊是否妊娠成功。
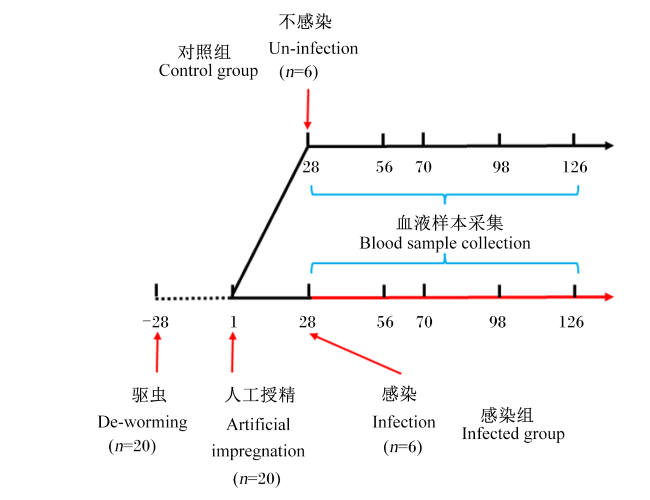
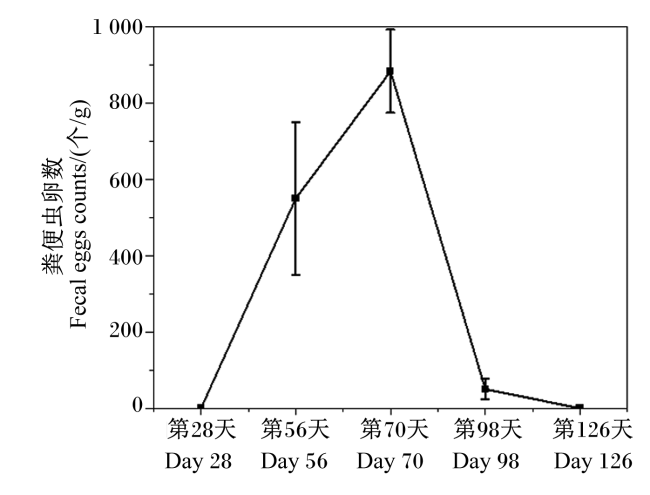
将成功授精的试验母羊随机分为2组——对照组和感染组,每组6只,未成功授精的试验母羊舍弃。其中,对照组不进行捻转血矛线虫感染,而感染组通过口腔灌注大约10 000条感染性捻转血矛线虫。从人工授精开始计算,整个试验共计126 d。试验期间,分别于母羊人工授精后第28(捻转血矛线虫感染第1天)、56(捻转血矛线虫感染第28天)、70(捻转血矛线虫感染第42天)、98(捻转血矛线虫感染第70天)和126天(捻转血矛线虫感染第84天)通过颈静脉采集血液样本。具体的试验设计如图1所示。试验母羊所喂饲粮根据NRC(2007)[24]小反刍动物营养需求配制,其组成及营养水平见表1。通过光学显微镜定期对感染组绵羊直肠粪便的虫卵数进行观察和计数,在每只感染组绵羊直肠粪便中均发现了捻转血矛线虫的虫卵(图2,试验第70天左右为捻转血矛线虫感染的高峰期,此时绵羊粪便虫卵数最多),说明感染模型建立成功。
图1 试验设计

Fig.1 Experimental design

图2 感染组绵羊粪便中虫卵数(平均值±标准差)

Fig.2 Fecal egg counts of sheep in infected group (mean±SD)

表1 饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the diet (DM basis) %

项目Items 含量Content
原料Ingredients
油菜秸秆Rape straw 20.00
小麦秸秆Wheat straw 15.00
大豆荚皮Soybean pod skin 25.00
玉米粉Ground corn 20.35
豆粕Soybean meal 7.76
麦麸Wheat bran 7.00
尿素Urea 1.50
食盐NaCl 0.80
石粉Limestone 0.49
预混料Premix1) 2.10
合计Total 100.00
营养水平Nutrient levels2)
干物质(风干基础) DM (air-dry basis) 89.45
代谢能ME/(MJ/kg) 8.38
粗蛋白质CP 12.36
中性洗涤纤维NDF 43.51
酸性洗涤纤维ADF 24.62
粗脂肪EE 3.25
粗灰分Ash 8.77
钙Ca 0.90
磷P 0.45

1)预混料为每千克饲粮提供 The premix provides the following per kilogram of the diet:VA 9 000 IU, VD 3 000 IU, VE 40 mg, Cu 10 mg, Fe 30 mg, Zn 25 mg, I 0.5 mg, Se 0.2 mg, Co 0.2 mg。

2)代谢能为参照NY/T 816—2021计算得出,其他营养水平为实测值。ME is calculated according to NY/T 816—2021, while other nutrient levels are measured values.

1.3 饲养管理

妊娠母羊成功感染捻转血矛线虫后,继续进行98 d的饲养试验至妊娠母羊围产期。在感染后饲养期间,每只试验母羊单独饲养在1个2 m×2 m的栏舍中。所有试验母羊每天饲喂2次(06:00和18:00),并能自由获得饮用水。每天记录每只妊娠试验母羊的采食量,根据其每日的采食量调整饲粮供给量,确保试验母羊每天获得足够的营养。根据表观临床症状和BXL-V10便携式B超仪(郑州博祥来电子科技有限公司)显影判断每只试验母羊妊娠阶段。试验过程中未发现试验母羊流产。

1.4 样品采集

晨饲前,利用含乙二胺四乙酸(EDTA)抗凝剂的真空采血管无菌采集试验母羊颈静脉血5 mL,共收集2管血液样本。其中一管血液样本静止30 min后于4 ℃条件下2 500×g离心10 min,轻轻吸取上层血浆于无菌冻存管中液氮冻存,用于后续血浆外泌体miRNA的提取、鉴定和测序;另一管血液样本4 ℃保存,当天带回实验室用于血细胞计数检测。另外,收集绵羊饲粮样本6份,用于饲粮营养成分测定。

1.5 指标测定

1.5.1 饲粮营养成分测定

参考GB/T 6435—2014,将饲粮样本在105 ℃恒温箱中烘至恒重,得到饲粮中干物质(DM)含量;分别参考GB/T 6432—2018、GB/T 6433—2006、GB/T 20806—2006、NY/T 1459—2007、GB/T 6438—2007、GB/T 6436—2018、GB/T 6437—2018进行饲粮中粗蛋白质(CP)、粗脂肪(EE)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、粗灰分(Ash)、钙(Ca)和磷(P)含量的测定。

1.5.2 血细胞计数检测

血液中白细胞、淋巴细胞、单核细胞、粒细胞、嗜酸性粒细胞、嗜碱性粒细胞、红细胞、血小板数量和血红蛋白含量参照供应商[希森美康医用电子(上海)有限公司]说明书使用Sysmex xe-2100型血细胞分析仪进行检测。

1.5.3 外泌体提取与鉴定

根据Zhang等[25]的方法提取血浆中的外泌体。将血浆样品从液氮中取出后于25 ℃水浴锅中解冻。血浆样品彻底融化后,将样品置于冰上进行后续操作。取1 mL血浆样本,加入等体积的预冷的磷酸盐缓冲液(PBS),然后于4 ℃条件下100 000×g离心60 min,弃上清,留沉淀,以上步骤重复2次。取50 μL预冷的PBS于上述沉淀中轻轻吹打混匀后,一部分于-80 ℃保存用于后续鉴定与测序,另一部分采用N30型流动纳米分析仪(厦门福流生物科技有限公司)鉴定上述提取的外泌体样本的颗粒大小和颗粒浓度,确保符合后续测序要求。

1.5.4 外泌体miRNA测序

按照Cao等[26]的方法,使用TruSeq Small RNA Sample Prep Kits试剂盒(Illumina,美国)从血浆外泌体中提取总RNA,然后按照Illumina提供的标准步骤执行,包括文库制备和测序。文库制备工作完成后,对构建好的文库使用Illumina HiSeq 2500进行测序,测序读长为单端50 bp(SE50)。使用StringTie和edgeR在转录水平上评估基因表达量。

1.6 数据统计与分析

2组的miRNA表达量的原始数据统一经过归一化后,使用t检验(双尾、异方差)进行差异显著性分析。从差异倍数(FC)和显著水平2个方面对差异表达miRNA进行筛选,FC>2或FC<0.5(即|log2(FC)|>1)且P<0.05,可被认定为差异表达miRNA。富集分析主要是对差异表达miRNA的靶基因的表达量进行富集分析,即对差异表达miRNA靶基因进行GO功能注释和KEGG富集分析,建立起以基因为介质的miRNA与功能的联系。绵羊血细胞数据使用SAS 9.4广义线性模型进行差异显著性分析。血细胞计数与差异表达miRNA表达量之间的相关性分析使用Origin 2025统计与绘制。

2 结果与分析

2.1 外泌体鉴定结果

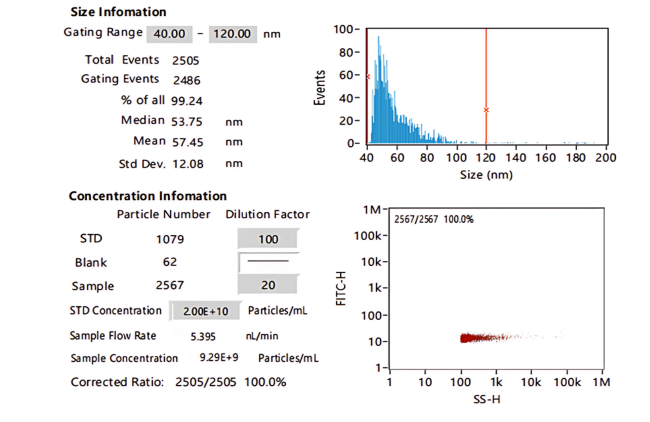
图3可知,从绵羊血浆中获得的外泌体样本的颗粒大小为(57.45±12.08) nm,颗粒浓度为9.29×10⁹ 粒/mL,两者均在正常范围内,符合后续测序要求。
图3 外泌体样本颗粒大小和浓度

Size Information:粒径信息;Gating Range:分析范围;Total Events:总信号触发次数;Gating Events:有效外泌体数;% of all:占总体的百分比;Median:中位数;Mean:平均数;Std Dev.:标准差;Concentration Information:浓度信息;Particle Number:颗粒数量;Dilution Factor:稀释倍数;STD:标准品;Blank:空白;Sample:样品;STD Concentration:标准品浓度;Sample Flow Rate:样品流速;Sample Concentration:样品浓度;Corrected Ratio:校正比率;Events:信号触发次数;Size:粒径;FITC-H:FITC荧光强度;SS-H:侧向散射强度。

Fig.3 Particle size and concentration of exosome samples

2.2 外泌体miRNA检测结果

不同妊娠时期,对照组和感染组之间差异表达miRNA如表2所示。在母羊妊娠第28、56、70、98和126天,2组之间的差异表达miRNA分别有22、16、23、15和23个,其中分别有9、4、10、13和17个miRNA上调,分别有13、12、13、2和6个miRNA下调。
表2 对照组和感染组血浆外泌体中的差异表达miRNA

Table 2 Differentially expressed miRNA in plasma exosomes between control and infected groups 个

取样时间
Sampling time
差异表达miRNA数目
Differentially expressed
miRNA number
上调数目
Up-regulation number
下调数目
Down-regulation
number
第28天Day 28 22 9 13
第56天Day 56 16 4 12
第70天Day 70 23 10 13
第98天Day 98 15 13 2
第126天Day 126 23 17 6

2.3 外泌体差异表达miRNA的聚类分析结果

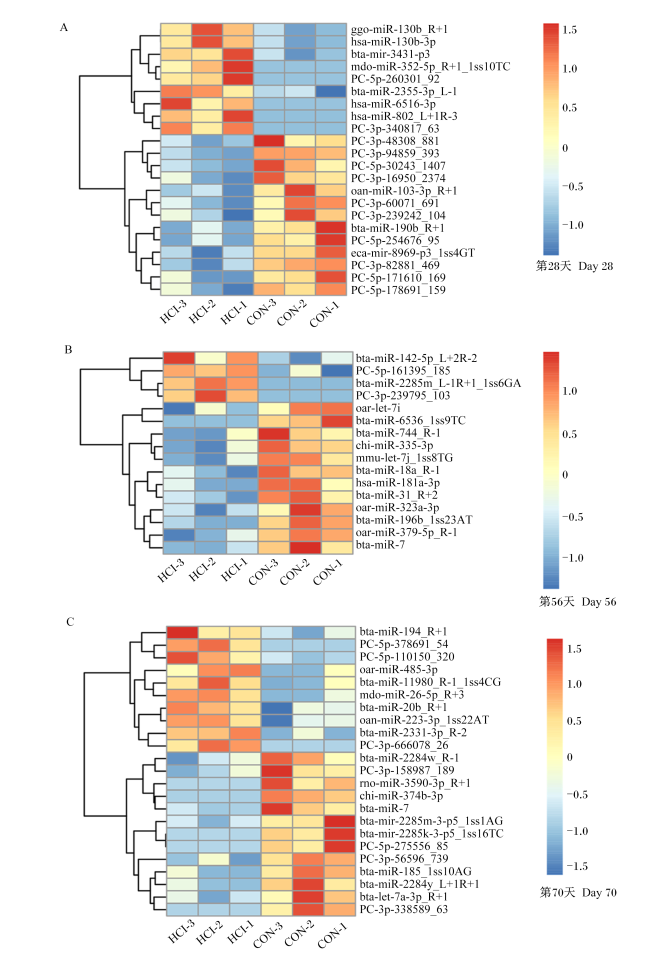
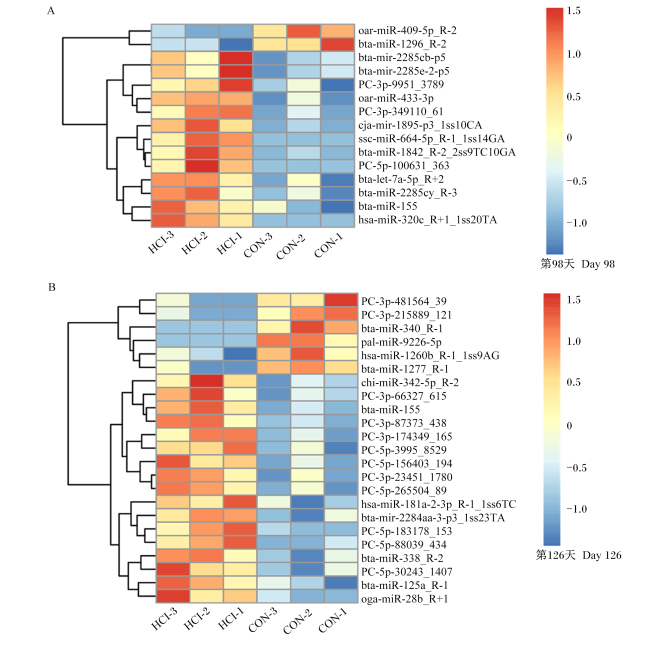
对不同妊娠时期对照组与感染组的差异表达miRNA进行层次聚类分析,结果如图4图5所示。以妊娠第70天采样点为分界线,与对照组相比,感染组中大部分差异表达miRNA在第28和56天时的呈现下调趋势,在第98和126天时呈现上调趋势。
图4 第28(A)、56(B)和70天(C)时对照组和感染组血浆外泌体差异表达miRNA的聚类分析

HCI-1、HCI-2、HCI-3为感染组的3个样本,CON-1、CON-2、CON-3为对照组的3个样本。下图同。

Fig.4 Cluster analysis of differentially expressed miRNA in plasma exosomes between control and infected groups at days 28 (A), 56 (B) and 70 (C)

HCI-1, HCI-2 and HCI-3 are three samples from the infected group, while CON-1, CON-2 and CON-3 are three samples from the control group. The same as below.

图5 第98(A)和126天(B)时对照组和感染组血浆外泌体差异表达miRNA聚类分析图

Fig.5 Cluster analysis diagrams of differentially expressed miRNA in plasma exosomes between control and infected groups at days 98 (A) and 126 (B)

2.4 外泌体差异表达miRNA靶基因的GO功能注释结果

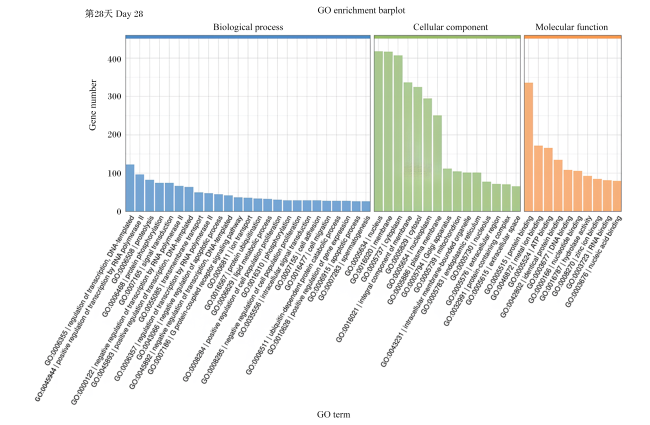
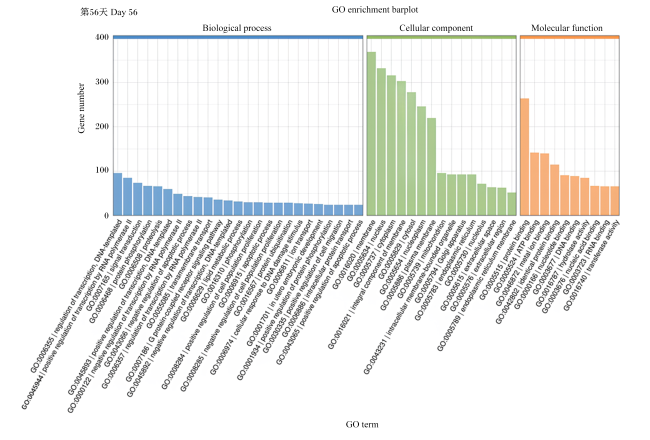
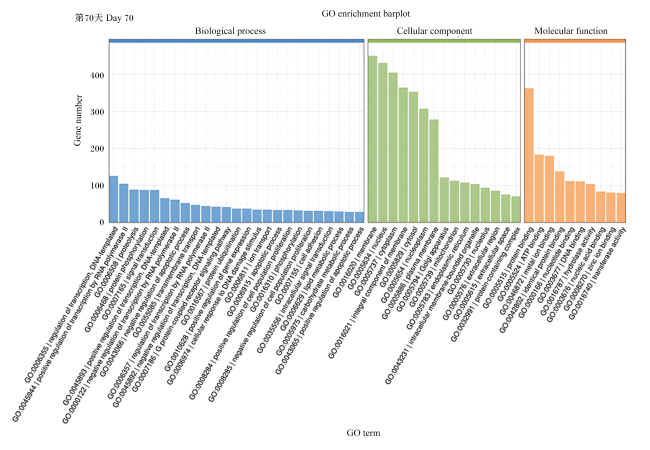
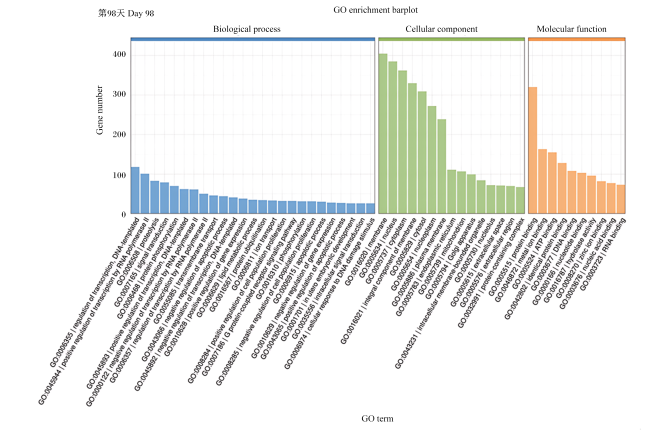
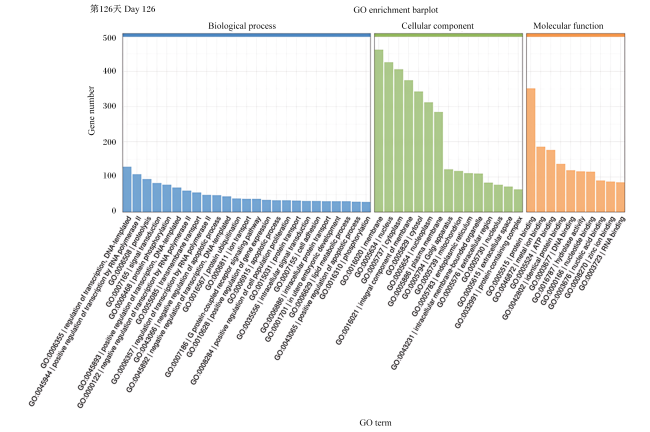
对不同妊娠时期的所有外泌体差异表达miRNA靶基因进行GO功能注释,结果如图6图7图8图9图10所示。不同妊娠时期对照组和感染组间的差异表达miRNA的靶基因的GO功能注释分布情况类似,外泌体差异表达miRNA的靶基因主要分布在细胞组分上,主要调控细胞核、细胞膜和细胞质等细胞组分,其次是分子功能,主要富集在DNA模块化和蛋白质结合上,而在生物学过程中主要富集在转录调控上。
图6 外泌体差异表达miRNA靶基因的GO功能分类(第28天)

GO enrichment barplot:GO富集条形图;Gene number:基因数量;GO term:GO条目;Biological process:生物学过程;Cellular component:细胞组分;Molecular function:分子功能;regulation of transcription, DNA-templated:转录调控,DNA模板化;positive regulation of transcription by RNA polymerase Ⅱ:RNA聚合酶Ⅱ对转录的正向调控;proteolysis:蛋白质水解;protein phosphorylation:蛋白质磷酸化;signal transduction:信号转导;negative regulation of transcription by RNA polymerase Ⅱ:RNA聚合酶Ⅱ对转录的负向调控;positive regulation of transcription, DNA-templated:转录正调控,DNA模板化;transmembrane transport:跨膜运输;Regulation of transcription by RNA polymerase Ⅱ:RNA聚合酶Ⅱ对转录的调控;negative regulation of apoptotic process:凋亡过程负向调控;negative regulation of transcription, DNA-templated:转录负调控,DNA模板化;G protein-coupled receptor signaling pathway:G蛋白偶联受体信号通路;ion transport:离子传输;protein ubiquitination:蛋白质泛素化;lipid metabolic process:脂质代谢过程;positive regulation of cell population proliferation:细胞群增殖的正向调节;phosphorylation:磷酸化作用;negative regulation of cell population proliferation:细胞群增殖的负向调节;intracellular signal transduction:细胞内信号传导;cell adhesion:细胞黏附;cell migration:细胞迁移;ubiquitin-dependent protein catabolic process:泛素依赖蛋白分解代谢过程;positive regulation of gene expression:基因表达的正向调控;apoptotic process:凋亡过程;spermatogenesis:精子形成;nucleus:细胞核;membrane:细胞膜;cytoplasm:细胞质;integral component of membrane:膜整合蛋白;cytosol:细胞溶质;nucleoplasm:核浆;plasma membrane:质膜;Golgi apparatus:高尔基体;mitochondrion:线粒体;intracellular membrane-bounded organelle:胞内膜结合细胞器;endoplasmic reticulum:内质网;nucleolus:细胞核;extracellular region:胞外区域;protein-containing complex:蛋白质复合物;extracellular space:胞外空间;protein binding:蛋白质结合;metal ion binding:金属离子结合;ATP binding:ATP结合;identical protein binding:相同的蛋白质结合;DNA binding:DNA结合;nucleotide binding:核苷酸结合;hydrolase activity:水解酶活性;zinc ion binding:锌离子结合;RNA binding:RNA结合;nucleic acid binding:核酸结合。下图同the same as below。

Fig.6 GO functional classification of target genes for differentially expressed miRNA in exosomes (day 28)

图7 外泌体差异表达miRNA靶基因的GO功能分类(第56天)

cellular response to DNA damage stimulus:细胞对DNA损伤刺激的反应;in utero embryonic development:胚胎在子宫内发育;positive regulation of cell migration:细胞迁移的正向调控;intracellular protein transport:细胞内蛋白质转运;positive regulation of apoptotic process:凋亡过程的正向调控;endoplasmic reticulum membrane:内质网膜。下图同 the same as below。

Fig.7 GO functional classification of target genes for differentially expressed miRNA in exosomes (day 56)

图8 外泌体差异表达miRNA靶基因的GO功能分类(第70天)

carbohydrate metabolic process:碳水化合物代谢过程;transferase activity:转移酶活性。下图同 the same as below。

Fig.8 GO functional classification of target genes for differentially expressed miRNA in exosomes (day 70)

图9 外泌体差异表达miRNA靶基因的GO功能分类(第98天)

Fig.9 GO functional classification of target genes for differentially expressed miRNA in exosomes (day 98)

图10 外泌体差异表达miRNA靶基因的GO功能分类(第126天)

Fig.10 GO functional classification of target genes for differentially expressed miRNA in exosomes (day 126)

2.5 外泌体差异表达miRNA靶基因的KEGG富集分析结果

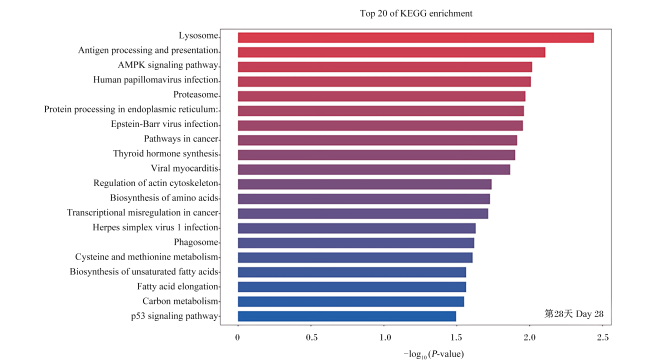
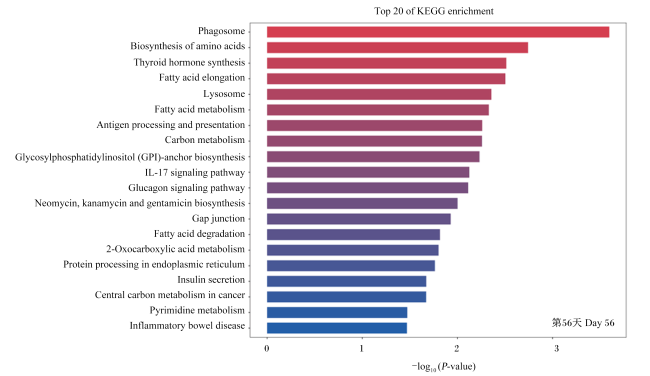
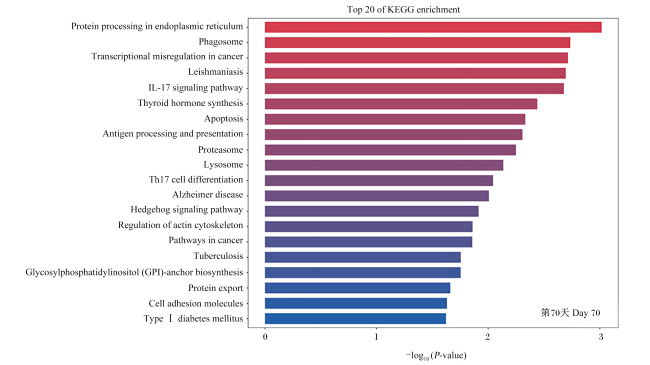
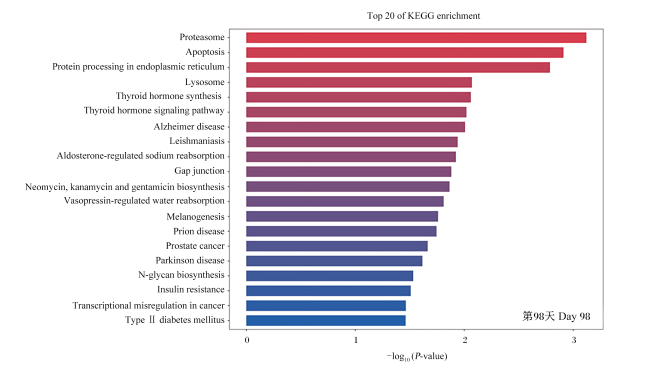
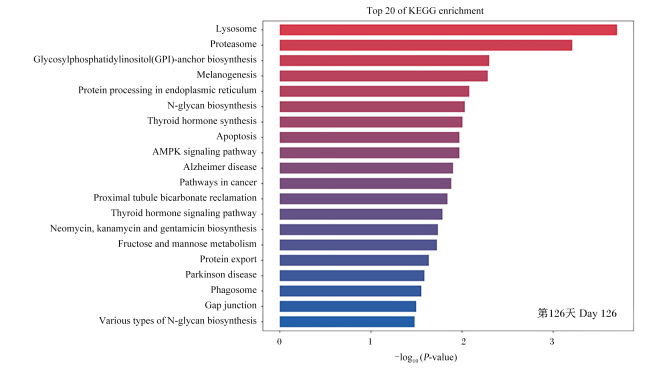
对不同妊娠时期的所有外泌体差异表达miRNA靶基因进行KEGG富集分析,结果如图11图12图13图14图15所示。不同妊娠时期对照组和感染组间差异表达miRNA的靶基因相关的KEGG富集分析结果有所不同。在第28天,2组之间的差异表达miRNA主要富集在溶酶体、抗体加工和呈递以及腺苷酸活化蛋白激酶(AMPK)信号通路上;在第56天,2组之间的差异表达miRNA主要富集在蛋白酶体、氨基酸生物合成和甲状腺激素合成上;在第70天,2组之间的差异表达miRNA主要富集在内质网中蛋白质加工、吞噬体和癌症中的转录失调上;在第98天,2组之间的差异表达miRNA主要富集在蛋白酶体、细胞凋亡以及内质网中蛋白质加工上;在第126天,2组之间的差异表达miRNA主要富集在溶酶体、蛋白酶体以及糖基磷脂酰肌醇(GPI)-锚定生物合成上。
图11 外泌体差异表达miRNA靶基因的KEGG富集分析(第28天)

Top 20 of KEGG enrichment:KEGG富集分析前20条通路;-log10(P-value):-log10(P值);Lysosome:溶酶体;Antigen processing and presentation:抗原加工提呈;AMPK signaling pathway:AMPK信号通路;Human papillomavirus infection:人类乳突病毒感染;Proteasome:蛋白酶体;Protein processing in endoplasmic reticulum:内质网中的蛋白质加工;Epstein-Barr virus infection:EB病毒感染;Pathways in cancer:癌症信号通路;Thyroid hormone synthesis:甲状腺激素合成;Viral myocarditis:病毒性心肌炎;Regulation of actin cytoskeleton:肌动蛋白细胞骨架调节;Biosynthesis of amino acids:氨基酸的生物合成;Transcriptional misregulation in cancer:癌症中的转录失调;Herpes simplex virus 1 infection:单纯疱疹病毒1型感染;Phagosome:吞噬体;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Fatty acid elongation:脂肪酸延长;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Carbon metabolism:碳代谢;p53 signaling pathway:p53信号通路。下图同 the same as below。

Fig.11 KEGG enrichment analysis of differentially expressed miRNA in exosomes (day 28)

图12 外泌体差异表达miRNA靶基因的KEGG富集分析(第56天)

Fatty acid metabolism:脂肪酸合成;Glycosylphosphatidylinositol (GPI)-anchor biosynthesis:糖基磷脂酰肌醇(GPI)锚定生物合成;IL-17 signaling pathway:白细胞介素-17信号通路;Glucagon signaling pathway:胰高血糖素信号通路;Neomycin, kanamycin and gentamicin biosynthesis:新霉素、卡那霉素和庆大霉素的生物合成;Gap junction:间隙连接;Fatty acid degradation:脂肪酸降解;2-Oxocarboxylic acid metabolism:2-氧羧酸代谢;Insulin secretion:胰岛素分泌;Central carbon metabolism in cancer:癌症的中心碳代谢;Pyrimidine metabolism:嘧啶代谢;Inflammatory bowel disease:炎症性肠病。下图同 the same as below。

Fig.12 KEGG enrichment analysis of differentially expressed miRNA in exosomes (day 56)

图13 外泌体差异表达miRNA靶基因的KEGG富集分析(第70天)

Leishmaniasis:利什曼病;Thyroid hormone signaling pathway:甲状腺激素信号通路;Apoptosis:细胞凋亡;Th17 cell differentiation:Th17细胞分化;Alzheimer disease:阿尔茨海默病;Hedgehog signaling pathway:Hedgehog信号通路;Tuberculosis:结核病;Protein export:蛋白质外排;Cell adhesion molecules:细胞黏附分子;Type Ⅰ diabetes mellitus:Ⅰ型糖尿病。下图同 the same as below。

Fig.13 KEGG enrichment analysis of differentially expressed miRNA in exosomes (day 70)

图14 外泌体差异表达miRNA靶基因的KEGG富集分析(第98天)

Aldosterone-regulated sodium reabsorption:醛固酮调节的钠重吸收;Vasopressin-regulated water reabsorption:抗利尿激素调节水的再吸收;Melanogenesis:黑素原生成;Prion disease:朊病毒疾病;Prostate cancer:前列腺癌;Parkinson disease:帕金森病;N-glycan biosynthesis:N-聚糖生物合成;Insulin resistance:胰岛素抵抗;Type Ⅱ diabetes mellitus:Ⅱ型糖尿病。下图同 the same as below。

Fig.14 KEGG enrichment analysis of differentially expressed miRNA in exosomes (day 98)

图15 外泌体差异表达miRNA靶基因的KEGG富集分析(第126天)

Proximal tubule bicarbonate reclamation:近端小管碳酸氢盐回收;Fructose and mannose metabolism:果糖和甘露糖代谢;Various types of N-glycan biosynthesis:各种类型的N-聚糖生物合成。

Fig.15 KEGG enrichment analysis of differentially expressed miRNA in exosomes (day 126)

2.6 血细胞计数测定结果

表3可知,在感染初期(妊娠第28天)至感染高峰期(妊娠第70天),感染组绵羊血液中多数免疫细胞数量较对照组绵羊增加,其中嗜酸性粒细胞和嗜碱性粒细胞数量在第28天显著增加(P<0.05),白细胞和淋巴细胞数量在第28、56和70天显著增加(P<0.05);在感染高峰期(妊娠第70天)至感染后期(第126天),感染组绵羊血液中红细胞数量和血红蛋白含量较对照组绵羊下降,其中红细胞数量在第70和126天显著下降(P<0.05),血红蛋白含量在第70、98和126天显著下降(P<0.05)。另外,绵羊血液中淋巴细胞、单核细胞、粒细胞、嗜酸性粒细胞、嗜碱性粒细胞、红细胞数量以及血红蛋白含量受到组别和时间之间交互作用的显著影响(P<0.05)。
表3 绵羊血液中血细胞计数

Table 3 Blood cell counts in sheep’s blood

项目
Items
时间
Time
组别Groups 均值
标准误
SEM
PP-value
对照
Control
感染
Infected
组别
Group
时间
Time
组别×时间
Group×time


白细胞
WBC/(×109个/L)
第28天Day 28 2.71 5.76 0.775 0.020


<0.001


0.053
第56天Day 56 5.55 8.20 0.699 0.023
第70天Day 70 9.11 12.03 0.534 0.003
第98天Day 98 8.68 9.62 1.005 0.522
第126天Day 126 8.23 7.00 0.968 0.390


淋巴细胞
LYM/(×109个/L)
第28天Day 28 1.46 3.18 0.493 0.033


<0.001


0.016
第56天Day 56 3.64 5.73 0.514 0.017
第70天Day 70 5.80 8.29 0.356 <0.001
第98天Day 98 6.55 6.21 0.792 0.769
第126天Day 126 6.91 5.80 0.781 0.340


单核细胞
MO/(×109个/L)
第28天Day 28 0.51 0.22 0.221 0.002


<0.001


<0.001
第56天Day 56 0.48 0.36 0.064 0.207
第70天Day 70 0.58 0.67 0.095 0.490
第98天Day 98 0.46 0.60 0.058 0.122
第126天Day 126 0.77 0.74 0.115 0.865


粒细胞
GRA/(×109个/L)
第28天Day 28 0.74 0.74 0.154 0.981


<0.001


0.039
第56天Day 56 1.43 2.11 0.233 0.065
第70天Day 70 2.73 3.08 0.201 0.253
第98天Day 98 1.67 2.81 0.378 0.058
第126天Day 126 0.55 0.33 0.097 0.138


嗜酸性粒细胞
ESO/(×109个/L)
第28天Day 28 0.16 0.34 0.048 0.023


<0.001


<0.001
第56天Day 56 0.04 0.04 0.004 0.920
第70天Day 70 0.05 0.07 0.003 0.002
第98天Day 98 0.04 0.05 0.008 0.310
第126天Day 126 0.43 0.27 0.051 0.046


嗜碱性粒细胞
BASO/(×109个/L)
第28天Day 28 0.09 0.19 0.028 0.034


<0.001


0.001
第56天Day 56 0.01 0.02 0.003 0.253
第70天Day 70 0.03 0.03 0.005 0.596
第98天Day 98 0.02 0.02 0.006 0.414
第126天Day 126 0.04 0.03 0.004 0.337


红细胞
RBC/(×1012个/L)
第28天Day 28 10.52 10.97 0.311 0.332


<0.001


0.022
第56天Day 56 9.71 9.68 0.304 0.960
第70天Day 70 9.88 8.29 0.454 0.033
第98天Day 98 10.94 9.81 0.520 0.154
第126天Day 126 3.97 2.17 0.328 0.003


血红蛋白
HGB/(g/L)
第28天Day 28 134.97 126.04 6.825 0.377


<0.001


<0.001
第56天Day 56 125.76 121.51 3.361 0.393
第70天Day 70 123.83 108.46 4.240 0.028
第98天Day 98 139.33 116.44 6.632 0.035
第126天Day 126 213.93 136.30 13.672 0.003


血小板
PLT/(×109个/L)
第28天Day 28 2 024.39 1 426.14 428.375 0.347


<0.001


0.301
第56天Day 56 302.44 353.20 42.301 0.416
第70天Day 70 240.50 311.51 26.672 0.089
第98天Day 98 325.81 361.96 23.861 0.309
第126天Day 126 653.07 823.85 62.031 0.080

2.7 外泌体差异表达miRNA与血细胞的相关性分析结果

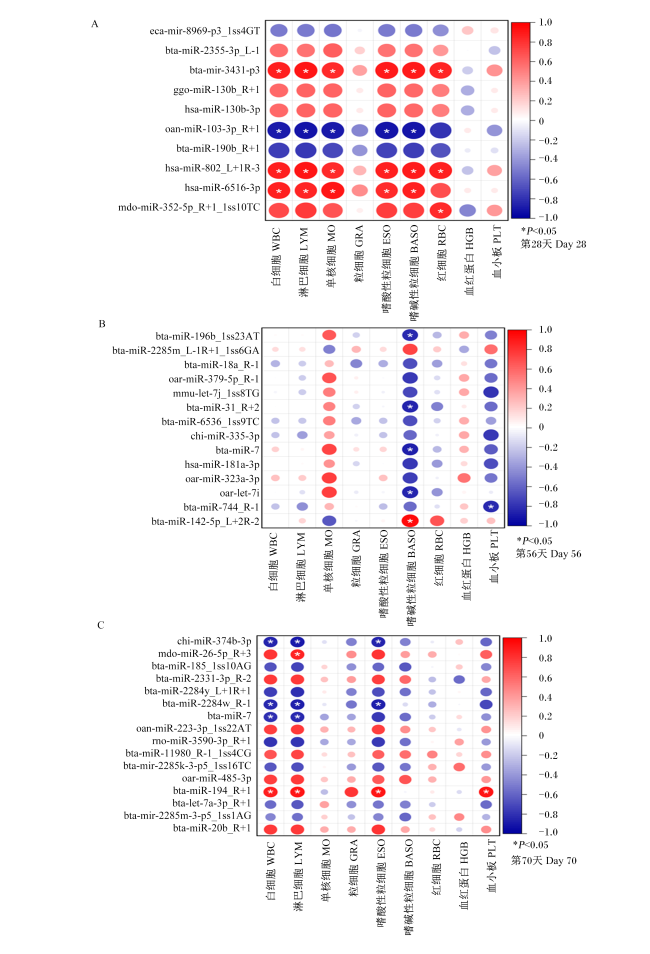
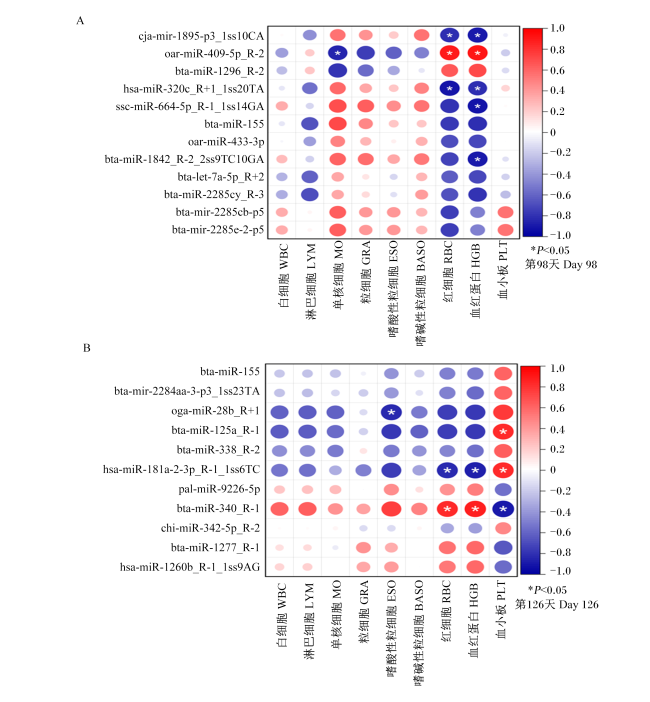
将妊娠期母羊外泌体差异表达miRNA与血细胞进行相关性分析,结果如图16图17所示。在第28天,外泌体差异表达miRNA的表达量主要与血液中的免疫细胞(包括白细胞、淋巴细胞、单核细胞、嗜酸性粒细胞和嗜碱性粒细胞)数量相关,其中bta-mir-3431-p3、hsa-miR-802_L+1R-3和hsa-miR-6516-3p的表达量与以上指标呈显著正相关(P<0.05),而oan-miR-103-3p_R+1的表达量与以上指标呈显著负相关(P<0.05);同时,bta-mir-3431-p3、hsa-miR-802_L+1R-3和mdo-miR-352-5p_R+1_1ss10TC的表达量与血液中红细胞数量呈显著正相关(P<0.05)。在第56天,bta-miR-196b_1ss23AT、bta-miR-31_R+2、bta-miR-7和oar-let-7i的表达量与血液中嗜碱性粒细胞数量呈显著负相关(P<0.05);另外,bta-miR-744_R-1的表达量与血液中血小板数量呈显著负相关(P<0.05)。在第70天,外泌体差异表达miRNA也主要与血液中免疫细胞数量相关,其中chi-miR-374b-3p、bta-miR-2284w_R-1和bta-miR-7的表达量与血液中白细胞、淋巴细胞和嗜酸性粒细胞数量呈显著负相关(P<0.05),而bta-miR-194_R+1的表达量与上述三者呈显著负相关(P<0.05);同时,bta-miR-194_R+1的表达量与血液中血小板数量呈显著正相关(P<0.05)。在第98天,差异表达miRNA的表达量主要与血液中红细胞数量和血红蛋白含量相关,其中cja-mir-1895-p3_1ss10CA、oar-miR-409-5p_R-2和hsa-miR-320c_R+1_1ss20TA的表达量与血液中红细胞数量呈显著相关(P<0.05),而cja-mir-1895-p3_1ss10CA、oar-miR-409-5p_R-2、hsa-miR-320c_R+1_1ss20TA、ssc-miR-664-5p_R-1_1ss14GA和bta-miR-1842_R-2_2ss9TC10GA的表达量与血液中血红蛋白含量呈显著相关(P<0.05),并且oar-miR-409-5p_R-2的表达量中与血液中红细胞数量和血红蛋白含量是呈正相关,其他miRNA的表达量与红细胞数量和血红蛋白含量均是呈负相关。在第126天,差异表达miRNA的表达量与血液中红细胞数量、血红蛋白含量以及血小板数量存在相关性,其中hsa-miR-181a-2-3p_R-1_1ss6TC的表达量与血液中红细胞数量和血红蛋白含量呈显著负相关(P<0.05),与血小板数量呈显著正相关(P<0.05),而bta-miR-340_R-1正好与hsa-miR-181a-2-3p_R-1_1ss6TC相反,其表达量与血液中红细胞数量和血红蛋白含量呈显著正相关(P<0.05),而与血小板数量呈显著负相关(P<0.05)。
图16 第28(A)、56(B)和70天(C)时外泌体差异表达miRNA与血细胞的相关性分析

Fig.16 Correlation analysis of differentially expressed miRNA in exosomes and blood cells at days 28 (A), 56 (B) and 70 (C)

图17 第98(A)和126天(B)时外泌体差异表达miRNA与血细胞的相关性分析

Fig.17 Correlation analysis of differentially expressed miRNA in exosomes and blood cells at days 98 (A) and 126 (B)

3 讨论

在本研究结果中,相对于第56和98天,对照组和感染组绵羊之间在第28、70和126天具有更多的血浆外泌体差异表达miRNA;并且,以第70天为分界线,在绵羊妊娠前期时,捻转血矛线虫感染导致更多血浆外泌体miRNA表达量上调,而在绵羊妊娠后期和围产期,捻转血矛线虫感染导致更多血浆外泌体miRNA表达量下调。绵羊血浆外泌体miRNA在不同妊娠时期显示出不同的表达规律可能同时受到母羊妊娠状态和胃肠道蠕虫发展的双重影响。
在妊娠期,特别是妊娠早期,维持绵羊自身的免疫系统稳态相当重要[27]。在本研究中,绵羊妊娠早期正好是捻转血矛线虫感染早期。与感染中后期相比,捻转血矛线虫感染早期会引起更加强烈的免疫反应,因为它会打破宿主动物原有的免疫系统稳态,为自身发展和繁殖建立新的免疫机制[28]。同时,虽然妊娠早期动物对饲粮营养素的需求没有很高的要求[29],但捻转血矛线虫感染导致的一系列免疫反应以及捻转血矛线虫本身均需要消耗宿主动物大量营养[5,30-31]。因此,受到捻转血矛线虫感染的绵羊在妊娠早期时发现更多血浆外泌体miRNA表达量上调是有迹可循的。KEGG富集分析显示,这些在绵羊妊娠早期显著上调的外泌体miRNA分别在溶酶体、抗体加工和呈递、AMPK信号通路以及蛋白酶体、氨基酸生物合成和甲状腺激素合成等方面发挥重要调控作用。其中,AMPK信号通路在感知细胞能量状态过程中发挥关键作用[32],而氨基酸生物合成通路在维持细胞内氨基酸平衡、支持机体蛋白质合成以及信号传递等生命活动中发挥着不可或缺的作用[33-34]。蛋白质和能量的平衡有利于增强宿主动物对寄生虫的抵抗力和恢复力[30-31,35],且有利于宿主免疫功能的完善[36]。本团队前期研究也表明,捻转血矛线虫感染会消耗宿主动物的营养用于胃肠道损伤的修复以及免疫反应等方面[6,37-38],且相较于非妊娠期绵羊,妊娠期绵羊自身需要更高的营养需求[7,39],可以推测在妊娠前期母羊血浆外泌体miRNA(包括eca-miR-8969-p3_1ss4GT、oan-miR-103-3p-R+1、bta-miR-3431-p3、has-miR-130b-3p、ggo-miR-130b_R+1和bta-miR-2355-3p_L-1等)的变化可能在阻碍母羊机体中捻转血矛线虫的定植和维持自身免疫稳态过程中发挥重要作用。
在妊娠中期,即妊娠第70天,对照组和感染组绵羊之间血浆外泌体差异表达miRNA最多,这可能是由于此时正好是捻转血矛线虫感染最严重的时期。在这一时期,KEGG富集分析结果显示对照组和感染组之间的差异表达miRNA主要富集在内质网中的蛋白质加工和吞噬体等功能上。内质网中的蛋白质加工功能已被证明与妊娠过程中的多种疾病相关,如反复流产、子宫炎症等[40-41]。本团队之前的研究也表明捻转血矛线虫感染增加了妊娠母羊胎盘的炎症[10]。吞噬体主要介导病原体清除、抗原提呈及细胞凋亡碎片处理等生物过程的发生,可以与内质网中的蛋白质加工过程协同维持宿主机体稳态[42]。这些生物过程主要受到绵羊血浆外泌体中bta-miR-185_1ss10AG、bta-miR-2284y_L+1R+1、bta-miR-7、bta-miR-2284W_R-1、oan-miR-223-3p_1ss22AT、bta-miR-11980_R-1_1ss4CG、bta-miR-2331-3p_R-2和mdo-miR-26-5p_R+3等miRNA的调控。其中,bta-miR-7似乎可能成为妊娠母羊捻转血矛线虫感染高峰期的潜在生物标志物,因为在第56和70天时2组之间bta-miR-7的表达量均存在差异显著,这2个时期正好是绵羊粪便中虫卵数较多的时期,且bta-miR-7在这2个时期中与免疫细胞数量呈负相关,说明bta-miR-7可能参与了捻转血矛线虫感染宿主动物的免疫反应生物过程。
另外,在感染高峰期之后,更多的外泌体差异表达miRNA与绵羊血液中红细胞数量、血红蛋白含量以及血小板数量存在显著相关,这也许是在捻转血矛线虫感染绵羊在感染高峰期时虫体吸食了宿主大量血液,长期导致宿主动物蛋白质和微量元素缺乏[31],短期时间内无法恢复正常造血功能,引起宿主动物慢性失血。目前的研究发现,捻转血矛线虫感染主要导致母羊感染高峰期之后,其cja-mir-1895-p3_1ss10CA、oar-miR-408-5p_R-2、hsa-miR-320c_R+1_1ss20TA、ssc-miR-664-5p_R-1_1ss14GA、bta-miR-1842_R-2_2ss9TC10GA、hsa-miR-181a-2-3p_R-1_1ss6TC和bta-miR-340_R-1等外泌体miRNA的表达量与血液中血红蛋白含量、血细胞数量以及血小板数量具有显著相关性,这为未来外泌体miRNA作为检测动物捻转血矛线虫感染的潜在生物标志物和疫苗治疗靶点提供了理论基础,有助于为寄生虫病的治疗提供新的参考依据,并为建立妊娠诊断、着床检测的新手段提供参考。

4 结论

捻转血矛线虫感染导致妊娠母羊血浆外泌体中miRNA表达规律改变;差异表达miRNA靶基因的KEGG富集分析结合差异表达miRNA与血细胞的相关性分析显示,这种改变在绵羊感染初期至感染高峰期主要富集在与宿主免疫应答相关的信号通路上,而在感染后期主要与红细胞的血红蛋白产生以及血小板功能相关。这些结果提示,母羊血浆外泌体miRNA可能参与捻转血矛线虫感染引发的免疫应答的调节和血红蛋白的产生等生物过程。
[1]
WANG C Q, LI F F, ZHANG Z Z, et al. Recent research progress in China on Haemonchus contortus[J]. Frontiers in Microbiology, 2017,8:1509.

[2]
李永光, 林涛, 盖文燕, 等. 小反刍动物捻转血矛线虫病疫苗防控研究进展[J/OL]. 中国草食动物科学, 2024:1-10(2025-01-16)[2025-04-01]. http://kns.cnki.net/kcms/detail/62.1206.Q.20250116.1417.002.html.

Research progress on vaccine prevention and control of haemonchosis in small ruminants[J/OL]. Chinese Herbivore Science, 2024, 1-10,2024:1-10(2025-01-16)[2025-04-01]. http://kns.cnki.net/kcms/detail/62.1206.Q.20250116.1417.002.html. (in Chinese)

[3]
CHARLIER J, RINALDI L, MUSELLA V, et al. Initial assessment of the economic burden of major parasitic helminth infections to the ruminant livestock industry in Europe[J]. Preventive Veterinary Medicine, 2020,182:105103.

[4]
CHAUDHRY U, REDMAN E M, KAPLAN R, et al. Contrasting patterns of isotype-1 β-tubulin allelic diversity in Haemonchus contortus and Haemonchus placei in the southern USA are consistent with a model of localised emergence of benzimidazole resistance[J]. Veterinary Parasitology, 2020,286:109240.

[5]
HOSTE H, TORRES-ACOSTA J F J, QUIJADA J, et al. Interactions between nutrition and infections with Haemonchus contortus and related gastrointestinal nematodes in small ruminants[J]. Advances in Parasitology, 2016,93:239-351.

[6]
XIANG H, FANG Y, TAN Z L, et al. Haemonchus contortus infection alters gastrointestinal microbial community composition,protein digestion and amino acid allocations in lambs[J]. Frontiers in Microbiology, 2021,12:797746.

[7]
VALDERRÁBANO J, URIARTE J. Effect of nutrition in early pregnancy on the periparturient relaxation of immunity to gastro-intestinal parasitism in prolific ewes[J]. Animal Science, 2003, 76(3):481-489.

DOI

[8]
HOLMES P H. Interactions between parasites and animal nutrition:the veterinary consequences[J]. Proceedings of the Nutrition Society, 1993, 52(1):113-120.

DOI

[9]
NNADI P A, KAMALU T N, ONAH D N. The effect of dietary protein on the productivity of West African Dwarf (WAD) goats infected with Haemonchus contortus[J]. Veterinary Parasitology, 2009, 161(3/4):232-238.

DOI

[10]
LI X, XIANG H, LIANG R, et al. Tannin alleviated reproductive dysfunction in pregnant ewes infected with Haemonchus contortus[J]. Frontiers in Veterinary Science, 2025,12:1531233.

[11]
VALDERRÁBANO J, GOMEZ-RINCÓN C, URIARTE J. Effect of nutritional status and fat reserves on the periparturient immune response to Haemonchus contortus infection in sheep[J]. Veterinary Parasitology, 2006, 141(1/2):122-131.

DOI

[12]
PEGTEL D M, GOULD S J. Exosomes[J]. Annual Review of Biochemistry, 2019,88:487-514.

[13]
ISAAC R, REIS F C G, YING W, et al. Exosomes as mediators of intercellular crosstalk in metabolism[J]. Cell Metabolism, 2021, 33(9):1744-1762.

DOI PMID

[14]
YÁÑEZ-MÓ M, SILJANDER P R M, ANDREU Z, et al. Biological properties of extracellular vesicles and their physiological functions[J]. Journal of Extracellular Vesicles, 2015,4:27066.

[15]
NAKAMURA K, KUSAMA K, BAI R L, et al. Induction of IFNT-stimulated genes by conceptus-derived exosomes during the attachment period[J]. PLoS One, 2016, 11(6):e0158278.

DOI

[16]
KLISCH K, SCHRANER E M. Intraluminal vesicles of binucleate trophoblast cell granules are a possible source of placental exosomes in ruminants[J]. Placenta, 2020,90:58-61.

[17]
CLEYS E R, HALLERAN J L, MCWHORTER E, et al. Identification of microRNAs in exosomes isolated from serum and umbilical cord blood,as well as placentomes of gestational day 90 pregnant sheep[J]. Molecular Reproduction and Development, 2014, 81(11):983-993.

DOI

[18]
BURNS G, BROOKS K, WILDUNG M, et al. Extracellular vesicles in luminal fluid of the ovine uterus[J]. PLoS One, 2014, 9(3):e90913.

DOI

[19]
高语馨, 刘青, 陈继兰, 等. miRNAs介导寄生虫和宿主互作机制的研究进展[J]. 畜牧兽医学报, 2024, 55(9):3812-3823.

DOI

GAO Y X, LIU Q, CHEN J L, et al. Research advances in the mechanism of parasite-host interaction mediated by miRNAs[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(9):3812-3823. (in Chinese)

DOI

[20]
谢欣然. 捻转血矛线虫4种外泌体蛋白功能研究[D]. 硕士学位论文. 南京: 南京农业大学, 2022.

XIE X R. Function studies of four exosomal proteins from Haemonchus contortus[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2022. (in Chinese)

[21]
ZOU Y, MENG J X, WEI X Y, et al. CircRNA and miRNA expression analysis in livers of mice with Toxoplasma gondii infection[J]. Frontiers in Cellular and Infection Microbiology, 2022,12:1037586.

[22]
HAKIMI M A, CANNELLA D. Apicomplexan parasites and subversion of the host cell microRNA pathway[J]. Trends in Parasitology, 2011, 27(11):481-486.

DOI

[23]
赵熠群, 陈国, 滑志民, 等. 外泌体调控寄生虫感染与免疫的研究进展[J]. 畜牧与兽医, 2019, 51(12):125-129.

ZHAO Y Q, CHEN G, HUA Z M, et al. Progressin research on and prospect for exosome regulation in parasitic infection and immunity[J]. Animal Husbandry & Veterinary Medicine, 2019, 51(12):125-129. (in Chinese)

[24]
National Research Council. Nutrient requirements of small ruminants,sheep,goats,cervids,and new world camelids[S]. Washington,D. C.:National Academy Press, 2007.

[25]
ZHANG Y, BI J Y, HUANG J Y, et al. Exosome:a review of its classification,isolation techniques,storage,diagnostic and targeted therapy applications[J]. International Journal of Nanomedicine, 2020,15:6917-6934.

[26]
CAO M, ZHAO Y, CHEN T, et al. Adipose mesenchymal stem cell-derived exosomal microRNAs ameliorate polycystic ovary syndrome by protecting against metabolic disturbances[J]. Biomaterials, 2022,288:121739.

[27]
OTT T L, GIFFORD C A. Effects of early conceptus signals on circulating immune cells:lessons from domestic ruminants[J]. American Journal of Reproductive Immunology, 2010, 64(4):245-254.

DOI

[28]
CORTÉS A, MUÑOZ-ANTOLI C, ESTEBAN J G, et al. Th2 and Th1 responses:clear and hidden sides of immunity against intestinal helminths[J]. Trends in Parasitology, 2017, 33(9):678-693.

DOI

[29]
CESAR HENRIQUE ESPÍRITO CANDAL P, LUIZA DE ÁVILA S, MONTEIRO A, et al. Food restriction in ewes during different pregnancy periods affects milk production and lamb growth[J]. Journal of Animal Science, 2016, 94(5)815.

[30]
COOP R L, KYRIAZAKIS I. Nutrition-parasite interaction[J]. Veterinary Parasitology, 1999, 84(3/4):187-204.

DOI

[31]
COOP R L, HOLMES P H. Nutrition and parasite interaction[J]. International Journal for Parasitology, 1996, 26(8/9):951-962.

DOI

[32]
赵金波, 刘盈序, 黄合特, 等. AMPK/mTOR信号通路交叉调控在动物细胞营养代谢的作用[J]. 中国饲料, 2023(17):1-6.

ZHAO J B, LIU Y X, HUANG H T, et al. Cross-talking of mTOR and AMPK signaling pathway in nutrient metabolism of animal cells[J]. China Feed, 2023(17):1-6. (in Chinese)

[33]
HERRING C M, BAZER F W, JOHNSON G A, et al. Impacts of maternal dietary protein intake on fetal survival,growth,and development[J]. Experimental Biology and Medicine, 2018, 243(6):525-533.

DOI

[34]
DUAN Y H, LI F N, LI Y H, et al. The role of leucine and its metabolites in protein and energy metabolism[J]. Amino Acids, 2016, 48(1):41-51.

DOI PMID

[35]
CEÏ W, SALAH N, ALEXANDRE G, et al. Impact of energy and protein on the gastro-intestinal parasitism of small ruminants:a Meta-analysis[J]. Livestock Science, 2018,212:34-44.

[36]
DOUHARD F, MORENO-ROMIEUX C, DOESCHL-WILSON A B. Inferring the energy cost of resistance to parasitic infection and its link to a trade-off[J]. BMC Ecology and Evolution, 2025, 25(1):14.

DOI

[37]
XIANG H, ZHAO B, FANG Y, et al. Haemonchus contortus alters distribution and utilization of protein and amino acids in different tissues of host sheep[J]. Veterinary Parasitology, 2024,331:110289.

[38]
ZHONG R Z, SUN H X, LIU H W, et al. Effects of tannic acid on Haemonchus contortus larvae viability and immune responses of sheep white blood cells in vitro[J]. Parasite Immunology, 2014, 36(2):100-106.

DOI

[39]
MACARTHUR F A, KAHN L P, WINDON R G. Regulating maternal production of twin-bearing Merino ewes through fat score and prepartum supplementation when infected with Haemonchus contortus[J]. Livestock Science, 2013, 157(2/3):442-451.

DOI

[40]
JIANG Y, YOU Q X, MU F X, et al. Endoplasmic reticulum stress and unfolded protein response play roles in recurrent pregnancy loss:a bioinformatics study[J]. Journal of Reproductive Immunology, 2025,168:104446.

[41]
FERNÁNDEZ L, KONG C S, ALKHOURY M, et al. The endoplasmic reticulum protein HSPA5/BiP is essential for decidual transformation of human endometrial stromal cells[J]. Scientific Reports, 2024, 14(1):25992.

DOI PMID

[42]
SONTYANA B, SHRIVASTAVA R, BATTU S, et al. Phagosome maturation and modulation of macrophage effector function by intracellular pathogens:target for therapeutics[J]. Future Microbiology, 2022,17:59-76.

文章导航

/