研究论文

阿魏酸通过抑制铁死亡提高羊原代肝细胞抗氧化功能

  • 陈佳瑜 , 1, 2 ,
  • 李宏超 1, 2 ,
  • 王如心 1, 2 ,
  • 尹娜 1, 2 ,
  • 牛雅萱 1, 2 ,
  • 王园 , 1, 2, * ,
  • 王文文 1, 2
展开
  • 1 内蒙古农业大学动物科学学院,呼和浩特 010018
  • 2 智慧畜牧自治区高等学校重点实验室,内蒙古自治区高校智慧畜牧集成攻关大平台,内蒙古自治区草食家畜饲料技术研究中心,国家乳业技术创新中心奶牛繁育与养殖技术研究中心,呼和浩特 010018
* 王 园,教授,博士生导师,E-mail:

陈佳瑜(2002—),女,河北保定人,硕士研究生,从事生物饲料的创制与应用研究。E-mail:

Office editor: 陈燕

收稿日期: 2025-07-30

  网络出版日期: 2026-02-12

基金资助

国家自然科学基金项目(32260840)

内蒙古自治区教育厅一流学科科研专项(YLXKZX-NND-007)

Ferulic Acid Enhances Antioxidant Function in Primary Sheep Hepatocytes via Suppression of Ferroptosis

  • CHEN Jiayu , 1, 2 ,
  • LI Hongchao 1, 2 ,
  • WANG Ruxin 1, 2 ,
  • YIN Na 1, 2 ,
  • NIU Yaxuan 1, 2 ,
  • WANG Yuan , 1, 2, * ,
  • WANG Wenwen 1, 2
Expand
  • 1 College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
  • 2 National Center of Technology Innovation for Dairy-Breeding and Production Research Center, Inner Mongolia Herbivorous Livestock Feed Engineering Technology Research Center, Integrated Research Platform of Smart Animal Husbandry at Universities of Inner Mongolia Autonomous Region, Key Laboratory of Smart Animal Husbandry at Universities of Inner Mongolia Automomous Region, Hohhot 010018, China
* professor, E-mail:

Received date: 2025-07-30

  Online published: 2026-02-12

摘要

本试验旨在探究添加不同浓度的阿魏酸(FA)对羊原代肝细胞抗氧化功能的影响,并从磷脂酰肌醇-3-激酶(PI3K)/蛋白激酶B(AKT)信号通路介导铁死亡发生的角度解析其作用机制。本试验设置5个组,分别为对照组、FA250组、FA500组、FA750组和FA1000组,分别使用0、250、500、750和1 000 μg/mL的FA处理羊原代肝细胞24 h,每组6个重复。结果表明:1)与对照组相比,FA对细胞丙氨酸氨基转移酶(ALT)和天门冬氨酸氨基转移酶(AST)活性无显著影响(P>0.05)。2)与对照组相比,FA均能显著降低细胞活性氧(ROS)水平和丙二醛(MDA)含量(P<0.05),显著提高超氧化物歧化酶(SOD)活性和还原型谷胱甘肽(GSH)含量(P<0.05);500、750、1 000 μg/mL的FA均能显著提高细胞总抗氧化能力(T-AOC)和谷胱甘肽还原酶(GR)活性(P<0.05);500、1 000 μg/mL的FA均能显著提高细胞中谷胱甘肽过氧化物酶(GSH-Px)活性(P<0.05)。3)与对照组相比,FA显著降低总铁含量(P<0.05),并且,随着FA浓度的增大,羊原代肝细胞中总铁含量逐渐下降;500、750、1 000 μg/mL的FA均可显著降低铁蛋白重链1(FTH1)mRNA相对表达量(P<0.05);250、500、750 μg/mL的FA均可显著降低转铁蛋白受体1(TFR1)、六跨膜上皮抗原3(STEAP3)、溶血磷脂酰胆碱酰基转移酶3(LPCAT3)和花生四烯酸15-脂氧合酶(ALOX15)mRNA相对表达量(P<0.05),显著提高谷胱甘肽过氧化物酶4(GPX4)和溶质载体家族3成员2(SLC3A2)mRNA相对表达量(P<0.05),但1 000 μg/mL的FA可显著提高TFR1、STEAP3、LPCAT3和ALOX15 mRNA相对表达量(P<0.05)。4)与对照组相比,750、1 000 μg/mL的FA可显著提高磷酸化蛋白激酶B(P-AKT)与AKT蛋白相对表达量比值(P<0.05),FA可显著降低Kelch样环氧氯丙烷相关蛋白1(Keap1)蛋白相对表达量(P<0.05)。综上所述,FA在羊原代肝细胞中通过激活PI3K/AKT信号通路,调控下游的铁代谢、GPX4表达、脂质过氧化水平等铁死亡通路,从而抑制了细胞水平的铁死亡进程,从而增强肝细胞的抗氧化应激能力;且在本试验条件下,750 μg/mL的FA效果最为显著。

本文引用格式

陈佳瑜 , 李宏超 , 王如心 , 尹娜 , 牛雅萱 , 王园 , 王文文 . 阿魏酸通过抑制铁死亡提高羊原代肝细胞抗氧化功能[J]. 动物营养学报, 2026 , 38(2) : 1343 -1354 . DOI: 10.12418/CJAN2026.107

Abstract

This experiment aimed to investigate the effects of supplementing different concentrations of ferulic acid (FA) on the antioxidant function of primary sheep hepatocytes and to elucidate the mechanism of action from the perspective of the phosphatidylinositol-3-kinase (PI3K)/protein kinase B (AKT) signaling pathway mediating ferroptosis. Five groups were established: a control group, FA250 group, FA500 group, FA750 group, and FA1000 group, treated with 0, 250, 500, 750, and 1 000 μg/mL FA for 24 hours, respectively, with six replicates per group. The results showed as follows: 1) compared with the control group, FA had no significant effects on the activities of aspartate aminotransferase (AST) and alanine aminotransferase (ALT) in the cells (P>0.05). 2) Compared with the control group, FA significantly reduced the cellular reactive oxygen species (ROS) level and malondialdehyde (MDA) content (P<0.05), while significantly increased the activity of superoxide dismutase (SOD) and the content of reduced glutathione (GSH) (P<0.05); FA at concentrations of 500, 750, and 1 000 μg/mL significantly enhanced the total antioxidant capacity (T-AOC) and glutathione reductase (GR) activity (P<0.05); FA at 500 and 1 000 μg/mL significantly increased the glutathione peroxidase (GSH-Px) activity (P<0.05). 3) Compared with the control group, FA significantly reduced the total iron content in primary sheep hepatocytes; as the FA concentration increased, the total iron gradually decreased (P<0.05); FA at 500, 750, and 1 000 μg/mL significantly down-regulated the mRNA relative expression level of the ferritin heavy chain 1 (FTH1) (P<0.05); FA at 250, 500, and 750 μg/mL significantly down-regulated the mRNA relative expression levels of transferrin receptor 1 (TFR1), six-transmembrane epithelial antigen of prostate 3 (STEAP3), lysophosphatidylcholine acyltransferase 3 (LPCAT3), and arachidonate 15-lipoxygenase (ALOX15) (P<0.05), while significantly up-regulating the mRNA relative expression levels of glutathione peroxidase 4 (GPX4) and solute carrier family 3 member 2 (SLC3A2) (P<0.05); notably, 1 000 μg/mL FA significantly up-regulated the mRNA relative expression levels of TFR1, STEAP3, LPCAT3, and ALOX15 (P<0.05). 4) Compared with the control group, FA at 750 and 1 000 μg/mL significantly increased the ratio of protein relative expression levels of phosphorylated AKT (p-AKT) to AKT (P<0.05), while FA significantly down-regulated the protein relative expression level of Kelch-like ECH-associated protein 1 (Keap1) (P<0.05). In conclusion, in primary sheep hepatocytes, FA inhibits ferroptosis and enhances the antioxidative stress capacity of the hepatocytes by activating the PI3K/AKT signaling pathway, which subsequently regulates downstream ferroptosis-related pathways including iron metabolism, GPX4 expression, and lipid peroxidation levels. Under the conditions of this experiment, FA at a concentration of 750 μg/mL demonstrated the most significant effects.

在肉羊养殖生产中,为了满足日益增长的羊肉需求并缩短育肥时间,通常采用高精料育肥模式。长期饲喂高精料可能会对羔羊的瘤胃功能产生不利影响,导致异常代谢物的大量产生,这些异常代谢物通常会导致肝脏损伤[1-2]。肝脏损伤过程中常伴随氧化应激、铁代谢失衡和脂质过氧化等现象,且肝脏损伤是诱发铁死亡因素之一[3]。铁死亡是一种铁依赖性、脂质过氧化驱动的程序性细胞死亡形式,铁死亡与活性氧(reactive oxygen species,ROS)积累、还原型谷胱甘肽(reduced glutathione,GSH)耗竭及脂质过氧化产物的异常升高密切相关[4]
有研究表明,中草药提取物可以降低肝细胞癌细胞中的ROS和丙二醛(malondialdehyde,MDA)含量、提高铁蛋白和谷胱甘肽过氧化物酶4(glutathione peroxidase 4,GPX4)的蛋白表达量,从而有效逆转或缓解细胞的铁死亡进程[5]。阿魏酸(ferulic acid,FA)是传统中草药中的活性成分,具有抗氧化、抗炎和调节脂质代谢等多种生理功能[6-7]。研究发现,饲粮添加FA可以提高仔猪机体的抗氧化能力,调节脂质代谢和线粒体功能,缓解氧化应激造成的肝脏损伤,促进仔猪生长[8]。在模式动物上,FA可以激活磷脂酰肌醇-3-激酶(phosphatidylinositol-3-kinase,PI3K)/蛋白激酶B(protein kinase B,AKT)信号通路,抑制酒精性肝病大鼠发生氧化应激[9]。然而,目前关于FA抗氧化功能的研究多集中于单胃动物,其在反刍动物,特别是针对高精料诱导的肝细胞铁死亡中的作用与机制尚不清楚。
因此,本试验以羊原代肝细胞为研究对象,探究不同浓度的FA对羊原代肝细胞抗氧化功能的影响,并从PI3K/AKT信号通路介导的铁死亡发生角度解析FA调控肝细胞抗氧化功能的机制,以期为FA应用于缓解高精料育肥模式下肉羊肝脏损伤提供理论依据。

1 材料与方法

1.1 伦理声明

动物试验过程严格遵守内蒙古农业大学实验动物福利与伦理委员会的规定(批准编号:NND2022037)。

1.2 试验材料

1.2.1 试验细胞

本试验选取检疫合格绵羊羔羊的肝脏组织用于分离羊原代肝细胞。参考陈博雯[10]的方法消化、分离细胞,得到羊原代肝细胞并进行后续试验。

1.2.2 孵育液的配制

贴壁培养基:含10%胎牛血清、1 μmol/L胰岛素、1 μmol/L地塞米松、10 μg/mL维生素C、100 U/mL青霉素和100 μg/mL链霉素的RPMI1640基础培养基;生长培养基:含10%胎牛血清、100 U/mL青霉素和100 μg/mL链霉素的RPMI1640基础培养基;FA溶液:配制10 mg/mL FA溶液当作母液保留备用,试验时用磷酸盐缓冲液(PBS)稀释成浓度梯度为250、500、750、1 000 μg/mL的FA溶液。

1.3 试验设计

本试验设置5个组,分别为对照组、FA250组、FA500组、FA750组和FA1000组,分别使用0、250、500、750和1 000 μg/mL的FA溶液处理羊原代肝细胞,每个组6个重复。首先将羊原代肝细胞的密度调整为1×106个/mL,接种于6孔板中,于37 ℃、5%CO2培养箱中培养12 h,然后按照组别用不同浓度的FA溶液处理24 h;结束以后,用PBS清洗细胞3次,收集细胞及上清,-80 ℃保存待测。

1.4 检测指标的测定

1.4.1 过碘酸雪夫(PAS)糖原染色鉴定

将培养好的羊原代肝细胞清洗后置于糖原PAS染色液试剂盒(北京索莱宝科技有限公司)的PAS固定液中,固定15 min,蒸馏水充分冲洗后,室温下加入氧化剂,氧化20 min,再次蒸馏水冲洗;随后,将细胞避光浸泡于雪夫试剂20 min,用试剂盒中的亚硫酸钠溶液滴洗细胞2次,每次2 min,再用蒸馏水冲洗5 min,加入苏木精染液复染细胞核1 min后,蒸馏水冲洗去除残留试剂;最后,滴加中性树胶封片,并在光学显微镜下观察。

1.4.2 生化指标测定

采用南京建成生物工程研究所的试剂盒测定肝功能指标,包括丙氨酸氨基转移酶(alanine aminotransferase,ALT)和天门冬氨酸氨基转移酶(aspartate aminotransferase,AST)的活性。采用南京建成生物工程研究所的试剂盒测定肝细胞抗氧化功能指标,包括总抗氧化能力(total antioxidant capacity,T-AOC),ROS水平,MDA、GSH、氧化型谷胱甘肽(oxidized glutathione,GSSG)和总铁的含量以及谷胱甘肽还原酶(glutathione reductase,GR)、超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)的活性。

1.4.3 铁死亡相关通路基因mRNA表达检测[逆转录-实时荧光定量PCR(RT-qPCR)]

采用SYBR Green法(罗氏诊断公司)检测细胞中铁死亡相关基因的mRNA相对表达量。首先,参考陈博雯[10]的方法进行细胞mRNA提取。将提取的mRNA逆转录合成互补DNA(cDNA)。设无逆转录酶的阴性对照,以验证反应特异性。所用的引物序列见表1。反应体系总体积为20 μL,包含10 μL SYBR Green荧光染料、0.5 μL正/反向引物(10 μmol/L)、1 μL cDNA模板和8 μL无菌无酶水,检测的目标基因包括铁蛋白重链1(ferritin heavy chain 1,FTH1)、转铁蛋白受体1(transferrin receptor 1,TFR1)、六跨膜上皮抗原3(six-transmembrane epithelial antigen of prostate 3,STEAP3)、GPX4、溶质载体家族3成员2(solute carrier family 3 member 2,SLC3A2)、花生四烯酸15-脂氧合酶(arachidonate 15-lipoxygenase,ALOX15)、溶血磷脂酰胆碱酰基转移酶3(lysophosphatidylcholine acyltransferase 3,LPCAT3)。以β-肌动蛋白(β-actin)为内参基因,以2-ΔΔCt法计算各目标基因的mRNA相对表达量。
表1 引物序列

Table 1 Primer sequences

基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
铁蛋白重链1
FTH1
F:CTCTACGCCTCCTATGTC
R:CACGGTCTGGTTTCTTG
190
转铁蛋白受体1
TFR1
F:TTGGATTTATGATTGGCTAC
R:GCTGCTCTTCGGGTTCG
126
六跨膜上皮抗原3
STEAP3
F:TGGCTGGGCTGTTTCCT
R:TGCTCCTGCTCTGTGGG
175
谷胱甘肽过氧化物酶4
GPX4
F:GAGTTCGCTGCTGGCTAT
R:CTTGGGCTGGACTTTCAT
105
溶质载体家族3成员2
SLC3A2
F:GAACATCACTAAGAGCGTCAG
R:ACAGGTCCTTGGTGGGT
104
花生四烯酸15-脂氧合酶
ALOX15
F:CAAGGCTGTGCTGAAGAA
R:TGGTTGGTGGAAGAGGG
176
溶血磷脂酰胆碱酰基转移酶3
LPCAT3
F:CGCTGGCTTCTCCTACT
R:ATGGTGCTGTTTGGTATCT
123
β-肌动蛋白
β-actin
F:CAGCAGATGTGGATCAGCAAGCAG
R:TTGTCAAGAAAAAGGGTGTAACGCA
110

1.4.4 细胞蛋白质印迹(Western blot)法试验

参照刘正鑫等[11]的Western blot法测定羊原代肝细胞中AKT、磷酸化蛋白激酶B(phosphorylated protein kinase B,P-AKT)、核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)、Kelch样环氧氯丙烷相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)和PI3K的蛋白表达情况,以β-微管蛋白(β-tubulin)为内参蛋白计算目的蛋白的相对表达量。目的条带灰度值分析使用ImageJ 1.8.0软件系统。

1.5 数据处理与统计分析

试验原始数据使用Excel2010进行整理和计算后,采用SAS 9.2软件进行单因素方差分析(one-way ANOVA),结合Tukey法进行组间多重比较,通过GraphPad Prism对基因和蛋白的相对表达量数据绘制柱形图,P<0.05表示差异显著,P>0.05表示差异不显著。

2 结果与分析

2.1 羊原代肝细胞PAS糖原染色鉴定

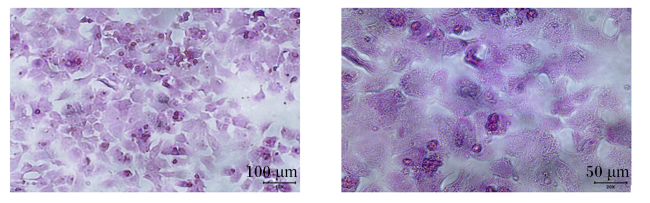
通过PAS糖原染色可以清晰的看到羊原代肝细胞的形态,倒置显微镜下观察到,细胞质呈大片粉紫色,细胞核呈蓝色(图1),由此可以鉴定细胞为是羊原代肝细胞。
图1 羊原代肝细胞在倒置显微镜下PAS糖原染色结果

Fig.1 PAS glycogen staining results of primary sheep hepatocytes under an inverted microscope

2.2 FA对羊原代肝细胞肝功能指标的影响

表2所示,与对照组相比,不同浓度的FA对羊原代肝细胞的AST和ALT活性均无显著影响(P>0.05)。
表2 FA对羊原代肝细胞肝功能指标的影响

Table 2 Effects of FA on liver function indices in primary sheep hepatocytes

项目
Items
阿魏酸浓度FA concentrations/(μg/mL) P
P-value
0 250 500 750 1 000
丙氨酸氨基转移酶ALT/(U/L) 1.82±0.60 1.95±0.49 1.78±0.51 1.98±0.44 2.31±0.68 0.630
天门冬氨酸氨基转移酶
AST/(U/L)
4.04±0.71 4.53±1.58 4.53±1.11 4.83±1.11 4.43±0.83 0.810

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.3 FA对羊原代肝细胞抗氧化指标的影响

表3所示,与对照组相比,不同浓度的FA均能显著降低细胞中ROS水平和MDA含量(P<0.05),并能显著提高细胞中SOD活性和GSH含量(P<0.05);750 μg/mL的FA能显著降低细胞中GSSG含量(P<0.05),但250、500、1 000 μg/mL的FA对细胞中GSSG含量无显著影响(P>0.05);500、750、1 000 μg/mL的FA均能显著提高细胞中T-AOC和GR活性(P<0.05),而250 μg/mL的FA对细胞中T-AOC、GR活性无显著影响(P>0.05);500、1 000 μg/mL的FA均能显著提高细胞中GSH-Px活性(P<0.05),但250、750 μg/mL的FA对细胞中GSH-Px活性无显著影响(P>0.05)。
表3 FA对羊原代肝细胞抗氧化指标的影响

Table 3 Effects of FA on antioxidant indices of primary sheep hepatocytes

项目
Items
阿魏酸浓度FA concentrations/(μg/mL) P
P-value
0 250 500 750 1 000
活性氧ROS/相对荧光强度 100.00
±0.33a
27.11
±2.99b
24.45
±0.26b
25.19
±0.35b
32.60
±0.69b
<0.001
丙二醛
MDA/(ng/mL)
147.10
±5.61a
140.02
±4.79b
129.74
±4.62c
139.09
±3.95b
138.65
±3.09b
<0.001
氧化型谷胱甘肽
GSSG/(μmol/L)
7.65
±2.57a
7.74
±1.00a
6.14
±0.65ab
5.22
±0.87b
6.12
±0.89ab
0.024
还原型谷胱甘肽
GSH/(μmol/L)
73.38
±11.49d
113.22
±16.56c
163.85
±3.82b
203.65
±6.04a
213.41
±8.98a
<0.001
超氧化物歧化酶
SOD/(U/L)
1 398.77
±157.40b
1 953.68
±132.25a
1 974.78
±171.58a
1 760.54
±151.27a
1 785.16
±337.08a
0.008
总抗氧化能力
T-AOC/(nmo/L)
11.98
±6.39d
18.04
±4.80cd
20.73
±3.77bc
31.93
±6.89a
27.36
±5.22ab
<0.001
谷胱甘肽还原酶
GR/(U/L)
10.76
±2.69b
7.37
±1.82b
26.72
±2.51a
21.32
±8.63a
24.55
±4.55a
<0.001
谷胱甘肽过氧化物酶
GSH-Px/(U/L)
11.54
±3.88c
9.72
±3.78c
26.85
±3.43a
10.24
±1.93c
16.81
±4.05b
<0.001

2.4 FA对羊原代肝细胞总铁含量的影响

表4所示,与对照组相比,不同浓度的FA均显著降低总铁含量(P<0.05);并且,随着FA浓度的增大,羊原代肝细胞中总铁含量逐渐下降。
表4 FA对羊原代肝细胞总铁含量的影响

Table 4 Effect of FA on total iron content in primary sheep hepatocytesμmol/L

项目
Item
阿魏酸浓度FA concentrations/(μg/mL) P
P-value
0 250 500 750 1 000
总铁Total iron 34.96±4.37a 22.92±2.02b 20.45±1.90b 15.99±1.85c 13.60±2.03c <0.001

2.5 FA对羊原代肝细胞铁死亡相关通路基因表达的影响

2.5.1 FA对羊原代肝细胞铁代谢通路相关基因表达的影响
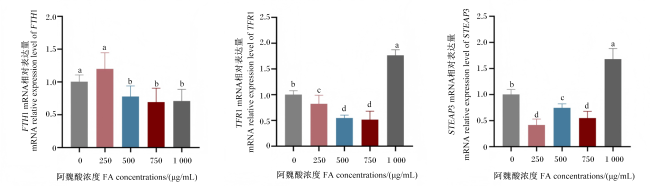
图2所示,与对照组相比,250 μg/mL的FA对FTH1的mRNA相对表达量无显著影响(P>0.05),但500、750、1 000 μg/mL的FA均可显著降低FTH1的mRNA相对表达量(P<0.05);250、500、750 μg/mL的FA均可显著降低TFR1、STEAP3的mRNA相对表达量(P<0.05),但1 000 μg/mL的FA可显著提高TFR1、STEAP3的mRNA相对表达量(P<0.05)。
图2 FA对羊原代肝细胞FTH1、TFR1、STEAP3 mRNA相对表达量的影响

数据柱形标注相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of FA on mRNA relative expression levels of FTH1, TFR1 and STEAP3 in primary sheep hepatocytes

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.5.2 FA对羊原代肝细胞GPX4通路相关基因表达的影响

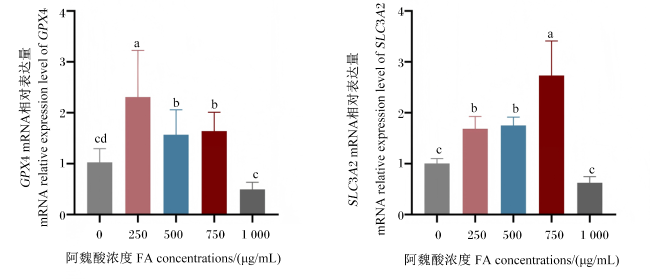
图3所示,与对照组相比,250、500、750 μg/mL的FA均可显著提高GPX4和SLC3A2的mRNA相对表达量(P<0.05),1 000 μg/mL的FA对GPX4和SLC3A2的mRNA相对表达量无显著影响(P>0.05)。
图3 FA对羊原代肝细胞GPX4、SLC3A2 mRNA相对表达量的影响

Fig.3 Effects of FA on mRNA relative expression levels of GPX4 and SLC3A2 in primary sheep hepatocytes

2.5.3 FA对羊原代肝细胞脂质过氧化通路相关基因表达的影响

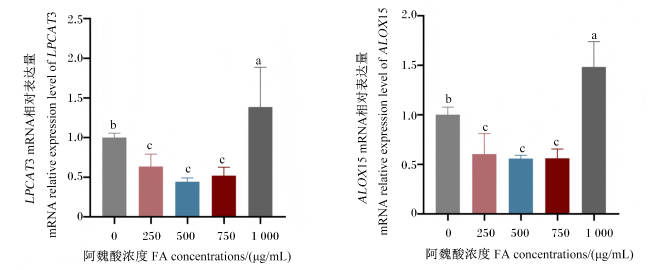
图4所示,与对照组相比,250、500、750 μg/mL的FA均显著降低LPCAT3、ALOX15的mRNA相对表达量(P<0.05),但1 000 μg/mL的FA显著提高LPCAT3、ALOX15的mRNA相对表达量(P<0.05)。
图4 FA对羊原代肝细胞LPCAT3、ALOX15 mRNA相对表达量的影响

Fig.4 Effects of FA on mRNA relative expression levels of LPCAT3 and ALOX15 in primary sheep hepatocytes

2.6 FA对羊原代肝细胞PI3K/AKT信号通路相关蛋白表达的影响

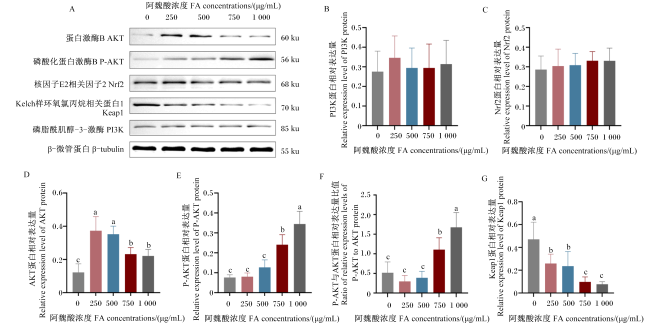
图5所示,与对照组相比,不同浓度的FA对羊原代肝细胞PI3K和Nrf2蛋白相对表达量的影响均不显著(P>0.05),但可显著提高AKT蛋白相对表达量(P<0.05),同时FA250组和FA500组的AKT蛋白相对表达量显著高于其他组(P<0.05);750、1 000 μg/mL的FA可显著提高P-AKT蛋白相对表达量及P-AKT与AKT蛋白相对表达量比值(P<0.05),但250、500 μg/mL的FA对P-AKT蛋白相对表达量及P-AKT与AKT蛋白相对表达量比值的影响不显著(P>0.05);不同浓度的FA均可显著降低Keap1蛋白相对表达量(P<0.05),其中FA750组和FA1000组的Keap1蛋白相对表达量显著低于其他组(P<0.05)。
图5 FA对羊原代肝细胞PI3K/AKT信号通路相关蛋白相对表达量的影响

A:AKT、P-AKT、Nrf2、Keap1和PI3K蛋白的免疫印迹条带图;B、C、D、E、G:羊原代肝细胞PI3K、Nrf2、AKT、P-AKT和Keap1的蛋白相对表达量化图;F:P-AKT与AKT蛋白质相对表达量比值。

Fig.5 Effects of FA on relative expression levels of proteins related to PI3K/AKT signaling pathway in primary sheep hepatocytes

A: Western blot band image of AKT, P-AKT, Nrf2, Keap1 and PI3K proteins; B, C, D, E, G: quantification of relative expression levels of PI3K, Nrf2, AKT, P-AKT and Keap1 proteins in primary sheep hepatocytes; F: ratio of relative expression levels of P-AKT to AKT protein.

3 讨论

3.1 FA对羊原代肝细胞的肝功能和抗氧化功能的影响

肝脏作为关键的代谢和解毒器官,当肝细胞受损时,细胞膜完整性丧失,转氨酶从受损的肝细胞中释放,导致机体血清中ALT和AST活性增加,所以血清中ALT和AST活性在临床应用中被认为是反映肝脏损伤的重要指标[12]。有研究表明,在AML-12细胞中添加丹酚酸B与不添加丹酚酸B的正常对照组相比,ALT和AST活性差异不显著,说明添加丹酚酸B不会造成AML-12细胞损伤[13]。本试验结果表明,与对照组相比,添加不同浓度的FA对羊原代肝细胞的ALT和AST活性没有显著影响,说明在本试验设定的FA浓度不会对原代肝细胞造成损伤。
当氧化和抗氧化系统之间的平衡被打破,机体会发生氧化应激,从而威胁到机体健康[14]。培养细胞中的氧化应激可以通过ROS释放和MDA产生等标志物指标进行评估,且MDA是ROS的下游产物[15]。正常细胞内的抗氧化酶如SOD、GSH-Px和GR,具有清除超氧阴离子自由基的能力,有助于维持细胞内GSH含量及GSH与GSSG之间的平衡,以达到最佳抗氧化防御功能[16]。T-AOC的高低体现了机体抗氧化防御能力的强弱[17]。体内研究表明,饲粮中添加FA通过增加GSH含量以及提高过氧化氢酶(CAT)、SOD和GSH-Px活性、降低MDA含量,提高小尾寒羊的抗氧化功能[18]。体外研究表明,FA可以缓解阿霉素诱导的心肌细胞氧化应激和PI3K/AKT信号通路受损[19]。本试验结果表明,与对照组相比,FA显著降低了羊原代肝细胞中ROS水平和MDA含量,显著提高了SOD活性和GSH含量;500、750、1 000 μg/mL的FA均能显著提高细胞中T-AOC和GR活性,500、1 000 μg/mL的FA均能显著提高细胞中GSH-Px活性。上述结果说明,FA可以增强羊原代肝细胞的抗氧化功能,与前人研究结果一致。但本试验中,与对照组相比,750 μg/mL FA对原代肝细胞中GSH-Px活性的影响不显著,并显著降低GSSG含量,推测原因可能是,在未攻毒条件下羊原代肝细胞GSH消耗量较少,故GSH-Px活性不高、GSSG含量少,也可能是检测误差导致,具体有待进一步研究。

3.2 FA对羊原代肝细胞PI3K/AKT信号通路介导的铁死亡的影响

有研究表明,同为酚酸类化合物的高良姜素通过激活PI3K/AKT信号通路,促进GPX4基因表达并减少ROS的产生,从而抑制RAS选择性致死分子3(RAS-selective lethal 3,RSL3)诱导的HT1080细胞发生铁死亡[20];黑果腺肋花楸花青素可提高P-AKT与AKT蛋白相对表达量比值,抑制Keap1蛋白表达[21];丹酚酸B通过促进细胞外基质蛋白1(extracellular matrix protein 1,ECM1)与溶质载体家族7成员11(solute carrier family 7 member 11,SLC7A11)的相互作用,间接上调SLC3A2的表达,增强GPX4的抗氧化功能,从而缓解ROS诱导的肝细胞铁死亡[22]。PI3K/AKT信号通路在调节细胞生长、增殖、存活、代谢、凋亡的过程中起着重要作用[23]。激活的PI3K可催化磷脂酰肌醇-4,5-二磷酸[PI(4,5)P2]生成磷脂酰肌醇-3,4,5-三磷酸[PI(3,4,5)P3],进而募集并激活AKT,AKT可增强胱氨酸/谷氨酸反向转运体的活性,促进胱氨酸摄取并转化为GSH[24];P-AKT能够磷酸化Keap1,减弱Keap1与Nrf2的结合力,促使Nrf2入核,入核后的Nrf2通过与下游的抗氧化反应元件基因结合激活下游抗氧化酶的表达,抵抗氧化应激,进而对抗铁死亡[25]。SLC3A2、GPX4、SOD均为Nrf2下游对抗铁死亡的重要靶蛋白[26]。SLC3A2通过影响谷胱甘肽的合成,间接影响GPX4的抗氧化功能,进而抑制细胞发生铁死亡[27];GPX4具有抗氧化作用,能还原脂质过氧化物,保护细胞免受铁沉积[28]。因此,PI3K/AKT信号通路与铁死亡水平密切相关。本试验结果表明,250、500、750 μg/mL的FA均可显著提高GPX4和SLC3A2 mRNA相对表达量;FA可显著降低Keap1蛋白相对表达量,750、1 000 μg/mL的FA可显著升高P-AKT与AKT蛋白相对表达量比值,表明FA可能通过调控PI3K/AKT信号通路介导的GPX4通路增强羊原代肝细胞的抗氧化功能,但Nrf2和PI3K蛋白相对表达量随着FA浓度的增大没有显著变化,与前人研究所得结果不同,可能是FA对未发生氧化应激的羊原代肝细胞的Nrf2、PI3K作用不明显,后续研究可以采用诱发氧化应激的羊原代肝细胞进行试验。
PI3K/AKT信号通路也可能通过下调TFR1表达,减少细胞对铁离子摄取,同时上调FTH1表达,促进铁离子储存,降低游离铁水平,从而抑制铁依赖的脂质过氧化[29-30]。STEAP3是一种亚铁氧化酶,主要参与铁代谢调控[31]。总铁含量的变化会影响细胞的正常代谢和功能,铁过载会导致细胞发生铁死亡[32]。Chaudhuri等[33]研究表明,在铁过载小鼠模型中添加南酸枣树皮提取物(酚酸类化合物)后,小鼠肝脏的总铁含量显著降低;在牙周炎模型中,激活的PI3K/AKT信号通路可通过调控TFR1的表达进而调控铁死亡的发生[34];同为含酚酸类成分的复方中药,参芪地黄汤可以显著降低糖尿病肾病模型小鼠的STEAP3 mRNA相对表达量,从而减少过量铁离子引起的脂质过氧化[35]。本试验结果表明,随着FA浓度的增大,总铁含量显著下降;500、750、1 000 μg/mL的FA均可显著降低FTH1 mRNA相对表达量;250、500、750 μg/mL的FA均可显著降低TFR1、STEAP3 mRNA相对表达量,表明FA可能通过调控PI3K/AKT信号通路介导的铁代谢通路增强羊原代肝细胞的抗氧化功能,也可能是酚酸类物质通过其抗氧化和铁螯合能力直接降低肝细胞中的总铁含量;但1 000 μg/mL的FA可显著提高TFR1、STEAP3 mRNA相对表达量,表明高浓度的FA可能会促进细胞发生铁过载,推测当FA浓度超过细胞耐受阈值时,过量酚酸与铁螯合物会通过TFR1介导的内吞作用持续侵入细胞,同时抑制铁调素对铁转运蛋白的降解调控,打破“铁吸收-储存-排泄”的动态平衡,导致细胞内游离铁异常积累。因此,FA对肝细胞铁代谢的影响呈浓度依赖性,适宜浓度可发挥抗氧化作用,而过高浓度则会触发铁死亡级联反应,其机制仍需结合体内试验来进一步验证。
PI3K/AKT信号通路也可通过抑制ALOX15表达减少多不饱和脂肪酸的氧化,从而降低脂质过氧化物的生成,避免肝脏损伤[36]。ALOX15参与花生四烯酸代谢,会生成一些脂质过氧化物[37]。LPCAT3参与磷脂代谢,调节细胞膜的组成和流动性[38]。有研究表明,表没食子儿茶素没食子酸酯(酚酸类化合物)通过激活Nrf2信号通路下调ALOX15的表达,从而抑制内皮祖细胞的铁死亡[39];研究表明,LPCAT3通过重塑膜磷脂,增加多不饱和脂肪酸(polyunsaturated fatty acids,PUFAs)基因(如花生四烯酸)表达,使ALOX15更易催化生成脂质过氧化物[40]。本试验结果显示,250、500、750 μg/mL的FA均可显著降低LPCAT3、ALOX15 mRNA相对表达量,表明FA可能通过调控PI3K/AKT信号通路介导的脂质过氧化通路增强羊原代肝细胞的抗氧化功能;但1 000 μg/mL的FA可显著提高LPCAT3、ALOX15 mRNA相对表达量,表明过高浓度的FA可能会促进细胞发生脂质过氧化,原因可能是过高浓度的酚酸类物质会刺激细胞,使细胞膜结构遭到破坏,导致膜结构松散、流动性异常升高,使不饱和脂肪酸链更易暴露于细胞内ROS环境中,进而启动脂质过氧化的链式反应,加剧铁死亡的发生,具体机制还需进一步研究。

4 结论

综上所述,FA在羊原代肝细胞中通过激活PI3K/AKT信号通路,调控下游的铁代谢、GPX4表达、脂质过氧化水平等铁死亡通路,从而抑制了细胞水平的铁死亡进程,从而增强肝细胞的抗氧化应激能力;且在本试验条件下,750 μg/mL的FA效果最为显著。
[1]
陈彦, 王明利, 杨春. 探究农业农村数字经济与畜牧业高质量发展--来自省级面板的证据[J/OL]. 中国农业资源与区划, 2025:1-21(2025-04-18)[2025-12-05]. https://link.cnki.net/urlid/11.3513.S.20250418.0903.004.html.

CHEN Y, WANG M L, YANG C. Exploring agricultural and rural digital economy and high-quality development of livestock:evidence from provincial panel data[J/OL]. Chinese Journal of Agricultural Resources and Regional Planning, 2025:1-21(2025-04-18)[2025-12-05]. https://link.cnki.net/urlid/11.3513.S.20250418.0903.004.html. (in Chinese)

[2]
刘娅娅. 限时饲喂缓解热应激引起仔猪肝脏损伤的作用机制[D]. 硕士学位论文. 扬州: 扬州大学, 2024.

LIU Y Y. The mechanism of time-restricted feeding in alleviating heat stress-induced liver injury in piglets[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2024. (in Chinese)

[3]
WU K P, CHEN J S, LIN J W, et al. The role of ferroptosis in DM-induced liver injury[J]. BioMetals, 2024, 37(5):1191-1200.

DOI PMID

[4]
MA T L, CHEN J X, ZHU P, et al. Focus on ferroptosis regulation:exploring novel mechanisms and applications of ferroptosis regulator[J]. Life Sciences, 2022,307:120868.

[5]
QU Z X, ZENG J, ZENG L F, et al. Esculetin triggers ferroptosis via inhibition of the Nrf2-xCT/GPX4 axis in hepatocellular carcinoma[J]. Chinese Journal of Natural Medicines, 2025, 23(4):443-456.

DOI

[6]
廖阳, 闫荣玲, 黄国文, 等. 植物提取物神经保护活性及作用机制研究进展[J]. 生物学杂志, 2022, 39(5):98-103.

LIAO Y, YAN R L, HUANG G W, et al. Neuroprotective activity and mechanism of the plant extracts[J]. Journal of Biology, 2022, 39(5):98-103. (in Chinese)

[7]
SAÇIK U, ÇAVDAR Z, URAL C, et al. Effect of ferulic acid on testicular damage caused by torsion-detorsion in rats[J]. Biotechnic & Histochemistry, 2023, 98(2):77-85.

[8]
吴秀. 阿魏酸对仔猪肝脏氧化损伤的保护作用及其机制研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2023.

WU X. Protective effect of ferulic acid on liver injury in piglets and its mechanism[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2023. (in Chinese)

[9]
CHENG Q, LI Y W, YANG C F, et al. Ethanol-induced hepatic insulin resistance is ameliorated by methyl ferulic acid through the PI3K/AKT signaling pathway[J]. Frontiers in Pharmacology, 2019,10:949.

[10]
陈博雯. m6A甲基化修饰介导脂肪代谢调控湖羊热应激的分子机制[D]. 博士学位论文. 北京: 中国农业科学院, 2024.

CHEN B W. The molecular mechanism of m6A methylation modification mediated fat metabolism regulating heat stress in Hu sheep[D]. Ph.D.Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2024. (in Chinese)

[11]
刘正鑫, 袁洁, 玄红专. 中国杨属型蜂胶乙醇提取物对细菌脂多糖刺激下巨噬细胞能量代谢及抗炎活性的影响[J]. 动物营养学报, 2025, 37(6):4073-4089.

DOI

LIU Z X, YUAN J, XUAN H Z. Effects of ethanol extracts of Chinese poplar propolis on energy metabolism and anti-inflammatory activity of macrophages stimulated by bacterial lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):4073-4089. (in Chinese)

DOI

[12]
EVANS C, MACKENZIE F, MARRINGTON R. Variation in liver function testing and the effect of pyridoxal-5-phosphate on ALT,AST and FIB-4 results[J]. Annals of Clinical Biochemistry, 2024, 61(6):459-468.

DOI

[13]
任振晓, 张佳佳. 丹酚酸B对非酒精性脂肪肝细胞模型SIRT1/SIRT3信号通路的研究[J]. 齐齐哈尔医学院学报, 2022, 43(24):2313-2318.

REN Z X, ZHANG J J. Study on the influence of salvianolic acid B on vSIRT1/SIRT3 signaling pathway in non-alcoholic fatty liver cell model[J]. Journal of Qiqihar Medical University, 2022, 43(24):2313-2318. (in Chinese)

[14]
LETTIERI-BARBATO D, AQUILANO K, PUNZIANO C, et al. MicroRNAs,long non-coding RNAs,and circular RNAs in the redox control of cell senescence[J]. Antioxidants, 2022, 11(3):480.

DOI

[15]
LI H, TANG Y J, WANG H, et al. Nano-selenium alleviated immunoresponse,apoptosis and oxidative stress in Leydig cells of yak[J]. Colloids and Surfaces B:Biointerfaces, 2025,252:114684.

[16]
YUAN C, WU X M, WU L C, et al. Effects of allicin on growth performance,slaughter performance,antioxidant,immune parameters and economic benefits of black goats[J]. Animal Feed Science and Technology, 2025,324:116310.

[17]
LUO J Q, WU X, CHEN D W, et al. Dietary ferulic acid supplementation enhances antioxidant capacity and alleviates hepatocyte pyroptosis in diquat challenged piglets[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):134.

DOI PMID

[18]
包龙龙. 高精料饲粮中添加阿魏酸对小尾寒羊生长性能、抗氧化和免疫功能的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2024.

BAO L L. Effects of adding ferulic acid to high-concentrate diet on growth performance,antioxidant and immune function of small-tailed Han sheep[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2024. (in Chinese)

[19]
MACRÌ R, BAVA I, SCARANO F, et al. In vitro evaluation of ferutinin rich-Ferula communis L.,ssp. glauca,root extract on doxorubicin-induced cardiotoxicity:antioxidant properties and cell cycle modulation[J]. International Journal of Molecular Sciences, 2023, 24(16):12735.

DOI

[20]
CHEN K, XUE R, GENG Y P, et al. Galangin inhibited ferroptosis through activation of the PI3K/AKT pathway in vitro and in vivo[J]. The FASEB Journal, 2022, 36(11):e22569.

DOI

[21]
WEI J, TANG X, HE Y J, et al. Aronia melanocarpa Elliot anthocyanins inhibits alcoholic liver disease by activation of α7nAChR[J]. Plant Foods for Human Nutrition, 2024, 79(4):779-794.

DOI

[22]
FU Y D, ZHOU X X, WANG L, et al. Salvianolic acid B attenuates liver fibrosis by targeting Ecm1 and inhibiting hepatocyte ferroptosis[J]. Redox Biology, 2024,69:103029.

[23]
SONG Y Q, MAO Y R, SUI Q Q, et al. ALA alleviates liver damage in septic mice through PI3K/AKT signaling pathway[J]. Food Science & Nutrition, 2025, 13(7):e70599.

DOI

[24]
董佳宁, 胡樱凡, 窦宇飞, 等. 高硒通过PI3K/AKT/FoxO1信号通路对绵羊睾丸间质细胞自噬的影响[J]. 畜牧兽医学报, 2025, 56(8):3837-3848.

DOI

DONG J N, HU Y F, DOU Y F, et al. Effects of excessive selenium on autophagy of leydig cells in sheep through PI3K/AKT/FoxO1 pathway[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(8):3837-3848. (in Chinese)

DOI

[25]
李海山. 基于MAPK/PI3K-AKT通路探讨Corylifol A对破骨细胞分化和去卵巢小鼠骨丢失的作用机制[D]. 硕士学位论文. 广州: 广州中医药大学, 2024.

LI H S. Explore the mechanism of Corylifol A on osteoclast differentiation and bone loss in ovariectomized mice based on the MAPK/PI3K-AKT pathway[D]. Master’s Thesis. Guangzhou: Guangzhou University of Chinese Medicine, 2024. (in Chinese)

[26]
ZHENG J Y, FANG Y, ZHANG M, et al. Mechanisms of ferroptosis in hypoxic-ischemic brain damage in neonatal rats[J]. Experimental Neurology, 2024,372:114641.

[27]
SHI X T, YANG J R, WANG M, et al. Hsa_circ_0050900 affects ferroptosis in intrahepatic cholangiocarcinoma cells by targeting has-miR-605-3p to regulate SLC3A2[J]. Oncology Letters, 2023, 27(1):2.

DOI

[28]
GUO J W, SONG Z H, YU J, et al. Hepatocyte-specific TMEM16A deficiency alleviates hepatic ischemia/reperfusion injury via suppressing GPX4-mediated ferroptosis[J]. Cell Death & Disease, 2022, 13(12):1072.

[29]
WEN Z H, ZHANG Y X, GAO B, et al. Baicalin induces ferroptosis in oral squamous cell carcinoma by suppressing the activity of FTH1[J]. The Journal of Gene Medicine, 2024, 26(2):e3669.

DOI PMID

[30]
LI T, LIU F Y, TAN Y, et al. PIM3 regulates myocardial ischemia/reperfusion injury via ferroptosis[J]. Genes & Genomics, 2024, 46(2):161-170.

[31]
郭妍譞. RNF8通过调控Steap3影响铁代谢及肝脏铁死亡的机制研究[D]. 硕士学位论文. 兰州: 兰州大学, 2022.

GUO Y X. Mechanism of RNE8 on iron metabolism and liver ferroptosis by regulating Steap3[D]. Master’s Thesis. Lanzhou: Lanzhou University, 2022. (in Chinese)

[32]
DIETRICH C, HOFMANN T G. Ferroptosis meets cell-cell contacts[J]. Cells, 2021, 10(9):2462.

DOI

[33]
CHAUDHURI D, GHATE N B, PANJA S, et al. Role of phenolics from Spondias pinnata bark in amelioration of iron overload induced hepatic damage in Swiss albino mice[J]. BMC Pharmacology and Toxicology, 2016, 17(1):34.

DOI

[34]
范艺馨. P.g-LPS通过PI3K/AKT信号通路介导HGFs铁死亡作用的研究[D]. 硕士学位论文. 长春: 吉林大学, 2024.

FAN Y X. P.g-LPS mediates ferroptosis in HGFs through the PI3K/AKT signaling pathway[D]. Master’s Thesis. Changchun: Jilin University, 2024. (in Chinese)

[35]
王向晶, 周奕菁, 黄科, 等. 参芪地黄汤通过GPX4信号通路调控糖尿病肾病小鼠铁死亡的机制研究[J]. 浙江中医药大学学报, 2024, 48(4):407-415.

WANG X J, ZHOU Y J, HUANG K, et al. Study on the regulation mechanism of ferroptosis in diabetic nephropathy mice by Shenqi Dihuang decoction through GPX4 signaling pathway[J]. Journal of Zhejiang Chinese Medical University, 2024, 48(4):407-415. (in Chinese)

[36]
李瑞. 姜黄素缓解黄曲霉毒素B1诱导卵巢颗粒细胞损伤的机制研究[D]. 硕士学位论文. 杭州: 浙江农林大学, 2024.

LI R. Mechanism study of curcumin alleviates to aflatoxin B1-induced ovarian granulosa cells injury[D]. Master’s Thesis. Hangzhou: Zhejiang A & F University, 2024. (in Chinese)

[37]
FAN X F, WANG X Y, HUI Y Y, et al. Genipin protects against acute liver injury by abrogating ferroptosis via modification of GPX4 and ALOX15-launched lipid peroxidation in mice[J]. Apoptosis, 2023, 28(9):1469-1483.

DOI

[38]
ZHANG F, ZHEN H L, CHENG H S, et al. Di-(2-ethylhexyl) phthalate exposure induces liver injury by promoting ferroptosis via downregulation of GPX4 in pregnant mice[J]. Frontiers in Cell and Developmental Biology, 2022,10:1014243.

[39]
LI D, MAO Y J, ZHANG X S, et al. Epigallocatechin-3-gallate promotes recanalization in deep vein thrombosis by modulating endothelial progenitor cell ferroptosis through the Nrf2 pathway[J]. Phytotherapy Research, 2025, 39(3):1632-1644.

DOI PMID

[40]
WANG L, WANG A, FU Q, et al. Ferroptosis plays an important role in promoting ionizing radiation-induced intestinal injuries[J]. Biochemical and Biophysical Research Communications, 2022,595:7-13.

文章导航

/