研究论文

棉籽酶解蛋白抗氧化和免疫调节活性及其潜在功能肽段结构序列研究

  • 王倩倩 , 1 ,
  • 唐雅琴 1 ,
  • 李秋燕 1 ,
  • 吕少英 2 ,
  • 牛俊丽 , 1, 2, *
展开
  • 1 石河子大学动物科技学院,石河子 832000
  • 2 新疆希普生物科技股份有限公司,五家渠 831300
* 牛俊丽,副教授,硕士生导师,E-mail:

王倩倩(2001—),女,山东菏泽人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 菅景颖

收稿日期: 2025-07-29

  网络出版日期: 2026-02-12

基金资助

石河子大学青年创新拔尖人才计划项目(CXBJ202310)

2022年兵团重点领域科技攻关计划项目(2022AB003)

Study on Antioxidant and Immunomodulatory Activities of Cottonseed Enzymolysis Protein and Structural Sequences of Its Potential Functional Peptides

  • WANG Qianqian , 1 ,
  • TANG Yaqin 1 ,
  • LI Qiuyan 1 ,
  • LYU Shaoying 2 ,
  • NIU Junli , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Shihezi University, Shihezi 832000, China
  • 2 Xinjiang Xipu Bio-Tech Co., Ltd., Wujiaqu 831300, China
* associate professor, E-mail:

Received date: 2025-07-29

  Online published: 2026-02-12

摘要

本研究旨在探究棉籽酶解蛋白的抗氧化与免疫调节活性,并解析其潜在功能肽段的结构序列。首先,测定棉籽酶解蛋白的氨基酸组成及肽分子质量分布;然后,通过测定1,1-二苯基-2-三硝基苯肼(DPPH)自由基、羟自由基、超氧阴离子清除率以及总抗氧化能力等指标,评价棉籽酶解蛋白的抗氧化活性;最后,利用体外培养巨噬细胞和脾淋巴细胞,考察棉籽酶解蛋白的免疫调节活性,并结合分子对接技术分析特征性功能肽段的构效关系。结果表明:1)棉籽酶解蛋白含有18种氨基酸,总氨基酸含量为79.72%,其中含有必需氨基酸8种,必需氨基酸含量为23.31%;棉籽酶解蛋白中分子质量≤500 Da的组分占比为51.67%,≤1 000 Da的组分占比高达71.99%。2)在本试验条件下,DPPH自由基、羟自由基和超氧阴离子可被棉籽酶解蛋白有效清除,最高清除率分别为73.5%、85.4%和20.4%,总抗氧化能力最高为0.598 μmol/mL。3)特定浓度的棉籽酶解蛋白可提高巨噬细胞的吞噬活性和脾淋巴细胞的增殖能力,棉籽酶解蛋白浓度为1.0和0.5 mg/mL时巨噬细胞的吞噬指数显著高于阳性对照0.02 mg/mL脂多糖(LPS)(P<0.05),浓度为0.3 mg/mL时脾淋巴细胞的刺激指数显著高于0.02 mg/mL LPS(P<0.05)。此外,棉籽酶解蛋白还能调节巨噬细胞对白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-12(IL-12)、白细胞介素-2(IL-2)和肿瘤坏死因子-α(TNF-α)等细胞因子的分泌,0.5、0.3和0.1 mg/mL的棉籽酶解蛋白均能够显著增加上述细胞因子的分泌量(P<0.05),但均显著低于0.02 mg/mL LPS(P<0.05)。4)液相色谱-串联质谱(LC-MS/MS)分析结合分子对接技术鉴定出6条潜在抗氧化肽段和1条潜在免疫调节肽段,其中3条抗氧化肽段与靶标蛋白表现出较好的结合效果。综上所述,棉籽酶解蛋白富含必需氨基酸和小分子肽,具有较高的抗氧化和免疫调节活性。

本文引用格式

王倩倩 , 唐雅琴 , 李秋燕 , 吕少英 , 牛俊丽 . 棉籽酶解蛋白抗氧化和免疫调节活性及其潜在功能肽段结构序列研究[J]. 动物营养学报, 2026 , 38(2) : 1527 -1540 . DOI: 10.12418/CJAN2026.121

Abstract

This study aimed to investigate the antioxidant and immunomodulatory activities of cottonseed enzymolysis protein (CEP), and to elucidate the structural sequences of its potential functional peptides. Firstly, the amino acid composition and peptide molecular weight distribution of the CEP were determined. Subsequently, the antioxidant activity was evaluated by measuring the scavenging rates against 1,1-diphenyl-2-picrylhydrazyl (DPPH) radicals, hydroxyl radicals, superoxide anion, as well as the total antioxidant capacity. Finally, the immunomodulatory activity was examined using in vitro cultured macrophages and splenic lymphocytes, and the structure-activity relationship of characteristic functional peptides was analyzed in combination with molecular docking technology. The results showed as follows: 1) CEP contained 18 amino acids with a total content of 79.72%, including 8 essential amino acids accounting for 23.31%. Peptides with molecular weights≤500 Da and ≤1 000 Da constituted 51.67% and 71.99% in CEP, respectively. 2) Under the experimental conditions, the CEP effectively scavenged DPPH radicals, hydroxyl radicals, and superoxide anion, with the highest scavenging rates reaching 73.5%, 85.4% and 20.4%, respectively. The highest total antioxidant capacity was 0.598 μmol/mL. 3) Specific concentrations of the CEP could enhance both the phagocytic activity of macrophages and the proliferation capacity of splenic lymphocytes. At concentrations of 1.0 and 0.5 mg/mL, the CEP significantly increased the phagocytic index of macrophages compared with the positive control-0.02 mg/mL lipopolysaccharide (LPS) (P<0.05). At a concentration of 0.3 mg/mL, it also significantly elevated the stimulation index of splenic lymphocytes relative to 0.02 mg/mL LPS (P<0.05). Moreover, the CEP modulated the secretion of cytokines by macrophages, including interleukin-1β (IL-1β), interleukin-6 (IL-6), interleukin-12 (IL-12), interleukin-2 (IL-2) and tumor necrosis factor-α (TNF-α). At concentrations of 0.5, 0.3 and 0.1 mg/mL, the CEP significantly promoted the secretion of the aforementioned cytokines (P<0.05), although the secretion remained significantly lower than those induced by 0.02 mg/mL LPS (P<0.05). 4) Liquid chromatography-tandem mass spectrometry (LC-MS/MS) combined with molecular docking identified 6 potential antioxidant peptides and 1 immunomodulatory peptide, among which 3 antioxidant peptides showed strong binding affinity to target proteins. In conclusion, CEP is rich in essential amino acids and small-molecular-weight peptides, and demonstrates notable antioxidant and immunomodulatory activities.

我国是棉花生产大国,棉籽作为棉花加工的主要副产物,产量十分可观。根据国家统计局数据,2024年全国棉花产量约为616.4万t。通常每生产1 kg皮棉可产生1.65~1.70 kg棉籽[1],据此估算,2024年我国棉籽产量可达在1 017.06万~1 047.88万t[2]。棉籽虽富含蛋白质,但其在动物饲粮中的应用受棉酚等抗营养因子制约。研究表明,通过微生物发酵处理可有效降低棉籽蛋白中的棉酚含量,并显著提升棉籽蛋白的营养价值,如增加有机酸、消化酶和小肽等活性成分[3]。已有的研究表明,棉籽酶解蛋白在动物营养领域具有多方面的应用潜力。一方面,作为饲料添加剂,它能够显著促进瘤胃微生物的增殖,增强其对饲粮中氮源和碳水化合物的降解与利用[4]。在仔猪饲粮中,以2%和4%的棉籽酶解蛋白替代部分鱼粉,可改善仔猪的生长性能、提高营养物质消化率并缓解肠道炎症,其中添加量为2%时效果尤为显著[5]。另一方面,棉籽酶解蛋白被发现是多种生物活性肽的良好来源,这些活性肽展现出抗氧化、血管紧张素Ⅰ转换酶抑制和抗菌等多种活性[6]。例如,棉籽酶解蛋白及其分离出的肽段P4,在体外能够显著增强团头鲂原代肝细胞的代谢功能、提升抗氧化能力并激活先天免疫反应[7]。此外,中性水解棉籽蛋白片段和固态发酵棉籽粕中的肽段也显示出抗氧化活性[8]。水产动物养殖方面,饲料中添加7.2%的酶解棉籽蛋白能够替代15.56%的鱼粉且不影响大口鲈鱼的生长,反而能提升其抗氧化和免疫能力[9]。同样,适宜水平(20%)的脱酚棉籽蛋白能够改善青鱼的血清生化指标和激素变化,增强抗氧化能力并提高免疫力[10]。这些应用实例印证了棉籽酶解蛋白的营养价值。然而,目前关于棉籽酶解蛋白抗氧化与免疫调节活性的系统研究仍相对有限,其潜在的生物活性与作用机制尚待深入阐明。因此,本研究旨在系统评价棉籽酶解蛋白的抗氧化与免疫调节活性,以期为其后续开发与应用提供理论依据。

1 材料与方法

1.1 试验材料

棉籽酶解蛋白由新疆希普生物科技股份有限公司提供。选用6周龄的雌性C57BL/6J小鼠作为试验巨噬细胞和脾淋巴细胞的来源,试验操作及试验动物护理方案已获得石河子大学生物伦理委员会的批准(编号:2024-616)。

1.2 试验方法

1.2.1 棉籽酶解蛋白的制备工艺

棉籽酶解蛋白的制备工艺:第1步,将棉籽粕粉(游离棉酚含量为1 120 mg/kg)与7倍质量的去离子水混合,使用30%离子膜氢氧化钠溶液调节pH至8.6~8.8,加入相当于棉籽粕粉质量8%的碱性蛋白酶(酶活2.0×105 U/g),于适宜条件下酶解5.5 h;第2步,加入相当于棉籽粕粉质量0.3%的中性蛋白酶(酶活5.0×10⁴ U/g),继续酶解2 h;第3步,加入相当于棉籽粕粉质量0.3%的酸性蛋白酶(酶活1.0×10⁵ U/g),再次酶解2 h,获得酶解液;第4步,将酶解液通过三足式离心机(配备480目滤布)离心分离,得到滤液与滤渣,将滤液加热至75 ℃并维持0.5 h,随后冷却至35 ℃,经单效真空浓缩至干物质含量为45 %,最后进行喷雾干燥,制得棉籽酶解蛋白粉末。
利用上述酶解工艺获得的棉籽酶解蛋白的性能指标如下:蛋白质提取率为71.26%,粗蛋白质含量为69.41%,酸溶蛋白含量(即小肽含量)为76.9%,水分含量为5.78%,游离棉酚含量为161 mg/kg。

1.2.2 棉籽酶解蛋白的氨基酸组成与肽分子质量分布测定

棉籽酶解蛋白中色氨酸含量参照《饲料中色氨酸的测定》(GB/T 15400—2018)采用高效液相色谱法测定,其他氨基酸含量依据国标《食品安全国家标准食品中氨基酸的测定》(GB 5009.124—2016)中方法测定;棉籽酶解蛋白中肽的分子质量参照《食品安全国家标准 胶原蛋白肽》(GB 31645—2018)中方法测定,并计算不同分子质量范围组分的占比。

1.2.3 棉籽酶解蛋白抗氧化活性分析

1.2.3.1 1,1-二苯基-2-三硝基苯肼(DPPH)自由基清除率的测定

参照Zhang等[11]的方法,将100 μL不同浓度(0.5、1.0、2.0、4.0、8.0 mg/mL)的棉籽酶解蛋白溶液与2.9 mL浓度为0.1 mmol/L的DPPH乙醇溶液充分混匀,避光反应30 min;随后,使用酶标仪在波长517 nm处分别测量各反应液的吸光度值。DPPH自由基清除率的计算方式如下:
DPPH自由基清除率(%)=[l-(Asample-Ablank)/Acontrol]×100。
式中:Acontrol为DPPH乙醇溶液的吸光度值;Asample为棉籽酶解蛋白溶液与DPPH乙醇溶液反应液的吸光度值;Ablank:棉籽酶解蛋白溶液与纯乙醇混合液的吸光度值。

1.2.3.2 羟自由基清除率的测定

参考Yang等[12]的方法,在带塞试管中首先加入1.0 mL浓度为1.865 mmol/L的邻菲啰啉无水乙醇溶液,紧接着依次加入2 mL浓度为0.2 mol/L、pH 7.4的磷酸盐缓冲液(PBS),以及1 mL不同浓度(0.5、1.0、2.0、4.0、8.0 mg/mL)的棉籽酶解蛋白溶液,确保充分混合均匀;然后,加入1.0 mL浓度同样为1.865 mmol/L的FeSO4·7H2O溶液,再次混匀;在此基础上,添加1.0 mL 0.03% (v/v)的H2O2,然后置于37 ℃恒温水浴中反应60 min;随后,使用酶标仪在536 nm波长下测量不同处理反应液的吸光度值。
羟自由基清除率按以下公式计算:
羟自由基清除率(%)=[(As-An)/(Ab-An)]×100。
式中:As为不同浓度棉籽酶解蛋白反应液的吸光度值;Ab为以蒸馏水代替棉籽酶解蛋白溶液作为空白组的反应液的吸光度值;An为以蒸馏水代替H2O2作为损伤组的反应液的吸光度值。

1.2.3.3 超氧阴离子清除率和总抗氧化能力(T-AOC)的测定

配制不同浓度(0.5、1.0、2.0、4.0、8.0 mg/mL)的棉籽酶解蛋白溶液,并按照超氧阴离子清除能力试剂盒和总抗氧化能力试剂盒(苏州格锐思生物科技有限公司)说明书测定超氧阴离子清除率和总抗氧化能力。

1.2.4 棉籽酶解蛋白免疫调节活性分析

1.2.4.1 巨噬细胞吞噬活性的测定[13]

小鼠经颈椎脱臼处死后,立即用75%乙醇浸泡5 min。腹腔注射RPMI-1640培养液清洗,反复冲洗腹腔数次后,离心收集腹腔巨噬细胞,制备细胞悬液(1×10⁶个/mL);将细胞悬液以150 μL/孔接种于96孔板,分别加入50 μL不同浓度(0.4、1.2、2.0、4.0 mg/mL)的棉籽酶解蛋白溶液,使终浓度分别为0.1、0.3、0.5和1.0 mg/mL。以50 μL PBS作为空白对照,以50 μL 0.02 mg/mL的脂多糖(LPS)作为阳性对照。每种处理设6个复孔,37 ℃、5% CO2条件下培养44 h。培养结束后,向每孔加入中性红生理盐水溶液,继续培养4 h,然后弃去上清液,并用PBS洗涤。最后,加入细胞裂解液(乙酸∶乙醇=1∶1)裂解细胞,混匀后静置30 min,酶标仪测定540 nm处的吸光度值。巨噬细胞吞噬活性以吞噬指数(PI)表示,计算公式如下:
PI=试验孔吸光度值/空白对照孔吸光度值。

1.2.4.2 脾淋巴细胞增殖能力的测定[13]

小鼠颈椎脱臼处死,经75%乙醇浸泡后无菌分离脾脏;剪碎脾脏并通过滤网研磨,PBS洗涤后离心收集细胞;收集的细胞用红细胞裂解液处理后,用PBS洗涤2次,并用RPMI-1640培养液重悬细胞至1×10⁶个/mL,得到脾淋巴细胞悬液。将脾淋巴细胞悬液以150 μL/孔接种于96孔板,加入50 μL不同浓度(0.4、1.2、2.0、4.0 mg/mL)的棉籽酶解蛋白,使终浓度分别为0.1、0.3、0.5和1.0 mg/mL。以50 μL PBS作为空白对照,以50 μL 0.02 mg/mL的LPS作为阳性对照。每种处理设6个复孔,混匀后于37℃、5% CO2培养箱孵育68 h;吸弃上清液,加入噻唑蓝(MTT),继续培养4 h后,加入二甲基亚砜(DMSO)溶解结晶,酶标仪测定570 nm处吸光度值。脾淋巴细胞增殖能力以刺激指数(SI)表示,计算公式如下:
SI=试验孔吸光度值/空白对照孔吸光度值。

1.2.4.3 巨噬细胞的细胞因子分泌量测定

为检测巨噬细胞分泌的细胞因子的量,将已制备好的1×10⁶个/mL的腹腔巨噬细胞悬液以每孔150 μL的量接种于48孔板中;随后,每孔加入50 μL不同浓度(0.4、1.2、2.0、4.0 mg/mL)的棉籽酶解蛋白溶液,使终浓度分别达到0.1、0.3、0.5和1.0 mg/mL。以50 μL PBS作为空白对照,以50 μL 0.02 mg/mL的LPS作为阳性对照。每种处理设6个复孔,混匀后置于37 ℃、5% CO2孵育箱中,培养48 h后收集上清液,按照试剂盒(江苏晶美生物科技有限公司)说明书测定白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-12(IL-12)、白细胞介素-2(IL-2)和肿瘤坏死因子-α(TNF-α)的含量。

1.2.5 棉籽酶解蛋白结构序列鉴定

1.2.5.1 样品制备

取棉籽酶解蛋白样品5 mg,采用SDT裂解法提取蛋白质,具体步骤如下:将样品加入400 μL SDT裂解液[含4%十二烷基硫酸钠(SDS),100 mmol/L Tris/HCl(pH 7.6),0.1 mol/L二硫苏糖醇(DTT)],超声处理5 min(30 W,工作方式:超声5 s,间隔5 s),随后沸水浴中加热5 min,最后于14 000×g离心15 min,收集上清液备用。

1.2.5.2 色谱分离及质谱鉴定

色谱分离使用RP-C18色谱柱(0.15 mm×150 mm),流动相A为0.1%甲酸水溶液(A液),流动相B为含0.1%甲酸的乙腈水溶液(84%乙腈,B液)。色谱柱首先以95% A液平衡,样品上清液通过自动进样器进入Agilent Technologies液相色谱系统进行分离。洗脱梯度设置为:0~50 min,B液从4%线性增加至50%;50~54 min,B液从50%线性增加至100%;54~60 min,B液维持在100%。分离后的产物随后通过使用Q Exactive HF-X型高分辨质谱仪(Thermo Fisher Scientific,美国)进行质谱鉴定,分析时长60 min,采用正离子模式[14]

1.2.5.3 数据库检索及多肽活性功能注释

本研究采用MaxQuant 1.5.5.1软件对质谱原始数据(raw files)进行数据库检索。肽段的活性功能预测通过在线工具PeptideRanker(http://distilldeep.ucd.ie/PeptideRanker)完成,将多肽序列提交后即可获得相应的活性评分。为进一步推断所得肽段的潜在功能,从Biopep数据库(https://biochemia.uwm.edu.pl/biopep/start_biopep.php)下载已知且功能注释明确的活性肽序列进行比对分析。基于上述分析,筛选出免疫调节活性鉴定得分>90及抗氧化预测活性值>0.5的肽段,从而更精准地锚定潜在的功能性肽段。

1.2.6 棉籽酶解蛋白的分子对接模拟

采用ChemDraw 20.0软件构建并优化筛选所得肽段的三维结构。从蛋白质数据库(PDB, http://www.rcsb.org)中获取受体蛋白Kelch样ECH关联蛋白1(Keap1)(PDB ID:4L7B)和白细胞介素-1受体相关激酶4(IRAK4)(PDB ID:2A9I)的晶体结构,使用AutoDock Tools 1.5.7软件进行分子对接,对接重复次数设为50次。对接前对配体与受体进行去水及加氢处理,以更准确地评估其结合模式。采用半柔性对接策略,将受体(Keap1与IRAK4)设为刚性,配体(筛选获得的抗氧化及免疫调节活性肽)设为柔性。最后借助PyMOL 3.1软件分析受体与配体间的相互作用,以结合能越低代表相互作用越强为依据,筛选具有潜在抗氧化与免疫调节活性的肽段。

1.3 数据处理与分析

试验数据首先采用Excel 2021软件进行整理,然后采用SPSS 27.0软件进行单因素方差分析(one-way ANOVA),若方差分析结果显著(P<0.05),则进一步使用Duncan氏法进行组间多重比较。棉籽酶解蛋白的抗氧化与免疫调节活性相关数据以“平均值±标准差”表示,并采用Origin软件进行图表绘制。

2 结果与分析

2.1 棉籽酶解蛋白的氨基酸组成与肽分子质量分布

表1可以看出,棉籽酶解蛋白含有18种氨基酸,总氨基酸含量为79.72%;含有必需氨基酸8种,必需氨基酸含量为23.31%;在18种氨基酸中,以谷氨酸(Glu)和天冬氨酸(Asp)的含量较高,分别为21.06%和8.44%;另外,疏水性氨基酸含量为27.12%,非极性氨基酸含量为28.97%,碱性氨基酸和支链氨基酸含量分别为13.76%和10.79%。
表1 棉籽酶解蛋白的氨基酸组成及含量

Table 1 Amino acid composition and contents of cottonseed enzymolysis protein %

氨基酸Amino acids 含量Content 氨基酸Amino acids 含量Content
天冬氨酸Asp 8.44 苯丙氨酸Phe 3.93
谷氨酸Glu 21.06 异亮氨酸Ile 2.48
丝氨酸Ser 3.00 亮氨酸Leu 4.41
组氨酸His 1.94 赖氨酸Lys 3.40
甘氨酸Gly 3.50 脯氨酸Pro 4.56
苏氨酸Thr 2.35 色氨酸Trp 0.67
精氨酸Arg 8.42 总氨基酸TAA 79.72
丙氨酸Ala 3.35 必需氨基酸EAA 23.31
酪氨酸Tyr 1.65 疏水性氨基酸HAA 27.12
胱氨酸Cys 0.49 非极性氨基酸NPAA 28.97
缬氨酸Val 3.90 碱性氨基酸BAA 13.76
蛋氨酸Met 2.17 支链氨基酸BCAA 10.79

必需氨基酸包括苏氨酸、缬氨酸、蛋氨酸、苯丙氨酸、异亮氨酸、亮氨酸、赖氨酸、色氨酸;疏水性氨基酸包括丙氨酸、缬氨酸、亮氨酸、异亮氨酸、蛋氨酸、苯丙氨酸、色氨酸、脯氨酸、酪氨酸;非极性氨基酸包括甘氨酸、丙氨酸、缬氨酸、亮氨酸、异亮氨酸、蛋氨酸、苯丙氨酸、色氨酸、脯氨酸;碱性氨基酸包括赖氨酸、精氨酸、组氨酸;支链氨基酸包括缬氨酸、亮氨酸、异亮氨酸。

Essential amino acids (EAA) include Thr, Val, Met, Phe, Ile, Leu, Lys and Trp; hydrophobic amino acids (HAA) include Ala, Val, Leu, Ile, Met, Phe, Trp, Pro and Tyr; non-polar amino acids (NPAA) include Gly, Ala, Val, Leu, Ile, Met, Phe, Trp and Pro; basic amino acids (BAA) include Lys, Arg and His; branched-chain amino acids (BCAA) include Val, Leu and Ile.

表2可知,棉籽酶解蛋白中分子质量≤500 Da的组分占比达51.67%,而≤1 000 Da的组分占比更是高达71.99%,这表明棉籽酶解蛋白中含有较多的小分子肽。
表2 棉籽酶解蛋白的肽分子质量分布

Table 2 Molecular weight distribution of peptides in cottonseed enzymolysis protein

分子质量范围
Molecular weight
range/Da
峰面积百分比
Peak area percentage
220 nm)/%
数均分子质量
Number-average
molecular weight/Da
重均分子质量
Weight-average
molecular weight/Da
>1 0000 0.58 14 036 15 035
>5 000~10 000 2.35 6 259 6 478
>3 000~5 000 5.93 3 840 3 919
>2 000~3 000 5.46 2 410 2 443
>1000~2 000 13.70 1 333 1 391
>500~1 000 20.32 663 692
>180~500 30.62 260 284
<180 21.05

2.2 棉籽酶解蛋白的抗氧化活性

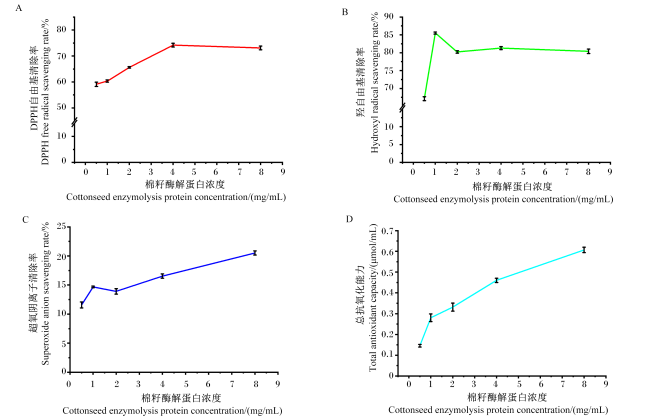
图1-A所示,当棉籽酶解蛋白的浓度为4.0 mg/mL时,其对DPPH自由基的清除率达到最高值,为73.5%;如图1-B所示,棉籽酶解蛋白对羟自由基的清除率随其浓度的增加而提高,在浓度为1.0 mg/mL时达到峰值,为85.4%,此后略有降低并趋于平缓;如图1-C所示,在1.0~2.0 mg/mL浓度区间内,棉籽酶解蛋白对超氧阴离子的清除率略有下降,但总体而言,随着浓度的增加,其对超氧阴离子的清除率仍呈现上升趋势,表现出良好的线性关系,在浓度为8.0 mg/mL时对超氧阴离子的清除率达到最高值,为20.4%;同时,总抗氧化能力也随着棉籽酶解蛋白浓度的增加而提升,在浓度为8.0 mg/mL时总抗氧化能力达到最高值,为0.598 μmol/mL,呈现出明显的剂量效应关系(图1-D)。
图1 不同浓度棉籽酶解蛋白的抗氧化活性

Fig.1 Antioxidant activity of cottonseed enzymolysis protein at different concentrations

2.3 棉籽酶解蛋白的免疫调节活性

2.3.1 不同浓度棉籽酶解蛋白对巨噬细胞吞噬活性和脾淋巴细胞增殖能力的影响

表3所示,1.0和0.5 mg/mL棉籽酶解蛋白的吞噬指数显著高于其他浓度以及阳性对照0.02 mg/mL LPS(P<0.05),其中以1.0 mg/mL时最高,但与0.5 mg/mL无显著差异(P>0.05);0.02 mg/mL LPS的吞噬指数则显著高于0.3 mg/mL棉籽酶解蛋白(P<0.05),但与0.1 mg/mL棉籽酶解蛋白无显著差异(P>0.05);此外,0.3 mg/mL棉籽酶解蛋白对脾淋巴细胞增殖的刺激作用最强,此浓度下的刺激指数显著高于1.0 mg/mL棉籽酶解蛋白以及0.02 mg/mL LPS(P<0.05),与0.5和0.1 mg/mL棉籽酶解蛋白无显著差异(P>0.05)。
表3 不同浓度棉籽酶解蛋白对巨噬细胞吞噬活性(以吞噬指数表示)和脾淋巴细胞增殖能力(以刺激指数表示)的影响

Table 3 Effects of different concentrations of cottonseed enzymolysis protein on macrophage phagocytic activity (expressed as phagocytic index) and splenic lymphocyte proliferation capacity (expressed as stimulation index)

项目
Items
棉籽酶解蛋白浓度
Cottonseed enzymolysis protein concentrations/(mg/mL)
脂多糖
LPS/(mg/mL)
1.0 0.5 0.3 0.1 0.02
吞噬指数Phagocytic index 1.75±0.19a 1.67±0.13a 1.11±0.27c 1.14±0.23bc 1.35±0.12b
刺激指数Stimulation index 0.80±0.28b 1.13±0.23ab 1.24±0.19a 1.11±0.10ab 0.95±0.24b

同行数据肩标不同字母表示差异显著(P<0.05)。表4同。

Values in the same row with different letter superscripts mean significant difference (P<0.05). The same as Table 4.

2.3.2 不同浓度棉籽酶解蛋白对巨噬细胞细胞因子分泌量的影响

表4可知,当棉籽酶解蛋白浓度为0.5、0.3和0.1 mg/mL时,IL-1β的分泌量均较空白对照显著升高(P<0.05),其中以棉籽酶解蛋白浓度为0.3 mg/mL时IL-1β的分泌量最高,且显著高于浓度为1.0 mg/mL时(P<0.05),但仍显著低于0.02 mg/mL LPS(P<0.05);同样地,当棉籽酶解蛋白浓度为0.5、0.3和0.1 mg/mL时,IL-6的分泌量也均显著高于空白对照(P<0.05),且在棉籽酶解蛋白浓度为0.1 mg/mL时IL-6的分泌量达到最高,显著高于浓度为1.0和0.5 mg/mL时(P<0.05),但仍显著低于0.02 mg/mL LPS(P<0.05);在棉籽酶解蛋白浓度为0.1 mg/mL时,TNF-α的分泌量达到峰值,显著高于空白对照以及其他棉籽酶解蛋白浓度(P<0.05),但显著低于0.02 mg/mL LPS(P<0.05);对于IL-12而言,在棉籽酶解蛋白浓度为0.1 mg/mL时,其分泌量也达到最高,并显著高于空白对照以及其他棉籽酶解蛋白浓度(P<0.05),但同样显著低于0.02 mg/mL LPS(P<0.05);当棉籽酶解蛋白浓度为0.3、0.1 mg/mL时,IL-2的分泌量较空白对照显著升高(P<0.05),在浓度为0.1 mg/mL时,IL-2的分泌量达到最高,显著高于浓度为0.5和1.0 mg/mL时(P<0.05),但显著低于0.02 mg/mL LPS(P<0.05)。
表4 不同浓度棉籽酶解蛋白对巨噬细胞细胞因子分泌量的影响

Table 4 Effects of different concentrations of cottonseed enzymolysis protein on secretion of cytokines by macrophages

项目
Items
棉籽酶解蛋白浓度
Cottonseed enzymolysis protein concentrations/(mg/mL)
脂多糖
LPS/(mg/mL)
空白对照
Blank control
1.0 0.5 0.3 0.1 0.02
白细胞介素-1β
IL-1β/(ng/L)
79.56
±2.08c
89.23
±1.94b
90.98
±4.31b
90.73
±2.10b
101.69
±2.91a
77.78
±1.90c
白细胞介素-6
IL-6/(ng/L)
126.08
±6.59d
133.46
±2.07c
137.13
±1.24bc
138.87
±2.92b
159.08
±3.12a
126.65
±2.98d
肿瘤坏死因子-α
TNF-α/(ng/L)
935.41
±52.83d
991.81
±56.67c
1 019.37
±15.90c
1 067.41
±9.25b
1 150.36
±14.11a
900.02
±48.40d
白细胞介素-12
IL-12/(ng/L)
8.84
±0.28c
8.89
±0.41c
8.96
±0.18c
9.70
±0.28b
10.56
±0.30a
8.48
±0.18d
白细胞介素-2
IL-2/(ng/L)
1 326.18
±18.36c
1 361.96
±75.64c
1 439.55
±22.09b
1 444.43
±55.11b
1 582.96
±16.52a
1 227.06
±45.26d

2.4 棉籽酶解蛋白的活性肽筛选

通过液相色谱-串联质谱(LC-MS/MS)多肽鉴定及活性功能注释,共鉴定出275条具有抗氧化活性和47条具有免疫调节活性的肽序列。根据筛选标准,最终筛选出6条抗氧化预测活性值>0.5的肽段和1条免疫调节活性鉴定得分>90的肽段。筛选得到的肽段均为小于20个氨基酸的小肽,且富含疏水性氨基酸(表5)。此外,根据ToxinPred在线工具的毒性预测显示,所有肽段均无毒性。
表5 抗氧化预测活性值>0.5以及免疫调节活性鉴定得分>90的棉籽酶解蛋白多肽

Table 5 Cottonseed enzymolysis protein peptides with predicted antioxidant activity values>0.5 and immunomodulatory activity identification scores>90

多肽类型
Peptide types
氨基酸序列
Amino acid
sequence
疏水性氨基酸数量
Number of
hydrophobic
amino acids
氨基酸数量
Number of
amino
acids
预测活性值
Predicted
activity
value
活性鉴定得分
Activity
identification
score


抗氧化活性肽
Antioxidant active
peptide
SSADVFNPR 4 9 0.670 3
KGSIFVPH 5 8 0.529 4
ADENFIKKHTGPGIL 8 15 0.660 9
SSADVFNPRGGRIT 7 14 0.512 4
LSSF 2 4 0.613 5
SADVFNPRGGRIT 7 13 0.553 5
免疫调节活性肽
Immunomodulatory
active peptide
TEDDLLQRPR 3 10 245.99

2.5 肽段的分子对接模拟

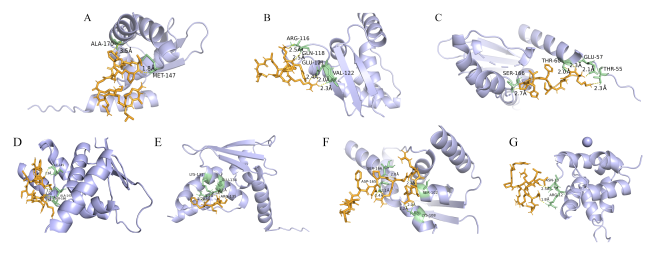
表6可以看出,筛选得到的7条多肽与受体的结合能分别为1.03、3.41、-2.47、-2.25、-1.81、4.45和10.72 kcal/mol(1 kcal/mol =4.184 kJ/mol)。借助PyMOL 3.1软件对受体与配体的分子间相互作用进行可视化展示,结果显示,7个复合物中形成的氢键数量分别为2、5、5、5、5、6和2个,以氢键长度<3.5 Å为有效氢键的标准,对应的有效氢键数依次为1、5、5、5、5、6和2个(图2)。
表6 7条多肽与受体的对接结合能

Table 6 Docking binding energy of 7 peptides to receptor

多肽类型
Peptide types
肽段
Peptide fragment
结合能
Binding energy/(kcal/mol)


抗氧化活性肽
Antioxidant active peptide
ALQLNQGSIFVPH 1.03
SSADVFNPR 3.41
KGSIFVPH -2.47
INKGSIFVPH -2.25
LSSF -1.81
SADVFNPRGGRIT 4.45
免疫调节活性肽
Immunomodulatory active peptide
TEDDLLQRPR 10.72
图2 棉籽酶解蛋白目标多肽与受体蛋白(Keap1和IRAK4)的分子对接模型

A:ALQLNQGSIFVPH与Keap1的分子对接模型;B:SSADVFNPR与Keap1的分子对接模型;C:KGSIFVPH与Keap1的分子对接模型;D:INKGSIFVPH与Keap1的分子对接模型;E:LSSF与Keap1的分子对接模型;F:SADVFNPRGGRIT与Keap1的分子对接模型;G:TEDDLLQRPR与IRAK4的分子对接模型。

Fig.2 Molecular docking models of target peptides of cottonseed enzymolysis protein with receptor proteins (Keap1 and IRAK4)

A: molecular docking model of ALQLNQGSIFVPH with Keap1; B: molecular docking model of SSADVFNPR with Keap1; C: molecular docking model of KGSIFVPH with Keap1; D: molecular docking model of INKGSIFVPH with Keap1; E: molecular docking model of LSSF with Keap1; F: molecular docking model of SADVFNPRGGRIT with Keap1; G: molecular docking model of TEDDLLQRPR with IRAK4.

3 讨论

3.1 棉籽酶解蛋白的氨基酸组成、肽分子质量分布与其抗氧化及免疫调节活性的关系

统计分析表明,酸性、疏水性及碱性氨基酸是抗氧化肽中常见的氨基酸类型[15]。本研究结果显示,谷氨酸和天冬氨酸在棉籽酶解蛋白中的含量较高,这2种酸性氨基酸可通过清除自由基或螯合金属离子的方式发挥抗氧化作用[16]。Jie等[17]研究发现,由谷氨酸-天冬氨酸组成的酸性氨基酸组合能增强抗氧化肽对亚油酸氧化的抑制效果,并通过清除超氧阴离子自由基抑制金属离子催化的氧化反应。本研究测得棉籽酶解蛋白中疏水性氨基酸含量为27.12%。鉴于疏水性氨基酸在抗氧化肽序列中普遍存在,推测其可能通过增强与脂溶性自由基及多不饱和脂肪酸的可及性来抑制氧化损伤[18]。Kim等[19]从胶原蛋白中分离得到的抗氧化肽,这些抗氧化肽均含有Gly-Pro-Hyp重复序列,表明该序列可能与其抗氧化机制密切相关。另外,既往研究表明多数免疫调节活性肽的氨基酸组成中富含碱性氨基酸和支链氨基酸[20-21]。本试验测定结果显示,棉籽酶解蛋白中碱性氨基酸和支链氨基酸含量分别为13.76%和10.79%。由此可以推断,棉籽酶解蛋白的抗氧化活性与它的氨基酸组成密切相关,并且存在潜在的免疫调节活性肽段。
有研究表明,肽分子质量分布与其抗氧化能力相关,较大分子质量的肽可能因空间位阻效应而导致自由基清除能力较弱;相比之下,较小分子质量的肽常表现出更强的抗氧化活性[22]。本试验得出,棉籽酶解蛋白中分子质量≤1 000 Da的组分占比高达71.99%,≤2 000 Da的组分占比更是高达85.69%。分子质量小于2 000 Da的小肽在溶解性及肠道吸收方面更具优势,更易与免疫相关酶活性位点和免疫细胞相互作用[23]。由此可以推断,棉籽酶解蛋白的抗氧化与免疫调节活性可能与其富含小分子肽这一结构特征存在关联。

3.2 不同浓度棉籽酶解蛋白对DPPH自由基、羟自由基、超氧阴离子清除能力及总抗氧化能力的影响

棉籽酶解蛋白的抗氧化活性表现出显著的浓度依赖性差异:DPPH自由基清除率在浓度为4 mg/mL时达到峰值,为73.5%,这可能源于中低浓度下肽段供氢能力的最佳平衡状态;羟自由基清除率在浓度为1 mg/mL时达到最高水平,为85.4%,这种现象可能归因于低浓度棉籽酶解蛋白中某些高效成分(如金属螯合剂、含硫氨基酸)对自由基的有效清除,亦或是高浓度下蛋白质分子间竞争或空间位阻效应所致;超氧阴离子清除率及总抗氧化能力均在浓度为8.0 mg/mL时达到最大值,分别为20.4%和0.598 μmol/mL,提示高浓度下多肽链的协同还原效应可能占据主导地位。综合上述结果可得出,在试验所选浓度区间内,棉籽酶解蛋白的浓度越高,其抗氧化活性就越强,且这种提升趋势较为明显。

3.3 不同浓度棉籽酶解蛋白对巨噬细胞吞噬活性及脾淋巴细胞增殖能力的影响

巨噬细胞作为白细胞中重要的吞噬细胞,能够高效清除入侵的病原微生物,在维持机体稳态和免疫防御中发挥着关键作用,是最有效的免疫防御细胞之一[24]。当吞噬细胞表面的受体识别到颗粒物时,就会激活一系列胞内信号,导致细胞骨架发生重排,进而形成伪足将颗粒物包裹并吞噬,这个过程被称为吞噬作用[25-26],吞噬活性是评价巨噬细胞免疫功能的重要指标。本研究结果显示,随着棉籽酶解蛋白浓度的不断增加,巨噬细胞吞噬活性呈现上升趋势,其中浓度为1.0 mg/mL时吞噬指数达到最高值,且显著高于0.02 mg/mL LPS。虽然LPS能够激活巨噬细胞增强其吞噬活性,但也可能引起吞噬细胞的过度活化,进而导致炎症反应的发生[27],这也解释了本研究中0.02 mg/mL LPS的吞噬指数显著低于0.5和1.0 mg/mL棉籽酶解蛋白的原因。
脾脏内淋巴细胞含量很高,其中T淋巴细胞和B淋巴细胞占比分别约为35%和38%,二者在细胞免疫和体液免疫中发挥重要作用。淋巴细胞增殖产生的效应淋巴细胞数量可以直观地反映机体的免疫功能[28]。脾淋巴细胞增殖能力在一定程度上代表了机体的体液免疫和细胞免疫的综合水平[29]。本试验结果显示,棉籽酶解蛋白对脾淋巴细胞的增殖具有一定促进作用,但其效应并非随浓度升高而增强,在浓度为0.3 mg/mL时,脾淋巴细胞刺激指数达到最高值,且显著高于0.02 mg/mL LPS。

3.4 不同浓度棉籽酶解蛋白对巨噬细胞细胞因子分泌量的影响

巨噬细胞能够分泌多种细胞因子,包括IL-1β、IL-6、TNF-α等,这些细胞因子参与免疫反应、促进细胞生长和损伤组织的修复[30]。IL-1β是多种炎症疾病中的重要细胞因子,它参与调节免疫细胞的增殖与活化,并且能够促使IL-6和TNF-α等其他免疫相关细胞因子的释放[31]。IL-6是一种由巨噬细胞分泌的细胞因子,在抑制Th1型免疫应答和介导Th2型免疫应答中发挥重要作用[32]。TNF-α在炎症反应、免疫调节和抗肿瘤防御中具有关键作用,它主要由活化的巨噬细胞和T淋巴细胞等免疫细胞所分泌,是一种重要的促炎性细胞因子。本研究发现,当棉籽酶解蛋白的浓度为0.5、0.3、0.1 mg/mL时,巨噬细胞对IL-1β、IL-6和TNF-α的分泌量显著高于对照,表明棉籽酶解蛋白可以促进巨噬细胞分泌IL-1β、IL-6和TNF-α,表现出显著的抗炎免疫调节活性,这可能与M1型巨噬细胞的激活有关。IL-12是巨噬细胞和树突状细胞分泌的关键性细胞因子,可通过刺激T淋巴细胞和自然杀伤(NK)细胞的分化与增殖,对细胞免疫产生正向调节作用[33]。IL-2是Th1型细胞因子家族中的重要成员,主要由CD4+ T细胞和CD8+ T细胞产生,不仅具有促进T淋巴细胞增殖的作用,还能调节B淋巴细胞、NK细胞及巨噬细胞等多种免疫细胞的功能[34]。本研究结果表明,各浓度棉籽酶解蛋白处理的巨噬细胞对IL-12和IL-2的分泌量均显著高于对照,提示棉籽酶解蛋白可能通过激活先天性免疫和适应性免疫发挥免疫调节作用,尤其在Th1型免疫应答中具有潜在应用价值。总体而言,0.1~0.3 mg/mL的棉籽酶解蛋白对细胞因子的分泌促进作用最为显著,提示该浓度范围内的棉籽酶解蛋白可能具有最佳的免疫调节活性。

3.5 棉籽酶解蛋白中活性肽段的筛选及分子对接模型的分析

有研究指出,小分子抗氧化肽的抗氧化活性与其氨基酸序列的组成密切相关,其中疏水性氨基酸的有无是肽段是否具有抗氧化活性的关键因素[35]。此外,大部分具有免疫调节功能的活性肽,其分子质量低于3 000 Da,从氨基酸组成上看,通常含有1个或多个疏水性氨基酸,比如谷氨酰胺、酪氨酸和色氨酸等[21]。本试验筛选出的具有抗氧化活性和免疫调节活性的目标肽段,氨基酸数量均小于20,且氨基酸组成中均含有多个疏水氨基酸,由此可进一步推测目标肽段可能具有抗氧化活性和免疫调节活性。
研究表明,当结合能低于0 kcal/mol时,通常意味着2个分子能够自发地结合在一起,且结合能的负值绝对值越大,构象稳定性越高。若结合能小于-5.0 kcal/mol,则可认为具有较好的结合效果[36]。本研究中,肽段KGSIFVPH、INKGSIFVPH和LSSF与Keap1的结合能分别为-2.47、-2.25和-1.81 kcal/mol,说明它们均能与Keap1自发结合并形成稳定构象。
Keap1/核因子E2相关因子2(Nrf2)通路是调控细胞抗氧化反应的核心信号通路,其激活可有效减轻外源性刺激诱导的氧化损伤[37]。基于此,本研究选择Keap1/Nrf2复合物作为靶点展开分析。在生理状态下,Keap1与Cullin3(CUL3)结合形成泛素E3连接酶复合物,介导Nrf2的泛素化修饰并促使其在胞质中降解。若多肽能够竞争性结合Keap1的Nrf2结合位点,则可阻断这一降解过程,导致游离Nrf2水平升高;随后,Nrf2易位至细胞核内,通过激活抗氧化反应元件(ARE)上调下游抗氧化基因的表达[38]。一般来说,蛋白质与肽段之间的相互作用涉及多种分子力,包括氢键、疏水作用、范德华力及电荷相互作用等,其中氢键是结合的关键[39]。具体而言,KGSIFVPH通过Keap1的SER-166、THR-60、GLU-57和THR-55残基形成氢键(图2-C);INKGSIFVPH与Keap1的ILE-145、ALA-143和SER-166残基通过氢键结合(图2-D);LSSF则与Keap1的IYS-131、GLU-134和ARG-135残基产生氢键相互作用(图2-E)。综上可知,这些肽段通过氢键与受体蛋白Keap1稳定结合,展现其潜在的抗氧化活性。
本研究筛选得到了一种潜在的免疫调节活性肽TEDDLLQRPR,对接结果显示其与受体的免疫调节活性鉴定得分为245.99,远高于通常的阈值,提示其可能具有较强的结合能力。然而,值得注意的是,其分子对接模拟的结合能为正值(10.72 kcal/mol),且形成的氢键数量仅为2个。
通常情况下,结合能为正值预示着肽段与受体结合的稳定性较差。但我们必须考虑到,分子对接仅仅是一种计算机模拟(in silico)的预测手段,其结果不可避免地会受到多种因素的制约。首先,分子对接的准确性依赖于目标分子的三维结构质量[40]。受体自身的晶体结构可能存在一定的限制,使其无法完全展现最佳的结合模式。其次,对接过程中对结合位点附近水分子作用的忽略,以及当前对接算法的局限性,都可能影响结合能的准确计算[41]。因此,我们推测,本研究筛选得到的免疫调节活性肽可能并非主要依赖于与传统受体Toll样受体(TLR)的高度结合,而是可能通过以下几种途径发挥其免疫调节功能:肽段通过疏水作用等其他非共价键与受体发生作用,弥补氢键不足的影响;肽段具有较强的构象适应性,能够诱导受体结合位点发生构象变化,从而优化结合效果[42];肽段可能通过激活NF-κB通路等非TLR受体途径来调节免疫功能[43]。例如,乳源肽(如乳铁蛋白衍生肽)可直接激活NF-κB,且该效应可独立于TLR而经非经典途径实现[44]
尽管本研究初步证实了棉籽酶解蛋白的潜在应用价值,但体内功效和实际应用效果尚待验证。因此,后续研究将根据当前的结构序列分析结果,优先选择一些最有可能具备特定生物活性的候选肽段,并进一步设计小鼠和犊牛试验,以验证其体内活性,解析其作用机制,并优化酶解工艺以提升活性肽获得率,为棉籽酶解蛋白推广使用及助力畜牧业可持续发展提供理论基础。

4 结论

棉籽酶解蛋白富含必需氨基酸和小分子肽,能够有效清除自由基,提高抗氧化能力,增强巨噬细胞的吞噬功能,促进脾淋巴细胞增殖,并调节关键细胞因子的分泌。本试验通过LC-MS/MS和分子对接技术,初步鉴定出了棉籽酶解蛋白中具有潜在活性功能的肽段,并提示了其构效关系。这些结果可为棉籽酶解蛋白作为一种潜在的功能性饲料添加剂提供科学依据,为后续深入研究其体内功效和作用机制奠定基础。
[1]
SUNILKUMAR G, CAMPBELL L M, PUCKHABER L, et al. Engineering cottonseed for use in human nutrition by tissue-specific reduction of toxic gossypol[J]. Proceedings of the National Academy of Sciences of the United States of America, 2006, 103(48):18054-18059.

DOI PMID

[2]
马宏伟, 高丽南, 许孝峰, 等. 日粮添加棉籽对生乳中棉酚残留安全性影响的评估研究[J]. 中国乳业, 2025(6):112-118,126.

MA H W, GAO L N, XU X F, et al. Evaluation and study on the impact of adding cottonseed to the diet on the safety of gossypol residues in raw milk[J]. China Dairy, 2025(6):112-118,126. (in Chinese)

[3]
魏莲清, 许芸, 张凯丽, 等. 发酵棉籽蛋白的研究进展及在动物生产中的应用[J]. 现代畜牧兽医, 2022(5):78-81.

WEI L Q, XU Y, ZHANG K L, et al. Research progress of fermented cottonseed protein and its application in animal production[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2022(5):78-81. (in Chinese)

[4]
李萍, 肖伟伟. 棉籽酶解蛋白对奶牛体外瘤胃液发酵参数的影响[J]. 中国奶牛, 2016(12):4-8.

LI P, XIAO W W. Effects of cottonseed enzymatic proteins on fermentation parameters of rumen fluid in dairy cows in vitro[J]. China Dairy Cattle, 2016(12):4-8. (in Chinese)

[5]
肖玉, 谭碧娥, 王婧, 等. 棉籽酶解蛋白替代鱼粉对仔猪生长、养分消化与代谢的影响[J]. 饲料工业, 2025, 46(2):65-71.

XIAO Y, TAN B E, WANG J, et al. Effects of substitution of fish meal by cottonseed enzymolysis protein on growth performance and metabolism of piglets[J]. Feed Industry, 2025, 46(2):65-71. (in Chinese)

[6]
WANG L Y, MA M T, YU Z P, et al. Preparation and identification of antioxidant peptides from cottonseed proteins[J]. Food Chemistry, 2021,352:129399.

[7]
YUAN X Y, LIU W B, WANG C C, et al. Evaluation of antioxidant capacity and immunomodulatory effects of cottonseed meal protein hydrolysate and its derivative peptides for hepatocytes of blunt snout bream (Megalobrama amblycephala)[J]. Fish & Shellfish Immunology, 2020,98:10-18.

[8]
HE Z Q, ZHANG D H, OLANYA O M. Antioxidant activities of the water-soluble fractions of glandless and glanded cottonseed protein[J]. Food Chemistry, 2020,325:126907.

[9]
ZHANG Q L, LIANG H L, XU P, et al. Effects of enzymatic cottonseed protein concentrate as a feed protein source on the growth,plasma parameters,liver antioxidant capacity and immune status of largemouth bass (Micropterus salmoides)[J]. Metabolites, 2022, 12(12):1233.

DOI

[10]
WEI J, FU Y F, FENG S N, et al. The effects of fishmeal replacement with degossypolled cottonseed protein on growth,serum biochemistry,endocrine responses,lipid metabolism,and antioxidant and immune responses in black carp (Mylopharyngodon piceus)[J]. Animals, 2025, 15(10):1404.

DOI

[11]
ZHANG G W, HE L, HU M M. Optimized ultrasonic-assisted extraction of flavonoids from Prunella vulgaris L. and evaluation of antioxidant activities in vitro[J]. Innovative Food Science & Emerging Technologies, 2011, 12(1):18-25.

[12]
YANG H L, CHEN S C, SENTHIL KUMAR K J, et al. Antioxidant and anti-inflammatory potential of hesperetin metabolites obtained from hesperetin-administered rat serum:an ex vivo approach[J]. Journal of Agricultural and Food Chemistry, 2012, 60(1):522-532.

DOI

[13]
刘建成. 棉粕寡肽发酵制备及其生物活性和营养特性研究[D]. 博士学位论文. 石河子: 石河子大学, 2018.

LIU J C. Preparation of cottonseed peptides by fermentation and study on their biological activity and nutrition characteristics[D]. Ph.D.Thesis. Shihezi: Shihezi University, 2018. (in Chinese)

[14]
WANG S X, TIAN L, LIU H J, et al. Large-Scale discovery of non-conventional peptides in maize and Arabidopsis through an integrated peptidogenomic pipeline[J]. Molecular Plant, 2020, 13(7):1078-1093.

DOI

[15]
MAESTRI E, PAVLICEVIC M, MONTORSI M, et al. Meta-analysis for correlating structure of bioactive peptides in foods of animal origin with regard to effect and stability[J]. Comprehensive Reviews in Food Science and Food Safety, 2019, 18(1):3-30.

DOI

[16]
頡宇, 张柏林, 石天玉, 等. 抗氧化肽延缓油脂氧化作用机制研究进展[J]. 中国油脂, 2021, 46(12):50-55.

JIE Y, ZHANG B L, SHI T Y, et al. Progress on action mechanism of antioxidant peptides delaying lipid oxidation[J]. China Oils and Fats, 2021, 46(12):50-55. (in Chinese)

[17]
JIE Y, ZHAO H F, ZHANG B L. The role of an acidic peptide in controlling the oxidation process of walnut oil[J]. Foods, 2019, 8(10):499.

DOI

[18]
韩蕈泽, 于文珺, 张雨, 等. 南瓜籽抗氧化肽的制备表征及其对H2O2损伤Caco-2细胞的保护作用[J]. 食品科学, 2025, 46(18):146-154.

HAN X Z, YU W J, ZHANG Y, et al. Preparation and characterization of antioxidant peptides from pumpkin seeds and their protective effect against H2O2-induced damage in Caco-2 cells[J]. Food Science, 2025, 46(18):146-154. (in Chinese)

[19]
KIM S K, KIM Y T, BYUN H G, et al. Isolation and characterization of antioxidative peptides from gelatin hydrolysate of Alaska pollack skin[J]. Journal of Agricultural and Food Chemistry, 2001, 49(4):1984-1989.

DOI

[20]
YUAN X H, ZHANG M H, AO J X, et al. NUCKS1 is a novel regulator of milk synthesis in and proliferation of mammary epithelial cells via the mTOR signaling pathway[J]. Journal of Cellular Physiology, 2019, 234(9):15825-15835.

DOI

[21]
MOURA C S, LOLLO P C B, MORATO P N, et al. Bioactivity of food peptides:biological response of rats to bovine milk whey peptides following acute exercise[J]. Food & Nutrition Research, 2017, 61(1):1290740.

[22]
JIN D X, LIU X L, ZHENG X Q, et al. Preparation of antioxidative corn protein hydrolysates,purification and evaluation of three novel corn antioxidant peptides[J]. Food Chemistry, 2016,204:427-436.

[23]
XING J, ZHANG M D, LIN S Y. The research progress of immunomodulatory peptides[C]// 4th International Conference on Machinery,Materials and Computing Technology (ICMMCT 2016).[S.l.]:Atlantis Press,2016:1480-1484.

[24]
FULTON K M, BALTAT I, TWINE S M. Immunoproteomics methods and techniques[J]. Methods in Molecular Biology, 2024,2024:25-58.

[25]
FREEMAN S A, GRINSTEIN S. Phagocytosis:receptors,signal integration,and the cytoskeleton[J]. Immunological Reviews, 2014, 262(1):193-215.

DOI

[26]
COCKRAM T O J, DUNDEE J M, POPESCU A S, et al. The phagocytic code regulating phagocytosis of mammalian cells[J]. Frontiers in Immunology, 2021,12:629979.

[27]
李锦弘, 郑慧珍, 陈慧, 等. 牡蛎肽对RAW264.7巨噬细胞的免疫调节作用[J]. 食品与发酵工业, 2023, 49(22):49-56.

DOI

LI J H, ZHENG H Z, CHEN H, et al. The immunomodulatory effects of oyster peptide on mouse RAW264.7 cells[J]. Food and Fermentation Industries, 2023, 49(22):49-56. (in Chinese)

DOI

[28]
郑乃珍, 郑小香, 李萍, 等. 猴头菇多糖对小鼠脾淋巴细胞体外增殖及细胞周期的影响[C]// 福建省畜牧兽医学会2015年学术年会论文集. 厦门: 福建省畜牧兽医学会,2015:86-91.

ZHENG N Z, ZHENG X X, LI P, et al. Effects of monkey head mushroom polysaccharides on proliferation and cell cycle of mouse splenic lymphocytes in vitro[C]// Proceedings of the 2015 Academic Annual Meeting of Fujian Society of Animal Husbandry and Veterinary Medicine. Xiamen: Fujian Society of Animal Husbandry and Veterinary Medicine,2015:86-91. (in Chinese)

[29]
陈赛红, 衣伟萌, 闵思明, 等. 太子参参须提取物对免疫抑制小鼠的免疫调节作用[J]. 中国兽医杂志, 2023, 59(6):138-143.

CHEN S H, YI W M, MIN S M, et al. Immunomodulatory effects of Radix Pseudostellariae fibrous root extract on immunosuppressed mice[J]. Chinese Journal of Veterinary Medicine, 2023, 59(6):138-143. (in Chinese)

[30]
BRODIN P, DAVIS M M. Human immune system variation[J]. Nature Reviews Immunology, 2017, 17(1):21-29.

DOI PMID

[31]
牛甜, 杨帅, 段宏伟, 等. 菊粉对巨噬细胞RAW 264.7免疫活性的影响[J]. 天然产物研究与开发, 2025, 37(1):10-17.

DOI

NIU T, YANG S, DUAN H W, et al. Effect of inulin on the immune activity of RAW 264.7 macrophages[J]. Natural Product Research and Development, 2025, 37(1):10-17. (in Chinese)

DOI

[32]
叶蕾, 阎洁, 张文, 等. 文蛤寡肽对RAW264.7细胞的免疫调节作用[J]. 水产学报, 2019, 43(2):410-418.

YE L, YAN J, ZHANG W, et al. Immunomodulatory effects of Meretrix meretrix oligopeptides on RAW264.7 cells[J]. Journal of Fisheries of China, 2019, 43(2):410-418. (in Chinese)

[33]
MURPHY E J, REZOAGLI E, POGUE R, et al. Immunomodulatory activity of β-glucan polysaccharides isolated from different species of mushroom-a potential treatment for inflammatory lung conditions[J]. The Science of the Total Environment, 2022,809:152177.

[34]
陶宏卫, 夏爱鸿, 陈祥. 白细胞介素-2在牛感染性疾病中的作用[J]. 中国动物传染病学报, 2022, 30(6):189-193.

TAO H W, XIA A H, CHEN X. Functions of bovine IL-2 in infectious diseases[J]. Chinese Journal of Veterinary Parasitology, 2022, 30(6):189-193. (in Chinese)

[35]
王宇晴, 徐晓涵, 朱明慧, 等. 茶叶渣抗氧化肽的分离纯化、鉴定及其活性测定[J]. 食品科学, 2025, 46(5):142-150.

WANG Y Q, XU X H, ZHU M H, et al. Isolation,purification,identification and activity of antioxidant peptides from tea residue[J]. Food Science, 2025, 46(5):142-150. (in Chinese)

[36]
向延旭, 孙诗文, 雍伟, 等. 基于网络药理学的枸杞多糖调节免疫靶点和通路研究[J]. 饲料工业, 2025, 46(15):182-189.

XIANG Y X, SUN S W, YONG W, et al. Exploring targets and pathways of immunomodulation by Lycium barbarum polysaccharide based on network pharmacology[J]. Feed Industry, 2025, 46(15):182-189. (in Chinese)

[37]
TONOLO F, MORETTO L, GRINZATO A, et al. Fermented soy-derived bioactive peptides selected by a molecular docking approach show antioxidant properties involving the Keap1/Nrf2 pathway[J]. Antioxidants, 2020, 9(12):1306.

DOI

[38]
ZHU Z Q, XU Z W, LI Y H, et al. Antioxidant function and application of plant-derived peptides[J]. Antioxidants, 2024, 13(10):1203.

DOI

[39]
王子俊, 徐鹏飞, 朱天晴, 等. 牦牛骨胶原蛋白肽的抗氧化活性验证、稳定性评估及机制分析[J]. 食品与发酵工业, 2025, 51(19):126-134.

DOI

WANG ZI J, XU P F, ZHU T Q, et al. Validation of antioxidant activity, stability assessment and mechanism analysis of yak bone collagen peptides[J]. Food and Fermentation Industries, 2025, 51(19):126-134. (in Chinese)

[40]
PAGGI J M, PANDIT A, DROR R O. The art and science of molecular docking[J]. Annual Review of Biochemistry, 2024, 93(1):389-410.

DOI PMID

[41]
PANTSAR T, POSO A. Binding affinity via docking:fact and fiction[J]. Molecules, 2018, 23(8):1899.

DOI

[42]
YU Z P, WANG Y X, SHUIAN D, et al. Identification and molecular mechanism of novel immunomodulatory peptides from gelatin hydrolysates:molecular docking,dynamic simulation,and cell experiments[J]. Journal of Agricultural and Food Chemistry, 2023, 71(6):2924-2934.

DOI

[43]
MAO H M, ZHAO X C, SUN S C. NF-κB in inflammation and cancer[J]. Cellular & Molecular Immunology, 2025, 22(8):811-839.

[44]
YAMI H A, TAHMOORESPUR M, JAVADMANESH A, et al. The immunomodulatory effects of lactoferrin and its derived peptides on NF-κB signaling pathway:a systematic review and Meta-analysis[J]. Immunity,Inflammation and Disease, 2023, 11(8):e972.

DOI

文章导航

/