相关研究

8株野生动物园爬行动物冬眠后初粪源乳酸菌的分离鉴定及益生特性评估

  • 丁香 , 1 ,
  • 孙浩然 1, * ,
  • 伍国宏 1 ,
  • 王海燕 2 ,
  • 叶思明 3 ,
  • 刘文博 , 1, 4, **
展开
  • 1 扬州大学兽医学院,扬州 225009
  • 2 江苏农牧科技职业学院,泰州 225300
  • 3 南京金牛湖野生动物王国,南京 211524
  • 4 江苏省动物重要疫病与人兽共患病防控协同创新中心,扬州 225009
** 刘文博,副教授,硕士生导师,E-mail:

* 同等贡献作者

丁 香(2001—),女,江苏盐城人,硕士研究生,从事动物疾病诊疗与防控研究。E-mail:

Office editor: 武海龙

收稿日期: 2025-07-31

  网络出版日期: 2026-02-12

基金资助

江苏省优势学科第四期(2021)

扬州大学大学生创新创业训练计划(XCX20240823)

Isolation, Identification and Probiotic Characteristics Evaluation of 8 Strains of Lactic Acid Bacteria from Post-Hibernation Initial Feces of Reptiles in a Wild Animal Zoo

  • DING Xiang , 1 ,
  • SUN Haoran 1, * ,
  • WU Guohong 1 ,
  • WANG Haiyan 2 ,
  • YE Siming 3 ,
  • LIU Wenbo , 1, 4, **
Expand
  • 1 College of Veterinary Medicine, Yangzhou University, Yangzhou 225009, China
  • 2 Jiangsu Vocational College of Agriculture and Animal Husbandry, Taizhou 225300, China
  • 3 Nanjing Jinniu Lake Wildlife Kingdom, Nanjing 211524, China
  • 4 Jiangsu Co-Innovation Center for Prevention and Control of Important Animal Infectious Diseases and Zoonoses, Yangzhou 225009, China
** associate professor, E-mail:

* Contributed equally

Received date: 2025-07-31

  Online published: 2026-02-12

摘要

为筛选具有应用价值的乳酸菌,本研究从多种爬行动物冬眠后初粪中分离菌株,并进行鉴定及益生特性评价,以期获得微生态制剂候选株。采用平板划线法从25份爬行动物粪便样本中分离菌株,经溶血试验排除潜在致病菌后,结合生化鉴定与16S rRNA基因序列分析进行菌株鉴定。对筛选菌株分析其益生特性,包括生长和产酸能力、耐酸和耐胆盐能力、药敏性、抑菌活性及自凝性和疏水性,并通过动物安全性试验评估候选菌株安全性。结果表明,成功分离鉴定出8株乳酸菌,分别为4株粪肠球菌(Enterococcus faecalis),1株乳酸明串珠菌(Leuconostoc lactis),1株发酵乳杆菌(Lactobacillus fermentum),1株河流漫游球菌(Vagococcus fluvialis),1株屎肠球菌(Enterococcus faecium)。8株乳酸菌在培养24 h后菌液pH均在4.5以下,产酸能力良好。8株乳酸菌均对氯霉素和氨苄西林敏感。菌株L25产酸能力、耐酸和耐胆盐能力以及对金黄色葡萄球菌、大肠杆菌和沙门氏菌的抑制能力均优于其他菌株。动物安全性试验表明,菌株L25和L30安全性良好。综上所述,本研究从多种爬行动物粪便中分离出8株乳酸菌,其中菌株L25具有良好的益生特性,可作为制备微生态制剂的候选菌株。

本文引用格式

丁香 , 孙浩然 , 伍国宏 , 王海燕 , 叶思明 , 刘文博 . 8株野生动物园爬行动物冬眠后初粪源乳酸菌的分离鉴定及益生特性评估[J]. 动物营养学报, 2026 , 38(2) : 1569 -1580 . DOI: 10.12418/CJAN2026.125

Abstract

The objective of this study was to screen lactic acid bacteria with application value, isolated the strains from the post-hibernation initial feces of different reptiles, identified and evaluated the probiotic characteristics, to obtain candidate strains for microecological preparations. Strains were isolated from 25 reptile fecal samples using the plate streaking method, the potential pathogenic strains were excluded via hemolysis testing, the strains were identified based on biochemical characteristics and 16S rRNA gene sequence analysis. The screened strains were subjected to probiotic property assessments, including growth and acid production capacity, acid and bile salt tolerance capacity, antibiotic susceptibility, antibacterial activity, and auto-aggregation and hydrophobicity, and the safety of the candidate strains was evaluated via animal safety test. The results showed that 8 strains of lactic acid bacteria were successfully isolated and identified, with 4 strains of Enterococcus faecalis, 1 strain of Leuconostoc lactis, 1 strain of Lactobacillus fermentum, 1 strain of Vagococcus fluvialis, and 1 strain of Enterococcus faecium, respectively. The pH of bacterial suspensions of 8 strains of lactic acid bacteria was below 4.5 after 24 hours cultivation, indicated good acid production capacity. The 8 strains of lactic acid bacteria were sensitive to chloramphenicol and ampicillin. Strain L25 demonstrated superior performance compared to other strains in acid production capacity, acid and bile salt tolerance capacity and inhibitory capacity against Staphylococcus aureus, Escherichia coli and Salmonella. The animal safety test showed that strains L25 and L30 were safe. In conclusion, this study isolated 8 strains of lactic acid bacteria from the feces of various reptiles, among them, strain L25 possesses good probiotic properties, and can be considered a candidate strain for microecological preparations.

在动物生产中,抗生素在抑制病原微生物生长繁殖的同时,其滥用所引发的食品安全问题与耐药菌传播风险持续加剧[1]。因此,研发能够减少对抗生素的依赖并实现其功能替代的解决方案,已成为科研工作者当前亟待解决的问题。益生菌可以通过调节肠道菌群、增强免疫力、抑制有害菌定植等方式,成为替代抗生素的新策略[2]。乳酸菌(lactic acid bacteria,LAB)是重要的益生菌,在维持宿主肠道稳态、促进营养代谢及调节免疫等方面发挥关键作用[3-4]。乳酸菌包括乳酸菌属、乳球菌属、片球菌属、肠球菌属和链球菌属[5],普遍存在于动物肠道和植物体表及附生环境中[6]
在各种常见家养动物中已有大量关于乳酸菌的分离鉴定及生物学功能的研究。吴晓婷等[7]从健康断奶仔猪粪便中筛选出10株产酸能力较强的唾液乳杆菌,具有良好的益生特性。李元元等[8]从断奶中国荷斯坦犊牛直肠粪便中分离出益生特性较好的罗伊氏乳杆菌和约氏乳杆菌,可作为牛源乳酸菌微生态制剂的候选株。Khurajog等[9]从鸡粪中分离出5株耐酸、耐胆盐和苯酚且对沙门氏菌具有明显抑制效果的乳酸菌,可作为家禽益生菌株的候选株。爬行动物具有变温代谢机制、特殊食性及冬眠行为,目前针对这类动物粪便中乳酸菌的分离鉴定及益生特性的研究鲜有报道。仅有的研究表明,养殖蛇类和河口鳄的肠道微生物群组成与哺乳动物和鸟类均有区别[10-11]。因此,本研究以野生动物园中的黄金蟒、蜥蜴、乌龟为代表类群,采集了25份爬行动物的粪便样本,分离乳酸菌,旨在筛选具有良好耐受性和安全性的爬行动物源乳酸菌,并对其益生特性进行评估,为爬行动物肠道乳酸菌的研究和开发新型益生菌资源提供基础和理论依据。

1 材料与方法

1.1 试验材料

1.1.1 样品采集

2025年3月,在江苏某野生动物园采集了25份来自不同爬行动物的冬眠后新鲜初粪样本,样本来源动物分别为:王锦蛇、蓝舌石龙子、缅甸蟒、缅甸陆龟、加州王蛇、盾甲蜥、白化网纹蟒、布鲁克王蛇、黄金蟒、肥尾守宫、红尾蚺(小1)、绿鬣蜥、红尾蚺(小2)、红鬣蜥、黄缘闭壳龟、黑白泰加、鬃狮蜥、苏卡达龟、红尾蚺(小3)、斑帆蜥、玉米蛇、网纹蟒、布鲁克王蛇、红尾蚺(大1)和红尾蚺(大2)。粪便样本置于无菌自封袋中,冰盒保存条件下迅速转运至实验室进行后期操作。

1.1.2 致病菌株和试验动物

金黄色葡萄球菌(Staphylococcus aureus)耐药株MRSA-J1、鼠伤寒沙门氏菌(Salmonella typhimurium)、铜绿假单胞菌(Pseudomonas aeruginosa)和大肠杆菌(Escherichia coli)由本实验室分离保存。6周龄无特定病原体(SPF)级BALB/c小鼠,体重(17±2) g,购于扬州大学比较医学研究中心,实验动物生产许可证号:SCXK(苏)2022-0009。

1.1.3 主要试剂

MRS肉汤、革兰染色试剂盒和胆盐均购自北京索莱宝科技有限公司;2×Taq PCR Mastermix Ⅱ和细菌基因组DNA提取试剂盒购自天根生物科技(北京)有限公司;血平板购自常德比克曼生物科技有限公司;乳酸菌生化鉴定管和抗生素药敏片购自杭州微生物试剂有限公司。

1.2 试验方法

1.2.1 乳酸菌分离、筛选及纯化

分别称取0.5 g不同爬行动物的粪便样本,接种于装有5 mL已灭菌MRS肉汤的离心管中,37 ℃厌氧培养18 h增菌。选取浑浊的培养液,在MRS肉汤平板上进行三区划线,37 ℃厌氧倒置培养过夜。挑取形态不同的单菌落,经连续4~5代划线纯化,直至获得形态均一稳定的单菌落。对分离出的不同形态菌落进行革兰染色及镜检,观察其形态特征。

1.2.2 溶血试验

将分离得到的单菌落用MRS肉汤活化培养后,吸取3 μL菌液点涂接种于血平板表面,37 ℃厌氧倒置培养18 h后,观察是否有溶血现象。

1.2.3 生化鉴定试验

将经过鉴定不溶血的菌株接种于MRS肉汤中,37 ℃厌氧培养18 h后,用接种针取菌液接种至微量生化反应管,同条件继续培养24 h。观察各管颜色变化,参照《肠杆菌科细菌生化鉴定条使用说明书》判定结果。

1.2.4 16S rRNA基因序列鉴定试验

用细菌基因组DNA提取试剂盒提取分离乳酸菌的DNA,以提取的DNA为模板,采用PCR技术扩增16S rRNA基因,引物为27-F(5'-AGAGTTTGATCCTGGCTCAG-3')和1492-R(5'-TACGGTTACCTTGTTACGACTT-3'),由苏州安升达生物科技有限公司合成。PCR反应体系20 μL:上、下游引物各1 μL,2×Taq PCR Mastermix Ⅱ 10 μL,模板3 μL,ddH2O 5 μL。反应条件:94 ℃预变性30 s;98 ℃变性10 s,55 ℃退火30 s,72 ℃延伸1 min,共25个循环;72 ℃延伸5 min。PCR产物经1.0%琼脂糖凝胶电泳检测,目标片段约1 500 bp。采用琼脂糖凝胶DNA回收试剂盒对阳性条带进行回收提纯,将纯化产品送至苏州安升达生物科技有限公司测序,结果经NCBI/BLAST同源性比对以鉴定菌株。

1.2.5 生长和产酸试验

以MRS肉汤作为空白对照,将分离菌株以2%接种率接种于MRS肉汤中,于37 ℃进行厌氧培养。分别在培养0、2、4、6、8、10、12、24和36 h时取样,每个菌株设3个重复,测定菌液600 nm处吸光度(OD600)值,以时间为横坐标,OD600值为纵坐标,使用GraphPad Prism 9.5绘制乳酸菌的生长曲线;每个菌株设3个重复,测定菌液pH,以时间为横坐标,pH为纵坐标,使用GraphPad Prism 9.5绘制乳酸菌的产酸曲线。

1.2.6 耐酸和耐胆盐试验

参照吴晓婷等[7]所述方法,测定乳酸菌的耐酸和耐胆盐特性。将分离菌株以2%接种率分别接种于pH 3.0的MRS肉汤和含0.3%胆盐的MRS肉汤中,于37 ℃厌氧培养3 h。测定菌液OD600值,每个菌株设3个重复,以未接种菌液的MRS肉汤作为阴性对照(测定菌液OD600值),以接种菌液于正常MRS肉汤(即未调pH且未添加胆盐)作为阳性对照(测定菌液OD600值)。按以下公式计算菌株存活率:
存活率(%)=[(待测菌株OD600值-阴性对照OD600值)/(阳性对照OD600值-阴性对照OD600值)]×100。

1.2.7 体外抑菌试验

采用牛津杯法评估分离菌株的抑菌活性。以金黄色葡萄球菌耐药株MRSA-J1、鼠伤寒沙门氏菌、铜绿假单胞菌和大肠杆菌作为指示菌,活化后均匀涂布于LB琼脂平板上,放置牛津杯并固定,向杯内加入200 μL过夜培养的乳酸菌菌液,37 ℃培养24 h后,测量抑菌圈直径。

1.2.8 药敏试验

采用Kirby-Bauer(K-B)纸片扩散法评估分离菌株的抗生素敏感性。将过夜培养的乳酸菌菌液均匀涂布于Mueller-Hinton(MH)琼脂平板上,待表面干燥后,无菌镊取10种药敏纸片,均匀贴于琼脂表面。于37 ℃厌氧培养24 h后,测量抑菌圈直径。分离菌株的药物敏感性判定参照美国临床实验室标准化协会(CLSI)抗菌药物敏感性试验执行标准(表1)。
表1 药敏片种类、含药量及抑菌圈直径判断标准

Table 1 Types of drug sensitive tablets, drug loading and standard of inhabitation zone diameter

项目
Items
含药量
Drug loading
抑菌圈直径判断标准
Standard of inhabitation zone diameter/mm
R I S
卡那霉素Kanamycin 30 μg/片 ≤13 14~17 ≥18
庆大霉素Gentamicin 10 μg/片 ≤12 13~14 ≥15
氨苄西林Ampicillin 10 μg/片 ≤13 14~16 ≥17
头孢噻肟Cefotaxime 30 μg/片 ≤14 15~22 ≥23
青霉素Penicillin 10 U/片 ≤18 19~28 ≥29
多黏菌素B Polymyxin B 300 U/片 ≤8 8~11 ≥12
四环素Tetracycline 30 μg/片 ≤14 15~18 ≥19
红霉素Erythromycin 15 μg/片 ≤13 14~22 ≥23
恩诺沙星Enrofloxacin 10 μg/片 ≤16 17~22 ≥23
氯霉素Chloramphenicol 30 μg/片 ≤12 13~17 ≥18

R表示耐药,I表示中介,S表示敏感。表6同。

R indicated resistant, I indicated intermediate, and S indicated sensitive. The same as Table 6.

1.2.9 自凝性和疏水性试验

将分离菌株接种至MRS肉汤厌氧培养18 h后,离心(5 000×g、5 min)收集菌体,用磷酸盐缓冲液(PBS)洗涤后再用PBS重悬,调节菌悬液的OD600值为0.6±0.1,记为A0。将调节后的菌悬液涡旋振荡后置于37 ℃静置,分别于1、3、5 h时测定菌悬液的OD600值,记为At。另取上述PBS重悬菌液,与等量二甲苯涡旋混匀,室温静置30 min待分层后,吸取下层水相,测定其OD600值,记为A1。自凝集率和疏水率计算公式如下:
自凝集率(%)=[(A0-At)/A0]×100;
疏水率(%)=[(A0-A1)/A0]×100。

1.2.10 动物安全性试验

参照王楠等[12]所述方法,将15只BALB/c小鼠经过7 d适应性饲养后,随机分为3组,每组5只。选取具有潜在应用价值的2株乳酸菌(L25和L30)作为考察菌株。2株乳酸菌于MRS肉汤培养24 h后,离心后以无菌生理盐水洗涤,再重悬于等体积的生理盐水,调至浓度为1.0×10⁹ CFU/mL。对照组(L0组)每日灌胃200 μL生理盐水,2个试验组(L25组和L30组)分别灌胃等体积的相应乳酸菌悬液。连续处理7 d,每日记录各组小鼠存活情况、体重变化、毒性迹象和临床症状(包括采食、饮水、被毛状态),7 d后对小鼠进行剖检,对2株乳酸菌的体内安全性进行评价。

2 结果与分析

2.1 分离纯化与形态观察

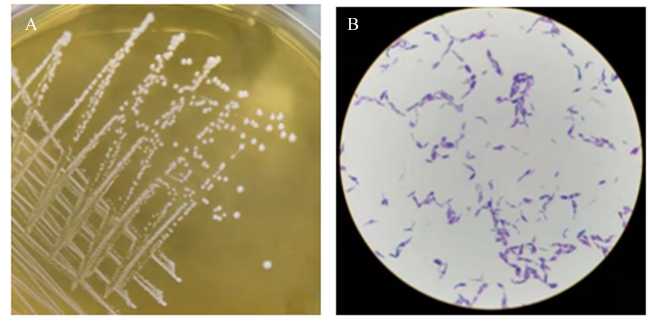
通过分离纯化,在不同野生动物的粪便样本中得到31株疑似乳酸菌,菌株依次编号为L1~L31(表2)。菌落呈乳白色,表面光滑湿润且边缘整齐(图1-A);革兰染色呈阳性、菌株形态为杆状或球状(图1-B)。
表2 菌株样本信息

Table 2 Strain sample information

菌株编号
Strain numbers
来源动物
Source animal
菌株编号
Strain numbers
来源动物
Source animal
L1 王锦蛇 L17 红鬣蜥
L2 蓝舌石龙子 L18 黄缘闭壳龟
L3 缅甸蟒 L19 黑白泰加
L4 缅甸陆龟 L20 鬃狮蜥
L5 加州王蛇 L21 鬃狮蜥
L6 加州王蛇 L22 苏卡达龟
L7 盾甲蜥 L23 红尾蚺(小3)
L8 白化网纹蟒 L24 斑帆蜥
L9 布鲁克王蛇 L25 斑帆蜥
L10 布鲁克王蛇 L26 玉米蛇
L11 黄金蟒 L27 网纹蟒
L12 肥尾守宫 L28 网纹蟒
L13 红尾蚺(小1) L29 布鲁克王蛇
L14 绿鬣蜥 L30 红尾蚺(大1)
L15 绿鬣蜥 L31 红尾蚺(大2)
L16 红尾蚺(小2)
图1 部分菌株形态

A:菌落形态;B:革兰染色镜检结果(1 000×)。

Fig.1 Morphology of partial strains

A: colony morphology; B: results of Gram stain microscopy (1 000×).

2.2 溶血试验结果

不同菌株在血琼脂平板上的生长情况如图2所示,其中2株菌株有明显溶血环,剩余29株菌株并未出现溶血现象,用于后续试验。
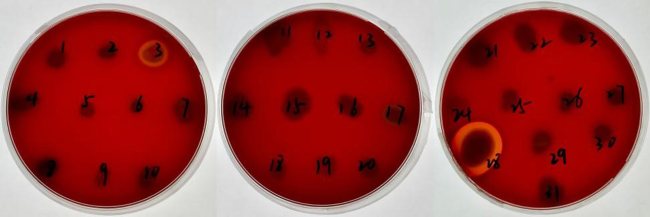
图2 菌株的溶血活性

Fig.2 Hemolytic activity of strains

2.3 部分菌株生化鉴定结果

表3可知,代表菌株均可以发酵菊糖、纤维二糖、葡萄糖、乳糖、麦芽糖和明胶,而部分代表菌株不能发酵山梨醇、七叶苷、水杨酸、甘露醇和棉子糖,生化鉴定结果均大致符合乳酸菌的生化特性。
表3 部分菌株生化鉴定结果

Table 3 Results of physiological and biochemical identification of partial strains

项目
Items
菌株Strains
L4 L13 L14 L25 L26 L27 L29 L30
七叶苷Esculin + + + + - + + +
纤维二糖Cellobiose + + + + + + + +
麦芽糖Maltose + + + + + + + +
甘露醇Mannitol + + + - - + + +
水杨酸Salicin - - + - - - + +
山梨醇Sorbitol + + + + - + + +
蔗糖Sucrose + + + + + + + -
棉子糖Raffinose + + + + + - - +
菊糖Inulin + + + + + + + +
乳糖Lactose + + + + + + + +
马尿酸钠Sodium hippurate - - - - - - - -
葡萄糖Glucose + + + + + + + +
硫化氢Hydrogen sulfide - - - - - - - -
明胶Gelatin + + + + + + + +

+表示阳性,-表示阴性。

+ means positive, and - means negative.

2.4 16S rRNA基因鉴定结果

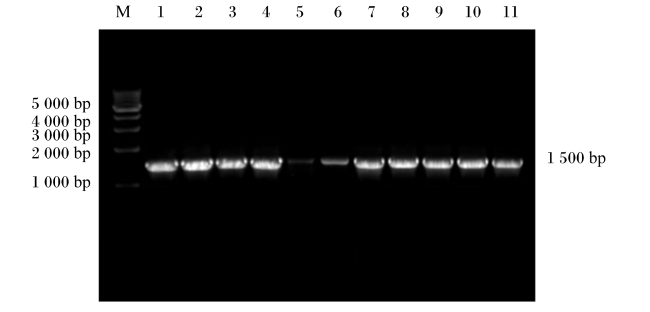
16S rRNA基因PCR扩增产物经1.0%琼脂糖凝胶电泳分析,在约1 500 bp位置可见单一且清晰的条带(图3)。将测序所得序列在NCBI/BLAST比对,由表4可知,本试验共分离获得8株乳酸菌,可分为5个种属,其中4株粪肠球菌(Enterococcus faecalis),1株乳酸明串珠菌(Leuconostoc lactis),1株发酵乳杆菌(Lactobacillus fermentum),1株河流漫游球菌(Vagococcus fluvialis),1株屎肠球菌(Enterococcus faecium)。
图3 16S rRNA基因鉴定结果

M: DNA分子质量标准物;1~11:部分菌株。

Fig.3 Identification results of 16S rRNA gene

M: DNA marker; 1 to 11: partial strains.

表4 乳酸菌的鉴定结果

Table 4 Identification results of lactic acid bacteria

菌株编号
Strain numbers
来源动物
Source animal
NCBI/BLAST对比结果NCBI/BLAST comparison results
同源性最高的菌株(登录号)
Strain with the highest homology
(accession number)
同源性
Homology/%
L4 缅甸陆龟 乳酸明串珠菌(MN441156.1) 99.19
L13 红尾蚺(小1) 粪肠球菌(KX057668.1) 99.07
L14 绿鬣蜥 屎肠球菌(MF369848.1) 98.66
L25 斑帆蜥 粪肠球菌(MT740412.1) 97.66
L26 玉米蛇 发酵乳杆菌(PP140943.1) 99.90
L27 网纹蟒 粪肠球菌(OP420683.1) 99.09
L29 布鲁克王蛇 粪肠球菌(PV384073.1) 99.35
L30 红尾蚺(大1) 河流漫游球菌(CP081461.1) 98.34

2.5 生长和产酸试验结果

图4-A所示,8株乳酸菌在MRS肉汤中均遵循S型曲线特征,接种后2~6 h,各菌株陆续进入对数生长期,8~12 h进入稳定期。同时,菌株L25生长峰值略高于其他菌株,菌株L26后期OD600值下降更明显,反映不同菌株对MRS培养基的适应能力和抗逆性差异。
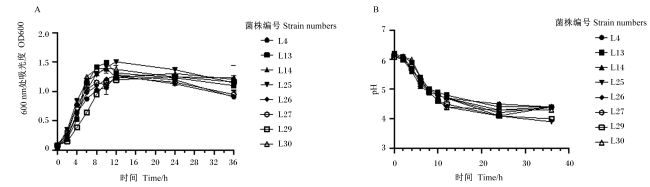
图4 乳酸菌的生长和产酸曲线

A:乳酸菌的生长曲线;B:乳酸菌的产酸曲线。

Fig.4 Growth and acid production curves of lactic acid bacteria

A: growth curves of lactic acid bacteria; B: acid production curves of lactic acid bacteria.

图4-B所示,8株乳酸菌在0~10 h内,各菌株培养液pH随时间快速下降,表明各乳酸菌快速进入对数生长期,产酸能力增强;其中,菌株L13和L29在0~12 h内的pH下降更明显,展现出快速产酸的能力;10 h后,各菌株培养液pH下降幅度趋于平缓;36 h后,各菌株培养液pH集中在3.9~4.5。

2.6 耐酸和耐胆盐试验结果

图5-A所示,8株乳酸菌在pH 3.0的MRS肉汤中,菌株L25的存活率高达47%,菌株L30的存活率为39%,表现出较强的耐酸能力;菌株L14的存活率仅为14%,抗逆性较差;菌株L13、L26、L27和L29的存活率在20%~30%,呈现中等程度的耐酸能力。
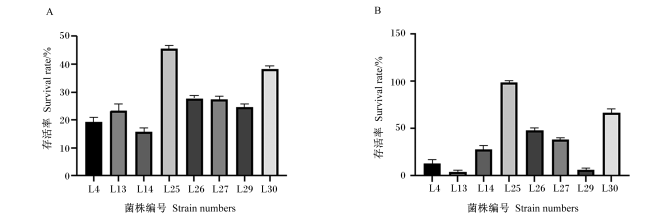
图5 乳酸菌的耐酸和耐胆盐试验结果

A:乳酸菌耐酸能力;B:乳酸菌耐胆盐能力。

Fig.5 Results of acid and bile salt tolerance tests of lactic acid bacteria

A: acid tolerance of lactic acid bacteria; B: bile salt tolerance of lactic acid bacteria.

图5-B所示,8株乳酸菌在0.3%胆盐浓度的MRS肉汤中,菌株L25的存活率高达98%,菌株L30的存活率为65%,表现出较强的耐胆盐能力;菌株L13和L29的存活率不足10%,菌株L4、L14、L26、L27的存活率分别处于低、中水平,体现出不同程度的耐胆盐能力。

2.7 体外抑菌试验结果

表5可知,8株乳酸菌对4种指示菌有不同程度的抑制作用;其中,菌株L25对金黄色葡萄球菌耐药株MRSA-J1和大肠杆菌的抑制作用最强;菌株L14对铜绿假单胞菌的抑制作用较强;菌株L25对鼠伤寒沙门氏菌抑制作用最强。多数菌株对金黄色葡萄球菌耐药株MRSA-J1和鼠伤寒沙门氏菌的抑制作用强于对铜绿假单胞菌和大肠杆菌。这表明此次分离的乳酸菌对多种常见致病菌均表现出不同程度的抗菌活性。
表5 抑菌圈直径

Table 5 Inhibition zone diametersmm

菌株编号
Strain
numbers
指示菌Indicator bacteria
金黄色葡萄球菌
耐药株MRSA-J1
Staphylococcus aureus
drug-resistant strain MRSA-J1
铜绿假单胞菌
Pseudomonas
aeruginosa
大肠杆菌
Escherichia coli
鼠伤寒沙门氏菌
Salmonella
typhimurium
L4 19.03±0.12 8.75±0.16 12.06±0.08 22.79±0.71
L13 20.56±0.27 12.18±0.20 9.72±0.15 14.34±0.06
L14 19.09±0.25 14.49±0.33 13.42±0.17 18.22±0.67
L25 22.32±0.14 9.11±0.12 15.79±0.14 21.54±0.32
L26 17.73±0.38 7.69±0.42 10.84±0.15 13.42±0.09
L27 16.08±0.62 8.96±0.57 9.07±0.25 12.75±0.43
L29 13.92±0.17 18.25±0.15 11.35±0.67 13.44±0.74
L30 18.14±0.09 9.03±0.52 11.26±0.49 10.93±0.23

2.8 药敏试验结果

表6可知,采用纸片扩散法评估8株乳酸菌的抗生素敏感性,氯霉素、氨苄西林对所有菌株均敏感;卡那霉素、庆大霉素、多肽类多黏菌素B对所有菌株均耐药;其余药物对菌株呈现不同程度的耐药或敏感,表明分离的乳酸菌对不同抗生素的敏感性具多样性,总体酰胺醇类及部分β-内酰胺类抗菌活性较好,氨基糖苷类、多肽类普遍耐药。
表6 药敏试验结果

Table 6 Drug susceptibility test results

项目
Items
菌株编号Strain numbers
L4 L13 L14 L25 L26 L27 L29 L30

氨基糖苷类
Aminoglycosides
卡那霉Kanamycin R R R R R R R R
庆大霉素Gentamicin R R R R R R R R


β-内酰胺类
β-lactams
氨苄西林Ampicillin S S S S S S S S
头孢噻肟Cefotaxime I I R I I I I S
青霉素Penicillin R R I S S S S S
多肽类
Lipopeptides
多黏菌素B Polymyxin B R R R R R R R R
四环素类
Tetracyclines
四环素Tetracycline R S S S R R R R
大环内酯类
Macrolides
红霉素Erythromycin R R R I I R R I
喹诺酮类
Quinolones
恩诺沙星Enrofloxacin I I I S R I I R
酰胺醇类
Amphenicols
氯霉素Chloramphenicol S S S S S S S S

2.9 自凝性和疏水性试验结果

图6所示,8株乳酸菌的自凝集率随培养时间延长呈上升趋势,培养5 h时均值达40%以上;8株乳酸菌的疏水率差异明显,菌株L4、L13的疏水率接近40%。
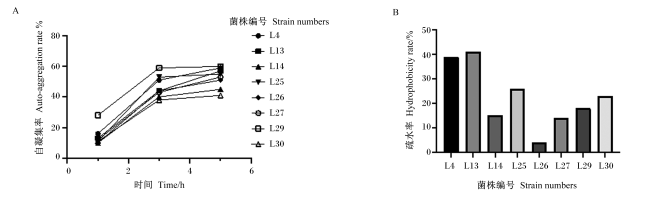
图6 乳酸菌的自凝性和疏水性试验结果

A:乳酸菌的自凝集率;B:乳酸菌的疏水率。

Fig.6 Results of auto-aggregation and hydrophobicity of lactic acid bacteria

A: auto-agglutination rate of lactic acid bacteria; B: hydrophobic rate of lactic acid bacteria.

2.10 动物安全性试验结果

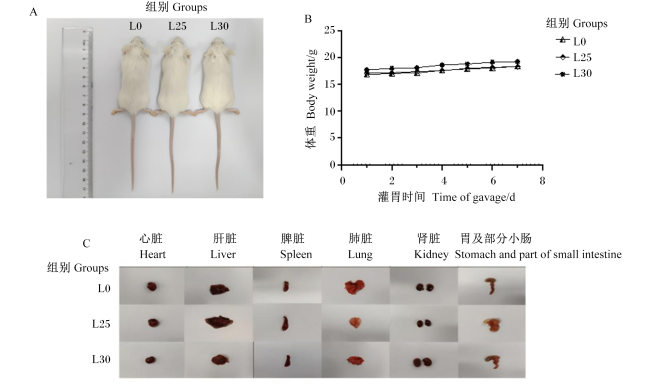
鉴于菌株L25和L30的体外益生特性和抗逆性能力突出,且菌株L25能抑制金黄色葡萄球菌耐药株MRSA-J1的生长,选取菌株L25和L30开展动物安全性试验。结果表明,试验期间,试验组小鼠生长状况良好,饮食正常,毛发干洁且富有光泽(图7-A),未观察到急性中毒体征和死亡表现,菌株L25和L30对小鼠体重无显著影响(图7-B)。解剖后未见明显脏器病理学改变(图7-C)。这表明选取的乳酸菌对小鼠具有良好的安全性,未引发不良反应。
图7 乳酸菌的动物安全性试验结果

A:小鼠体型;B:小鼠体重曲线;C:小鼠内脏解剖图。

Fig.7 Results of animal safety test of lactic acid bacteria

A: body size of mice; B: body weight curve of mice; C: visceral anatomical diagram of mice.

3 讨论

乳酸菌作为益生菌的重要来源,已被广泛用于开发微生态制剂,添加到食品和饲料中,或作为益生菌制剂,摄入后可促进胃肠道健康,减少毒素和抗营养物质产生[13]。爬行动物作为一类具有特殊生理特征的脊椎动物,其肠道微生物群的研究,尤其是乳酸菌的分离鉴定与功能评价鲜有报道。有研究表明,以蜥蜴、蟒蛇为代表的爬行动物肠道微生物菌群有着显著的抗癌和抗菌特性,并含有新的肠道细菌代谢物和抗菌肽[14]。且部分爬行动物的寿命远超同体型或同生态的哺乳动物,在有些情况下甚至表现出“可忽略”衰老,这可能与它们肠道微生物组密切相关[15-16]。研究发现,短吻鳄和鳄鱼在充满病原体和重金属的环境中依然能健康生长,可能与肠道微生物组密切关系[17]。因此,挖掘爬行动物肠道益生微生物资源对于动物和人类健康具有重要意义。本研究从25种爬行动物冬眠后的初次粪便中分离出8株产酸性能较好的乳酸菌,并进行益生特性和安全性研究。
乳酸菌代谢产生有机酸,降低pH,通过细胞质酸化和解离酸阴离子积累至毒性水平,抑制革兰氏阳性菌和革兰氏阴性菌生长[18-19]。因此,乳酸菌生成有机酸的能力是衡量其能否作为益生菌用于抑制病原微生物的关键因素[20]。本研究分离到的8株乳酸菌随着培养时间延长,产酸速度加快,在培养24 h后菌液pH集中在4.0~4.5,均有较强的产酸能力,对致病菌具有一定的杀灭作用。
益生菌要想完整地到达肠道并发挥作用,必须对胃肠道环境具有较强的耐受性[21]。而在生理状态下,胃液pH通常为3.0,而小肠内的胆盐含量一般维持在0.03%~0.30%[22-23]。本研究将8株乳酸菌分别在pH 3.0的MRS肉汤和胆盐浓度为0.3%的MRS肉汤中培养3 h后发现,各株菌均表现出较高的耐酸性,而耐胆盐试验中仅菌株L25和L30相对于其他5株菌株有较强的耐受性,存活率分别为98%和65%。综合评判,菌株L25和L30对酸和胆盐均有较强的抗逆性,适合在胃肠道中生存。
益生菌可以通过刺激免疫系统、争夺营养物质、产生抗菌物质来发挥抗病原活性[24]。而金黄色葡萄球菌、大肠杆菌和鼠伤寒沙门氏菌是常见的肠道致病菌[25],同时绿脓杆菌作为条件致病菌,可定植于受损的肠道黏膜而引起肠炎[26]。本研究结果表明,8株乳酸菌对4种致病菌均有不同程度的抑制作用,尤其是菌株L4、L14和L25能抑制金黄色葡萄球菌和沙门氏菌的生长,与相关报道的结果[27-28]一致。
乳酸菌需要附着在宿主的肠上皮细胞上,才能发挥抵抗病原菌的入侵、维持肠道微生物群内平衡的功能[29]。而这种附着作用与乳酸菌的疏水性和自凝性密切相关,疏水性强表明乳酸菌对肠道的黏附性强[30],自凝性强则表明乳酸菌自聚集能力强,能形成聚集体,有助于在肠道中定植并发挥益生作用[31]。本研究分离出的8株乳酸菌自凝集率在41%~60%,但表面疏水率有所差异,在4%~41%,综合评判,菌株L4、L13、L25和L30对肠道有较好的黏附性。
益生菌在目前广泛应用的背景下,它们可能成为传播抗生素耐药基因的载体[32]。因此,药敏试验对益生菌的筛选非常重要。本研究选取了10种常见抗生素对8株乳酸菌进行了药敏试验,结果表明8株乳酸菌对庆大霉素、卡那霉素和多黏菌素B完全耐药,对氨苄西林和氯霉素完全敏感,对其他5种抗生素表现出不同程度的敏感性。有研究表明,目前大多数乳酸菌含有四环素抗性基因[33],而本研究筛选出的菌株L25对四环素敏感,今后可以对其进行进一步的研究,明确该菌株敏感的分子机制。
本研究以SPF级小鼠为试验模型,对菌株L25和L30开展7 d安全性试验,期间小鼠饲喂基础饲粮并饮用清洁饮水。每日观察显示,小鼠精神状态活跃、被毛干燥光亮,未出现任何毒性迹象及死亡情况,解剖后也未发现明显的脏器病理学改变,表明菌株L25和L30对小鼠无急性毒性,初步证实其安全性良好,为后续开发应用奠定前期基础。需注意的是,本研究仅覆盖短期安全性评估,存在一定的局限性。为完善菌株的安全性评价体系,后续需延长动物试验周期,进一步验证其作为微生态制剂候选株的安全性。

4 结论

① 本研究从不同爬行动物粪便中分离得到31株疑似乳酸菌,经16S rRNA测序鉴定出8株乳酸菌,分别为4株粪肠球菌,1株乳酸明串珠菌,1株发酵乳杆菌,1株河流漫游球菌和1株屎肠球菌。
② 8株乳酸菌均不溶血,且产酸、耐酸及耐胆盐能力良好,表现出优良的体外益生潜力。其中,菌株L25的综合性能最佳,其产酸能力最强,生长性能、自凝性及疏水性优良,耐酸、耐胆盐能力突出,对金黄色葡萄球菌、大肠杆菌和沙门氏菌均有抑制作用,且对氨苄西林、氯霉素、青霉素和四环素等抗生素敏感。
③ 综上所述,菌株L25的益生特性突出,可作为制备微生态制剂的候选菌株。
[1]
SAGAR P, ASEEM A, BANJARA S K, et al. The role of food chain in antimicrobial resistance spread and one health approach to reduce risks[J]. International Journal of Food Microbiology, 2023,391/392/393:110148.

[2]
ZAMOJSKA D, NOWAK A, NOWAK I, et al. Probiotics and postbiotics as substitutes of antibiotics in farm animals:a review[J]. Animals, 2021, 11(12):3431.

DOI

[3]
YANG Q, WU Z L. Gut probiotics and health of dogs and cats:benefits,applications,and underlying mechanisms[J]. Microorganisms, 2023, 11(10):2452.

DOI

[4]
KIM K T, KIM J W, KIM S I, et al. Antioxidant and anti-inflammatory effect and probiotic properties of lactic acid bacteria isolated from canine and feline feces[J]. Microorganisms, 2021, 9(9):1971.

DOI

[5]
KEENAN S W, ELSEY R M. The good,the bad,and the unknown:microbial symbioses of the American alligator[J]. Integrative and Comparative Biology, 2015, 55(6):972-985.

DOI

[6]
ZHENG J S, WITTOUCK S, SALVETTI E, et al. A taxonomic note on the genus Lactobacillus:description of 23 novel genera,emended description of the genus Lactobacillus Beijerinck 1901,and union of Lactobacillaceae and Leuconostocaceae[J]. International Journal of Systematic and Evolutionary Microbiology, 2020, 70(4):2782-2858.

DOI

[7]
吴晓婷, 王召路, 朱莉莉, 等. 猪源益生性乳酸菌的分离鉴定及生物学特性研究[J]. 动物营养学报, 2025, 37(4):2750-2762.

DOI

WU X T, WANG Z L, ZHU L L, et al. Isolation,identification and biological characteristics of probiotic lactic acid bacteria derived from porcine[J]. Chinese Journal of Animal Nutrition, 2025, 37(4):2750-2762. (in Chinese)

[8]
李元元, 李鑫, 何泽纯, 等. 牛源乳酸菌的分离鉴定及体外益生特性研究[J]. 动物营养学报, 2024, 36(1):626-636.

DOI

LI Y Y, LI X, HE Z C, et al. Isolation and identification of lactic acid bacteria from calves and their probiotic properties in vitro[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):626-636. (in Chinese)

[9]
KHURAJOG B, DISASTRA Y, LAWWYNE L D, et al. Selection and evaluation of lactic acid bacteria from chicken feces in Thailand as potential probiotics[J]. PeerJ, 2023,11:e16637.

[10]
WILLSON N L, VAN T T H, LEVER J, et al. Characterisation of the intestinal microbiota of commercially farmed saltwater crocodiles,Crocodylus porosus[J]. Applied Microbiology and Biotechnology, 2019, 103(21/22):8977-8985.

DOI

[11]
ZHANG B, REN J, YANG D D, et al. Comparative analysis and characterization of the gut microbiota of four farmed snakes from southern China[J]. PeerJ, 2019,7:e6658.

[12]
王楠, 田晗, 张文晓, 等. 两株具有潜在益生作用的人源链球菌的安全性评价[J]. 食品与发酵工业, 2021, 47(5):12-16.

DOI

WANG N, TIAN H, ZHANG W X, et al. Safety evaluation of two strains of human Streptococcus with potential probiotics[J]. Food and Fermentation Industries, 2021, 47(5):12-16. (in Chinese)

DOI

[13]
CHILTON S N, BURTON J P, REID G. Inclusion of fermented foods in food guides around the world[J]. Nutrients, 2015, 7(1):390-404.

DOI PMID

[14]
SIDDIQUI R, MACIVER S K, KHAN N A. Gut microbiome-immune system interaction in reptiles[J]. Journal of Applied Microbiology, 2022, 132(4):2558-2571.

DOI PMID

[15]
AKBAR N, KHAN N A, SAGATHEVAN K, et al. Gut bacteria of Cuora amboinensis (turtle) produce broad-spectrum antibacterial molecules[J]. Scientific Reports, 2019, 9(1):17012.

DOI

[16]
REINKE B A, CAYUELA H, JANZEN F J, et al. Diverse aging rates in ectothermic tetrapods provide insights for the evolution of aging and longevity[J]. Science, 2022, 376(6600):1459-1466.

DOI PMID

[17]
JEYAMOGAN S, KHAN N A, SAGATHEVAN K, et al. Sera/organ lysates of selected animals living in polluted environments exhibit cytotoxicity against cancer cell lines[J]. Anti-Cancer Agents in Medicinal Chemistry, 2019, 19(18):2251-2268.

DOI PMID

[18]
CASTELLANO P, PÉREZ IBARRECHE M, BLANCO MASSANI M, et al. Strategies for pathogen biocontrol using lactic acid bacteria and their metabolites:a focus on meat ecosystems and industrial environments[J]. Microorganisms, 2017, 5(3):38.

DOI

[19]
MANI-LÓPEZ E, GARCÍA H S, LÓPEZ-MALO A. Organic acids as antimicrobials to control Salmonella in meat and poultry products[J]. Food Research International, 2012, 45(2):713-721.

DOI

[20]
MARCHWIŃSKA K, GWIAZDOWSKA D. Isolation and probiotic potential of lactic acid bacteria from swine feces for feed additive composition[J]. Archives of Microbiology, 2021, 204(1):61.

DOI PMID

[21]
LIU C, HAN F, CONG L, et al. Evaluation of tolerance to artificial gastroenteric juice and fermentation characteristics of Lactobacillus strains isolated from human[J]. Food Science & Nutrition, 2022, 10(1):227-238.

DOI

[22]
PEREZ M J, BRIZ O. Bile-acid-induced cell injury and protection[J]. World Journal of Gastroenterology, 2009, 15(14):1677-1689.

DOI

[23]
EASTWOOD G L. Effect of pH on bile salt injury to mouse gastric mucosa.A light- and electron-microscopic study[J]. Gastroenterology, 1975, 68(6):1456-1465.

DOI

[24]
DE MELO PEREIRA G V, DE OLIVEIRA COELHO B,MAGALHÑES JÚNIOR A I, et al. How to select a probiotic?A review and update of methods and criteria[J]. Biotechnology Advances, 2018, 36(8):2060-2076.

DOI

[25]
BANTAWA K, SAH S N, SUBBA L D, et al. Antibiotic resistance patterns of Staphylococcus aureus,Escherichia coli,Salmonella,Shigella and Vibrio isolated from chicken,pork,buffalo and goat meat in eastern Nepal[J]. BMC Research Notes, 2019, 12(1):766.

DOI

[26]
KAMEI A, KOH A Y, GADJEVA M, et al. Analysis of acquisition of Pseudomonas aeruginosa gastrointestinal mucosal colonization and horizontal transmission in a murine model[J]. The Journal of Infectious Diseases, 2010, 201(1):71-80.

DOI

[27]
GAVRILOVA E, ANISIMOVA E, GABDELKHADIEVA A, et al. Newly isolated lactic acid bacteria from silage targeting biofilms of foodborne pathogens during milk fermentation[J]. BMC Microbiology, 2019, 19(1):248.

DOI PMID

[28]
LI J Z, CHEN X H, XIE Z Y, et al. Screening and metabolomic analysis of lactic acid bacteria-antagonizing Pseudomonas aeruginosa[J]. Foods, 2023, 12(14):2799.

DOI

[29]
POIMENIDOU S V, SKARVELI A, SAXAMI G, et al. Inhibition of Listeria monocytogenes growth,adherence and invasion in Caco-2 cells by potential probiotic lactic acid bacteria isolated from fecal samples of healthy neonates[J]. Microorganisms, 2023, 11(2):363.

DOI

[30]
DE SOUZA B M S, BORGONOVI T F, CASAROTTI S N, et al. Lactobacillus casei and Lactobacillus fermentum strains isolated from mozzarella cheese:probiotic potential,safety,acidifying kinetic parameters and viability under gastrointestinal tract conditions[J]. Probiotics and Antimicrobial Proteins, 2019, 11(2):382-396.

DOI

[31]
RAJAB S, TABANDEH F, SHAHRAKY M K, et al. The effect of Lactobacillus cell size on its probiotic characteristics[J]. Anaerobe, 2020,62:102103.

[32]
FATAHI-BAFGHI M, NASERI S, ALIZEHI A. Genome analysis of probiotic bacteria for antibiotic resistance genes[J]. Antonie van Leeuwenhoek, 2022, 115(3):375-389.

DOI

[33]
KASZAB E, LACZKÓ L, KARDOS G, et al. Antimicrobial resistance genes and associated mobile genetic elements in Lactobacillales from various sources[J]. Frontiers in Microbiology, 2023,14:1281473.

文章导航

/