综述

姜黄素在断奶仔猪营养调控中的应用进展:吸收代谢与生物学功能

  • 张艳妍 , 1 ,
  • 朱晓萍 1 ,
  • 尚秀国 , 1, * ,
  • 杨雪芬 2
展开
  • 1 佛山大学,佛山 528225
  • 2 广东省农业科学院动物科学研究所,猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室,广州 510640
* 尚秀国,教授,博士生导师,E-mail:

张艳妍(1997—),女,辽宁阜新人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 陈燕

收稿日期: 2025-07-24

  网络出版日期: 2026-02-12

基金资助

广东省自然科学基金(2025A1515012362)

广东省农业科学院中青年学科带头人培养项目(R2023PY-JG013)

广东省农业科学院中青年学科带头人培养项目(R2020PY-JX007)

广东省现代农业产业技术体系创新团队(2024CXTD14)

广东省现代农业产业技术体系创新团队(2024CXTD22)

国家生猪产业技术体系(CARS-35)

Advances in Application of Curcumin in Nutritional Regulation of Weaned Piglets: Absorption, Metabolism and Biological Functions

  • ZHANG Yanyan , 1 ,
  • ZHU Xiaoping 1 ,
  • SHANG Xiuguo , 1, * ,
  • YANG Xuefen 2
Expand
  • 1 Foshan University, Foshan 528225, China
  • 2 Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
* professor, E-mail:

Received date: 2025-07-24

  Online published: 2026-02-12

摘要

姜黄素是从姜科植物根茎中提取的天然多酚类活性物质,具有显著的抗炎、抗氧化、调节免疫等多重生物学功能。在断奶仔猪生产中,姜黄素能显著提高生长性能、增强机体免疫调节功能并维护肠道健康。本文总结了姜黄素在应用剂量、作用靶点和机制等方面的研究,系统综述了姜黄素的化学结构、主要提取方法、体内吸收代谢、生物学功能及其在断奶仔猪生产中的应用研究进展,以期为姜黄素在断奶仔猪营养调控中的应用提供理论参考。

本文引用格式

张艳妍 , 朱晓萍 , 尚秀国 , 杨雪芬 . 姜黄素在断奶仔猪营养调控中的应用进展:吸收代谢与生物学功能[J]. 动物营养学报, 2026 , 38(2) : 835 -845 . DOI: 10.12418/CJAN2026.065

Abstract

Curcumin is a natural polyphenolic bioactive compound extracted from the rhizomes of Curcuma plants, which possesses multiple remarkable biological functions, including anti-inflammatory, antioxidant, and immunomodulatory activities. In the production of weaned piglets, curcumin has been demonstrated to significantly improve growth performance, enhance immune regulatory functions, and maintain intestinal health. This paper summarizes research on the application dosage, functional targets, and mechanisms of action of curcumin, and systematically reviews its chemical structure, main extraction methods, in vivo absorption and metabolism, biological functions, and advances in its application research in weaned piglet production. The aim is to provide a theoretical basis for the application of curcumin in the nutritional regulation of weaned piglets.

姜黄(Curcuma longa)是一种广泛种植于印度和中国的姜科多年生草本植物,是重要的香料和传统药材,它具有破血行气、通经止痛等功效,也是天然活性物质姜黄素(curcumin)的主要来源。姜黄素作为安全天然色素和调味剂,已被世界卫生组织(WHO)及多国批准为食品添加剂。大量研究发现,姜黄素不仅具有着色和调味功能,还具有显著的抗炎、抗氧化、调节脂质代谢、抗病毒和抗肿瘤等多种生物学功能[1]。2014年,姜黄素被中国批准为淡水鱼饲料添加剂,并于2019年扩大适用范围至肉仔鸡。研究表明,在畜禽和水产动物饲料中适量添加姜黄素可改善动物的生长性能[2]、提高饲料利用率、增强免疫力[3]与抗氧化能力以及改善肉品质等。作为一种天然、安全且具有多重生物活性的植物提取物,姜黄素在畜禽生产中展现出广阔的应用前景。因此,开发有效的饲料添加剂以缓解仔猪断奶应激、促进仔猪健康生长至关重要。基于姜黄素独特的生物学功能,其在断奶仔猪营养调控中具有重要价值,本文结合国内外最新研究进展,系统阐述姜黄素的化学结构、主要提取方法、体内吸收代谢、生物学功能及其在断奶仔猪生产中的应用研究进展,以期为姜黄素在断奶仔猪营养调控中的应用提供理论参考。

1 姜黄素的化学结构
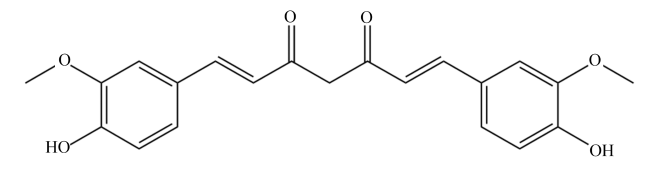
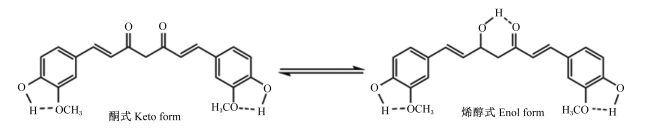
姜黄素的化学名称为1,7-双(4-羟基-3-甲氧基苯基)-1,6-庚二烯-3,5-二酮,分子式为C21H20O6,相对分子质量为368.37,熔点为183 ℃。姜黄素的结构式如图1所示,姜黄素酮-烯醇式互变异构体如图2所示。姜黄素为橙黄色结晶粉末,具有轻微苦味;微溶于水,溶于乙醇、丙二醇,易溶于冰醋酸和碱溶液;其溶液在碱性条件下呈红褐色,而在中性或酸性条件下则呈黄色。
图1 姜黄素的结构式

Fig.1 Structural formula of curcumin[4]

图2 姜黄素酮-烯醇式互变异构体

Fig.2 Keto-enol tautomer of curcumin[4]

姜黄素属于酸性多酚类化合物,其分子骨架包含不饱和脂肪族和芳香族基团(β-二酮结构)。天然来源的姜黄素类化合物主要由姜黄素(60%~70%)、去甲氧基姜黄素(20%~27%)和双去甲氧基姜黄素(10%~15%)组成[5],其中具有生物活性的多酚类物质占姜黄提取物干重的1%~6%。

2 姜黄素的主要提取方法

姜黄素的主要提取方法包括高效柱色谱萃取、索氏萃取、超声辅助萃取和微波辅助萃取等,各种方法的提取条件、提取率和优缺点见表1
表1 姜黄素的主要提取方法

Table 1 Main extraction methods of curcumin

方法
Methods
条件
Condition
提取率
Extraction
rate/%
优点
Advantage
缺点
Disadvantage
参考文献
Reference
高效柱色谱萃取
High-performance column
chromatographic extraction
姜黄素与80%乙醇按照1∶2
(w/v)混合,溶解1 h,洗柱
99 高效、
低成本
难以工业
化生产
[6]
索氏萃取
Soxhlet extraction
姜黄素与乙醇(≥95%)按照
1∶25(w/v)混合,78 ℃萃取14 h
100 提取率
最高
耗时长、
成本高
[7]
超声辅助萃取
Ultrasound-assisted extraction
姜黄素与乙醇(≥95%)按照
1∶25(w/v)混合,35 ℃超声1 h
72 耗时短、
能耗低
设备复杂、
成本高
[8]
微波辅助萃取
Microwave-assisted extraction
姜黄素与70%乙醇按照1∶40
(w/v)混合,微波90 s
71.02 耗时短、
无污染
设备
要求高
[9]

3 姜黄素的体内吸收代谢

姜黄素水溶性极低,在体内吸收效率低,且在光照、高温或碱性环境下易发生自氧化降解,进一步降低其活性,这些特性共同导致姜黄素在肠道内的吸收有限。但姜黄素脂溶性较好,可在肠道和肝脏同工酶的作用下转化为具有更高生物活性的代谢产物。

3.1 姜黄素的降解与氧化

3.1.1 碱降解

姜黄素的降解受pH影响,在碱性条件下其分解速率显著加快。当pH接近或高于其酸解离常数负对数(pKa)时,α、β-不饱和酮与β-二酮结构发生部分裂解,促使姜黄素羟基快速水解,先形成反式-6-(4’-羟基-3’-甲氧基苯基)-2,4-二氧代-5-己醛,进一步生成阿魏酸、阿魏酰甲烷等产物[10]。Kharat等[11]研究发现,在磷酸盐缓冲溶液中,中性或碱性条件下孵育15 min,约90%的姜黄素会发生降解。

3.1.2 光降解

姜黄素具有对称共轭苯环结构,具备光敏特性,其吸收光谱为300~500 nm,荧光最大激发波长为425 nm,最大发射波长为530 nm[12]。因此,在光照条件下,姜黄素的烯醇基团和二羟基体系易发生改变,加快姜黄素的降解度,产生香兰素、阿魏酸、阿魏醛等酚类物质,使其生物学活性降低[13]。研究表明,在光照条件下姜黄素的结晶形式更稳定,但结晶后其结构和性质会发生改变,结晶后的生物学活性将低于姜黄素本身[14]。因此,为减少光降解,姜黄素需储存于避光、干燥且阴凉处。

3.1.3 自氧化

姜黄素储存过程中化学性质不稳定,易通过自由基链式反应发生自氧化。水溶液中的自由基会引发姜黄素分子上酚羟基的自氧化,形成不稳定中间体,通过一系列反应分解形成双环戊二酮[15]。自氧化是姜黄素体外降解的主要途径,可引起拓扑异构酶中毒[16],进而导致其生物学活性下降。

3.2 姜黄素的吸收

姜黄素在消化道主要通过十二指肠吸收,其吸收效果随着姜黄素浓度的升高而增强,但达到一定浓度后其吸收会受到抑制[17]。在实际应用中,姜黄素因水溶性差,在肠道内吸收利用效率很低,姜黄素摄入30 min后大部分仍滞留在胃肠道中,未被消化吸收[18]。Ravindranath等[19]研究发现,给大鼠口服姜黄素400 mg后虽有60%被吸收,但在小鼠门静脉血、肝脏和肾脏中仅观察到微量姜黄素(静脉血姜黄素浓度<5 μg/mL,肝脏、肾脏姜黄素浓度< 20 μg/mL),24 h后,在盲肠和大肠中的姜黄素浓度达到给药量的38%。目前,已经研究出了多项措施来改善姜黄素的生物利用度(详见6.2)。

3.3 姜黄素的代谢

姜黄素在肠道内及吸收后(尤其在肝脏中)会被代谢酶快速代谢[20],形成多种与母体分子生物活性不同的各种代谢物。肠道和肝脏中的酚磺基转移酶同工酶,可将姜黄素转化为姜黄素黄酸盐和姜黄素葡萄糖醛酸苷[21];此外,还可形成二氢姜黄素、四氢姜黄素、六氢姜黄素、八氢姜黄素、二氢阿魏酸等代谢产物[22]。大多数姜黄素葡萄糖醛酸酯、姜黄素黄酸盐及其他代谢产物均具有水溶性,且生物活性更高,如四氢姜黄素的抗炎、抗糖尿病和抗高血脂活性强于姜黄素,而八氢姜黄素的抗癌特性优于姜黄素。

4 姜黄素的生物学功能

姜黄素具有抗炎、抗氧化、抗菌[23]、抗癌[24]和调节机体免疫[25]等多种生物学特性,其功能发挥主要通过调节信号通路、清除自由基和维持肠道微生物群平衡等机制,进而提高机体的健康水平。

4.1 抗炎

炎症反应是机体对病原体感染或组织损伤的重要防御机制。当病毒、细菌等致病因子侵袭机体时,会引发组织细胞损伤,刺激炎性介质释放和免疫细胞活化,最终引发炎症反应。研究表明,姜黄素可通过多机制发挥抗炎作用。
姜黄素主要通过调节炎症信号通路抑制炎症反应,具体包括如下4个方面。1)抑制核因子-κB(nuclear factor-kappaB,NF-κB)信号通路的激活:NF-κB信号通路是炎症反应的主要信号通路。外界刺激与细胞膜受体结合后激活NF-κB抑制蛋白激酶(IKK),IKK进一步磷酸化NF-κB抑制蛋白(inhibitor of NF-κB,IκB)并促使NF-κB发生核易位,从而激活NF-κB信号通路,NF-κB蛋白与特定NF-κB增强子结合介导促炎基因的转录,发生炎症反应[26];姜黄素可通过抑制IκB的磷酸化、NF-κB的核易位来抑制NF-κB信号通路的激活,并减少促炎细胞因子的产生来减少炎症反应[27]。2)抑制Janus激酶-信号传导与转录激活因子(Janus kinase-signal transducer and activator of transcription,JAK-STAT)信号通路的激活:JAK-STAT信号通路是炎症反应的关键信号通路,促炎因子等配体与细胞膜上的受体结后会激活Janus激酶(JAK),使信号传导与转录激活因子(STAT)磷酸化并形成二聚体,随后发生核异位与特定的DNA序列结合,介导促炎基因的转录,产生炎症反应;姜黄素可通过抑制STAT磷酸化及其核异位抑制JAK-STAT信号通路的激活[28],还可通过抑制促炎细胞因子的分泌[29]来抑制JAK-STAT信号通路的激活,从而减少炎症反应。3)抑制丝裂原活化蛋白激酶(mitogen-activated protein kinases,MAPK)信号通路的激活[30]:MAPK信号通路是参与炎症反应的重要信号通路,细胞受到促炎因子等外界刺激后会激活c-Jun氨基末端激酶(c-Jun N-terminal kinase,JNK),使其发生磷酸化并启动三级激酶级联反应[MAPK激酶激酶(MAPKKK)→MAPK激酶(MAPKK)→MAPK],将促炎细胞因子传递至细胞核内,参与炎症反应;姜黄素可通过抑制JNK和MAPK的磷酸化来抑制MAPK信号通路的激活,抑制机体的炎症反应[31]。4)增强NF-κB信号通路与核因子E2相关因子2(NF-E2-related factor 2,Nrf2)信号通路的反向调节:活性氧(reactive oxygen species,ROS)是NF-κB信号通路的关键激活剂,当Nrf2信号通路激活后,可通过清除ROS和阻止NF-κB发生核易位、促进抗炎细胞因子或抑制促炎细胞因子的表达等途径来抑制NF-κB信号通路,而姜黄素可促进Nrf2信号通路的激活(详见4.2),间接抑制NF-κB信号通路,发挥抗炎作用。
此外,姜黄素可通过抑制参与炎症反应的酶的活性,如5-脂氧合酶(5-lipoxygenase,5-LOX),来发挥抗炎作用[32];还可双向调节促炎/抗炎细胞因子的平衡:一方面上调抗炎细胞因子[如白细胞介素-10(interleukin-10,IL-10)]及可溶性细胞间黏附分子的表达水平,另一方面有效抑制促炎细胞因子[如白细胞介素-4(IL-4)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)]的分泌[33];Gharib等[34]研究发现,饲粮中补充1 g/kg姜黄素可显著提高抗炎细胞因子IL-10水平,显著降低促炎细胞因子白细胞介素-1β(interleukin-1β,IL-1β)和干扰素-γ(interferon-γ,IFN-γ)水平,增强肉鸡的抗炎能力。

4.2 抗氧化

氧化应激是指细胞或生物体中自由基及其他ROS生成超过清除能力,导致氧化还原稳态失衡的病理过程,可引发脂质过氧化、蛋白质变性和DNA损伤等一系列细胞损害。姜黄素的抗氧化作用主要包括:1)直接清除自由基,姜黄素以苯酚为基本骨架,具有强大的自由基清除能力:一方面,其2,2-联苯基-1-苦基肼基(DPPH)和2,2’-联氮基-双(3-乙基苯并噻唑啉-6-磺酸)(ABTS)的自由基清除率均高于人工抗氧化剂[如丁基羟基甲苯(butylated hydroxytoluene,BHT)和VC][35];另一方面,姜黄素分子中的邻-二羟基基团可有效捕获自由基,通过电子转移形成稳定的酚氧自由基中间体,继而转化为醌式结构,阻断自由基链式反应,保护细胞和组织免受自由基损伤。2)激活Nrf2/抗氧化反应元件(antioxidant response element,ARE)信号通路:Nrf2/ARE信号通路是机体重要的内源性抗氧化应激防御通路,在维持细胞氧化还原稳态中发挥关键作用,当细胞受到氧化应激后,Nrf2发生核易位,进而与ARE结合,提高抗氧化酶基因表达水平,从而发挥抗氧化功能;当细胞受到氧化应激时,姜黄素可促进Nrf2与Kelch样ECH相关蛋白1(Keap1)解离及核易位,促进Nrf2信号通路的激活,并增强Nrf2与ARE的结合能力,同时,通过促进谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)和超氧化物歧化酶(superoxide dismutase,SOD)等抗氧化酶基因的表达,减轻氧化应激造成的损伤[36];研究发现,姜黄素可通过激活Nrf2/ARE信号通路改善大鼠氧化应激状态,从而减轻大鼠产后抑郁症状[37]。3)调节抗氧化酶活性:姜黄素中的酚类化合物和类黄酮类物质可提高抗氧化酶(如SOD和GSH-Px)的活性[38]。4)NF-κB信号通路与Nrf2信号通路的相互作用:ROS在NF-κB信号通路介导的炎症反应中具有关键作用,ROS水平增加会产生炎症反应,同时会促进Nrf2信号通路的激活,形成正反馈。姜黄素可通过NF-κB信号通路增强抗氧化酶的活性,进而促进Nrf2信号通路的激活来间接增强机体抗氧化能力。

4.3 调节肠道微生物群平衡

肠道微生物群由细菌、真菌、病毒等数万亿微生物组成,是机体最复杂的微生态系统,具有稳定性和多样性,在营养物质消化吸收、代谢及免疫调节中发挥着重要作用。姜黄素可通过与肠道微生物群的相互作用,来调节宿主肠道微生物群及代谢平衡。
姜黄素因水溶性差不易被肠道直接吸收利用,肠道微生物群可作为生物反应器转化肠道内的姜黄素,提高姜黄素的生物利用效率。研究发现,去甲基化是姜黄素在肠道内的重要代谢途径,黏液真杆菌属等肠道菌群可通过去甲基化反应,产生生物活性更高的去甲基姜黄素和双去甲基姜黄素衍生物[39]。姜黄素还会在肠道菌群的作用下通过烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate,NADPH)还原作用进一步转化为二氢姜黄素、四氢姜黄素和六氢姜黄素[40]。部分菌群还可以通过水解反应分解姜黄素的β-二酮结构,促进其代谢转化。
姜黄素对肠道及微生物群具有调节作用,主要包括以下4个方面:1)姜黄素通过与肠道微生物群相互作用,抑制革兰氏阳性细菌(如肺炎链球菌)、革兰氏阴性细菌(如大肠杆菌和沙门氏菌)和真菌的活性,减少致病菌定植[41],并作为益生元促进肠道有益菌(如双歧杆菌和乳酸杆菌)增殖,提高产短链脂肪酸菌的比例,降低肠道pH,进一步抑制致病菌生长。Chen等[42]通过16S rRNA基因测序和非靶向代谢组学液相色谱-串联质谱(liquid chromatography-tandem mass spectrometry,LC-MS/MS)分析结果显示,饲粮中添加200 mg/kg姜黄素可显著改善肉鸡盲肠菌群生态和功能,增加有益菌群和代谢产物丰度,显著减少有害菌和代谢产物,进而减轻肠道损伤;Yang等[43]通过肝脏转录组分析和定量聚合酶链式反应(qPCR)分析结果表明,200 mg/kg姜黄素灌胃小鼠,姜黄素可通过下调肝脏c-Jun氨基末端激酶2(JNK2)/叉头框蛋白1 (FOXO1)/B细胞淋巴瘤6蛋白(Bcl6)信号轴来改变肠道菌群组成和结构,调节小鼠代谢。2)姜黄素能够提高肠道屏障中碱性磷酸酶(alkaline phosphatase,AKP)活性,提高肠道中和细菌内毒素脂多糖能力,以保护肠道屏障功能[44]。3)姜黄素能促进肠道上皮细胞增殖,增加空肠的绒毛高度、降低隐窝深度,从而增加肠道吸收面积[45]。4)此外,姜黄素还能促进紧密连接蛋白[如闭合蛋白(occludin)和密封蛋白-1(claudin-1)]的表达,增强肠道物理屏障功能[46]

5 姜黄素在断奶仔猪生产中的应用

姜黄素是一种天然多酚类化合物,具有抗炎、抗氧化、免疫调节及改善代谢等生理功能,在断奶仔猪生产中,姜黄素可通过改善肠道健康、维持菌群平衡、增强免疫力及抗氧化能力等途径,提高采食量和体重、降低料重比,从而提高生长性能,是潜在的抗生素替代品。

5.1 姜黄素提高断奶仔猪生长性能

研究表明,断奶仔猪饲粮中添加适量的姜黄素,对其生长性能具有积极促进作用,由表2可知,饲粮中添加300~400 mg/kg的姜黄素可显著提高断奶仔猪的平均日增重和养分表观消化率,降低料重比等指标。
表2 姜黄素对断奶仔猪生长性能的影响

Table 2 Effects of curcumin on growth performance of weaned piglets

动物
Animals
剂量
Dose/(mg/kg)
试验周期
Test period/d
效果
Effect
参考文献
Reference
26日龄断奶仔猪
26-day-old weaned piglets
400 24 料重比显著降低;总增重,总采食
量及干物质、粗蛋白质、粗脂肪和
总能的表观消化率显著提高
[47]
21日龄断奶仔猪
21-day-old weaned piglets
200、300
和400
21 300和400 mg/kg
姜黄素显著降低料重比
[45]
28日龄断奶仔猪
28-day-old weaned piglets
100、200、
300和400
28 100~400 mg/kg姜黄素均显著
提高采食量和粗脂肪表观
消化率;其中200和300 mg/kg
显著提高平均日增重
[48]
26日龄断奶仔猪
26-day-old weaned piglets
400 24 末重及采食量显著提高 [49]
35日龄断奶仔猪
35-day-old weaned piglets
200和300 21 300 mg/kg姜黄素
显著降低料重比
[50]
26日龄断奶仔猪
26-day-old weaned piglets
200 89 平均日增重和料重比
无显著变化
[51]

5.2 姜黄素增强断奶仔猪免疫力

断奶仔猪的免疫器官(如胸腺、脾脏)发育尚未成熟,加之断奶应激,易出现腹泻、免疫力下降等问题,严重影响生长发育[52],给养殖行业带来重大经济损失。姜黄素具有显著的抗病毒活性,尤其对猪传染性肠胃炎病毒、流行性腹泻病毒等肠道病毒有抑制作用[53]。Jiang等[54]研究发现,猪流行性腹泻病毒(porcine epidemic diarrhea virus,PEDV)感染猪小肠上皮细胞-J2(intestinal porcine epithelial cell line-J2,IPEC-J2)后,JAK-STAT信号通路被激活,干扰素刺激基因15(interferon-stimulated gene 15,ISG15)和寡腺苷酸合成酶样蛋白(oligoadenylate synthetase like protein,OASL)表达水平均显著升高,在感染PEDV的IPEC-J2细胞中添加64 μmol/L姜黄素可显著抑制PEVD毒性,证明姜黄素可通过JAK-STAT信号通路抑制PEDV毒性,预防仔猪腹泻,增强免疫力。Wang等[55]研究结果表明,姜黄素可通过与白细胞介素-2(IL-2)、白细胞介素-6(IL-6)等促炎因子结合来抑制视黄酸诱导基因-Ⅰ(retinoic acid-inducible gene-Ⅰ,RIG-Ⅰ)信号通路的激活,进而抑制猪德尔塔冠状病毒(porcine delta coronavirus,PDCoV)的活性,减少仔猪腹泻,提高免疫力。Gan等[56]研究结果表明,姜黄素可通过抑制Toll样受体4(Toll-like receptor 4,TLR4)的相对表达水平缓解仔猪肠道炎症,饲粮中添加300 mg/kg姜黄素可显著降低仔猪空肠和回肠IL-1β、TNF-α水平,显著提高空肠和回肠中IgG水平以及空肠中IL-10水平,进而有效增强仔猪免疫力。

5.3 姜黄素提高断奶仔猪的抗氧化能力

断奶应激会诱导仔猪产生氧化应激,导致组织(如肝脏和肠道)和血液中ROS、自由基(如超氧阴离子和羟基自由基)增加,引发脂质过氧化、蛋白质变性即DNA损伤,从而影响仔猪健康,在饲粮中添加姜黄素可以提高断奶仔猪抗氧化能力。Yan等[57]研究发现,饲粮中添加200 mg/kg姜黄素可以促进Nrf2信号通路的激活,显著提高仔猪空肠黏膜中SOD活性,显著降低丙二醛(malondialdehyde,MDA)含量,显著提高抗氧化酶相关基因Nrf2、SOD1、谷氨酸-半胱氨酸连接酶调节亚基(glutamate-cysteine ligase modifier subunit,GCLM)、谷氨酸-半胱氨酸连接酶催化亚基(glutamate-cysteine ligase catalytic subunit,GCLC)和NAD(P)H醌氧化还原酶1[NAD(P)H quinone dehydrogenase 1,NQO1]的相对表达水平,降低仔猪空肠损伤。Niu等[58]研究发现,饲粮添加400 mg/kg姜黄素可显著提高仔猪肝脏中谷胱甘肽还原酶(glutathione reductase,GR)活性和过氧化氢酶(catalase,Cat)、谷胱甘肽过氧化物酶1(glutathione peroxidase 1,Gpx1)的相对表达水平,显著降低血清中AST和ALT活性,有效减轻仔猪肝脏的氧化损伤。

5.4 姜黄素调节断奶仔猪肠道屏障功能和菌群平衡

肠道是机体最大的免疫器官,其屏障功能(物理屏障、化学屏障和免疫屏障)的完整性对维持仔猪健康至关重要。断奶应激会破坏肠道屏障功能(如绒毛萎缩和隐窝加深),导致肠道通透性增加、致病菌定植,引发生长迟缓、腹泻等问题。通过16S rDNA测序结果分析,饲粮中添加含姜黄素的饲料添加剂可减少仔猪肠道大肠菌群,增加有益菌,改善肠道微生物群的多样性[59]。Gan等[56]在断奶仔猪饲粮中添加300 mg/kg姜黄素,也得到相似结果;同时发现,断奶仔猪空肠、回肠的绒毛高度显著增加,隐窝深度显著减少,肠道吸收功能明显增强[60]

5.5 姜黄素调节断奶仔猪肝脏脂质代谢

肝脏是动物体内最大的代谢器官,参与脂肪合成和脂肪酸氧化及葡萄糖代谢等过程,其功能异常会导致脂肪沉积、胰岛素抵抗等问题[61]。断奶仔猪由于摄入物从母乳转为固体饲粮,易出现肝脏脂质代谢紊乱(如脂肪合成增加或者氧化减少),导致肝脏脂肪沉积(甘油三酯水平升高)。姜黄素可以通过调控脂质代谢相关基因的表达,改善肝脏功能。Niu等[49]研究结果表明,在断奶仔猪饲粮中添加400 mg/kg姜黄素,可显著降低血清胰岛素和葡萄糖水平,显著增强仔猪肝脂肪酶、脂蛋白脂肪酶和总脂肪酶的活性,抑制脂肪酸转运基因[脂肪酸结合蛋白1(fatty acid binding protein 1,Fabp1)和分化簇36(cluster of differentiation 36,Cd36)]和脂肪酸合成基因[脂肪酸合酶(fatty acid synthase,Fasn)、硬脂酰辅酶A去饱和酶1(stearoyl-CoA desaturase 1,Scd1)和固醇调节元件结合蛋白(sterol regulatory element binding protein,Srebp)]mRNA的表达水平,并提高了脂肪酸氧化基因[肝脏X受体(Lxr)和过氧化物酶体增殖物激活受体α(peroxisome proliferator activated receptor alpha,Ppara)]mRNA的表达水平,抑制仔猪肝脏脂质合成,加快肝脏脂肪分解和脂肪酸氧化,从而改善葡萄糖和脂质代谢,降低患胰岛素抵抗的发生风险。这表明,姜黄素对断奶仔猪的肝脏脂质代谢具有积极调节作用,可保护肝脏健康。

6 姜黄素在断奶仔猪生产应用中存在的问题与改进措施

6.1 局限性

尽管姜黄素在断奶仔猪生产中展现出诸多潜力,如提高生长性能、改善肠道菌群、提升免疫力和促进健康,但其实际应用中仍面临一些问题,主要有以下3个方面:1)姜黄素生物利用度极低,因姜黄素水溶性极差,在正常生理pH下,进入胃肠道后其上层黏液和肠上皮等物理屏障会限制药物运输[62],导致其在小肠吸收及肝脏代谢过程中的利用率不足5%,严重限制了实际生产中的功效发挥。2)姜黄素代谢速率过快,其主要通肝脏的生物转化途径代谢,肠道微生物群也参与其分解过程。口服后,姜黄素及其代谢产物会通过尿液或粪便排出体外,无法在体内维持有效浓度[63]。3)高剂量姜黄素具有潜在毒性,研究表明,姜黄素在有氧条件下对部分细菌和哺乳动物细胞具有光毒性[64],持续4个月口服剂量高达3 600~8 000 mg后,机体会出现轻度恶心和腹泻症状[65]

6.2 包被技术对姜黄素应用弊端的改善作用

研究发现,脂质消化产物(如脂肪酸和甘油单酯)可溶解姜黄素,促进其运输至上皮细胞进行代谢,从而提高转化率[18],因此,包被技术成为解决姜黄素应用弊端的关键手段,其通过物理(如喷雾干燥)、化学(如交联反应)或生物(如脂质体包裹)方式,将姜黄素包覆于载体材料(如纳米颗粒、淀粉微球和壳聚糖)表面,形成稳定的复合体系:1)防止姜黄素在胃肠道中被胃酸、酶降解,保护其活性;2)控制姜黄素释放,延缓代谢速率,延长体内有效作用时间;3)改善姜黄素的水相分散性,提高溶解度,增强肠道吸收。Bisht等[66]研究表明,纳米姜黄素更容易分散在水性介质中,抑制胰腺癌细胞系的增殖和促炎因子[如IL-6、白细胞介素-8(IL-8)和TNF-α]的合成,提高抗癌作用。Muniyappan等[67]研究发现,合成的姜黄素封端金纳米颗粒的抗菌、抗炎和抗氧化能力均优于游离姜黄素。Kim等[68]研究表明,姜黄素纳米球可将姜黄素生物利用度提高2倍以上,增强肠道上皮运动及提高细胞骨架重组相关基因[如紧密连接蛋白-1(zonula occludens-1,ZO-1)、occludin]的表达水平,有助于肠道伤口愈合。此外,Moniruzzaman等[69]研究发现,添加0.5~1.0 mL/kg姜黄素纳米球可显著提高断奶仔猪平均日增重,显著减少粪便大肠菌群数量,增强仔猪免疫力及脂质代谢。

7 小结与展望

姜黄素作为天然多酚物质,具有抗炎、抗氧化以及调节肠道微生物群等多种生物活性,可显著提高断奶仔猪生长性能、增强其免疫力并减少腹泻及其他疾病的发生。尽管姜黄素存在溶解度低、口服吸收差和生物利用度低等问题,但其作为新型饲料添加剂,具有多重功能、低残留和环境友好等特点,使其成为“后抗生素”时代极具潜力的抗生素替代品,有助于缓解仔猪断奶应激综合征等相关健康问题。
尽管针对姜黄素的物理、化学特性和生物学功能已有较为系统的研究,但多数研究仍局限于细胞和动物试验,其在养猪业中的实际应用价值尚需进一步探索,如确定姜黄素的适宜添加水平、阐明其具体作用机制,并加强剂型优化研究,例如运用纳米包被、乳化技术,或探索其与益生菌、植物精油联合应用策略等,以提升生物利用度、降低潜在毒性风险,从而更好地促进断奶仔猪生长并维持肠道健康。随着相关研究的不断深入和剂型技术的持续改进,姜黄素有望在断奶仔猪生产中实现更广泛的应用,为“无抗养殖”提供可行路径。
[1]
KOMIYAMA M, OZAKI Y, WADA H, et al. Study protocol to determine the effects of highly absorbable oral curcumin on the indicators of cognitive functioning:a double-blind randomised controlled trial[J]. BMJ Open, 2022, 12(9):e057936.

DOI

[2]
SURESHBABU A, SMIRNOVA E, KARTHIKEYAN A, et al. The impact of curcumin on livestock and poultry animal’s performance and management of insect pests[J]. Frontiers in Veterinary Science, 2023,10:1048067.

[3]
ROHMAH M K, SALAHDIN O D, GUPTA R, et al. Modulatory role of dietary curcumin and resveratrol on growth performance,serum immunity responses,mucus enzymes activity,antioxidant capacity and serum and mucus biochemicals in the common carp,Cyprinus carpio exposed to abamectin[J]. Fish & Shellfish Immunology, 2022,129:221-230.

[4]
陈秋如, 郭亚星, 江珊, 等. 姜黄素金属配合物的合成及其在医药领域的应用研究进展[J]. 药物化学, 2020(1):1-6.

CHEN Q R, GUO Y X, JIANG S, et al. Recent research progress on the synthesis of curcumin-based metal complexes and their applications in medical field[J]. Hans Journal of Medicinal Chemistry, 2020(1):1-6. (in Chinese)

[5]
NELSON K M, DAHLIN J L, BISSON J, et al. The essential medicinal chemistry of curcumin[J]. Journal of Medicinal Chemistry, 2017, 60(5):1620-1637.

DOI PMID

[6]
ZHAN P Y, ZENG X H, ZHANG H M, et al. High-efficient column chromatographic extraction of curcumin from Curcuma longa[J]. Food Chemistry, 2011, 129(2):700-703.

DOI

[7]
SHIRSATH S R, SABLE S S, GAIKWAD S G, et al. Ultrasound assisted curcumin recovery from Curcuma aromatica:understanding the effect of different operating parameters[J]. Chemical Engineering and Processing:Process Intensification, 2021,169:108604.

[8]
TORQUATO I O, CORRALES A, MUSSAGY C U, et al. Revolutionizing curcumin extraction:new insights from non-conventional methods—a comparative analysis of the last decade[J]. Journal of Separation Science, 2025, 48(7):e70198.

DOI

[9]
SUKSAEREE J, MONTON C. Maximizing curcuminoid extraction from Curcuma aromatica Salisb. rhizomes via environmentally friendly microwave-assisted extraction technique using full factorial design[J]. International Journal of Food Science, 2024, 2024(1):4566123.

[10]
ZHU J L, SANIDAD K Z, SUKAMTOH E, et al. Potential roles of chemical degradation in the biological activities of curcumin[J]. Food & Function, 2017, 8(3):907-914.

[11]
KHARAT M, DU Z Y, ZHANG G D, et al. Physical and chemical stability of curcumin in aqueous solutions and emulsions:impact of pH,temperature,and molecular environment[J]. Journal of Agricultural and Food Chemistry, 2017, 65(8):1525-1532.

DOI

[12]
XIE L G, JI X L, ZHANG Q, et al. Curcumin combined with photodynamic therapy,promising therapies for the treatment of cancer[J]. Biomedicine & Pharmacotherapy, 2022,146:112567.

[13]
RAVERA S, PASQUALE C, PANFOLI I, et al. Assessing the effects of curcumin and 450 nm photodynamic therapy on oxidative metabolism and cell cycle in head and neck squamous cell carcinoma:an in vitro study[J]. Cancers, 2024, 16(9):1642.

DOI

[14]
GORDON O N, SCHNEIDER C. Vanillin and ferulic acid: not the major degradation products of curcumin[J]. Trends in Molecular Medicine, 2012, 18(7):361-363; author reply363-4.

DOI

[15]
GORDON O N, LUIS P B, SINTIM H O, et al. Unraveling curcumin degradation:autoxidation proceeds through spiroepoxide and vinylether intermediates en route to the main bicyclopentadione[J]. The Journal of Biological Chemistry, 2015, 290(8):4817-4828.

DOI

[16]
KETRON A C, GORDON O N, SCHNEIDER C, et al. Oxidative metabolites of curcumin poison human type Ⅱ topoisomerases[J]. Biochemistry, 2013, 52(1):221-227.

DOI

[17]
WANG Y H, KE X M, ZHANG C H, et al. Absorption mechanism of three curcumin constituents through in situ intestinal perfusion method[J]. Brazilian Journal of Medical and Biological Research, 2017, 50(11):e6353.

DOI PMID

[18]
ZHENG B J, MCCLEMENTS D J. Formulation of more efficacious curcumin delivery systems using colloid science:enhanced solubility,stability,and bioavailability[J]. Molecules, 2020, 25(12):2791.

DOI

[19]
RAVINDRANATH V, CHANDRASEKHARA N. Absorption and tissue distribution of curcumin in rats[J]. Toxicology, 1980, 16(3):259-265.

DOI PMID

[20]
LIU W D, ZHAI Y J, HENG X Y, et al. Oral bioavailability of curcumin:problems and advancements[J]. Journal of Drug Targeting, 2016, 24(8):694-702.

DOI

[21]
GHARAT S, MOMIN M, PANCHAL U, et al. Novel ethosomal gel formulation for enhanced transdermal delivery of curcumin and cyclosporine:a preclinical approach to rheumatoid arthritis management[J]. Drug Delivery, 2025, 32(1):2512620.

DOI

[22]
LUO M N, WONG S, THANUPHOL P, et al. Isolation and identification of human gut bacteria capable of converting curcumin to its hydrogenated metabolites[J]. Journal of Agricultural and Food Chemistry, 2024, 72(37):20410-20418.

DOI PMID

[23]
ZHAI S S, RUAN D, ZHU Y W, et al. Protective effect of curcumin on ochratoxin A-induced liver oxidative injury in duck is mediated by modulating lipid metabolism and the intestinal microbiota[J]. Poultry Science, 2020, 99(2):1124-1134.

DOI PMID

[24]
MIRZAEI H, BAGHERI H, GHASEMI F, et al. Anti-cancer activity of curcumin on multiple myeloma[J]. Anti-Cancer Agents in Medicinal Chemistry, 2021, 21(5):575-586.

DOI

[25]
JYOTIRMAYEE B, MAHALIK G. A review on selected pharmacological activities of Curcuma longa L[J]. International Journal of Food Properties, 2022, 25(1):1377-1398.

DOI

[26]
XU G, DONG F, SU L, et al. The role and therapeutic potential of nuclear factor κB(NF-κB) in ischemic stroke[J]. Biomedicine & Pharmacotherapy, 2024,171:116140.

[27]
KARUNAWEERA N, RAJU R, GYENGESI E, et al. Plant polyphenols as inhibitors of NF-κB induced cytokine production—a potential anti-inflammatory treatment for Alzheimer’s disease?[J]. Frontiers in Molecular Neuroscience, 2015,8:24.

[28]
ABROUMAND GHOLAMI A, TAHMASEBI F, HAGHIR H, et al. Targeting JAK/STAT signaling pathway by curcumin:implications for spinal cord injury neuroprotection[J]. Inflammopharmacology, 2025, 33(8):4377-4395.

DOI

[29]
VALIZADEH H, ABDOLMOHAMMADI-VAHID S, DANSHINA S, et al. Nano-curcumin therapy,a promising method in modulating inflammatory cytokines in COVID-19 patients[J]. International Immunopharmacology, 2020, 89(Pt B):107088.

[30]
FERNÁNDEZ-LÁZARO D, MIELGO-AYUSO J, SECO CALVO J, et al. Modulation of exercise-induced muscle damage,inflammation,and oxidative markers by curcumin supplementation in a physically active population:a systematic review[J]. Nutrients, 2020, 12(2):501.

DOI

[31]
YU S, WANG M, GUO X J, et al. Curcumin attenuates inflammation in a severe acute pancreatitis animal model by regulating TRAF1/ASK1 signaling[J]. Medical Science Monitor, 2018,24:2280-2286.

[32]
D’CUNHA N M, SEDDON N, MELLOR D D, et al. Curcumin for cognition:is it just hype,based on current data?[J]. Advances in Nutrition, 2019, 10(1):179-181.

DOI

[33]
KARIMIAN M S, PIRRO M, JOHNSTON T P, et al. Curcumin and endothelial function: evidence and mechanisms of protective effects[J]. Current Pharmaceutical Design, 2017, 23(17):2462-2473.

DOI PMID

[34]
GHARIB H S A, ABDELATY A I, GOMAA W M S, et al. Using curcumin (Curcuma longa) as a dietary supplement modulates performance,behavior,blood metabolites,antioxidant status,and histomorphological changes in heat-stressed broiler chickens[J]. Journal of Thermal Biology, 2025,130:104144.

[35]
YAMAN M S, ARSLAN S N, GENÇAY G, et al. Optimization and modeling of ultrasound- and microwave-assisted extraction of turmeric to efficiently recover curcumin and phenolic antioxidants followed by food enrichment to enhance health-promoting effects[J]. Food Science & Nutrition, 2025, 13(3):e70093.

DOI

[36]
RAJABI S, DARROUDI M, NASERI K, et al. Protective effects of curcumin and its analogues via the Nrf2 pathway in metabolic syndrome[J]. Current Medicinal Chemistry, 2024, 31(25):3966-3976.

DOI

[37]
芦笛, 惠旭东, 赵琳, 等. 姜黄素激活Nrf2/ARE信号通路对产后抑郁症大鼠氧化应激损伤的影响[J]. 中国优生与遗传杂志, 2023, 31(3):508-512.

LU D, HUI X D, ZHAO L, et al. Influence of curcumin on oxidative stress injury in rats with postpartum depression via activation of Nrf2/ARE signaling pathway[J]. Chinese Journal of Birth Health & Heredity, 2023, 31(3):508-512. (in Chinese)

[38]
LIU W S, CUI X, ZHONG Y F, et al. Phenolic metabolites as therapeutic in inflammation and neoplasms:molecular pathways explaining their efficacy[J]. Pharmacological Research, 2023,193:106812.

[39]
BURAPAN S, KIM M, HAN J. Curcuminoid demethylation as an alternative metabolism by human intestinal microbiota[J]. Journal of Agricultural and Food Chemistry, 2017, 65(16):3305-3310.

DOI PMID

[40]
LOU Y, ZHENG J Q, HU H H, et al. Application of ultra-performance liquid chromatography coupled with quadrupole time-of-flight mass spectrometry to identify curcumin metabolites produced by human intestinal bacteria[J]. Journal of Chromatography B, 2015,985:38-47.

[41]
BUNIOWSKA-OLEJNIK M, URBAÑSKI J, MYKHALEVYCH A, et al. The influence of curcumin additives on the viability of probiotic bacteria,antibacterial activity against pathogenic microorganisms,and quality indicators of low-fat yogurt[J]. Frontiers in Nutrition, 2023,10:1118752.

[42]
CHEN X, LI F, XU X, et al. Dietary curcumin supplementation enhances growth performance and anti-inflammatory functions by modulating gut microbiota, microbiota-derived metabolites,and expression of inflammation-related genes in broilers[J]. Journal of Animal Science, 2024,102:skae296.

[43]
YANG J, SONG B Z, ZHANG F, et al. Curcumin ameliorates hepatic steatosis and insulin resistance through the JNK2/FOXO1/Bcl6 axis and regulate the intestinal flora structure[J]. Journal of Physiology and Biochemistry, 2025, 81(3):771-791.

DOI PMID

[44]
ZHU J W, HE L. The modulatory effects of curcumin on the gut microbiota:a potential strategy for disease treatment and health promotion[J]. Microorganisms, 2024, 12(4):642.

DOI

[45]
XUN W J, SHI L G, ZHOU H L, et al. Effects of curcumin on growth performance,jejunal mucosal membrane integrity,morphology and immune status in weaned piglets challenged with enterotoxigenic Escherichia coli[J]. International Immunopharmacology, 2015, 27(1):46-52.

DOI

[46]
WANG J, GHOSH S S, GHOSH S. Curcumin improves intestinal barrier function:modulation of intracellular signaling,and organization of tight junctions[J]. American Journal of Physiology:Cell Physiology, 2017, 312(4):C438-C445.

[47]
王斐, 何进田, 沈明明, 等. 日粮添加姜黄素对宫内发育迟缓断奶仔猪生长性能和肠道组织形态的影响[J]. 畜牧与兽医, 2019, 51(6):23-30.

WANG F, HE J T, SHEN M M, et al. Effects of curcumin supplementation on growth performance and intestinal histomorphology of weaned piglets with intrauterine growth retardation[J]. Animal Husbandry & Veterinary Medicine, 2019, 51(6):23-30. (in Chinese)

[48]
芦娜, 邱静芸, 应志雄, 等. 日粮添加不同水平姜黄素对断奶仔猪生产性能、消化率和血液指标的影响[J]. 家畜生态学报, 2017, 38(1):30-35.

LU N, QIU J Y, YING Z X, et al. Effects of varying levels of dietary curcumin on growth performance,digestibility and serum parameters of weaned piglets[J]. Acta Ecologae Animalis Domastici, 2017, 38(1):30-35. (in Chinese)

[49]
NIU Y, HE J T, ZHAO Y W, et al. Effect of curcumin on growth performance,inflammation,insulin level,and lipid metabolism in weaned piglets with IUGR[J]. Animals, 2019, 9(12):1098.

DOI

[50]
SHI L G, XUN W J, PENG W Q, et al. Effect of the single and combined use of curcumin and piperine on growth performance,intestinal barrier function,and antioxidant capacity of weaned Wuzhishan piglets[J]. Frontiers in Veterinary Science, 2020,7:418.

[51]
ZHANG L G, ZHANG J Q, YAN E F, et al. Dietary supplemented curcumin improves meat quality and antioxidant status of intrauterine growth retardation growing pigs via Nrf2 signal pathway[J]. Animals, 2020, 10(3):539.

DOI

[52]
DIAS K K D R, TOCHETTO C, VARELA A P M, et al. Impact of weaning on piglet microbiota:differences in bacterial taxa and metabolic pathways associated with diarrhea[J]. Microbial Pathogenesis, 2025,207:107878.

[53]
LI Y M, WANG J, LIU Y C, et al. Antiviral and virucidal effects of curcumin on transmissible gastroenteritis virus in vitro[J]. The Journal of General Virology, 2020, 101(10):1079-1084.

DOI

[54]
JIANG Q C, LIU X Y, YUAN J B, et al. Curcumin activates the JAK-STAT signaling pathway to enhance the innate immune response against porcine epidemic diarrhea virus infection in vivo and in vitro[J]. Veterinary Microbiology, 2025,305:110535.

[55]
WANG X F, WANG X, ZHANG J L, et al. Prediction and verification of curcumin as a potential drug for inhibition of PDCoV replication in LLC-PK1 cells[J]. International Journal of Molecular Sciences, 2023, 24(6):5870.

DOI

[56]
GAN Z D, WEI W Y, LI Y, et al. Curcumin and resveratrol regulate intestinal bacteria and alleviate intestinal inflammation in weaned piglets[J]. Molecules, 2019, 24(7):1220.

DOI

[57]
YAN E F, ZHANG J Q, HAN H L, et al. Curcumin alleviates IUGR jejunum damage by increasing antioxidant capacity through Nrf2/Keap1 pathway in growing pigs[J]. Animals, 2019, 10(1):41.

DOI

[58]
NIU Y, HE J T, AHMAD H, et al. Dietary curcumin supplementation increases antioxidant capacity,upregulates Nrf2 and Hmox1 levels in the liver of piglet model with intrauterine growth retardation[J]. Nutrients, 2019, 11(12):2978.

DOI

[59]
JUHÁSZ Á, MOLNÁR-NAGY V, BATA Z, et al. Alternative to ZnO to establish balanced intestinal microbiota for weaning piglets[J]. PLoS One., 2022, 17(3):e0265573.

DOI

[60]
GAN Z D, WEI W Y, WU J M, et al. Resveratrol and curcumin improve intestinal mucosal integrity and decrease m6A RNA methylation in the intestine of weaning piglets[J]. ACS Omega, 2019, 4(17):17438-17446.

DOI

[61]
CORBETT J L, DUNCAN S A. iPSC-derived hepatocytes as a platform for disease modeling and drug discovery[J]. Frontiers in Medicine, 2019,6:265.

[62]
MA Z W, WANG N, HE H B, et al. Pharmaceutical strategies of improving oral systemic bioavailability of curcumin for clinical application[J]. Journal of Controlled Release, 2019,316:359-380.

[63]
SHARMA R A, EUDEN S A, PLATTON S L, et al. Phase Ⅰ clinical trial of oral curcumin:biomarkers of systemic activity and compliance[J]. Clinical cancer research:an official journal of the American Association for Cancer Research, 2004, 10(20):6847-6854.

DOI

[64]
DAHL T A, BILSKI P, RESZKA K J, et al. Photocytotoxicity of curcumin[J]. Photochemistry and Photobiology, 1994, 59(3):290-294.

PMID

[65]
HSU C H, CHENG A L. Clinical studies with curcumin[J]. Advances in Experimental Medicine and Biology, 2007,595:471-480.

[66]
BISHT S, FELDMANN G, SONI S, et al. Polymeric nanoparticle-encapsulated curcumin (“nanocurcumin”): a novel strategy for human cancer therapy[J]. Journal of Nanobiotechnology, 2007,5:3.

[67]
MUNIYAPPAN N, PANDEESWARAN M, AMALRAJ A. Green synthesis of Gold nanoparticles using Curcuma pseudomontana isolated curcumin:its characterization,antimicrobial,antioxidant and anti-inflammatory activities[J]. Environmental Chemistry and Ecotoxicology, 2021,3:117-124.

[68]
KIM J Y, MIN T, LEE S J. Nanospheres loaded with curcumin promote gut epithelial motility through F-actin-related migration signaling events[J]. The Journal of Nutritional Biochemistry, 2021,88:108555.

[69]
MONIRUZZAMAN M, KIM H, SHIN H, et al. Evaluation of dietary curcumin nanospheres in a weaned piglet model[J]. Antibiotics (Basel, Switzerland), 2021, 10(11):1280.

文章导航

/