综述

宿主遗传通过瘤胃微生物调控反刍动物经济性状的研究进展

  • 张晨光 , 1 ,
  • 武圣儒 1, 2 ,
  • 张俊 1, 2 ,
  • 姚军虎 , 1, 2, *
展开
  • 1 西北农林科技大学动物科技学院,杨凌 712100
  • 2 国家乳业技术创新中心,呼和浩特 010100
* 姚军虎,教授,博士生导师,E-mail:

张晨光(1994—),男,内蒙古呼和浩特人,博士研究生,从事反刍动物营养研究。E-mail:

Office editor: 田艳明

收稿日期: 2025-07-17

  网络出版日期: 2026-02-12

基金资助

国家乳业技术创新中心项目(2024-KFKT-011)

国家自然科学基金(32272829)

Research Progress on Regulation of Economic Traits in Ruminants by Host Genetics through Rumen Microbiota

  • ZHANG Chenguang , 1 ,
  • WU Shengru 1, 2 ,
  • ZHANG Jun 1, 2 ,
  • YAO Junhu , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
  • 2 National Center of Technology Innovation for Dairy, Hohhot 010100, China
* professor, E-mail:

Received date: 2025-07-17

  Online published: 2026-02-12

摘要

反刍动物瘤胃微生物对宿主营养代谢和生产性能的发挥起决定性作用。饲粮等环境因素显著改变瘤胃微生物的构成及其代谢活动。但近年的研究发现,相同饲粮饲养下瘤胃微生物仍存在显著的个体差异,且该差异与宿主生产性能密切相关,表明宿主遗传因素可调控瘤胃微生物区系。本文系统综述了瘤胃微生物的可遗传性特征、宿主遗传调控瘤胃微生物的潜在作用机制以及由瘤胃微生物介导的宿主遗传对经济性状的影响,以期为深入研究宿主遗传调控瘤胃微生物组,继而影响宿主生产性能的分子机制提供理论参考。

本文引用格式

张晨光 , 武圣儒 , 张俊 , 姚军虎 . 宿主遗传通过瘤胃微生物调控反刍动物经济性状的研究进展[J]. 动物营养学报, 2026 , 38(2) : 855 -865 . DOI: 10.12418/CJAN2026.067

Abstract

The rumen microbiota of ruminants plays a decisive role in host nutrient metabolism and performance. Environmental factors such as diet significantly alter the composition and metabolic activities of the rumen microbiota. However, recent studies have found that significant individual variations in rumen microbiota persist even under identical dietary conditions, and these variations are closely associated with host performance. This indicates that host genetic factors can regulate the rumen microbial community. This article systematically reviews the heritable characteristics of the rumen microbiota, potential mechanisms by which host genetics regulates rumen microbiota, and the impact of host genetics on economic traits mediated by the rumen microbiota. It aims to provide a theoretical foundation for further elucidating the molecular mechanisms through which host genetics influences performance via regulation of the rumen microbiome.

反刍动物具有独特的生理结构,其凭借瘤胃微生物的发酵作用,为自身的生长发育、产肉产奶等生理过程提供能量和底物。其中,瘤胃微生物可将饲粮中的碳水化合物发酵生成挥发性脂肪酸(VFA),为脂肪的从头合成(乙酸)和葡萄糖合成(丙酸)提供底物[1]。同时,瘤胃微生物也可利用肽、氨基酸和氨等小分子物质合成微生物蛋白供机体利用[2]。已有研究证实,高产反刍动物的瘤胃发酵效率更强,在其瘤胃中氨基酸、羧酸及脂肪酸类物质呈现显著富集态势[3-5]。因此,通过添加剂、改变饲粮结构等措施,并不一定能够改善瘤胃微生物区系,特别是对于瘤胃微生物区系已成熟稳定的成年反刍动物[6]。越来越多的研究发现,在相同饲粮饲养条件下,瘤胃微生物区系仍存在较大差异,且这种差异直接影响反刍动物的生产性能[7-9]。以上结果促使人们开始关注除饲粮以外影响瘤胃微生物的其他因素。
除饲粮外,瘤胃微生物区系还受到宿主品种的调控[10-13]。研究表明,在相同饲粮条件下,荷斯坦奶牛与泽西奶牛的瘤胃微生物组成存在明显差异[14],提示宿主遗传因素可能参与瘤胃微生物区系的调控过程。本课题组研究发现,给亚急性瘤胃酸中毒(subacute ruminal acidosis,SARA)耐受的奶山羊移植SARA发病奶山羊的瘤胃液,并未诱导其发生SARA[15]。由此说明,宿主在瘤胃微生物区系的调控中扮演着重要的角色。
肠道微生物的塑造由先天遗传因素控制,还是受后天饲粮等环境因素驱动一直是肠道微生物领域的关注热点之一。随着对肠道微生物与宿主互作研究的深入,宿主和饮食会以不同的方式影响肠道菌群,二者对于肠道菌群的塑造同等重要[16]。然而,大部分研究关注于胃肠道微生物组为宿主提供的益处,并且凭借这种互惠互利的关系来解释宿主与肠道菌群的互作[17]。从宿主和肠道菌群共进化的角度来看,这种理解是片面的[18-21]。例如,有益共生菌会产生特定的代谢产物从而让宿主受益,但是肠道菌群同时也存在利用肠腔资源,但是不产生对宿主有益的代谢产物,甚至自身生长对宿主有害的微生物[18]。这就需要宿主进化出多种特定的调控机制选择有益共生菌的生长,同时抑制有害菌的繁殖[22]。例如,免疫球蛋白A(IgA)对特定微生物基因型的靶向识别能力[23]。然而,微生物具备快速迭代繁殖的特性,能够在宿主的单个生命周期内迅速繁殖进化,这意味着微生物的进化速度要快于宿主[24]。这个过程能够使适应胃肠道环境的微生物被选择出来,例如,对1 430头猪的研究发现,ABO血型基因关键外显子缺失会导致N-乙酰半乳糖胺(N-acetyl-galactosamine,GalNAc)转移酶失活,使肠道内GalNAc浓度降低,进而影响依赖该碳源的丹毒丝菌科丰度[25]。该“血型-GalNAc-菌群”调控机制在人类中也保守存在,ABO血型可选择性富集具有特定GalNAc降解功能的盲肠微生物亚种[26]。相比之下,关于瘤胃微生物可遗传性及相应的宿主遗传位点的研究仍处在起步阶段。本文将总结瘤胃微生物的宿主遗传特征及其对经济性状的影响,以期为该领域的研究提供参考。

1 宿主遗传、瘤胃微生物与表型间的关系

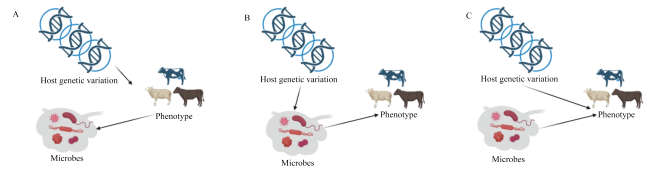
目前普遍认为,瘤胃菌群本质上是对宿主有益的生态系统,且该生态系统主要受饲粮的调节[27]。随着研究的深入,胃肠道微生物被视作“宿主第二基因组”,宿主基因组与胃肠道菌群呈现协同进化关系。宿主已进化出多种调控机制,通过持续监测和操纵其胃肠道菌群,以限制潜在危害并促进有益作用的发挥。然而,当部分胃肠道微生物进化到突破宿主调控机制的限制,进而逃避宿主控制时,这类进化可能对宿主产生不利影响[28]。基于这一认知,研究者开始将宿主遗传学的概念引入瘤胃微生物研究领域,并尝试将宿主基因组与自身瘤胃微生物的基因组相关联,以解释相关生物学现象[29]。当前研究认为,宿主遗传和瘤胃微生物对经济性状的调控方式包括以下3种(图1)[30]:1)宿主遗传直接影响经济性状,瘤胃微生物的变化仅是宿主表型变化后的结果(图1-A);2)宿主遗传直接调控瘤胃微生物,进而影响宿主经济性状(图1-B);3)瘤胃微生物和宿主遗传共同作用于宿主基因表达,进而影响经济性状(图1-C)。其中,第2种以瘤胃菌群作为宿主遗传调控经济性状中介的方式,成为相关研究的主要热点。
图1 宿主遗传和瘤胃微生物对宿主经济性状的调控方式

Host genetic variation:宿主遗传变异;Microbes:微生物;Phenotype:表型。

Fig.1 Regulatory methods of host genetics and rumen microbiota on host economic traits[30]

在宿主遗传调控瘤胃菌群的研究中,瘤胃菌群特征(多样性、微生物丰度及存在与否)被界定为宿主的复杂数量性状。该领域的研究集中在通过遗传力估计来表征瘤胃菌群中受宿主遗传调控的微生物特征,并进一步通过全基因组关联研究(genome-wide association study,GWAS)明确宿主调控瘤胃菌群的遗传位点变异[31]。瘤胃菌群的宿主可遗传性是指亲缘关系较近的宿主,其特定肠道菌群的丰度也更接近,不能简单理解为可从亲代稳定遗传的微生物[32]
在瘤胃菌群调控宿主经济性状的研究中,研究者开始用宿主遗传学的研究思维,将瘤胃菌群视为“第2个基因组”,借鉴遗传力的计算方法,计算宿主经济性状的微生物解释程度,称为肠菌力。同时,通过全微生物组关联分析方法挖掘影响经济性状的关键微生物[33]。随着微生物分析技术的升级,微生物基因组的结构变异与宿主表型的关联研究逐渐受到关注[34]。遗传学思维在微生物研究中的应用,不仅可通过肠菌力量化宿主性状受肠道微生物的影响程度,还能基于遗传学的大队列研究思路,摒弃传统的组间差异比较来寻找关键微生物的方法,转而是通过大样本量的关联分析,在无任何假设的前提下挖掘影响经济性状的关键微生物[35]。一个可以理解宿主遗传、微生物和表型性状关系的经典例子是,人类2号染色体上的乳糖酶(LCT)基因区域单核苷酸多态性(single nucleotide polymorphism,SNP)(rs4988235)与粪便中的双歧杆菌属(Bifidobacterium)密切相关,乳糖不耐受宿主由于自身无法代谢牛奶中的乳糖,会选择富集肠道双歧杆菌属代谢乳糖[36],且这一现象在多个人群队列研究中被发现证实[37-40]

2 瘤胃微生物的宿主遗传特征

反刍动物演化出独特的复胃系统,其中瘤胃作为核心发酵腔室,其结构(如容积、乳头密度与形态)和关键生理功能(唾液分泌与缓冲能力、食糜流通速率、上皮吸收与代谢、免疫屏障)直接影响到瘤胃微生物的组成和功能。研究发现,瘤胃上皮具有识别微生物的特异受体。健康奶牛瘤胃壁检测到Toll样受体4(TLR4)、白细胞介素(IL)-1βIL-10和半胱天冬酶-1(Caspase-1)的表达,并证明瘤胃组织细胞可识别瘤胃微生物,从而抵抗炎症性疾病的发生[41]。此外,通过不同反刍动物的比较基因组学和比较转录组学发现,从瘤胃上皮鉴定到与免疫功能相关的1个正选择基因[含核苷酸结合寡聚化结构域2(NOD2)]和3个新进化的基因[防御素β1(DEFB1)、溶菌酶1(LYZ1)和溶菌酶2B(LYZ2B)],对于抗菌肽的表达至关重要;体外验证试验发现,DEFB1和LYZ1基因体外表达后,可抑制革兰氏阳性菌的生长,与莫能菌素的调控功能一致[42]。分析幼龄反刍动物瘤胃发育过程中发现,瘤胃上皮表达IL-17信号转导和先天免疫应答相关基因,其中抗菌肽基因S100A9在整个瘤胃发育阶段高度表达,对瘤胃微生物演替具有持续调控作用[43]。以上研究均表明,反刍动物瘤胃上皮具备识别调控瘤胃微生物的能力,是理解宿主遗传调控瘤胃微生物的关键界面。

2.1 瘤胃微生物的可遗传性

瘤胃微生物研究中存在一个值得关注的现象,瘤胃内容物在排空或移植后会迅速恢复至原有的代谢状态。当将供体牛的瘤胃内容物转移至受体牛(受体牛约95%的瘤胃内容物已被清空)后,受体牛的瘤胃pH和VFA产量在24 h内即恢复至转移前的状态[44-45]。对于这一现象的成因,主要存在2种假说[6]:1)微生物“种子”假说。瘤胃微生物被排空后,受宿主遗传基因的选择作用(如瘤胃上皮的物理结构或宿主的免疫功能),“种子”微生物迅速定植,并协助受体的整个微生物群落定向重建。2)宿主选择压力假说。基于特定的遗传基因选择,宿主具备个性化的唾液缓冲、瘤胃pH调节、食糜流通速率以及免疫调节能力,在这些个性化功能的选择下,瘤胃微生物群落向着特定方向重建。若上述任一假说成立,均表明宿主遗传因素在微生物群落的建立与维持中具有重要作用。
宿主全基因组重测序研究证实,瘤胃中确实存在一部分可遗传微生物,且这类可遗传微生物多位于微生物的核心生态位,对整个微生物群落的建立至关重要[46-48]。这与瘤胃微生物重塑假说中的“种子”假说相呼应,即瘤胃微生物被排空后,迅速定植的“种子”微生物可能就是可遗传微生物,核心微生物定植以后,整个微生物群落向着特定方向重塑。关于可遗传微生物在微生物群落中的占比,部分研究认为该比例小于10%[49-50],这与大部分人类肠道微生物可遗传性研究的结果[37,40,51]一致;但也有研究发现该比例大于50%[47,52-53]。这种较大差异可能与物种和采样时间有关,例如对约300只狒狒的14年追踪试验发现,93%的肠道微生物具有可遗传性,且该可遗传性与季节、年龄有关[54];与以往研究发现人类少数肠道菌群有可遗传性的研究相比,该项研究发现肠道微生物组普遍存在可遗传性,这可能是由于人类肠道微生物遗传力估计的研究多为横断面研究,掩盖或改变了肠道菌群在不同时间的遗传力值。同时,有研究发现瘤胃微生物中可遗传操作分类单元(operational taxonomic unit,OTU)的数量是人类的10倍[46],这提示反刍动物宿主与其瘤胃微生物群落之间存在着深远的互作关系,可能是由于反刍动物对瘤胃微生物发酵的依赖更强,其对瘤胃微生物的调控能力也更为突出。因此,开展瘤胃微生物的宿主遗传特征研究具有重要意义。瘤胃微生物可遗传性相关研究见表1
表1 瘤胃微生物可遗传性相关研究

Table 1 Related researches on heritability of rumen microbiota

畜种
Livestock species
可遗传微生物
Heritable microbiota
可遗传微生物与经济性状间的关系
Relationship between heritable
microbiota and economic traits
参考文献
References
多品种
Multispecies
瘤胃球菌属(Ruminococcus)、纤维杆
菌属(Fibrobacter)、普雷沃氏菌科
(Prevotellaceae)
大多数可遗传OTU与RFI、
DMI和乳蛋白呈正相关
[46]
奶牛
Dairy cows
热原体目(Thermoplasmatales)、甲烷
短杆菌属(Methanobrevibacter)
宿主遗传和瘤胃微生物对甲烷
排放的影响相互独立
[50]
肉牛
Beef cattle
普雷沃氏菌属(Prevotella) 大多数可遗传微生物不直接参与甲烷排放,
而是通过竞争氢,抑制甲烷排放
[55]
奶牛
Dairy cows
普雷沃氏菌属、克里斯滕森菌科R-7群
(Christensenellaceae_R-7_group)、
[Ruminococcus]_gauvreauii
着重关注与DMI呈正相关,与RFI呈
负相关的可遗传ASV
[56-57]
肉牛
Beef cattle
瘤胃球菌科(Ruminococcaceae)、梭菌目
(Clostridiales)、琥珀酸弧菌科
(Succinivibrionaceae)
大多数可遗传微生物促进FCR、
ADG和DMI
[47]
肉羊
Mutton sheep
毛螺菌科(Lachnospiraceae)、互养
球菌属(Syntrophococcus)、
Oribacterium
着重关注与经济性状相关的可遗传
微生物,并未强调正负关系
[53]
奶牛
Dairy cows
颤螺菌科(Oscillospiraceae)、
Olsenella umbonata
可遗传微生物中,对泌乳性能正向和
负向影响的微生物均存在
[58]
奶牛
Dairy cows
毛螺菌科、瘤胃球菌科、克里斯
滕森菌科(Christensenellaceae)
[49]
雄性奶牛
Male dairy cattle
甲烷短杆菌属 无生产表型 [52]
奶牛
Dairy cows
普雷沃氏菌属、假丁酸弧菌属
(Pseudobutyrivibrio)
大多数可遗传微生物通过丙酸型
发酵促进泌乳性能的提升
[48]

OTU:操作分类单元 operational taxonomic unit;ASV:扩增子序列变异 amplicon sequence variant;RFI:剩余采食量 residual feed intake;DMI:干物质采食量 dry matter intake;FCR:饲料转化率 feed conversion ratio;ADG:平均日增重 average daily gain。

目前研究普遍认为,哺乳动物肠道克里斯滕森菌科(Christensenellaceae)具有较高的遗传力,且与宿主健康密切相关[37,40,54],而瘤胃微生物中尚未有公认的可遗传微生物分类群。例如,对于与甲烷排放直接相关的古细菌,部分研究认为其可遗传性高于细菌[50,52],另有研究则认为其可遗传性较低[55];关于瘤胃拟杆菌门(Bacteroidetes)的可遗传性也存在争议,对肉牛的瘤胃微生物遗传力评估显示,包括普雷沃氏菌科(Prevotellaceae)在内的拟杆菌门多数微生物属于低遗传力微生物,并强调这类微生物可能更易受饲粮的影响[47],这与部分奶牛的研究结果[50]一致。但也有研究发现拟杆菌门中的普雷沃氏菌科属于高可遗传微生物,且对宿主生产性能发挥至关重要[55]。在泌乳期奶牛瘤胃微生物可遗传性研究中,由于奶牛所处的泌乳期并不一致,所得可遗传分类群也不统一[46,49,59],但同为泌乳天数50~150 d的2项研究均发现普雷沃氏菌科属于高可遗传微生物[48,59]。此外,微生物的测序方法可能也是影响可遗传分类群判定的原因之一,由于微生物可遗传性的研究需基于大样本,为了扩大样本量,绝大部分研究主要采用扩增子测序对微生物组进行分析,这种方法仅能关注到属水平微生物,可能掩盖了微生物实际的可遗传性。例如,部分研究发现琥珀酸弧菌科(Succinivibrionaceae)属于可遗传微生物[46-47],但本课题组基于瘤胃微生物宏基因组测序的结果显示,种水平Succinivibrionaceae bacterium、琥珀酸弧菌属(Succinivibrio)sp.和Succiniclasticum ruminis均属于低遗传力微生物,仅Succiniclasticum sp.属于可遗传微生物[48]。综上可知,瘤胃微生物的可遗传性研究仍存在显著争议,这种不一致性可能源于宿主物种(如奶牛、肉牛)、生理阶段(如泌乳期差异)、环境因素(如饲粮组成)以及技术方法(如扩增子测序的分辨率限制)等多重因素的干扰。未来研究需结合宏基因组测序与大样本队列,在控制宿主生理状态和环境变量的基础上,进一步完善不同条件下瘤胃微生物的可遗传性。

2.2 瘤胃微生物的宿主全基因组关联分析

将微生物作为复杂性状,利用GWAS的方法,研究者可获得与特定微生物类群相关的宿主遗传变异位点SNP,这是明晰宿主遗传调控肠道微生物机制的关键环节。通过这种方法发现,人类研究已获得宿主遗传调控肠道微生物进而影响表型的经典模型,例如上文提到的乳糖不耐受的例子。但到目前为止,尚未鉴定宿主遗传调控瘤胃微生物的公认遗传位点,且不同研究间重合的SNP或其注释基因重合较低。例如,奶牛卷曲螺旋富丝氨酸蛋白1(CCSER1)基因与细胞分裂密切相关,有研究表明该基因调控瘤胃中毛螺菌科(Lachnospiraceae)[49]或布氏普雷沃氏菌(Prevotella bryantii)[48]。迄今,笔者还没有找到不同研究间相同的调控模式(相同遗传变异影响相同瘤胃微生物分类群)。
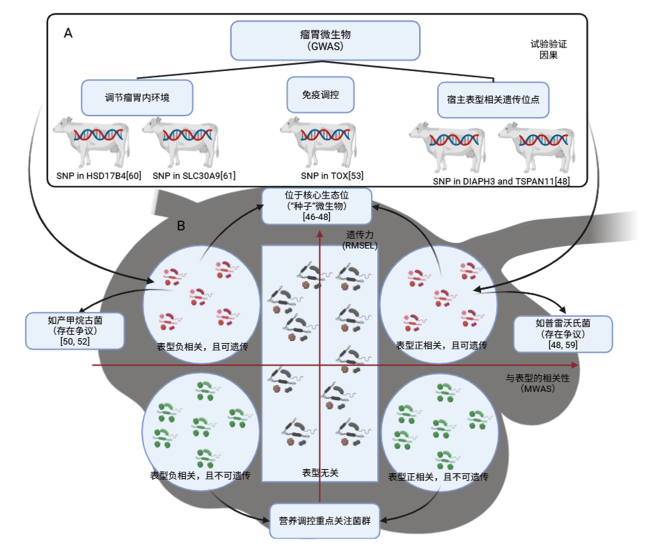
宿主遗传变异通过多种途径塑造瘤胃微生物,其中3类位点受到研究者们的重点关注(图2-A):1)调节瘤胃内环境相关位点。例如,Bai等[58]发现羟基类固醇17-β脱氢酶4(HSD17B4)基因(已被证实会影响瘤胃上皮对VFA的吸收和代谢[60])可能通过调节瘤胃pH影响瘤胃微生物;Zhang等[48]则发现溶质载体家族30成员9(SLC30A9)基因(已被证明通过转运锌离子,维持宿主锌稳态[61])可能通过调控瘤胃中的锌离子浓度,进而影响瘤胃微生物的碳水化合物代谢能力。2)宿主免疫功能相关位点。Wang等[53]发现胸腺细胞选择相关高迁移率群盒蛋白(TOX)基因可能通过调节免疫T细胞调控乳球菌属ND3007群(Lactococcus_ND3007_group)。3)调控宿主经济性状相关位点。宿主的某些遗传位点可能通过影响瘤胃微生物组成进而调控经济性状。例如:Li等[47]鉴定了5个与瘤胃微生物相关的宿主SNP,这些位点已被证实与肉牛饲料转化效率显著关联;Zhang等[48]发现奶牛基因透明相关成蛋白3(DIAPH3)和四次跨膜蛋白11(TSPAN11)可能通过影响假丁酸弧菌属(Pseudobutyrivibrio)sp.和甲烷粒菌属(Methanocorpusculum)sp.的定植,进而调控饲料转化效率。此外,宿主瘤胃上皮是与瘤胃微生物直接接触的组织,可能在瘤胃微生物调控中扮演着重要的角色。因此,Wang等[52]在宿主全基因组重测序的基础上,加入瘤胃上皮转录组测序,与GWAS相比,通过全转录组关联研究(transcriptome-wide association study,TWAS)可检测到更多与微生物相关的基因表达信号。但需注意的是,基因表达不止受宿主遗传的影响,这些基因表达信号需要与宿主遗传信号重叠,才能突出宿主遗传的调控作用[62]。目前,大多数关于宿主遗传对瘤胃微生物的调控机制仍主要停留在基于遗传位点注释基因功能推测层面,尚需更多的验证工作。
图2 瘤胃微生物分类与育种策略矩阵

GWAS:全基因组关联研究 genome-wide association study;SNP:单核苷酸多态性 single nucleotide polymorphism;HSD17B4:羟基类固醇17-β脱氢酶4 hydroxysteroid 17-β dehydrogenase 4;SLC30A9:溶质载体家族30成员9 solute carrier family 30 member 9;TOX:胸腺细胞选择相关高迁移率群盒蛋白 thymocyte selection associated high mobility group box;DIAPH3:透明相关成蛋白3 diaphanous related formin 3;TSPAN11:四次跨膜蛋白11 tetraspanin 11;RMSEL:均方根对数误差 root mean squared logarithmic error;MWAS:全宏基因组关联研究 metagenome-wide association study。

Fig.2 Rumen microbiota classification and breeding strategy matrix[56-57]

3 由瘤胃微生物介导的宿主遗传对经济性状的影响

将遗传力的概念引入到瘤胃微生物组研究,研究者将瘤胃微生物分为4类(图2-B):1)与经济性状无关的微生物;2)与经济性状相关但不可遗传的微生物;3)与经济性状正相关且可遗传的微生物;4)与经济性状负相关且可遗传的微生物。基于该分类,研究者认为第2类的微生物可能适用于外部干预(如营养调控或饲养管理措施),而第3、4类的微生物则具有应用于选育计划的潜力[56-57]。针对第3类微生物的多项奶牛研究发现,这类微生物可促进瘤胃丙酸型发酵[48-49,55],由于丙酸的能量转化效率更高,这种发酵模式最终可提高宿主的泌乳性能。进一步利用宏基因组的方法研究发现,普雷沃氏菌属(Prevotella)的α淀粉酶模块GH13和低聚寡糖降解模块GH10、GH43、GH95和GH115属于可遗传碳水化合物活性酶(CAZyme)模块,且促进瘤胃丙酸的合成[48]。瘤胃丙酸型发酵可通过竞争氢离子的方式抑制甲烷排放[63]。因此,可遗传微生物可能在瘤胃甲烷排放中扮演着重要的角色,这也是相关研究的重点关注表型之一。
反刍动物甲烷排放源于瘤胃微生物发酵,相关研究也一直尝试通过营养调控的方式降低甲烷排放,但是由于需要平衡与生产性能的关系[64]、成本问题以及添加剂本身的副作用[65]等,导致营养调控的效果并不理想。为此,研究者开始关注甲烷排放的遗传选育,其中瘤胃微生物是不可或缺的研究环节。现有研究表明,奶牛甲烷排放属于中度遗传性状[66-67],尽管甲烷排放对于宿主是能量浪费和生产性能损失,但是在遗传相关性上,甲烷排放量与能量校正乳(ECM)产量呈现正相关关系[67-68],这一矛盾关系提示,甲烷减排选育需综合考虑甲烷排放与产奶量之间的遗传权衡。因此,基于单位采食量或产奶量的甲烷排放量(而非绝对排放量)可能更适用于遗传选育策略。此外,甲烷排放的瘤胃微生物遗传力(即微生物对宿主遗传的响应程度)低于宿主本身的遗传力[50],这进一步表明遗传选育在调控甲烷排放方面具有更高潜力。而目前宿主遗传调控甲烷排放的潜在方式主要有3种:1)直接影响产甲烷古菌丰度[50,53],甲烷短杆菌属(Methanobrevibacter)等产甲烷菌的丰度受宿主遗传调控,宿主基因可通过改变瘤胃古菌群落直接减少甲烷生成;2)间接调控细菌群落功能[48,55],拟杆菌门等可遗传细菌可通过限制产甲烷底物(如氢气)、抑制古菌活性或协调微生物互作间接降低甲烷排放;3)调控瘤胃上皮代谢功能[52],宿主基因可能通过瘤胃上皮的ATP合酶等代谢途径,竞争性消耗氢离子,从而抑制产甲烷过程。综合以上来看,尽管甲烷排放源于微生物发酵,但是遗传选育的潜力较大,未来研究应兼顾宿主遗传与微生物组协同作用,开发兼顾减排效益与经济性状的精准育种方案;同时,宿主通过调控可遗传微生物进而影响甲烷排放的机制还需要深度挖掘。

4 小结与展望

不同于单胃动物,反刍动物对粗饲料的高效利用高度依赖于瘤胃微生物的发酵功能。现有证据表明,瘤胃微生物区系与乳蛋白合成效率、甲烷排放及饲料转化率等关键经济性状密切相关[3,69]。当前全球畜牧业面临提升生产效益与减少环境足迹的双重挑战,而传统营养调控手段因受限于生产性能平衡、成本及副作用等因素难以突破瓶颈[64-65]。奶牛经济性状作为复杂数量性状,其改善需要兼顾宿主遗传背景、瘤胃微生物区系和营养素代谢等多因素。然而,与哺乳动物肠道微生物研究相比,瘤胃微生物的宿主可遗传性研究仍处在起步阶段。目前,尚未明确界定可遗传瘤胃微生物的分类群,同时,宿主遗传调控瘤胃微生物区系的机制也不清晰,限制了精准育种策略的应用。
因此,整合多组学技术(GWAS、宏基因组、代谢组)与纵向队列设计,挖掘可靠的宿主遗传位点十分重要。同时,可进一步借助孟德尔随机化的方法,突破相关性关系的局限,挖掘与反刍动物经济性状有因果关系的瘤胃微生物[70]。而且,目前相关研究关注的表型主要是在反刍动物的经济性状(泌乳性能、甲烷排放和体重等),未来研究可聚焦到健康表型(如瘤胃酸中毒和酮病)和适应性表型(如高海拔和热应激)。此外,该领域研究也需开展更多的验证试验,例如跨群体验证、基因编辑验证和体外发酵或是模式动物试验验证,以深入解析宿主遗传调控瘤胃微生物的机制。相关领域研究进展可促进针对瘤胃微生物发酵性能的宿主选育,并设计针对性饲粮,实现高效精准营养。
[1]
邓露, 张俊, 姚军虎. 胃肠道-肝脏-乳腺协同调节奶牛乳成分的机制[J]. 动物营养学报, 2022, 34(10):6193-6202.

DOI

DENG L, ZHANG J, YAO J H. Mechanism of gastrointestinal tract-liver-mammary gland co-regulating milk components of dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6193-6202. (in Chinese)

DOI

[2]
MATTHEWS C, CRISPIE F, LEWIS E, et al. The rumen microbiome:a crucial consideration when optimising milk and meat production and nitrogen utilisation efficiency[J]. Gut Microbes, 2019, 10(2):115-132.

DOI

[3]
SHABAT S K B, SASSON G, DORON-FAIGENBOIM A, et al. Specific microbiome-dependent mechanisms underlie the energy harvest efficiency of ruminants[J]. The ISME Journal, 2016, 10(12):2958-2972.

DOI

[4]
RIUS A G, KITTELMANN S, MACDONALD K A, et al. Nitrogen metabolism and rumen microbial enumeration in lactating cows with divergent residual feed intake fed high-digestibility pasture[J]. Journal of Dairy Science, 2012, 95(9):5024-5034.

DOI PMID

[5]
DIJKSTRA J, FORBES J M, FRANCE J. Quantitative aspects of ruminant digestion and metabolism[M]. 2nd ed.Wallingford, UK:CABI:2005.

[6]
PITTA D W, INDUGU N, BAKER L, et al. Symposium review:understanding diet-microbe interactions to enhance productivity of dairy cows[J]. Journal of Dairy Science, 2018, 101(8):7661-7679.

DOI

[7]
ZHANG C G, WANG M Y, LIU H F, et al. Multi-omics reveals that the host-microbiome metabolism crosstalk of differential rumen bacterial enterotypes can regulate the milk protein synthesis of dairy cows[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):63.

DOI PMID

[8]
XUE M Y, SUN H Z, WU X H, et al. Multi-omics reveals that the rumen microbiome and its metabolome together with the host metabolome contribute to individualized dairy cow performance[J]. Microbiome, 2020, 8(1):64.

DOI

[9]
马利鑫. 不同单产水平奶牛瘤胃微生物区系及代谢物的比较研究[D]. 硕士学位论文. 银川: 宁夏大学,2023:8-38.

MA L X. Comparative study on rumen microflora and metabolites of dairy cows with different yield levels[D]. Master’s Thesis. Yinchuan: Ningxia University,2023:8-38. (in Chinese)

[10]
GUAN L L, NKRUMAH J D, BASARAB J A, et al. Linkage of microbial ecology to phenotype:correlation of rumen microbial ecology to cattle’s feed efficiency[J]. FEMS Microbiology Letters, 2008, 288(1):85-91.

DOI

[11]
HENDERSON G, COX F, GANESH S, et al. Rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2015, 5(1):14567.

DOI

[12]
LI F Y, HITCH T C A, CHEN Y H, et al. Comparative metagenomic and metatranscriptomic analyses reveal the breed effect on the rumen microbiome and its associations with feed efficiency in beef cattle[J]. Microbiome, 2019, 7(1):6.

DOI PMID

[13]
LANGDA S, ZHANG C G, ZHANG K, et al. Diversity and composition of rumen bacteria,fungi,and protozoa in goats and sheep living in the same high-altitude pasture[J]. Animals, 2020, 10(2):186.

DOI

[14]
PAZ H A, ANDERSON C L, MULLER M J, et al. Rumen bacterial community composition in Holstein and jersey cows is different under same dietary condition and is not affected by sampling method[J]. Frontiers in Microbiology, 2016,7:1206.

[15]
陈晓东. 奶山羊亚急性瘤胃酸中毒发生及易感性差异的宿主与微生物互作机制[D]. 博士学位论文. 杨凌: 西北农林科技大学,2023:18-111.

CHEN X D. The roles of host-microbe interaction in affecting the occurrence and inter-individual susceptibility differences of subacute ruminal acidosis in dairy goats[D]. Ph.D. Thesis. Yangling: Northwest A&F University,2023:18-111. (in Chinese)

[16]
YOUNGBLUT N D, REISCHER G H, WALTERS W, et al. Host diet and evolutionary history explain different aspects of gut microbiome diversity among vertebrate clades[J]. Nature Communications, 2019, 10(1):2200.

DOI PMID

[17]
SHARP C, FOSTER K R. Host control and the evolution of cooperation in host microbiomes[J]. Nature Communications, 2022, 13(1):3567.

DOI PMID

[18]
KIERS E T, ROUSSEAU R A, WEST S A, et al. Host sanctions and the legume-rhizobium mutualism[J]. Nature, 2003, 425(6953):78-81.

DOI

[19]
DOUGLAS A E, WERREN J H. Holes in the hologenome:why host-microbe symbioses are not holobionts[J]. mBio, 2016, 7(2):e02099.

[20]
AXELROD R, HAMILTON W D. The evolution of cooperation[J]. Science, 1981, 211(4489):1390-1396.

DOI PMID

[21]
VAN VLIET S, DOEBELI M. The role of multilevel selection in host microbiome evolution[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(41):20591-20597.

DOI PMID

[22]
ZHANG C G, LIU H F, SUN L, et al. An overview of host-derived molecules that interact with gut microbiota[J]. iMeta, 2023, 2(2):e88.

DOI PMID

[23]
VAN DER WAAIJ L A, LIMBURG P C, MESANDER G, et al. In vivo IgA coating of anaerobic bacteria in human faeces[J]. Gut, 1996, 38(3):348-354.

DOI

[24]
SCHLUTER J, FOSTER K R. The evolution of mutualism in gut microbiota via host epithelial selection[J]. PLoS Biology, 2012, 10(11):e1001424.

DOI

[25]
YANG H, WU J Y, HUANG X C, et al. ABO genotype alters the gut microbiota by regulating GalNAc levels in pigs[J]. Nature, 2022, 606(7913):358-367.

DOI

[26]
ZHERNAKOVA D V, WANG D M, LIU L, et al. Host genetic regulation of human gut microbial structural variation[J]. Nature, 2024, 625(7996):813-821.

DOI

[27]
FRESE S A, PARKER K, CALVERT C C, et al. Diet shapes the gut microbiome of pigs during nursing and weaning[J]. Microbiome, 2015, 3(1):28.

DOI

[28]
WILDE J, SLACK E, FOSTER K R. Host control of the microbiome:mechanisms,evolution,and disease[J]. Science, 2024, 385(6706):eadi3338.

[29]
ROSS E M, MOATE P J, MARETT L C, et al. Metagenomic predictions:from microbiome to complex health and environmental phenotypes in humans and cattle[J]. PLoS One, 2013, 8(9):e73056.

DOI

[30]
LUCA F, KUPFER S S, KNIGHTS D, et al. Functional genomics of host-microbiome interactions in humans[J]. Trends in Genetics, 2018, 34(1):30-40.

DOI

[31]
文超良, 孙从佼, 杨宁. 从遗传力到肠菌力:概念及研究进展[J]. 遗传, 2019, 41(11):1023-1040.

WEN C L, SUN C J, YANG N. The concepts and research progress:from heritability to microbiability[J]. Hereditas, 2019, 41(11):1023-1040. (in Chinese)

[32]
GOODRICH J K, DAVENPORT E R, WATERS J L, et al. Cross-species comparisons of host genetic associations with the microbiome[J]. Science, 2016, 352(6285):532-535.

DOI PMID

[33]
QIN J J, LI Y R, CAI Z M, et al. A metagenome-wide association study of gut microbiota in type 2 diabetes[J]. Nature, 2012, 490(7418):55-60.

DOI

[34]
ZEEVI D, KOREM T, GODNEVA A, et al. Structural variation in the gut microbiome associates with host health[J]. Nature, 2019, 568(7750):43-48.

DOI

[35]
NIELSEN H B, ALMEIDA M, JUNCKER A S, et al. Identification and assembly of genomes and genetic elements in complex metagenomic samples without using reference genomes[J]. Nature Biotechnology, 2014, 32(8):822-828.

DOI

[36]
BLEKHMAN R, GOODRICH J K, HUANG K, et al. Host genetic variation impacts microbiome composition across human body sites[J]. Genome Biology, 2015, 16(1):191.

DOI

[37]
GOODRICH J K, DAVENPORT E R, BEAUMONT M, et al. Genetic determinants of the gut microbiome in UK twins[J]. Cell Host & Microbe, 2016, 19(5):731-743.

[38]
BONDER M J, KURILSHIKOV A, TIGCHELAAR E F, et al. The effect of host genetics on the gut microbiome[J]. Nature Genetics, 2016, 48(11):1407-1412.

DOI PMID

[39]
ROTHSCHILD D, WEISSBROD O, BARKAN E, et al. Environment dominates over host genetics in shaping human gut microbiota[J]. Nature, 2018, 555(7695):210-215.

DOI

[40]
GOODRICH J K, WATERS J L, POOLE A C, et al. Human genetics shape the gut microbiome[J]. Cell, 2014, 159(4):789-799.

DOI PMID

[41]
TREVISI E, AMADORI M, RIVA F, et al. Evaluation of innate immune responses in bovine forestomachs[J]. Research in Veterinary Science, 2014, 96(1):69-78.

DOI PMID

[42]
PAN X Y, CAI Y D, LI Z J, et al. Modes of genetic adaptations underlying functional innovations in the rumen[J]. Science China Life Sciences, 2021, 64(1):1-21.

DOI

[43]
PAN X Y, LI Z J, LI B B, et al. Dynamics of rumen gene expression,microbiome colonization,and their interplay in goats[J]. BMC Genomics, 2021, 22(1):288.

DOI

[44]
WEIMER P J, STEVENSON D M, MERTENS D R. Shifts in bacterial community composition in the rumen of lactating dairy cows under milk fat-depressing conditions[J]. Journal of Dairy Science, 2010, 93(1):265-278.

DOI PMID

[45]
WEIMER P J, STEVENSON D M, MANTOVANI H C, et al. Host specificity of the ruminal bacterial community in the dairy cow following near-total exchange of ruminal contents[J]. Journal of Dairy Science, 2010, 93(12):5902-5912.

DOI PMID

[46]
WALLACE R J, SASSON G, GARNSWORTHY P C, et al. A heritable subset of the core rumen microbiome dictates dairy cow productivity and emissions[J]. Science Advances, 2019, 5(7):eaav8391.

[47]
LI F Y, LI C X, CHEN Y H, et al. Host genetics influence the rumen microbiota and heritable rumen microbial features associate with feed efficiency in cattle[J]. Microbiome, 2019, 7(1):92.

DOI PMID

[48]
ZHANG C G, LIU H F, JIANG X W, et al. An integrated microbiome- and metabolome-genome-wide association study reveals the role of heritable ruminal microbial carbohydrate metabolism in lactation performance in Holstein dairy cows[J]. Microbiome, 2024, 12(1):232.

DOI PMID

[49]
ZANG X W, SUN H Z, XUE M Y, et al. Heritable and nonheritable rumen bacteria are associated with different characters of lactation performance of dairy cows[J]. mSystems, 2022, 7(5):e0042222.

DOI

[50]
DIFFORD G F, PLICHTA D R, LØVENDAHL P, et al. Host genetics and the rumen microbiome jointly associate with methane emissions in dairy cows[J]. PLoS Genetics, 2018, 14(10):e1007580.

DOI

[51]
GACESA R, KURILSHIKOV A, VICH VILA A, et al. Environmental factors shaping the gut microbiome in a Dutch population[J]. Nature, 2022, 604(7907):732-739.

DOI

[52]
WANG W, WEI Z Y, LI Z H, et al. Integrating genome- and transcriptome-wide association studies to uncover the host-microbiome interactions in bovine rumen methanogenesis[J]. iMeta, 2024, 3(5):e234.

DOI

[53]
WANG W M, ZHANG Y K, ZHANG X X, et al. Heritability and recursive influence of host genetics on the rumen microbiota drive body weight variance in male Hu sheep lambs[J]. Microbiome, 2023, 11(1):197.

DOI

[54]
GRIENEISEN L, DASARI M, GOULD T J, et al. Gut microbiome heritability is nearly universal but environmentally contingent[J]. Science, 2021, 373(6551):181-186.

DOI PMID

[55]
MARTÍNEZ-ÁLVARO M, AUFFRET M D, DUTHIE C A, et al. Bovine host genome acts on rumen microbiome function linked to methane emissions[J]. Communications Biology, 2022, 5(1):350.

DOI

[56]
MARTINEZ-BOGGIO G, MONTEIRO H F, LIMA F S, et al. Investigating relationships between the host genome,rumen microbiome,and dairy cow feed efficiency using mediation analysis with structural equation modeling[J]. Journal of Dairy Science, 2024, 107(10):8193-8204.

DOI

[57]
MARTINEZ BOGGIO G, MONTEIRO H F, LIMA F S, et al. Host and rumen microbiome contributions to feed efficiency traits in Holstein cows[J]. Journal of Dairy Science, 2024, 107(5):3090-3103.

DOI

[58]
BAI H, LAI Z, ZHANG J W, et al. Host genetic regulation of specific functional groups in the rumen microbiome of dairy cows:implications for lactation trait[J]. Journal of Advanced Research, 2025,75:111-122.

[59]
SASSON G, KRUGER BEN-SHABAT S, SEROUSSI E, et al. Heritable bovine rumen bacteria are phylogenetically related and correlated with the cow’s capacity to harvest energy from its feed[J]. mBio, 2017, 8(4):e00703-17.

[60]
LI W, ZHENG M Q, ZHAO G P, et al. Identification of QTL regions and candidate genes for growth and feed efficiency in broilers[J]. Genetics Selection Evolution, 2021, 53(1):13.

DOI PMID

[61]
COVERDALE J P C, KHAZAIPOUL S, ARYA S, et al. Crosstalk between zinc and free fatty acids in plasma[J]. Biochimica et Biophysica Acta:Molecular and Cell Biology of Lipids, 2019, 1864(4):532-542.

[62]
GIAMBARTOLOMEI C, VUKCEVIC D, SCHADT E E, et al. Bayesian test for colocalisation between pairs of genetic association studies using summary statistics[J]. PLoS Genetics, 2014, 10(5):e1004383.

DOI

[63]
李宗军. 瘤胃丙酸发酵的增强策略及其对碳水化合物代谢的动态影响[D]. 博士学位论文. 杨凌: 西北农林科技大学,2018:22-73.

LI Z J. The ruminal manipulation strategies for enhancing propionate fermentation and their dynamic effects on carbohydrate metabolism[D]. Ph.D. Thesis. Yangling: Northwest A&F University,2018:22-73. (in Chinese)

[64]
ZHANG C G, JIANG X W, WU S R, et al. Dietary fat and carbohydrate-balancing the lactation performance and methane emissions in the dairy cow industry:a Meta-analysis[J]. Animal Nutrition, 2024,17:347-357.

[65]
ALMEIDA A K, HEGARTY R S, COWIE A. Meta-analysis quantifying the potential of dietary additives and rumen modifiers for methane mitigation in ruminant production systems[J]. Animal Nutrition, 2021, 7(4):1219-1230.

DOI PMID

[66]
VAN BREUKELEN A E, ALDRIDGE M N, VEERKAMP R F, et al. Heritability and genetic correlations between enteric methane production and concentration recorded by greenfeed and sniffers on dairy cows[J]. Journal of Dairy Science, 2023, 106(6):4121-4132.

DOI PMID

[67]
BREIDER I S, WALL E, GARNSWORTHY P C. Short communication:heritability of methane production and genetic correlations with milk yield and body weight in Holstein-Friesian dairy cows[J]. Journal of Dairy Science, 2019, 102(8):7277-7281.

DOI

[68]
VAN BREUKELEN A E, DE HAAS Y, ALDRIDGE M N, et al. Genetic relationships among methane emissions from breath,dry matter intake,body weight,and milk production traits of Dutch dairy cows[J]. Journal of Dairy Science, 2025, 108(7):7278-7296.

DOI

[69]
XUE M Y, SUN H Z, WU X H, et al. Assessment of rumen bacteria in dairy cows with varied milk protein yield[J]. Journal of Dairy Science, 2019, 102(6):5031-5041.

DOI PMID

[70]
XUE M Y, XIE Y Y, ZANG X W, et al. Deciphering functional groups of rumen microbiome and their underlying potentially causal relationships in shaping host traits[J]. iMeta, 2024, 3(4):e225.

DOI

文章导航

/