综述

β-酪蛋白衍生阿片肽对肠道健康的调控作用研究进展

  • 诺民 ,
  • 金鹿 ,
  • 张春华 ,
  • 孙海洲 , *
展开
  • 内蒙古自治区农牧业科学院,内蒙古自治区草食动物营养科学重点实验室,农业农村部草食家畜健康养殖与畜产品品质调控重点实验室(部省共建),呼和浩特 010031
* 孙海洲,研究员,博士生导师,E-mail:

诺 民(1989—),男,内蒙古呼和浩特人,助理研究员,博士,从事动物营养与饲料科学研究。E-mail:

Office editor: 陈燕

收稿日期: 2025-07-18

  网络出版日期: 2026-02-12

基金资助

内蒙古自治区草食动物营养科学重点试验室(2025KYPT0080)

“英才兴蒙”工程二层次团队(2025TEL18)

国家绒毛用羊产业技术体系(CARS-39-11)

农业农村部草食家畜健康养殖与畜产品品质调控重点实验室

Research Progress on Regulatory Effects of β-Casein-Derived Opioid Peptides on Gut Health

  • NUO Min ,
  • JIN Lu ,
  • ZHANG Chunhua ,
  • SUN Haizhou , *
Expand
  • Key Laboratory of Grass-Feeding Livestock Health Breeding and Livestock Product Quality Control (Co-Construction by Ministry and Province), Ministry of Agriculture and Rural Affairs, Inner Mongolia Key Laboratory of Herbivorous Animal Nutrition, Inner Mongolia Academy of Agriculture & Animal Husbandry Sciences, Hohhot 010031, China
* professor, E-mail:

Received date: 2025-07-18

  Online published: 2026-02-12

摘要

食物来源性阿片肽是一类由胃肠道蛋白酶水解产生的生物活性肽,具有与内源性阿片肽相似的生理功能。以β-酪啡肽7(BCM-7)为代表的β-酪蛋白衍生阿片肽,能够通过与μ型阿片受体(MOR)结合,进而调节肠道黏液的分泌,影响肠道屏障的完整性、炎症反应及微生物群的平衡,从而实现调节肠道干细胞的功能。相反,慢性或高浓度阿片类物质暴露会降低肠道上皮修复能力,增加肠道通透性,从而导致微生物及其代谢产物向肠道基底层移位并触发促炎反应。本文综述了β-酪蛋白衍生阿片肽的生成机制及其对肠道屏障功能、炎症反应和微生态的影响,并结合肠道干细胞的相关研究进展,阐明这些阿片肽在维持和调控肠道健康中的潜在机制。

本文引用格式

诺民 , 金鹿 , 张春华 , 孙海洲 . β-酪蛋白衍生阿片肽对肠道健康的调控作用研究进展[J]. 动物营养学报, 2026 , 38(2) : 879 -888 . DOI: 10.12418/CJAN2026.069

Abstract

Food-derived opioid peptides are a class of bioactive peptides generated by gastrointestinal proteolysis, possessing physiological functions analogous to endogenous opioid peptides. Representative β-casein-derived opioid peptides, particularly β-casomorphin-7 (BCM-7), can interact with the μ-opioid receptor (MOR). This interaction enables them to modulate intestinal mucus secretion, influence intestinal barrier integrity, inflammatory responses, and microbiota balance, thereby regulating the function of intestinal stem cells. Conversely, chronic or high-concentration exposure to opioid substances may impair intestinal epithelial repair capacity and increase permeability, facilitating the translocation of microbes and their metabolites to the basal lamina and triggering pro-inflammatory responses. This review summarizes the generation mechanisms of β-casein-derived opioid peptides and their impacts on intestinal barrier function, inflammation, and microecology. By integrating recent advances in intestinal stem cell research, it elucidates the potential mechanisms through which these peptides maintain and regulate intestinal health.

食物来源性阿片肽是一类具有阿片类特性的生物活性肽,主要由食物蛋白质在胃肠道消化过程中经蛋白酶水解产生。这些肽分子在神经系统、免疫系统和消化系统等多种生理过程中发挥着重要作用[1]。例如,乳制品中的阿片肽在酶促消化后被释放,并展现出类似阿片类的活性特征。这些阿片肽通过与μ型、δ型和κ型等阿片类受体结合,发挥类似于内源性阿片肽的生理效应[2-3]。乳制品中的蛋白质主要由酪蛋白和乳清蛋白组成,其中酪蛋白占比约为80%[4],酪蛋白主要由α-酪蛋白、β-酪蛋白和κ-酪蛋白组成。β-酪蛋白在消化过程中能释放出一系列长短不一的β-酪啡肽(β-casomorphin,BCM),尤其是其能稳定、高效地释放出强效阿片肽BCM-7,牛乳的β-酪蛋白有众多变型,目前至少已发现12种不同的变型[5],其中最常见和研究最深入的是A1型和A2型。研究表明,A1型β-酪蛋白衍生阿片肽(如BCM-7)可以与μ型阿片受体(μ-opioid receptor,MOR)结合[6]。BCM-7与吗啡、芬太尼等阿片类药物均以μ型阿片受体为主要作用靶点,该受体属G蛋白偶联受体(GPCR),在肠上皮细胞、肠神经系统、免疫细胞及中枢神经系统中广泛分布。借助这一共同靶点,上述阿片类物质不仅在缓解疼痛、调节情绪和食欲等方面具有潜在的作用,而且也能对维系肠道健康产生重要影响,尤其是在肠道屏障功能、炎症反应和肠道微生物群平衡等方面[6-7]
肠道屏障是维持肠道稳态的关键生理结构,主要由上皮细胞、黏液层、紧密连接蛋白以及免疫屏障组成,能有效阻隔有害物质进入体内[8]。肠道干细胞作为上皮细胞更新与损伤修复的关键细胞群体,对于维持屏障结构的完整性至关重要[9]。肠道屏障的稳态依赖于干细胞持续的分化与更新功能[10]。然而,在多种生理或病理状态下,包括慢性炎症、氧化应激或营养信号紊乱等条件,干细胞功能可能受到内源性或外源性因素的负面调控,导致上皮更新过程受阻,屏障结构遭到破坏。进一步研究发现,干细胞功能障碍与多种信号通路密切相关,尤其是Wnt、Notch和哺乳动物雷帕霉素靶蛋白复合体1(mammalian target of rapamycin complex 1,mTORC1)等在干细胞命运决定及营养信号传导中的异常调控[11]。上述信号网络的紊乱不仅会抑制干细胞自我更新与分化潜能,也会加剧屏障功能的破坏,从而导致肠道通透性增加及炎症反应加剧,形成恶性循环。
尽管已有研究表明,β-酪蛋白衍生阿片肽在肠道屏障和炎症调控中发挥重要作用,但其对肠道干细胞的影响仍缺乏系统研究。本文综述了β-酪蛋白衍生阿片肽的生成机制及其对肠道屏障功能、炎症反应和微生态的影响,并结合肠道干细胞的相关研究进展,阐明其在维持和调控肠道健康中的潜在作用机制。

1 β-酪蛋白衍生阿片肽的释放差异

奶牛β-酪蛋白由β-酪蛋白基因(casein β,CSN2)编码,在牛群中CSN2存在多种等位基因变体[12]。A1和A2型β-酪蛋白是最常见的2种蛋白质变体,它们的蛋白质序列仅相差1个氨基酸。具体来说,在β-酪蛋白的第67位氨基酸位置,A2型为脯氨酸(proline,Pro),而A1型为组氨酸(histidine,His)。导致这一氨基酸差异的根本原因,在于编码β-酪蛋白的CSN2上发生了一个关键的单核苷酸多态性[第67位单核苷酸多态性(SNP 67)]:在A2型β-酪蛋白对应的基因序列中,此位点编码脯氨酸;而在A1型中,此位点因等位基因自然突变,使对应的氨基酸变为组氨酸[13]。在许多牛品种中,A2型β-酪蛋白等位基因出现的频率较高。例如,在非洲和亚洲牛种中,A2型β-酪蛋白等位基因占优势,而A1型则在部分欧洲牛品种中更为常见[14]。这种脯氨酸转变为组氨酸的氨基酸置换不仅改变了β-酪蛋白的一级结构,还引起蛋白质二级结构构象的差异[15],由于脯氨酸具有独特的环状结构,对多肽链构象影响较大,β-酪蛋白的分子结构和酪蛋白胶束的某些物理性质可能发生改变,该区别为A1型和A2型β-酪蛋白在消化过程中的行为差异奠定了基础[16]
A1型和A2型β-酪蛋白在胃肠道蛋白酶作用下释放的肽段存在显著差异,尤其体现在BCM-7的生成上。A1型β-酪蛋白的肽键对胃肠道蛋白酶的抵抗性较低,易被水解,因此在消化过程中更容易释放出BCM-7肽段[16-17]。相比之下,A2型β-酪蛋白由于在同一位置的脯氨酸肽键对酶切更具抵抗力,不易断裂,导致其释放的BCM-7显著减少[16-17]。试验证明,在体外模拟胃肠道消化条件下,A1型β-酪蛋白能被胃蛋白酶、胰弹性蛋白酶和亮氨酸氨肽酶水解,释放BCM-7;而A2型β-酪蛋白几乎检测不到BCM-7[16,18]。A1型β-酪蛋白在第67位氨基酸位置上消除了脯氨酸对蛋白酶切割的构象阻碍,使得酶能在该位点附近裂解出BCM-7,而A2型β-酪蛋白在该位点阻碍了酶切[16]。因此,含A1型β-酪蛋白的牛奶在消化过程中释放的BCM-7浓度通常高于只含A2型β-酪蛋白的牛奶[17]。这一差异表明A1型和A2型β-酪蛋白在生物活性肽生成方面的显著区别。同样,Zoghbi等[19]研究指出,A1型β-酪蛋白在人类胃肠道消化中会产生BCM-7,A2型β-酪蛋白几乎不产生,而BCM-7作为A1型β-酪蛋白的衍生物,可能通过影响肠道上皮细胞的功能,干扰肠道屏障的完整性,导致如慢性肠炎、乳糜泻等[20]。牛奶中A1型和A2型β-酪蛋白对胃肠道效应及BCM-7释放的量化差异见表1
表1 A1型和A2型β-酪蛋白对胃肠道效应及BCM-7释放的量化差异

Table 1 Quantitative differences in gastrointestinal effects and BCM-7 release between A1 type and A2 type β-casein[20]

项目
Items
A1型β-酪蛋白
A1 type β-casein
A2型β-酪蛋白
A2 type β-casein
差异
Differences
P
P-value
β-酪啡肽7释放
BCM-7 release
极低/可忽略 显著
所有参与者的大便性状
Stool property of all participants
3.87 3.56 显著 0.04
女性参与者的大便性状
Stool property of female participants
3.93 3.50 显著 0.01
腹痛与布里斯托大便分类法评分的相关性
Correlation between abdominal pain and Bristol
Stool Form Scale scores
显著正相关 无显著正相关 显著 <0.001
粪便钙卫蛋白含量异常参与者数Number of
participants with elevated FC content
3人>100 μg/g 0人>100 μg/g
不耐受者症状加重
Worsening of symptoms in individuals with intolerance
不显著

大便性状通过布里斯托大便分类法进行评分,评分标准:1型为分离的硬块,如坚果,很难排出;2型为腊肠状,但表面凹凸不平;3型为腊肠状,表面有裂纹;4型为光滑柔软的香蕉或蛇状,是最理想状态,表明肠道功能良好,消化和水分吸收正常;5型为软团状,边缘清晰;6型为绒状,糊状大便,边缘不清;7型为水样,无固体成分。

Stool property was assessed using the Bristol Stool Form Scale, with the following scoring criteria: type 1, separate hard lumps, like nuts, difficult to pass; type 2, sausage-shaped but lumpy; type 3, sausage-shaped with cracks on its surface; type 4, like a banana or snake, smooth and soft, representing the ideal form and indicating good bowel function with normal digestion and water absorption; type 5, soft blobs with clear-cut edges; type 6, fluffy pieces with ragged edges, mushy consistency; type 7, watery, no solid fragments.

2 β-酪蛋白衍生阿片肽与肠道屏障功能的关系

BCM-7对胃肠道黏蛋白(mucin,MUC)的调节作用已被广泛证实,其作用主要通过μ型阿片受体介导。Woodford等[21]发现,BCM-7主要通过激活阿片受体的神经通路显著刺激大鼠空肠黏蛋白分泌。BCM-7能够通过与肠道细胞上的μ型阿片受体结合,激活该受体通路。这一受体在肠道上皮细胞,特别是在肠道的黏蛋白分泌细胞--杯状细胞中有高度表达。BCM-7通过2种机制调节黏蛋白的分泌:1)BCM-7通过激活肠道内的神经通路,包括迷走神经等,快速诱导黏液分泌;2)BCM-7还可以直接作用于肠道的杯状细胞,增加黏蛋白基因的表达,进而刺激黏液的分泌。这一效应是μ型阿片受体介导的,且通过预处理阿片受体拮抗剂,可以有效抑制BCM-7引起的黏蛋白分泌,证明其依赖于μ型阿片受体的激活。BCM-7对黏蛋白分泌的影响呈剂量依赖性和时间依赖性特点。研究显示,在较高浓度(1×10⁻⁴ mol/L)和较长时间(8 h)的刺激下,黏蛋白分泌增加显著,且其效果在24 h内仍然存在[19]。这些研究共同表明,BCM-7与μ型阿片受体的相互作用是其影响黏蛋白调节的关键机制。
食物来源性阿片肽主要指食物蛋白质经消化产生的阿片类多肽片段,其中研究最为集中的是牛奶β-酪蛋白衍生的BCM-7。研究显示,BCM-7可以穿越血脑屏障,并在中枢神经系统(central nervous system,CNS)细胞上发挥作用,在体外神经干细胞分化试验中,加入1 μmol/L的BCM-7并培养4 h后,神经干细胞分化过程会受影响[6],这一效应被认为与神经发生相关基因的表观遗传学变化有关。
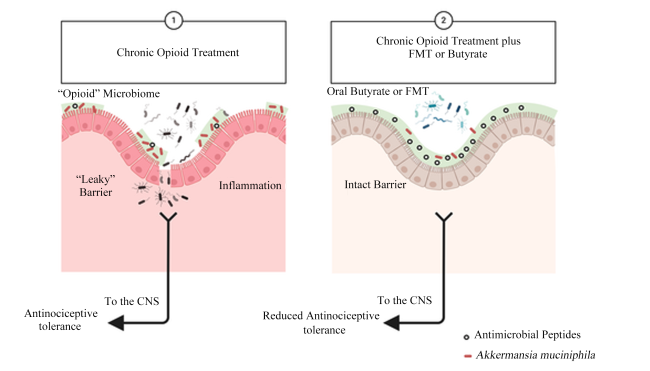
研究发现,阿片类药物会破坏肠道上皮屏障功能(图1)[22]。A1型β-酪蛋白释放的BCM-7会导致小鼠肠道炎症指标升高,如髓过氧化物酶(myeloperoxidase,MPO)活性增加和肠蠕动变慢,而改喂不产生BCM-7的A2型β-酪蛋白则没有这些不良变化[19]。阿片受体拮抗剂纳洛酮可逆转A1型β-酪蛋白引起的炎症和动力学异常,从而确认了这些效应是经由阿片受体介导[19]。由此推断,BCM-7通过激活肠道阿片受体,促发了炎症通路和肠神经反射的改变,间接影响干细胞环境,如炎症因子可抑制干细胞功能,蠕动变慢则延长上皮与有害物接触时间。除了促炎效应,BCM-7还被发现会刺激肠道杯状细胞分泌黏液。体外研究表明,加入BCM-7可增加肠上皮杯状细胞的黏蛋白基因表达和黏液分泌[19]。该作用可被纳洛酮阻断,说明是阿片受体介导的。杯状细胞产黏液增多可能是机体对BCM-7的一种保护性反应,形成黏液屏障以减少肠黏膜对有害物质的通透[19]。但是,也有观点认为这可能改变干细胞分化的平衡,因为Notch信号下降往往会使更多干细胞走向杯状细胞谱系[19]。尽管尚无直接证据表明BCM-7可作用于肠道干细胞,但A1型β-酪蛋白已被证实能改变肠黏膜结构和上皮细胞更新,提示BCM-7可能通过诱发炎症并干扰分化程序,间接调控肠道干细胞行为。
图1 长期阿片类药物治疗会通过减少抗菌肽来破坏肠道上皮屏障功能

Chronic Opioid Treatment:慢性阿片类药物治疗;“Opioid” Microbiome:“阿片类”微生物组;“Leaky” Barrier:屏障受损;Inflammation:炎症;To the CNS:至中枢神经系统;Antinociceptive tolerance:抗伤害感受性耐受;Chronic Opioid Treatment plus FMT or Butyrate:慢性阿片类药物治疗+粪菌移植或丁酸盐;Oral Butyrate or FMT:口服丁酸盐或粪菌移植;Intact Barrier:屏障完整;Reduced Antinociceptive tolerance:抗伤害感受性耐受减轻;Antimicrobial Peptides:抗菌肽;Akkermansia muciniphila:嗜黏蛋白阿克曼氏菌。

Fig.1 Long-term opioid therapy impairs intestinal epithelial barrier function by reducing the expression of antimicrobial peptides[22]

在体内,这些效应往往与肠道通透性和免疫状态交织。健康人中绝大部分食物来源性阿片肽在肠道被酶解失活或被上皮屏障阻挡,而在某些群体中,如婴幼儿肠道未成熟、肠漏综合征等屏障功能不成熟的群体中,这些肽更容易穿越黏膜层,甚至进入血液循环[23],从而有机会作用于干细胞微环境。未来借助类器官培养和动物模型,直接评估BCM-7等对干细胞增殖与分化的直接影响,将有助于明确其生理与病理意义。

3 β-酪蛋白衍生阿片肽对干细胞相关信号通路的影响

干细胞的自我更新与分化由多条保守信号通路精细调控,其中Wnt和Notch信号通路尤为关键[19,24]。阿片肽与其受体结合后,能够影响这些信号通路的活性,从而影响干细胞命运[25]
Wnt信号通路对于维持干细胞“干性”至关重要,例如维持肠道隐窝基底部干细胞增殖,阻止其过度分化。已有神经系统研究发现,激活阿片受体可干扰Wnt蛋白的分泌过程[26]。具体而言,μ型阿片受体可与Wnt蛋白分泌必需因子G蛋白偶联受体177(G protein-coupled receptor 177,GPR177)蛋白抗体形成复合物。给予阿片激动剂(如吗啡)会导致GPR177与μ型阿片受体共聚与膜边缘,抑制Wnt蛋白的分泌[27]。这一机制在中枢神经系统被认为会导致慢性吗啡处理后Wnt信号减弱,进而引起神经元树突萎缩和神经新生减少。由此推测,在干细胞环境中,例如肠道潘氏细胞分泌Wnt维持肠道干细胞,若有阿片肽过度激活μ型阿片受体,可能限制Wnt供应,并抑制干细胞增殖。然而,需要注意这种作用可能因组织环境而异,目前直接证据主要来自神经系统模型[23]
Notch信号通路通过细胞间接触调节干细胞分化方向,在肠道中高Notch活性维持干细胞和吸收祖细胞命运,而低Notch活性促使其分化为分泌型细胞(如杯状细胞、潘氏细胞、肠内分泌细胞等)。阿片肽对Notch信号通路的影响呈现情境依赖性。研究发现,在中枢神经系统的星形胶质细胞-神经元相互作用模型中,吗啡激活胶质细胞的μ型阿片受体后,可触发Notch受体1(Notch receptor 1,Notch-1)信号级联:吗啡通过胶质细胞的c-Jun氨基末端激酶(c-Jun N-terminal kinase,JNK)信号通路激活了相邻神经元的受体Notch-1[23]。Notch-1活化会下调组蛋白去乙酰化酶1(histone deacetylase 1,HDAC1),进而使得蛋白激酶C(protein kinase C,PKC)和细胞外信号调节激酶(extracellular signal-regulated kinase,ERK)过度磷酸化,加速μ型阿片受体的脱敏与内化,从而促进阿片类物质耐受的形成[23]。研究表明,激活μ型阿片受体可以通过细胞间通信增强Notch信号活性,重塑靶细胞的基因表达模式。相反,在肠道中,慢性阿片类物质暴露却抑制Notch信号活性。在人源化人类免疫缺陷病毒(human immunodeficiency virus,HIV)小鼠模型的研究发现,吗啡处理后的小肠隐窝Ki-67抗原阳性(Ki-67+)增殖细胞显著减少,伴随隐窝细胞中活化的Notch-1水平及下游靶基因Hes1的转录同步下降[28]。这提示吗啡使肠道隐窝干细胞区的Notch信号活性下降,与再生受损相一致[29]。Notch信号活性受损会倾向于干细胞过早分化为分泌细胞,从而耗竭干细胞库并削弱上皮再生能力。上述结果提示,阿片肽对Notch信号通路的调控具有复杂性:在某些系统中,如中枢,可增强Notch信号活性,而在肠道则减弱其信号活性[23,29],效应方向可能取决于细胞类型、炎症或者感染等微环境因素以及阿片肽作用的时程。
尽管已有研究表明,β-酪蛋白衍生阿片肽在肠道功能中可能发挥一定的生理作用,尤其在调节肠道屏障功能和炎症反应方面,但其对肠道干细胞功能的直接影响仍缺乏系统证据。后续需借助类器官等精准模型明确验证,以阐明其作用机制并拓展其在肠道健康调控中的潜在应用。

4 β-酪蛋白衍生阿片肽对小鼠模型中肠道组织和功能的影响

早期的研究已探讨了BCM-7在动物模型中的促炎效应,结果表明,BCM-5和BCM-7可能通过驱动分化簇4(CD4)阳性辅助性T细胞2型[Th2(CD4+)]免疫应答,在小鼠肠道内诱导炎症反应[28]。试验进一步证实,口服BCM-7和BCM-5补充剂可以增强白细胞介素-4(IL-4)和组胺等炎症细胞因子的表达,从而持续激活小鼠的免疫反应。特别地,A2型牛奶喂养组通过调节B细胞和T细胞中特定蛋白质[如CD4和分化簇19(CD19)]的水平,表现出免疫调节作用[30]。因此,A2型牛奶的摄入有助于缓解与年龄相关的免疫系统变化,例如感染易感性和疫苗反应能力的下降。
BCM-7能够增加肠道通透性,导致肠道屏障功能的改变,进而影响肠道健康。尤其是BCM-7通过激活μ型阿片受体在肠道上皮细胞中产生作用,从而促进通透性增加[31-32]。肠道屏障的破坏会导致有害物质渗透并引发炎症反应,进而影响肠道干细胞的功能。在小鼠模型中,β-酪蛋白衍生的BCM-7对肠道干细胞功能的影响主要表现在肠道屏障功能、免疫反应以及肠道细胞更新等方面。研究表明,BCM-7对肠道屏障的影响在A1型与A2型β-酪蛋白之间有显著差异[33]。A1型β-酪蛋白所释放的BCM-7通过μ型阿片受体激活,能够增强肠道通透性,导致肠道屏障功能受损。在小鼠模型中,A1型β-酪蛋白组出现肠道屏障破坏的迹象,包括肠道通透性增高以及闭合蛋白(occludin)和闭锁小带蛋白-1(zonula occludens-1,ZO-1)等紧密连接蛋白的表达量下调[34]。这可能导致有害物质更容易穿透肠黏膜,诱发炎症反应,进而影响肠道干细胞的功能。

5 β-酪蛋白衍生阿片肽在类器官模型中的应用

为阐明BCM-7对肠道上皮及微生物群的影响,研究者将BCM-7加入人源肠道类器官中,系统评估其对上皮发育、细胞更新及微生物代谢产物调控中的作用[35];结果显示,BCM-7可能通过调节肠上皮-微生物互作而影响上皮细胞更新,但其对肠干细胞的直接作用效应仍需进一步定量验证。在饲喂A1型β-酪蛋白的小鼠体内,BCM-7释放显著放大肠道炎症,表现为髓过氧化物酶活性升高,提示中性粒细胞浸润及局部炎症发生;与此同时,BCM-7刺激肠道杯状细胞黏液分泌增多,可能作为对屏障破坏的代偿性保护。应用阿片受体拮抗剂纳洛酮能够显著逆转上述炎症变化,进一步证实BCM-7通过μ型阿片受体依赖途径介导其生物学效应[36]

6 β-酪蛋白衍生阿片肽对肠道微生物群的影响

现有研究已揭示,阿片类药物与肠道微生物群之间存在复杂的双向互作,这种互作可能潜在调控阿片类药物的耐受和疗效;尽管有证据表明,肠道微生物群失调可能促进耐受性并降低其镇痛效果[37],但目前尚无足够的证据明确表明,针对肠道微生物群的干预措施可以显著减轻耐受或提高疗效。因此,尽管恢复肠道微生物群平衡来改善阿片类药物的治疗策略具有理论吸引力,如何将这一策略转化为有效的实际干预仍需更多系统研究以进一步验证[38]
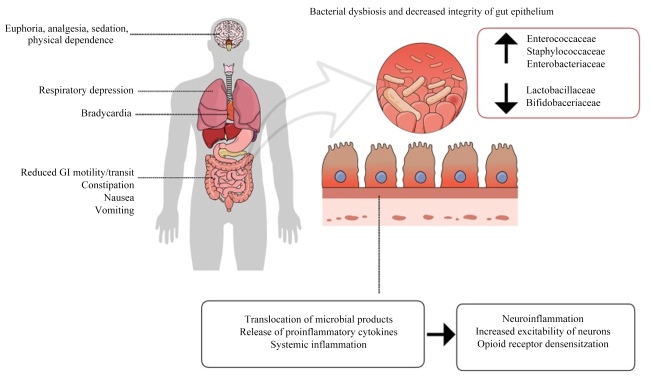
阿片肽与肠道微生物群的互作主要体现在多个层面。1)阿片肽可显著改变肠道微生物群的组成与多样性,表现为乳酸杆菌和双歧杆菌等有益微生物群减少,而葡萄球菌、肠杆菌等潜在致病微生物相对增多[38](图2)。具体而言,肠道微生物群中常见的与慢性阿片类药物处理相关的相对丰度显著增加的菌属之一是肠球菌属[37],如粪肠球菌(Enterococcus faecalis,E. faecalis)。这些细菌能够耐受氧气和厌氧环境的交替,并在阿片类药物的长期使用中增加,这一现象在动物模型和人类研究中都有观察到[39]。葡萄球菌属(Staphylococcus)、变形杆菌属(Proteus)及某些条件致病微生物在长期阿片类药物处理的小鼠模型中观察到丰度增加。研究发现,常见拟杆菌门(Bacteroidetes)丰度下降[37],可能与通透性变化、炎症及胆汁酸代谢异常相关。研究发现,A2型β-酪蛋白的摄入引起乳杆菌属(Lactobacillus)丰度增加[37],同时,A2型酪蛋白的摄入与瘤胃球菌科(Ruminococcaceae)及Lactobacillus的相对丰度呈正相关,而A1型酪蛋白的摄入有时伴随链球菌科(Streptococcaceae)和乳球菌属(Lactococcus)相对丰度的增加,这或与特定炎症相关菌群的相对丰度变化相关[40]。2)阿片肽长期作用于肠道时,会损害上皮屏障,增加肠道通透性并破坏紧密连接蛋白,从而导致微生物及其产物进入血液循环,诱发系统性炎症[38]。3)阿片肽减缓胃肠道蠕动[41],延长食糜停留时间,为某些微生物群过度繁殖创造条件。4)阿片肽对免疫系统具有抑制作用,削弱了局部肠道免疫防御[42],从而进一步推动炎症反应和微生物群失调的恶性循环。这些机制共同揭示了阿片肽与肠道微生物群之间复杂而双向的互作关系[40]
图2 阿片类药物对胃肠道系统产生影响,如便秘、恶心和呕吐

Bacterial dysbiosis and decreased integrity of gut epithelium:肠道菌群失调与肠道上皮完整性降低;Euphoria, analgesia, sedation, physical dependence:欣快感、镇痛、镇静、躯体依赖;Respiratory depression:呼吸抑制;Bradycardia:心动过缓;Enterococcaceae:肠球菌科;Staphylococcaceae:葡萄球菌科;Enterobacteriaceae:肠杆菌科;Lactobacillaceae:乳杆菌科;Bifidobaceriaceae:双歧杆菌科;Reduced GI motility/transit:胃肠道动力/传输减弱;Constipation:便秘;Nausea:恶心;Vomiting:呕吐;Translocation of microbial products:微生物产物易位;Release of proinflammatory cytokines:促炎细胞因子释放;Systemic inflammation:全身性炎症;Neuroinflammation:神经炎症;Increased excitability of neurons:神经元兴奋性增加;Opioid receptor densensitzation:阿片受体脱敏。

Fig.2 Effects of opioid drugs on gastrointestinal system, such as constipation, nausea and vomiting[38]

阿片类药物会重塑肠道微生物群,而肠道微生物群亦通过刺激炎症及干扰肠-脑轴信号反馈,反向调控阿片类药物耐受性[43]。因此推断,这种炎症环境可能会使外周疼痛纤维敏感,导致阿片类药物疗效下降,并且迫使剂量递增才能维持相等疗效。此外,肠道微生物群组成变化还与阿片类药物戒断症状的发生与程度密切相关[44]

7 β-酪蛋白衍生阿片肽对畜禽生理与肠道健康的影响

酪蛋白衍生阿片肽,特别是BCM,作为食物来源性阿片肽在畜禽生理中的潜在作用日益受到关注。BCM在不同畜禽模型中能够同步调节生长性能、肠道生理功能以及微生物群组成,展现出潜在的营养调控与代谢调节的双重作用。现有研究显示,BCM可调节胃肠动力、内分泌激素释放及营养代谢通路,从而影响采食行为、日增重及脂质沉积[45]。在家禽试验中,高剂量BCM处理能够提高采食量和日增重、降低料重比,并伴随血清胰岛素水平升高与胰高血糖素水平下降,驱动肝脏、肌肉及脂肪组织中脂肪酸和甘油三酯合成相关的关键酶活性上调,调控多条脂质代谢相关基因的表达,进一步促进体脂沉积[45]。此外,在啮齿类和反刍动物研究中发现,BCM可调节肠道黏液分泌、上皮屏障功能及胃肠蠕动节律,为其改善肠道健康的机制提供线索[7]。综上所述,BCM在畜禽生长性能、内分泌稳态和肠道生理中的作用已得到试验性证据支持,但物种差异与剂量-效应关系仍需进一步明确;现阶段多数试验局限于啮齿类(鼠类)或体外模型试验,针对畜禽体内的研究数据十分有限。

8 小结

本综述强调了β-酪蛋白衍生阿片肽维持肠道稳态的潜在机制,为阐明乳源活性肽与肠道健康的内在关联提供了系统性理论框架;然而,目前针对BCM-7直接调控肠道干细胞的实证研究仍较为有限,尤其缺乏基于不同遗传背景牛奶来源、不同剂量及不同暴露时间条件下的多维度比较分析。未来研究需整合类器官模型、高通量组学与精准动物模型,深入揭示β-酪蛋白衍生阿片肽调控肠道干细胞命运及其与微生物群互作的分子机制,从而为乳制品功能评价、精准营养干预策略及分子育种设计提供科学依据。

感谢大连理工大学化学化工学院李爽博士对本文所提的宝贵意见。

[1]
LIU Z Z, UDENIGWE C C. Role of food-derived opioid peptides in the central nervous and gastrointestinal systems[J]. Journal of Food Biochemistry, 2019, 43(1):e12629.

DOI

[2]
KOSTYRA E, SIENKIEWICZ-SZŁAPKA E, JARMOŁOWSKA B, et al. Opioid peptides derived from milk proteins[J]. Polish Journal of Food and Nutrition Sciences, 2004, 13/54(Suppl.1):25-35.

[3]
TESCHEMACHER H. Opioid receptor ligands derived from food proteins[J]. Current Pharmaceutical Design, 2003, 9(16):1331-1344.

PMID

[4]
MØLGAARD C, LARNKJÆR A, ARNBERG K, et al. Milk and growth in children:effects of whey and casein[J]. Nestle Nutrition Workshop Series.Paediatric Programme, 2011,67:67-78.

[5]
SEBASTIANI C, ARCANGELI C, CIULLO M, et al. Frequencies evaluation of β-casein gene polymorphisms in dairy cows reared in central Italy[J]. Animals, 2020, 10(2):252.

DOI

[6]
DE VASCONCELOS M L, OLIVEIRA L M F S, HILL J P, et al. Difficulties in establishing the adverse effects of β-casomorphin-7 released from β-casein variants-A review[J]. Foods, 2023, 12(17):3151.

DOI

[7]
BOLAT E, EKER F, YILMAZ S, et al. BCM-7:opioid-like peptide with potential role in disease mechanisms[J]. Molecules, 2024, 29(9):2161.

DOI

[8]
VANCAMELBEKE M, VERMEIRE S. The intestinal barrier:a fundamental role in health and disease[J]. Expert Review of Gastroenterology & Hepatology, 2017, 11(9):821-834.

[9]
CHOI J, AUGENLICHT L H. Intestinal stem cells:guardians of homeostasis in health and aging amid environmental challenges[J]. Experimental & Molecular Medicine, 2024, 56(3):495-500.

[10]
LUO H M, LI M X, WANG F, et al. The role of intestinal stem cell within gut homeostasis:focusing on its interplay with gut microbiota and the regulating pathways[J]. International Journal of Biological Sciences, 2022, 18(13):5185-5206.

DOI

[11]
张得香, 朱超, 周加义, 等. 酵母培养物促进干细胞增殖分化、改善小鼠肠上皮完整性[J]. 动物营养学报, 2022, 34(6):3962-3971.

DOI

ZHANG D X, ZHU C, ZHOU J Y, et al. Yeast culture promotes stem cell proliferation and differentiation and improves intestinal epithelial integrity of mice[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3962-3971. (in Chinese)

DOI

[12]
BISUTTI V, PEGOLO S, GIANNUZZI D, et al. The β-casein (CSN2) A2 allelic variant alters milk protein profile and slightly worsens coagulation properties in Holstein cows[J]. Journal of Dairy Science, 2022, 105(5):3794-3809.

DOI PMID

[13]
UL HAQ M R, KAPILA R, SHANDILYA U K, et al. Impact of milk derived β-casomorphins on physiological functions and trends in research:a review[J]. International Journal of Food Properties, 2014, 17(8):1726-1741.

DOI

[14]
NUOMIN, NGUYEN Q D, AODAOHU, et al. Frequency of β-casein gene polymorphisms in Jersey cows in western Japan[J]. Animals, 2022, 12(16):2076.

DOI

[15]
RAYNES J K, DAY L, AUGUSTIN M A, et al. Structural differences between bovine A(1) and A(2) β-casein alter micelle self-assembly and influence molecular chaperone activity[J]. Journal of Dairy Science, 2015, 98(4):2172-2182.

DOI PMID

[16]
CIEŚLIŃSKA A, FIEDOROWICZ E, ROZMUS D, et al. Does a little difference make a big difference?Bovine β-casein A1 and A2 variants and human health-an update[J]. International Journal of Molecular Sciences, 2022, 23(24):15637.

DOI

[17]
ZINBIUS L, KEUTER L, KRISCHEK C, et al. Influence of the β-casein genotype of cow’s milk (A1,A2) on the quality and β-casomorphin-7 (BCM-7) content of a semi-hard cheese during production[J]. Foods, 2025, 14(3):463.

DOI

[18]
JINSMAA Y, YOSHIKAWA M. Enzymatic release of neocasomorphin and β-casomorphin from bovine β-casein[J]. Peptides, 1999, 20(8):957-962.

DOI

[19]
ZOGHBI S, TROMPETTE A, CLAUSTRE J, et al. β-casomorphin-7 regulates the secretion and expression of gastrointestinal mucins through a μ-opioid pathway[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2006, 290(6):G1105-G1113.

[20]
HO S, WOODFORD K, KUKULJAN S, et al. Comparative effects of A1 versus A2 beta-casein on gastrointestinal measures:a blinded randomised cross-over pilot study[J]. European Journal of Clinical Nutrition, 2014, 68(9):994-1000.

DOI

[21]
WOODFORD K B. Casomorphins and gliadorphins have diverse systemic effects spanning gut,brain and internal organs[J]. International Journal of Environmental Research and Public Health, 2021, 18(15):7911.

DOI

[22]
MUCHHALA K H, KALLURKAR P S, KANG M, et al. The role of morphine-and fentanyl-induced impairment of intestinal epithelial antibacterial activity in dysbiosis and its impact on the microbiota-gut-brain axis[J]. The FASEB Journal, 2024, 38(8):e23603.

DOI

[23]
JIN J, KITTANAKOM S, WONG V, et al. Interaction of the mu-opioid receptor with GPR177 (Wntless) inhibits Wnt secretion:potential implications for opioid dependence[J]. BMC Neuroscience, 2010,11:33.

[24]
BHAVANASI D, KLEIN P S. Wnt signaling in normal and malignant stem cells[J]. Current Stem Cell Reports, 2016, 2(4):379-387.

DOI PMID

[25]
RAJAKULENDRAN N, ROWLAND K J, SELVADURAI H J, et al. Wnt and notch signaling govern self-renewal and differentiation in a subset of human glioblastoma stem cells[J]. Genes & Development, 2019, 33(9/10):498-510.

DOI

[26]
CHE T, ROTH B L. Molecular basis of opioid receptor signaling[J]. Cell, 2023, 186(24):5203-5219.

DOI PMID

[27]
FLANAGAN D J, AUSTIN C R, VINCAN E, et al. Wnt signalling in gastrointestinal epithelial stem cells[J]. Genes, 2018, 9(4):178.

DOI

[28]
MENG J J, BANERJEE S, ZHANG L, et al. Opioids impair intestinal epithelial repair in HIV-infected humanized mice[J]. Frontiers in Immunology, 2020,10:2999.

[29]
SANNA M D, BORGONETTI V, GALEOTTI N. μ opioid receptor-triggered Notch-1 activation contributes to morphine tolerance:role of neuron-glia communication[J]. Molecular Neurobiology, 2020, 57(1):331-345.

DOI

[30]
UL HAQ M R, KAPILA R, SHARMA R, et al. Comparative evaluation of cow β-casein variants (A1/A2) consumption on Th2-mediated inflammatory response in mouse gut[J]. European Journal of Nutrition, 2014, 53(4):1039-1049.

DOI PMID

[31]
SEMWAL R, JOSHI S K, SEMWAL R B, et al. Effects of A1 and A2 variants of β-casein on human health-is β-casomorphin-7 really a harmful peptide in cow milk?[J]. Nutrire, 2022, 47(1):8.

DOI

[32]
MARKOWIAK P, ŚLIŻEWSKA K. Effects of probiotics,prebiotics,and synbiotics on human health[J]. Nutrients, 2017, 9(9):1021.

DOI

[33]
GONZÁLEZ-RODRÍGUEZ N, VÁZQUEZ-LIZ N, RODRÍGUEZ-SAMPEDRO A, et al. The impact of A1-and A2 β-casein on health outcomes:a comprehensive review of evidence from human studies[J]. Applied Sciences, 2025, 15(13):7278.

DOI

[34]
VINDIGNI S M, ZISMAN T L, SUSKIND D L, et al. The intestinal microbiome,barrier function,and immune system in inflammatory bowel disease:a tripartite pathophysiological circuit with implications for new therapeutic directions[J]. Therapeutic Advances in Gastroenterology, 2016, 9(4):606-625.

DOI

[35]
LIU B, QIAO W C, ZHANG M H, et al. Bovine milk with variant β-casein types on immunological mediated intestinal changes and gut health of mice[J]. Frontiers in Nutrition, 2022,9:970685.

[36]
AITCHISON A, EDWARDS T S, DAY A S. Simulated gastrointestinal digestion of milk caseins containing A1 β-casein does not lead to increased production of inflammatory proteins in intestinal epithelial cells in vitro when compared to milk caseins containing A2 β-casein[J]. Journal of Functional Foods, 2025,125:106669.

[37]
KOLLI U, ROY S. The role of the gut microbiome and microbial metabolism in mediating opioid-induced changes in the epigenome[J]. Frontiers in Microbiology, 2023,14:1233194.

[38]
TABOUN Z S, SADEGHI J. The bidirectional relationship between opioids and the gut microbiome:implications for opioid tolerance and clinical interventions[J]. International Immunopharmacology, 2023, 125(Pt A):111142.

[39]
THOMAS K R, WATT J, WU C M J, et al. Pain and opioid-induced gut microbial dysbiosis[J]. Biomedicines, 2022, 10(8):1815.

DOI

[40]
KAZEMIAN N, PAKPOUR S. Understanding the impact of the gut microbiome on opioid use disorder:pathways,mechanisms,and treatment insights[J]. Microbial Biotechnology, 2024, 17(10):e70030.

DOI

[41]
ESSMAT N, KARÁDI D, ZÁDOR F, et al. Insights into the current and possible future use of opioid antagonists in relation to opioid-induced constipation and dysbiosis[J]. Molecules, 2023, 28(23):7766.

DOI

[42]
LIANG X, LIU R, CHEN C, et al. Opioid system modulates the immune function:a review[J]. Translational Perioperative and Pain Medicine, 2016, 1(1):5-13.

[43]
ROBINSON S R, GREENWAY F L, DETH R C, et al. Effects of different cow-milk beta-caseins on the gut-brain axis:a narrative review of preclinical, animal,and human studies[J]. Nutrition Reviews, 2025, 83(3):e1259-e1269.

[44]
GONG Z X, XUE Q S, LUO Y, et al. The interplay between the microbiota and opioid in the treatment of neuropathic pain[J]. Frontiers in Microbiology, 2024,15:1390046.

[45]
CHANG W H, ZHENG A J, CHEN Z M, et al. β-casomorphin increases fat deposition in broiler chickens by modulating expression of lipid metabolism genes[J]. Animal, 2019, 13(4):777-783.

DOI PMID

文章导航

/