综述

瘤胃上皮单羧酸转运蛋白辅助蛋白结构与功能及其分子调控机制

  • 黄雯 , 1, 2 ,
  • 孙德慧 1 ,
  • 谭支良 1, 2 ,
  • 康劲翮 , 1, *
展开
  • 1 中国科学院亚热带农业生态研究所, 长沙 410125
  • 2 中国科学院大学, 北京 100049
* 康劲翮,副研究员,硕士生导师,E-mail:

黄 雯(2002—),女,贵州铜仁人,硕士研究生,研究方向为反刍动物营养。E-mail:

Office editor: 陈 燕

收稿日期: 2025-11-05

  网络出版日期: 2026-06-13

基金资助

国家自然科学基金项目(32302783)

广西自然科学基金项目(2024GXNSFAA010330)

Structures and Functions of Accessory Proteins for Monocarboxylate Transporters in Rumen Epithelium and Their Molecular Regulatory Mechanisms

  • HUANG Wen , 1, 2 ,
  • SUN Dehui 1 ,
  • TAN Zhiliang 1, 2 ,
  • KANG Jinghe , 1, *
Expand
  • 1 Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 University of Chinese Academy of Sciences, Beijing 100049, China
* associate professor, E-mail:

Received date: 2025-11-05

  Online published: 2026-06-13

摘要

单羧酸类物质是动物机体生命代谢过程中的关键参与者,其吸收效率直接影响动物的生产性能和健康状态。单羧酸类物质生理功能的有效发挥,需借助单羧酸转运蛋白(MCTs)介导的跨膜转运过程来实现,而MCTs的正常表达和功能的实现则依赖于辅助蛋白的协同作用。本文对反刍动物瘤胃上皮MCTs辅助蛋白展开系统地综述,尤其聚焦于分化簇147[CD147,又称为基底蛋白(Basigin)]和糖蛋白70[gp70,又称为嵌入蛋白(Embigin)]这2种辅助蛋白,详细阐述它们的结构特征、功能及其分子调控机制,深度剖析其在反刍动物瘤胃上皮单羧酸转运、能量代谢等关键生理过程中的功能。此外,结合MCTs辅助蛋白在精准营养调控、疾病预防和遗传育种等领域的应用前景,为反刍动物生产性能提升、健康管理和分子育种提供新的思路与实践方向。

本文引用格式

黄雯 , 孙德慧 , 谭支良 , 康劲翮 . 瘤胃上皮单羧酸转运蛋白辅助蛋白结构与功能及其分子调控机制[J]. 动物营养学报, 2026 , 38(6) : 4030 -4042 . DOI: 10.12418/CJAN2026.322

Abstract

Monocarboxylates are key participants in the life metabolic processes of animal organisms, and their absorption efficiency directly affects the production performance and health status of animals. The effective exertion of the physiological functions of monocarboxylates relies on transmembrane transport mediated by monocarboxylate transporters (MCTs), whose normal expression and functional implementation depend on the synergistic effect of accessory proteins. This review systematically summarized the accessory proteins for MCTs in rumen epithelium of ruminants, with a particular focus on two types of accessory proteins: cluster of differentiation 147 (CD147, also known as Basigin) and glycoprotein 70 (gp70, also known as Embigin). It elaborated on their structural characteristics and function, and their molecular regulatory mechanisms, and deeply analyzed their roles in critical physiological processes of ruminants, such as monocarboxylate transport and energy metabolism in rumen epithelial of ruminants. Furthermore, combined with the application prospects of accessory proteins for MCTs in precision nutrition regulation, disease prevention, genetic breeding and fields, this review provided new insights and practical directions for improving the production performance, health management and molecular breeding of ruminants.

碳水化合物在反刍动物瘤胃微生物的作用下发酵转化为短链脂肪酸(short-chain fatty acids,SCFAs)、乳酸等单羧酸类物质,其中SCFAs能够满足反刍动物约70%的维持能量需求[1]。SCFAs具有调控机体代谢、促进胃肠道发育、调控胃肠道微生物群落、抗炎以及增强免疫力等功能,对维持细胞稳态意义重大[2-3]。然而其生物学功能的发挥依赖于多种转运蛋白介导的吸收和再分配。反刍动物瘤胃上皮吸收SCFAs主要依赖于短链脂肪酸阴离子(SCFA-)/氢离子(H+)交换载体、细胞稳态调节蛋白以及单羧酸转运蛋白(monocarboxylate transporters,MCTs)3类转运蛋白,其中MCTs是单羧酸类物质跨膜转运的核心载体,通过与H+共转运介导SCFAs和乳酸转运至瘤胃上皮细胞[4-5]。且MCT1~4被证实具备介导乳酸、丙酮酸、丁酸等物质跨膜转运的功能,可促进机体吸收利用单羧酸类物质,维持细胞代谢平衡与pH稳定等[6-7]
然而,MCT1~4必须在辅助蛋白协同配合下才可实现其蛋白的正确表达、质膜定位及其他生理功能的正常发挥[8]。细胞表面辅助蛋白即分化簇147[cluster of differentiation 147,CD147,又称为基底蛋白(Basigin)]和糖蛋白70[glycoprotein70,gp70,又称为嵌入蛋白(Embigin)]促进MCTs介导的单羧酸类物质跨膜转运并调节其转运活性[9-10]。反刍动物瘤胃上皮中的MCT1在CD147的协助下,通过H+耦合机制将SCFAs主动转运至血液,同时促进过量H+的外排,调节瘤胃pH,从而降低瘤胃酸中毒的发生风险,维持瘤胃内环境稳态[11]。除CD147和Embigin外,某些特定蛋白如胞内碳酸酐酶Ⅱ(carbonic anhydrase Ⅱ,CAⅡ)和碳酸酐酶Ⅳ(carbonic anhydrase Ⅳ,CAⅣ)以及透明质酸受体分化簇44(cluster of differentiation 44,CD44)等,也可能影响MCTs的表达和功能活性[12]。当这些辅助蛋白缺乏或功能障碍时,MCTs将无法完成正确的亚细胞定位,导致其在高尔基体中异常累积,进而可能影响单羧酸类物质的转运和利用效率[9]。在亚急性瘤胃酸中毒(SARA)状态下,瘤胃pH降低,SCFAs与脂多糖累积抑制上皮MCT1表达及功能,MCT1依赖CD147形成稳定复合物实现膜定位与转运,这种抑制效应会减少瘤胃对酸性代谢产物的吸收,加剧瘤胃内酸碱失衡,形成“SARA-MCT1表达下调-酸性物质累积”的恶性循环[13]。同时有研究显示,SARA状态下机体可能通过上调MCT1的mRNA表达尝试代偿,但CD147的协同调控不足可能限制其功能修复,而补充丁酸等营养物质可通过相关通路改善这一调控网络,缓解SARA带来的损伤[14]。因此,深入研究瘤胃上皮MCTs辅助蛋白的结构和功能及其分子调控机制,对于维持瘤胃健康以及提高反刍动物的生产性能具有深远意义。本文旨在综述近年来关于反刍动物瘤胃上皮MCTs辅助蛋白结构和功能及其分子调控机制的研究进展,为反刍动物生产性能提升、健康管理和分子育种提供新的思路与实践方向。

1 MCTs辅助蛋白的结构与功能

1.1 CD147的结构与功能
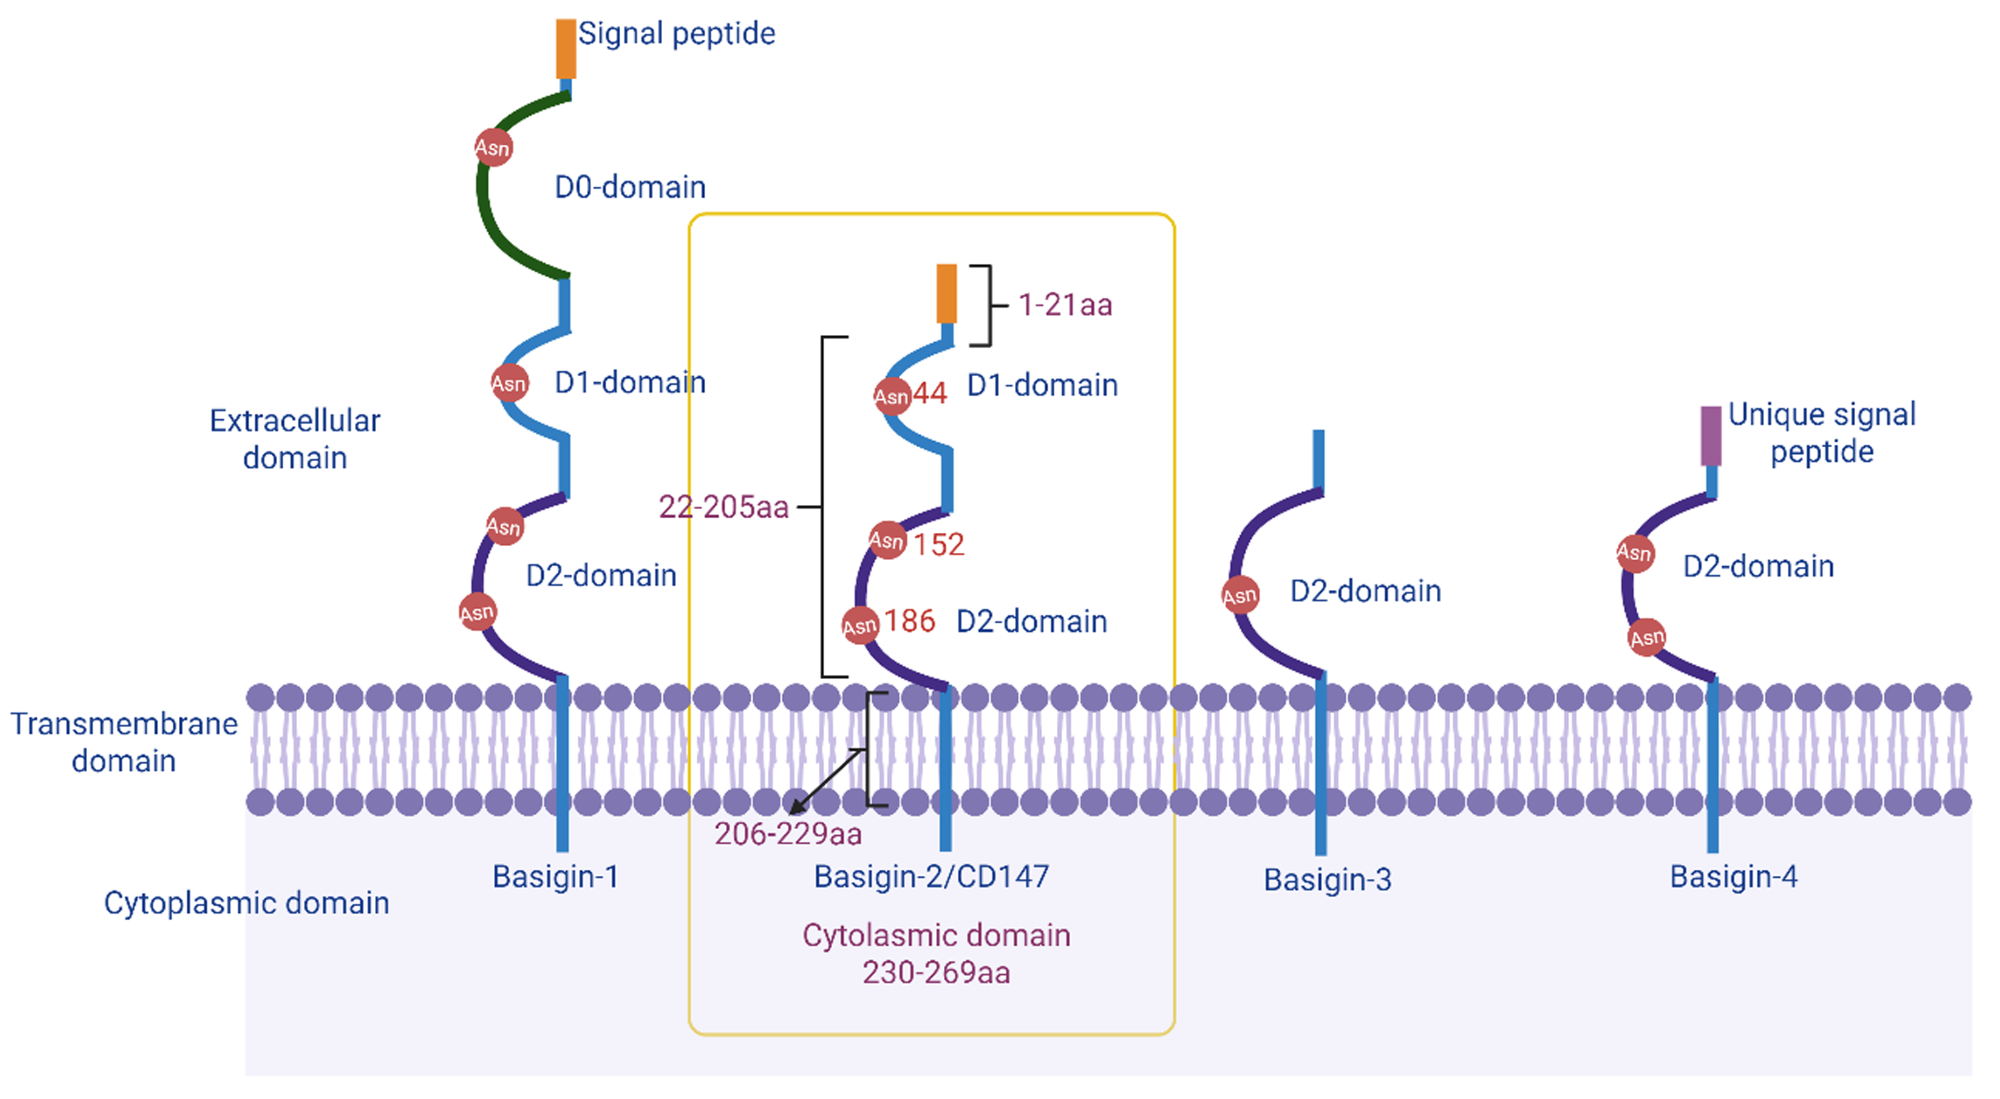
CD147属于免疫球蛋白超家族(immunoglobulin superfamily,IgSF),是一种单链Ⅰ型整合跨膜糖蛋白,其蛋白结构包括信号肽、细胞质结构域、单个疏水跨膜结构域和细胞外区域的免疫球蛋白结构域(Ig)[15]。该蛋白最初发现于多种肿瘤细胞和基质细胞膜,作为肿瘤细胞产生的胶原酶刺激因子,能够促进基质金属蛋白酶(matrix metalloproteinase,MMP)的释放,进而调控细胞外基质的重塑,因此也被称为细胞外基质金属蛋白酶诱导因子(extracellular matrix metalloproteinase inducer,EMMPRIN)[16]。人类CD147蛋白由位于19号染色体的Basigin基因编码,而牛CD147蛋白则由位于7号染色体的Basigin基因编码。由于转录起始位点和剪接方式的差异,CD147被鉴定出具有Basigin-1、Basigin-2、Basigin-3和Basigin-4这4种同源异构体,其中Basigin-2分布最广泛(图1)[17-18]
图1 CD147亚型结构示意图

Cytoplasmic domain:细胞质结构域;Transmembrane domain:跨膜结构域;Extracellular domain:细胞外结构域;Signal peptide:信号肽;Asn:天冬酰胺位点 asparagine site;D0-domain:D0结构域;D1-domain:D1结构域;D2-domain:D2结构域;Basigin-1:基底蛋白1型;Basigin-2:基底蛋白2型;CD147:分化簇147 cluster of differentiation 147;Basigin-3:基底蛋白3型;Basigin-4:基底蛋白4型;Unique signal peptide:独特信号肽。

Fig.1 Schematic diagram of CD147 subtypes structure[18]

CD147作为一种多功能蛋白,普遍存在于各种类型细胞的表面,包括免疫细胞、内皮细胞、上皮细胞、神经元和癌细胞等,其在调节能量代谢、免疫反应、增殖、凋亡和细胞迁移等不同的细胞生物学功能中至关重要[19]。研究表明,CD147可以充当各种跨膜和可溶性蛋白的伴侣,包括MCTs、亲环蛋白A(cyclophilin A,CypA)、整合素、P-糖蛋白、CD44和MMP等,其胞外免疫球蛋白结构域2(Ig2)以顺式-反式依赖的方式介导与其他蛋白的连接,使之能够与辅助蛋白结合并形成多聚化二聚体,从而发挥相应的生物学功能[20-21]

1.2 Embigin的结构与功能

Embigin同属于IgSF家族,也是单次跨膜的Ⅰ型跨膜蛋白,由含有9个外显子的Embigin基因编码,其蛋白结构由3个关键部分组成:1)具有2个Ig样V型和9个潜在N-糖基化位点的胞外区;2)由29个氨基酸残基构成的跨膜区;3)由47个氨基酸残基组成的胞质区[22-23]。Embigin最早是在鼠类胚胎发育阶段被鉴定,其可调控神经肌肉接头的形成,并参与介导细胞间与细胞外基质间的黏附相互作用[24]。与CD147一样,Embigin也具有多种配体,包括MCTs蛋白和细胞外可溶性蛋白[如S100钙结合蛋白A4(S100A4)和半乳糖凝集素-3][25]。Embigin可与MCTs的家族成员相互作用,促进其构象变化以及向质膜的转运,以及通过磷脂酰肌醇3激酶(PI3K)、糖原合成酶激酶3β(GSK3β)等信号通路参与细胞增殖、迁移等过程[10,26]

1.3 其他潜在辅助蛋白的结构和功能

碳酸酐酶(carbonic anhydrase,CA)是一类普遍存在于生物体内的含锌金属酶,由α、β、γ、δ、ζ、η、θ和ι型这8个不同的基因亚家族编码[27]。在哺乳动物中,碳酸酐酶主要属于α-CA,目前已发现16种不同的亚型,包括胞质型(CAⅠ、CAⅡ、CAⅢ、CAⅦ、CA-ⅩⅢ)、细胞膜结合型(CAⅣ、CAⅨ、CAⅫ、CAⅩⅣ和CA-ⅩⅤ)、线粒体型(CAⅤA、CAⅤB)以及分泌型(CAⅥ)[28]。其中胞质型CAⅡ是研究最为广泛的亚型,在肺泡、胃肠黏膜、破骨细胞、视网膜和胰腺等组织与细胞中广泛分布[27,29]。人类CAⅡ蛋白由位于8号染色体的CAⅡ基因编码,其三维结构近似球形[27]。CAⅡ的活性中心位于分子内部的凹陷区域,其中1个锌离子(Zn2+)与3个组氨酸残基(His94、His96和His119)及1个水分子配位结合,这一结构对其催化功能至关重要[30]。此外,CAⅡ还包含多个由柔性连接肽段连接的结构域,分别参与底物结合、催化反应、维持蛋白稳定性、折叠以及与其他分子的相互作用等过程。与CAⅡ类似,CAⅣ的活性中心同样含有与3个组氨酸残基配位结合的1个Zn2+,但它是通过糖基磷脂酰基醇(GPI)锚定在细胞膜上,其主体结构位于细胞外侧[31]。此外,CAⅣ还具备1个催化结构域,负责二氧化碳(CO2)的水合及碳酸脱水反应,该结构中还含有一些与糖基化修饰相关的结构域或位点,这些修饰对CAⅣ在质膜上的定位、稳定性以及与其他膜蛋白的相互作用具有重要意义。
整合素家族的Ⅰ型跨膜糖蛋白CD44是一种重要的细胞表面受体,牛CD44蛋白由位于15号染色体的CD44基因编码而成[32]。其转录本经过复杂的选择性剪接产生许多功能各异的亚型,如CD44标准型和CD44变体型,在各种类型细胞膜上表达[33-34]。所有CD44亚型均由1个短C端胞质区、跨膜结构域和胞外结构域组成,其胞外结构域可与细胞外基质成分结合,参与细胞间的互作和信号传导,而跨膜结构域则负责将蛋白锚定至细胞膜[33]。作为一种多功能蛋白,CD44主要负责识别和结合细胞外基质中的透明质酸(hyaluronic acid,HA),在正常细胞的生理活动和癌细胞的病理活动(如细胞增殖、黏附及迁移)中发挥重要作用[35]

2 MCTs辅助蛋白的分子调控机制

2.1 转录水平的调控

CD147、Embigin等辅助蛋白的调控机制涉及多种因子在转录水平和转录后水平的调控。其中特异性蛋白1(specificity protein 1,Sp1)、缺氧诱导因子-1α(hypoxia-inducible factor-1α,HIF-1α)以及原癌基因c(cellular myelocytomatosis oncogene,c-Myc)等转录因子能够影响CD147蛋白的表达。人类卵巢癌中的CD147可通过激活PI3K/蛋白激酶B(Akt)和丝裂原活化蛋白激酶(MAPK)/细胞外信号调节蛋白激酶(Erk)信号通路促进Sp1蛋白的第453、739位苏氨酸(T453、T739)位点磷酸化,而磷酸化的Sp1与CD147的启动子区域结合,从而增强CD147的转录活性,形成Sp1-CD147正反馈循环,最终促进卵巢癌细胞的侵袭能力[36]。而在缺氧条件下,HIF-1α蛋白表达水平上升,从而上调CD147蛋白的表达,最终提高细胞糖酵解能力[37]。Kong等[38]在人类乳腺癌中的研究表明,c-Myc可与CD147的启动子区域结合,从而促进CD147的转录。黄珍等[39]通过研究证明了微小RNA(miR)-125b-5p可直接靶向负调控CD147蛋白的表达,从而抑制人类卵巢癌细胞的迁移与侵袭能力。而Benton等[40]研究发现,过氧化物酶体增殖物激活受体γ辅激活因子-1α(peroxisome proliferator-activated receptor γ coactivator-1α,PGC-1α)与MCT1和CD147蛋白表达之间存在密切关联,即PGC-1α过表达诱导MCT1和CD147蛋白表达量各上调47%和29%,证实了PGC-1α对MCTs转录表达的调控作用。此外,丁酸作为瘤胃乳头生长的关键激活剂,可通过组蛋白去乙酰化酶抑制剂(HDACIs)作用或G蛋白偶联受体(G-protein-coupled receptors,GPRs)通路激活过氧化物酶体增殖物激活受体α/γ(peroxisome proliferator-activated receptor α/γ,PPARα/γ)进而上调代谢调控关键因子PGC-1α[41]。黄酮类(如槲皮素)通过p38丝裂原活化蛋白激酶(p38MAPK)/PGC-1α等信号通路上调线粒体生物发生相关基因转录,萜类通过腺苷酸活化蛋白激酶(AMPK)-PGC-1α-含Ⅲ型纤连蛋白结构域蛋白5(FNDC5)信号通路调节能量代谢基因表达[42-43]。可以看出,PGC-1α的激活剂如植物化合物(黄酮、萜类等),也可能是反刍动物瘤胃上皮细胞MCTs转录水平调控的手段。上述研究结果可为反刍动物中PGC-1α与MCT1和CD147调控机制的系统性研究提供重要的间接证据。
同样的,Emgibin蛋白的调控机制也涉及到多个因子,其在转录水平上主要受同源盒C8(homeobox C8,HOXC8)和Wnt等因子的调控。Chao等[44]在人类乳腺肿瘤中的研究发现HOXC8与Embigin启动子在核苷酸-2303至-2315区域结合,并作为转录抑制剂抑制Embigin蛋白的表达。此外,Wnt信号通路对在小鼠皮脂腺中特异性表达的纤连蛋白受体Embigin蛋白的表达起负调控作用,其激活会减少Embigin的表达,而Embigin的缺失不仅会影响表达该蛋白的细胞数量,还会促进皮脂腺细胞从祖细胞区退出并向分化方向发展,同时对脂质代谢产生影响[45]
CD147作为哺乳动物中研究最为深入的MCTs辅助蛋白,其转录调控机制(如转录因子结合、缺氧/应激响应、miRNA调控等)在人和小鼠等模式生物中已然形成了成熟的研究范式。而反刍动物的单羧酸代谢存在独特性,目前对于其辅助蛋白的转录调控研究仍较薄弱,所以深入了解CD147、Embigin等辅助蛋白在转录水平的调控机制,可以为解析反刍动物MCTs辅助蛋白的转录调控规律(如关键调控因子和信号通路等)提供参考框架,明确其表达调控机制与生理功能(如能量代谢、组织发育等)的关联。

2.2 翻译后修饰(post-translational modifications,PTMs)的调控

2.2.1 CD147翻译后修饰的调控

CD147蛋白具有糖基化、磷酸化和泛素化等多种翻译后修饰类型,在调控生理和病理过程中发挥重要作用。CD147是一种高度糖基化的跨膜蛋白质,其糖基化主要以N-糖基化修饰为主,其糖链可形成高甘露糖型、杂合型和复杂型等结构[46]。CD147蛋白的糖基化修饰遵循典型的蛋白质糖基化途径(图2),即新生肽链在内质网中初始糖基化,形成未成熟高甘露糖型CD147[低糖基化CD147(LG-CD147)];随后转运至高尔基体,经多种糖基转移酶催化,糖链结构进一步修饰为含复杂分支结构和特征性末端基团的成熟糖型,最终形成完全糖基化的成熟CD147[高糖基化CD147(HG-CD147)]并转运至质膜,而质膜上的HG-CD147被认为是其生物学功能形态[47]。刘绍俊等[48]在三阴乳腺癌细胞中通过追毒方抑制CD147糖基化的同时也抑制MCT4蛋白的表达,而用视黄酸处理后可上调CD147糖基化,并促进MCT4蛋白的表达,说明调控CD147糖基化可影响MCT4蛋白的表达。人CD147蛋白的Ig具有3个N-糖基化[第44、152、186位天冬酰胺(Asn44/152/186)]位点,糖基化位点突变可导致CD147的折叠或展开错误,其中Asn152位点糖基化修饰对CD147在内质网的正确折叠及构象维持至关重要;去糖基化的CD147经内质网定位泛素连接酶介导的内质网相关降解途径降解,高葡萄糖处理则促进CD147糖基化并抑制其泛素-蛋白酶体降解[49-50]。MCTs是CD147糖基化和运输的调节因子之一:一方面,MCT1、MCT3、MCT4与CD147在内质网形成稳定复合物,经胞内转运定位于细胞膜,介导单羧酸类物质转运;另一方面,CD147的成熟需结合MCTs,敲除MCT4或MCT1会减少HG-CD147的表达,且导致核心糖基化CD147在内质网累积,表明MCT1/MCT4调控CD147的糖基化成熟与转运[51]。但是,反刍动物瘤胃上皮CD147的糖基化位点并未见报道。
图2 糖基化CD147在细胞内的合成与运输

Ribosome:核糖体;OST:寡糖基转移酶 oligosaccharyltransferase;Endoplasmic reticulum:内质网;misfolded CD147:错误折叠的分化簇147 misfolded cluster of differentiation 147;ERAD:内质网相关降解 endoplasmic reticulum-associated degradation;proteasome:蛋白酶体;quality control:质量控制;Ig2:免疫球蛋白结构域2 immunoglobulin domain 2;Ig1:免疫球蛋白结构域1 immunoglobulin domain 1;MCT:单羧酸转运蛋白 monocarboxylate transporter;binding:结合;LG-CD147:低糖基化分化簇147 low-glycosylated cluster of differentiation 147;OS-9:骨肉瘤扩增蛋白-9(内质网中的分子伴侣) Osteosarcoma amplified-9 (molecular chaperones in the endoplasmic reticulum);SEL1L:Lin-12样抑制/增强蛋白(内质网相关降解通路中的核心衔接蛋白) suppressor/enhancer of Lin-12-like (core adaptor protein in the endoplasmic reticulum-associated degradation pathway);HRD1:HMG辅酶A还原酶降解蛋白1(一种E3泛素连接酶) β-hydroxy-β-methylglutaryl-coenzyme A reductase degradation protein 1 (a type of E3 ubiquitin ligase);ring:RING结构域(HRD1的特征结构域) really interesting new gene (characteristic structural domains of HRD1);cis:顺面高尔基体 cis-Golgi;medial:中间高尔基体 medial-Golgi;FUT8:α-1,6-岩藻糖基转移酶 alpha-1,6-fucosyltransferase;GnT-Ⅲ to Ⅴ:N-乙酰葡糖胺转移酶Ⅲ~Ⅴ N-acetylglucosaminyltransferase Ⅲ to Ⅴ;caveolin-1:小窝蛋白1;Decreased MMPs Induction:基质金属蛋白酶诱导水平降低 decreased matrix metalloproteinases induction;Golgi apparatus:高尔基体;HG-CD147:高糖基化分化簇147 high-glycosylated cluster of differentiation 147;GalT:半乳糖基转移酶 galactosyltransferase;ST6GalT:β-半乳糖苷α-2,6-唾液酸转移酶 Beta-galactoside alpha-2,6-sialyltransferase;cyp60:亲环蛋白60 cyclophilin 60;MMPs Induction:MMPs诱导 matrix metalloproteinase induction;CD147 oligomers:分化簇147寡聚体 cluster of differentiation 147 oligomers;Secreted CD147s:分泌型分化簇147 Secreted cluster of differentiation 147;trans:反面高尔基体 trans-Golgi;CD147-MCT complex:分化簇147-单羧酸转运蛋白复合物 cluster of differentiation 147-monocarboxylate transporter complex;Lactic Acid Exportation:乳酸外排。

Fig.2 Synthesis and transport of glycosylated CD147 within cells[47]

泛素化是一种重要的蛋白质翻译后修饰类型,参与蛋白质的降解。F-box蛋白22(F-box only protein 22,FBXO22)通过识别CD147胞内段并与之相互作用,促进CD147发生泛素化修饰并降解[52]。此外,CD147可在多种人类组织及其衍生细胞系中以第246、252位丝氨酸(Ser246、Ser252)位点磷酸化,包括肌肉、肝脏、非霍奇金B细胞淋巴瘤和肺癌,这表明磷酸化是CD147翻译后修饰的重要形式[53]。除了上述3种翻译后修饰类型以外,CD147还具有多个二甲基化修饰位点。Wang等[54]研究发现,在人类非小细胞癌组织中,CD147在第234位赖氨酸(K234)位点被赖氨酸甲基转移酶5A(KMT5A)二甲基化为CD147-K234me2,KMT5A和CD147-K234me2的过表达促进CD147与MCT4之间的相互作用。
由此可见,CD147分子具有多种翻译后修饰类型,其可调控CD147自身的表达或与其他蛋白之间的相互作用,然而,有关反刍动物CD147翻译后修饰的情况暂无报道,其在各营养调控状态下的功能尚未明确,可能与反刍动物瘤胃上皮单羧酸类物质(如乳酸、SCFAs)的跨膜转运效率密切相关,有望为营养代谢研究提供新的调控靶点。

2.2.2 Embigin与其他潜在辅助蛋白翻译后修饰的调控

目前对于反刍动物瘤胃上皮Embigin蛋白翻译后修饰类型及功能影响的研究暂未见报道,基于蛋白质翻译后修饰的普遍规律推测,其可能存在多种修饰类型:1)糖基化通常发生在天冬酰胺、丝氨酸或苏氨酸等位点上,可影响蛋白折叠、稳定性与细胞定位,参与细胞识别与信号转导;2)磷酸化主要发生于丝氨酸、苏氨酸和酪氨酸位点,或改变Embigin蛋白活性,影响与MCTs结合及寡聚化状态,参与细胞信号通路调控;3)乙酰化常发生在赖氨酸位点,可能改变与其他蛋白质或核酸的相互作用,调节对MCTs的调控及相关基因表达;4)泛素化主要修饰赖氨酸位点,多聚泛素化或促使其被蛋白酶体降解以调节蛋白水平,单泛素化则可能参与内吞、定位和信号转导等过程。然而,以上猜测均需进行更多试验研究进一步证实与解析。

3 辅助蛋白与MCTs的互作机制

3.1 CD147与MCTs的互作机制

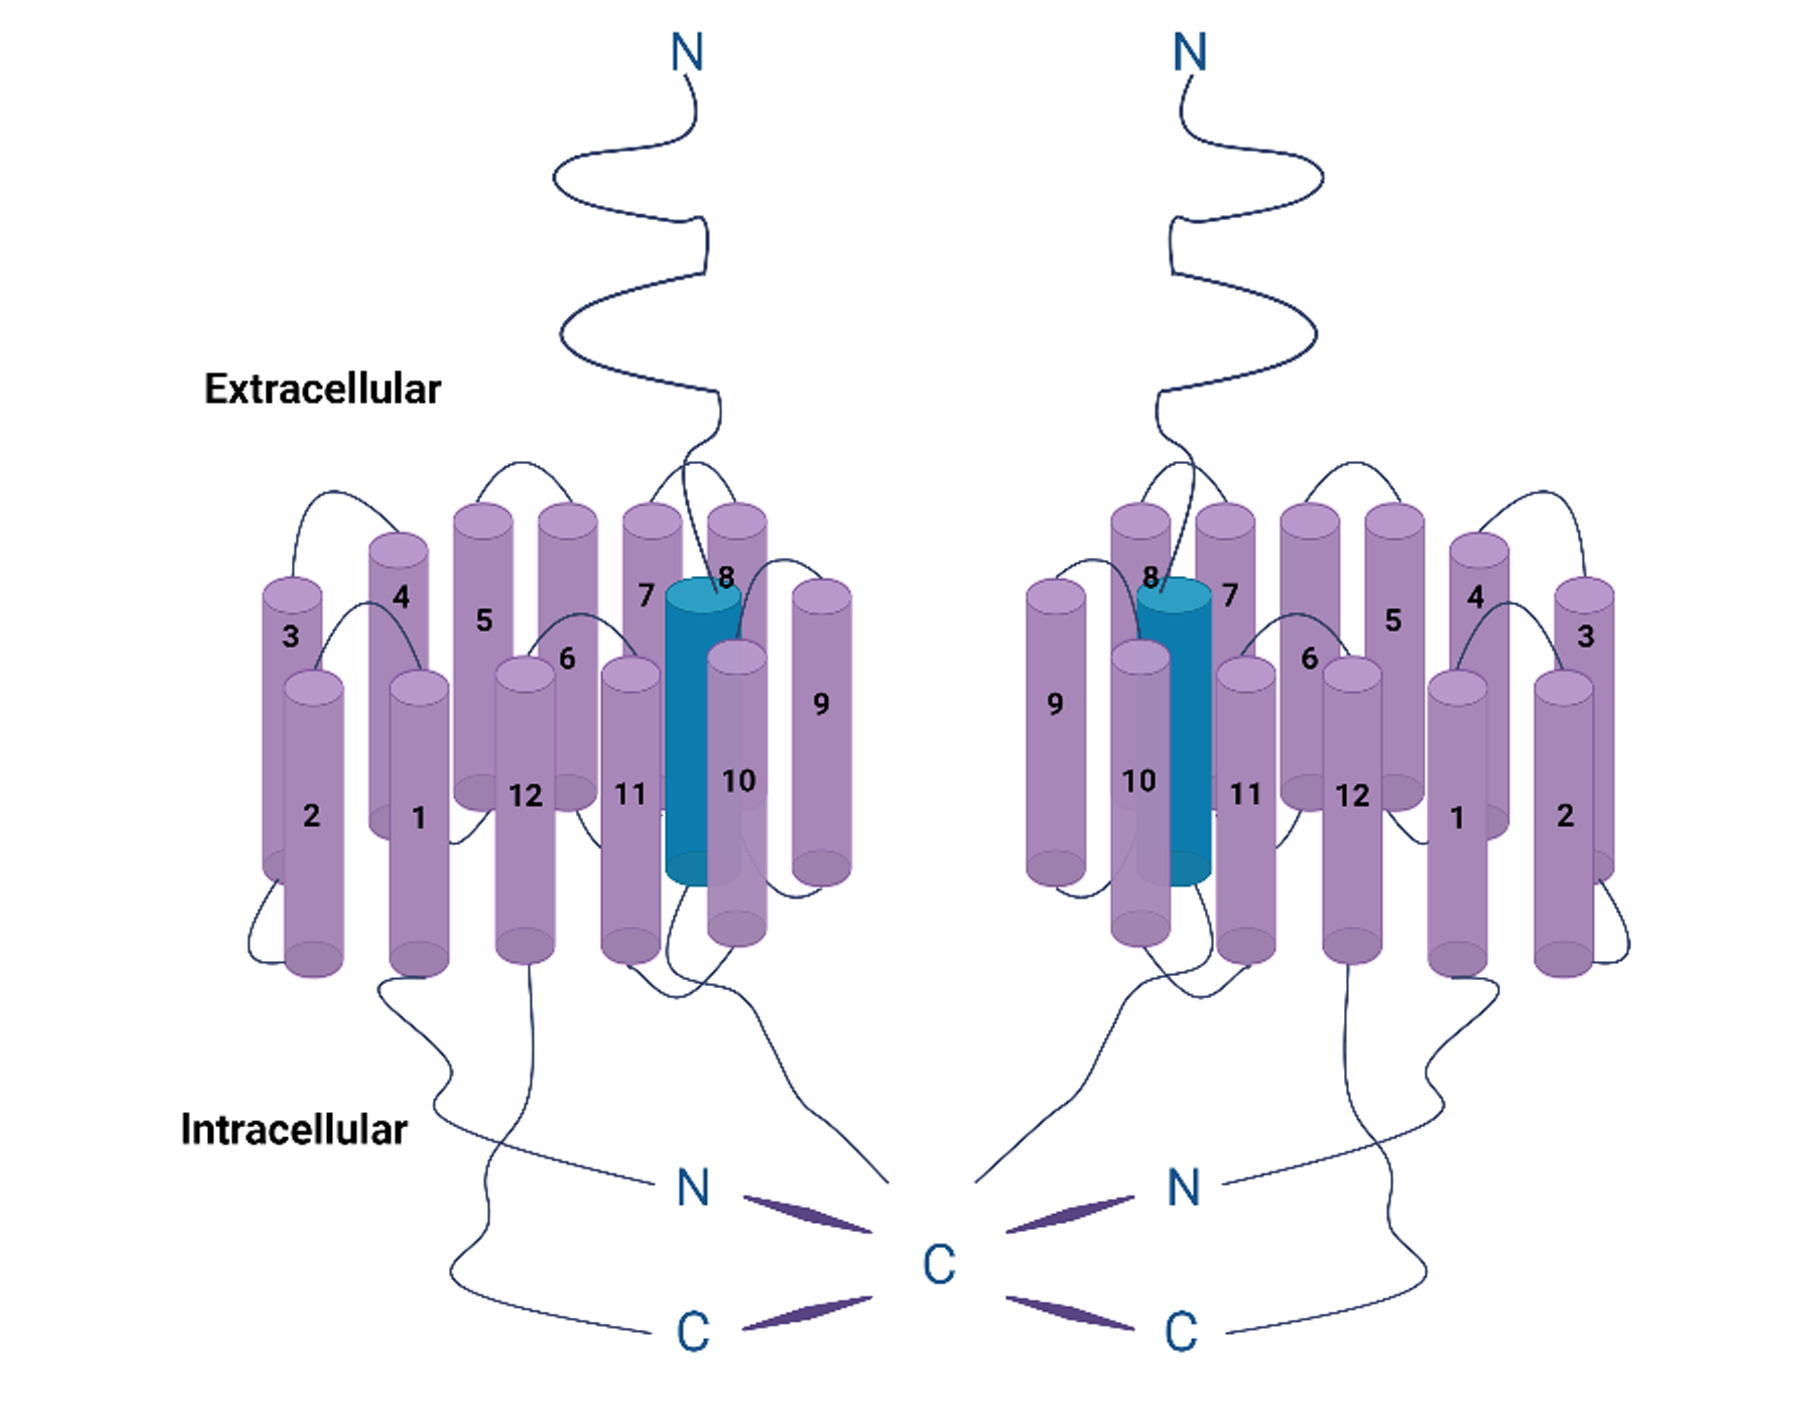
CD147主要作为MCT1、MCT3和MCT4的辅助蛋白。在CD147基因敲除小鼠试验中,由于视网膜色素上皮细胞内MCT1、MCT3和MCT4蛋白的表达缺失,导致小鼠出现视觉功能丧失,该结果证实了CD147作为MCT1、MCT3和MCT4辅助蛋白的关键作用[55-56]。MCT3和MCT4通过基低侧膜分选信号通路来实现特异性膜定位,而MCT1的膜定位则是依赖于CD147的辅助转运功能,即CD147与MCT1通过跨膜区的疏水作用形成二聚体复合物影响MCT1蛋白的表达(图3)[57-58]。Wilson等[58]通过荧光共振能量转移技术证实了CD147与MCT1在质膜上形成了一个稳定的、功能性的异源寡聚体复合物,这对乳酸转运活性是必需的。Köpnick等[59]研究表明,CD147免疫球蛋白结构域1(Ig1)通过局部增加MCTs进入位点的质子和底物浓度驱动乳酸摄取,与单独的MCT1相比,CD147-MCT1复合物的存在可使细胞内L-乳酸浓度较外部缓冲液提供的质子浓度高4.5倍。Wang等[60]解析了人源MCT1-Basigin-2复合体的3.0~3.3 Å冷冻电镜结构,发现Basigin-2的跨膜片段与MCT1的跨膜域形成疏水相互作用,是维持MCT1构象稳定的关键。Zhang等[20]进一步揭示了Basigin的胞外免疫球蛋白结构域2(Ig2)通过变构效应调控MCT1的底物转换速率,其跨膜域与MCT1的相互作用界面是功能调控的核心区域。这些研究为理解MCT1与Basigin的相互作用机制和转运机理提供了重要的结构生物学基础。此外,CD147能够作为辅助蛋白促进MCTs向质膜的转运,并调节其转运活性,且有研究证实了MCT4与CD147特异性的结合能够促进MCT4在细胞膜表面的精准定位和功能性表达[61]。研究表明,CD147的存在可稳定MCT1的跨膜结构域构象,尤其是在构象切换过程中,CD147随MCT1的N端结构域协同移动,为结构域旋转提供“锚定”支撑,确保转运周期的有序进行[60]。研究还发现,CD147还可以调控MCT11和MCT12的质膜转运,当敲低CD147后,会下调MCT11和MCT12蛋白在细胞表面的表达[62-63]
图3 CD147与MCT1结合方式

Extracellular:胞外区;Intracellular:胞质区。

紫色圆柱体代表单羧酸转运蛋白1 purple cylinders represented monocarboxylate transporters 1;蓝色圆柱体代表分化簇147 blue cylinders represented cluster of differentiation 147。

Fig.3 Binding mode of CD147 and MCT1[58]

单羧酸类物质的吸收主要依赖瘤胃上皮细胞中的MCTs,而MCTs需与CD147蛋白结合,才能维持结构稳定并正常发挥转运功能。瘤胃上皮细胞由角质层、颗粒层、刺突层和基底层组成。而MCT1广泛存在于瘤胃基底层中,在刺突层与颗粒层细胞中表达量较低,其可促进单羧酸类物质与酮体向血液转运,且MCT1与CD147存在共定位现象[64-65]。CD147介导MCT1正常功能的发挥,在瘤胃上皮细胞中MCT1与CD147均聚集在基底层区域,且CD147主要参与MCT1与细胞膜的连接,这说明MCT1的膜锚定和稳定性维持依赖CD147的参与[66]。此外,在反刍动物胃肠道中,MCT1的表达丰富且呈现年龄差异分布,如在成年绵羊和母奶牛中瘤胃表达最为丰富,犊牛则以瘤胃、网胃、瓣胃最高[67]。在湖羊瘤胃发育过程中,MCT1的表达位点从胚胎期的基底层、棘层,逐渐转移至新生期的棘层,最终定位于成熟期的颗粒层细胞,这一动态分布特征提示MCT1的表达调控具有细胞类型特异性[7]。MCT1的膜定位与功能发挥完全依赖Basigin的辅助,而MCT1在瘤胃不同部位、不同细胞层的表达差异,暗示CD147的调控作用可能随细胞类型不同而存在差异,这一协同调控的细胞特异性机制有待进一步验证。而CD147糖基化修饰对MCT1的功能发挥具有重要作用,糖基化增强了CD147自身与MCT1的相互作用,CD147去糖基化处理会破坏二者之间的特异性结合,并影响CD147-MCT1复合体在质膜上的正确定位与稳定锚定[68]。此外,Gallagher等[51]的研究表明,抑制糖基化会干扰Basigin-MCT1复合体向细胞膜的转运,导致其在内质网等细胞器内滞留,无法抵达功能位置。综上所述,若CD147在瘤胃中高表达,可能通过调控MCTs促进单羧酸类物质的跨膜转运,影响瘤胃上皮对SCFAs的吸收效率,进而影响宿主的能量代谢,但CD147在反刍动物瘤胃中的具体作用及其与MCTs的互作机制还需进一步研究验证。

3.2 Embigin与MCTs的互作机制

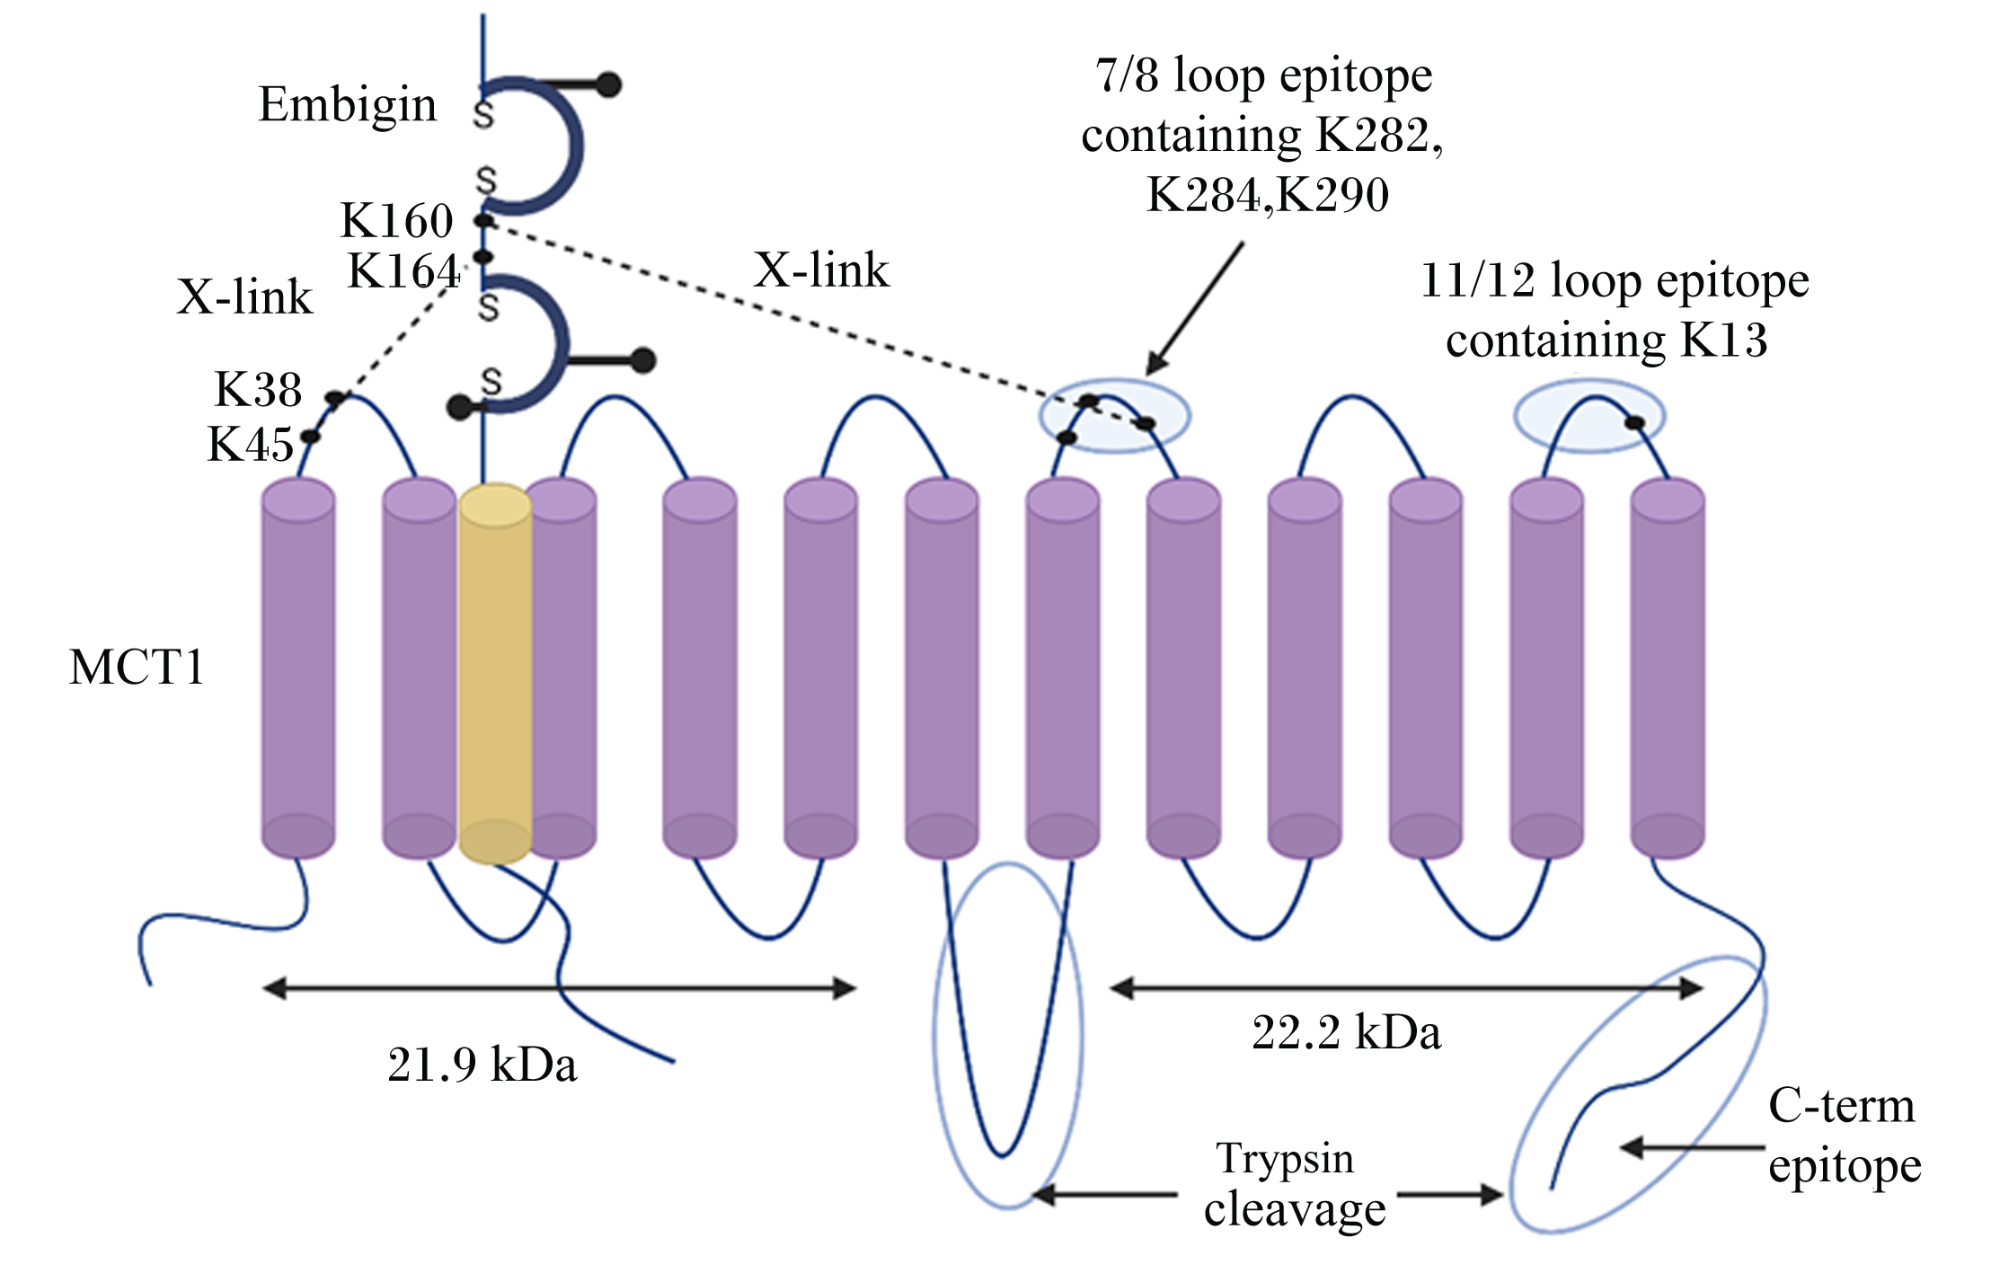
与CD147不同,Embigin优先充当MCT2的辅助蛋白,它在MCT2催化活性的稳定维持及其转运至细胞质膜的复杂调控机制中具有决定性作用[69]。Ovens等[70]研究发现,外源性Embigin的共表达显著增强了非洲爪蟾卵母细胞质膜上MCT2蛋白的表达活性。然而,在缺乏CD147的情况下,MCT1会与Embigin的单次跨膜螺旋跨膜结构域(transmembrane domain,TM)相互作用(图4),从而促进MCT1向质膜的转运[71]。Xu等[10]研究发现,Embigin的TM会与MCT2另一个亚基的TM8产生空间位阻,从而抑制MCT1二聚体的形成,并导致MCT1的TM1发生构象变化。此外,在MCT1-Embigin复合物中,MCT1的TM5呈直线状排列,而MCT2的TM5则向底物结合中心倾斜约30°,这种结构差异会引起底物结合中心的构象改变,进而调节底物结合亲和力,最终实现对MCT1转运活性的调控[72]
图4 MCT1与Embigin的结合

MCT1:单羧酸转运蛋白1(紫色圆柱) monocarboxylate transporters 1 (purple cylinders);Embigin:糖蛋白70(黄色圆柱) gp70 (yellow cylinders);X-link:交联;K160/K164/K38/K45/K282/K284/K290/K13:第160、164、38、45、282、284、290、13位赖氨酸位点 lysine sites at positions 160, 164, 38, 45, 282, 284, 290 and 13;S:丝氨酸位点 serine site;7/8 loop epitope containing K282, K284, K290:第7~8个跨膜区间包含第282、284、290位赖氨酸位点的环表位;11/12 loop epitope containing K13:11~12个跨膜区间包含第13位赖氨酸位点的环表位;Trypsin cleavage:胰蛋白酶切割;C-term epitope:C端表位。

Fig.4 Binding of MCT1 to Embigin[71]

在反刍动物瘤胃中,CD147已被证实是MCT1/4的核心辅助蛋白,介导丁酸等SCFAs的跨膜转运,而Embigin是否参与瘤胃中MCTs的调控以及是否在瘤胃特定细胞或状态下发挥作用,仍需进一步试验验证。但根据Embigin在人类和小鼠模型中的研究结果,我们推测Embigin蛋白可能通过调控MCT1功能干预单羧酸类物质的跨膜转运,进而在反刍动物能量与物质代谢中发挥潜在作用。但目前Embigin蛋白在反刍动物营养代谢中的调控作用研究仍较有限,其精确分子机制与生理影响需通过更深入的研究揭示。

3.3 其他潜在辅助蛋白与MCTs的互作机制

CAⅡ可通过第64位组氨酸位点与MCT1和MCT4的C端谷氨酸位点簇特异性结合,从而增强这2种转运蛋白的活性[73]。CAⅣ则通过保守的第88位组氨酸位点与CD147 Ig1结构域的第73位谷氨酸位点(人)/第73位赖氨酸位点(大鼠)或Embigin的第130位精氨酸位点结合,与MCT2形成三元复合物,以分子内质子穿梭的非催化方式提升MCT2的转运活性[74-75]。而CD44和透明质酸与CD147通过相互作用形成功能复合物,共同调控人类乳腺癌细胞中MCT1和MCT4的质膜定位与乳酸外排功能,进而维持肿瘤细胞的糖酵解代谢表型,当CD44蛋白在细胞膜的表达水平降低时,MCT1和MCT4的活性随之减弱,说明其特异性结合能够维持膜蛋白复合物的结构稳定,且对MCTs的细胞定位及其生理功能的正常发挥具有重要调控作用,从而影响细胞对单羧酸类物质的转运[76]。虽然有关反刍动物CD44与MCTs互作的研究相对较少,但可以推测CD44和CD147形成复合物,并与MCT的互作可能通过调控MCTs的定位与表达活性,影响瘤胃上皮细胞对SCFAs和乳酸等单羧酸类物质的吸收与转运,进而参与能量代谢和胃肠道稳态的维持。
综上所述,CAⅡ、CAⅣ分别为MCT1/4与MCT2的功能性辅助蛋白,CD44仅通过间接途径影响MCTs功能。但深入研究CA、CD44等蛋白对MCTs的间接调控机制,也可为通过营养手段精准调控反刍动物单羧酸类物质的吸收效率提供理论依据。

4 小结与展望

MCTs作为反刍动物单羧酸类物质跨膜转运的核心蛋白,在能量代谢、物质转运等生理过程中起关键作用。但相较于MCTs本身,目前对其辅助蛋白的研究尚处初步阶段,反刍动物中辅助蛋白的系统性、深层次功能解析尤为缺乏。现有研究多聚焦于MCTs的表达与功能分析,对其辅助蛋白的特异性作用机制、互作结构基础、体内功能验证及营养调控机制等方面的认识仍有明显不足,且多数报道仅停留在相关性分析,缺乏对具体调控机制的深入探索。
未来应加强对辅助蛋白调控功能的系统性研究,1)在营养调控方面,可通过功能性添加剂或饲粮优化靶向调节其表达,从而提高SCFAs的利用效率,促进反刍动物生长与繁殖性能;2)在遗传育种方面,则可利用Basigin等辅助蛋白基因的有利等位基因作为分子标记,加速优良品种的选育进程;3)在疾病防控方面,需深入探究辅助蛋白在酮病、酸中毒等代谢性疾病发生中的作用机制,以开发新型干预策略。总体而言,深入揭示MCTs辅助蛋白的调控机理,不仅具有重要理论价值,也将为反刍动物的营养调控、遗传改良和疾病防控提供新思路与潜在靶点。当前该领域仍面临互作机制不清、体内模型缺乏及实际应用转化不足等挑战,未来需开展多维度、跨层次的系统性研究以推动领域突破。
[1]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

DOI PMID

[2]
PEARCE S C, WEBER G J, VAN SAMBEEK D M, et al. Intestinal enteroids recapitulate the effects of short-chain fatty acids on the intestinal epithelium[J]. PLoS One, 2020, 15(4):e0230231.

DOI

[3]
王海波, 占今舜, 霍俊宏, 等. 短链脂肪酸对反刍动物糖和脂代谢及肠道屏障的调控以及其在生产中的应用[J]. 动物营养学报, 2023, 35(7):4127-4137.

DOI

WANG H B, ZHAN J S, HUO J H, et al. Regulation of short chain fatty acids on glucose and lipid metabolism and intestinal barrier in ruminants and their application in production[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4127-4137. (in Chinese)

DOI

[4]
王忠豪, 侯红雁, 郭刚, 等. 采食后奶牛瘤胃短链脂肪酸及其吸收相关蛋白表达的研究[J]. 中国畜牧杂志, 2021, 57(4):143-148.

WANG Z H, HOU H Y, GUO G, et al. Study on the short chain fatty acids and expression of absorption related protein in the rumen of dairy cattle after feeding[J]. Chinese Journal of Animal Science, 2021, 57(4):143-148. (in Chinese)

[5]
ZHAN K, GONG X X, CHEN Y Y, et al. Short-chain fatty acids regulate the immune responses via G protein-coupled receptor 41 in bovine rumen epithelial cells[J]. Frontiers in Immunology, 2019, 10:2042.

DOI PMID

[6]
SUN X Y, WANG M Z, WANG M S, et al. Role of proton-coupled monocarboxylate transporters in cancer:from metabolic crosstalk to therapeutic potential[J]. Frontiers in Cell and Developmental Biology, 2020, 8:651.

DOI

[7]
MÜLLER F, HUBER K, PFANNKUCHE H, et al. Transport of ketone bodies and lactate in the sheep ruminal epithelium by monocarboxylate transporter[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2002, 283(5):G1139-G1146.

DOI

[8]
张维, 严汉池. 单羧酸转运蛋白(MCT)的功能调控及生理特性研究[J]. 湖北农业科学, 2022, 61(13):165-172.

ZHANG W, YAN H C. Functional regulation and physiological characteristics of monocarboxylic acid transporter (MCT)[J]. Hubei Agricultural Sciences, 2022, 61(13):165-172. (in Chinese)

[9]
WILSON M C, MEREDITH D, MANNING FOX J E, et al. Basigin (CD147) is the target for organomercurial inhibition of monocarboxylate transporter isoforms 1 and 4:the ancillary protein for the insensitive MCT2 is EMBIGIN (gp70)[J]. The Journal of Biological Chemistry, 2005, 280(29):27213-27221.

DOI

[10]
XU B H, ZHANG M F, ZHANG B, et al. Embigin facilitates monocarboxylate transporter 1 localization to the plasma membrane and transition to a decoupling state[J]. Cell Reports, 2022, 40(11):111343.

DOI

[11]
METZLER-ZEBELI B U, HOLLMANN M, SABITZER S, et al. Epithelial response to high-grain diets involves alteration in nutrient transporters and Na+/K+-ATPase mRNA expression in rumen and colon of goats[J]. Journal of Animal Science, 2013, 91(9):4256-4266.

DOI

[12]
张晓斐, 刘沛宜, 梅国松, 等. 单羧酸转运蛋白的肿瘤临床应用进展[J]. 肿瘤学杂志, 2024, 30(10):866-873.

ZHANG X F, LIU P Y, MEI G S, et al. Progress in clinical application of monocarboxylate transporters in tumors[J]. Journal of Chinese Oncology, 2024, 30(10):866-873. (in Chinese)

[13]
李兰柱, 李洋, 王梦雅, 等. 亚急性瘤胃酸中毒对奶山羊瘤胃上皮细胞挥发性脂肪酸吸收代谢相关基因表达的影响[J]. 动物营养学报, 2023, 35(5):3290-3302.

DOI

LI L Z, LI Y, WANG M Y, et al. Effects of subacute ruminal acidosis on expression of volatile fatty acid absorption and metabolism related genes in ruminal epithelium of dairy goats[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):3290-3302. (in Chinese)

DOI

[14]
代鹏, 姜雅慧, 王之盛. 丁酸对亚急性瘤胃酸中毒的影响机制研究进展[J]. 动物营养学报, 2022, 34(2):736-744.

DOI

DAI P, JIANG Y H, WANG Z S. Research progress on effects mechanism of butyric acid on subacute ruminal acidosis[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):736-744. (in Chinese)

[15]
LANDRAS A, REGER DE MOURA C, JOUENNE F, et al. CD147 is a promising target of tumor progression and a prognostic biomarker[J]. Cancers, 2019, 11(11):1803.

DOI

[16]
董贤文, 付琳, 张丽, 等. 消化道上皮单羧酸转运蛋白1(MCT1)跨膜转运功能的调控机理[J]. 核农学报, 2021, 35(2):349-356.

DOI

DONG X W, FU L, ZHANG L, et al. Transmembrane transport regulation mechanism of monocarboxylate transporter 1 (MCT1) on the alimentary canal epithelium[J]. Journal of Nuclear Agricultural Sciences, 2021, 35(2):349-356. (in Chinese)

[17]
CAN N D, BASTURK E, KIZILBOGA T, et al. Interactome analysis of Bag-1 isoforms reveals novel interaction partners in endoplasmic reticulum-associated degradation[J]. PLoS One, 2021, 16(8):e0256640.

DOI

[18]
KUMAR D, VETRIVEL U, PARAMESWARAN S, et al. Structural insights on druggable hotspots in CD147:a bull’s eye view[J]. Life Sciences, 2019, 224:76-87.

DOI

[19]
ASGARI R, VAISI-RAYGANI A, ALEAGHA M S E, et al. CD147 and MMPs as key factors in physiological and pathological processes[J]. Biomedicine & Pharmacotherapy, 2023, 157:113983.

DOI

[20]
ZHANG H, YANG X M, XUE Y, et al. A basigin antibody modulates MCTs to impact tumor metabolism and immunity[J]. Cell Discovery, 2025, 11(1):44.

DOI PMID

[21]
MURAMATSU T. Basigin (CD147),a multifunctional transmembrane glycoprotein with various binding partners[J]. Journal of Biochemistry, 2016, 159(5):481-490.

[22]
陈颖健. 探究Embigin基因对肠神经嵴细胞迁移行为的影响[D].硕士学位论文. 武汉: 华中科技大学, 2021.

CHEN Y J. The study of the effects of Embigin gene on the migration of enteric neural crest-derived cells[D].Master’s Thesis. Wuhan: Huazhong University of Science and Technology, 2021. (in Chinese)

[23]
晁凤梅. Embigin在乳腺癌中的作用及其调控机制的研究[D].硕士学位论文. 合肥: 安徽大学, 2016.

CHAO F M. Roles of Embigin in breast tumorigenesis and its regulation mechanism in breast cancer cells[D].Master’s Thesis. Hefei: Anhui University, 2016. (in Chinese)

[24]
LAIN E, CARNEJAC S, ESCHER P, et al. A novel role for embigin to promote sprouting of motor nerve terminals at the neuromuscular junction[J]. The Journal of Biological Chemistry, 2009, 284(13):8930-8939.

DOI

[25]
RUMA I M W, KINOSHITA R, TOMONOBU N, et al. Embigin promotes prostate cancer progression by S100A4-dependent and-independent mechanisms[J]. Cancers, 2018, 10(7):239.

DOI

[26]
CHENG B, LIU J, GAO L, et al. EMB-driven glioblastoma multiforme progression via the MCT4/GPX3 axis:therapeutic inhibition by ganxintriol A[J]. Journal of Translational Medicine, 2025, 23(1):272.

DOI

[27]
王艺潼, 秦宇晴, 李新玉, 等. 碳酸酐酶Ⅱ小分子抑制剂的研究进展[J]. 中国药物化学杂志, 2024, 34(6):466-480.

WANG Y T, QIN Y Q, LI X Y, et al. Research progress of small molecule carbonic anhydrase Ⅱ inhibitors[J]. Chinese Journal of Medicinal Chemistry, 2024, 34(6):466-480. (in Chinese)

[28]
MISHRA C B, TIWARI M, SUPURAN C T. Progress in the development of human carbonic anhydrase inhibitors and their pharmacological applications:where are we today?[J]. Medicinal Research Reviews, 2020, 40(6):2485-2565.

DOI

[29]
KILINÇ N, ĪŞGÖR M M, ŞENGÜL B, et al. Influence of pesticide exposure on carbonic anhydrase Ⅱ from sheep stomach[J]. Toxicology and Industrial Health, 2015, 31(9):823-830.

DOI

[30]
刘亚茹. 细胞表面展示碳酸酐酶及其酶学性质研究[D].硕士学位论文. 天津: 天津大学, 2020.

LIU Y R. Cell surface display of carbonic anhydrase and its enzymology properties[D].Master’s Thesis. Tianjin: Tianjin University, 2020. (in Chinese)

[31]
ZHU X L, SLY W S. Carbonic anhydrase IV from human lung.Purification,characterization,and comparison with membrane carbonic anhydrase from human kidney[J]. Journal of Biological Chemistry, 1990, 265(15):8795-8801.

DOI

[32]
JIANG P, XIA L X, JIN Z K, et al. New function of the CD44 gene:lipid metabolism regulation in bovine mammary epithelial cells[J]. Journal of Dairy Science, 2020, 103(7):6661-6671.

DOI

[33]
WENG X, MAXWELL-WARBURTON S, HASIB A, et al. The membrane receptor CD44:novel insights into metabolism[J]. Trends in Endocrinology & Metabolism, 2022, 33(5):318-332.

[34]
CIRILLO N. The hyaluronan/CD44 axis:a double-edged sword in cancer[J]. International Journal of Molecular Sciences, 2023, 24(21):15812.

DOI

[35]
AMES S, ANDRING J T, MCKENNA R, et al. CAIX forms a transport metabolon with monocarboxylate transporters in human breast cancer cells[J]. Oncogene, 2020, 39(8):1710-1723.

DOI PMID

[36]
ZOU W, MA X D, YANG H, et al. Hepatitis B X-interacting protein promotes cisplatin resistance and regulates CD147 via Sp1 in ovarian cancer[J]. Experimental Biology and Medicine(Maywood,N.J.), 2017, 242(5):497-504.

[37]
HU X, SU J, ZHOU Y Y, et al. Repressing CD147 is a novel therapeutic strategy for malignant melanoma[J]. Oncotarget, 2017, 8(15):25806-25813.

DOI PMID

[38]
KONG L M, LIAO C G, ZHANG Y, et al. A regulatory loop involving miR-22,Sp1,and c-Myc modulates CD147 expression in breast cancer invasion and metastasis[J]. Cancer Research, 2014, 74(14):3764-3778.

[39]
黄珍, 沈浩明, 邓红玉, 等. MiR-125b-5p抑制卵巢癌细胞的迁移和侵袭:基于靶向下调CD147的表达[J]. 南方医科大学学报, 2022, 42(9):1389-1396.

DOI

HUANG Z, SHEN H M, DENG H Y, et al. MiR-125b-5 suppresses ovarian cancer cell migration and invasion by targeted downregulation of CD147[J]. Journal of Southern Medical University, 2022, 42(9):1389-1396. (in Chinese)

DOI

[40]
BENTON C R, YOSHIDA Y, LALLY J, et al. PGC-1alpha increases skeletal muscle lactate uptake by increasing the expression of MCT1 but not MCT2 or MCT4[J]. Physiological Genomics, 2008, 35(1):45-54.

DOI PMID

[41]
朱智, 纪邑奇, 黄文明, 等. 丁酸在亚急性瘤胃酸中毒和动物健康方面作用机制的研究进展[J]. 动物营养学报, 2021, 33(8):4201-4212.

DOI

ZHU Z, JI Y Q, HUANG W M, et al. Research progress on mechanism of butyrate in subacute ruminal acidosis and animal health[J]. Chinese Journal of Animal Nutrition, 2021, 33(8):4201-4212. (in Chinese)

[42]
CHEN S Q, DING L N, ZENG N X, et al. Icariin induces irisin/FNDC5 expression in C2C12 cells via the AMPK pathway[J]. Biomedicine & Pharmacotherapy, 2019, 115:108930.

DOI

[43]
ZHAO X T, WANG C, DAI S, et al. Quercetin protects ethanol-induced hepatocyte pyroptosis via scavenging mitochondrial ROS and promoting PGC-1 α-regulated mitochondrial homeostasis in L02 cells[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022(1):4591134.

DOI

[44]
CHAO F M, ZHANG J, ZHANG Y, et al. Embigin,regulated by HOXC8,plays a suppressive role in breast tumorigenesis[J]. Oncotarget, 2015, 6(27):23496-23509.

DOI

[45]
SIPILÄ K, ROGNONI E, JOKINEN J, et al. Embigin is a fibronectin receptor that affects sebaceous gland differentiation and metabolism[J]. Developmental Cell, 2022, 57(12):1453-1465.e7.

DOI PMID

[46]
卢慧. CD147糖基化水平检测的基因编码的FRET荧光探针的设计、构建及其活细胞成像研究[D].硕士学位论文. 合肥: 中国科学技术大学, 2020.

LU H. Design and construction of gene-coded FRET fluorescence probe for detection of CD147 glycosylation level at the level of live cells[D].Master’s Thesis. Hefei: University of Science and Technology of China, 2020. (in Chinese)

[47]
BAI Y, HUANG W, MA L T, et al. Importance of N-glycosylation on CD147 for its biological functions[J]. International Journal of Molecular Sciences, 2014, 15(4):6356-6377.

DOI PMID

[48]
刘绍俊, 王宗傲, 张明慧, 等. 追毒方调控CD147糖基化介导的有氧糖酵解抑制三阴性乳腺癌增殖及侵袭迁移[J/OL]. 中药药理与临床, 2025:1-16(2025-06-03)[2026-02-04].https://doi.org/10.13412/j.cnki.zyyl.20250603.002.html.

LIU S J, WANG Z A, ZHANG M H, et al. Zhuidu formula modulates CD147 glycosylation-mediated aerobic glycolysis to suppress the proliferation,invasion,and migration of triple-negative breast cancer[J/OL]. Pharmacology and Clinics of Chinese Materia Medica, 2025:1-16(2025-06-03)[2026-02-04].https://doi.org/10.13412/j.cnki.zyyl.20250603.002.html. (in Chinese)

[49]
LI J H, HUANG W, LIN P, et al. N-linked glycosylation at Asn152 on CD147 affects protein folding and stability:promoting tumour metastasis in hepatocellular carcinoma[J]. Scientific Reports, 2016, 6(1):35210.

DOI

[50]
LIU M C, PENG T W, HU L, et al. N-glycosylation-mediated CD147 accumulation induces cardiac fibrosis in the diabetic heart through ALK5 activation[J]. International Journal of Biological Sciences, 2023, 19(1):137-155.

DOI PMID

[51]
GALLAGHER S M, CASTORINO J J, WANG D, et al. Monocarboxylate transporter 4 regulates maturation and trafficking of CD147 to the plasma membrane in the metastatic breast cancer cell line MDA-MB-231[J]. Cancer Research, 2007, 67(9):4182-4189.

DOI PMID

[52]
WU B, LIU Z Y, CUI J, et al. F-box protein FBXO22 mediates polyubiquitination and degradation of CD147 to reverse cisplatin resistance of tumor cells[J]. International Journal of Molecular Sciences, 2017, 18(1):212.

DOI

[53]
JIN J, WANG S J, CUI J, et al. Hypo-phosphorylated CD147 promotes migration and invasion of hepatocellular carcinoma cells and predicts a poor prognosis[J]. Cellular Oncology, 2019, 42(4):537-554.

DOI PMID

[54]
WANG K, HUANG W, CHEN R, et al. Di-methylation of CD147-K234 promotes the progression of NSCLC by enhancing lactate export[J]. Cell Metabolism, 2021, 33(1):160-173.e6.

DOI PMID

[55]
MCBRIAN M A, BEHBAHAN I S, FERRARI R, et al. Histone acetylation regulates intracellular pH[J]. Molecular Cell, 2013, 49(2):310-321.

DOI PMID

[56]
HAN J Y S, KINOSHITA J, BISETTO S, et al. Role of monocarboxylate transporters in regulating metabolic homeostasis in the outer retina:insight gained from cell-specific Bsg deletion[J]. The FASEB Journal, 2020, 34(4):5401-5419.

DOI

[57]
PFANNKUCHE H, TAIFOUR F, STEINHOFF-WAGNER J, et al. Post-natal changes in MCT1 expression in the forestomach of calves[J]. Journal of Animal Physiology and Animal Nutrition, 2014, 98(1):140-148.

DOI PMID

[58]
WILSON M C, MEREDITH D, HALESTRAP A P. Fluorescence resonance energy transfer studies on the interaction between the lactate transporter MCT1 and CD147 provide information on the topology and stoichiometry of the complex in situ[J]. The Journal of Biological Chemistry, 2002, 277(5):3666-3672.

DOI

[59]
KÖPNICK A L, JANSEN A, GEISTLINGER K, et al. Basigin drives intracellular accumulation of l-lactate by harvesting protons and substrate anions[J]. PLoS One, 2021, 16(3):e0249110.

DOI

[60]
WANG N, JIANG X, ZHANG S, et al. Structural basis of human monocarboxylate transporter 1 inhibition by anti-cancer drug candidates[J]. Cell, 2021, 184(2):370-383.e13.

DOI PMID

[61]
KIRK P, WILSON M C, HEDDLE C, et al. CD147 is tightly associated with lactate transporters MCT1 and MCT4 and facilitates their cell surface expression[J]. The EMBO Journal, 2000, 19(15):3896-3904.

DOI

[62]
RUSU V, HOCH E, MERCADER J M, et al. Type 2 diabetes variants disrupt function of SLC16A11 through two distinct mechanisms[J]. Cell, 2017, 170(1):199-212.e20.

DOI PMID

[63]
CASTORINO J J, GALLAGHER-COLOMBO S M, LEVIN A V, et al. Juvenile cataract-associated mutation of solute carrier SLC16A12 impairs trafficking of the protein to the plasma membrane[J]. Investigative Ophthalmology & Visual Science, 2011, 52(9):6774-6784.

[64]
KIRAT D, MASUOKA J J, HAYASHI H, et al. Monocarboxylate transporter 1 (MCT1) plays a direct role in short-chain fatty acids absorption in caprine rumen[J]. The Journal of Physiology, 2006, 576(2):635-647.

DOI

[65]
ZHONG C L, LYONS T, HEUSSAFF O, et al. Localization of urea transporter B in the developing bovine rumen[J]. Animal Nutrition, 2022, 10:216-222.

DOI PMID

[66]
MURAMATSU T, MIYAUCHI T. Basigin (CD147):a multifunctional transmembrane protein involved in reproduction,neural function,inflammation and tumor invasion[J]. Histology and Histopathology, 2003, 18(3):981-987.

[67]
张佳俐, 代鹏, 姜雅慧, 等. 单羧酸转运蛋白1在动物体内的转运调控机制[J]. 动物营养学报, 2023, 35(10):6227-6236.

DOI

ZHANG J L, DAI P, JIANG Y H, et al. Transport regulation mechanism of monocarboxylate transporter 1 in animals[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6227-6236. (in Chinese)

DOI

[68]
XU D S, HEMLER M E. Metabolic activation-related CD147-CD98 complex[J]. Molecular & Cellular Proteomics, 2005, 4(8):1061-1071.

DOI

[69]
JUNG D E, KIM J M, KIM C, et al. Embigin is overexpressed in pancreatic ductal adenocarcinoma and regulates cell motility through epithelial to mesenchymal transition via the TGF-β pathway[J]. Molecular Carcinogenesis, 2016, 55(5):633-645.

DOI PMID

[70]
OVENS M J, MANOHARAN C, WILSON M C, et al. The inhibition of monocarboxylate transporter 2 (MCT2) by AR-C155858 is modulated by the associated ancillary protein[J]. Biochemical Journal, 2010, 431(2):217-225.

DOI PMID

[71]
POOLE R C, HALESTRAP A P. Interaction of the erythrocyte lactate transporter (monocarboxylate transporter 1) with an integral 70-kDa membrane glycoprotein of the immunoglobulin superfamily[J]. The Journal of Biological Chemistry, 1997, 272(23):14624-14628.

DOI

[72]
ZHANG B, JIN Q H, XU L Z, et al. Cooperative transport mechanism of human monocarboxylate transporter 2[J]. Nature Communications, 2020, 11(1):2429.

DOI PMID

[73]
NOOR S I, DIETZ S, HEIDTMANN H, et al. Analysis of the binding moiety mediating the interaction between monocarboxylate transporters and carbonic anhydrase II[J]. The Journal of Biological Chemistry, 2015, 290(7):4476-4486.

DOI

[74]
BECKER H M. Carbonic anhydrase IX and acid transport in cancer[J]. British Journal of Cancer, 2020, 122(2):157-167.

DOI PMID

[75]
FORERO-QUINTERO L S, AMES S, SCHNEIDER H P, et al. Membrane-anchored carbonic anhydrase Ⅳ interacts with monocarboxylate transporters via their chaperones CD147 and GP70[J]. The Journal of Biological Chemistry, 2019, 294(2):593-607.

DOI

[76]
SLOMIANY M G, GRASS G D, ROBERTSON A D, et al., Hyaluronan,CD44,and emmprin regulate lactate efflux and membrane localization of monocarboxylate transporters in human breast carcinoma cells[J]. Cancer Research, 2009, 69(4):1293-1301.

DOI

文章导航

/