综述

饲粮抗原诱导的过敏性肠道炎症机制解析和营养干预研究进展

  • 何坤淼 , 1 ,
  • 王娜 1, * ,
  • 余秋颖 2 ,
  • 殷佳佳 3
展开
  • 1 河南农业大学动物医学院, 郑州 450046
  • 2 动物免疫学国际联合研究中心, 郑州 450046
  • 3 龙湖现代免疫实验室, 郑州 450046
* 王 娜,教授,博士生导师,E-mail: na-wang@163.com

何坤淼(2003—),男,河南南阳人,硕士,从事食品安全和动物免疫学研究。E-mail:

Office editor: 武海龙

收稿日期: 2025-11-21

  网络出版日期: 2026-06-13

基金资助

河南省重大科技专项(221100110600)

河南省创新生态支撑专项(HARS-22-05-Z1)

河南省科技攻关项目(242102320264)

Research Progress on Mechanistic Insights and Nutritional Interventions for Dietary Antigen-Induced Allergic Enteritis

  • HE Kunmiao , 1 ,
  • WANG Na 1, * ,
  • YU Qiuying 2 ,
  • YIN Jiajia 3
Expand
  • 1 College of Animal Medicine, Henan Agricultural University, Zhengzhou 450046, China
  • 2 International Joint Research Center for Animal Immunology, Zhengzhou 450046, China
  • 3 Longhu Modern Immunology Laboratory, Zhengzhou 450046, China
* professor, E-mail: na-wang@163.com

Received date: 2025-11-21

  Online published: 2026-06-13

摘要

随着豆粕等植物蛋白质源在畜禽饲粮中的广泛应用,由其抗原蛋白(如大豆球蛋白和β-伴大豆球蛋白)所引发的过敏性肠道炎症已成为制约养殖业健康发展的关键问题之一。本文系统综述了主要饲粮抗原蛋白的致敏特性、致敏机制及干预措施,重点阐述了抗原蛋白对肠道屏障与免疫稳态的多维度损伤路径,涉及氧化应激-炎症网络互作、肠道屏障完整性破坏、细胞程序性死亡及肠道菌群失调在疾病发生中的协同作用;并全面评估了天然植物提取物、益生菌和益生元、特异性营养物质以及饲粮结构优化等绿色营养策略的研究进展与应用潜力,并展望了未来通过多组学整合分析、精准营养及绿色添加剂研发等方向实现过敏性肠道炎症高效防控的前景,旨在为饲粮抗原诱导的过敏性肠道炎症的机制研究和综合防控提供参考,以期为动物肠道健康调控体系的创新提供理论依据。

本文引用格式

何坤淼 , 王娜 , 余秋颖 , 殷佳佳 . 饲粮抗原诱导的过敏性肠道炎症机制解析和营养干预研究进展[J]. 动物营养学报, 2026 , 38(6) : 4061 -4071 . DOI: 10.12418/CJAN2026.325

Abstract

With the widespread application of plant protein sources such as soybean meal in livestock and poultry diets, allergic enteritis triggered by their antigenic components (e.g., glycinin and β-conglycinin) has become a key issue constraining the healthy development of the animal industry. This paper systematically reviews the sensitization characteristics, pathogenic mechanisms and intervention strategies of major dietary antigenic proteins. It focuses on elucidating the multi-dimensional damaging pathways through which these antigens impair the intestinal barrier and immune homeostasis, involving the synergistic roles of oxidative stress-inflammatory network interactions, disruption of intestinal barrier integrity, programmed cell death and gut dysbiosis in disease pathogenesis. Furthermore, it comprehensively assesses the research progress and application potential of green nutritional strategies, including natural plant extracts, probiotics and prebiotics, specific nutrients and dietary structure optimization. The prospects for efficient prevention and control of this condition through future directions such as multi-omics integration analysis, precision nutrition and the development of green additives are also discussed. This review aims to provide a reference for mechanistic research and comprehensive prevention strategies against diet-induced allergic enteritis, and to offer a theoretical basis for innovating animal intestinal health regulation systems.

随着集约化养殖业的快速发展,植物性蛋白质饲料原料豆粕因其高蛋白质含量及相对均衡的氨基酸组成,在猪、禽、宠物及水产饲料中广泛应用。然而,豆粕中富含的大豆抗原蛋白——大豆球蛋白(glycinin,11S)和β-伴大豆球蛋白(β-conglycinin,7S),具有较强的免疫原性,可诱发断奶仔猪、犊牛等幼龄或敏感个体的过敏性肠道炎症[1]。该病症不仅破坏肠道黏膜屏障功能,导致消化吸收障碍、生长性能下降,严重威胁动物健康,还易继发细菌和病毒感染,造成显著经济损失。
近年来,围绕过敏性肠道炎症的致敏机制和调控策略已成为动物营养学与免疫学交叉领域的研究热点。马曦等[2]专注于鉴定断奶仔猪对饲粮抗原11S的肠道黏膜损伤受体;Hou等[3]揭示了精氨酸通过G蛋白偶联受体C类组6成员A(G protein-coupled receptor family C group 6 subtype A,GPRC6a)调控3型固有淋巴细胞(group 3 innate lymphoid cells,ILC3)和白细胞介素(interleukin,IL)-22分泌促进饲粮抗原过敏引起的肉鸡肠道黏膜修复的机制,这些研究为开发缓解饲粮抗原过敏反应的新型营养措施奠定了理论基础。本文系统梳理主要饲粮抗原的致敏特性,深入解析其通过氧化应激、炎症信号转导、肠道屏障损伤、细胞凋亡及菌群紊乱等多途径协同作用的致病网络,并全面评述当前以营养手段为核心的综合干预措施的研究进展,通过对现有知识的整合与前沿方向的展望,以期为构建针对饲粮抗原诱导的过敏性肠道炎症的精准防控体系提供科学参考。

1 主要饲粮抗原及其致敏特性

1.1 大豆抗原蛋白

大豆是动物饲粮中重要的植物蛋白质来源,常以膨化大豆、豆粕、大豆浓缩蛋白等形式应用于猪、鸡、牛、宠物等动物的饲料中[4]。然而,大豆中含有多种抗营养因子,如胰蛋白酶抑制剂、凝集素、脲酶及抗原蛋白等[5],其中以大豆抗原蛋白引发的早期断奶幼畜肠道过敏和炎症问题最为突出。大豆抗原蛋白可根据离心沉降系数分为α-伴大豆球蛋白(α-conglycinin,2S)、7S、11S和大豆凝集素(soybean agglutinin,15S)4个组分。其中,7S和11S是抗原性最强的2种成分,约占大豆总蛋白含量的70%,二者空间结构稳定,抗消化能力强,能够在肠腔中保留免疫活性片段,进而穿越黏膜屏障,激活宿主免疫系统,诱发明显的肠道致敏反应和免疫损伤[6]
断奶仔猪是研究大豆抗原致敏的经典模型。马良友[7]研究表明,摄入大豆蛋白后,24日龄的断奶仔猪血清促炎细胞因子(IL-2、IL-4、IL-6、IL-8)含量显著升高,十二指肠和空肠绒毛高度降低、隐窝加深,紧密连接蛋白[封闭蛋白-1(Claudin-1)、封闭蛋白-7(Claudin-7)]表达下调,提示物理屏障严重受损。
童川[8]研究证实,饲喂豆粕能够抑制断奶仔猪采食,增加腹泻率,降低肠道抗氧化能力,并损害十二指肠和回肠绒毛结构,进而削弱消化吸收功能。Sun等[9]进一步通过分阶段饲喂试验揭示了11S致敏的剂量依赖性,即抗原暴露量越高,外周血淋巴细胞增殖应答异常及CD4+/CD8+ T细胞亚群比例失衡越显著,生产性能下降也越明显。米萌萌[10]研究发现,断奶仔猪对大豆抗原的过敏反应存在性别差异,母猪过敏率(31.34%)显著高于公猪(13.23%),过敏个体表现为全身性免疫激活,其血清中碱性磷酸酶(alkaline phosphatase,AKP)活性及球蛋白(globulin,GLB)、促炎细胞因子[(IL-4、IL-1β、肿瘤坏死因子-α(TNF-α)]、免疫球蛋白G(immunoglobulin G,IgG)、免疫球蛋白E(immunoglobulin E,IgE)和抗原特异性IgG含量升高,与肠道局部IgG/IgE应答加剧。同时,从抗原结构角度,7S因其紧密的三聚体构象及在消化过程中产生的抗性肽段更易持续刺激肠道黏膜,致敏性略强于11S[11]

1.2 麸质蛋白

麸质蛋白是小麦、大麦等谷物中的贮藏蛋白,约占小麦总蛋白含量的80%[12]。因其良好的黏弹性和营养特性,麸质蛋白常用于猪、家禽及反刍动物的饲料中。主要包含麦醇溶蛋白和麦谷蛋白,富含谷氨酰胺和脯氨酸,在肠腔内难以被完全酶解消化,从而形成免疫显性肽段(如P57~P89)和非免疫显性肽段(如P31~P43),这些肽段可激活Ⅰ型超敏反应[13],从而导致肠道上皮炎症细胞浸润、隐窝增生和绒毛萎缩等病理变化[14]
多项研究证实了麸质蛋白对肠道炎症的诱导作用。余天[14]研究显示,灌胃麸质蛋白可导致小鼠肠道结构和功能严重受损,表现为体重显著降低、肠道绒毛萎缩、隐窝增生,以及空肠组织内炎症因子(IL-1βIL-2、TNF-αIL-4、IL-6、IL-10)和转谷氨酰胺酶2(transglutaminase 2,TG2)的过表达。宋东筱等[15]也证实,饲喂麸质蛋白可破坏BALB/c小鼠十二指肠道屏障,导致小肠绒毛长度缩短,TG2 mRNA相对表达量升高,炎症因子和免疫细胞标志物基因表达均上调,肠道正常结构和功能遭到破坏。

1.3 花生蛋白

花生粕作为潜在蛋白质饲料原料,因其粗蛋白质含量(40%~50%)高和代谢能值在粕类饲料中相对较高,常被用于替代部分豆粕或鱼粉应用于畜禽及水产动物饲料中[16]。然而,花生蛋白含花生过敏原(Arachis hypogaea allergen,Ara h)1~18等多种过敏原,其中Ara h 1、2、3和6是含量最丰富且致敏性最强的主要过敏原。这些过敏原蛋白能诱发IgE介导的Ⅰ型超敏反应,从而引起动物产生严重的过敏性肠道炎症症状[17]
花生蛋白具有强致敏性,可导致严重的肠道损伤。刘志刚等[18]研究发现,小鼠摄入花生蛋白后,其血清中组胺和花生特异性IgE含量显著升高,肠道血管通透性增大,并出现肠黏膜水肿、上皮细胞损伤、肠绒毛断裂等一系列严重的肠道病理变化。王虹峥等[19]通过口服结合腹腔注射致敏的方法,成功构建了花生过敏模型;该模型表现出包括致死性反应在内的高度敏感症状,其特异性IgE、颗粒肥大细胞数量及血管渗漏急剧上升。进一步从蛋白质结构角度,Smits等[20]模拟了在猪肠道上皮细胞中花生蛋白过敏原(Ara h 1、2、3和6)的消化与转运过程对其致敏性的影响发现,Ara h 2和6凭借紧凑且富含二硫键的2S清蛋白结构,对胃蛋白酶消化具有极强的抵抗力,因此临床致病性最强,而Ara h 1和3的结构决定了它们需要先被消化加工成更小、更稳定的肽段,才能获得较强的致敏潜力。

2 多通路协同损伤网络的致敏机制

饲粮抗原蛋白诱导的肠道炎症是涉及氧化应激、免疫激活、肠道屏障结构与功能损伤、细胞凋亡诱导以及微生态失调的复杂网络过程,这些机制相互关联,共同加剧肠道损伤。

2.1 氧化应激与炎症通路的双向激活

大豆抗原蛋白(主要为7S和11S)可通过诱导氧化应激与激活炎症通路双重机制,协同损害动物肠道健康。
一方面,抗原蛋白可打破肠道氧化还原稳态,引发显著的氧化损伤。在断奶仔猪中,Wang等[21]研究发现,7S和11S处理会导致仔猪肠道内8-羟基脱氧鸟苷(8-hydroxy-2'-deoxyguanosine,8-OHdG)和硝基酪氨酸(nitrotyrosine,NT)含量显著升高,同时抑制超氧化物歧化酶(superoxide dismutase,SOD)2活性。该现象在水生动物中同样存在,洪佳乐等[22]研究发现,7S可剂量依赖性升高杂交黄颡鱼后肠的丙二醛(malondialdehyde,MDA)和活性氧(reactive oxygen species,ROS)含量;Duan等[23]也发现,7S会抑制草鱼幼鱼各肠段SOD2、过氧化氢酶(catalase,CAT)和谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)活性,并在后肠导致MDA和蛋白质羰基(protein carbonyl,PC)含量显著升高,表明核酸、脂质和蛋白质均遭受氧化攻击。
另一方面,抗原蛋白能激活核心炎症信号通路,驱动持续性炎症反应。Wang等[21]研究发现,7S和11S可激活仔猪肠道NOD样受体家族含pyrin结构域3蛋白(NOD-like receptor family pyrin domain-containing 3,NLRP3)炎症小体,显著上调NLRP3、含CARD结构域的凋亡相关斑点样蛋白(apoptosis-associated speck-like protein containing a CARD,ASC)、胱氨酸天冬氨酸特异性蛋白酶1(cysteine aspartyl-specific protease 1,Caspase1)以及下游效应因子IL-1βIL-18的表达。在水生动物中,洪佳乐等[22]观察到7S刺激后黄颡鱼后肠道髓过氧化物酶(myeloperoxidase,MPO)活性升高及IL-1β的表达上调,而抗炎因子IL-10的表达下调;Duan等[23]研究也表明,7S能上调草鱼幼鱼促炎细胞因子的表达,并下调抗炎细胞因子的表达,同时抑制溶菌酶等先天性免疫指标,其中后肠炎症反应更为严重。
综上所述,氧化应激与炎症通路激活并非孤立事件,二者相互促进,形成恶性循环,共同导致肠道上皮细胞损伤、屏障功能破坏及消化吸收障碍。

2.2 肠道屏障结构与功能损伤

大豆抗原蛋白(7S和11S)可通过损害肠道机械屏障和免疫屏障的完整性,显著增加肠道通透性。
在机械屏障方面,大豆抗原蛋白直接破坏肠道上皮结构和细胞连接。殷霜阳[24]研究显示,以7S替代酪蛋白会导致断奶仔猪空肠绒毛高度降低,隐窝深度增加,绒毛高度/隐窝深度下降,绒毛出现萎缩与断裂。在细胞水平,夏江英等[25]研究发现,7S可损伤IPEC-J2细胞膜结构,导致乳酸脱氢酶(lactate dehydrogenase,LDH)、AKP、二胺氧化酶(diamine oxidase,DAO)和肠型脂肪酸结合蛋白(intestinal fatty acid binding protein,I-FABP)大量释放,表明细胞通透性急剧增加。李宝等[26]和曹程鸣等[27]研究均发现,7S/11S可显著降低肠道紧密连接蛋白(如Claudin-1)的表达,直接削弱细胞间连接结构。
在免疫屏障方面,大豆抗原蛋白引发异常的黏膜免疫应答。李宝等[26]研究指出,7S和11S呈剂量依赖性升高血清促炎细胞因子IL-2、IL-4、IL-6含量,同时降低γ-干扰素(IFN-γ)含量,提示辅助性T细胞1型(helper T cell type 1,Th1)/辅助性T细胞2型(helper T cell type 2,Th2)免疫平衡向Th2偏移。曹程鸣等[27]进一步证实,7S致敏使断奶仔猪血浆中IgG及IgE含量显著增加,表明全身性体液免疫被过度激活。上述免疫紊乱和机械屏障损伤相互加剧,共同导致肠道屏障功能衰竭。
综上所述,大豆抗原蛋白通过“结构破坏”与“免疫攻击”双重途径协同削弱肠道屏障,最终导致肠道通透性异常增高。

2.3 细胞凋亡的跨信号通路调控

大豆抗原蛋白(7S和11S)可通过协同激活多条关键细胞信号通路,诱导肠道上皮细胞发生程序性死亡,从而破坏肠道稳态。
大豆抗原蛋白诱导细胞凋亡的分子机制涉及多层次信号转导网络的激活。首先,大豆抗原蛋白可诱发ROS累积和细胞膜损伤,直接启动凋亡程序。田仁红等[28]研究表明,7S和11S处理可显著提高细胞凋亡率,并指出7S在诱导ROS累积、加剧炎症反应、促进细胞凋亡及破坏细胞屏障方面的效果强于11S。Wang等[29]在IPEC-J2细胞模型中发现,7S和11S能显著上调内质网应激(endoplasmic reticulum stress,ERS)标志蛋白葡萄糖调节蛋白78(glucose-regulated protein 78,GRP78)、促凋亡转录因子CCAAT增强子结合蛋白同源蛋白(C/EBP homologous protein,CHOP)以及磷酸化的蛋白激酶R样内质网激酶(protein kinase R-like endoplasmic reticulum kinase,PERK)和肌醇需求酶1α(inositol-requiring enzyme 1 alpha,IRE1-α)的表达,而使用ERS抑制剂可有效减轻抗原诱导的细胞凋亡。此外,经典的炎症相关通路亦被激活。彭成璐[30]研究显示,大豆抗原蛋白能激活核因子-κB(nuclear factor-kappa B,NF-κB)和丝裂原活化蛋白激酶(mitogen-activated protein kinases,MAPK)信号通路,其特异性抑制剂可显著缓解由此引发的细胞凋亡。
综上所述,大豆抗原蛋白通过同时或序贯性触发ROS累积-细胞膜损伤、ERS以及NF-κB/MAPK炎症信号等多条通路,形成协同网络,最终共同驱动肠上皮细胞凋亡,导致肠道屏障细胞稳态失衡。

2.4 肠道菌群紊乱及其与宿主免疫的互作

大豆抗原蛋白(7S和11S)能够显著破坏动物肠道菌群结构和功能,进而通过“菌群-代谢-免疫”轴加剧肠道炎症与组织损伤。
研究表明,大豆抗原蛋白可普遍降低肠道菌群多样性,并改变其组成。在畜禽中,Du等[31]研究发现,肉鸡饲粮中添加1%~5%的7S会损害其生长性能,并破坏盲肠微生物群的结构。在水生动物中,He等[32]报道,珍珠龙胆石斑鱼经11S处理后,肠道潜在致病菌的相对丰度显著升高,而有益菌的相对丰度则显著降低;Han等[33]也证实,大豆抗原蛋白会导致中华绒螯蟹幼蟹肠道菌群紊乱,具体表现为苍白杆菌属(Ochrobactrum)和伯克霍尔德菌属(Burkholderia)等致病菌的相对丰度升高,而具有肠道保护功能的异常单胞菌属(Dysgonomonas)的相对丰度下降。
这种菌群失调直接导致关键代谢产物短链脂肪酸(short chain fatty acids,SCFAs)生成减少[34]。SCFAs(如丁酸)是维持肠上皮细胞能量代谢、增强紧密连接及发挥抗炎作用的重要物质,其含量下降会显著削弱肠道屏障功能和免疫稳态[35-37]。同时,菌群失调和大豆抗原蛋白直接刺激协同作用,进一步破坏肠道屏障完整性,表现为肠道通透性增加,血清中屏障损伤标志物如D-乳酸含量上升,以及黏膜免疫屏障关键成分分泌型免疫球蛋白A(secretory immunoglobulin A,sIgA)的分布异常[38]
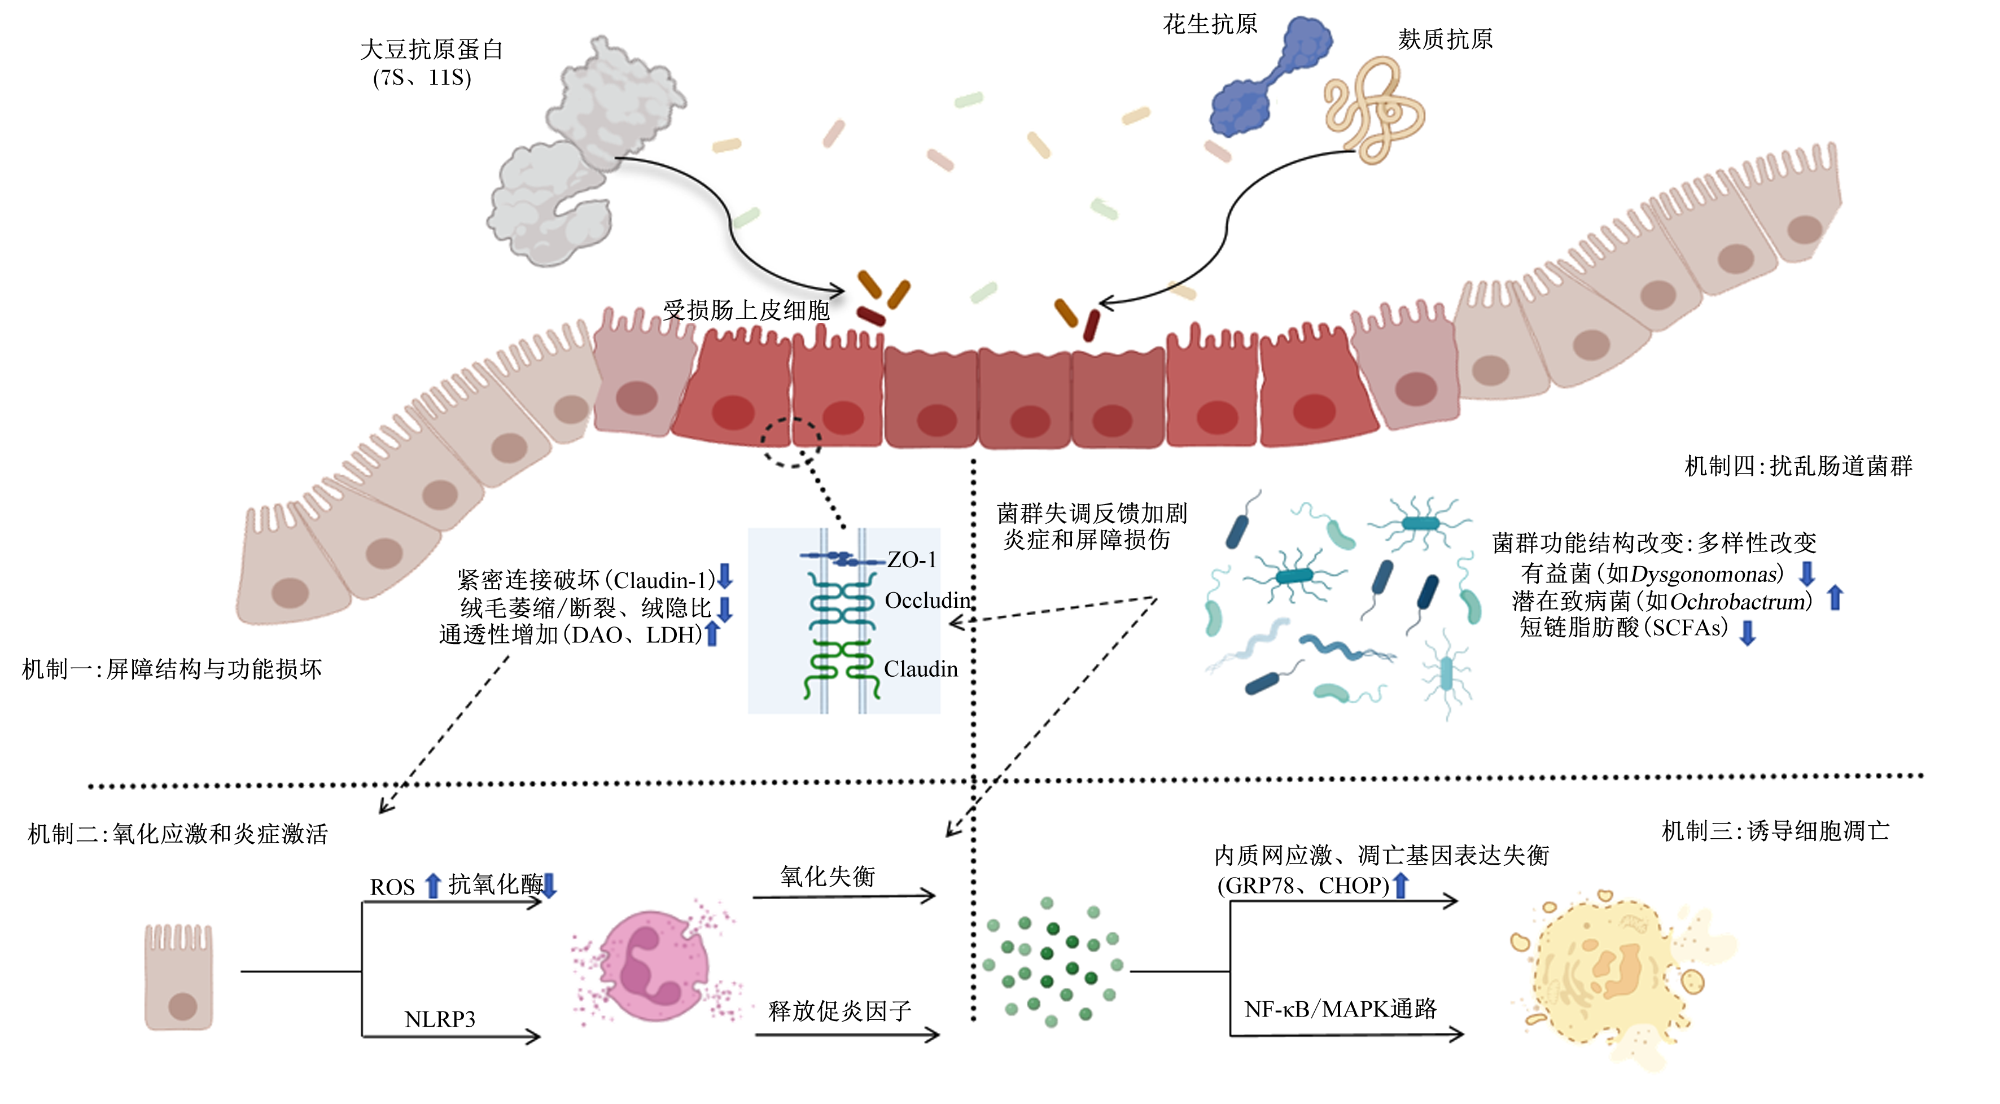
因此,大豆抗原蛋白诱导的菌群紊乱并非孤立事件,而是通过“菌群失调→SCFAs含量减少→炎症加剧/屏障损伤”的闭环,与前述氧化应激、细胞凋亡等机制形成联动网络,共同推动肠道炎症的持续发展与组织损伤。大豆抗原蛋白对动物肠道的损伤机制见图1
图1 大豆抗原蛋白对动物肠道的损伤机制

7S:β-伴大豆球蛋白 β-conglycinin;11S:大豆球蛋白 glycinin;Claudin-1:封闭蛋白-1;DAO:二胺氧化酶 diamine oxidase;LDH:乳酸脱氢酶 lactate dehydrogenase;ZO-1:闭锁小带蛋白zonula occludens-1;Occludin:闭合蛋白;Claudin:封闭蛋白;ROS:活性氧 reactive oxygen species;NLRP3:NOD样受体家族含pyrin结构域3蛋白 NOD-like receptor family pyrin domain-containing 3;Dysgonomonas:异常单胞菌属;Ochrobactrum:苍白杆菌属;GRP78:葡萄糖调节蛋白78 glucose-regulated protein 78;CHOP:CCAAT增强子结合蛋白同源蛋白 C/EBP homologous protein;NF-κB:核因子-κB nuclear factor-kappa B;MAPK:丝裂原活化蛋白激酶 mitogen-activated protein kinases。

Fig.1 Mechanism of soybean antigenic protein damage to animal intestine

3 动物饲粮抗原诱导的过敏性肠道炎症干预策略

动物饲粮抗原诱导的过敏性肠道炎症是制约集约化养殖业健康发展的关键病理环节之一。传统依赖抗生素与非甾体抗炎药物的疗法,因其疗效局限、药物残留、耐药性产生及对宿主微生态的破坏等弊端,已无法满足现代动物医学对安全、高效、可持续疾病防控的需求。因此,研究重心已转向开发多靶点、无残留、不易诱导耐药性的综合干预策略(包括天然植物成分、益生菌和益生元、特异性营养物质及饲粮结构优化等多元化干预策略)。

3.1 天然植物提取物:多靶点药理调控

植物源性活性成分因其结构多样性、多效性与相对安全性,成为干预饲粮抗原引起过敏性肠道炎症的研究热点。其核心机制在于通过抗氧化、抗炎及免疫调节等多重途径,协同维持肠道内稳态[39]
抗氧化与抗炎通路调控。原花青素通过提升血清SOD和GSH-Px活性,显著增强羔羊的全身性抗氧化状态,并改善生长性能和肌肉品质,推荐剂量为20 mg/kg(饲喂45 d)[40]。槲皮素(400 mg/kg)可优化断奶仔猪营养物质的表观消化率,并通过重塑肠道菌群结构,促进碳水化合物发酵模式,抑制潜在致病菌,从而维持肠道健康[41]
细胞信号通路干预。黄芩苷的抗炎作用机制研究较为深入,它能显著抑制脂多糖(lipopolysaccharide,LPS)诱导的IPEC-J2细胞内ROS含量和LDH活性的升高,并通过下调细胞外信号调节激酶(extracellular signal-regulated kinase,ERK)和p38 MAPK的表达,阻断MAPK信号通路的激活,从而减轻炎症因子表达和组织损伤[42]。这提示黄芩苷通过ROS/MAPK轴发挥肠道保护作用,为靶向干预提供了分子依据。
复合植物成分的协同效应。组合应用显示出增效潜力,甜菜碱(2 500 mg/kg)联合表没食子儿茶素没食子酸酯(epigallocatechin gallate,EGCG)(1 000 mg/kg)可同步改善育肥猪的饲料利用率、肉品质、血清脂质代谢及抗氧化能力,实现多维度的健康调控[43]
需要注意的是,植物提取物的生物学效应存在显著的剂量依赖性和种属特异性。例如,原花青素在缓解仔猪肠道损伤中的推荐剂量为100 mg/kg[44],显著高于羔羊的20 mg/kg[40]。因此,临床转化必须严格遵循物种特异性的药效学和毒理学研究。未来需深入探究不同成分间的相互作用、最佳配伍比例及其在动物体内的代谢动力学,以制定标准化临床应用方案。

3.2 益生菌和益生元:微生态精准重建

益生菌和益生元通过竞争性定植、抗菌物质分泌、屏障功能强化及免疫调节等机制,重塑肠道微生态平衡,是干预饲粮抗原过敏的生态学策略核心[45]
益生菌的直接干预作用。研究表明,丁酸梭菌代谢产物及活菌复合制剂(2 kg/t)能有效提高断奶仔猪生长性能,降低腹泻率,增强其免疫和抗炎能力[46];特定乳杆菌菌株(如嗜酸乳杆菌E、戊糖片球菌JQ-M3等,5×106 CFU/g)可提升应激肉鸡的抗氧化状态,改善肠道形态,并降低促炎细胞因子含量[47];枯草芽孢杆菌(2×1011 CFU/kg)在高蛋白质饲粮背景下,对缓解断奶仔猪肠道炎症效果显著[48]
益生元的间接调控作用。益生元通过选择性促进有益菌增殖,发挥“桥梁”作用。β-葡聚糖和甘露寡糖可增加犬粪便中厚壁菌门和拟杆菌门的相对丰度,促进SCFAs生成,从而缓解轻度炎症性肠病(inflammatory bowel disease,IBD)症状[49]。SCFAs作为关键的微生物代谢产物,不仅能提供肠上皮能量,还具有直接的抗炎和维持屏障完整性的功能。
剂量与菌株特异性考量。微生态制剂的效应高度依赖于菌株特性、剂量及动物种类。例如,枯草芽孢杆菌对仔猪的有效剂量为1011 CFU/kg[48],而对水产动物如橄榄比目鱼的有效剂量则为108CFU/g[50]。这凸显了基于宿主物种和病理状态进行菌株筛选与剂量优化的必要性。

3.3 特异性营养物质:功能营养物质靶向干预

精准补充特定氨基酸、维生素等功能营养物质,已成为干预饲粮抗原引起过敏性肠道炎症的重要措施。这些营养物质可直接参与肠道代谢、修复、免疫调节和影响微生物组成等多途径发挥保护作用。是一种针对性的营养药理学方法。
氨基酸的营养药理作用。谷氨酰胺二肽是快速增殖肠上皮细胞的关键能源。甘氨酰谷氨酰胺(glycyl-glutamine,GlyGln)的补充(0.25%)能有效改善LPS攻击下断奶仔猪的回肠形态,提高SOD活性,降低氧化应激指标MDA含量、一氧化氮合酶(nitric oxide synthase,NOS)活性,并通过调节菌群增强屏障功能[51]。精氨酸补充则可提升肉兔的血清免疫球蛋白含量,优化盲肠菌群,增强肠道免疫和抗氧化能力[52]
维生素的代谢调节作用。烟酸(130 mg/kg)作为辅酶烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate,NADP+)的前体,能调节绵羊的能量代谢路径,增强有氧代谢,降低糖酵解,从而改善生长性能和免疫能力[53]
成本效益与替抗策略。在实际生产应用中,饲料成本是不可避免的问题,将功能营养物质纳入成本效益分析至关重要。例如,使用0.5%的谷氨酰胺二肽可替代3%的乳清粉,或采用“0.5%二肽+2%乳清粉”的组合方案,在降低饲料成本的同时,显著提高仔猪日增重,综合效益突出[54]。这为设计兼具经济性与功效性的无抗饲粮提供了可行方案。

3.4 饲粮结构优化:病因性源头防控

饲粮结构优化是从源头上减少抗原刺激、降低消化代谢负担、预防过敏性肠道炎症的根本策略。其核心在于实施精准的蛋白质营养策略,涵盖饲粮蛋白质水平与氨基酸平衡调控及物理形态创新。
饲粮蛋白质水平与氨基酸平衡调控。降低饲粮粗蛋白质水平并确保必需氨基酸平衡,是减轻肠道消化压力、改善肠道形态的关键。研究表明,将生长猪饲粮蛋白质水平降低4个百分点,可有效减少小肠隐窝深度,提升绒毛高度与隐窝深度,从而优化肠道结构和吸收功能[55]。这提示,通过精准氨基酸平衡技术设计低蛋白质饲粮,可在维持生产性能的同时,维护肠道健康。
饲粮物理形态创新。将干料饲喂模式转变为液态发酵饲料饲喂模式,是一项具有多重益处的饲喂工艺革新。该模式不仅提高了饲料适口性和动物采食量,更重要的是通过微生物发酵实现了预消化,降低了抗营养因子含量,并产生了有益代谢产物(如有机酸、酶)。研究证实,饲喂液态发酵饲料能显著提升仔猪小肠各段(十二指肠、空肠、回肠)的绒毛高度、绒毛高度/隐窝深度、杯状细胞数量及黏膜厚度,从而全面强化物理屏障和免疫屏障[56]。此外,利用特定菌种(如玉米乳杆菌)发酵可大幅提升营养物质消化率(如粗蛋白质消化率达91.74%),并改善生长性能和血清指标[57]
综上所述,通过系统性地优化饲粮蛋白质水平与品质、创新饲粮加工与饲喂形态,能够从营养学源头有效规避致敏风险,实质性地改善肠道内环境与形态结构,为实现无抗养殖背景下的动物肠道健康精准防控提供了核心实践方案。

4 展望

饲粮性肠道炎症是由饲粮中的抗原蛋白(如大豆抗原蛋白、麸质蛋白、花生蛋白等)引发的一种异常免疫反应,其病理过程涉及氧化应激、炎症反应、破坏肠道屏障完整性、扰乱肠道菌群稳态等多途径协同作用。以天然植物提取物、益生菌和益生元、功能营养物质及饲粮结构优化为核心的营养干预策略,通过多靶点调控,为防控该病提供了安全有效的绿色方案。
尽管当前研究取得了显著进展,但未来仍存在诸多挑战和值得深入探索的方向。1)机制研究的纵深拓展:需超越表型观察,深入解析关键抗原表位的免疫识别机制,以及MAPK/NF-κB等核心信号通路在种属间的调控差异;同时,建立更契合生产实际的动物模型或体外评估体系。2)干预策略的精准化与个体化:借助多组学技术,阐明不同干预手段对特定动物品种、生理阶段及饲养模式下肠道微生态-免疫网络的重塑规律,为实现精准营养干预提供依据。3)新型功能添加剂的研发与协同机制:挖掘具有强效抗炎、屏障修复或菌群调控功能的新型天然产物或微生物制剂,并系统评估不同添加剂间的协同、拮抗效应,开发复合型功能产品。4)实用化技术的集成与标准建立:推动低抗原饲料配方技术、液态发酵工艺等实用技术的标准化集成与成本效益评估,制定基于健康效益的饲养管理规程。

5 小结

饲粮抗原诱导的过敏性肠道炎症是涉及多组分、多通路的复杂免疫病理过程。本文系统阐述了主要抗原蛋白的致敏特性,揭示了氧化应激-炎症激活、屏障损伤、细胞凋亡及菌群失调相互交织的致敏网络,并综述了以天然植物成分、益生菌和益生元、功能性氨基酸及饲粮结构优化为核心的营养干预策略。未来通过深化机制解析、发展精准营养、创新绿色添加剂及集成养殖技术,有望构建高效、安全的综合防控体系,对保障动物肠道健康、提升养殖效益与推动畜牧业可持续发展具有重要意义。
[1]
徐述亮. 大豆蛋白抗原对断奶仔猪的免疫原性及作用机理研究[D].硕士学位论文. 合肥: 安徽农业大学, 2010.

XU S L. Immunogenicity and mechanisim of soybean proteantigen on the weanling piglets[D].Master’s Thesis. Hefei: Anhui Agricultural University, 2010. (in Chinese)

[2]
马曦, 李德发. 硫辛酸缓解日粮抗原蛋白glycinin所致过敏反应的研究[C]//中国畜牧兽医学会2010学术年会——第二届中国兽医临床大会论文集(下册). 长春: 中国畜牧兽医学会, 2010:309-313.

MA X, LI D F. SLipoic acid:an immunomodulator that attenuates glycinin-inducedanaphylactic reactions in a rat model[C]//Proceedings of the 2010 academic annual meeting of Chinese Association of Animal Science and Veterinary Medicine—the 2nd China veterinary clinical congress (Volume Ⅱ). Changchun: Chinese Association of Animal Science and Veterinary Medicine, 2010:309-313. (in Chinese)

[3]
HOU Q H, HUANG J X, XIONG X, et al. Role of nutrient-sensing receptor GPRC6A in regulating colonic group 3 innate lymphoid cells and inflamed mucosal healing[J]. Journal of Crohn’s & Colitis, 2022, 16(8):1293-1305.

[4]
占今舜, 陈宇光. 大豆蛋白的种类及在畜禽生产中的应用[J]. 饲料博览, 2014(3):14-17.

ZHAN J S, CHEN Y G. Kinds of soy protein and application in livestock and poultry production[J]. Feed Review, 2014(3):14-17. (in Chinese)

[5]
WIEDERSTEIN M, BAUMGARTNER S, LAUTER K. Soybean (Glycine max) allergens-a review on an outstanding plant food with allergenic potential[J]. ACS Food Science & Technology, 2023, 3(3):363-378.

[6]
常永锋, 陈屹轩, 布冠好, 等. 挤压膨化温度对大豆分离蛋白抗原性及结构的影响[J]. 中国油脂, 2024, 49(12):13-19.

CHANG Y F, CHEN Y X, BU G H, et al. Effect of extrusion temperature on antigenicity and structure of soybean protein isolate[J]. China Oils and Fats, 2024, 49(12):13-19. (in Chinese)

[7]
马良友. 大豆抗原蛋白对断奶仔猪血清中细胞因子的影响及肠道致敏作用[D].硕士学位论文. 合肥: 安徽农业大学, 2014.

MA L Y. Effect of soybean antigen protein on serum cytokines and intestinal allergization in weaned piglets[D].Master’s Thesis. Hefei: Anhui Agricultural University, 2014. (in Chinese)

[8]
童川. 葡萄籽原花青素对大豆粕引起的仔猪肠道损伤的缓解作用[D].硕士学位论文. 沈阳: 沈阳农业大学, 2024.

TONG C. Mitigating effect of grape seed proanthocyanidins on soybean meal-induced intestinal damage in piglets[D].Master’s Thesis. Shenyang: Shenyang Agricultural University, 2024. (in Chinese)

[9]
SUN P, LI D F, DONG B, et al. Effects of soybean glycinin on performance and immune function in early weaned pigs[J]. Archives of Animal Nutrition, 2008, 62(4):313-321.

DOI PMID

[10]
米萌萌. 大豆抗原诱导仔猪肠道免疫反应的个体差异及其机制研究[D].博士学位论文. 长春: 吉林农业大学, 2024.

MI M M. Individual differences in intestinal immune responses induced by soybean antigen and its mechanism in piglets[D].Ph.D. Thesis. Changchun: Jilin Agricultural University, 2024. (in Chinese)

[11]
ZHENG S G, QIN G X, TIAN H, et al. Three-dimensional structure of gly m 5 (β-conglycinin) plays an important role in its stability and overall allergenicity[J]. Food Chemistry, 2017, 234:381-388.

DOI PMID

[12]
张轶然, 刘轶斐, 孙宛舒, 等. 食品中麸质及其生物传感检测方法研究进展[J]. 食品科学, 2024, 45(13):292-299.

DOI

ZHANG Y R, LIU Y F, SUN W S, et al. Research progress on gluten in foods and biosensors for its detection[J]. Food Science, 2024, 45(13):292-299. (in Chinese)

DOI

[13]
BALLEGAARD A S R, CASTAN L, LARSEN J M, et al. Acid hydrolysis of gluten enhances the skin sensitizing potential and drives diversification of IgE reactivity to unmodified gluten proteins[J]. Molecular Nutrition & Food Research, 2021, 65(23):e2100416.

[14]
余天. 天然抗氧化物对小麦麸质蛋白诱导C57BL/6小鼠肠道炎症的干预作用及其工业化生产设计[D].硕士学位论文. 南昌: 南昌大学, 2021.

YU T. Intervention effect of natural antioxidants on intestinal inflammation induced by wheat gluten proteins in C57BL/6 mice and its process design in industrial scale[D].Master’s Thesis. Nanchang: Nanchang University, 2021. (in Chinese)

[15]
宋东筱, 任正楠, 潘礼龙, 等. 一种基于BALB/c背景由膳食麸质引起的乳糜泻小鼠模型的构建及其评价[J]. 食品科学, 2022, 43(21):117-125.

SONG D X, REN Z N, PAN L L, et al. Establishment and evaluation of a BALB/c mouse model of celiac disease caused by dietary gluten[J]. Food Science, 2022, 43(21):117-125. (in Chinese)

DOI

[16]
王嘉豪, 刘长忠, 崔艳红. 发酵花生粕的营养价值及其在动物生产中的应用研究[J]. 饲料研究, 2022, 45(4):154-157.

WANG J H, LIU C Z, CUI Y H. Study onnutritional value of fermented peanut meal and its application in animal production[J]. Feed Research, 2022, 45(4):154-157. (in Chinese)

[17]
GENG Q, ZHANG Y, SONG M, et al. Allergenicity of peanut allergens and its dependence on the structure[J]. Comprehensive Reviews in Food Science and Food Safety, 2023, 22(2):1058-1081.

DOI PMID

[18]
刘志刚, 杨成彬, 闫浩, 等. Balb/c小鼠花生过敏模型的建立及发病机理[J]. 深圳大学学报理工版, 2012, 29(2):165-170.

LIU Z G, YANG C B, YAN H, et al. Establishment and pathogenesis of Balb/c mouse peanut allergy model[J]. Journal of Shenzhen University Science and Engineering, 2012, 29(2):165-170. (in Chinese)

DOI

[19]
王虹峥, 王前飞. 易感小鼠花生过敏诱导的中毒反应[J]. 中国中医基础医学杂志, 1999(1):30-34.

WANG H Z, WANG Q F. Toxic reactions induced by peanut allergy in susceptible mice[J]. Chinese Journal of Basic Medicine in Traditional Chinese Medicine, 1999(1):30-34. (in Chinese)

[20]
SMITS M, NOOIJEN I, REDEGELD F, et al. Digestion and transport across the intestinal epithelium affects the allergenicity of Ara h 1 and 3 but not of Ara h 2 and 6[J]. Molecular Nutrition & Food Research, 2021, 65(6):2000712.

[21]
WANG L, LI W, XIN S Z, et al. Soybean glycinin and β-conglycinin damage the intestinal barrier by triggering oxidative stress and inflammatory response in weaned piglets[J]. European Journal of Nutrition, 2023, 62(7):2841-2854.

DOI PMID

[22]
洪佳乐, 职毓杰, 张美娜, 等. β-伴大豆球蛋白剂量依赖性上调Hif-1α表达、线粒体自噬和NLRP3炎性小体活性、下调AhR轴诱导杂交黄颡鱼豆粕诱导型肠炎[J]. 水产学报, 2025, 49(10):109602.

HONG J L, ZHI Y J, ZHANG M N, et al. β-conglycinin induces soybean meal-induced enteritis by dose-dependently up-regulating Hif-1α expression,mitophagy and NLRP3 inflammasome activity,and down-regulating AhR axis in hybrid yellow catfish[J]. Journal of Fisheries of China, 2025, 49(10):109602. (in Chinese)

[23]
DUAN X D, JIANG W D, WU P, et al. Soybean β-conglycinin caused intestinal inflammation and oxidative damage in association with NF-κB,TOR and Nrf2 in juvenile grass carp (Ctenopharyngodon idella):varying among different intestinal segments[J]. Fish & Shellfish Immunology, 2019, 95:105-116.

[24]
殷霜阳. 大豆抗原蛋白β-conglycinin在仔猪小肠粘膜的吸收转运机制[D].硕士学位论文. 沈阳: 沈阳农业大学, 2022.

YIN S Y. Absorption and transport mechanism of soybean β-conglycinin in small intestinal mucosa of piglets[D].Master’s Thesis. Shenyang: Shenyang Agricultural University, 2022. (in Chinese)

[25]
夏江英, 杨菊, 宋天浩, 等. 维生素C对β-伴大豆球蛋白诱导的仔猪肠上皮细胞炎性损伤的保护作用[J]. 浙江农业学报, 2021, 33(11):2017-2025.

DOI

XIA J Y, YANG J, SONG T H, et al. Protective effect of vitamin C in piglet intestinal epithelial cells inflammatory injury induced by β-conglycinin[J]. Acta Agriculturae Zhejiangensis, 2021, 33(11):2017-2025. (in Chinese)

[26]
李宝, 李玉, 马良友, 等. 大豆抗原蛋白对断奶仔猪细胞因子及肠上皮紧密连接蛋白Claudin-1 mRNA表达的影响[J]. 中国兽医学报, 2015, 35(9):1511-1517.

LI B, LI Y, MA L Y, et al. Effects of soybean antigen protein on cytokines and the mRNA expression of tight junction protein Claudin-1 in intestinal epithelium of weaning piglets[J]. Chinese Journal of Veterinary Science, 2015, 35(9):1511-1517. (in Chinese)

[27]
曹程鸣, 李宝, 张瑜, 等. 日粮中添加大豆抗原蛋白对断奶仔猪血清中IgG和IgE水平以及肠道ZO-1表达的影响[J]. 中国兽医科学, 2017, 47(3):389-396.

CAO C M, LI B, ZHANG Y, et al. Effects of adding soybean antigen proteins on serum IgG and IgE levels and expression of intestinal ZO-1 in weaning piglets[J]. Chinese Veterinary Science, 2017, 47(3):389-396. (in Chinese)

[28]
田仁红, 邱建强, 彭凯, 等. 大豆抗原蛋白7S和11S对凡纳滨对虾肠道细胞的致敏机制研究[J]. 动物营养学报, 2025, 37(1):536-549.

DOI

TIAN R H, QIU J Q, PENG K, et al. Study on sensitization mechanism of soybean antigen proteins on intestinal cells of Litopenaeus vannamei[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):536-549. (in Chinese)

[29]
WANG L, ZHANG D L, JIANG B Z, et al. 4-phenylbutyric acid attenuates soybean glycinin/β-conglycinin-induced IPEC-J2 cells apoptosis by regulating the mitochondria-associated endoplasmic reticulum membrane and NLRP-3[J]. Journal of Agricultural and Food Chemistry, 2024, 72(11):5926-5934.

DOI PMID

[30]
彭成璐. β-伴大豆球蛋白和大豆球蛋白诱导IPEC-J2细胞损伤的机制研究[D].硕士学位论文. 合肥: 安徽农业大学, 2020.

PENG C L. The mechanism of β-conglycinin and glycinin induced IPEC-J2 cell damage[D].Master’s Thesis. Hefei: Anhui Agricultural University, 2020. (in Chinese)

[31]
DU Y S, YU Z X, WAN S S, et al. Soybean β-conglycinin inhibits broiler growth and nutrient utilization by inducing allergic and inflammatory responses,impairing intestinal barrier integrity and altering cecal microbiota[J]. Animals, 2025, 15(12):1701.

DOI

[32]
HE Y F, LIANG J F, DONG X H, et al. Soybean β-conglycinin and glycinin reduced growth performance and the intestinal immune defense and altered microbiome in juvenile pearl gentian groupers Epinephelus fuscoguttatus ♀ ×Epinephelus lanceolatus ♂[J]. Animal Nutrition, 2022, 9:193-203.

DOI

[33]
HAN F L, WANG X D, GUO J L, et al. Effects of glycinin and β-conglycinin on growth performance and intestinal health in juvenile Chinese mitten crabs (Eriocheir sinensis)[J]. Fish & Shellfish Immunology, 2019, 84:269-279.

[34]
LI Y J, LIU Y, WU J N, et al. Comparative effects of enzymatic soybean,fish meal and milk powder in diets on growth performance,immunological parameters,SCFAs production and gut microbiome of weaned piglets[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):106.

DOI

[35]
CHE S Y, QIN B B, WU K F, et al. EGCG drives gut microbial remodeling-induced epithelial GPR43 activation to lessen Th1 polarization in colitis[J]. Redox Biology, 2024, 75:103291.

DOI

[36]
HAYS K E, PFAFFINGER J M, RYZNAR R. The interplay between gut microbiota,short-chain fatty acids,and implications for host health and disease[J]. Gut Microbes, 2024, 16(1):2393270.

DOI

[37]
KRAUSE F F, MANGOLD K I, RUPPERT A L, et al. Clostridium sporogenes-derived metabolites protect mice against colonic inflammation[J]. Gut Microbes, 2024, 16(1):2412669.

DOI

[38]
WU J J, CAO C M, RAN D D, et al. Effects of soybean antigen proteins on intestinal permeability,5-hydroxytryptamine levels and secretory IgA distribution in the intestine of weaned piglets[J]. Italian Journal of Animal Science, 2016, 15(1):174-180.

DOI

[39]
王雅宁, 牛晓雨, 邢媛媛, 等. 多酚类化合物调控畜禽肉品质的研究进展[J]. 动物营养学报, 2025, 37(5):2887-2899.

DOI

WANG Y N, NIU X Y, XING Y Y, et al. Research progress on regulation of livestock and poultry meat quality by polyphenolic compounds[J]. Chinese Journal of Animal Nutrition, 2025, 37(5):2887-2899. (in Chinese)

DOI

[40]
杨文军, 牟春堂, 王鹏举, 等. 饲粮中添加葡萄籽原花青素对羔羊生长性能、屠宰性能、肉品质及血清抗氧化指标的影响[J]. 动物营养学报, 2020, 32(6):2755-2764.

DOI

YANG W J, MU C T, WANG P J, et al. Effects of dietary supplementation of grape seed proanthocyanidins on growth performance,slaughter performance,meat quality and serum antioxidant indexes of lambs[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2755-2764. (in Chinese)

[41]
梅华迪, 李袁飞, 田琦, 等. 槲皮素对断奶仔猪生长性能、营养物质表观消化率、血清生化指标、粪便微生物及其代谢产物的影响[J]. 动物营养学报, 2022, 34(5):2884-2895.

DOI

MEI H D, LI Y F, TIAN Q, et al. Effects of quercetin on growth performance,nutrient apparent digestibility,serum biochemical indices,fecal microorganisms and their metabolites of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):2884-2895. (in Chinese)

[42]
孙心怡. 黄芩苷对ROS/MAPK信号通路介导小鼠肠道和IPEC-J2细胞炎症反应的作用[D].硕士学位论文. 湛江: 广东海洋大学, 2023.

SUN X Y. Effects of baicalin on ROS/MAPK signaling pathway mediating inflammatory response in mouse intestinal and IPEC-J2 cells[D].Master’s Thesis. Zhenjiang: Guangdong Ocean University, 2023. (in Chinese)

[43]
陈雨诗, 刘禹熙, 杨童寓丹, 等. 饲粮中添加甜菜碱和表没食子儿茶素没食子酸酯对育肥猪生长性能、肉品质、血清生化和抗氧化指标的影响[J]. 动物营养学报, 2024, 36(3):1525-1536.

DOI

CHEN Y S, LIU Y X, YANG T Y D, et al. Effects of dietary betaine and epigallocatechin gallate on growth performance,meat quality,serum biochemical and antioxidant indices of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1525-1536. (in Chinese)

[44]
涂枫, 郜平光, 李琦, 等. 日粮添加葡萄籽原花青素对断奶仔猪生长性能、血液指标及肠道损伤的影响[J]. 江苏农业科学, 2023, 51(13):197-202.

TU F, GAO P G, LI Q, et al. Effects of dietary grape seed procyanidin supplementation on growth performance,blood parameters and intestinal damage of weaned piglets[J]. Jiangsu Agricultural Sciences, 2023, 51(13):197-202. (in Chinese)

[45]
AZAD M A K, SARKER M, LI T J, et al. Probiotic species in the modulation of gut microbiota:an overview[J]. BioMed Research International, 2018, 2018(1):9478630.

[46]
武祎凡, 于小艺, 武玉珺, 等. 丁酸梭菌代谢产物及活菌复合制剂对断奶仔猪生长性能和肠道健康的影响[J]. 动物营养学报, 2025, 37(7):4333-4348.

DOI

WU Y F, YU X Y, WU Y J, et al. Effects of compound preparation of Clostridium butyricum metabolites and live bacteria on growth performance and intestinal health of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2025, 37(7):4333-4348. (in Chinese)

[47]
边智尧, 刘国华, 陈宝江, 等. 饲粮中添加益生菌对脂多糖诱导的免疫应激肉鸡抗氧化能力、免疫功能和肠道健康的影响[J]. 动物营养学报, 2025, 37(7):4444-4454.

DOI

BIAN Z Y, LIU G H, CHEN B J, et al. Effects of dietary probiotics supplementation on antioxidant capacity,immune function and intestinal health of broilers under immune stress induced by lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2025, 37(7):4444-4454. (in Chinese)

DOI

[48]
LIU Y, CAO L, YU C H, et al. Dietary supplementation with Bacillus subtilis PB6 alleviates diarrhea and improves growth performance and immune function in weaned piglets fed a high-protein diet[J]. Frontiers in Veterinary Science, 2025, 12:1525354.

DOI

[49]
AMARAL A R, RENTAS M F, ROSA T C T, et al. Microbiota in mild inflammatory bowel disease (IBD) can be modulated by beta-glucans and mannanoligosaccharides:a randomized,double-blinded study in dogs[J]. Veterinary Sciences, 2024, 11(8):349.

DOI

[50]
CHOI W, MONIRUZZAMAN M, LEE S, et al. Evaluation of three fish-derived probiotic bacteria replacing antibiotics on growth,immunity,gut morphology and disease resistance in juvenile olive flounder Paralichthys olivaceus fed reduced fish meal diets[J]. Frontiers in Nutrition, 2025, 12:1519140.

DOI

[51]
XU B Y, YAN Y Q, YIN B Q, et al. Dietary glycyl-glutamine supplementation ameliorates intestinal integrity,inflammatory response,and oxidative status in association with the gut microbiota in LPS-challenged piglets[J]. Food & Function, 2021, 12(8):3539-3551.

[52]
任启峰, 王利华, 杨丽萍, 等. 低蛋白质饲粮中添加精氨酸对肉兔免疫性能、抗氧化能力和肠道健康的影响[J]. 动物营养学报, 2025, 37(5):3330-3341.

DOI

REN Q F, WANG L H, YANG L P, et al. Effects of low protein diet supplemented with arginine on immune performance,antioxidant capacity and intestinal health of meat rabbits[J]. Chinese Journal of Animal Nutrition, 2025, 37(5):3330-3341. (in Chinese)

[53]
成志强, 管勤超, 臧长江, 等. 高精料饲粮中添加烟酸对绵羊瘤胃内乳酸代谢及其相关酶活性的影响[J]. 动物营养学报, 2023, 35(10):6507-6515.

DOI

CHENG Z Q, GUAN Q C, ZANG C J, et al. Effects of niacin supplementation in high-concentrate diets on rumen lactate metabolism and its related enzyme activities of sheep[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6507-6515. (in Chinese)

DOI

[54]
岳增华, 解志峰. 谷氨酰胺在断奶仔猪饲料中的应用效果[J]. 饲料工业, 2006, 27(8):42-43.

YUE Z H, XIE Z F. Application of glutamine in weaning pigs feed[J]. Feed Industry, 2006, 27(8):42-43. (in Chinese)

[55]
虞德夫. 低蛋白日粮对猪肠道形态、消化酶、胃肠激素、肠道微生物及其代谢产物的影响[D].硕士学位论文. 南京: 南京农业大学, 2019.

YU D F. Effect of low-protein diet on intestinal morpholgoy,digestive enzymes,gut hormones,gut microbiota and its metabolites in pigs[D].Master’s Thesis. Nanjing: Nanjing Agricultural University, 2019. (in Chinese)

[56]
刘震坤, 陈鲜鑫, 李世易. 液体发酵饲料在断奶仔猪生产中的应用[J]. 畜牧产业, 2022(4):74-77.

LIU Z K, CHEN X X, LI S Y. Application of liquid fermented feed in the production of weaned piglets[J]. Animal Agriculture, 2022(4):74-77. (in Chinese)

[57]
陈鲜鑫, 王金全, 刘震坤, 等. 玉米乳杆菌发酵液体饲料对断奶仔猪生产性能、养分消化率(全收粪法)和血清生化免疫指标的影响[J]. 饲料研究, 2017(5):5-9,39.

CHEN X X, WANG J Q, LIU Z K, et al. Effects of Lactobacillus zeae fermented liquid feed on production performance,nutrient digestibility (total fecal collection method) and serum biochemical and immune indices of weaned piglets[J]. Feed Research, 2017(5):5-9,39. (in Chinese)

文章导航

/