综述

养殖场臭味物质的肠道生成途径及微生物调控机制研究进展

  • 张剑峰 , 1, 2 ,
  • 叶小梅 1 ,
  • 宦海琳 1 ,
  • 奚雨萌 , 1, *
展开
  • 1 江苏省农业科学院畜牧研究所, 农业农村部种养结合重点实验室, 南京 210014
  • 2 鄂州海大饲料有限公司, 鄂州 430000
* 奚雨萌,副研究员,硕士生导师,E-mail:

张剑峰(1986—),男,河南周口人,硕士,从事家禽健康养殖与环境控制研究。E-mail:

Office editor: 武海龙

收稿日期: 2025-11-10

  网络出版日期: 2026-06-13

基金资助

国家重点研发计划项目(2025YFD1700102)

江苏省现代农业关键技术集成推广项目(JCTG[2025]28)

Advances in Intestinal Production Pathways of Odor Substances in Livestock Farm and Their Microbial Regulatory Mechanism

  • ZHANG Jianfeng , 1, 2 ,
  • YE Xiaomei 1 ,
  • HUAN Hailin 1 ,
  • XI Yumeng , 1, *
Expand
  • 1 Key Laboratory of Crop and Livestock Integrated Farming, Institute of Animal Husbandry, Jiangsu Academy of Agricultural Sciences, Nanjing 210014, China
  • 2 Ezhou Haida Feed Co., Ltd., Ezhou 430000, China
* associate professor, E-mail:

Received date: 2025-11-10

  Online published: 2026-06-13

摘要

养殖场恶臭与异味问题突出,致使畜牧业长期位居各行业环境投诉前列。养殖场臭气源于未消化的饲料组分和宿主内源代谢产物,是后肠微生物菌群协同作用下产生的易挥发物质。本文系统综述了氨气(NH3)、硫化氢(H2S)、3-甲基吲哚(粪臭素)等主要臭味物质的肠道生成途径,梳理了参与该过程的核心微生物菌群和限速酶,简述了养殖臭气源头减排的主要手段,以期为微生态精准干预技术开发、绿色畜牧业发展提供支持。

本文引用格式

张剑峰 , 叶小梅 , 宦海琳 , 奚雨萌 . 养殖场臭味物质的肠道生成途径及微生物调控机制研究进展[J]. 动物营养学报, 2026 , 38(6) : 4072 -4084 . DOI: 10.12418/CJAN2026.326

Abstract

The animal husbandry industry has long been at the forefront of complaints from various industries due to the malodor and peculiar smell of livestock farm. The livestock farm odor originates from undigested feed components and endogenous host metabolites, which are volatile substances produced by the synergistic action of hindgut microbiota. This paper systematically reviews the intestinal production pathways of ammonia (NH3), hydrogen sulfide (H2S), 3-methylindole (skatol) and other major odor substances, summarizes the core microbiota and rate-limiting enzymes involved in the process, and briefly describes the main methods to reduce the source of aquaculture odor, so as to provide support for the development of precise microecological intervention technology and the development of green animal husbandry.

随着集约化生产快速推进,养殖场恶臭与异味问题逐渐凸显,致使畜牧业长期位居各行业投诉前列;养殖场臭气常导致畜禽代谢紊乱、免疫力降低,影响生产性能和经济收益;同时,也会对饲养人员及周边居民的身体健康带来负面影响,引发呼吸道问题等[1]。养殖场臭气组成繁杂,鸡粪中的臭味物质超过130种,猪粪中的更是达到230种以上;主要分为以下4类:1)氨气(NH3)和胺类(腐胺、尸胺、甲胺、乙胺等);2)含硫化合物,如硫化氢(H2S)、硫醚类、硫醇类等;3)芳香族化合物,如吲哚、3-甲基吲哚(粪臭素)、对甲酚等;4)挥发性脂肪酸(volatile fatty acids,VFAs),如丙酸、丁酸、异丁酸等[2-4]。其中,NH3、H2S和粪臭素在臭味物质中浓度占比最高,是当前养殖场臭气减排的主要研究对象。研究表明,这些臭味物质主要在畜禽后端肠道中产生,从粪便中释放,其产生过程受饲粮组成、营养物质消化、宿主肠道微生物菌群代谢、外源活性物质等因素协同调控[5-7]。因此,了解养殖场臭味物质的肠道生成途径及微生物调控机制,对于从源头控制臭气生成、减少臭气排放意义重大。本文聚焦动物养殖过程臭气来源,系统综述了NH3、H2S、粪臭素、吲哚等臭味物质的肠道生成途径及微生物菌群和限速酶的核心作用,以期为养殖场生物除臭技术开发与减臭策略制定提供参考。

1 NH3

肠道NH3生成实质上是微生物与酶协同参与下结合态氮(蛋白质、小肽等)向游离态氮(NH3)转化并挥发的复杂生化反应,涉及“饲粮组成-宿主营养-微生物代谢”互作调节。肠道NH3大部分由微生物脲酶水解尿素产生,也有部分基于氨基酸脱氨反应形成,随粪便排出体外,并通过质量扩散传递从粪污表面释放至自由气流,形成氨味养殖臭气[7-8]

1.1 肠道NH3主要来源——尿素的水解作用

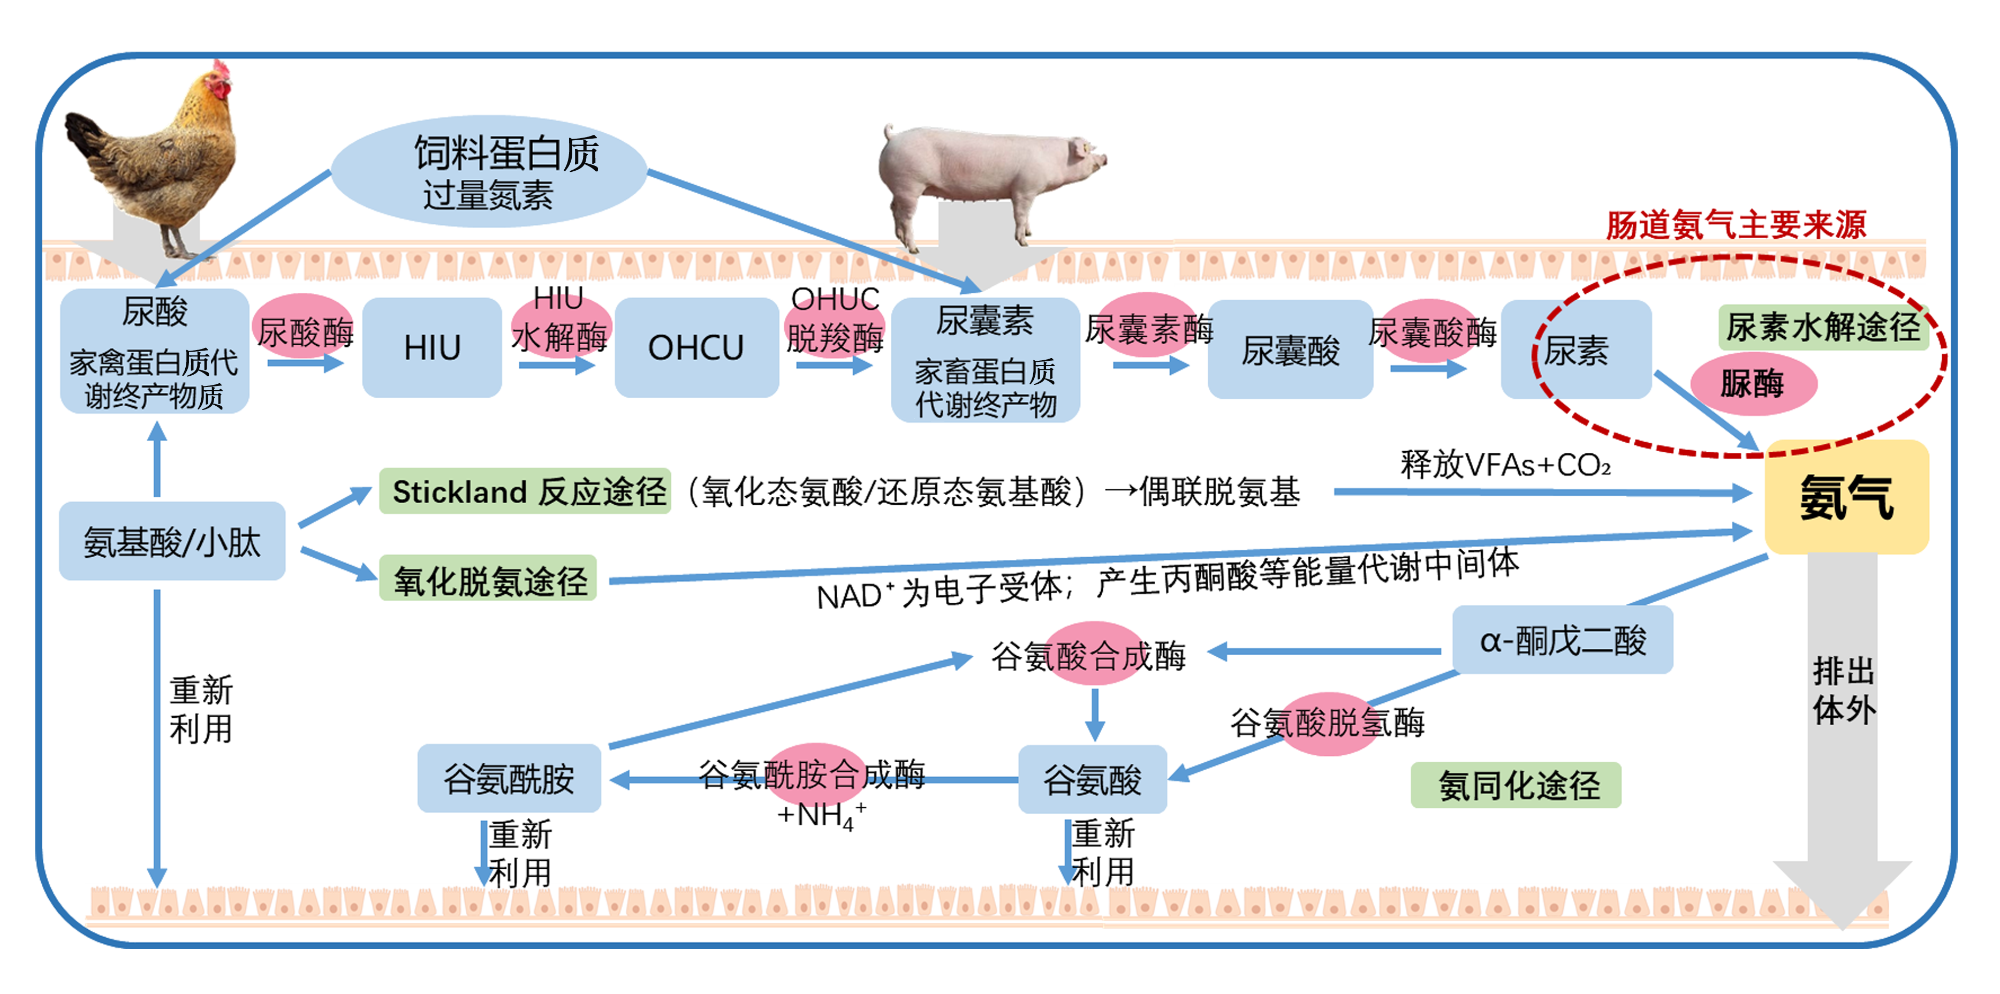
尿素分解是肠道NH3的直接来源,但鸟类和哺乳动物在氨排泄方面存在显著差异[9]。当饲粮中的未消化蛋白质或氨基酸过量时,大部分哺乳动物在肝脏中通过多级酶促反应将多余氮转化为尿素,由肾脏排泄;或经血液循环进入肠道,扩散至肠腔,被细菌脲酶分解生成NH3和二氧化碳(CO2),进而释放到养殖舍。与多数哺乳动物不同,家禽在进化过程中丢失了尿酸酶功能基因,无法通过尿酸酶合成尿素,导致只能以尿酸为嘌呤代谢的终产物[9-10]。此外,家禽肝脏中精氨酸酶活性极低,尿素循环无法完整运行,促使尿酸的体内积累加剧[10]。尿酸本身不含氨基,但可在后肠的微氧或厌氧条件下,被微生物[如巴斯德芽孢杆菌(Bacillus pasteurii)、奇异变形杆菌(Proteus mirabilis)、大肠杆菌(Escherichia coli)等]分泌的尿酸酶氧化为5-羟基异尿酸(5-hydroxyisourate,HIU),该物质并不稳定,极易被HIU水解酶或自发分解为2-氧基-4-羟基-4-羧基-5-脲基咪唑啉(2-oxo-4-hydroxy-4-carboxy-5-ureidoimidazoline,OHCU),并经OHCU脱羧酶、尿囊素酶、尿囊酸酶等催化得到可溶性较好的尿囊素、尿囊酸,继而裂解为乙醛酸、CO2和尿素,最终被微生物脲酶水解形成NH3[11-12]。值得注意的是,某些肠道共生菌[如蜡样芽孢杆菌(Bacillus cereus)、苛求芽孢杆菌(Bacillus fastidiosus)、铜绿假单胞菌(Pseudomonas aeruginosa)等]同时携带多个尿酸代谢途径中的酶,能将尿酸水解生成可溶性尿囊素,甚至直接分解成NH3[13-15]。另据报道,植物乳杆菌(Lactobacillus plantarum)YC基因组存在一个完整的尿酸降解基因簇,包含pucK(尿酸渗透酶)、hpxO(尿酸羟化酶)、hiuH(HIU水解酶)和allB(尿囊素酶)等基因,协同作用形成了一条从尿酸到尿囊素的完整代谢通路[16]。上述这些介导氨生成的微生物统称为尿素分解菌,自20世纪80年代起,已从动物胃肠道或环境中分离鉴定到大量的尿素分解菌,包括芽孢杆菌属(Bacillus)、变形杆菌属(Proteus)、肠杆菌属(Escherichia)、肠杆菌科(Enterobacteriaceae)、莫拉氏菌科(Moraxellaceae)、假单胞菌科(Pseudomonadaceae)、链球菌属(Streptococcus)、乳杆菌属(Lactobacillus)、拟杆菌属(Bacteroides)、瘤胃球菌属(Ruminococcus)、肠球菌属(Enterococcus)、奈瑟氏菌属(Neisseria)、嗜血杆菌属(Haemophilus)等[17-19]
大部分NH3生成源于尿素的水解作用,脲酶是该步骤的关键限速酶,催化尿素水解生成NH3与CO2。虽然尿素也存在自然分解,但脲酶催化的尿素分解速率比非酶促反应(自然分解)高约1014[20]。脲酶又名尿素胺基水解酶,是一种高活性的非氧化还原金属酶,由结构基因ureAureBureC及辅助基因ureDureEureFureH等编码形成,不仅可催化尿素及其衍生物,还可催化磷酸酰胺或酯类化合物[21-22]。脲酶pH适宜范围(4.5~10.5)较宽,但其活性受pH调控:当肠腔pH为7.5~8.0时,脲酶米氏常数(Km值)最低,NH3挥发量最大;当肠腔pH降低至6.0以下,脲酶构象改变,活性下降。因此,通过饲喂产酸益生菌,如Lactobacillus、丁酸梭菌(Clostridium butyricum)等,也可抑制NH3的生成和吸收,降低血氨浓度。

1.2 氨基酸的脱氨基作用

肠道中的有机氮也可通过斯提柯兰氏反应或氧化脱氨途径被微生物直接利用,经脱氨基作用产生NH3。在斯提柯兰氏反应中,未被小肠消化吸收的饲料蛋白质和游离氨基酸可作为某些厌氧微生物的发酵底物。通常,还原态氨基酸(丙氨酸、亮氨酸、异亮氨酸、缬氨酸等)充当电子供体,氧化态氨基酸(甘氨酸、脯氨酸、精氨酸、色氨酸等)充当电子受体,两者偶联发生氧化还原反应,最终脱氨基生成NH3、短链脂肪酸和CO2,并释放能量[23],此反应过程涉及谷氨酸脱氢酶(glutamate dehydrogenase,GDH)、支链氨基酸转氨酶(branched-chain amino acid transaminase,BCAT)等多种酶参与。反刍动物中,消化链球菌属(Peptostreptococcus)[24]、梭菌属(Clostridium)[25]、拟杆菌科(Bacteroidaceae)[24]等是参与斯提柯兰氏反应的优势菌群,也是瘤胃NH3浓度升高的主要原因之一。此外,某些好氧或兼性厌氧菌,如Escherichia coli,也通过氧化脱氨途径产生NH3,其在肠道以烟酰胺腺嘌呤二核苷酸(NAD+)为电子受体,将L-丝氨酸脱氨为丙酮酸等能量代谢中间体,产生NH3,获得ATP[26]。上述2类反应均可把氨基酸中的氮转化为游离氨,以NH3形式随粪便排出体外,或被肠道重吸收进入“肠-肝”循环。因此,后肠微生物对残留蛋白质的脱氨作用是畜禽NH3生成的重要内源性环节,但该过程可能会导致肠道局部的高氨环境,损伤屏障功能,同时增加肝脏的解毒负担,影响机体健康。研究表明,使用发酵原料、益生菌、益生素等微生态制剂可以调节肠道微生物、改善肠道健康,进而减少NH3生成。据报道,饲粮添加枯草芽孢杆菌(Bacillus subtilis)JA-14后,肉鸡养殖过程中NH3释放量下降24.88%,氨氮含量下降63.80%,pH下降6.31%[27]

1.3 氨同化过程

氨同化过程是指生物体(如微生物、植物、动物细胞)将环境中或代谢产生的NH3或铵离子( ${\mathrm{NH}}_{4}^{+}$)转化为体内可利用的含氮有机化合物(如氨基酸、酰胺、核苷酸等)的过程。研究表明,反刍动物瘤胃微生物可直接利用NH3合成菌体蛋白,主要通过氨同化路径实现:以NH3和α-酮戊二酸为底物在谷氨酸脱氢酶(glutamate dehydrogenase,GDH)参与下合成谷氨酸;同时,谷氨酸和NH3在谷氨酰胺合成酶(glutamine synthetase,GS)的作用下发生酰胺化反应生成谷氨酰胺(glutamine,Gln),而α-酮戊二酸在谷氨酸合成酶(glutamate synthase,GOGAT)的作用下也可生成谷氨酸[28-29]。此外,也有研究发现,天冬氨酸合成酶(asparagine synthetase,AS)途径可能是瘤胃细菌同化氨的另一条重要途径[30]。目前,单胃动物肠道细菌氮素再利用的研究非常有限,但在反刍动物瘤胃、淡水鲤鱼后肠等环境中已证实存在相关作用,发现琥珀酸弧菌属(Succinivibrio)、普雷沃菌属(Prevotella)、Streptococcus、巨球型菌属(Megasphaera)、红螺菌科(Rhodospirillaceae)、草酸杆菌科(Oxalobacteraceae)、硝化螺菌科(Nitrocellaceae)等菌群可基于氨同化、氨氧化、反硝化等作用发挥重利用氨的功能[31-32]。临床研究发现,人体肠道菌群也存在一定的氨氮利用能力,克雷伯氏菌属(Klebsiella)和梭菌目(Clostridiales)或发挥核心作用[33]。因此,通过菌群结构调控,把NH3转化为可再利用的氨基酸,为宿主-菌群提供再循环氮源,这种机制或成为肠道NH3控制的新思路之一。反刍动物研究中已证实了这一思路的可行性,通过选择培养基筛选获得的柔韧乳酸杆菌(Ligilactobacillus agilis)W70氨氮利用率达32.09%,可极显著增加微生物蛋白产量,同时发现GDH和GS活性提高,基因组研究表明该菌株具有较高的氨氮利用能力[34]。肠道NH3的主要生成及代谢途径见图1
图1 肠道NH3的主要生成及代谢途径

HIU:5-羟基异尿酸 5-hydroxyisourate;OHCU:2-氧基-4-羟基-4-羧基-5-脲基咪唑啉 2-oxo-4-hydroxy-4-carboxy-5-ureidoimidazoline;VFAs:挥发性脂肪酸 volatile fatty acids;Stickland:斯提柯兰氏;NAD+:烟酰胺腺嘌呤二核甘酸 nicotinamide adenine dinucleotide; ${\mathrm{NH}}_{4}^{+}$:铵离子 ammonium ion。

Fig.1 Main production and metabolic pathways of intestinal NH3

2 H2S

H2S属于生物体内的气体信号分子,广泛存在于各组织器官,在肠道中浓度最高[35]。肠道H2S主要源于肠道微生物代谢产生及细胞自身合成,包括微生物硫酸盐还原、含硫氨基酸发酵、肠上皮细胞内源合成、外源植物性硫化物代谢等途径。

2.1 硫酸盐还原途径

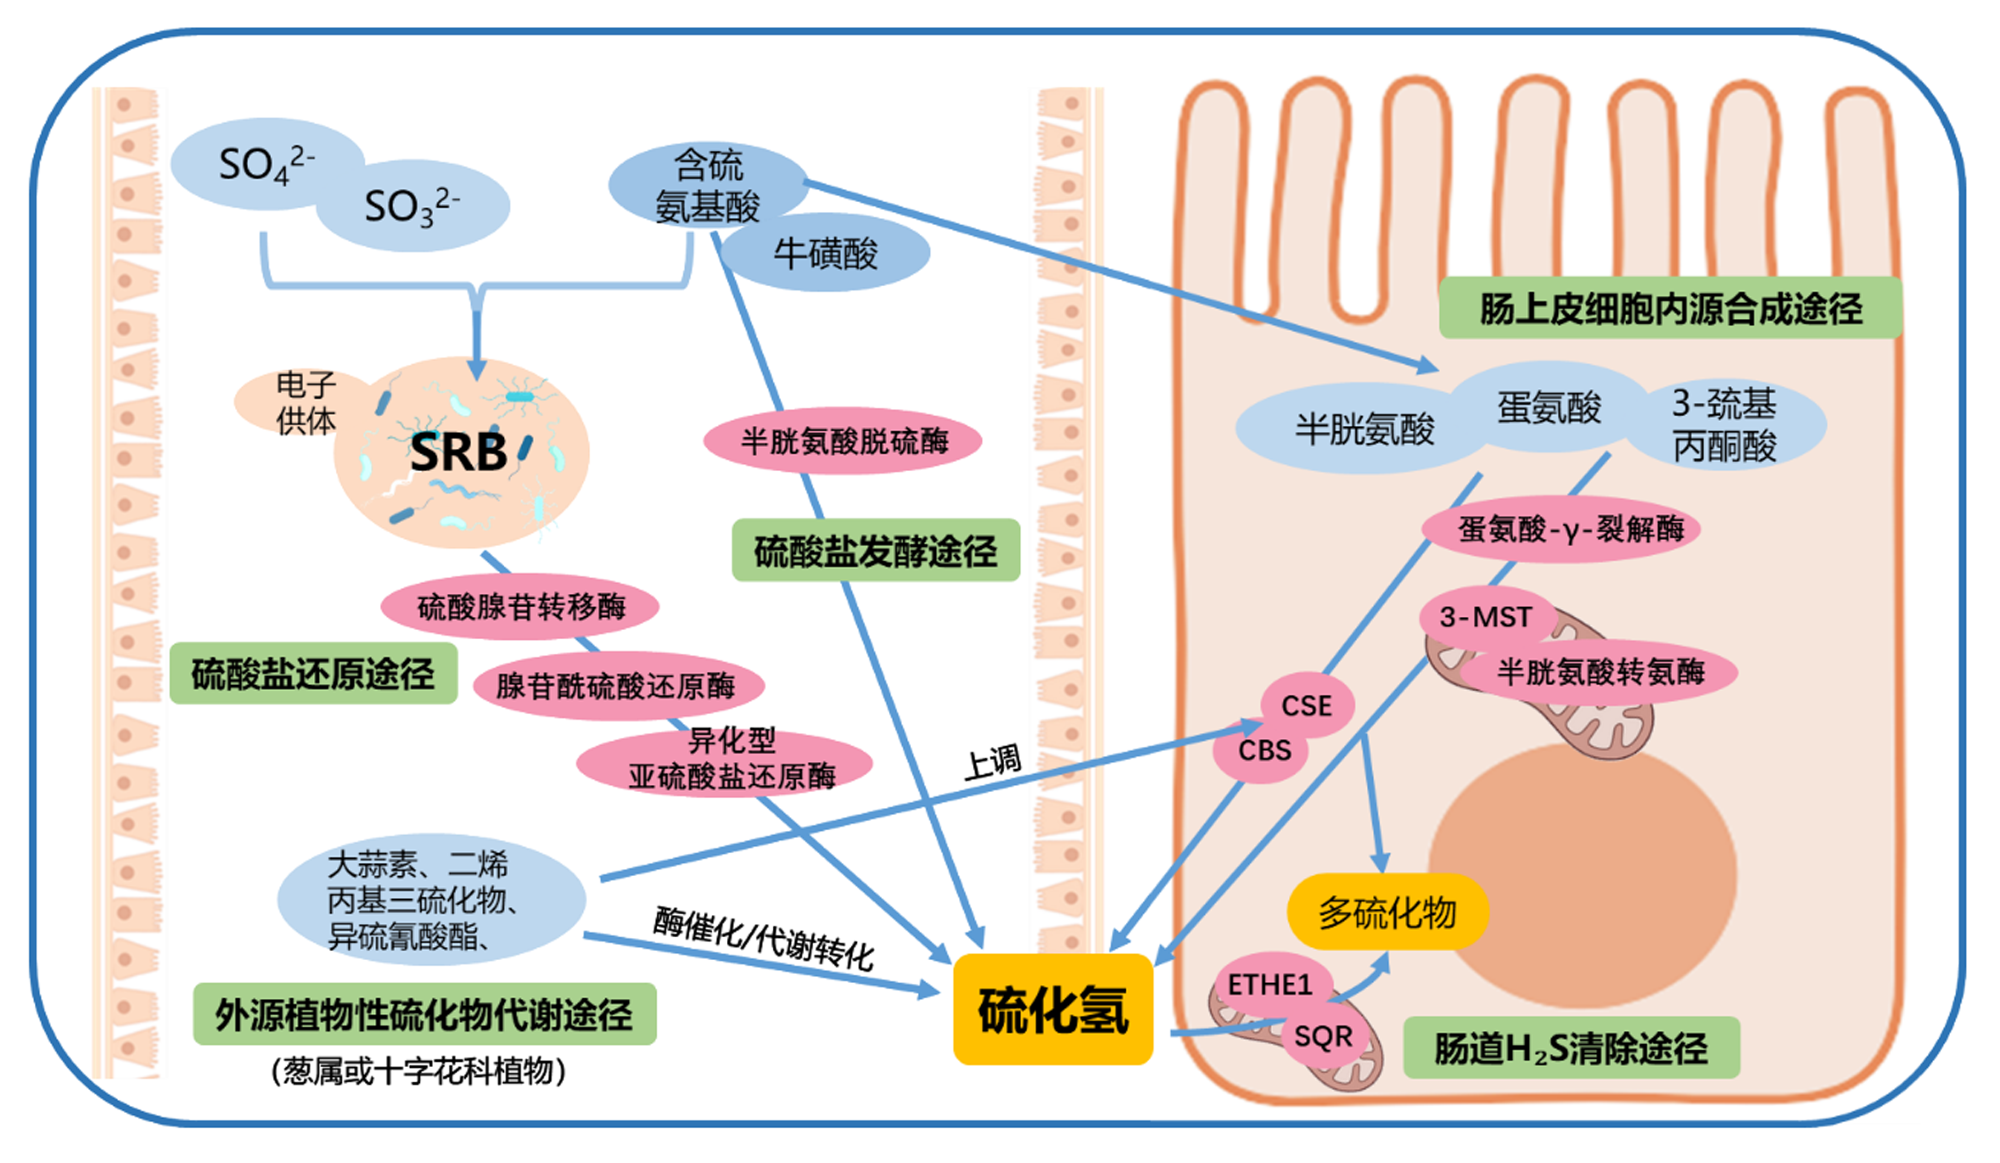
在肠腔中,肠道黏液或肠道内容物中的含硫氨基酸、硫酸根离子( ${\mathrm{SO}}_{4}^{2-}$)或基团、亚硫酸根离子( ${\mathrm{SO}}_{3}^{2-}$)、牛磺酸结合型胆汁酸等,被硫酸盐还原菌(sulfate-reducing bacteria,SRB)及其共生微生物代谢生成终产物H2S,进入肠黏膜或经肠腔排出体外[35-36]。SRB在哺乳动物结肠中丰度较高,是一类能够利用含硫氨基酸和硫酸盐的专性厌氧菌,主要分布于δ-变形菌纲(Deltaproteobacteria),如脱硫弧菌属(Desulfovibrio)、脱硫杆菌属(Desulfobacter)、脱硫肠状菌属(Desulfobulbus)、脱硫球菌属(Desulfococcus)、脱硫线菌属(Desulfonema)、高温脱硫弧菌属(Thermodesulfovibrio)等,以及古菌门(Euryarchaeota)的古生球菌属(Archaeoglobus)[37-38]。在厌氧条件下,SRB利用肠道中的含硫化合物作为电子受体,以氢气、乳酸、乙酸盐、丁酸盐等为电子供体,通过异化型硫酸盐还原反应生成H2S[39]。此外,一些SRB菌株还能基于硫酸盐还原途径生成甲烷、乙酸盐等[39-40]。SRB生成H2S的过程由一系列酶催化,包括硫酸腺苷转移酶、腺苷酰硫酸还原酶和异化型亚硫酸盐还原酶(dsrAB),其中dsrAB基因常被用作SRB的分子标志物。SRB的活性受到底物浓度、肠道pH、氧化还原电位等多种因素影响[39]。研究表明,Lactobacillus、丁酸梭菌等通过竞争电子供体(乳酸、丙酸等)抑制SRB生长,其代谢产物乳酸、丁酸等也可促进肠上皮氧耗,维持微厌氧环境,降低SRB硫酸盐还原效率,抑制H2S生成。

2.2 含硫氨基酸发酵途径

肠道中,梭杆菌属(Fusobacterium)、肠埃希氏菌属(Escherichia)、KlebsiellaClostridium、沙门氏菌属(Salmonella)、Streptococcus等菌属也可通过半胱氨酸脱硫酶催化含硫氨基酸,分解生成H2S、丙酮酸和氨[37,41];尤其在盲肠和升结肠区域,半胱氨酸脱硫酶活性很强,其生成的H2S浓度甚至高于SRB。与SRB不同,含硫氨基酸发酵途径不依赖无机硫酸盐,而是直接以蛋白质或小肽为底物,因此其活性受饲料蛋白质水平影响。因此,高蛋白质饮食可显著增加肠道中游离氨基酸浓度,并基于该途径促进H2S生成[42]。另外,沃氏嗜胆菌(Wadsworthia bilophila)还可通过降解牛磺酸,使其被还原为H2S,参与半胱氨酸和甲硫氨酸的生物合成[43]

2.3 肠上皮细胞内源合成途径

肠道上皮细胞主要通过胱硫醚-γ-裂解酶(cystathionine-γ-lyase,CSE)和胱硫醚-β-合成酶(cystathionine-β-synthase,CBS),以半胱氨酸、同型半胱氨酸或3-巯基丙酮酸为底物,催化生成H2S。蛋氨酸和半胱氨酸被3-巯基丙酮酸硫转移酶(3-mercaptopyruvate sulfotransferase,3-MST)和蛋氨酸-γ-裂解酶催化后裂解,也是H2S的部分来源[42]。其中,CBS和CSE主要定位于细胞质,依赖磷酸吡哆醛为辅酶;而3-MST则主要在线粒体中,与半胱氨酸转氨酶发生偶联反应,协同生成H2S[44-45]。有趣的是,3-MST在内源性多硫化物的产生中也很重要,包括二硫化氢(H2S2)、三硫化氢(H2S3)、半胱氨酸过硫化物和谷胱甘肽过硫化物,这些物质与抗肿瘤、抗氧化功能、炎症调节等密切相关,参与驱动靶蛋白半胱氨酸残基的全硫化[46-47]

2.4 外源植物性硫化物代谢途径

此外,某些植物性硫化物也可成为肠道外源性H2S供体,尤其在采食摄入葱属或十字花科植物后,肠道H2S释放显著升高[36]。葱属植物如大蒜、洋葱富含S-烯丙基-L-半胱氨酸亚砜,在组织损伤或酶催化下被分解生成大蒜素、二烯丙基三硫化物等有机多硫化物。这些化合物可与细胞内谷胱甘肽等巯基化合物反应,释放H2S,或直接上调CBS/CSE表达,间接促进H2S生成[42]。类似地,十字花科植物如西兰花、卷心菜中的异硫氰酸酯也被证实可在细胞或肝组织匀浆中释放H2S,但其机制更复杂,涉及代谢转化而非直接释放[42]。有趣的是,某些植物性硫化物虽会释放产生H2S,但其可通过调节肠道菌群结构,间接抑制SRB生长,降低其他途径的H2S生成。肠道H2S的主要生成及代谢途径见图2
图2 肠道H2S的主要生成及代谢途径

${\mathrm{SO}}_{4}^{2-}$:硫酸根离子 sulfate ion; ${\mathrm{SO}}_{3}^{2-}$:亚硫酸根离子 sulfite ion;SRB:硫酸盐还原菌 sulfate-reducing bacteria;CSE:胱硫醚-γ-裂解酶 cystathionine-γ-lyase;CBS:胱硫醚-β-合成酶 cystathionine-β-synthase;3-MST:3-巯基丙酮酸硫转移酶 3-mercaptopyruvate sulfotransferase;ETHE1:乙基丙二酸脑病蛋白1 ethylmalonic encephalopathy protein 1;SQR:硫化物醌氧化还原酶 sulfide-quinone oxidoreductase。

Fig.2 Main production and metabolic pathways of intestinal H2S

2.5 肠道H2S的清除机制与稳态调节

H2S具有完善的“自调节”机制,其浓度在机体内动态平衡。H2S在体内先经硫化物:醌氧化还原酶(sulfide:quinone oxidoreductase,SQOR)氧化生成硫烷硫,并与谷胱甘肽(glutathione,GSH)结合形成谷胱甘肽过硫化物(glutathione persulfate,GSSH);而乙基丙二酸脑病蛋白1(ethylmalonic encephalopathy protein 1,ETHE1)可特异性催化GSSH氧化分解为GSH和 ${\mathrm{SO}}_{3}^{2-}$,并进一步被氧化为硫酸盐后排出体外,完成H2S清除[48-49]。SQOR是肠道H2S清除的限速酶,负责将H2S转化为过硫化物。此外,H2S可与高铁血红蛋白结合形成硫化血红蛋白,或通过硫巯化修饰调控蛋白质功能,从而被“功能性消耗”[50]。因此,H2S的生成与清除关系到肠道代谢稳态,一旦失衡,不仅导致H2S过量排放,更易导致炎症、癌变等机体病理变化。

3 粪臭素和吲哚

粪臭素和吲哚属低阈值、粪臭味强烈的气体。吲哚在极低浓度下呈现茉莉香,但高浓度即转为强烈粪臭。粪臭素的嗅觉阈值浓度在空气中仅为0.03 μg/m3,畜牧场或粪污处理设施附近的实际环境浓度常超标数千或数万倍,具有传播快、危害大、效力强且持久等特征。

3.1 色氨酸与微生物介导的吲哚生成

色氨酸是唯一具有吲哚结构的必需氨基酸,不能自身合成,主要来源于饲粮。动物进食后,大部分色氨酸通过宿主内源性犬尿氨酸途径(约95%)和5-羟色胺途径(1%~2%)进行代谢;其余小部分则通过微生物介导的色氨酸途径转化为吲哚、粪臭素、色胺、吲哚乙酸(indole-3-acetic acid,IAA)、吲哚丙酸(indole-3-propionic acid,IPA)、吲哚丙酮酸(indole-3-pyruvate,IPYA)等物质,这是粪臭素与吲哚类恶臭物质生化合成的唯一源头,也是近年来“肠-粪”过程臭味调控技术的核心研究方向之一[51]
吲哚途径是色氨酸微生物代谢的经典途径与主要流向。该过程中,色氨酸被色氨酸酶(tryptophanase,TNA)催化脱氨,生成吲哚、丙酮酸和NH3。TNA为同源四聚体,最适pH为6.5~7.5,这与畜禽后肠的生理环境高度匹配。宏基因组研究发现,肠道中携带TNA基因的细菌种属众多,包括肠杆菌属(Enterubacterium)、ClostridiumBacteroidesDesulfovibrio[52]。目前,认为底物浓度是调控该途径的第一限速因素。有研究认为,吲哚的最终产量直接取决于外源色氨酸供给量;当提供一定范围内的色氨酸浓度时,Escherichia coli可将其转化为等量吲哚,最高可达近5 mmol/L[52]。因此,维持饲粮氨基酸平衡,避免色氨酸过量供给,可能是减少肠道吲哚生成的最有效手段之一。

3.2 粪臭素的肠道生成途径

粪臭素主要在反刍动物瘤胃及单胃动物盲肠、结肠中形成,当色氨酸摄入量超过宿主需求时,多余色氨酸进入后肠,被芳香族氨基酸转氨酶转化为IPYA,再经吲哚丙酮酸脱羧酶(indole-3-pyruvate decarboxylase,IPDC)形成吲哚乙醛(indole-3-acetaldehyde,IAAId);或经色氨酸脱羧酶直接转化为色胺,形成IAAId;随后,被吲哚乙醛脱氢酶(indole-3-acetaldehyde dehydrogenase,IaaDH)氧化为IAA,并在吲哚乙酸脱羧酶(indoleacetate decarboxylase,IaaD)的催化下最终形成粪臭素[53-54]。除直接脱氨外,色氨酸还可被色氨酸单氧酶(tryptophan 2-monooxygenase,TMO)作用,生成吲哚乙酰胺(indoleacetamide,IAM),再被IAM水解酶(indoleacetamidehydrolase,IaaH)氧化为IAA,间接形成粪臭素[53,55-56]。其中,IaaD属于甘氨酰自由基酶家族,仅在专性厌氧条件下保持催化活性,不同色氨酸代谢生成的IAA最终必须依赖IaaD脱羧才能生成粪臭素,而肠道中目前只发现少数特定菌群携带IaaD基因,如Lactobacillus、生孢梭菌(Clostridium sporogenes)、埃氏巨球形菌(Macroglobacter escherichia)、嗜氨基梭菌(Clostridium aminotropic)、麦氏放线菌(Actinomyces meyeri)等具有将IAA转化为粪臭素的能力。
值得关注的是,微生物利用色氨酸的代谢途径之间存在显著的底物竞争和交互调节。比如,高浓度吲哚可反馈抑制TnaA表达,促使更多的色氨酸流入IAA途径,增加粪臭素生成[57];反之,外源添加IAA则通过产物抑制降低IPDC活性,促进色氨酸向色胺的转化[58]。因此,这种利用色氨酸底物竞争机制控制臭味物质产生或为后续除臭技术的开发提供思路。据报道,某些产丁酸菌通过“吲哚-丙酸”途径竞争色氨酸,通过饲喂产丁酸菌或增加产丁酸菌/IPA途径的碳源(如抗性淀粉),生成IPA,可减少肠道粪臭素生成[55]。另报道,饲粮联合添加嗜酸性乳杆菌(Lactobacillus acidophilus)和Clostridium butyricum可使IPA/IAA摩尔比值由0.41升至0.93,粪臭素生成量下降31%,并伴随紧密连接蛋白-1和黏蛋白-2表达上调,肠道屏障功能改善,兼顾减排与宿主健康[59]

3.3 粪臭素的体内降解机制

大部分肠道生成的粪臭素随粪便排出体外,也有部分被肠上皮细胞吸收后,经门静脉到达肝脏,在肝脏和肾脏中代谢降解。在肝脏中,粪臭素首先被细胞色素P450家族(cytochrome P450,CYP450)氧化降解为3-羟基-3-甲基吲哚、3-甲基-羟吲哚、3-羟基-3-甲基-羟吲哚、3-吲哚甲醇、6-羟基-3-甲基吲哚等产物,并通过共轭反应,被硫酸转移酶1A1和尿苷二磷酸-葡萄糖醛酸转移酶催化,发生硫化或葡萄苷酸化,经尿液排出体外[60]。肾脏代谢粪臭素的能力远低于肝脏,主要通过共轭反应将粪臭素降解为3-羟基-3-甲基-羟吲哚、6-磺基粪臭素等中间产物,属不完全降解,仍具有潜在的环境危害。肠道粪臭素和吲哚的主要生成及代谢途径见图3
图3 肠道粪臭素和吲哚的主要生成及代谢途径

TNA:色氨酸酶 tryptophanase;ArAT:芳香族氨基酸转氨酶 aromatic amino acid transaminaseelisa;IPDC:吲哚丙酮酸脱羧酶 indole-3-pyruvate decarboxylase;IaaDH:吲哚乙醛脱氢酶 indole-3-acetaldehyde dehydrogenase;IaaD:吲哚乙酸脱羧酶 indoleacetate decarboxylase;IaaH:吲哚乙酰胺水解酶 indoleacetamide hydrolase;TrpD:色氨酸脱羧酶 tryptophan decarboxylase;TMO:色氨酸单氧酶 tryptophan 2-monooxygenase。

Fig.3 Main production and metabolic pathways of intestinal skatole and indole

4 其他臭味物质的肠道产生机制

VFAs是肠道臭味的重要来源,主要由后肠(盲肠、结肠)厌氧微生物发酵未被消化的有机物产生。碳水化合物在无氧条件下经微生物发酵不完全氧化成略带臭味和酸味挥发性有机酸,主要由乙酸、丙酸和丁酸等短链脂肪酸组成,且有少量戊酸、己酸和庚酸,这些有机酸一部分经吸收代谢供量,一部分经发酵产生CO2和CH4,还有一部分挥发至空气中,引起臭味。含氮化合物在Bacteroides、真杆菌属(Eubacterium)、ClostridiumPeptostreptococcus等微生物作用下也发生脱氨,但与碳水化合物相比,微生物发酵含氮化合物产生更多的长链或支链VFAs(臭气阈值更低)[61]。支链氨基酸(亮氨酸、异亮氨酸、缬氨酸)在BacteroidesClostridiumPeptostreptococcus等蛋白质降解菌作用下脱氨基、碳链裂解,生成相应的支链VFAs(异戊酸、2-甲基丁酸和异丁酸),具有酸腐气味[62]。此外,未消化的脂肪在肠道中也可被特定微生物分解为甘油和脂肪酸,进一步氧化生成丁酸、己酸、辛酸等中链VFAs,具有明显的酸败、腐臭气味。值得注意的是,部分VFAs可被宿主或肠道菌群吸收,在一定程度上有益于肠道健康,但当其在粪便中残留或体外挥发时,也会导致浓烈的臭味,且支链和中链VFAs较直链VFAs臭味更浓烈。
同时,酪氨酸和苯丙氨酸在肠道ClostridiumEscherichia等菌群作用下,经脱羧、脱氢生成对甲酚、苯酚、4-乙基酚、苯乙酸等,嗅阈值极低,如对甲酚具有强烈的焦糊、药味与粪臭味。含硫氨基酸(蛋氨酸、胱氨酸)在肠道厌氧菌作用下水解、脱甲基、脱硫,生成甲硫醇、二甲硫、乙硫醇等;而SRB也可利用 ${\mathrm{SO}}_{4}^{2-}$或含硫有机物进行硫酸盐还原,产生H2S、羰基硫(COS)、二硫化碳(CS2)及硫醇类[63]。碱性氨基酸赖氨酸和精氨酸在肠杆菌科(Enterobacteriaceae)和Clostridium菌群分泌的脱羧酶作用下,分别生成尸胺和腐胺;胆碱则经“胆碱脱氢酶-三甲胺裂解酶”两步反应转化为三甲胺,增加了粪便的鱼腥、腐肉、氨化气味,是水产养殖和猪舍腥臭气味的重要来源之一[64]。此外,脂质氧化与芳香族侧链的次级代谢可产生少量但嗅阈值极低的1-辛烯-3-酮、2,3-丁二酮、苯甲醛等,协同增强整体臭气效应。

5 肠道源头臭气减排技术

肠道源头臭气减排技术的核心是通过饲粮营养精准化或功能性物质添加调控肠道微生态代谢,减少产臭前体物质的生成,是养殖臭气控制的重要研究方向。

5.1 低蛋白质饲粮与氨基酸平衡

通过降饲粮粗蛋白质水平、补充限制性氨基酸,精准满足营养需求,提高氮周转效率,减少未消化蛋白质进入后肠分解产臭,实现NH3显著减排[65-67]。据报道,饲粮粗蛋白质水平降低1%,蛋鸡生产性能不变,但舍内NH3浓度显著降低[65]。另据报道,后备母猪饲粮粗蛋白质水平每降低1%,饲粮氮和硫的保留分别增加7.0%和2.4%,NH3和臭气排放量分别减少8.9%和4.2%[67]。同时,控制含硫氨基酸及含硫化合物用量,可抑制硫酸盐还原或发酵途径,减少H2S排放。

5.2 酶制剂

利用植酸酶、蛋白酶、淀粉酶等饲料酶制剂,提升营养物质消化率,减少未消化有机物进入后肠道发酵分解,可间接实现臭气减排。研究表明,肉鸡饲粮添加100~250 g/t复合酶制剂可提高饲料转化率和欧洲效益指数,降低排泄物NH3和H2S排放量,优化肠道代谢[68]。另据报道,生长猪饲粮添加蜘蛛酶、木聚糖酶和甘露聚糖酶,可降低粪便NH3、H2S、三甲胺和对甲酚排放量,粪便VFAs和吲哚含量分别降低约60%和73%[69]

5.3 微生物调控技术

通过添加乳酸菌、芽孢杆菌、酵母菌等益生菌或其代谢产物,可优化肠道菌群结构,促进产酸菌增殖,抑制产臭菌繁殖;同时,借助微生物分泌消化酶、有机酸等功能性物质,具有减少臭气排放与维持肠道健康双重价值。据报道,饲粮添加Bacillus subtilis后生元后,肉鸡生长性能提高,粪便氨排放和Salmonella丰度降低[70];而饲粮添加屎肠球菌(Enterococcus faecalis)可提高蛋鸡干物质、氮和能量消化率,减少排泄物氨排放[71]。此外,某些新型饲料添加剂也可通过调节肠道菌群,特别是产臭相关菌属,降低臭味物质排放。比如,蛋鸡饲粮添加复合微藻粉(小球藻、螺旋藻、雨生红球藻)可抑制产氨菌增殖,增加产酸菌丰度;24 h时NH3排放量降幅达40.47%~77.84%[72]。因此,通过肠道菌群调控技术改善养殖臭气排放是未来研究的重要方向之一。

5.4 有机酸及盐类

通过添加甲酸、柠檬酸、丁酸钠等有机酸或其盐类,可降低饲料和肠道pH,抑制产臭菌增殖,减少肠道NH3形成与挥发,同时可降低畜禽腹泻率、改善生长性能。研究发现,在肉鸡饲粮中混合添加有机酸和中链脂肪酸,可改善平均日增重、饲料转化率和干物质消化率;并使肠道乳酸菌丰度升高,NH3排放降低[73]。丁酸钠是一种具有抗菌抑炎和肠黏膜修复的功能性添加剂,属组蛋白去乙酰化酶抑制剂,其在养殖臭气控制中也具有较好效果。体外试验表明,添加丁酸钠可使育肥猪猪粪中NH3、H2S和总产气量分别减少17.96%、12.26%和30.30%[74]

5.5 植物提取物

利用丝兰提取物、茶多酚、桉树油、牛至油等中的活性成分,可抑制脲酶等产臭限速酶活性,抑制产臭菌增殖,减少臭气产生。丝兰提取物是一种高活性、天然脲酶抑制剂,在妊娠晚期和哺乳期母猪饲粮中添加0.06%丝兰提取物可有效降低粪便总氮、尿素氮和氨氮损失[75]。植物精油类物质,如肉桂醛、百里酚、香芹酚等,也被证实可使生长猪粪便总氮、NH3、吲哚和粪臭素排放减少[76]

6 小结与展望

综上所述,动物后肠厌氧发酵是NH3、H2S、粪臭素等臭气物质形成的源头场所,其生成量与菌群结构、底物供给及肠道局部环境参数密切相关。当前,除臭减排研究主要包括以下方向:1)臭味物质肠道生成途径、微生物代谢活动及其限速酶(或靶标基因)的减排调控机制;2)臭味物质体内清除机制与稳态调节过程,及其对机体健康的影响;3)臭味物质的减排相关技术开发与应用效果评估。尽管上述方面已取得很多研究进展,但仍需进一步解决某些问题。比如,微生物参与的臭味物质的生成途径间存在交叉协同,部分肠道细菌可同时介导多种臭味物质产生,但菌群代谢活动与“臭味谱”形成的互作网络、宿主-菌群共代谢模型等尚未构建。此外,产臭微生物代谢显著受底物类型调控,与饲粮营养组成、后肠可发酵性密切相关,但当前除臭技术研究系统性不足,未来可基于“饲粮营养成分-核心菌群-限速酶活性-肠道内环境”建立系统性协同减臭技术体系。未来,随着基因编辑、噬菌体调控、工程菌改造等靶向干预技术发展,产臭菌靶向抑制、功能性固氮菌开发日趋成熟,或成为养殖臭气控制的新方向。总之,在农业科技创新发展和低碳减排政策的推动下,“源头减排-过程控制-末端循环”的全流程、体系化的除臭减排技术方案将不断优化形成,助力绿色畜牧产业的发展。
[1]
高勤学. 沿海规模猪场臭气的收集与处理[J]. 猪业科学, 2025, 42(7):25-26.

GAO Q X. Collection and treatment of odors from large-scale pig farms along the coast[J]. Swine Industry Science, 2025, 42(7):25-26. (in Chinese)

[2]
林衍之, 邓盾, 马现永, 等. 畜禽粪臭素的产生、代谢及其体外降解研究进展[J]. 中国畜牧兽医, 2025, 52(6):2650-2661.

DOI

LIN Y Z, DENG D, MA X Y, et al. Advances in production and in vitro degradation of skatole in livestock and poultry[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(6):2650-2661. (in Chinese)

[3]
康宇. 一种猪用臭气减排益生菌剂的构建及应用效果评价[D].硕士学位论文. 成都: 成都大学, 2023.

KANG Y. Construction and application evaluation of a probiotic agent for deodorant emission reduction for pig[D].Master’s Thesis. Chengdu: Chengdu University, 2023. (in Chinese)

[4]
叶小梅, 章欣悦, 刘洋, 等. 畜禽养殖场臭气治理研究进展[J]. 饲料工业, 2025, 46(7):174-184.

YE X M, ZHANG X Y, LIU Y, et al. Research progress on odor control in livestock and poultry farms[J]. Feed Industry, 2025, 46(7):174-184. (in Chinese)

[5]
XIAO S S, FENG K X, LI S K, et al. Influence of Astragalus extract on gut microbiome regulation and ammonia emission mitigation in laying hens[J]. Animals, 2025, 15(5):620.

DOI

[6]
孙耀威. 丝兰和益生菌对育肥猪生长性能、氮代谢和臭气排放的影响[D].硕士学位论文. 杭州: 浙江农林大学, 2024.

SUN Y W. Effects of yucca and probiotics on growth performance,nitrogen metabolism and intestinal health of fattening pigs[D].Master’s Thesis. Hangzhou: Zhejiang A&F University, 2024. (in Chinese)

[7]
李奇峰, 田丰, 丁露雨, 等. 家禽粪便管理过程中氨气减排技术研究进展[J]. 家畜生态学报, 2020, 41(9):1-6.

LI Q F, TIAN F, DING L Y, et al. The mitigation technologies of ammonia in poultry manure management[J]. Acta Ecologiae Animalis Domastici, 2020, 41(9):1-6. (in Chinese)

[8]
NI J Q. Mechanistic models of ammonia release from liquid manure:a review[J]. Journal of Agricultural Engineering Research, 1999, 72(1):1-17.

DOI

[9]
WANG L L, LI J L, WANG B, et al. Progress in modeling avian hyperuricemia and gout (review)[J]. Biomedical Reports, 2024, 22(1):1.

[10]
FU Y, CHEN Y S, XIA D Y, et al. Lactobacillus rhamnosus GG ameliorates hyperuricemia in a novel model[J]. NPJ Biofilms and Microbiomes, 2024, 10(1):25.

DOI

[11]
EVSTAFEVA D, ILIEVSKI F, BAO Y Y, et al. Inhibition of urease-mediated ammonia production by 2-octynohydroxamic acid in hepatic encephalopathy[J]. Nature Communications, 2024, 15(1):2226.

DOI PMID

[12]
TABOR W, KATSOGIANNOU A, KARTA D, et al. Exploration of thiourea-based scaffolds for the construction of bacterial ureases inhibitors[J]. ACS Omega, 2023, 8(31):28783-28796.

DOI PMID

[13]
TORK S E, ALY M M, AL-FATTANI S Q. A new uricase from Bacillus cereus SKⅢ:characterization,gene identification and genetic improvement[J]. International Journal of Biological Macromolecules, 2020, 165(Pt B):3135-3144.

DOI

[14]
SHAABAN M I, ABDELMEGEED E, ALI Y M. Cloning,expression,and purification of recombinant uricase enzyme from Pseudomonas aeruginosa Ps43 using Escherichia coli[J]. Journal of Microbiology and Biotechnology, 2015, 25(6):887-892.

DOI

[15]
ZHAO Y S, ZHAO L N, YANG G Q, et al. Characterization of a uricase from Bacillus fastidious A.T.C.C. 26904 and its application to serum uric acid assay by a patented kinetic uricase method[J]. Biotechnology and Applied Biochemistry, 2006, 45(Pt 2):75-80.

DOI

[16]
ZHAO Y Q, YANG S, HE M, et al. Phenotypic characterization and genomic mining of uric acid catabolism genes in Lactiplantibacillus plantarum YC[J]. Foods, 2025, 14(24):4343.

DOI

[17]
HAFEZ R M, ABDEL-RAHMAN T M, NAGUIB R M. Uric acid in plants and microorganisms:Biological applications and genetics—a review[J]. Journal of Advanced Research, 2017, 8(5):475-486.

DOI

[18]
WONG J, PICENO Y M, DESANTIS T Z, et al. Expansion of urease- and uricase-containing,indole- and p-cresol-forming and contraction of short-chain fatty acid-producing intestinal microbiota in ESRD[J]. American Journal of Nephrology, 2014, 39(3):230-237.

DOI

[19]
徐诣轩, 李志鹏, 申军士, 等. 微生物介导反刍动物瘤胃氨生成及其对瘤胃功能的影响[J]. 微生物学报, 2019, 59(5):781-788.

XU Y X, LI Z P, SHEN J S, et al. Microbe-mediated ruminal ammonia production in ruminants and its impacts on rumen function[J]. Acta Microbiologica Sinica, 2019, 59(5):781-788. (in Chinese)

[20]
HAUSINGER R P. Metabolic versatility of prokaryotes for urea decomposition[J]. Journal of Bacteriology, 2004, 186(9):2520-2522.

DOI PMID

[21]
ALMARMOURI C, EL-GAMAL M I, HAIDER M, et al. Anti-urease therapy:a targeted approach to mitigating antibiotic resistance in Helicobacter pylori while preserving the gut microflora[J]. Gut Pathogens, 2025, 17(1):37.

DOI

[22]
HE Y, ZHANG X Y, LI M, et al. Coptisine:a natural plant inhibitor of ruminal bacterial urease screened by molecular docking[J]. Science of the Total Environment, 2022, 808:151946.

DOI

[23]
HINO T, RUSSELL J B. Effect of reducing-equivalent disposal and NADH/NAD on deamination of amino acids by intact rumen microorganisms and their cell extracts[J]. Applied and Environmental Microbiology, 1985, 50(6):1368-1374.

DOI PMID

[24]
ATTWOOD G T, KLIEVE A V, OUWERKERK D, et al. Ammonia-hyperproducing bacteria from New Zealand ruminants[J]. Applied and Environment Microbiology, 1998, 64(5):1796-1804.

DOI

[25]
BENTO C B P, DE AZEVEDO A C, DETMANN E, et al. Biochemical and genetic diversity of carbohydrate-fermenting and obligate amino acid-fermenting hyper-ammonia-producing bacteria from Nellore steers fed tropical forages and supplemented with casein[J]. BMC Microbiology, 2015, 15(1):28.

DOI

[26]
WIEBE M A, BRANNON J R, STEINER B D, et al. Serine deamination is a new acid tolerance mechanism observed in uropathogenic Escherichia coli[J]. mBio, 2022, 13(6):e0296322.

DOI

[27]
王伟, 邓祖丽颖, 姜军坡, 等. 枯草芽孢杆菌JA-14菌剂对肉鸡粪便中氨气释放量的影响[J]. 河南农业科学, 2017, 46(5):136-139.

WANG W, DENGZU L Y, JIANG J P, et al. Effects of Bacillus subtilis JA-14 preparation on ammonia release from the feces of broilers[J]. Journal of Henan Agricultural Sciences, 2017, 46(5):136-139. (in Chinese)

[28]
WU G Y, BAZER F W, JOHNSON G A, et al. Metabolism and nutrition of L-glutamate and L-glutamine in ruminants[J]. Animals, 2024, 14(12):1788.

DOI

[29]
王芃芃, 谭支良. 反刍动物瘤胃微生物氨同化作用研究进展[J]. 动物营养学报, 2010, 22(5):1171-1176.

WANG P P, TAN Z L. Research advances in characterisation of ammonia-assimilation of microorganisms in the rumen[J]. Chinese Journal of Animal Nutrition, 2010, 22(5):1171-1176. (in Chinese)

[30]
ATASOGLU C, VALDÉS C, WALKER N D, et al. De novo synthesis of amino acids by the ruminal bacteria Prevotella bryantii B14,Selenomonas ruminantium HD4,and Streptococcus bovis ES1[J]. Applied and Environmental Microbiology, 1998, 64(8):2836-2843.

DOI

[31]
TALWAR C, NAGAR S, NEGI R K. Comparative analyses of gut microbiota reveal ammonia detoxification and nitrogen assimilation in Cyprinus carpio var. specularis[J]. Folia Microbiologica, 2024, 69(5):1029-1041.

DOI

[32]
LIU M Y, WANG T, WANG L, et al. Core microbiota for nutrient digestion remained and ammonia utilization increased after continuous batch culture of rumen microbiota in vitro[J]. Frontiers in Microbiology, 2024, 15:1331977.

DOI

[33]
IGAI K, ITAKURA M, NISHIJIMA S, et al. Nitrogen fixation and nifH diversity in human gut microbiota[J]. Scientific Reports, 2016, 6(1):31942.

DOI

[34]
DUAN X W, VIGORS S, MA R, et al. Ligilactobacillus agilis W70:a probiotic with capacity to enhance ammonia assimilation in the rumen[J]. Frontiers in Microbiology, 2025, 15:1498109.

DOI

[35]
于金高, 李娜, 王征, 等. 硫化氢对胃肠道的“双相”调节作用及其介导的药物效-毒转化[J]. 中国中药杂志, 2022, 47(15):3986-3993.

YU J G, LI N, WANG Z, et al. Dual modulating effects of hydrogen sulfide on gastrointestinal tract and efficacy-toxicity transformation of hydrogen sulfide-mediated drugs[J]. China Journal of Chinese Materia Medica, 2022, 47(15):3986-3993. (in Chinese)

[36]
TEIGEN L, BIRUETE A, KHORUTS A. Impact of diet on hydrogen sulfide production:implications for gut health[J]. Current Opinion in Clinical Nutrition and Metabolic Care, 2023, 26(1):55-58.

[37]
BLACHIER F, ANDRIAMIHAJA M, LARRAUFIE P, et al. Production of hydrogen sulfide by the intestinal microbiota and epithelial cells and consequences for the colonic and rectal mucosa[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2021, 320(2):G125-G135.

DOI

[38]
DORDEVIĆ D, JANČÍKOVÁ S, VÍTĚZOVÁ M, et al. Hydrogen sulfide toxicity in the gut environment:Meta-analysis of sulfate-reducing and lactic acid bacteria in inflammatory processes[J]. Journal of Advanced Research, 2021, 27:55-69.

DOI

[39]
BARTON L L, RITZ N L, FAUQUE G D, et al. Sulfur cycling and the intestinal microbiome[J]. Digestive Diseases and Sciences, 2017, 62(9):2241-2257.

DOI PMID

[40]
KUSHKEVYCH I, VÍTĚZOVÁ M, VÍTĚZ T, et al. Production of biogas:relationship between methanogenic and sulfate-reducing microorganisms[J]. Open Life Sciences, 2017, 12(1):82-91.

DOI

[41]
KIM Y T, KWON J G, O’SULLIVAN D J, et al. Regulatory mechanism of cysteine-dependent methionine biosynthesis in Bifidobacterium longum:insights into sulfur metabolism in gut microbiota[J]. Gut Microbes, 2024, 16(1):2419565.

DOI

[42]
ROSE P, MOORE P K, WHITEMAN M, et al. Diet and hydrogen sulfide production in mammals[J]. Antioxidants & Redox Signaling, 2021, 34(17):1378-1393.

[43]
LAUE H, DENGER K, COOK A M. Taurine reduction in anaerobic respiration of Bilophila wadsworthia RZATAU[J]. Applied and Environmental Microbiology, 1997, 63(5):2016-2021.

DOI

[44]
SARNA L K, SID V, WANG P Q, et al. Tyrosol attenuates high fat diet-induced hepatic oxidative stress:potential involvement of cystathionine β-synthase and cystathionine γ-lyase[J]. Lipids, 2016, 51(5):583-590.

DOI

[45]
JIANG S M, CHEN Y H. The role of sulfur compounds in chronic obstructive pulmonary disease[J]. Frontiers in Molecular Biosciences, 2022, 9:928287.

DOI

[46]
KIMURA H. Signalling by hydrogen sulfide and polysulfides via protein S-sulfuration[J]. British Journal of Pharmacology, 2020, 177(4):720-733.

DOI PMID

[47]
KIMURA Y, KOIKE S, SHIBUYA N, et al. 3-mercaptopyruvate sulfurtransferase produces potential redox regulators cysteine- and glutathione-persulfide (Cys-SSH and GSSH) together with signaling molecules H2S2,H2S3 and H2S[J]. Scientific Reports, 2017, 7(1):10459.

DOI

[48]
DAWOUD A, YOUNESS R A, ELSAYED K, et al. Emerging roles of hydrogen sulfide-metabolizing enzymes in cancer[J]. Redox Report, 2024, 29(1):2437338.

DOI

[49]
LI J, LI Y, ZHAO Y Z, et al. Mitigation of depleted uranium-induced mitochondrial damage by ethylmalonic encephalopathy 1 protein via modulation of hydrogen sulfide and glutathione pathways[J]. Archives of Toxicology, 2025, 99(3):1133-1141.

DOI PMID

[50]
BOSTELAAR T, VITVITSKY V, KUMUTIMA J, et al. Hydrogen sulfide oxidation by myoglobin[J]. Journal of the American Chemical Society, 2016, 138(27):8476-8488.

DOI PMID

[51]
LI Y F, LIU Y C, MU C L, et al. Magnolol-driven microbiota modulation elicits changes in tryptophan metabolism resulting in reduced skatole formation in pigs[J]. Journal of Hazardous Materials, 2024, 467:133423.

DOI

[52]
LI G, YOUNG K D. Indole production by the tryptophanase TnaA in Escherichia coli is determined by the amount of exogenous tryptophan[J]. Microbiology, 2013, 159(Pt 2):402-410.

DOI

[53]
ROAGER H M, LICHT T R. Microbial tryptophan catabolites in health and disease[J]. Nature Communications, 2018, 9(1):3294.

DOI PMID

[54]
MADELLA A M, VAN BERGENHENEGOUWEN J, GARSSEN J, et al. Microbial-derived tryptophan catabolites,kidney disease and gut inflammation[J]. Toxins, 2022, 14(9):645.

DOI

[55]
AGUS A, PLANCHAIS J, SOKOL H. Gut microbiota regulation of tryptophan metabolism in health and disease[J]. Cell Host & Microbe, 2018, 23(6):716-724.

[56]
LIU L K, XU J G, ZHANG Z Y, et al. Metabolic homeostasis of amino acids and diabetic kidney disease[J]. Nutrients, 2022, 15(1):184.

DOI

[57]
HAN T H, LEE J H, CHO M H, et al. Environmental factors affecting indole production in Escherichia coli[J]. Research in Microbiology, 2011, 162(2):108-116.

DOI

[58]
LUZIATELLI F, FICCA A G, BONINI P, et al. A genetic and metabolomic perspective on the production of indole-3-acetic acid by Pantoea agglomerans and use of their metabolites as biostimulants in plant nurseries[J]. Frontiers in Microbiology, 2020, 11:1475.

DOI

[59]
WANG Y, GU Y, FANG K, et al. Lactobacillus acidophilus and Clostridium butyricum ameliorate colitis in murine by strengthening the gut barrier function and decreasing inflammatory factors[J]. Beneficial Microbes, 2018, 9(5):775-787.

DOI

[60]
UNO Y, MORIKUNI S, MURAYAMA N, et al.2-oxidation, 3-methyl hydroxylation,and 6-hydroxylation of skatole,a contributor to the odour of boar-tainted pork meat,mediated by porcine liver microsomal cytochromes P450 1A2,2A19,2E1,and 3A22[J]. Xenobiotica, 2023, 53(1):60-65.

DOI

[61]
邓远帆, 廖新俤. 营养途径调控动物肠道微生物与臭气减排研究进展[J]. 家畜生态学报, 2015, 36(3):1-9.

DENG Y F, LIAO X D. Advances in relationship between nutrition regulation for intestinal microflora and odor emission reduction[J]. Acta Ecologiae Animalis Domastici, 2015, 36(3):1-9. (in Chinese)

[62]
ROMAN-GARCIA Y, DENTON B L, MITCHELL K E, et al. Conditions stimulating neutral detergent fiber degradation by dosing branched-chain volatile fatty acids.Ⅰ:comparison with branched-chain amino acids and forage source in ruminal batch cultures[J]. Journal of Dairy Science, 2021, 104(6):6739-6755.

DOI

[63]
SAITO Y, SATO T, NOMOTO K, et al. Identification of phenol- and p-cresol-producing intestinal bacteria by using media supplemented with tyrosine and its metabolites[J]. FEMS Microbiology Ecology, 2018, 94(9):fiy125.

DOI

[64]
HENG X, LIU W G, CHU W H. Identification of choline-degrading bacteria from healthy human feces and used for screening of trimethylamine (TMA)-lyase inhibitors[J]. Microbial Pathogenesis, 2021, 152:104658.

DOI

[65]
ALI U, LEE K J, CAI D M, et al. Low protein diet with amino acid supplementation maintains laying performance and egg quality while reducing ammonia emissions in Hy-line brown hens[J]. Tropical Animal Health and Production, 2025, 57(7):354.

DOI PMID

[66]
LIU H, XU K Q, WANG H M, et al. Effects of different forms of amino acid supplementation on the performance and intestinal barrier function of laying hens fed a low-protein diet[J]. Poultry Science, 2024, 103(12):104375.

DOI

[67]
TRABUE S L, KERR B J, SCOGGIN K D, et al. Swine diets impact manure characteristics and gas emissions:part Ⅰ protein level[J]. The Science of the Total Environment, 2021, 755(Pt 2):142528.

DOI

[68]
YI W Z, HUANG Q X, LIU Y J, et al. Effects of dietary multienzymes on the growth performance,digestive enzyme activity,nutrient digestibility,excreta noxious gas emission,and nutrient transporter gene expression in white feather broilers[J]. Journal of Animal Science, 2024, 102:skae133.

DOI

[69]
KIM J H, KO G P, SON K H, et al. Arazyme in combination with dietary carbohydrolases influences odor emission and gut microbiome in growing-finishing pigs[J]. The Science of the Total Environment, 2022, 848:157735.

DOI

[70]
FANG S, FAN X Y, XU S X, et al. Effects of dietary supplementation of postbiotic derived from Bacillus subtilis ACCC 11025 on growth performance,meat yield,meat quality,excreta bacteria,and excreta ammonia emission of broiler chicks[J]. Poultry Science, 2024, 103(5):103444.

DOI

[71]
PARK J W, JEONG J S, LEE S I, et al. Effect of dietary supplementation with a probiotic (Enterococcus faecium) on production performance,excreta microflora,ammonia emission,and nutrient utilization in ISA brown laying hens[J]. Poultry Science, 2016, 95(12):2829-2835.

DOI

[72]
YU Z H, MA X, LONG T, et al. Practical microalgal supplementation:reducing ammonia emission from manure in commercial layer production[J]. Journal of Animal Science and Biotechnology, 2025, 16(1):140.

DOI

[73]
NGUYEN D H, KIM I H. Protected organic acids improved growth performance,nutrient digestibility,and decreased gas emission in broilers[J]. Animals, 2020, 10(3):416.

DOI

[74]
XU J J, XIE G M, LI X H, et al. Sodium butyrate reduce ammonia and hydrogen sulfide emissions by regulating bacterial community balance in swine cecal content in vitro[J]. Ecotoxicology and Environmental Safety, 2021, 226:112827.

DOI

[75]
CHEN F, LV Y T, ZHU P W, et al. Dietary Yucca schidigera extract supplementation during late gestating and lactating sows improves animal performance,nutrient digestibility,and manure ammonia emission[J]. Frontiers in Veterinary Science, 2021, 8:676324.

DOI

[76]
HSU J E, LO S H, LIN Y Y, et al. Effects of essential oil mixtures on nitrogen metabolism and odor emission via in vitro simulated digestion and in vivo growing pig experiments[J]. Journal of the Science of Food and Agriculture, 2022, 102(5):1939-1947.

DOI

文章导航

/