研究论文

荣昌母猪妊娠中后期饲粮不同来源纤维对新生仔猪肠道形态、抗氧化能力和免疫功能的影响

  • 李媛媛 , 1 ,
  • 秦锋 1 ,
  • 王琪 2 ,
  • 车炼强 1 ,
  • 林燕 1 ,
  • 卓勇 1 ,
  • 刘光芒 1 ,
  • 冯斌 1 ,
  • 吴德 1 ,
  • 徐盛玉 , 1, *
展开
  • 1 四川农业大学动物营养研究所, 动物抗病营养教育部重点实验室,农业农村部动物抗病营养与饲料重点实验室,动物抗病营养四川省重点实验室, 成都 611130
  • 2 国家生猪技术创新中心, 重庆 402460
* 徐盛玉,副教授,博士生导师,E-mail:

李媛媛(2001—),女,河北保定人,硕士研究生,畜牧专业。E-mail:

Office editor: 田艳明

收稿日期: 2025-11-18

  网络出版日期: 2026-06-13

基金资助

生猪技术创新中心(重庆)先导科技项目(B类)(NCTIP-XD/B04)

国家现代农业产业技术体系(CARS-35)

国家现代农业产业技术体系四川创新团队(SCCXTD-2024-8)

四川省产教融合示范项目“饲料工业全产业链转型升级产教融合创新示范”

Effects of Dietary Fiber from Different Sources during Mid-to-Late Gestation of Rongchang Sows on Intestinal Morphology, Antioxidant Capacity and Immune Function of Newborn Piglets

  • LI Yuanyuan , 1 ,
  • QIN Feng 1 ,
  • WANG Qi 2 ,
  • CHE Lianqiang 1 ,
  • LIN Yan 1 ,
  • ZHUO Yong 1 ,
  • LIU Guangmang 1 ,
  • FENG Bin 1 ,
  • WU De 1 ,
  • XU Shengyu , 1, *
Expand
  • 1 Key Laboratory of Animal Disease-Resistant Nutrition, Sichuan Province, Key Laboratory of Animal Disease-Resistant Nutrition and Feed, Ministry of Agriculture and Rural Affairs, Key Laboratory of Animal Disease-Resistant Nutrition, Ministry of Education, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
  • 2 National Pig Technology Innovation Center, Chongqing 402460, China
* associate professor, E-mail:

Received date: 2025-11-18

  Online published: 2026-06-13

摘要

本试验旨在探究荣昌母猪妊娠中后期饲粮不同来源纤维对新生仔猪肠道形态、抗氧化能力和免疫功能的影响。试验选取60头2~5胎次、背膘厚度相近的妊娠60 d荣昌母猪,随机分为4组,每组15个重复,每个重复1头母猪。4组饲粮纤维来源分别为麦麸(WB组)、甜菜粕(BP组)、大豆皮(SH组)和组合纤维(甜菜粕∶麦麸=2∶5,MF组)。母猪分娩当天,每组随机选6窝仔猪,每窝选1头接近平均体重的仔猪进行屠宰取样。结果表明:1)荣昌母猪妊娠中后期饲粮纤维来源对新生仔猪器官指数和血清炎症因子含量无显著影响(P>0.05)。2)BP组新生仔猪十二指肠绒隐比显著高于SH组和MF组(P<0.05)。3)BP组新生仔猪血清过氧化氢酶活性和总抗氧化能力显著高于其他3组(P<0.05)。4)与其他3组相比,BP组新生仔猪胸腺白细胞介素-10(IL-10)相对表达量显著提高(P<0.05),胸腺核因子-κB(NF-κB)相对表达量显著降低(P<0.05);WB组脾脏白细胞介素-6(IL-6)和IL-10相对表达量显著降低(P<0.05),回肠IL-10和肿瘤坏死因子-α(TNF-α)相对表达量显著降低(P<0.05)。综上所述,荣昌母猪妊娠中后期饲粮不同来源纤维能特异性调控后代抗氧化状态和先天免疫,其中甜菜粕能改善新生仔猪肠道形态、增强抗氧化能力并提高抗炎能力,而麦麸则表现出一定的抗炎调节潜力。因此,在荣昌母猪妊娠期饲粮中优先考虑甜菜粕或麦麸作为纤维来源。

本文引用格式

李媛媛 , 秦锋 , 王琪 , 车炼强 , 林燕 , 卓勇 , 刘光芒 , 冯斌 , 吴德 , 徐盛玉 . 荣昌母猪妊娠中后期饲粮不同来源纤维对新生仔猪肠道形态、抗氧化能力和免疫功能的影响[J]. 动物营养学报, 2026 , 38(6) : 4137 -4148 . DOI: 10.12418/CJAN2026.332

Abstract

This experiment was conducted to explore the effects of dietary fiber from different sources during mid-to-late gestation of Rongchang sows on intestinal morphology, antioxidant capacity and immune function of newborn piglets. Sixty pregnant Rongchang sows with 2 to 5 parities and similar backfat thickness at 60 days of gestation were selected for the experiment and randomly divided into 4 groups, with 15 replicates in each group and 1 sow in each replicate. The dietary fiber sources of the four groups were wheat bran (WB group), beet pulp (BP group), soybean hull (SH group), and combined fiber (beet pulp∶wheat bran=2∶5, MF group), respectively. On the day of sows giving birth, six litters of piglets were randomly selected from each group, and one piglet with a body weight close to the average was chosen from each litter for slaughter and sampling. The results showed as follows: 1) the dietary fiber source during mid-to-late gestation of Rongchang sows had no significant effects on the organ indices and serum inflammatory factor contents of newborn piglets (P>0.05). 2) The villus height to crypt depth ratio in duodenum of newborn piglets in BP group was significantly higher than that in SH group and MF group (P<0.05). 3) The serum catalase activity and total antioxidant capacity of newborn piglets in BP group were significantly higher than those in the other three groups (P<0.05). 4) Compared with the other three groups, the interleukin-10 (IL-10) relative expression level in thymus of newborn piglets in BP group was significantly increased (P<0.05), while the nuclear factor-κB (NF-κB) relative expression level in thymus was significantly decreased (P<0.05); the relative expression levels of interleukin-6 (IL-6) and IL-10 in spleen in WB group were significantly decreased (P<0.05), and the relative expression levels of IL-10 and tumor necrosis factor-α (TNF-α) in ileum were significantly decreased (P<0.05). In conclusion, dietary fiber from different sources during mid-to-late gestation of Rongchang sows can specifically regulate the antioxidant status and innate immunity of their offspring. Among them, beet pulp can improve the intestinal morphology of newborn piglets, enhance their antioxidant capacity and increase their anti-inflammatory ability, while wheat bran shows certain potential for anti-inflammatory regulation. Therefore, in the diet of Rongchang pregnant sows, beet pulp or wheat bran should be given priority as the source of fiber.

母猪妊娠期的营养状况是决定其后代健康水平以及生产性能的关键因素[1]。借助“胚胎编程”和“母体效应”,母体营养状况可对后代的器官发育、免疫系统构建以及代谢模式产生影响[2]。因此,通过精准的营养策略来优化母猪妊娠期的饲养管理,已成为改善后代终身健康的重要途径。其中,饲粮纤维作为一种关键的功能性营养物质,越来越受到畜禽营养学界的关注。纤维在后肠道经微生物发酵会产生短链脂肪酸(SCFAs),如丁酸、丙酸等已被证明对维持肠道健康、调节免疫以及缓解氧化应激有着积极的作用[3]
荣昌猪作为我国的地方品种猪,具有耐粗饲等优良特性[4],与纤维高效利用的潜力相契合。研究发现,妊娠母猪饲粮添加不同来源纤维(甜菜粕、大豆皮、苜蓿)可以缓解胎儿宫内发育受限,提高母猪繁殖性能,降低机体炎症[5]。而纤维的生理效应有十分突出的来源特异性,不同纤维原料因为化学结构、溶解性以及发酵特性不同,作用机制也不同。其中,麦麸和大豆皮富含膳食纤维,尤其是不可溶性纤维,主要凭借物理方式促进肠道蠕动[6];而甜菜粕中可溶性纤维占比较多,有利于微生物发酵利用[7]。Shang等[8]研究发现,在母猪妊娠和哺乳期饲粮中添加甜菜粕能调节肠道微生物群落组成,并促进有益菌产生大量SCFAs,具有改善代谢、减轻炎症和维持体况的综合效益,对于保障母猪在妊娠期和哺乳期的健康和生产性能具有显著优势。
本课题组前期研究发现,不同来源纤维能显著改变荣昌母猪繁殖性能、肠道微生物群落组成及机体炎症水平;其中,甜菜粕纤维可通过调节肠道菌群、提高异丁酸产量,进而降低血清促炎细胞因子含量[9]。而这种由母体摄入不同来源纤维所诱导的特异性益处,是否会通过母体-后代途径传递给后代仔猪,并对新生仔猪的肠道发育和免疫启动阶段产生特异性影响尚不清楚。因此,本研究旨在探究荣昌母猪妊娠中后期饲粮不同来源纤维对新生仔猪肠道形态、抗氧化能力和免疫功能的影响。

1 材料与方法

1.1 试验材料

麦麸和大豆皮购于重庆市荣昌区众信饲料有限公司,甜菜粕购于成都德贝洛贸易有限公司。

1.2 试验设计

本试验经四川农业大学动物管理与使用委员会批准(伦理批准编号:SICAU2022214007),在重庆琪泰佳牧畜禽养殖有限公司基地进行。试验选取60头2~5胎次、背膘厚度[(42.93±1.00) mm]相近的妊娠60 d荣昌母猪,随机分为4组,每组15个重复,每个重复1头母猪。4组饲粮纤维来源分别为麦麸(WB组)、甜菜粕(BP组)、大豆皮(SH组)和组合纤维(甜菜粕∶麦麸=2∶5,MF组)。母猪分娩当天,每组随机选6窝仔猪,每窝选1头接近平均体重的仔猪进行屠宰取样。

1.3 试验饲粮和每日养分摄入量

母猪妊娠期饲粮参照《猪营养需要量》(GB/T 39235—2020)推荐的脂肪型妊娠母猪营养需要进行配制,其组成及营养水平见表1。在妊娠中期(妊娠60~90 d),通过调整饲喂量,其中WB组、BP组、SH组和MF组每日饲喂量分别为2.17、2.02、2.02和2.10 kg/d,使各组母猪膳食纤维每日摄入量(402.00~407.5 g/d)和其他养分每日摄入量保持一致;妊娠后期(妊娠91 d至分娩),WB组、BP组、SH组和MF组每日饲喂量分别调整为2.54、2.36、2.36和2.46 kg/d,使各组母猪膳食纤维每日摄入量(470.88~477.32 g/d)和其他养分每日摄入量基本一致。泌乳期饲粮总能为14.02 MJ/kg,粗蛋白质含量为16%。
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis) %

项目
Items
组别 Groups
WB BP SH MF
原料 Ingredients
玉米 Corn 66.86 70.95 67.33 68.78
豆粕 Soybean meal 7.06 14.30 12.90 10.20
麦麸 Wheat bran 24.00 13.50
甜菜粕 Beet pulp 12.74 5.47
大豆皮 Soybean hull 17.90
碳酸钙 CaCO3 0.91 0.49 0.30 0.72
磷酸氢钙 CaHPO4 0.40 0.83 0.84 0.59
氯化钠 NaCl 0.40 0.40 0.40 0.40
氯化胆碱 Choline chloride (50%) 0.15 0.15 0.15 0.15
L-赖氨酸盐酸盐 L-Lys·HCl (98%) 0.11 0.03 0.04 0.07
DL-蛋氨酸 DL-Met (98.5%) 0.02 0.02 0.01
L-苏氨酸 L-Thr (98%) 0.03 0.02 0.02
L-色氨酸 L-Trp (98%) 0.01 0.02 0.01
维生素预混料 Vitamin premix1) 0.03 0.03 0.03 0.03
矿物质预混料 Mineral premix2) 0.05 0.05 0.05 0.05
合计 Total 100.00 100.00 100.00 100.00
营养水平 Nutrient levels3)
总能 GE/(MJ/kg) 16.05 17.25 17.23 16.58
消化能 DE/(MJ/kg) 12.84 13.80 13.78 13.26
净能 NE/(MJ/kg) 9.57 10.35 10.23 9.91
粗蛋白质 CP 12.42 13.20 13.18 12.69
粗纤维 CF 3.52 5.17 7.56 4.31
可溶性纤维 Soluble fiber 2.15 4.82 3.12 3.32
不可溶性纤维 Insoluble fiber 16.66 14.95 17.06 15.91
总膳食纤维 Total dietary fiber 18.81 19.76 20.18 19.23
钙 Ca 0.51 0.54 0.54 0.52
总磷 TP 0.52 0.45 0.43 0.49
有效磷 AP 0.19 0.21 0.21 0.20
标准回肠可消化赖氨酸 SID Lys 0.51 0.55 0.55 0.53
标准回肠可消化蛋氨酸 SID Met 0.19 0.21 0.21 0.20
标准回肠可消化苏氨酸 SID Thr 0.38 0.41 0.41 0.39
标准回肠可消化色氨酸 SID Trp 0.12 0.13 0.13 0.12

1)维生素预混料为每千克饲粮提供 The vitamin premix provided the following per kilogram of diets:VA 7 200 IU,VD3 1 440 IU,VE 60 IU,VK 2.88 mg,VB1 1.2 mg,VB2 4.32 mg,VB6 2.16 mg,VB12 0.02 μg,生物素 biotin 0.29 mg,烟酸 niacin 24 mg,叶酸 folic acid 2.4 mg,泛酸 pantothenic acid 15 mg。
2)矿物质预混料为每千克饲粮提供 The mineral premix provided the following per kilogram of diets:Fe (FeSO4·H2O) 70 mg,Cu (CuSO4·5H2O) 5 mg,Mn (MnSO4) 20 mg,Zn (ZnSO4) 50 mg,Se (Na2SeO3) 0.2 mg,I (KI) 0.25 mg。
3)总能、粗蛋白质和粗纤维为实测值;其余为计算值,依据《中国饲料成分及营养价值表(2022年第33版)》和NRC(2012)计算。GE, CP and CF were measured values, and the others were calculated values based on Tables of Feed Composition and Nutritive Values in China (33rd edition, 2022) and NRC (2012).

1.4 饲养管理

妊娠母猪分为2个阶段(妊娠60~90 d和妊娠91 d至分娩)进行饲喂,每天饲喂2次(09:00和15:00各1次)。每头母猪单独饲喂在落地式限位栏中(2.10 m×0.65 m),自由饮水,猪舍温度为20~22 ℃,相对湿度为70%。所有母猪按猪场免疫程序接种疫苗。妊娠107 d时母猪转移至产房,并置于独立产床中(2.10 m×1.50 m)。母猪分娩结束后,各组饲喂同一泌乳期饲粮,自由采食;仔猪出生后24 h内进行组内交叉寄养,以确保每头母猪带仔数为8~10头,并保证仔猪及时进食初乳。泌乳期母猪自由饮水,室内温度维持在22~26 ℃。

1.5 样品采集

1.5.1 饲粮样品采集

每组分别在出料口的前、中、后段等量接取2 kg饲粮,充分混匀后于-20 ℃冰箱保存待测。

1.5.2 血样采集

母猪分娩当天,每组随机选取6头母猪,对应每窝选取1头接近平均体重的仔猪,在其出生后未进食初乳前,前腔静脉采集血液于1 300×g、4 ℃条件下离心15 min,并转移上清液于1.5 mL EP管中,置于-20 ℃冰箱保存待测。

1.5.3 组织样品采集

仔猪采血及称重后,通过麻醉处死、沿腹腔中线进行解剖,采集心脏、肝脏、脾脏及肾脏等器官组织,并准确记录各器官重量。采集肝脏、脾脏、肠系膜淋巴结中央区域以及十二指肠、空肠和回肠中段组织样本,采用生理盐水反复冲洗以清除表面残留物。经充分清洗后,用无菌棉纸吸除组织表面多余水分,将样本分装至2 mL冻存管,液氮速冻后-80 ℃保存备用。另取十二指肠、空肠和回肠中段约1 cm3组织块,采用4%多聚甲醛固定后待检。

1.6 指标测定

1.6.1 饲粮营养水平

参照GB/T 6432—2018采用Kjeltec 8400全自动凯氏定氮仪(FOSS,瑞典)测定粗蛋白质含量,参照GB/T 6434—2006采用ANKOM a2000i全自动纤维分析仪(美国)测定粗纤维含量,采用Parr 6400氧弹热量仪(美国)测定总能。

1.6.2 脏器指数

脏器指数计算公式如下:
脏器指数(%)=100×器官重量/活体重。

1.6.3 血清抗氧化指标和炎症因子含量

新生仔猪血清过氧化氢酶(CAT)活性、总抗氧化能力(T-AOC)以及丙二醛(MDA)和谷胱甘肽(GSH)含量采用试剂盒(苏州格锐思生物科技有限公司)进行测定;血清炎症因子白细胞介素-10(IL-10)、白细胞介素-6(IL-6)、肿瘤坏死因子-α(TNF-α)和干扰素-γ(IFN-γ)含量采用酶联免疫吸附测定(ELISA)试剂盒(泉州市睿信生物科技有限公司)进行测定,具体测定步骤参照试剂盒说明书进行。

1.6.4 组织抗氧化指标

肝脏、脾脏和肠系膜淋巴结CAT活性、T-AOC以及MDA和GSH含量采用试剂盒(苏州格锐思生物科技有限公司)进行测定,具体测定步骤参照试剂盒说明书进行。

1.6.5 肠道形态

肠道组织经4%多聚甲醛溶液固定24 h后,依次进行梯度脱水、石蜡包埋及切片制备;切片经二甲苯脱蜡及梯度乙醇水化后,采用苏木精-伊红(HE)染色法进行组织学染色,随后经乙醇梯度脱水及中性树胶封固。每张切片随机选取5个以上形态完整的绒毛-隐窝结构单元,采用光学显微镜进行显微图像采集。最后采用Image-Pro Plus 6.0图像分析系统测定肠道绒毛高度和隐窝深度,并计算绒隐比(V/C)。

1.6.6 组织免疫相关基因表达

采用RNA提取试剂盒(南京诺唯赞生物科技股份有限公司)提取组织RNA,具体步骤参照试剂盒说明书进行;然后采用NanoDrop ND-2000(Thermo Scientific,美国)测定RNA浓度和质量;随后按照HiScript Ⅲ RT SuperMix Kit说明书进行反转录;最后采用ABI-7900HT Fast Real-Time PCR System(Applied Biosystems,美国)和SYBR qPCR Master Mix进行实时荧光定量PCR反应。基因引物由北京擎科生物科技股份有限公司合成,引物序列见表2。以β-肌动蛋白(β-actin)作为内参基因,根据样本Ct值,采用2-ΔΔCt法计算目的基因相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequence (5'—3')
登录号
Accession No.
β-肌动蛋白 β-actin F:ATATTGCTGCGCTCGTGGT
R:TAGGAGTCCTTCTGGCCCAT
XM_021086047.1
白细胞介素-6 IL-6 F:GATGCTTCCAATCTGGGTTCA
R:CACAAGACCGGTGGTGATTCT
NM_214399.1
髓样分化因子88 MyD88 F:GTGCCTCGGATGGTAGTG
R:TCTGGAAGTCACATTCCTTGCTT
NM_001099923
核因子-κB NF-κB F:TGCTGGACCCAAGGACATG
R:CTCCCTTCTGCAACAACACGTA
AK348766.1
白细胞介素-1β IL-1β F:TTGCCCTGTACCCCAACTG
R:CAGGAAGACGGGCTTTTG
NM_214055.1
Toll样受体9 TLR9 F:AATCCAGTCGGAGATGTTTGCT
R:GACCGCCTGGGAGATGCT
AY859728
白细胞介素-10 IL-10 F:GCCTTCGGCCCAGTGAA
R:AGAGACCCGGTCAGCAACAA
NM_214041.1
肿瘤坏死因子-α TNF-α F:CGTGAAGCTGAAAGACAACCAG
R:GATGGTGTGAGTGAGGAAAACG
NM_214022.1
Toll样受体4 TLR4 F:AGAAAATATGGCAGAGGTGAAAGC
R:CTTCGTCCTGGCTGGAGTAGA
GQ304754

1.7 数据统计分析

试验数据采用Excel 2021进行初步整理,采用Shapiro-Wilk和Levene’s检验对数据进行正态性检验和方差齐性分析,采用SPSS 27.0软件进行单因素方差分析(one-way ANOVA),对于存在显著差异的指标,进一步采用Tukey法进行多重比较;结果数据以“平均值±标准误”表示,以P<0.05表示差异显著,0.05≤P<0.10表示差异有显著趋势。

2 结果

2.1 母体饲粮纤维来源对新生仔猪脏器指数的影响

表3可知,荣昌母猪妊娠中后期饲粮纤维来源对新生仔猪体重以及心脏、肝脏、脾脏、左肾脏和右肾脏重量均无显著影响(P>0.05),同时对各脏器指数也均无显著影响(P>0.05)。
表3 母体饲粮纤维来源对新生仔猪脏器指数的影响

Table 3 Effects of maternal dietary fiber sources on organ indices in newborn piglets (n=6)

项目
Items
组别 Groups P
P-value
WB BP SH MF
重量 Weight
体重 Body weight/kg 1.06±0.03 1.10±0.05 1.02±0.04 1.10±0.09 0.692
心脏 Heart/g 7.09±0.27 7.58±0.46 7.14±0.41 6.66±0.20 0.401
肝脏 Liver/g 26.00±2.45 26.60±2.19 24.60±1.75 27.00±2.66 0.089
脾脏 Spleen/g 1.02±0.08 1.11±0.09 0.80±0.05 0.97±0.14 0.192
左肾脏 Left kidney/g 4.13±0.38 4.59±0.44 4.16±0.45 4.08±0.16 0.771
右肾脏 Right kidney/g 3.99±0.38 4.37±0.50 4.24±0.40 3.90±0.07 0.819
脏器指数 Organ indices/%
心脏指数 Heart index 0.67±0.02 0.69±0.02 0.69±0.02 0.66±0.03 0.553
肝脏指数 Liver index 2.43±0.18 2.40±0.11 2.42±0.15 2.45±0.12 0.990
脾脏指数 Spleen index 0.10±0.01 0.11±0.01 0.08±0.01 0.09±0.01 0.127
左肾脏指数 Left kidney index 0.39±0.03 0.41±0.02 0.40±0.03 0.38±0.03 0.800
右肾脏指数 Right kidney index 0.37±0.03 0.39±0.03 0.41±0.02 0.37±0.02 0.672

WB组、BP组、SH组和MF组母猪饲粮纤维来源分别是麦麸、甜菜粕、大豆皮和组合纤维(甜菜粕∶麦麸=2∶5)。同行数据肩标不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下表同。

Dietary fiber sources for sows in WB group, BP group, SH group and MF group were wheat bran, beet pulp, soybean hull and combined fiber (beet pulp∶wheat bran=2∶5), respectively. In the same row, values with different letter superscripts indicated significant difference (P<0.05), while with the same letter or no letter superscripts indicated no significant difference (P>0.05). The same as below.

2.2 母体饲粮纤维来源对新生仔猪肠道形态的影响

表4可知,BP组新生仔猪十二指肠绒隐比显著高于SH组和MF组(P<0.05),与WB组无显著差异(P>0.05)。各组间新生仔猪十二指肠绒毛高度、隐窝深度以及空肠和回肠绒毛高度、隐窝深度和绒隐比均无显著差异(P>0.05)。
表4 母体饲粮纤维来源对新生仔猪肠道形态的影响

Table 4 Effects of maternal dietary fiber sources on intestinal morphology in newborn piglets (n=6)

项目
Items
组别 Groups P
P-value
WB BP SH MF
十二指肠 Duodenum
绒毛高度 Villus height/μm 277.42±8.61 264.11±20.99 237.34±10.33 299.69±54.30 0.100
隐窝深度 Crypt depth/μm 51.57±3.85 47.05±4.70 52.88±1.85 56.17±5.52 0.509
绒隐比 V/C 5.49±0.32ab 5.70±0.26a 4.52±0.27b 4.58±0.47b 0.040
空肠 Jejunum
绒毛高度 Villus height/μm 337.50±42.89 387.24±31.34 309.88±35.74 342.40±16.91 0.501
隐窝深度 Crypt depth/μm 39.89±3.74 50.32±2.91 40.28±3.11 44.99±1.42 0.074
绒隐比 V/C 8.52±0.82 7.86±0.90 7.76±0.82 7.60±0.24 0.825
回肠 Ileum
绒毛高度 Villus height/μm 265.72±25.28 334.75±32.14 307.54±14.99 324.92±30.35 0.283
隐窝深度 Crypt depth/μm 42.64±3.96 46.33±5.40 44.06±2.01 45.87±2.30 0.855
绒隐比 V/C 6.24±0.28 7.36±0.31 7.10±0.61 6.94±0.64 0.430

2.3 母体饲粮纤维来源对新生仔猪抗氧化能力的影响

表5可知,BP组新生仔猪血清CAT活性和T-AOC显著高于其他3组(P<0.05);SH组肠系膜淋巴结GSH含量(P=0.060)和T-AOC(P=0.058)有低于其他组的趋势;各组间其他抗氧化指标无显著差异(P>0.05)。
表5 母体饲粮纤维来源对新生仔猪抗氧化能力的影响

Table 5 Effects of maternal dietary fiber sources on antioxidant capacity in newborn piglets (n=6)

项目
Items
组别 Groups P
P-value
WB BP SH MF
血清 Serum
过氧化氢酶 CAT/(U/mL) 64.35±6.35b 88.18±8.29a 68.22±5.24b 67.38±4.08b 0.039
谷胱甘肽 GSH/(μmol/L) 115.89±12.15 107.28±28.14 90.22±21.69 104.36±22.89 0.590
丙二醛 MDA/(nmol/mL) 2.10±0.12 3.34±0.85 3.08±0.45 3.18±0.38 0.362
总抗氧化能力 T-AOC/(μmol Trolox/mL) 0.53±0.02b 0.58±0.02a 0.46±0.04b 0.51±0.01b 0.040
肝脏 Liver
过氧化氢酶 CAT/(U/mg prot) 42.01±11.69 43.28±12.85 34.43±3.25 40.44±8.73 0.817
谷胱甘肽 GSH/(μmol/mg prot) 14.47±1.74 12.38±3.19 10.95±1.82 10.23±1.62 0.554
丙二醛 MDA/(nmol/mg prot) 0.19±0.01 0.23±0.01 0.24±0.02 0.22±0.01 0.190
总抗氧化能力 T-AOC/(μmol Trolox/g prot) 23.61±1.79 23.89±2.43 22.33±0.81 22.29±1.09 0.857
脾脏 Spleen
过氧化氢酶 CAT/(U/mg prot) 60.68±9.07 58.83±11.58 66.25±10.79 48.84±7.56 0.740
谷胱甘肽 GSH/(μmol/mg prot) 13.87±5.13 11.26±3.91 11.37±4.46 12.48±3.62 0.969
丙二醛 MDA/(nmol/mg prot) 0.15±0.03 0.12±0.01 0.11±0.01 0.12±0.01 0.152
总抗氧化能力 T-AOC/(μmol Trolox/g prot) 22.58±1.47 22.23±0.89 21.23±1.07 20.55±1.67 0.675
肠系膜淋巴结 Intestinal lymph nodes
过氧化氢酶 CAT/(U/mg prot) 46.59±11.14 66.72±15.59 69.19±14.56 64.41±5.50 0.611
谷胱甘肽 GSH/(μmol/mg prot) 26.22±7.86 36.96±8.84 15.35±0.43 29.68±1.19 0.060
丙二醛 MDA/(nmol/mg prot) 0.07±0.01 0.05±0.01 0.06±0.01 0.06±0.01 0.328
总抗氧化能力 T-AOC/(μmol Trolox/g prot) 24.23±2.24 26.51±2.44 18.68±1.02 20.18±1.48 0.058

2.4 母体饲粮纤维来源对新生仔猪血清炎症因子含量的影响

表6可知,荣昌母猪妊娠中后期饲粮纤维来源对新生仔猪血清炎症因子IL-10、IL-6、TNF-α和IFN-γ含量均无显著影响(P>0.05)。
表6 母体饲粮纤维来源对新生仔猪血清炎症因子含量的影响

Table 6 Effects of maternal dietary fiber sources on serum inflammatory factor contents in newborn piglets (n=6)

项目
Items
组别 Groups P
P-value
WB BP SH MF
白细胞介素-10 IL-10/(pg/mL) 3.10±0.25 5.87±1.38 5.48±1.06 5.7±1.56 0.263
白细胞介素-6 IL-6/(ng/mL) 0.26±0.03 0.47±0.08 0.32±0.06 0.48±0.13 0.257
肿瘤坏死因子-α TNF-α/(pg/mL) 13.57±0.73 12.79±0.52 13.88±0.72 14.31±0.29 0.390
干扰素-γ IFN-γ/(pg/mL) 2.71±0.15 2.56±0.10 2.78±0.14 2.86±0.06 0.389

2.5 母体饲粮纤维来源对新生仔猪免疫相关基因表达的影响

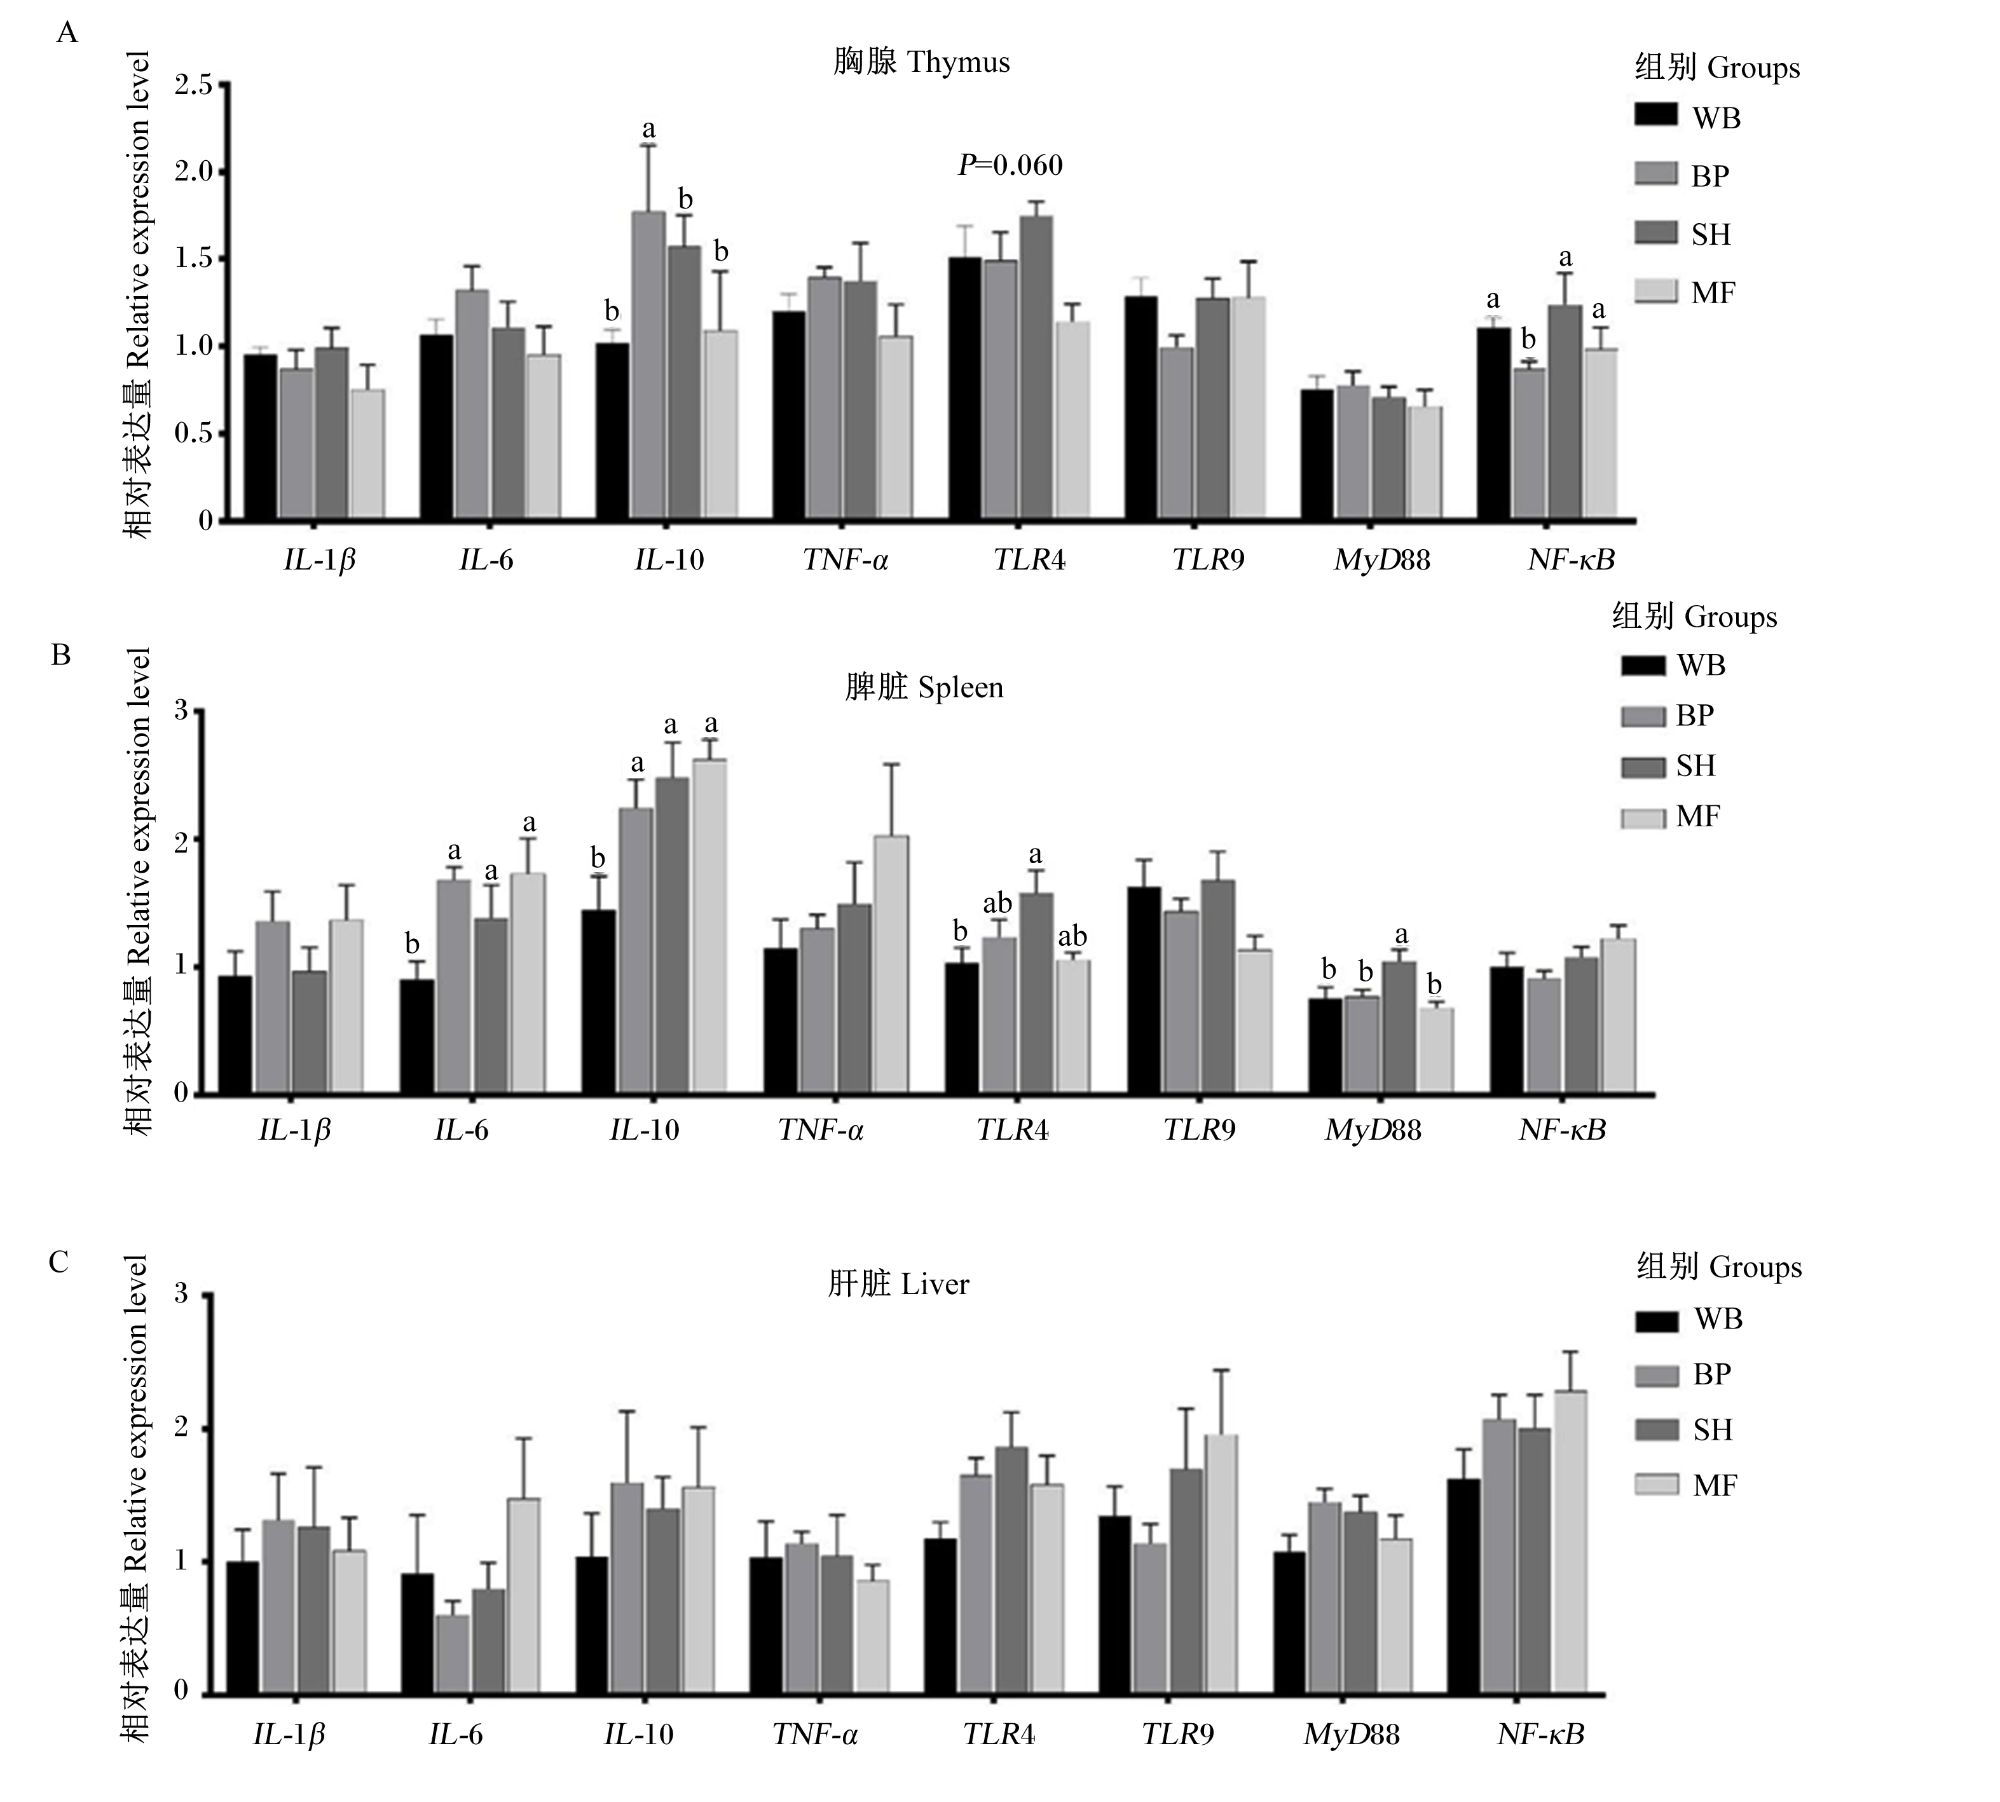
图1-A所示,与其他3组相比,BP组新生仔猪胸腺IL-10相对表达量显著提高(P<0.05),胸腺核因子-κB(NF-κB)相对表达量显著降低(P<0.05);MF组胸腺Toll样受体4(TLR4)相对表达量有降低趋势(P=0.060)。如图1-B所示,WB组脾脏IL-6和IL-10相对表达量显著低于其他3组(P<0.05),同时脾脏TLR4相对表达量显著低于SH组(P<0.05);SH组脾脏髓样分化因子88(MyD88)相对表达量显著高于其他3组(P<0.05)。如图1-C所示,各组间肝脏免疫相关基因相对表达量均无显著差异(P>0.05)。
图1 母体饲粮纤维来源对新生仔猪胸腺、脾脏和肝脏免疫相关基因表达的影响

WB组、BP组、SH组和MF组母猪饲粮纤维来源分别是麦麸、甜菜粕、大豆皮和组合纤维(甜菜粕∶麦麸=2∶5)。数据柱标注不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。图2同。Dietary fiber sources for sows in WB group, BP group, SH group and MF group were wheat bran, beet pulp, soybean hull and combined fiber (beet pulp∶wheat bran=2∶5), respectively. Value columns marked with different letters indicated significant difference (P<0.05), while with the same letter or no letters indicated no significant difference (P>0.05). The same as Fig.2.

IL-1β:白细胞介素-1β interleukin-1β;IL-6:白细胞介素-6 interleukin-6;IL-10:白细胞介素-10 interleukin-10;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;TLR4:Toll样受体4 Toll-like receptor 4;TLR9:Toll样受体9 Toll-like receptor 9;MyD88:髓样分化因子88 myeloid differentiation factor 88;NF-κB:核因子-κB nuclear factor-κB。图2同 the same as Fig.2

Fig.1 Effects of maternal dietary fiber sources on immune-related gene expression in thymus, spleen and liver in newborn piglets (n=6)

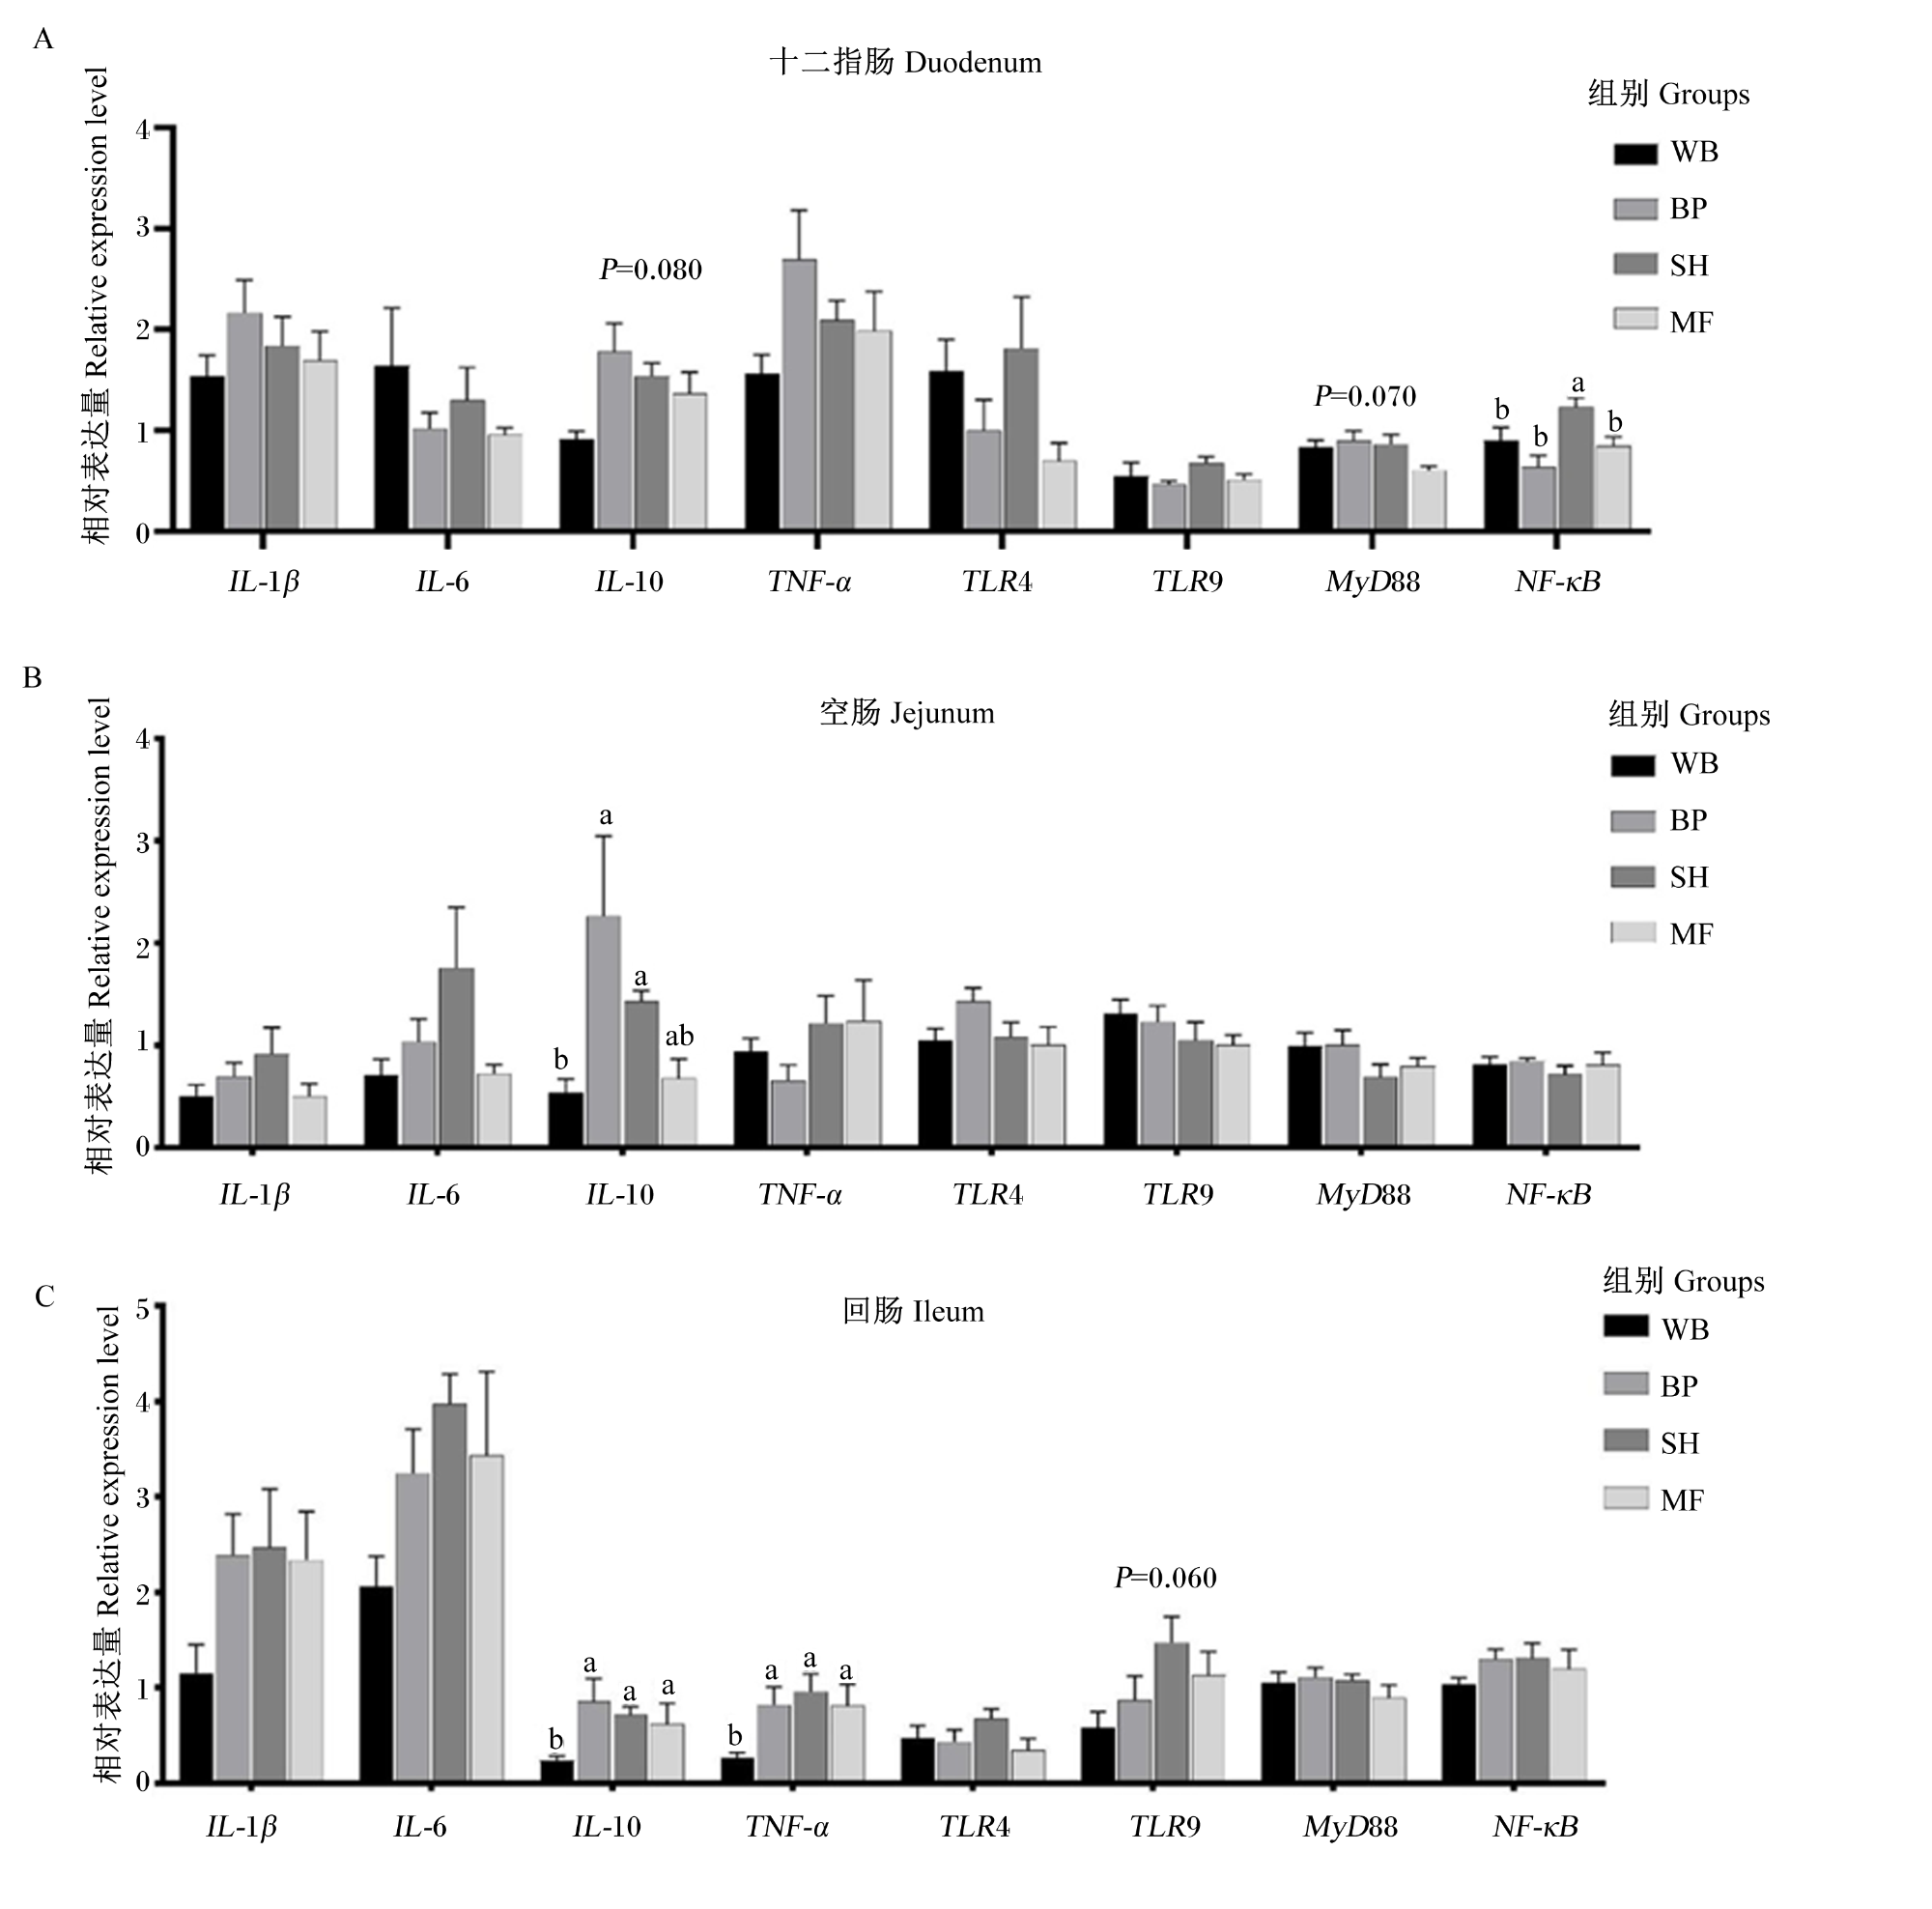
图2-A所示,SH组新生仔猪十二指肠NF-κB相对表达量显著高于其他3组(P<0.05);WB组十二指肠IL-10相对表达量有低于其他3组的趋势(P=0.080);MF组MyD88相对表达量有低于其他3组的趋势(P=0.070)。如图2-B所示,BP组和SH组空肠IL-10相对表达量显著高于WB组(P<0.05);各组间空肠其他免疫相关基因相对表达量无显著差异(P>0.05)。如图2-C所示,WB组回肠IL-10和TNF-α相对表达量显著低于其他3组(P<0.05),WB组和BP组回肠Toll样受体9(TLR9)相对表达量有低于其他2组的趋势(P=0.060)。
图2 母体饲粮纤维来源对新生仔猪肠道免疫相关基因表达的影响

Fig.2 Effects of maternal dietary fiber sources on immune-related gene expression in intestine in newborn piglets (n=6)

3 讨论

甜菜粕富含果胶等可溶性纤维,有较强的持水性,可在母猪后肠被微生物快速、彻底地发酵,是SCFAs的高效底物[7]。麦麸则主要是以不可溶性纤维为主,可通过物理刺激调节肠道蠕动和食糜排空速度[10]。大豆皮的纤维组成介于两者之间,含有部分可溶性果胶和大量不可溶性纤维。本课题组前期研究发现,BP组母猪粪便中异丁酸、异戊酸等支链SCFAs含量显著更高,且产SCFAs相关的特定微生物类群(如克里斯滕森菌科)相对丰度更高[9]。SCFAs不仅是重要的能量来源,还在维护肠道屏障完整性、调节肠道蠕动和抑制炎症方面发挥着关键作用[11]。甜菜粕的积极作用首先源于其可溶性纤维特性,通过在母体肠道内创造一个高SCFAs、低炎症的代谢微环境,进而可能通过改变母乳成分,即母体纤维摄入降低了初乳和常乳中促炎因子含量,仔猪摄入后可获得更温和的免疫环境[8]

3.1 荣昌母猪饲粮不同来源纤维对新生仔猪发育和血清炎症因子含量的影响

本研究发现,荣昌母猪妊娠中后期摄入不同来源纤维的饲粮未显著影响新生仔猪的脏器指数和血清炎症因子含量,这表明母源纤维干预未改变后代的基础发育。Cheng等[12]研究发现,母猪摄入可溶性纤维饲粮可提高后代仔猪血浆中抗炎因子含量。另有研究发现,妊娠期饲粮膳食纤维通过调节肠道菌群组成,对提高母体及其后代的抗氧化能力和降低炎症反应具有重要作用[13]。本课题组前期研究发现,饲粮不同来源纤维对母体妊娠不同阶段的炎症状态具有特异性调控作用,其中BP组母猪在妊娠期表现出更低的血清IFN-γ和TNF-α含量[9]。值得注意的是,这种对母体的抗炎调控作用并未延伸至其后代,新生仔猪的炎症指标没有受到显著影响。

3.2 荣昌母猪饲粮不同来源纤维对新生仔猪肠道形态的影响

肠道是机体消化吸收、免疫防御及内分泌调节的核心器官,其稳态依赖于肠道干细胞的持续更新与分化[14]。绒毛高度、隐窝深度和绒隐比是评估肠道屏障完整性和吸收功能的重要指标[15]。本研究中,BP组新生仔猪十二指肠绒隐比较SH组和MF组显著提高,表明其肠道吸收功能可能增强。母猪妊娠期和哺乳期饲喂甜菜粕为主要纤维来源的饲粮,能够显著改善其后代仔猪的回肠形态,并增强肠道屏障功能,表现为血清中二胺氧化酶和脂多糖含量降低,同时回肠紧密连接蛋白mRNA相对表达量升高[16]。Cheng等[12]研究发现,母猪妊娠期摄入可溶性纤维会影响仔猪肠道菌群组成,降低肠道渗透率,从而改善仔猪生长性能。本课题组前期研究表明,BP组母猪粪便中丁酸、异丁酸等SCFAs含量显著升高,且产SCFAs相关菌群相对丰度提高[9]。母源SCFAs可能作为关键信号分子,通过胎盘转运直接作用于胎儿,提供肠上皮细胞优选能量并调节局部免疫微环境,从而优化后代肠道发育[17-18]。不同来源纤维对其后代肠道形态的影响不同,其中甜菜粕中可溶性纤维占比高,母体摄入后通过提高SCFAs含量,改善其后代肠道发育;而SH组在本研究和母体数据中均未表现出类似的SCFAs和菌群优势,这可能是大豆皮未能显著影响后代肠道形态的原因。

3.3 荣昌母猪饲粮不同来源纤维对新生仔猪抗氧化能力的影响

氧化应激源于活性氧(ROS)产生与机体抗氧化能力之间的失衡[19]。CAT活性、GSH和MDA含量以及T-AOC等是评价机体抗氧化状态的关键指标。其中,GSH是一种非常重要的抗氧化物质,它有助于防御氧化应激[20]。CAT作为抗氧化酶系统中的重要酶,能迅速分解过氧化氢(H2O2),消除H2O2对机体的危害[21]。MDA是脂质氧化的副产物,其含量是氧化应激的重要指标,反映ROS造成的损害[22]。Wang等[23]研究发现,母猪妊娠期饲粮中添加1.5%菊粉会显著提高母体和后代的抗氧化能力,并改善新生仔猪的均匀度。而在本研究中,BP组新生仔猪血清CAT活性和T-AOC显著高于其他组,表明整体抗氧化能力增强。尽管本研究未直接测定母猪血液或初乳中的抗氧化指标,但在母猪的前期研究发现,BP组妊娠母猪粪便中克里斯滕森菌科相对丰度提高,有利于SCFAs生成,且初乳中促炎因子IL-6含量较低[9]。SCFAs不仅能作为信号分子调节宿主免疫,还能通过诱导内源性抗氧化酶的表达来增强细胞的抗氧化应激能力[24]。因此,甜菜粕改善后代抗氧化能力的效应,可能与母体摄入纤维后,通过上述“微生物-SCFAs轴”优化了母体代谢和免疫状态,并经由胎盘或初乳间接“编程”了后代的抗氧化防御系统有关。

3.4 荣昌母猪饲粮不同来源纤维对新生仔猪免疫功能的影响

新生仔猪免疫系统发育尚不完善[25]。本研究显示,母体饲粮纤维来源虽然没有影响后代血清炎症因子含量,但显著且特异性调控了免疫器官和肠道组织中炎症相关基因的表达。胸腺、脾脏、肝脏和肠道是重要的免疫相关器官和场所[26]。NF-κB是调控炎症反应的核心转录因子,当细胞通过TLR4等受体识别病原信号后,可经由MyD88等衔接蛋白转导信号,触发NF-κB的活化,进而诱导IL-6、TNF-α等炎症因子的表达,形成炎症级联反应[27-28]。膳食纤维的主要发酵产物SCFAs是此过程的重要调节者。SCFAs通过结合G蛋白偶联受体(GRP,如GPR41、GPR43)和抑制组蛋白去乙酰化酶活性,能够抑制NF-κB信号通路,并促进抗炎因子如IL-10的表达,从而抑制炎症反应[29]。本研究中,BP组新生仔猪胸腺、空肠和回肠中IL-10相对表达量上调,而胸腺和十二指肠中NF-κB表达受到抑制,反映出甜菜粕可能通过促进抗炎因子表达、抑制促炎信号通路,引导免疫状态向抗炎方向转变。IL-10对NF-κB活性的抑制已有研究证实[30]。研究发现,可溶性纤维比例较高的饲粮可通过降低仔猪血浆TNF-α含量和肝脏NF-κB mRNA相对表达量,减轻后代炎症反应[12]。本课题组前期研究发现,BP组荣昌妊娠母猪血清炎症水平较低,初乳中IL-6含量低于其他组[(69.09±2.46) pg/mL vs. (81.42±12.10) pg/mL~(133.3±31.44) pg/mL][9],进一步说明母体摄入甜菜粕可能通过调节自身肠道发酵与免疫状态,影响初乳成分,进而促进后代免疫组织向抗炎表型偏移,其中IL-10对NF-κB信号通路的抑制可能是潜在机制之一。此外,SH组新生仔猪脾脏MyD88和十二指肠NF-κB相对表达量上调,这意味着新生仔猪可能处于炎症状态,同时脾脏、空肠和回肠IL-10相对表达量也显著高于WB组。同时,在前期研究中SH组母猪妊娠期血清和初乳IL-6含量显著升高[9],说明母体轻度炎症状态可能通过初乳炎症因子影响其后代免疫相关基因表达,进而导致促炎信号通路激活。而WB组新生仔猪在多个组织中维持较低的促炎基因表达,维持免疫稳态。

4 结论

本研究结果表明,荣昌母猪妊娠中后期饲粮不同来源纤维能特异性调控后代抗氧化状态和先天免疫,其中甜菜粕能改善新生仔猪肠道形态、增强抗氧化能力并伴随IL-10表达上调和NF-κB表达受抑的趋势,提高抗炎能力;而麦麸则表现出一定的抗炎调节潜力。因此,在荣昌母猪妊娠期饲粮中优先考虑甜菜粕或麦麸作为纤维来源,有助于提高后代肠道健康和免疫功能,同时改善抗氧化状态。
[1]
DE ALKMIM T C C, DE ALMEIDA J M, SHINKAWA A L, et al. PSVI-17 morphological alterations on the duodenum and skeletal muscle of the offspring of sows supplemented with FLAVORAD RP® during gestation[J]. Journal of Animal Science, 2025, 103(Suppl.1):317-318.

[2]
GONG H Z, WANG T P, WU M, et al. Maternal effects drive intestinal development beginning in the embryonic period on the basis of maternal immune and microbial transfer in chickens[J]. Microbiome, 2023, 11(1):41.

DOI PMID

[3]
THROAT S, BHATTACHARYA S. The role of RS type 2 (high-amylose maize starch) in the inhibition of colon cancer:a comprehensive review of short-chain fatty acid (SCFA) production and anticancer mechanisms[J]. Molecular Nutrition & Food Research, 2025, 69(18):e70107.

[4]
唐超群, 卜子文, 付世伟. 荣昌猪和杜洛克猪肉质及营养价值的比较分析[J]. 中国畜牧兽医文摘, 2016, 32(7):52.

TANG C Q, BU Z W, FU S W. Comparative analysis of meat quality and nutritional value between Rongchang and Duroc pigs[J]. China Animal Husbandry and Veterinary Digest, 2016, 32(7):52. (in Chinese)

[5]
LIU B S, ZHU X Y, CUI Y L, et al. Consumption of dietary fiber from different sources during pregnancy alters sow gut microbiota and improves performance and reduces inflammation in sows and piglets[J]. mSystems, 2021, 6(1):e00591-20.

[6]
FENG X M, CHEN H, LIANG Y R, et al. Effects of electron beam irradiation treatment on the structural and functional properties of okara insoluble dietary fiber[J]. Journal of the Science of Food and Agriculture, 2023, 103(1):195-204.

DOI

[7]
YAN C L, KIM H S, HONG J S, et al. Effect of dietary sugar beet pulp supplementation on growth performance,nutrient digestibility,fecal microflora,blood profiles and diarrhea incidence in weaning pigs[J]. Journal of Animal Science and Technology, 2017, 59(1):18.

DOI

[8]
SHANG Q H, LIU S J, LIU H S, et al. Impact of sugar beet pulp and wheat bran on serum biochemical profile,inflammatory responses and gut microbiota in sows during late gestation and lactation[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):54.

DOI

[9]
秦锋. 妊娠中后期纤维来源对荣昌母猪繁殖性能、肠道微生物菌群和后代肠道健康的影响[D].硕士学位论文. 雅安: 四川农业大学, 2025.

QIN F. Effects of fiber source during mid-late gestation on reproductive performance, gut microbiota of Rongchang sows and offspring intestinal health[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2025. (in Chinese)

[10]
CHEN H, CHEN D W, QIN W, et al. Wheat bran components modulate intestinal bacteria and gene expression of barrier function relevant proteins in a piglet model[J]. International Journal of Food Sciences and Nutrition, 2017, 68(1):65-72.

DOI PMID

[11]
SCHANK N, COTTONE A, WULF M, et al. The role of short-chain fatty acids (SCFAs) in colic and anti-inflammatory pathways in horses[J]. Animals, 2025, 15(23):3482.

DOI

[12]
CHENG C S, WEI H K, XU C H, et al. Maternal soluble fiber diet during pregnancy changes the intestinal microbiota,improves growth performance,and reduces intestinal permeability in piglets[J]. Applied and Environmental Microbiology, 2018, 84(17):e01047-18.

[13]
LI Y, LIU H Y, ZHANG L J, et al. Maternal dietary fiber composition during gestation induces changes in offspring antioxidative capacity,inflammatory response,and gut microbiota in a sow model[J]. International Journal of Molecular Sciences, 2019, 21(1):31.

DOI

[14]
HU X H, YUAN X Y, ZHANG G K, et al. The intestinal epithelial-macrophage-crypt stem cell axis plays a crucial role in regulating and maintaining intestinal homeostasis[J]. Life Sciences, 2024, 344:122452.

DOI

[15]
XUN W J, FU Q Y, SHI L G, et al. Resveratrol protects intestinal integrity,alleviates intestinal inflammation and oxidative stress by modulating AhR/Nrf2 pathways in weaned piglets challenged with diquat[J]. International Immunopharmacology, 2021, 99:107989.

DOI

[16]
SHANG Q H, LIU S J, LIU H S, et al. Maternal supplementation with a combination of wheat bran and sugar beet pulp during late gestation and lactation improves growth and intestinal functions in piglets[J]. Food & Function, 2021, 12(16):7329-7342.

[17]
NIREEKSHAT, MANIANGAT LUKE A, KUMARI N S, et al. Metabolic interplay of SCFA’s in the gut and oral microbiome:a link to health and disease[J]. Frontiers in Oral Health, 2025, 6:1646382.

DOI

[18]
QIN X Y, ZHANG M, CHEN S T, et al. Short-chain fatty acids in fetal development and metabolism[J]. Trends in Molecular Medicine, 2025, 31(7):625-639.

DOI

[19]
BLACK H S. A synopsis of the associations of oxidative stress,ROS,and antioxidants with diabetes mellitus[J]. Antioxidants, 2022, 11(10):2003.

DOI

[20]
XU X J, CHEN X L, HUANG Z Q, et al. Effects of dietary apple polyphenols supplementation on hepatic fat deposition and antioxidant capacity in finishing pigs[J]. Animals, 2019, 9(11):937.

DOI

[21]
TANG M H, FANG R J, XUE J J, et al. Effects of catalase on growth performance,antioxidant capacity,intestinal morphology,and microbial composition in yellow broilers[J]. Frontiers in Veterinary Science, 2022, 9:802051.

DOI

[22]
MOHAN S, JACOB J, MALINI N A, et al. Biochemical responses and antioxidant defense mechanisms in Channa striatus exposed to bisphenol S[J]. Journal of Biochemical and Molecular Toxicology, 2024, 38(2):e23651.

DOI

[23]
WANG Y S, ZHOU P, LIU H, et al. Effects of inulin supplementation in low- or high-fat diets on reproductive performance of sows and antioxidant defence capacity in sows and offspring[J]. Reproduction in Domestic Animals, 2016, 51(4):492-500.

DOI PMID

[24]
PU D, JIN Y, WANG L X, et al. Combined supplementation of short-chain fatty acids reduces hyperphosphorylation of Tau at T181,T231 and S396 sites and improves cognitive impairment in a chemically induced AD mouse model via regulation of HDAC and keap1[J]. Neurochemistry International, 2025, 189:106034.

DOI

[25]
颜川. 不同来源纤维或油脂添加对母猪繁殖性能及后代免疫功能的影响[D].硕士学位论文. 雅安: 四川农业大学, 2016.

YAN C. The effect of different source of fiber or addition of soy oil on sow reproductive performance and immune function of offspring[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2016. (in Chinese)

[26]
RIBEIRO C, FERREIRINHA P, LANDRY J J M, et al. Foxo3 regulates cortical and medullary thymic epithelial cell homeostasis with implications in T cell development[J]. Cell Death & Disease, 2024, 15(5):352.

[27]
BARNABEI L, LAPLANTINE E, MBONGO W, et al. NF-κB:at the borders of autoimmunity and inflammation[J]. Frontiers in Immunology, 2021, 12:716469.

DOI

[28]
单佳铃, 程虹毓, 文乐, 等. TLR/MYD88/NF-κB信号通路参与不同疾病作用机制研究进展[J]. 中国药理学通报, 2019, 35(4):451-455.

SHAN J L, CHENG H Y, WEN L, et al. Advances in research of TLR/MYD88/NF-κB signaling pathway in different diseases[J]. Chinese Pharmacological Bulletin, 2019, 35(4):451-455. (in Chinese)

[29]
HAN X B, MA Y, DING S J, et al. Regulation of dietary fiber on intestinal microorganisms and its effects on animal health[J]. Animal Nutrition, 2023, 14:356-369.

DOI PMID

[30]
MISHRA B, BACHU M, YUAN R X, et al. IL-10 targets IRF transcription factors to suppress IFN and inflammatory response genes by epigenetic mechanisms[J]. Nature Immunology, 2025, 26(5):748-759.

DOI

文章导航

/