研究论文

乙醇梭菌蛋白替代豆粕对蛋鸡生产性能、蛋品质、血清指标和肠道健康的影响

  • 姚婷 , 1 ,
  • 曹林 1, * ,
  • 娄迎霞 1 ,
  • 李征 1 ,
  • 李重阳 2 ,
  • 冯秀燕 1 ,
  • 贾涛 1 ,
  • 耿仕夏 2 ,
  • 张淼 2 ,
  • 李月 1 ,
  • 李小龙 1 ,
  • 王继彤 , 1, **
展开
  • 1 北京市兽药饲料监测中心, 北京 102200
  • 2 北京首朗生物科技有限公司, 北京 100041
** 王继彤,高级畜牧师,E-mail:

*同等贡献作者

姚 婷(1990—),女,山西洪洞人,高级畜牧师,博士,从事饲料质量安全和饲料新产品研究。E-mail:

Office editor: 田艳明

收稿日期: 2025-11-09

  网络出版日期: 2026-06-13

基金资助

北京市乡村振兴农业科技项目(NY2501140125)

Effects of Clostridium autoethanogenum Protein Replacing Soybean Meal on Performance, Egg Quality, Serum Indices and Intestinal Health of Laying Hens

  • YAO Ting , 1 ,
  • CAO Lin 1 ,
  • LOU Yingxia 1 ,
  • LI Zheng 1 ,
  • LI Chongyang 2 ,
  • FENG Xiuyan 1 ,
  • JIA Tao 1 ,
  • GENG Shixia 2 ,
  • ZHANG Miao 2 ,
  • LI Yue 1 ,
  • LI Xiaolong 1 ,
  • WANG Jitong , 1, **
Expand
  • 1 Beijing Veterinary Drug and Feed Monitoring Center, Beijing 102200, China
  • 2 Beijing Shoulang Biotechnology Co., Ltd., Beijing 100041, China
** senior livestock specialist, E-mail:

*Contributed equally

Received date: 2025-11-09

  Online published: 2026-06-13

摘要

本试验旨在研究饲粮中添加乙醇梭菌蛋白(CAP)替代豆粕对蛋鸡生产性能、蛋品质、血清指标和肠道健康的影响。试验选择240只产蛋率相近的47周龄海兰褐蛋鸡,随机分为2组,每组10个重复,每个重复12只鸡。对照组饲喂玉米-豆粕型基础饲粮,试验组饲粮中添加3% CAP并降低豆粕比例。预试期7 d,正试期63 d。结果表明:1)与对照组相比,试验组产蛋率显著提高(P<0.05),料蛋比显著降低(P<0.05)。2)与对照组相比,试验组蛋白高度显著提高(P<0.05),哈氏单位显著降低(P<0.05)。3)与对照组相比,试验组血清白蛋白含量极显著降低(P<0.01),血清甘油三酯和总胆固醇含量极显著提高(P<0.01),血清总蛋白含量无显著差异(P>0.05);血清丙二醛含量以及过氧化氢酶、谷胱甘肽过氧化物酶、超氧化物歧化酶活性和总抗氧化能力均极显著提高(P<0.01);血清肿瘤坏死因子-α、白细胞介素-1β和白细胞介素-6含量极显著提高(P<0.01),血清白细胞介素-10含量极显著降低(P<0.01)。4)与对照组相比,试验组空肠免疫球蛋白A、免疫球蛋白G、免疫球蛋白M和分泌型免疫球蛋白A含量均极显著提高(P<0.01);十二指肠隐窝深度显著降低(P<0.05),空肠绒毛高度和绒隐比显著提高(P<0.05)。5)与对照组相比,试验组盲肠微生物群落Chao1指数和Shannon指数显著降低(P<0.05),菌群结构发生变化,但稳定性和功能预测无明显差异。综上所述,饲粮中添加3% CAP替代豆粕可提高蛋鸡生产性能和蛋白高度,同时还可提高抗氧化能力和免疫功能,并通过改善肠道组织形态和盲肠微生物群落结构促进肠道健康。

本文引用格式

姚婷 , 曹林 , 娄迎霞 , 李征 , 李重阳 , 冯秀燕 , 贾涛 , 耿仕夏 , 张淼 , 李月 , 李小龙 , 王继彤 . 乙醇梭菌蛋白替代豆粕对蛋鸡生产性能、蛋品质、血清指标和肠道健康的影响[J]. 动物营养学报, 2026 , 38(6) : 4174 -4187 . DOI: 10.12418/CJAN2026.335

Abstract

This experiment was conducted to investigate the effects of dietary Clostridium autoethanogenum protein (CAP) replacing soybean meal on performance, egg quality, serum indices and intestinal health of laying hens. A total of 240 Hy-Line brown laying hens with similar laying rate of 47-week-old were selected and randomly divided into 2 groups, with 10 replicates in each group and 12 hens in each replicate. The control group was fed a corn-soybean meal type basal diet, while the experimental group was fed a diet in which 3% CAP was supplemented and the proportion of soybean meal was reduced. The pre-test period was 7 days and the formal test period was 63 days. The results showed as follows: 1) compared with the control group, the laying rate in the experimental group was significantly increased (P<0.05), and the feed to egg ratio was significantly decreased (P<0.05). 2) Compared with the control group, the albumen height in the experimental group was significantly increased (P<0.05), and the Haugh unit was significantly decreased (P<0.05). 3) Compared with the control group, the serum albumin content in the experimental group was extremely significantly decreased (P<0.01), the serum contents of triglyceride and total cholesterol were extremely significantly increased (P<0.01), and there was no significant difference in the serum total protein content (P>0.05); the serum malondialdehyde content, the activities of catalase, glutathione peroxidase and superoxide dismutase as well as the total antioxidant capacity were all extremely significantly increased (P<0.01); the serum contents of tumor necrosis factor-α, interleukin-1β and interleukin-6 were extremely significantly increased (P<0.01), while the serum interleukin-10 content was extremely significantly decreased (P<0.01). 4) Compared with the control group, the jejunal contents of immunoglobulin A, immunoglobulin G, immunoglobulin M and secretory immunoglobulin A in the experimental group were all extremely significantly increased (P<0.01); the duodenal crypt depth was significantly decreased (P<0.05), while the jejunal villus height and the ratio of villus height to crypt depth was significantly increased (P<0.05). 5) Compared with the control group, the Chao1 index and Shannon index of cecal microbiota in the experimental group were significantly decreased (P<0.05), and the microbiota structure was changed, but there was no significant difference in stability and functional prediction. In conclusion, dietary CAP replacing soybean meal can increase the performance and albumen height of laying hens, improve the antioxidant capacity and immune function, and promote intestinal health by improving intestinal tissue morphology and cecal microbiota structure.

豆粕作为畜禽饲粮中最为重要的植物性蛋白质原料,其氨基酸组成相对均衡,适口性好,在我国蛋鸡养殖业中应用广泛[1]。然而,近年来豆粕价格波动加剧,并过度依赖进口,冲击着我国畜牧业发展并威胁粮食安全。因此,我国逐渐开展并深入推进“豆粕减量替代”工作,寻求来源稳定、营养高效且经济环保的非常规蛋白质饲料资源,已成为保障我国畜牧饲料产业可持续发展的迫切需求[2]
在众多潜在的替代蛋白质中,乙醇梭菌蛋白(Clostridium autoethanogenum protein,CAP)作为一种由一氧化碳、二氧化碳等无机碳源经乙醇梭菌发酵转化而成的新型单细胞蛋白,展现出巨大潜力。该产品粗蛋白质含量可达80%以上,且氨基酸模式均衡,尤其富含赖氨酸、蛋氨酸等限制性氨基酸,并且其生产过程不占用耕地资源,受自然条件影响小,是可持续性环保型饲用资源[3-4]。相关研究已证实,CAP在猪、肉鸡及水产动物饲粮中替代豆粕具有可行性:姚康[5]研究表明,在断奶仔猪饲粮中添加CAP(1%~4%)可有效提高断奶仔猪平均日增重和末重,其中4%添加组还可显著降低料重比和腹泻率;Wu等[6]研究表明,在肉鸡饲粮中添加4% CAP可提高生长性能和抗氧化能力,降低脂肪沉积;严秋信等[7]研究表明,使用CAP替代豆粕对合方鳊幼鱼存活率和生长性能未产生显著影响,当替代比例为30%时可提高肌肉中必需氨基酸含量,但替代比例过高(超过50%)会导致肝脏氧化损伤并抑制肌肉蛋白质合成。
不过,目前关于CAP的研究多集中于生长型动物(如猪和肉鸡),其对于营养物质需求精准且生产周期长的蛋鸡,其系统性的研究尚显不足。因此,本试验旨在探究在蛋鸡饲粮中添加3% CAP替代豆粕对蛋鸡生产性能、蛋品质、血清指标和肠道健康的影响,以期明确其在蛋鸡饲粮中的应用效果,为CAP作为优质非常规蛋白质源在蛋鸡养殖中的科学应用提供参考。

1 材料与方法

1.1 试验材料

CAP由北京某有限公司提供,其营养成分含量见表1
表1 CAP营养成分含量(风干基础)

Table 1 Nutrient contents of CAP (air-dry basis) %

项目 Items 含量 Content
表观代谢能 AME/(MJ/kg) 17.20
粗蛋白质 CP 82.57
粗脂肪 EE 0.90
粗纤维 CF 0.10
粗灰分 Ash 4.62
赖氨酸 Lys 9.87
蛋氨酸 Met 2.15
苏氨酸 Thr 4.58
钙 Ca 0.29
总磷 TP 0.31

营养成分含量为实测值。

Nutrient contents were measured values.

1.2 试验设计

本试验获中国农业科学院饲料研究所动物伦理委员会批准,批准编号:IFR CAAS20250710。试验选择240只产蛋率[(85±3)%]相近的47周龄海兰褐蛋鸡,随机分为2组,每组10个重复,每个重复12只鸡。对照组饲喂玉米-豆粕型基础饲粮,试验组饲粮中添加3% CAP并降低豆粕比例。饲粮营养水平参照NRC(1994)和《鸡饲养标准》(NY/T 33—2004),其组成及营养水平见表2。预试期7 d,正试期63 d。
表2 饲粮组成及营养水平(风干基础)

Table 2 Composition and nutrient levels of diets (air-dry basis) %

项目
Items
对照组
Control
group
试验组
Experimental
group
原料 Ingredients
玉米 Corn 62.22 66.40
豆粕 Soybean meal 23.27 17.75
乙醇梭菌蛋白 CAP 3.00
大豆油 Soybean oil 2.33 1.00
赖氨酸 Lys 0.23
DL-蛋氨酸 DL-Met 0.19 0.15
苏氨酸 Thr 0.06
石粉 Limestone 9.00 9.00
食盐 NaCl 0.20 0.20
预混料 Premix1) 2.50 2.50
合计 Total 100.00 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 11.59 11.55
粗蛋白质 CP 16.58 16.53
粗脂肪 EE 5.07 3.43
粗纤维 CF 2.99 2.77
赖氨酸 Lys 1.03 1.01
蛋氨酸 Met 0.42 0.42
苏氨酸 Thr 0.64 0.64
钙 Ca 3.33 3.32
总磷 TP 0.51 0.52
有效磷 AP 0.30 0.31

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 9 200 IU,VD3 3 450 IU,VE 25 IU,VB1 2.4 mg,VB2 4.6 mg,VB6 4.25 mg,VB12 0.038 mg,生物素 biotin 0.18 mg,D-泛酸 D-pantothenic acid 12 mg,Cu (as copper sulfate) 12 mg,Fe (as ferrous sulfate) 100 mg,Mn (as manganese sulfate) 120 mg,Zn (as zinc sulfate) 105 mg,I (as potassium iodide) 0.15 mg,Se (as sodium selenite) 0.32 mg,CaHPO4 9.0 g。
2)粗蛋白质、粗脂肪、粗纤维、钙和总磷均为实测值,其他营养水平参考表1数据和《中国饲料成分及营养价值表(2020年31版)》计算得出。CP, EE, CF, Ca and TP were measured values, while the other nutrient levels were calculated values based on data in Table 1 and Tables of Feed Composition and Nutritive Values in China (31st ed, 2020).

1.3 饲养管理

试验采用封闭式鸡舍3层阶梯式笼养,每笼3只鸡。根据鸡场常规方法进行饲养管理,鸡舍采用自动控制人工光照,光照程序为16 h明∶8 h暗,光照强度为20 lx;室温(25±5) ℃,相对湿度40%~70%。试验鸡自由采食,每天08:00和14:00各喂料1次,匀料4次;采用乳头式饮水器,自由饮水;每周带鸡消毒和清理鸡粪1次。

1.4 检测指标

1.4.1 饲粮营养成分含量

饲粮粗蛋白质、粗脂肪、粗纤维、钙和总磷含量分别参考GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 6436—2018和GB/T 6437—2018中方法进行测定。

1.4.2 生产性能

试验期间以重复为单位,每日记录采食量、产蛋数、破损蛋(破、畸、碎、软、无壳)数、淘汰与死亡鸡只数、死亡时间及体(尸)重,并计算试验期间平均日采食量、平均蛋重、料蛋比、产蛋率和破蛋率。

1.4.3 蛋品质

分别于正试期第5周和第8周末,从每个重复随机选取10枚蛋进行蛋品质测定(24 h内测完),采用全自动蛋品质分析仪(ETP-01,ORKA,以色列)测定蛋黄颜色、蛋白高度、蛋壳厚度和哈氏单位,采用蛋壳强度测定仪(EFR-01,ORKA,以色列)测定蛋壳强度。

1.4.4 血清生化和抗氧化指标

饲养试验结束时,从各个重复随机选取1只鸡,颈静脉采血于离心管中,1 800×g离心10 min后分离血清,于-80 ℃保存待测。采用全自动生化分析仪(ZY-1280,上海科华生物工程股份有限公司)测定血清总蛋白(TP)、白蛋白(ALB)、甘油三酯(TG)和总胆固醇(TC)含量,并采用试剂盒(南京建成生物工程研究所)测定血清丙二醛(MDA)含量以及过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)、超氧化物歧化酶(SOD)活性和总抗氧化能力(T-AOC)。

1.4.5 免疫指标

试验鸡采血后屠宰,分离空肠组织。采用酶联免疫吸附试验(ELISA)法测定血清肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)和白细胞介素-10(IL-10)含量以及空肠黏膜免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)和分泌型免疫球蛋白A(sIgA)含量,检测方法参考试剂盒(南京建成生物工程研究所)说明书进行。

1.4.6 肠道组织形态

试验鸡采血后屠宰,分离十二指肠、空肠和回肠,各取其中部1 cm左右样品,用4%多聚甲醛固定,经脱水、浸蜡、包埋、切片和苏木精-伊红染色等处理后,在显微镜下进行扫描观察。采用Image-Pro Plus软件对肠道绒毛高度和隐窝深度进行测量,并计算绒隐比(绒毛高度/隐窝深度值)。

1.4.7 盲肠微生物区系

试验鸡采血后屠宰,取盲肠内容物,采用PowerSoil DNA试剂盒(MoBio Laboratories,美国)提取微生物总DNA,并采用0.8%琼脂糖凝胶检查基因组DNA的纯度和质量。细菌16S rRNA基因V3~V4高变区扩增引物为338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTCATAT-3')。PCR扩增在Applied Biosystems GeneAmp PCR system 9700上完成,每个样品设3个重复。反应体系为50 μL,包括5 μL 10×Ex Taq Buffer,4 μL 12.5 mmol/L dNTP Mix,1.25 μL Ex Taq DNA聚合酶,2 μL DNA,上、下游引物各0.5 μL,36.75 μL ddH2O。扩增参数为94 ℃预变性2 min;94 ℃ 30 s,57 ℃ 30 s,72 ℃ 30 s,30个循环;72 ℃延伸10 min。扩增产物采用QIAquick凝胶提取试剂盒(QIAGEN,德国)纯化后在MiSeq平台(Auwigene,北京奥维森基因科技有限公司)上进行测序。
测序数据经质控、拼接和去嵌合体后,按97%序列相似性进行操作分类单元(OTU)聚类,并基于SILVA数据库进行物种注释。群落多样性采用α多样性指数(包括Chao1指数和Shannon指数)进行分析;菌属数量根据属水平物种注释结果进行统计;群落组成通过各分类水平物种相对丰度分析进行评价;群落稳定性采用β多样性分析,并结合主坐标分析(PCoA)进行表征。上述指标测定及分析均由上海美吉生物医药科技有限公司完成。

1.5 数据统计分析

试验数据采用SPSS 26软件进行t检验,结果数据以“平均值±标准差”形式表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 CAP替代豆粕对蛋鸡生产性能的影响

表3可知,与对照组相比,试验组蛋鸡产蛋率显著提高(P<0.05),料蛋比显著降低(P<0.05),平均日采食量、平均蛋重和破蛋率无显著差异(P>0.05)。
表3 CAP替代豆粕对蛋鸡生产性能的影响

Table 3 Effects of CAP replacing soybean meal on performance of laying hens

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
平均日采食量 Average daily feed intake/(g/d) 123.68±2.02 122.40±4.71 0.303
平均蛋重 Average egg weight/g 64.06±0.79 66.08±2.28 0.051
料蛋比 Feed to egg ratio 2.33±0.13a 2.18±0.12b 0.043
产蛋率 Laying rate/% 80.72±4.52b 89.99±5.12a 0.026
破蛋率 Broken egg rate/% 2.26±1.67 2.69±1.41 0.749

同行数据肩标不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 CAP替代豆粕对蛋鸡蛋品质的影响

表4可知,与对照组相比,试验组鸡蛋蛋白高度显著提高(P<0.05),哈氏单位显著降低(P<0.05),蛋黄颜色、蛋壳强度和蛋壳厚度无显著差异(P>0.05)。
表4 CAP替代豆粕对蛋鸡蛋品质的影响

Table 4 Effects of CAP replacing soybean meal on egg quality of laying hens

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
蛋黄颜色 Yolk color 8.15±0.69 8.83±0.83 0.170
蛋白高度 Albumen height/mm 6.35±0.56b 6.53±0.97a 0.033
蛋壳强度 Eggshell strength/(kg/cm2) 4.52±0.62 4.17±0.91 0.579
蛋壳厚度 Eggshell thickness/mm 0.34±0.03 0.36±0.03 0.582
哈氏单位 Haugh unit 77.61±4.64a 75.66±9.45b 0.017

2.3 CAP替代豆粕对蛋鸡血清指标的影响

2.3.1 血清生化指标

表5可知,与对照组相比,试验组蛋鸡血清ALB含量极显著降低(P<0.01),血清TG和TC含量极显著提高(P<0.01),血清TP含量无显著差异(P>0.05)。
表5 CAP替代豆粕对蛋鸡血清生化指标的影响

Table 5 Effects of CAP replacing soybean meal on serum biochemical indices of laying hens

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
总蛋白 TP/(g/L) 29.27±1.56 28.31±2.65 0.340
白蛋白 ALB/(g/L) 15.40±1.63A 9.04±2.90B 0.001
甘油三酯 TG/(mmol/L) 1.32±0.21B 1.82±0.26A <0.001
总胆固醇 TC/(mmol/L) 7.42±1.24B 11.66±1.40A <0.001

2.3.2 血清抗氧化指标

表6可知,与对照组相比,试验组蛋鸡血清MDA含量以及CAT、GSH-Px、SOD活性和T-AOC均极显著提高(P<0.01)。
表6 CAP替代豆粕对蛋鸡血清抗氧化指标的影响

Table 6 Effects of CAP replacing soybean meal on serum antioxidant indices of laying hens

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
丙二醛 MDA/(nmol/mL) 22.27±5.59B 35.32±4.63A <0.001
过氧化氢酶 CAT/(U/mL) 3.84±0.20B 4.30±0.22A <0.001
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 272.94±11.63B 300.83±9.53A <0.001
超氧化物歧化酶 SOD/(U/mL) 45.84±11.18B 85.40±28.62A 0.001
总抗氧化能力 T-AOC/(mmol/L) 1.94±0.08B 2.08±0.07A <0.001

2.3.3 血清免疫指标

表7可知,与对照组相比,试验组蛋鸡血清TNF-α、IL-1β和IL-6含量极显著提高(P<0.01),血清IL-10含量极显著降低(P<0.01)。
表7 CAP替代豆粕对蛋鸡血清免疫指标的影响

Table 7 Effects of CAP replacing soybean meal on serum immune indices of laying henspg/mL

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
肿瘤坏死因子-α TNF-α 45.78±7.53B 63.80±6.56A <0.001
白细胞介素-1β IL-1β 373.66±55.59B 566.57±49.59A <0.001
白细胞介素-6 IL-6 21.29±2.29B 27.85±2.00A <0.001
白细胞介素-10 IL-10 68.88±7.38A 55.55±5.33B <0.001

2.4 CAP替代豆粕对蛋鸡空肠免疫指标和肠道组织形态的影响

2.4.1 空肠免疫指标

表8可知,与对照组相比,试验组蛋鸡空肠IgA、IgG、IgM和sIgA含量均极显著提高(P<0.01)。
表8 CAP替代豆粕对蛋鸡空肠免疫指标的影响

Table 8 Effects of CAP replacing soybean meal on jejunal immune indices of laying hens

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
免疫球蛋白A IgA/(μg/mL) 83.08±32.04B 153.62±32.60A <0.001
免疫球蛋白G IgG/(μg/mL) 773.16±180.53B 1 302.00±216.32A <0.001
免疫球蛋白M IgM/(μg/mL) 364.48±47.61B 595.87±62.95A <0.001
分泌型免疫球蛋白A sIgA/(ng/mL) 524.15±210.94B 1 206.47±258.54A <0.001

2.4.2 肠道组织形态

表9可知,与对照组相比,在蛋鸡十二指肠段,试验组隐窝深度显著降低(P<0.05),绒毛高度和绒隐比有所提高,但差异不显著(P>0.05);在空肠段,试验组绒毛高度极显著提高(P<0.01),绒隐比显著提高(P<0.05),隐窝深度无显著差异(P>0.05);在回肠段,试验组绒毛高度和绒隐比有所提高,隐窝深度有所降低,但均无显著差异(P>0.05)。
表9 CAP替代豆粕对蛋鸡肠道组织形态的影响

Table 9 Effects of CAP replacing soybean meal on intestinal tissue morphology of laying hens

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value


十二指肠
Duodenum
绒毛高度 Villous height/μm 1 398.38±43.60 1 435.46±115.32 0.630
隐窝深度 Crypt depth/μm 238.43±2.69a 227.54±3.70b 0.015
绒隐比 V/C 5.87±0.15 6.32±0.58 0.260


空肠
Jejunum
绒毛高度 Villous height/μm 1 186.13±119.52B 1 446.20±52.47A 0.007
隐窝深度 Crypt depth/μm 210.60±2.02 214.20±8.48 0.440
绒隐比 V/C 5.64±0.51b 6.76±0.08a 0.020


回肠
Ileum
绒毛高度 Villous height/μm 978.30±68.59 1 055.59±86.54 0.292
隐窝深度 Crypt depth/μm 168.17±4.93 165.11±6.63 0.556
绒隐比 V/C 5.82±0.41 6.41±0.52 0.203

2.5 CAP替代豆粕对蛋鸡盲肠微生物区系的影响

2.5.1 盲肠微生物群落多样性和菌属数量
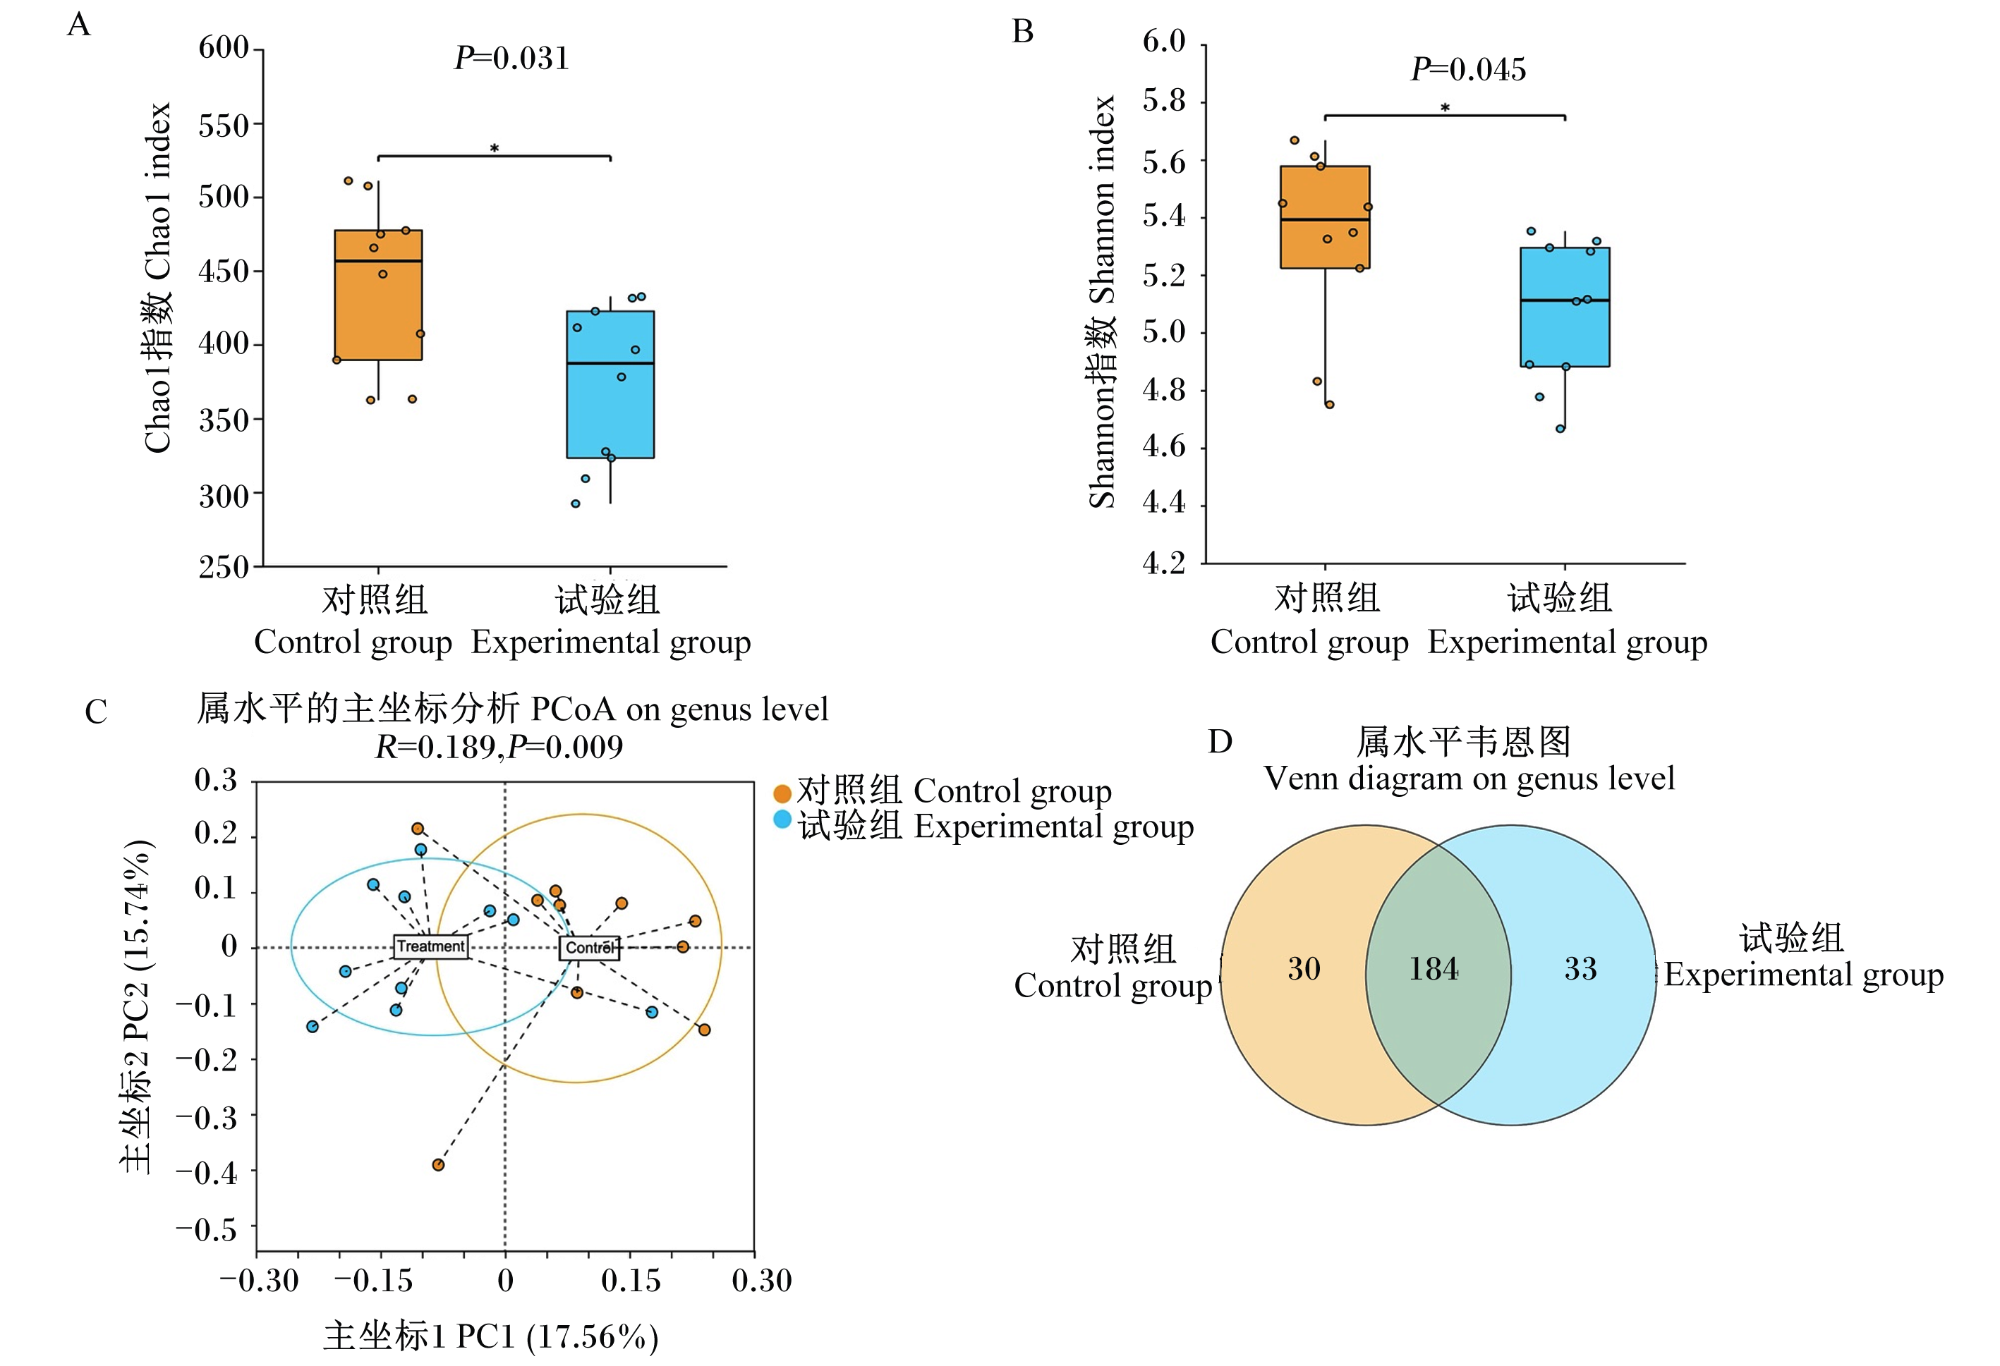
图1-A图1-B所示,α多样性分析结果显示,与对照组相比,试验组蛋鸡盲肠微生物群落Chao1指数和Shannon指数显著降低(P<0.05),表明饲粮中添加3% CAP替代豆粕降低了盲肠微生物群落物种丰富度和多样性。如图1-C所示,β多样性PCoA结果显示,2组间盲肠微生物群落样本极显著分离(P<0.01),表明饲粮中添加3% CAP替代豆粕改变了盲肠微生物群落整体结构。如图1-D所示,属水平韦恩图结果显示,2组盲肠微生物群落共有184个菌属,其中对照组和试验组分别独有30和33个菌属。
图1 CAP替代豆粕对蛋鸡盲肠微生物群落多样性和菌属数量的影响

*表示差异显著(P<0.05)。Control:对照组;Treatment:试验组。

Fig.1 Effects of CAP replacing soybean meal on diversity and genus number in cecal microbiota of laying hens

* indicated significant difference (P<0.05). Control: control group; Treatment: experimental group.

2.5.2 盲肠微生物群落组成

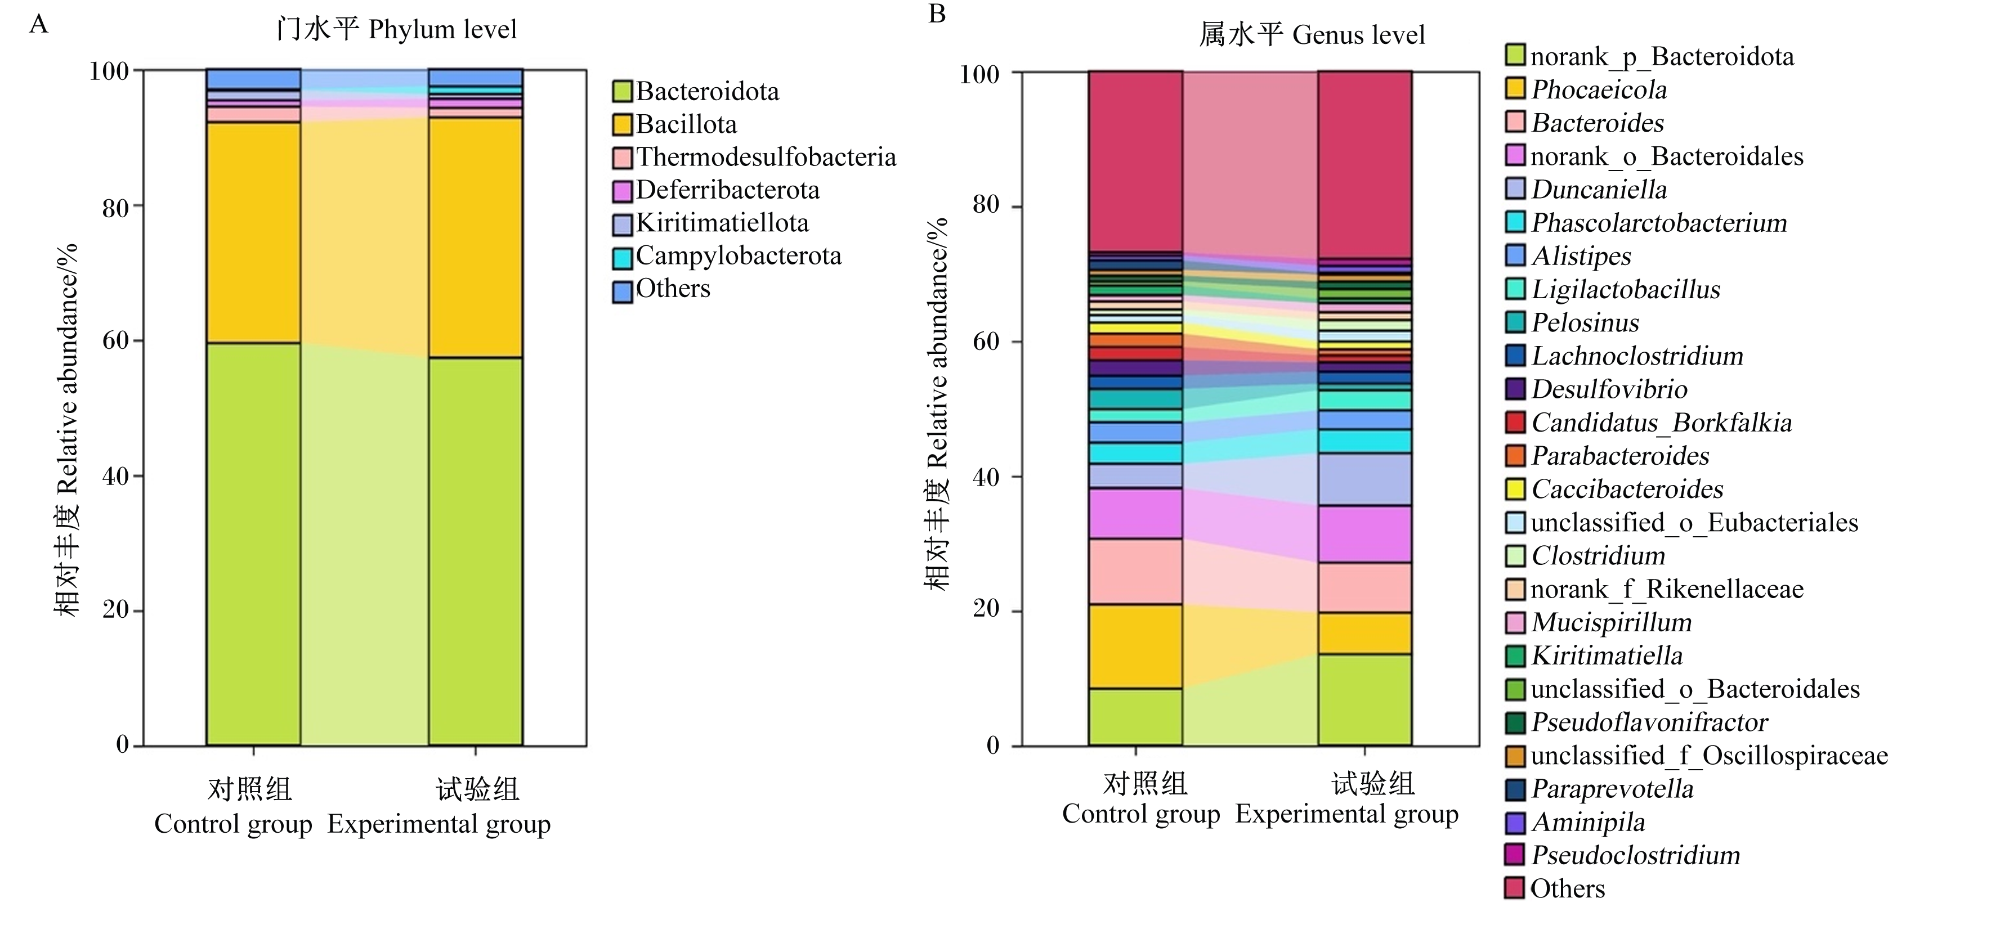
图2-A图2-B所示,在门水平上,无论是对照组还是试验组,蛋鸡盲肠微生物群落均主要由芽孢杆菌门(Bacillota)和拟杆菌门(Bacteroidota)构成,两者共同占据了群落的绝对主导地位;在属水平上,群落构成较为复杂,但主要由未定级拟杆菌门(norank_p_Bacteroidota)、Phocaeicola、拟杆菌属(Bacteroides)、未定级拟杆菌目(norank_o_Bacteroidales)和邓肯氏菌属(Duncaniella)等组成。
图2 CAP替代豆粕对蛋鸡盲肠微生物群落组成的影响

Bacteroidota:拟杆菌门;Bacillota:芽孢杆菌门;Thermodesulfobacteria:热脱硫杆菌门;Deferribacterota:脱铁杆菌门;Kiritimatiellota:圣诞岛菌门;Campylobacterota:弯曲杆菌门;norank_p_Bacteroidota:未定级拟杆菌门;Bacteroides:拟杆菌属;norank_o_Bacteroidales:未定级拟杆菌目;Duncaniella:邓肯氏菌属;Phascolarctobacterium:考拉杆菌属;Alistipes:另枝菌属;Ligilactobacillus:联合乳杆菌属;Lachnoclostridium:毛螺梭菌属;Desulfovibrio:脱硫弧菌属;Candidatus_Borkfalkia:候选博克法尔菌属;Parabacteroides:副拟杆菌属;Caccibacteroides:粪拟杆菌属;unclassified_o_Eubacteriales:未分类真细菌目;Clostridium:梭菌属;norank_f_Rikenellaceae:未定级理研菌科;Mucispirillum:黏螺旋菌属;Kiritimatiella:圣诞岛菌属;unclassified_o_Bacteroidales:未分类拟杆菌目;Pseudoflavonifractor:假解黄酮菌属;unclassified_f_Oscillospiraceae:未分类颤螺菌科;Paraprevotella:副普雷沃氏菌属;Pseudoclostridium:假梭菌属;Others:其他。

Fig.2 Effects of CAP replacing soybean meal on cecal microbiota composition of laying hens

为了进一步筛选和确定在门和属水平上造成组间差异的关键微生物类群,本试验采用Wilcoxon秩和检验进行分析,结果如图3所示,在门水平上,螺旋体门(Spirochaetota)、迷踪菌门(Elusimicrobiota)和互养菌门(Synergistota)在对照组显著富集(P<0.05);在属水平上,Phocaeicola、副拟杆菌属(Parabacteroides)和副普雷沃氏菌属(Paraprevotella)等5个菌属在对照组显著富集(P<0.05),而邓肯氏菌属、联合乳杆菌属(Ligilactobacillus)和Vescimonas等5个菌属则在试验组显著富集(P<0.05)。
图3 CAP替代豆粕对蛋鸡盲肠微生物群落差异微生物的影响

*表示P<0.05,**表示P<0.01。

Fig.3 Effects of CAP replacing soybean meal on differential microorganisms in cecal microbiota of laying hens

* mean P<0.05, and ** mean P<0.01.

2.5.3 盲肠微生物群落稳定性

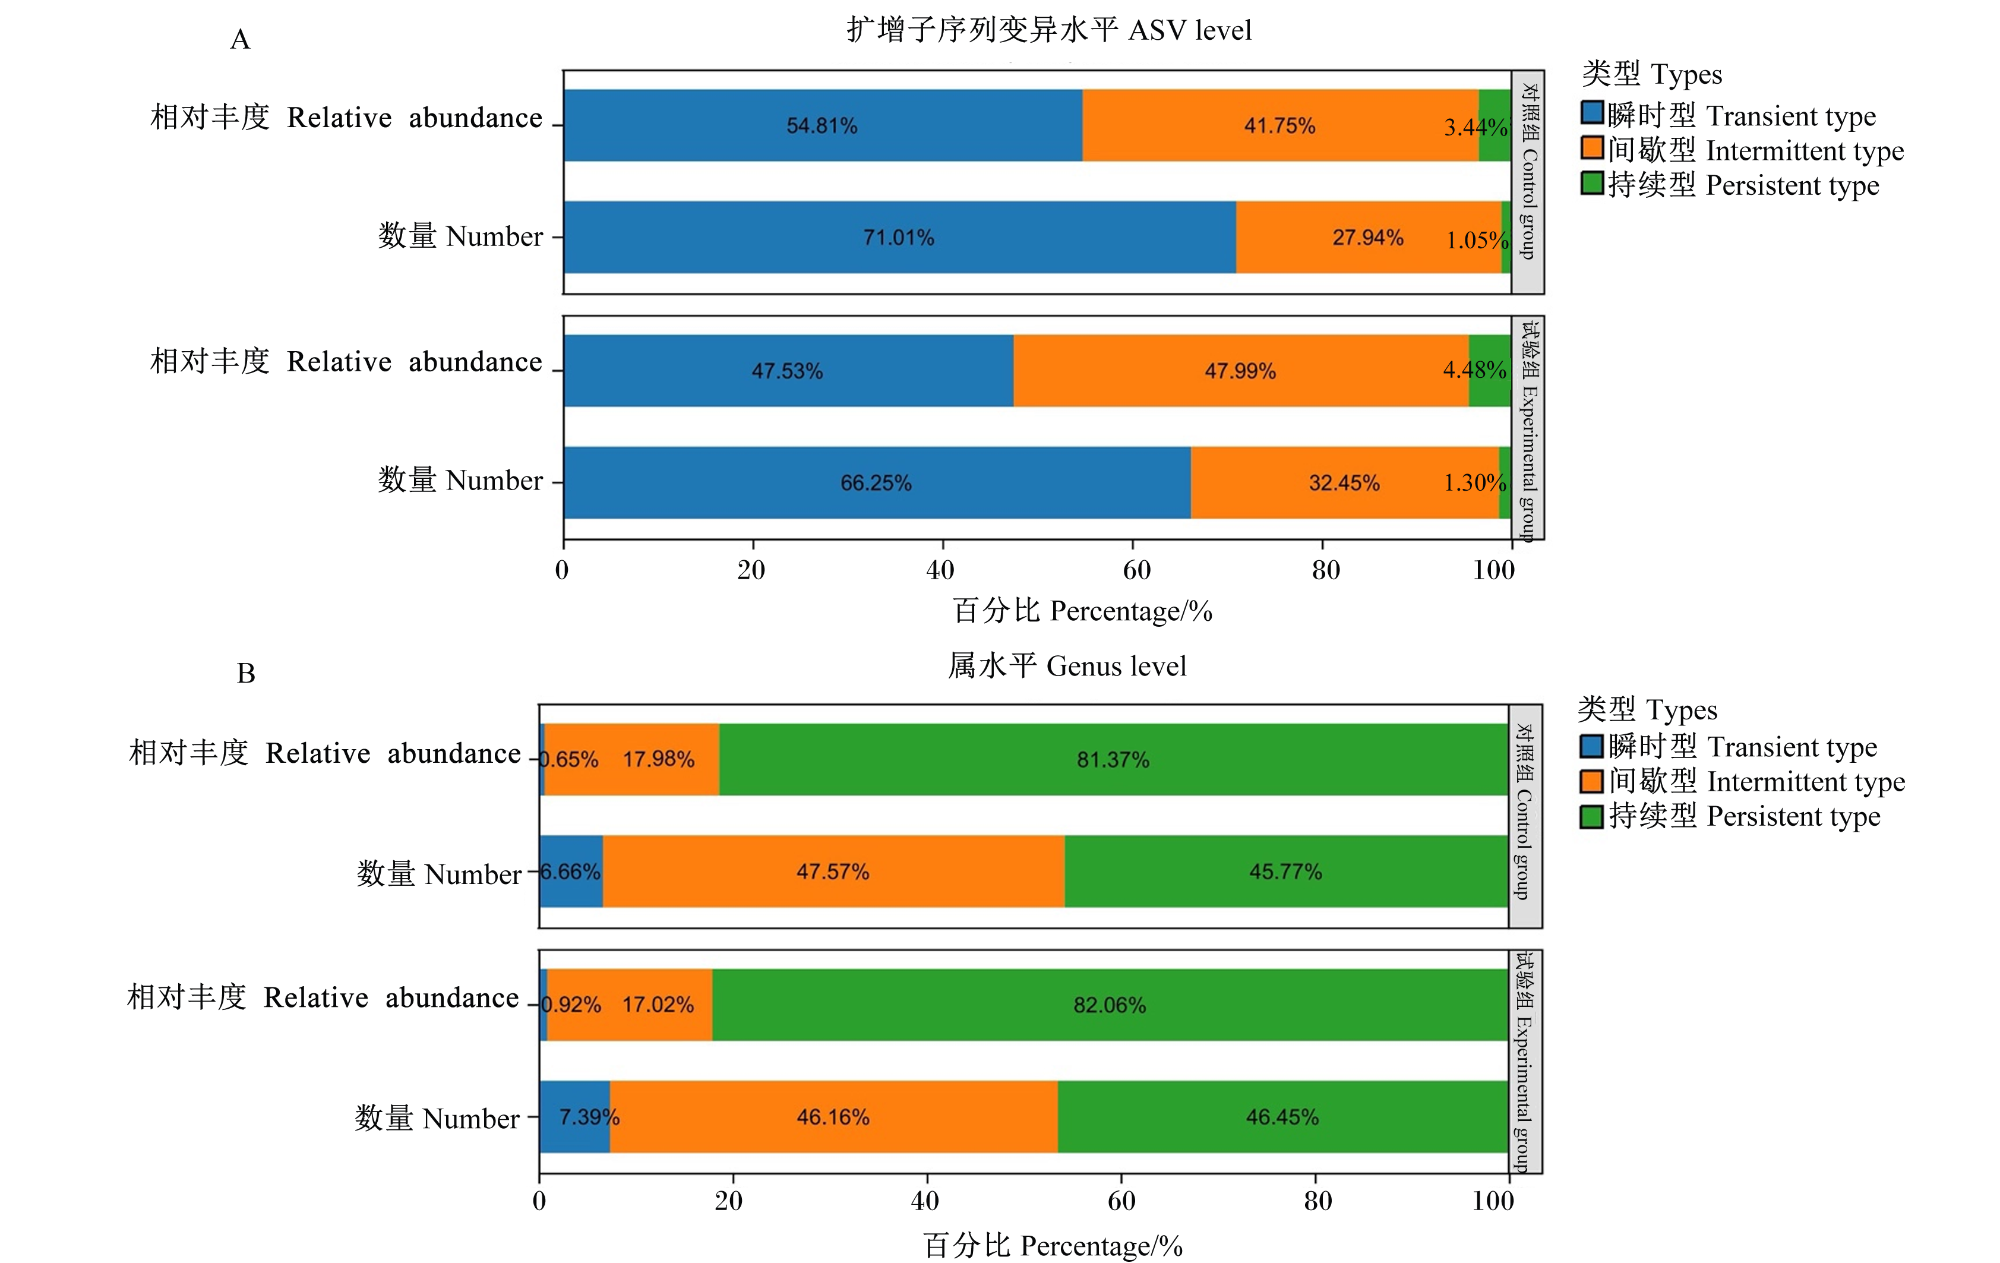
为了探究盲肠微生物群落的稳定性,本试验从不同分类学水平上进行稳定性分析。如图4-A所示,在扩增子序列变异(ASV)水平上,2组菌群在数量方面,绝大多数微生物都是瞬时型菌群,而持续型菌群所占比例极小;在丰富度上,间歇型和持续型菌群共同贡献了较大比例,表明少数稳定的核心菌群构成了群落的主体。同时,与对照组相比,试验组瞬时型菌群数量和丰富度均有所降低,而间歇型和持续型菌群数量和丰富度均有所提高。如图4-B所示,在属水平上的结果与在ASV水平上的结果较为不同,试验组和对照组菌群稳定性未见明显差异,其中持续型菌群占主导地位。结果表明,蛋鸡盲肠菌群是高度动态的,饲粮中添加3% CAP替代豆粕未破坏盲肠菌群宏观生态功能的稳定性,并在一定程度上实现了菌群的优化。
图4 CAP替代豆粕对蛋鸡盲肠微生物群落稳定性的影响

Fig.4 Effects of CAP replacing soybean meal on cecal microbiota stability of laying hens

2.5.4 盲肠微生物群落功能预测

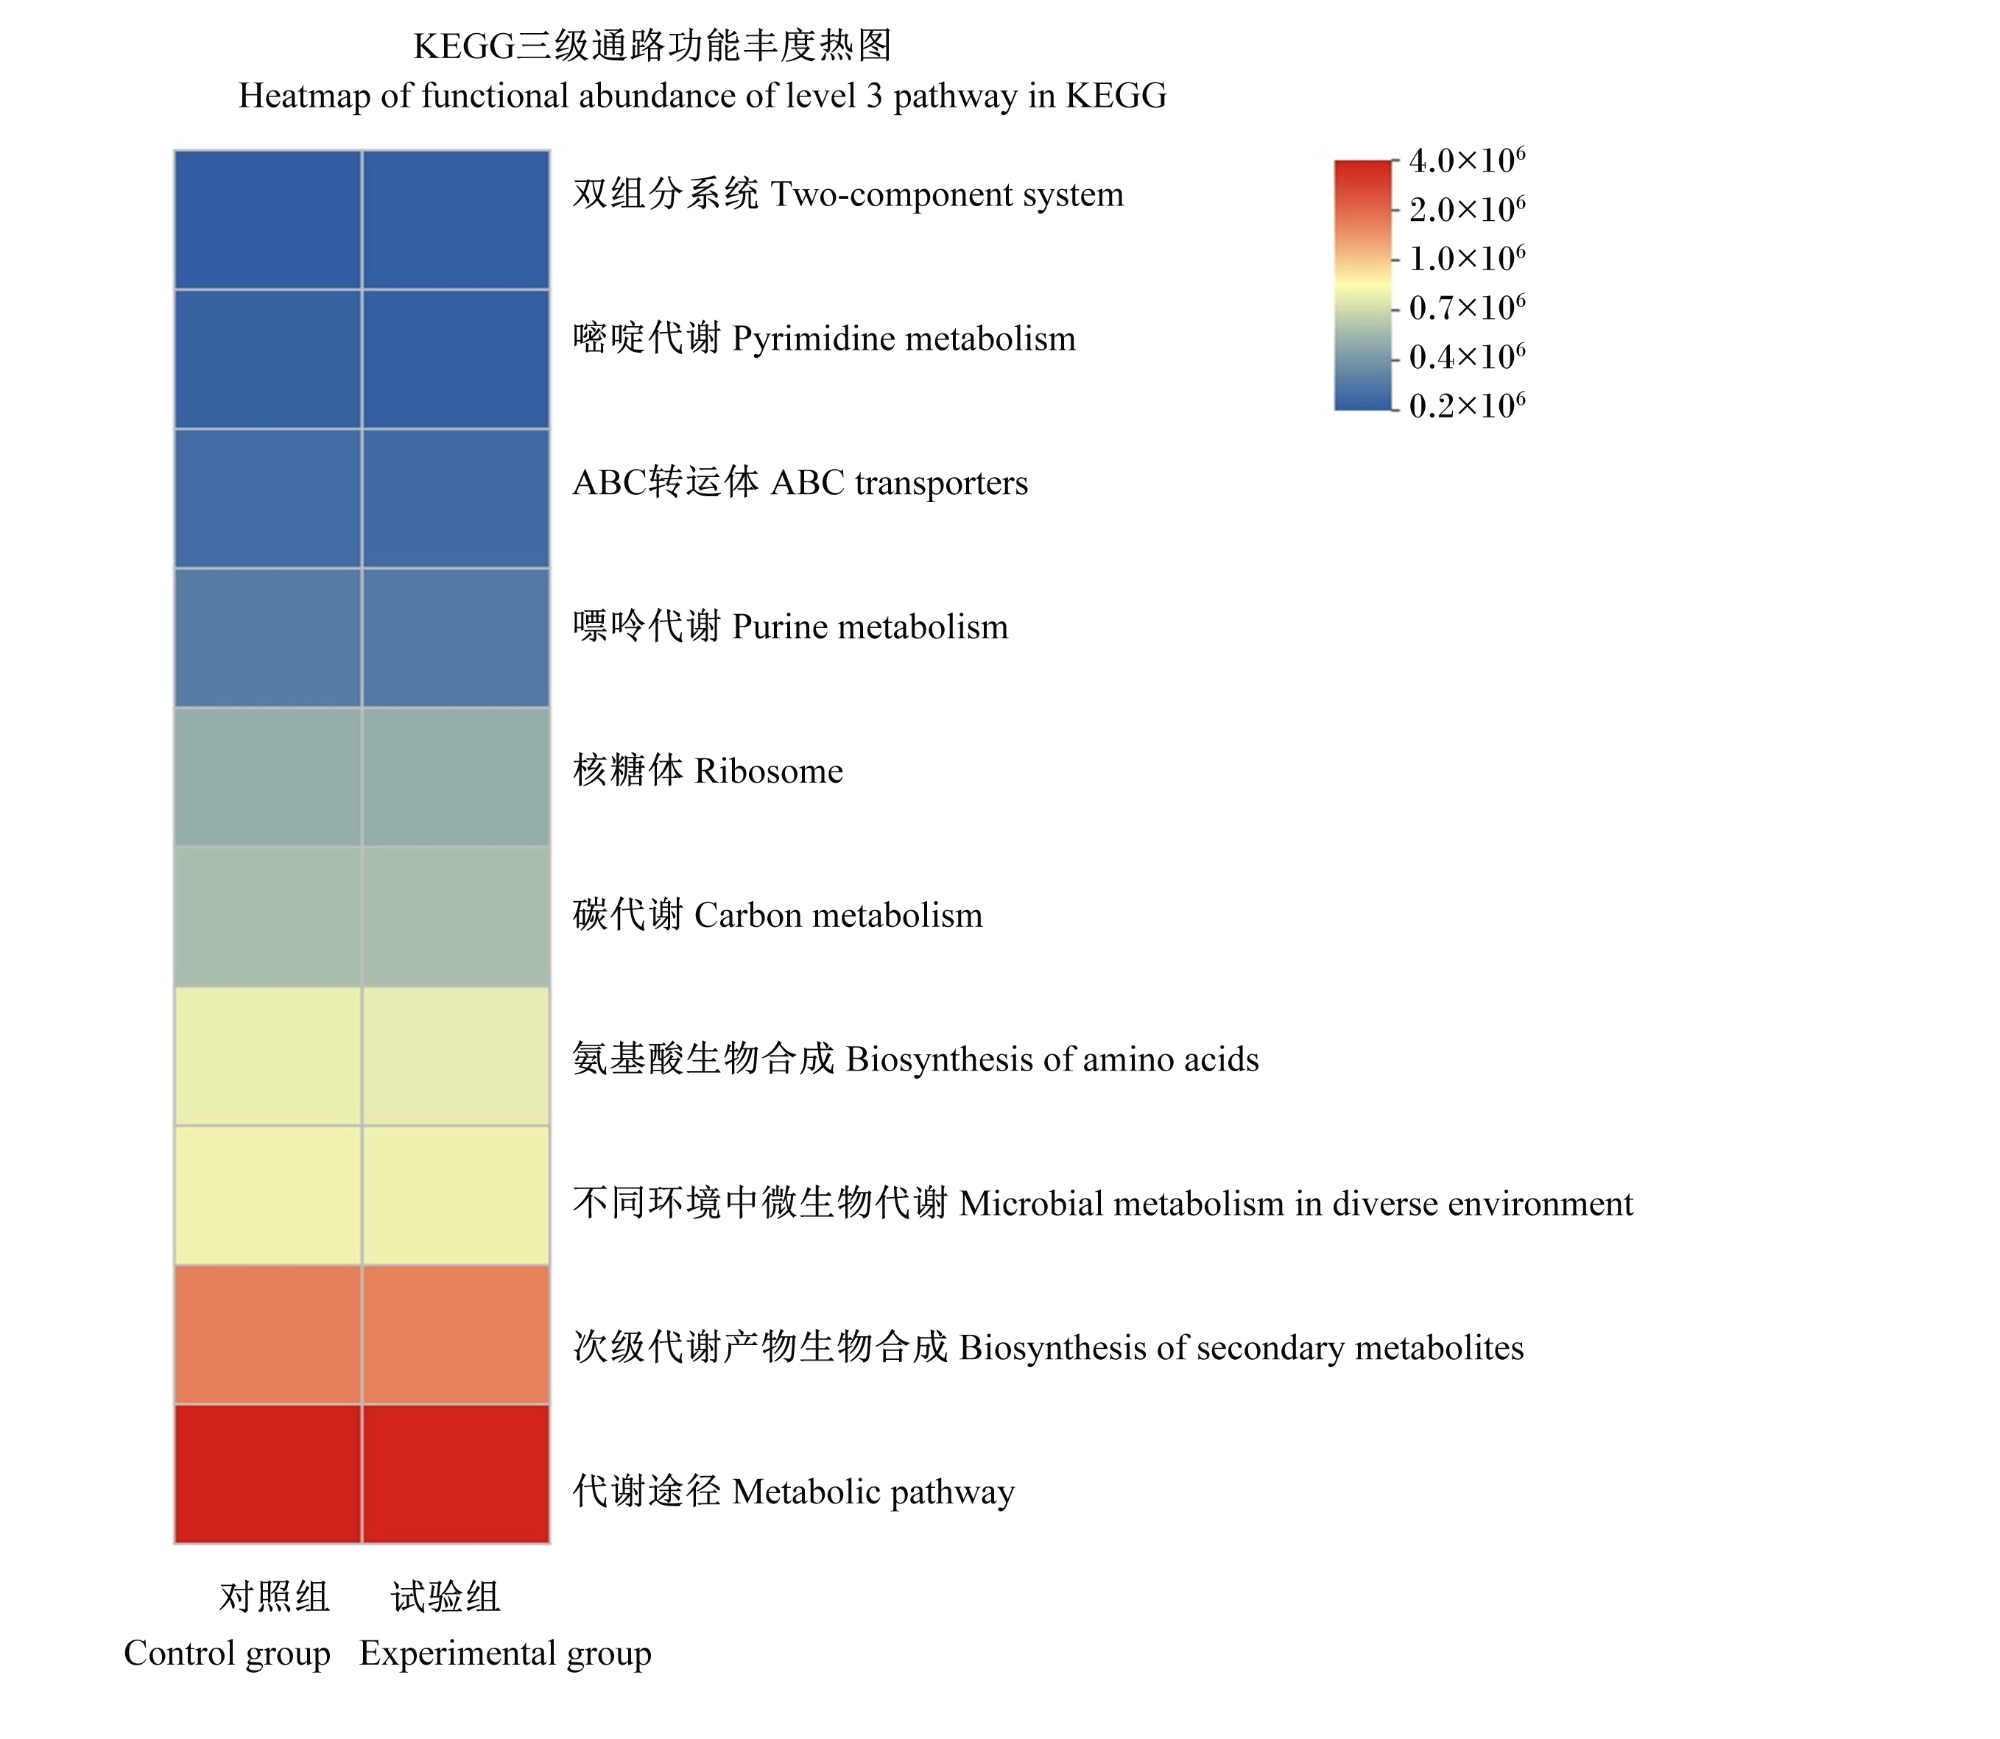
本试验采用PICRUSt2预测蛋鸡盲肠微生物群落的京都基因与基因组百科全书(KEGG)功能差异,图5展示了功能丰度前10的三级通路在2组间的分布情况,结果表明对照组和试验组在这些主要功能通路上的丰度较为相似,未观察到明显的功能差异。其中,功能通路主要富集在代谢途径、次级代谢产物生物合成、氨基酸生物合成、碳代谢和核糖体等。
图5 蛋鸡盲肠微生物群落功能预测

Fig.5 Predicting function of cecal microbiota of laying hens

3 讨论

3.1 CAP替代豆粕对蛋鸡生产性能和蛋品质的影响

生产性能是反映饲粮营养水平的有效指标,也是与经济效益最直接关联的指标[8]。本试验结果表明,与对照组(产蛋率80.72%)相比,饲粮中添加3% CAP替代豆粕可显著提高蛋鸡产蛋率至89.99%,并显著降低料蛋比。对照组产蛋性能略低可能与试验期较高的环境温湿度有关,这表明饲粮中添加CAP能有效缓解不良环境因素的影响,提升产蛋高峰期蛋鸡生产性能。饲粮粗蛋白质含量及其氨基酸组成直接影响蛋鸡生产性能,CAP的粗蛋白质含量高,氨基酸组成平衡,赖氨酸和蛋氨酸等限制性氨基酸含量丰富;同时,研究表明其在动物体内具有更高的消化吸收率和饲料转化率;此外,作为单细胞蛋白,CAP不含有传统植物性蛋白质源中常见的抗营养因子(如棉酚、硫代葡萄糖苷、胰蛋白酶抑制剂等)[9-10]。因此,在蛋鸡饲粮中添加3% CAP替代豆粕可能更精准地满足了蛋鸡产蛋高峰期对氨基酸的需求,提高了饲粮中蛋白质的可消化利用率,并降低了抗营养因子对肠道健康的负面影响,从而进一步促进营养物质的吸收利用,共同作用于蛋鸡生产性能的提升。
蛋品质是评价鸡蛋质量的重要指标,包括蛋黄、蛋白及蛋壳等评价指标,哈氏单位则是综合评价鸡蛋新鲜度的指标[11]。本试验结果表明,饲粮中添加3% CAP替代豆粕显著提高了蛋白高度,但显著降低了哈氏单位,对蛋黄颜色及蛋壳强度和厚度无显著影响,说明CAP有效改善了蛋清质量。蛋品质与饲粮中蛋白质的质量密切相关。研究表明,饲粮中添加鱼粉、酵母培养物等高营养价值的优质蛋白质源可有效提升蛋重及蛋壳厚度等蛋品质指标[12-13]。试验组蛋品质提高可能是因为CAP的蛋白质质量与组成优于豆粕,其高效的利用率为输卵管蛋清蛋白的合成提供了更充足、更平衡的氨基酸底物,从而促进了浓蛋清的沉积,提升了蛋清品质。哈氏单位是蛋白高度和蛋重的衍生指标,其值大小与蛋白高度呈正相关,与蛋重呈负相关[14]。本试验中,试验组鸡蛋蛋白高度和平均蛋重均高于对照组,这可能是因为蛋重的增加幅度超过了蛋白高度增加对哈氏单位的正向贡献,最终导致哈氏单位值下降。

3.2 CAP替代豆粕对蛋鸡血清指标的影响

血清TP和ALB含量是反映机体蛋白质吸收和营养状况的关键指标。本试验结果表明,试验组蛋鸡血清TP含量与对照组相比无显著差异,而血清ALB含量极显著低于对照组,这说明CAP在维持机体整体蛋白质稳态方面与豆粕相当,但其可能降低了肝脏中ALB的合成或减少转化为血液中的ALB[15],表明CAP提供了优质且可利用的氨基酸,支持了蛋鸡良好的氮代谢和营养状况。血清TG和TC含量与机体脂质代谢密切相关。本试验中,试验组蛋鸡血清TG和TC含量均极显著高于对照组。血脂是合成卵黄成分的重要前体物质,其含量的适度升高可能意味着肝脏合成机能活跃,为蛋黄形成提供了更充足的原料,从而可能潜在地支持产蛋性能的提高;试验组蛋鸡产蛋率和平均蛋重更高,说明其血脂含量升高并非为负面指标[16-17]
MDA含量以及SOD、CAT、GSH-Px活性是反映机体抗氧化能力的指标,其中SOD能催化超氧阴离子歧化变为过氧化氢,并抑制自由基的生成;GSH-Px是机体广泛存在的催化过氧化氢分解的酶,具有保护细胞膜结构和功能完整的作用;MDA是脂质过氧化的终产物,其含量通常与氧化损伤程度正相关[18-19]。本试验结果表明,与对照组相比,试验组蛋鸡血清MDA含量以及CAT、GSH-Px、SOD活性和T-AOC均极显著提高。机体MDA含量的升高,并伴随着抗氧化酶活性和T-AOC的同步极显著增强,这可能表明CAP中的某些活性成分(如特殊的细胞壁成分或代谢产物)对机体构成了轻微的氧化应激挑战,从而激活了蛋鸡体内的抗氧化防御系统,使其产生了更强的适应能力,最终使机体抗氧化能力得到了整体提升[20-21],这同样有助于减缓细胞损伤,提高生产性能,并改善蛋品质。

3.3 CAP替代豆粕对蛋鸡免疫功能的影响

促炎细胞因子如TNF-α、IL-1β和IL-6是启动炎症应答、激活免疫细胞(如巨噬细胞和T细胞)以抵抗病原入侵的关键信号分子;而IL-10作为一种重要的抗炎细胞因子,其主要功能是抑制过度免疫反应,防止组织损伤,维持免疫稳态[22]。本试验结果表明,试验组蛋鸡血清TNF-α、IL-1β和IL-6含量均极显著高于对照组,而血清IL-10含量却极显著低于对照组,这表明CAP的添加可能打破了蛋鸡机体固有的免疫平衡状态,引发了一种以促炎反应为主导的全身性免疫激活。这一现象可能是因为CAP作为微生物菌体蛋白,其细胞壁成分(如肽聚糖、脂多糖等)进入动物体内后,可被免疫细胞所识别,产生促炎反应,促进TNF-α、IL-1β和IL-6等促炎因子的合成,同时可能抑制IL-10等抗炎因子的分泌[23]
在肠道免疫层面,sIgA是黏膜免疫的核心抗体,负责在肠道表面中和病原体,建立第一道免疫防线;IgM和IgG含量升高则表明全身性体液免疫被有效激活并集中至黏膜部位[24]。本试验结果表明,与对照组相比,试验组蛋鸡空肠IgA、IgG、IgM和sIgA含量均极显著提高,这表明CAP虽然可能引起了全身性的免疫应激,但这种应激却显著强化了肠道局部的特异性抗体反应,从而极大地提升了肠道黏膜的免疫防御功能。这可能是因为由CAP诱导产生的全身性促炎信号能够间接促进肠道黏膜中各类免疫球蛋白的合成和分泌,发挥持久的免疫作用,有效减少肠道疾病的发生,从而改善蛋鸡健康水平和生产性能[25]

3.4 CAP替代豆粕对蛋鸡肠道健康的影响

生产中常用绒毛高度、隐窝深度和绒隐比等肠道形态学参数作为蛋鸡肠道健康评判的重要指标[26]。本试验结果发现,饲粮中添加3% CAP替代豆粕显著提高了蛋鸡空肠绒毛高度和绒隐比,显著降低了十二指肠隐窝深度。绒毛高度的升高增加了肠绒毛的有效吸收面积,有利于营养物质的快速吸收,促进肠道功能的增强;绒隐比反映了小肠绒毛的综合功能,其值与消化吸收能力成正比,与黏膜受损情况成反比;而隐窝深度的降低则代表了小肠肠道细胞的成熟率提高[27]。由此可知,饲粮中添加3% CAP替代豆粕促进了蛋鸡小肠肠道的发育和营养物质的吸收,这可能是由于CAP中所含的优质蛋白质为黏膜细胞增殖和绒毛生长提供了重要原料。
为了进一步探究CAP影响蛋鸡肠道健康的潜在作用机制,本试验对微生物活动最为活跃的盲肠肠段进行了16S rRNA基因高通量测序分析。与对照组相比,试验组盲肠菌群α多样性指数(Chao1指数和Shannon指数)显著降低,这表明饲粮中添加3% CAP替代豆粕降低了蛋鸡盲肠微生物群落的物种丰富度和多样性。同时,β多样性分析发现,2组盲肠微生物群落结构显著分离,这进一步表明饲粮中添加3% CAP替代豆粕对盲肠微生物群落整体结构具有调整作用。造成这一差异的原因本质上是饲粮底物可获得性的改变。豆粕富含非淀粉多糖和低聚糖等,这些难以在小肠消化的复杂底物进入盲肠后,能够支持更广泛的微生物生态位,从而维持较高的微生物多样性[28];相比之下,CAP作为一种优质的单细胞蛋白,具有极高的回肠末端消化率和生物利用率[29-30],这大幅减少了流入后肠供微生物发酵的底物总量。营养生态位的缩减加剧了菌群间的资源竞争,导致生态系统中仅有少数优势菌株能够维持高丰度,从而降低了整体多样性。具体而言,在属水平上,试验组盲肠显著富集了联合乳杆菌属,该菌属成员常被认为是潜在的益生菌,是肠道中主要的乳酸产生菌[31],能够通过降低肠道pH和分泌细菌素产生竞争性排斥,在抑制病原菌的同时也可能限制部分不耐酸共生菌的定植。与此同时,在对照组盲肠中显著富集的Phocaeicola和副拟杆菌属在试验组中受到抑制,两者在之前的研究中被认为分别与碳水化合物利用和复杂营养素的分解有关[32],这些特定菌属的变化是群落结构改变的主要体现,反映了盲肠微生物对不同营养底物的适应性演替[33]
对菌群稳定性和KEGG功能分析发现,虽然微生物群落组成发生了变化,但其核心功能和稳定性并未表现出较大差异。在属水平的稳定性分析中,无论处理与否,群落中超过80%的丰富度均由持续型核心菌群贡献,表明肠道微生态系统具有较大弹性。同时,PICRUSt2功能预测结果显示,2组盲肠菌群在主要的KEGG代谢通路(如氨基酸合成、碳水化合物代谢等)上的丰度并无明显差异,这可能是由于肠道微生物群落高度的功能冗余性所导致[34],也阐明了微生物群落组成的差异未造成宏观功能预测差异的原因。该结果也为CAP在蛋鸡上的应用提供了微生态层面的理论支持。

4 结论

本试验结果表明,饲粮中添加3% CAP替代豆粕可提高蛋鸡产蛋率,降低料蛋比,并提高蛋白高度;同时,还可以提高抗氧化能力和免疫功能,改善肠道组织形态,并改善盲肠微生物群落结构,促进肠道健康。
[1]
喻方勇, 徐晓锋. 畜禽日粮豆粕减量替代研究进展[J]. 中国奶牛, 2024(4):5-9.

YU F Y, XU X F. Research progress on the substitution of soybean meal reduction in livestock and poultry diets[J]. China Dairy Cattle, 2024(4):5-9. (in Chinese)

[2]
李星, 杨洁, 李军国, 等. 我国饲料生产中豆粕减量替代技术探讨分析[J]. 中国饲料, 2023(22):88-95.

LI X, YANG J, LI J G, et al. Discussion and analysis of soybean meal reduction and substitution technology in feed production in China[J]. China Feed, 2023(22):88-95. (in Chinese)

[3]
阮鑫, 屈健, 陈洁, 等. 乙醇梭菌蛋白在养殖业中的研究进展[J]. 中国畜牧业, 2022(8):43-44.

RUAN X, QU J, CHEN J, et al. Research progress of clostridium ethanol protein in aquaculture[J]. China Animal Industry, 2022(8):43-44. (in Chinese)

[4]
MA S F, LIANG X F, CHEN P, et al. A new single-cell protein from Clostridium autoethanogenum as a functional protein for largemouth bass (Micropterus salmoides)[J]. Animal Nutrition, 2022, 10:99-110.

DOI

[5]
姚康. 乙醇梭菌蛋白替代豆粕对断奶仔猪生长性能、免疫功能和肠道健康的影响[D].硕士学位论文. 武汉: 华中农业大学, 2023:10-11.

YAO K. Effect of replacing soybean meal with Clostridium ethanolamine protein on growth performance,immune function and intestinal health of weaned piglets[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2023:10-11. (in Chinese)

[6]
WU Y S, WANG J, JIA M, et al. Clostridium autoethanogenum protein inclusion in the diet for broiler:enhancement of growth performance,lipid metabolism,and gut microbiota[J]. Frontiers in Veterinary Science, 2022, 9:1028792.

DOI

[7]
严秋信, 卜宪勇, 刘勇涛, 等. 乙醇梭菌蛋白替代豆粕对合方鳊生长、消化、抗氧化能力和蛋白质代谢的影响[J]. 水产学报, 2025, 49(9):099608.

YAN Q X, BU X Y, LIU Y T, et al. Effect of replacing soybean meal with Clostridium autoethanogenum protein on the growth performance,digestive capacity,antioxidant capacity,and protein metabolism of Hefang bream[J]. Journal of Fisheries of China, 2025, 49(9):099608. (in Chinese)

[8]
吉训生, 黄琪琳, 夏圣奎. 基于VAR模型的蛋鸡产蛋性能及其影响因素分析[J]. 浙江农业学报, 2022, 34(04):824-830.

JI X S, HUANG Q L, XIA S K. Analysis of laying performance and influencing factors of laying hens based on VAR model[J]. Acta Agriculturae Zhejiangensis, 2022, 34(4):824-830. (in Chinese)

DOI

[9]
XU J, ZHENG C Z, CHI S Y, et al. Clostridium autoethanogenum protein substitution and bile acids addition altered intestinal health and transcriptome profiles of hepatopancreas in Litopenaeus vannamei[J]. Aquaculture Reports, 2023, 28:101432.

DOI

[10]
CUI X S, MA Q, DUAN M, et al. Effects of fishmeal replacement by Clostridium autoethanogenum protein on the growth,digestibility,serum free amino acid and gene expression related to protein metabolism of obscure pufferfish (Takifugu obscurus)[J]. Animal Feed Science and Technology, 2022, 292:115445.

DOI

[11]
KIM H R, RYU C, LEE S D, et al. Effects of heat stress on the laying performance,egg quality,and physiological response of laying hens[J]. Animals, 2024, 14(7):1076.

DOI

[12]
伏圣鑫, 晁雪, 王静, 等. 蛋鸡饲料中不同蛋白源对产蛋性能的影响[J]. 畜牧产业, 2025(9):63-67.

FU S X, CHAO X, WANG J, et al. Effects of different protein sources in diet on performance of laying hens[J]. Animal Agriculture, 2025(9):63-67. (in Chinese)

[13]
QIU Q, ZHAN Z C, ZHOU Y, et al. Effects of yeast culture on laying performance,antioxidant properties,intestinal morphology,and intestinal flora of laying hens[J]. Antioxidants, 2024, 13(7):779.

DOI

[14]
EISEN E J, BOHREN B B, MCKEAN H E. The haugh unit as a measure of egg albumen quality[J]. Poultry Science, 1962, 41(5):1461-1468.

DOI

[15]
WANG J H, WU C C, FENG J. Effect of dietary antibacterial peptide and zinc-methionine on performance and serum biochemical parameters in piglets[J]. Czech Journal of Animal Science, 2011, 56(1):30-36.

DOI

[16]
ZHOU Y B, WAN X C, HU J W, et al. Effect of green tea and tea catechins on the lipid metabolism of caged laying hens[J]. Indian Journal of Animal Sciences, 2012, 82(11):1408-1414.

DOI

[17]
ZHANG B, WANG Z B, HUANG C X, et al. Positive effects of mulberry leaf extract on egg quality,lipid metabolism,serum biochemistry,and antioxidant indices of laying hens[J]. Frontiers in Veterinary Science, 2022, 9:1005643.

DOI

[18]
MI Q H, DENG X, WANG P Y, et al. Effect of energy levels on liver oxidative state and gut microbiota of laying hens fed a low-protein diet[J]. Frontiers in Animal Science, 2024, 5:1465305.

DOI

[19]
SUN M Q, WANG H L, ZHU X Y, et al. The mechanism of egg production improvement in laying hens before and after molting revealed by transcriptome and metabolome integration[J]. Poultry Science, 2025, 104(7):105125.

DOI

[20]
ZHAO K, YIN H, YAN H L, et al. Dietary supplementation of Lactobacillus johnsonii RS-7 improved antioxidant and immune function of weaned piglets[J]. Animals, 2023, 13(10):1595.

DOI

[21]
CHEN F, HUANG G L, HUANG H L. Preparation,analysis,antioxidant activities in vivo of phosphorylated polysaccharide from Momordica charantia[J]. Carbohydrate Polymers, 2021, 252:117179.

DOI

[22]
BASIOUNI S, TELLEZ-ISAIAS G, LATORRE J D, et al. Anti-inflammatory and antioxidative phytogenic substances against secret killers in poultry:current status and prospects[J]. Veterinary Sciences, 2023, 10(1):55.

DOI

[23]
KAMELY M, HE W W, WAKARUK J, et al. Impact of reduced dietary crude protein in the starter phase on immune development and response of broilers throughout the growth period[J]. Frontiers in Veterinary Science, 2020, 7:436.

DOI PMID

[24]
CHANDRA R K. Nutrition and the immune system:an introduction[J]. The American Journal of Clinical Nutrition, 1997, 66(2):460S-463S.

DOI

[25]
XIE Z, ZHAO Q Q, WANG H, et al. Effects of antibacterial peptide combinations on growth performance,intestinal health,and immune function of broiler chickens[J]. Poultry Science, 2020, 99(12):6481-6492.

DOI

[26]
DUCATELLE R, GOOSSENS E, DE MEYER F, et al. Biomarkers for monitoring intestinal health in poultry:present status and future perspectives[J]. Veterinary Research, 2018, 49(1):43.

DOI

[27]
常心雨, 卢欣欣, 张海华, 等. 菌酶协同发酵豆粕对产蛋初期蛋鸡生产性能、蛋品质和肠道健康的影响[J]. 中国畜牧杂志, 2025, 61(3):229-237,245.

CHANG X Y, LU X X, ZHANG H H, et al. Effects of synergistic fermentation of soybean meal with microorganisms and enzymes on performance,egg quality,and gut health in early-laying hens[J]. Chinese Journal of Animal Science, 2025, 61(3):229-237,245. (in Chinese)

[28]
JHA R, BERROCOSO J F D. Dietary fiber and protein fermentation in the intestine of swine and their interactive effects on gut health and on the environment:a review[J]. Animal Feed Science and Technology, 2016, 212:18-26.

DOI

[29]
XIA M, HU Z C, XUE R R, et al. Dietary vitamin E further enhances the effectiveness of Clostridium autoethanogenum protein as an alternative source of soybean meal in grass carp (Ctenopharygodon idellus) diets based on growth performance,flesh quality and antioxidant status[J]. Aquaculture, 2025, 594:741348.

DOI

[30]
吴雨珊. 乙醇梭菌蛋白对颗粒饲料质量及肉鸡生长性能的影响研究[D].硕士学位论文. 北京: 中国农业科学院, 2021:32-37.

WU Y S. Effect of Clostridium autoethanogenum protein on pelleting feed and growth performance of broilers[D].Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2021:32-37. (in Chinese)

[31]
CHEN S S, CHEN S N, LI W W, et al. Perillyl alcohol ameliorates high-fat diet-induced obesity in mice by modulating gut microbiota and activating IRF4-mediated brown fat thermogenesis[J]. Phytomedicine, 2025, 148:157400.

DOI

[32]
EL KAOUTARI A, ARMOUGOM F, GORDON J I, et al. The abundance and variety of carbohydrate-active enzymes in the human gut microbiota[J]. Nature Reviews Microbiology, 2013, 11(7):497-504.

DOI PMID

[33]
CHOI J, CHOI Y R, JEONG M K, et al. Phocaeicola dorei ameliorates progression of steatotic liver disease by regulating bile acid,lipid,inflammation and proliferation[J]. Gut Microbes, 2025, 17(1):2539448.

DOI

[34]
RAMOND P, GALAND P E, LOGARES R. Microbial functional diversity and redundancy:moving forward[J]. FEMS Microbiology Reviews, 2025, 49:fuae031.

DOI

文章导航

/