研究论文

灵芝多糖对西门塔尔犊牛生长性能、血清指标和粪便菌群的影响

  • 谢云雷 , 1 ,
  • 谢占峰 2 ,
  • 苗人方 3 ,
  • 郑钧文 3 ,
  • 勾长龙 1 ,
  • 吕世春 2 ,
  • 贾振伟 , 1, *
展开
  • 1 内蒙古民族大学动物科技学院, 通辽 028043
  • 2 内蒙古自治区通辽市科尔沁区联蒙养殖专业合作社, 通辽 028024
  • 3 辽宁亚禾营养科技有限责任公司, 葫芦岛 125100
* 贾振伟,教授,硕士生导师,E-mail:

谢云雷(1999—),男,内蒙古赤峰人,硕士研究生,从事畜牧研究。E-mail:

Office editor: 田艳明

收稿日期: 2025-11-13

  网络出版日期: 2026-06-13

基金资助

中央引导地方科技发展资金项目(2024ZY0080)

内蒙古自治区重点研发和成果转化计划(科技支撑东北振兴)项目(2025YFDZ0128)

通辽市科技计划项目(TL2024PT005)

Effects of Ganoderma lucidum Polysaccharides on Growth Performance, Serum Indices and Fecal Microbiota of Simmental Calves

  • XIE Yunlei , 1 ,
  • XIE Zhanfeng 2 ,
  • MIAO Renfang 3 ,
  • ZHENG Junwen 3 ,
  • GOU Changlong 1 ,
  • LYU Shichun 2 ,
  • JIA Zhenwei , 1, *
Expand
  • 1 College of Animal Science and Technology, Inner Mongolia Minzu University, Tongliao 028043, China
  • 2 Inner Mongolia Autonomous Region Tongliao City Horqin District Lianmeng Breeding Professional Cooperatives, Tongliao 028024, China
  • 3 Liaoning Yahe Nutrition Technology Co., Ltd., Huludao 125100, China
* professor, E-mail:

Received date: 2025-11-13

  Online published: 2026-06-13

摘要

本试验旨在研究饲粮添加不同剂量灵芝多糖(GLP)对哺乳期犊牛生长性能、血清指标和粪便菌群的影响。选择健康、(9.0±2.0)日龄和体重[(51.67±4.05) kg]相近的西门塔尔肉用犊牛32头,随机分为4组,每组8个重复,每个重复1头牛。对照组饲喂基础饲粮,试验组在饲喂基础饲粮的基础上分别添加5(GLP5组)、10(GLP10组)和20 g/(头·d)(GLP20组)GLP。预试期7 d,正试期50 d。结果表明:1)与对照组相比,GLP10组终末体重和平均日增重显著提高(P<0.05),粪便评分和腹泻率显著降低(P<0.05)。2)与对照组相比,GLP10组血清谷丙转氨酶活性显著降低(P<0.05);血清总抗氧化能力以及超氧化物歧化酶、谷胱甘肽过氧化物酶和过氧化氢酶活性显著提高(P<0.05),血清丙二醛含量显著降低(P<0.05);血清二胺氧化酶活性和肿瘤坏死因子-α含量显著降低(P<0.05),血清免疫球蛋白A、免疫球蛋白M、免疫球蛋白G、白细胞介素-2和白细胞介素-4含量显著提高(P<0.05)。3)与对照组相比,GLP10组粪便菌群Chao1指数、Shannon指数和Simpson指数均显著提高(P<0.05);粪便放线菌门和变形菌门相对丰度显著提高(P<0.05);粪便Cryptobacteroides、乳杆菌属和布劳特氏菌属相对丰度显著提高(P<0.05),粪便FaecousiaPhocaeicola相对丰度显著降低(P<0.05)。综上所述,饲粮添加10 g/(头·d) GLP能够提高哺乳期肉牛犊牛生长性能,降低腹泻发生,增强机体免疫功能和抗氧化能力,同时改善粪便菌群结构,促进机体健康。

本文引用格式

谢云雷 , 谢占峰 , 苗人方 , 郑钧文 , 勾长龙 , 吕世春 , 贾振伟 . 灵芝多糖对西门塔尔犊牛生长性能、血清指标和粪便菌群的影响[J]. 动物营养学报, 2026 , 38(6) : 4316 -4327 . DOI: 10.12418/CJAN2026.346

Abstract

This experiment was conducted to investigate the effects of dietary supplementation with different doses of Ganoderma lucidum polysaccharides (GLP) on the growth performance, serum indices and fecal microbiota of lactating calves. Thirty-two healthy Simmental beef calves with similar ages of (9.0±2.0) days and weights of (51.67±4.05) kg were selected and randomly divided into 4 groups, with 8 replicates in each group and 1 calf in each replicate. The control group was fed a basal diet, while the experimental groups were fed the basal diets supplemented with 5 (GLP5 group), 10 (GLP10 group) and 20 g/(head·d) (GLP20 group) GLP, respectively. The pre-test period was 7 days and the formal test period was 50 days. The results showed as follows: 1) compared with the control group, the final body weight and average daily gain in GLP10 group were significantly increased (P<0.05), while the fecal score and diarrhea rate were significantly decreased (P<0.05). 2) Compared with the control group, the serum alanine aminotransferase activity in GLP10 group was significantly decreased (P<0.05); the serum total antioxidant capacity and activities of superoxide dismutase, glutathione peroxidase and catalase were significantly increased (P<0.05), while the serum malondialdehyde content was significantly decreased (P<0.05); the serum diamine oxidase activity and tumor necrosis factor-α content were significantly decreased (P<0.05), while the serum contents of immunoglobulin A, immunoglobulin M, immunoglobulin G, interleukin-2 and interleukin-4 were significantly increased (P<0.05). 3) Compared with the control group, the Chao1 index, Shannon index and Simpson index of fecal microbiota in GLP10 group were significantly increased (P<0.05); the relative abundances of Actinobacteriota and Proteobacteria in feces were significantly increased (P<0.05); the relative abundances of Cryptobacteroides, Lactobacillus and Blautia in feces were significantly increased (P<0.05), while the relative abundances of Faecousia and Phocaeicola in feces were significantly decreased (P<0.05). In conclusion, dietary supplementation with 10 g/(head·d) GLP can enhance the growth performance of lactating beef calves, reduce the occurrence of diarrhea, strengthen the immune function and antioxidant capacity, improve the structure of fecal microbiota, and promote body health.

犊牛哺乳期阶段是肉牛养殖产业链中至关重要的生长发育窗口期,其生长发育状况直接决定成年后的生产性能、繁殖效率及养殖经济效益。在此阶段,犊牛消化系统和免疫系统尚未发育成熟,对环境应激、病原微生物侵袭的抵抗力较弱,易出现消化不良、腹泻、呼吸道疾病等健康问题,导致生长迟缓、成活率下降,降低了肉牛养殖业经济效益[1]。因此,探寻安全、高效且符合绿色养殖趋势的添加剂,用于改善犊牛健康和生长性能,逐渐成为反刍动物营养领域的研究热点之一。
灵芝作为传统名贵药用真菌,其活性成分的药理作用已被广泛研究,其中灵芝多糖(Ganoderma lucidum polysaccharides,GLP)是核心活性成分之一[2]。GLP是一类从灵芝子实体、菌丝体或孢子中提取的高分子多糖,主要由葡萄糖、半乳糖、甘露糖、岩藻糖、木糖和阿拉伯糖等单糖通过α-或β-糖苷键连接而成,常伴有分支结构,分子质量从几千u至数百万u。GLP的生物活性与其分子质量、单糖组成、糖苷键类型、分支度及空间构象密切相关,这些结构特征直接影响其在机体内的吸收。现代药理学研究证实,GLP具有调节免疫功能、抗氧化应激、抑制炎症反应及改善肠道微生态平衡等多种生物活性[3-6],且具有无毒副作用、无药物残留的优势,在畜禽养殖中展现出良好的应用潜力。目前,GLP在猪、禽等单胃动物中的研究已证实其可提升动物生长性能和抗病力[7-8];然而,其在反刍动物特别是幼龄犊牛上的相关研究仍较为有限。犊牛与单胃动物在消化生理、免疫发育及微生物定植等方面存在明显差异,因此GLP在犊牛体内的作用机制和适宜添加剂量亟待系统研究。目前,仅有少数研究涉及酵母多糖、香菇多糖、葛根多糖等植物源性多糖在犊牛中的应用[9-12]。因此,本试验通过探究饲粮添加不同剂量GLP对哺乳期西门塔尔犊牛生长性能、腹泻情况、免疫功能、抗氧化能力以及粪便菌群等的影响,旨在为GLP在肉牛犊牛养殖生产实践中的应用提供参考。

1 材料与方法

1.1 试验材料和伦理声明

试验所用GLP为市售产品,其有效成分含量为40%。试验方案经内蒙古民族大学医学与生命科学伦理委员会批准,批准编号:NMD-DW-2024-11-62。

1.2 试验动物和试验设计

选择健康、(9.0±2.0)日龄和体重[(51.67±4.05) kg]相近的西门塔尔肉用犊牛32头,随机分为4组,每组8个重复,每个重复1头牛。对照组饲喂基础饲粮,试验组在饲喂基础饲粮的基础上分别添加5(GLP5组)、10(GLP10组)和20 g/(头·d)(GLP20组)GLP。预试期7 d,正试期50 d。试验结束时测定犊牛生长性能、体尺指标、粪便评分和腹泻率等,根据上述试验结果确定适宜的GLP添加剂量,随后测定分析对照组和GLP适宜添加剂量组犊牛血清指标和粪便菌群。

1.3 试验饲粮和饲养管理

试验犊牛基础饲粮为开食料,将开食料与GLP逐级混匀,每头犊牛单独饲喂,同时犊牛每天随母哺乳3次(07:00、11:00和17:00各1次),直至试验结束。基础饲粮组成及营养水平见表1。饲粮干物质、粗蛋白质、粗脂肪、中性洗涤纤维、酸性洗涤纤维、钙和磷含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、GB/T 20806—2022、NY/T 1459—2022、GB/T 6436—2018和GB/T 6437—2018中方法进行测定。试验期间试验牛定时饲喂、自由饮水,定期对圈舍进行消毒和清理,保持舍内清洁、干燥、通风良好和温度适宜。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

原料 Ingredients 含量 Content 营养水平 Nutrient levels 含量 Content
玉米 Corn 39.80 干物质(风干基础) DM (air-dry basis) 89.40
膨化玉米 Extruded corn 13.80 粗蛋白质 CP 20.40
发酵豆粕 Fermented soybean meal 13.80 粗脂肪 EE 3.85
膨化大豆 Extrude soybean 14.00 中性洗涤纤维 NDF 13.67
小麦麸 Wheat bran 13.70 酸性洗涤纤维 ADF 5.59
石粉 Limestone 2.20 钙 Ca 1.19
磷酸氢钙 CaHPO4 0.90 磷 P 0.71
食盐 NaCl 0.50 代谢能 ME/(MJ/kg) 13.73
预混料 Premix1) 1.30
合计 Total 100.00

1)每千克预混料含有 One kilogram of the premix contained the following:VA 1 200 000 IU,VD3 300 000 IU,VE 5 000 mg,Cu (as copper sulfate) 1 250 mg,Fe (as ferrous sulfate) 8 000 mg,Zn (as zinc sulfate) 8 000 mg,Mn (as manganese sulfate) 3 000 mg,Se (as sodium selenite) 30 mg,I (as potassium iodide) 100 mg,Co (as cobalt sulfate) 30 mg。
2)代谢能为计算值,参照NASEM《肉牛营养需要》(2016)计算;其余为实测值。ME was a calculated value according to Nutrient Requirements of Beef Cattle (NASEM, 2016), while the others were measured values.

1.4 样品采集及指标测定

1.4.1 生长性能和体尺指标

分别于正试期第1天和第50天早晨,测量犊牛空腹体重,计算平均日增重(ADG)[ADG=(终末体重-初始体重)/试验天数];同时,测量每头犊牛体高、体斜长和胸围;试验期间,记录开食料采食情况,计算开食料平均日采食量。

1.4.2 粪便评分和腹泻率

试验期间每天观察各组犊牛粪便情况,并进行评分。评分标准为:形态正常,外观较硬,评1分;形态成形,外观较软,评2分;形态不成形,外观呈水样,评3分;形态不成形,外观呈水样、黏液附着少量血丝,评4分;形态不成形,外观呈水样、黏液附着大量血丝,评5分。当犊牛粪便评分≥3分时判定为腹泻。参考Magalhães等[13]的方法计算腹泻率,计算公式如下:
腹泻率(%)=100×􀰑(腹泻犊牛数×犊牛腹泻天数)/(试验犊牛数×试验天数)。

1.4.3 血液样品采集及指标测定

各组犊牛于试验结束当天晨饲前,颈静脉采血10 mL,室温下静置30 min后,1 250×g离心15 min分离血清,分装置于-80 ℃冰箱保存,用于检测血清生化、抗氧化和免疫指标。
血清生化指标测定:采用全自动生化分析仪(HITACHI 7180,深圳迈瑞生物医疗电子股份有限公司)测定血清总蛋白(TP)、葡萄糖(GLU)、甘油三酯(TG)、尿素氮(UN)含量以及谷丙转氨酶(ALT)和谷草转氨酶(AST)活性。
血清抗氧化指标测定:采用酶联免疫吸附试验(ELISA)法测定血清总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)和过氧化氢酶(CAT)活性以及丙二醛(MDA)含量。
血清二胺氧化酶(DAO)活性和免疫指标测定:采用ELISA法测定血清DAO活性以及免疫球蛋白A(IgA)、免疫球蛋白G(IgG)和免疫球蛋白M(IgM)、白细胞介素-2(IL-2)、白细胞介素-4(IL-4)和肿瘤坏死因子-α(TNF-α)含量。
ELISA试剂盒均购自上海优选生物科技有限公司,参照试剂盒说明书步骤进行操作。

1.4.4 粪样采集及菌群测定

试验最后1天,采集犊牛直肠深部粪便样品,利用液氮迅速冷冻后置入-80 ℃冰箱保存待测。采用TruSeq Nano DNA LT Library Prep Kit(Illumina,美国)构建文库,利用特异性引物338F(5'-ACTCCTACGGGAGGCAGCA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')扩增16S rDNA的V3~V4区。文库构建及测序分析由上海派森诺生物科技股份有限公司完成,菌群分析包括α多样性分析以及在门和属水平上组成的分析。

1.5 数据统计分析

采用Excel 2016整理试验数据,然后采用SPSS 20.0软件对数据进行统计分析,其中生长性能指标、体尺指标和粪便评分采用单因素方差分析,并采用Turkey法进行多重比较;腹泻率采用卡方检验,并用平均值表示;其他指标数据进行t检验。结果数据以“平均值±标准差”形式表示,P<0.05表示差异显著。

2 结果与分析

2.1 GLP对犊牛生长性能、体尺指标和腹泻情况的影响

表2表3可知,与对照组相比,试验组犊牛终末体重、ADG和终末体尺指标均有所提高,其中GLP10组和GLP20组终末体重和ADG显著提高(P<0.05),且以GLP10组最高。各组间开食料平均日采食量和体尺指标无显著差异(P>0.05)。
表2 GLP对犊牛生长性能的影响

Table 2 Effects of GLP on growth performance of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP5 GLP10 GLP20
开食料平均日采食量
Average daily feed intake of
starter/(kg/d)
1.45±0.29 1.47±0.26 1.53±0.32 1.51±0.19 0.887
初始体重 Initial body weight/kg 56.25±4.64 57.40±3.18 57.46±5.23 56.88±2.81 0.910
终末体重 Final body weight/kg 109.78±6.62a 113.63±5.14ab 122.14±9.43c 116.43±6.67bc 0.010
平均日增重 ADG/kg 1.07±0.07a 1.13±0.12ab 1.29±0.13c 1.18±0.09bc 0.002

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

表3 GLP对犊牛体尺指标的影响

Table 3 Effects of GLP on body size indices of calvescm

项目
Items
组别 Groups P
P-value
对照 Control GLP5 GLP10 GLP20
体高 Withers height
初始 Initial 79.88±2.64 80.75±2.19 79.75±3.06 80.63±2.26 0.810
终末 Final 89.69±2.86 91.44±2.49 93.31±4.83 90.87±4.88 0.700
体斜长 Body oblique length
初始 Initial 84.00±3.42 83.25±3.49 84.89±3.98 84.50±3.89 0.830
终末 Final 101.31±3.40 103.06±5.46 107.69±6.84 105.44±4.00 0.090
胸围 Chest circumference
初始 Initial 88.00±2.93 87.63±3.11 87.89±3.48 88.37±4.10 0.980
终末 Final 105.94±3.70 106.31±7.61 110.56±5.95 108.06±3.75 0.340
表4可知,与对照组相比,试验组犊牛粪便评分和腹泻率均有所降低,其中GLP10组粪便评分和腹泻率显著降低(P<0.05),GLP20组粪便评分显著降低(P<0.05)。各试验组间粪便评分和腹泻率无显著差异(P>0.05)。根据上述结果,确定GLP10组为GLP适宜添加剂量组,后续检测对照组和GLP10组犊牛血清指标和粪便菌群。
表4 GLP对犊牛粪便评分和腹泻率的影响

Table 4 Effects of GLP on fecal score and diarrhea rate of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP5 GLP10 GLP20
粪便评分 Fecal score/分 1.95±0.23b 1.86±0.24ab 1.65±0.06a 1.75±0.15a 0.020
腹泻率 Diarrhea rate/% 12.75b 11.50ab 9.25a 10.00ab <0.001

2.2 GLP对犊牛血清生化指标的影响

表5可知,与对照组相比,GLP10组犊牛血清ALT活性显著降低(P<0.05),血清TP、GLU、TG、UN含量以及AST活性无显著差异(P>0.05)。
表5 GLP对犊牛血清生化指标的影响

Table 5 Effects of GLP on serum biochemical indices of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP10
总蛋白 TP/(g/L) 43.50±4.03 45.57±1.90 0.334
葡萄糖 GLU/(mmol/L) 4.43±0.76 4.58±0.69 0.753
甘油三酯 TG/(mmol/L ) 0.98±0.09 1.01±0.08 0.410
尿素氮 UN/(mmol/L) 4.70±0.79 4.69±0.73 0.990
谷丙转氨酶 ALT/(U/L) 36.91±4.48b 30.50±3.32a 0.033
谷草转氨酶 AST/(U/L) 47.82±7.03 45.54±7.45 0.633

2.3 GLP对犊牛血清抗氧化指标的影响

表6可知,与对照组相比,GLP10组犊牛血清T-AOC以及SOD、GSH-Px和CAT活性显著提高(P<0.05),血清MDA含量显著降低(P<0.05)。
表6 GLP对犊牛血清抗氧化指标的影响

Table 6 Effects of GLP on serum antioxidant indices of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP10
总抗氧化能力 T-AOC/(mmol/L) 12.56±1.93a 16.89±1.40b 0.004
超氧化物歧化酶 SOD/(U/mL) 217.34±32.70a 303.80±34.37b 0.004
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 288.94±17.43a 412.44±40.15b <0.001
过氧化氢酶 CAT/(U/mL) 37.70±6.36a 63.86±5.65b <0.001
丙二醛 MDA/(mmol/L) 8.64±0.69b 5.46±0.91a <0.001

2.4 GLP对犊牛血清DAO活性和免疫指标的影响

表7可知,与对照组相比,GLP10组犊牛血清DAO活性和TNF-α含量显著降低(P<0.05),血清IgA、IgM、IgG、IL-2和IL-4含量显著提高(P<0.05)。
表7 GLP对犊牛血清DAO活性和免疫指标的影响

Table 7 Effects of GLP on serum DAO activity and immune indices of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP10
二胺氧化酶 DAO/(U/mL) 23.15±1.88b 15.43±2.36a <0.001
免疫球蛋白A IgA/(mg/mL) 2.04±0.30a 2.71±0.18b 0.003
免疫球蛋白G IgG/(mg/mL) 12.61±2.91a 20.20±1.84b 0.001
免疫球蛋白M IgM/(mg/mL) 3.95±0.53a 5.88±0.47b <0.001
白细胞介素-2 IL-2/(pg/mL) 159.46±30.95a 228.10±44.67b 0.022
白细胞介素-4 IL-4/(pg/mL) 39.84±4.53a 60.87±6.01b <0.001
肿瘤坏死因子-α TNF-α/(pg/mL) 203.76±29.07b 124.28±16.58a <0.001

2.5 GLP对犊牛粪便菌群的影响

2.5.1 粪便菌群α多样性分析

α多样性分析可以反映微生物群落的丰富度、多样性和均匀度。由表8可知,与对照组相比,GLP10组犊牛粪便菌群Chao1指数、Shannon指数和Simpson指数均显著提高(P<0.05),说明饲粮添加10 g/(头·d)GLP可提高哺乳期犊牛粪便菌群的丰富度、多样性和均匀度。
表8 GLP对犊牛粪便菌群α多样性的影响

Table 8 Effects of GLP on α diversity of fecal microbiota of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP10
Chao1指数 Chao1 index 927.81±71.60a 1 303.58±129.13b 0.002
Shannon指数 Shannon index 7.45±0.05a 8.22±0.07b <0.001
Simpson指数 Simpson index 0.98±0.00a 0.99±0.00b <0.001
Coverage指数 Coverage index 0.99±0.00 0.99±0.00 0.070

2.5.2 粪便菌群组成分析

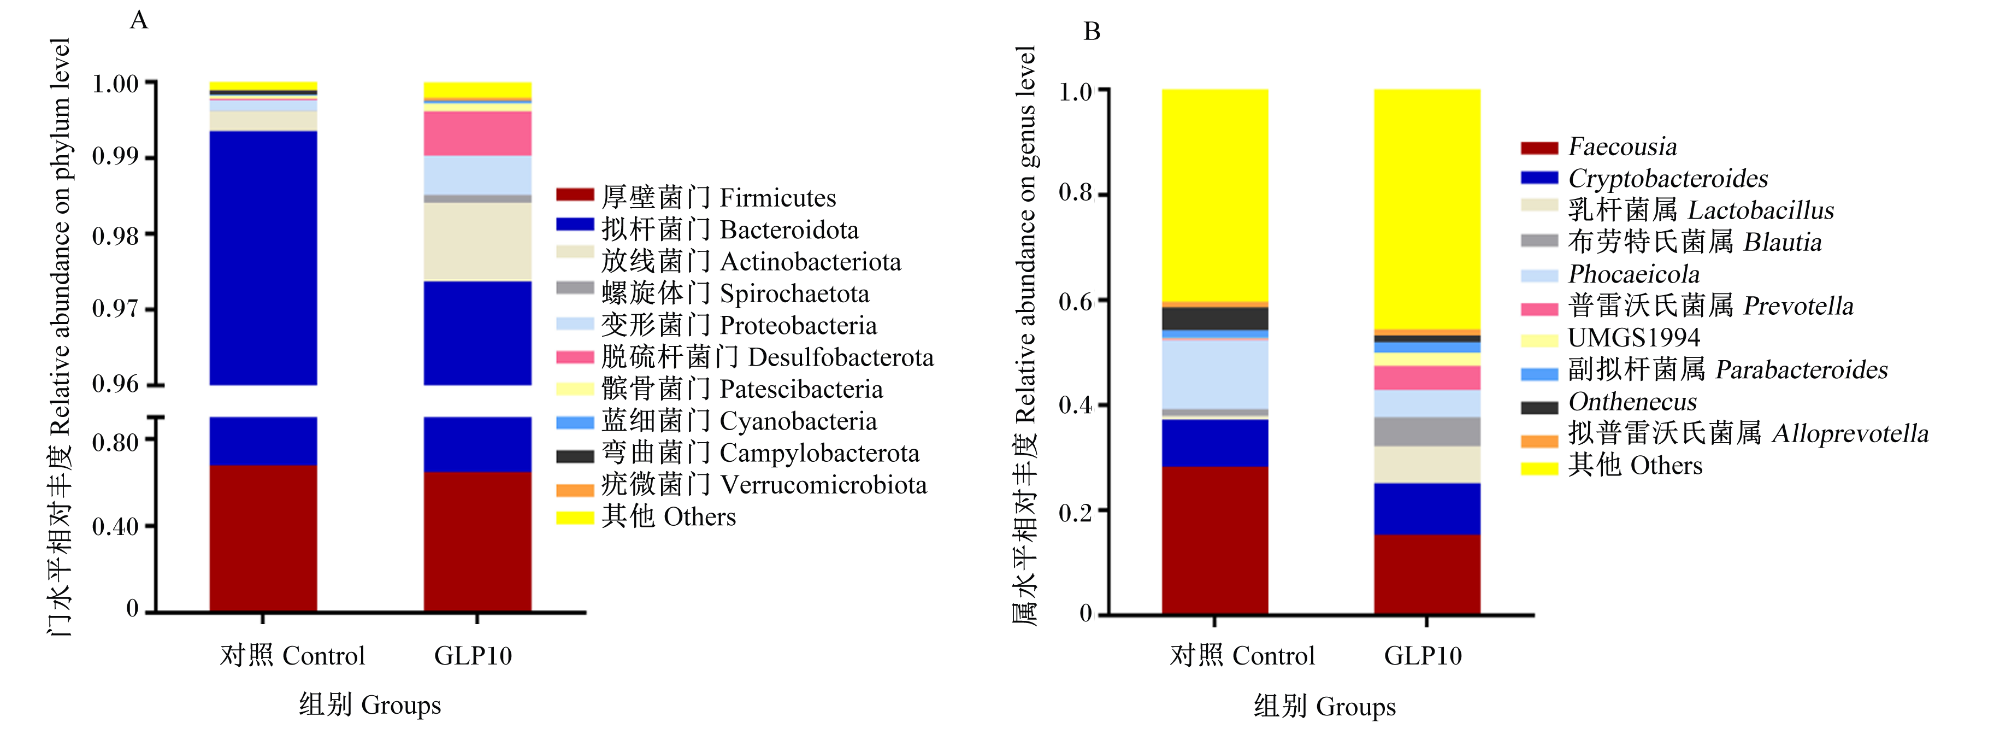
图1-A表9可知,在门水平上,各组犊牛粪便菌群优势菌门主要由厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、放线菌门(Actinobacteriota)和变形菌门(Proteobacteria)组成。与对照组相比,GLP10组厚壁菌门和拟杆菌门相对丰度无显著差异(P>0.05),但厚壁菌门/拟杆菌门值减小;GLP10组放线菌门和变形菌门相对丰度显著提高(P<0.05)。
图1 GLP对犊牛粪便菌群组成的影响

Fig.1 Effects of GLP on fecal microbiota composition of calves

表9 GLP对犊牛粪便菌群优势菌门相对丰度的影响

Table 9 Effects of GLP on relative abundances of dominant bacterial phyla in fecal microbiota of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP10
厚壁菌门 Firmicutes 0.679 2±0.010 8 0.647 2±0.015 8 0.080
拟杆菌门 Bacteroidota 0.314 4±0.004 5 0.326 6±0.016 4 0.202
放线菌门 Actinobacteriota 0.002 6±0.000 5a 0.010 4±0.000 8b <0.001
变形菌门 Proteobacteria 0.001 4±0.000 1a 0.005 2±0.000 4b <0.001
图1-B表10可知,在属水平上,各组犊牛粪便菌群优势菌属主要由FaecousiaCryptobacteroidesPhocaeicola、乳杆菌属(Lactobacillus)和布劳特氏菌属(Blautia)组成。与对照组相比,GLP10组Cryptobacteroides、乳杆菌属和布劳特氏菌属相对丰度显著提高(P<0.05),FaecousiaPhocaeicola相对丰度显著降低(P<0.05)。
表10 GLP对犊牛粪便菌群优势菌属相对丰度的影响

Table 10 Effects of GLP on relative abundances of dominant bacterial genera in fecal microbiota of calves

项目
Items
组别 Groups P
P-value
对照 Control GLP10
Faecousia 0.282 8±0.015 9b 0.153 8±0.010 5a <0.001
Cryptobacteroides 0.089 1±0.001 9a 0.097 9±0.002 6b 0.002
Phocaeicola 0.131 4±0.002 4b 0.051 8±0.004 0a <0.001
乳杆菌属 Lactobacillus 0.007 8±0.002 2a 0.070 1±0.011 7b <0.001
布劳特氏菌属 Blautia 0.012 7±0.001 4a 0.055 2±0.009 6b <0.001

2.6 犊牛生长性能、体尺指标、粪便评分和腹泻率与粪便优势菌属相关性分析

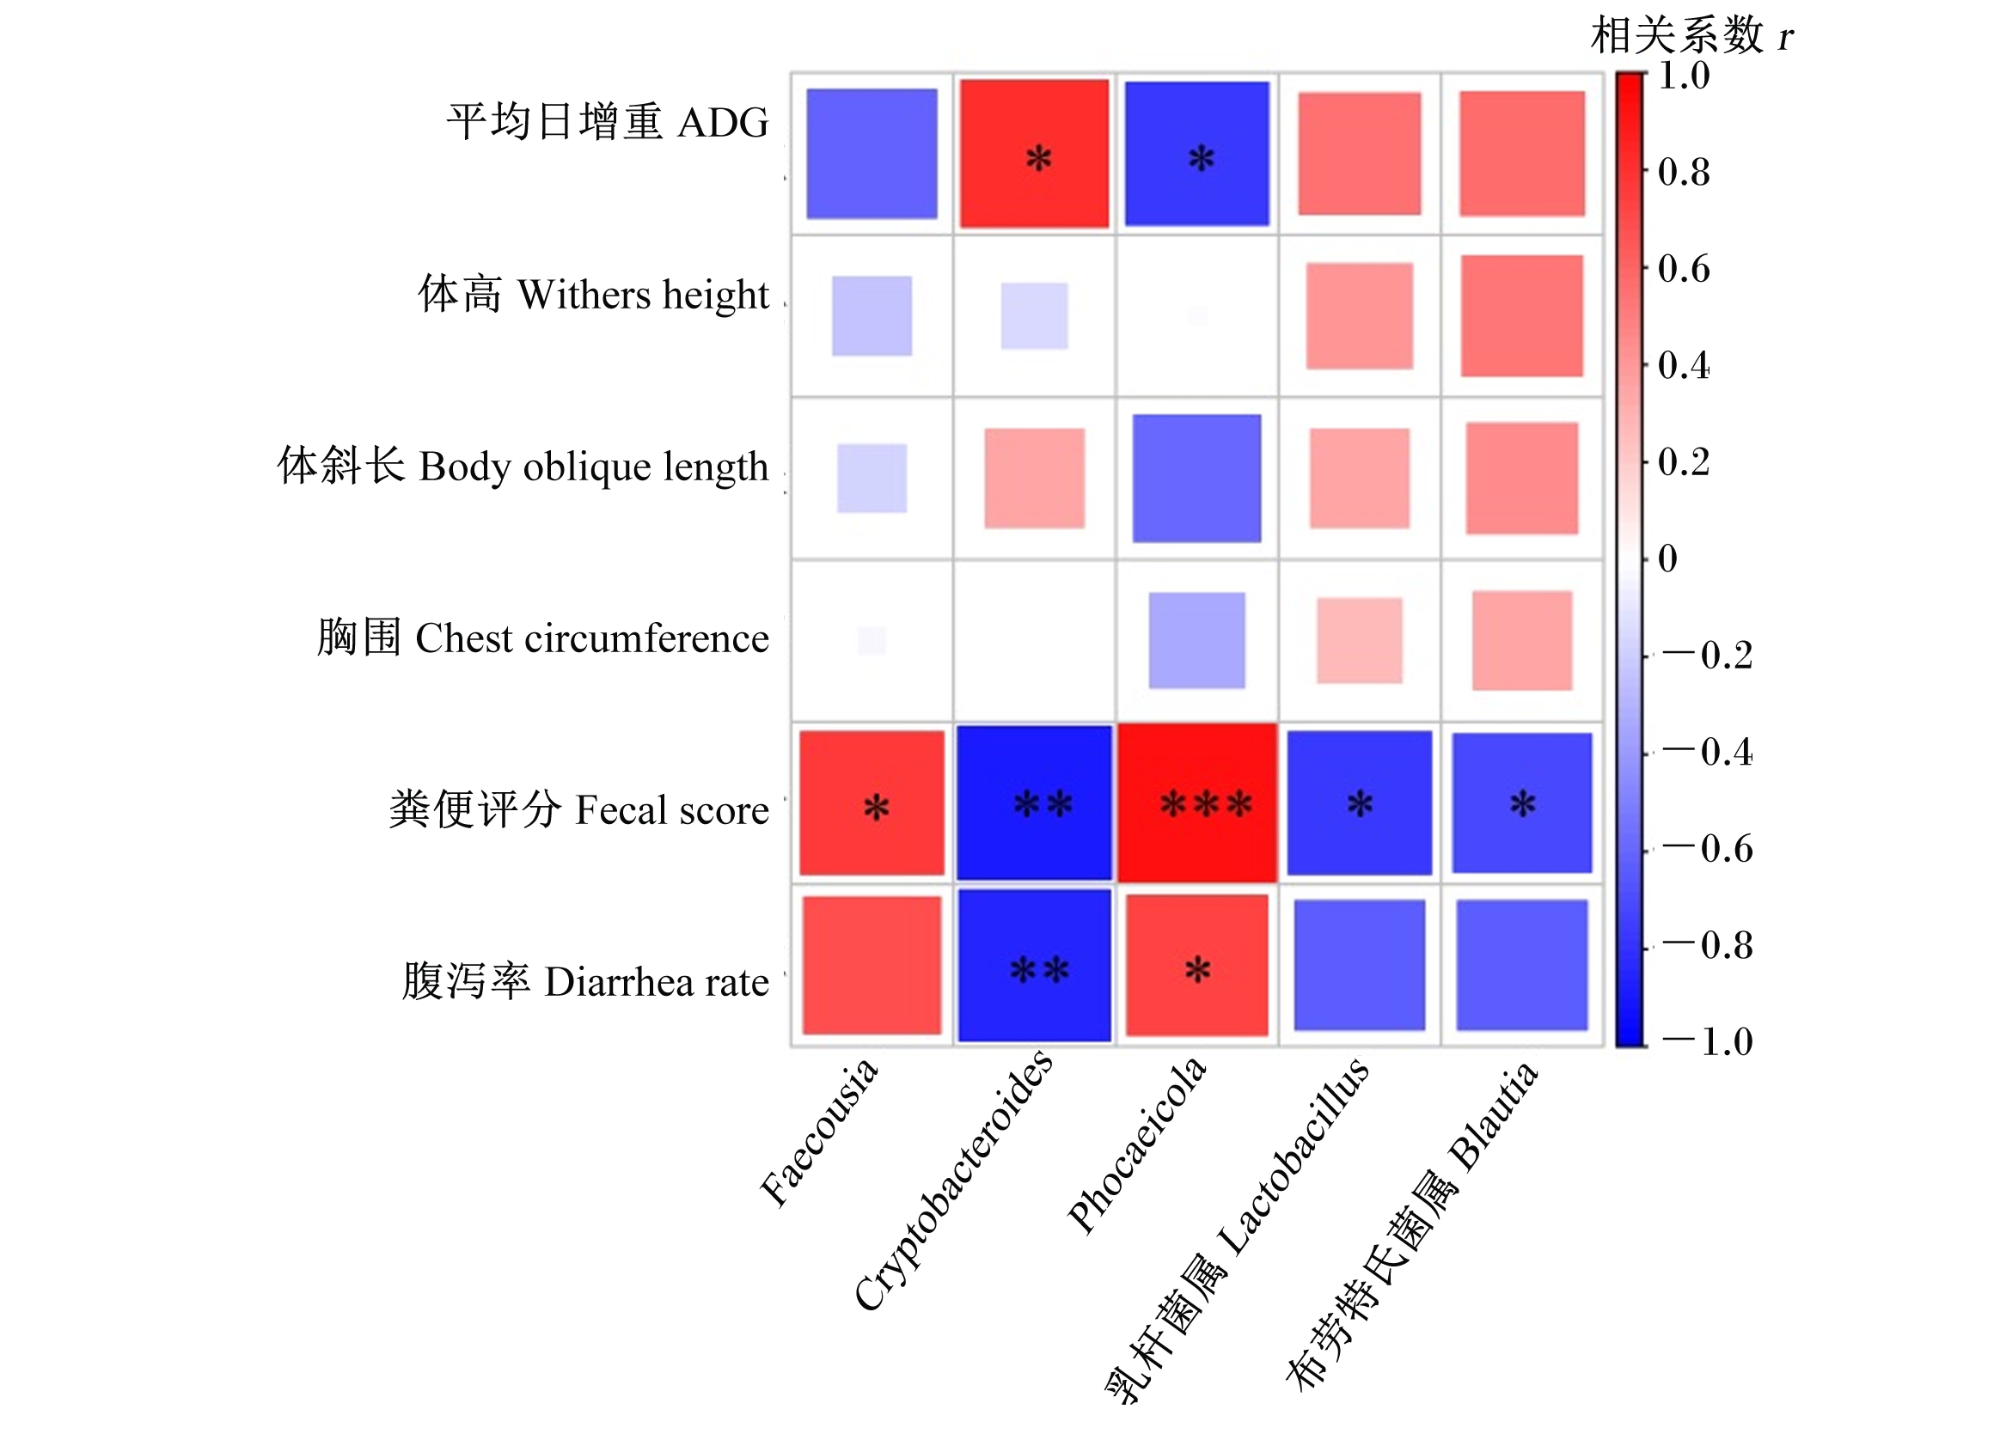
图2所示,犊牛粪便Faecousia相对丰度与粪便评分呈显著正相关(P<0.05);粪便Cryptobacteroides相对丰度与ADG呈显著正相关(P<0.05),与粪便评分和腹泻率呈极显著负相关(P<0.01);粪便Phocaeicola相对丰度与ADG呈显著负相关(P<0.05),与粪便评分和腹泻率呈显著或极显著正相关(P<0.05或P<0.01);粪便乳杆菌属和布劳特氏菌属相对丰度与粪便评分呈显著负相关(P<0.05)。
图2 犊牛生长性能、体尺指标、粪便评分和腹泻率与粪便优势菌属相关性分析

*表示显著相关(P<0.05),**(P<0.01)和***(P<0.001)表示极显著相关。

Fig.2 Correlation analysis of growth performance, body size indices, fecal score and diarrhea rate with fecal dominant bacterial genera of calves

* indicated significant correlation (P<0.05), and ** (P<0.01) and *** (P<0.001) indicated extremely significant correlation.

3 讨论

3.1 GLP对犊牛生长性能、体尺指标和腹泻情况的影响

早期生长性能、体尺指标和腹泻情况是评价犊牛培育成败的核心指标[14]。董金金等[15]研究发现,与对照组相比,饲粮添加3 g/(头·d)酵母多糖可显著提高哺乳期荷斯坦犊牛ADG,且有提高犊牛体高、体斜长、胸围和管围的趋势,并有效降低了腹泻率。张雨等[16]研究表明,哺乳期荷斯坦犊牛基础饲粮添加10~20 g/(头·d)香菇多糖未显著提高ADG,但较对照组呈提高趋势。莘余等[17]研究发现,新生荷斯坦犊牛牛奶中添加400 mg/kg葛根多糖,连续饲喂5 d,能够降低犊牛腹泻率。郑梦荷等[18]研究表明,饲粮添加10 g/(头·d)枸杞多糖可显著提高犊牛体重及ADG。这种差异可能源于不同多糖的化学结构、分子质量及在反刍动物瘤胃内降解特性的不同,进而影响其生物可利用性和作用模式,但不可否认的是在犊牛饲粮添加适量植物多糖是可以有效改善其生长性能和健康状况的。本研究发现,饲粮添加10 g/(头·d)GLP可以显著提高哺乳期肉牛犊牛终末体重和ADG,一定程度上提高体尺指标,并显著降低粪便评分和腹泻率,说明GLP有利于提高肉犊牛生长性能和健康水平。这为GLP作为一种新型、高效的犊牛功能性饲料添加剂的开发与应用提供了直接且关键的剂量依据。

3.2 GLP对犊牛血清生化指标的影响

血清GLU含量是评估机体糖代谢状态的核心指标。TP由白蛋白和球蛋白组成,主要反映肝脏合成功能及蛋白质代谢平衡。TG主要反映机体脂质代谢状态,其异常与多种疾病相关。血液中的UN是评估动物蛋白质代谢和氮平衡的重要指标,其含量变化可反映机体对营养物质的利用效率及代谢状态。ALT和AST作为肝脏功能的重要生物标志物,其血清活性变化可反映肝细胞损伤状态。本试验中,饲粮添加10 g/(头·d)GLP可以显著降低犊牛血清ALT活性,而对血清TP、GLU、TG、UN含量及AST活性未产生显著影响,说明饲粮添加GLP对犊牛代谢和肝脏功能未产生负面影响。这一结果具有重要意义:首先,血清ALT活性显著降低提示GLP可能对犊牛肝脏具有一定的保护作用,有助于减轻潜在的肝细胞膜损伤或改善肝细胞能量代谢;其次,血清TP、GLU、TG、UN含量等关键代谢指标未发生显著波动,说明在此添加剂量下,GLP并未扰乱犊牛正常的糖、脂和蛋白质基础代谢,体现出良好的生物安全性。值得注意的是,GLP10组犊牛血清TP、GLU和TG含量较对照组均呈一定程度的升高趋势,原因可能是添喂GLP促进了机体蛋白质、脂肪和糖类的合成代谢;同时,GLP也可能被犊牛肠道菌群利用生成短链脂肪酸运送至肝脏用于合成糖和脂质;此外,GLP本身的免疫调节和抗氧化作用也可能改善了机体的整体代谢环境,间接促进了营养物质的同化。这与饲喂枸杞多糖对荷斯坦犊牛血清生化指标影响的研究结果[19]相似,这为GLP改善犊牛生长性能提供了内在的生理生化基础。

3.3 GLP对犊牛血清抗氧化指标的影响

动物机体通过抗氧化系统与自由基生成速率形成动态稳态,维持氧化还原稳态对细胞功能和机体健康至关重要。T-AOC是评价机体抗氧化系统功能的核心指标;SOD活性是评估机体清除自由基水平的关键指标;GSH-Px可使机体免受氧化损伤,是细胞防御的重要组成部分;MDA含量升高直接反映脂质过氧化程度。GLP具有增强机体抗氧化酶活性、有效清除自由基的功能[20]。覃娟清等[21]研究发现,饲粮添加GLP可显著提高闽西南黑兔血清SOD和GSH-Px活性,显著降低血清MDA含量。郑丹等[22]研究表明,奶牛饲粮添加灵芝菌丝发酵菌质可提高血清T-AOC和SOD活性,降低血清MDA含量。本研究发现,饲粮添加10 g/(头·d)GLP显著提高犊牛血清T-AOC以及SOD、GSH-Px和CAT活性,显著降低血清MDA含量,说明GLP能够增强犊牛机体抗氧化功能。目前研究已确定,GLP通过上调核因子E2相关因子2(Nrf2)基因表达,下调Kelch样环氧氯丙烷相关蛋白1(Keap1)基因表达,使Nrf2与Keap1蛋白解偶联,释放Nrf2进入细胞核,Nrf2与核内Maf蛋白形成异源二聚体后与抗氧化反应元件(ARE)结合,促进血红素氧合酶-1、醌氧化还原酶-1、SOD等抗氧化酶基因表达,在细胞抗氧化系统中发挥关键作用[23]。另外,GLP也具有较强的自由基清除能力,能直接清除超氧阴离子自由基和羟基自由基,从而缓解氧化应激对机体的损伤[24]。上述结果说明,GLP可能通过激活相关信号通路调控多种抗氧化酶相关基因表达或直接清除多种自由基发挥抗氧化作用。虽然目前对GLP的抗氧化作用机制已有一定了解,但其在动物体内的具体作用机制仍需进一步深入研究。

3.4 GLP对犊牛血清DAO活性和免疫指标的影响

DAO是肠黏膜细胞高度活跃的胞内酶,主导核酸和蛋白质的合成代谢,通过调控细胞增殖影响肠黏膜通透性,其活性动态变化可作为评估肠道机械屏障完整性、成熟度及通透性异常的敏感生物学标志物[25]。本研究结果表明,GLP10组犊牛血清DAO活性显著低于对照组。吴海涛等[26]研究发现,葛根多糖在增强腹泻犊牛机体抗氧化功能的同时,可显著降低腹泻犊牛血清DAO活性。本试验结果与上述试验结果相似,说明饲粮添加GLP可有效维护犊牛肠道通透性,保障肠道屏障的完整性。
IgA、IgG和IgM是动物机体内重要的免疫球蛋白,主要功能是通过特异性识别并结合抗原来介导体液免疫应答,从而发挥抗感染、免疫调节等生物学作用,其含量与机体的免疫功能密切相关[27]。细胞因子作为血清中关键的免疫调节分子,在机体炎症与抗炎动态平衡中发挥着重要作用。IL-2作为一种具有多效生物学功能的细胞因子,不仅能够促进T细胞增殖分化,维持免疫应答的持续性,也能激活自然杀伤(NK)细胞和B细胞,增强抗肿瘤及抗病毒免疫活性[28]。IL-4是关键的抗炎细胞因子,TNF-α是关键的促炎细胞因子,IL-4和TNF-α含量可以反映机体炎症反应的情况[29]。本研究结果显示,饲粮添加10 g/(头·d)GLP显著提高哺乳期犊牛血清IgA、IgG、IgM、IL-2和IL-4含量,显著降低血清TNF-α含量,说明GLP可以增强犊牛免疫机能。此外,研究证实,植物多糖具有免疫调节作用,可激活各种免疫细胞,促进多种细胞因子的分泌和抗体的生成,进而增强机体免疫功能[30-31]。吕尚揆等[32]研究发现,牛奶中连续5 d添加400 mg/kg BW葛根多糖可以提高新生健康荷斯坦犊牛血清IgA、IgG和IgM含量。王琪茹等[33]研究表明,代乳粉添加10 g/(头·d)木耳多糖能够显著提高犊牛血清IgA和IL-2含量。张雨等[16]研究表明,哺乳期荷斯坦犊牛饲喂添加10~20 g/(头·d)香菇多糖的代乳粉可显著提高血清IgA、IgG、IgM和IL-2含量,显著降低血清TNF-α含量。本试验结果与上述试验结果相似,说明GLP可通过调节机体免疫球蛋白及细胞因子含量,增强犊牛免疫功能。

3.5 GLP对犊牛粪便菌群的影响

犊牛肠道微生物群落的稳态与其生长发育和健康状况密切相关,通过调控肠道微环境的菌群稳态可促进营养物质的消化吸收,有效提升机体免疫机能和抗病力[34]。α多样性是衡量微生物群落丰富度、多样性和均匀度的重要指标。Chao1指数、Shannon指数和Simpson指数代表α多样性,其中Chao1指数反映样本物种的丰富度,Shannon指数反映样本物种的多样性,Simpson指数反映群落的均匀度,其对优势种的变化敏感。Zhang等[35]研究发现,GLP可有效提高小鼠肠道微生物群落的多样性。Gao等[36]研究表明,肉鸡饲粮添加灵芝提取物显著提高盲肠微生物群落多样性和丰富度。本试验结果与上述试验结果相似,说明GLP能够提高犊牛粪便微生物群落丰富度和多样性。
厚壁菌门和拟杆菌门是哺乳动物胃肠道中的优势菌群,厚壁菌门的主要功能是高效降解植物性粗纤维,参与能量获取与储存[37];拟杆菌门在复杂碳水化合物降解和短链脂肪酸合成过程中发挥重要作用[38]。本研究发现,对照组和GLP10组西门塔尔犊牛粪便中厚壁菌门和拟杆菌门相对丰度较高,占主导地位,其所占比例高于放线菌门和变形菌门,但2组间厚壁菌门和拟杆菌门相对丰度无显著差异。尽管饲粮添加10 g/(头·d)GLP未显著影响犊牛粪便厚壁菌门和拟杆菌门相对丰度,但显著提高了厚壁菌门中的重要有益菌属(乳杆菌属和布劳特氏菌属)以及拟杆菌门中的重要有益菌属(Cryptobacteroides)相对丰度。另外,研究发现,厚壁菌门/拟杆菌门值是反映动物肠道健康状况的重要指标,其值提高将导致肠道菌群稳态失衡,引发肠道肠黏膜屏障功能障碍或炎症的发生[39]。研究表明,GLP能够降低小鼠肠道厚壁菌门/拟杆菌门值[35]。重要的是,本研究发现,与对照组相比,GLP10组西门塔尔犊牛粪便厚壁菌门相对丰度呈降低趋势,粪便拟杆菌门相对丰度呈升高趋势,因此降低了厚壁菌门/拟杆菌门值,这有利于维持犊牛肠道健康。另外,放线菌门通过降解多种有机物,产生多种酶和有机酸,抑制病原菌生长,维持肠道微生态平衡,并增强机体免疫机能和抗病力[40]。变形菌门在肠道中保持适宜比例对维持微生态平衡至关重要,其通过消耗氧气创造低氧环境,为厌氧菌的定植和持续生长提供有利条件,从而促进肠道菌群稳定[41]。本研究结果显示,与对照组相比,GLP10组西门塔尔犊牛粪便放线菌门和变形菌门相对丰度显著提高。这些研究结果说明,GLP可在门和属水平上改善哺乳期犊牛肠道菌群结构。

4 结论

本试验结果表明,饲粮添加10 g/(头·d) GLP能够提高哺乳期肉牛犊牛生长性能,降低腹泻发生,增强机体免疫功能和抗氧化能力,同时改善粪便菌群结构,促进机体健康。
[1]
SANGUINETTI V M, STRONG K, AGBESE S P, et al. A systematic review of disease control strategies in beef cow-calf herds,part 2:preweaned calf morbidity and mortality associated with neonatal calf diarrhea and bovine respiratory disease[J]. Animal Health Research Reviews, 2025, 25:e1.

DOI

[2]
YANG M H, QIN X M, LIU X J. A review of polysaccharides from Ganoderma lucidum:preparation methods,structural characteristics,bioactivities,structure-activity relationships and potential applications[J]. International Journal of Biological Macromolecules, 2025, 303:140645.

DOI

[3]
LU J H, HE R J, SUN P L, et al. Molecular mechanisms of bioactive polysaccharides from Ganoderma lucidum (Lingzhi),a review[J]. International Journal of Biological Macromolecules, 2020, 150:765-774.

DOI

[4]
GUO C L, GUO D D, FANG L, et al. Ganoderma lucidum polysaccharide modulates gut microbiota and immune cell function to inhibit inflammation and tumorigenesis in colon[J]. Carbohydrate Polymers, 2021, 267:118231.

DOI

[5]
GUO W L, LIU W K, LIANG P, et al. High molecular weight polysaccharides from Ganoderma lucidum attenuates inflammatory responses,gut microbiota,and liver metabolomic in lipopolysaccharide-induced liver injury mice[J]. International Journal of Biological Macromolecules, 2025, 287:138400.

DOI

[6]
LIU X Q, LI Y B, WANG J W, et al. Polysaccharides from Ganoderma lucidum attenuate cognitive impairment in 5×FAD mice by inhibiting oxidative stress and modulating mitochondrial dynamics via the Nrf2/antioxidative axis activation[J]. Metabolic Brain Disease, 2025, 40(4):180.

DOI

[7]
CHEN S D, HSIEH M C, CHIOU M T, et al. Effects of fermentation products of Ganoderma lucidum on growth performance and immunocompetence in weanling pigs[J]. Archives of Animal Nutrition, 2008, 62(1):22-32.

DOI

[8]
AVAIN A, AZAD M A K, GARCÍA Y, et al. Effects of Ganoderma lucidum powder on the growth performance,immune organ weights,cecal microbiology,serum immunoglobulins,and tibia minerals of broiler chickens[J]. Veterinary Sciences, 2024, 11(12):675.

DOI

[9]
霍小龙, 张洁, 霍小刚. 酵母多糖对犊牛机体免疫力的影响[J]. 中国动物保健, 2024, 26(10):91-92.

HUO X L, ZHANG J, HUO X G. The effect of yeast polysaccharides on the immune system of calves[J]. China Animal Health, 2024, 26(10):91-92. (in Chinese)

[10]
董金金, 高艳霞, 李妍, 等. 酵母多糖对哺乳犊牛胃肠道发育及消化酶活性的影响[J]. 动物营养学报, 2018, 30(12):5247-5254.

DONG J J, GAO Y X, LI Y, et al. Effects of yeast polysaccharide on gastrointestinal development and digestive enzyme activity of sucking calves[J]. Chinese Journal of Animal Nutrition, 2018, 30(12):5247-5254. (in Chinese)

[11]
TAN L, LI X, FAN C Y, et al. Supplementation of lentinan improves lactation performance by altering ruminal microorganisms and metabolites in dairy cows[J]. Animal Nutrition, 2025, 21:107-118.

DOI PMID

[12]
冯亚杰, 楚秋霞, 乔智慧, 等. 葛根多糖对犊牛生长性能、免疫功能及肠道菌群的影响[J]. 饲料研究, 2024, 47(23):12-15.

FENG Y J, CHU Q X, QIAO Z H, et al. Effects of Pueraria lobata polysaccharides on growth performance,immune function,and intestinal flora of calves[J]. Feed Research, 2024, 47(23):12-15. (in Chinese)

[13]
MAGALHÃES V J A, SUSCA F, LIMA F S, et al. Effect of feeding yeast culture on performance,health,and immunocompetence of dairy calves[J]. Journal of Dairy Science, 2008, 91(4):1497-1509.

DOI

[14]
于向宇, 张桂杰, 陈晓东. 植物多糖生物活性及其在反刍动物生产中应用的研究进展[J]. 中国畜牧兽医, 2025, 52(6):2626-2636.

DOI

YU X Y, ZHANG G J, CHEN X D. Research progress on biological activities of plant polysaccharides and their application in ruminant production[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(6):2626-2636. (in Chinese)

[15]
董金金, 高艳霞, 李妍, 等. 酵母多糖对哺乳犊牛生长性能、消化代谢和血清生化指标的影响[J]. 动物营养学报, 2018, 30(11):4650-4659.

DONG J J, GAO Y X, LI Y, et al. Effects of yeast polysaccharide on growth performance,digestion metabolism and serum biochemical indexes of sucking calves[J]. Chinese Journal of Animal Nutrition, 2018, 30(11):4650-4659. (in Chinese)

[16]
张雨, 王琪茹, 师鑫潮, 等. 香菇多糖对犊牛生长性能、肠道微生物多样性、血清抗氧化能力和免疫功能的影响[J]. 黑龙江畜牧兽医, 2024(13):85-90,97,112.

ZHANG Y, WANG Q R, SHI X C, et al. Effects of lentinan polysaccharides on growth performance,intestinal microbiota diversity,serum antioxidant capacity and immune function of calves[J]. Heilongjiang Animal Science and Veterinary Medicine, 2024(13):85-90,97,112. (in Chinese)

[17]
莘余, 吕尚揆, 尤留超, 等. 葛根多糖对健康犊牛基础临床指标、生理生化指标及血浆代谢物的影响[J]. 动物营养学报, 2022, 34(10):6609-6619.

DOI

SHEN Y, LV S K, YOU L C, et al. Effects of Pueraria polysaccharides on basic clinical indices,physiological and biochemical indices and plasma metabolites of healthy calves[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6609-6619. (in Chinese)

DOI

[18]
郑梦荷, 徐丽云, 许子豪, 等. 枸杞多糖对犊牛生长性能、消化水平、免疫功能及抗氧化能力的影响[J]. 饲料研究, 2023, 46(7):1-5.

ZHENG M H, XU L Y, XU Z H, et al. Effect of Lycium barbarum polysaccharide on growth performance,digestion level,immunity and antioxidant capacity of calves[J]. Feed Research, 2023, 46(7):1-5. (in Chinese)

[19]
郑梦荷, 阮飞, 徐丽云, 等. 枸杞多糖对犊牛生长性能、血清生化指标及激素水平的影响[J]. 中国饲料, 2022(17):31-36.

ZHENG M H, RUAN F, XU L Y, et al. Effects of Lycium barbarum polysaccharide on growth performance,serum biochemical indexes and hormone levels of calves[J]. China Feed, 2022(17):31-36. (in Chinese)

[20]
SEWERYN E, ZIAŁA A, GAMIAN A. Health-promoting of polysaccharides extracted from Ganoderma lucidum[J]. Nutrients, 2021, 13(8):2725.

DOI

[21]
覃娟清, 杜志坚, 张富, 等. 菌草灵芝多糖肽对闽西南黑兔生长性能、血液生化指标及免疫机能的影响[J]. 西北农林科技大学学报(自然科学版), 2024, 52(4):49-56,84.

QIN J Q, DU Z J, ZHANG F, et al. Effects of juncao Ganoderma lucidum polysaccharide peptide on growth performance,blood biochemical indexes and immune function of Minxinan black rabbits[J]. Journal of Northwest A&F University (Natural Science Edition), 2024, 52(4):49-56,84. (in Chinese)

[22]
郑丹, 师静, 林占熺. 鲜菌草与灵芝菌丝发酵菌质对奶牛免疫机能及抗氧化能力的影响[J]. 中国奶牛, 2017(7):46-49.

ZHENG D, SHI J, LIN Z X. Effect of the fermentation products by fresh JUNCAO and Ganoderma lucidum on immune function and antioxidant capacity of dairy cows[J]. China Dairy Cattle, 2017(7):46-49. (in Chinese)

[23]
SHI X Q, CHENG W J, WANG Q, et al. Exploring the protective and reparative mechanisms of G. lucidum polysaccharides against H2O2-induced oxidative stress in human skin fibroblasts[J]. Clinical,Cosmetic and Investigational Dermatology, 2021, 14:1481-1496.

DOI

[24]
ZHANG H, LI N N, ZHANG Y K, et al. Ganoderma lucidum polysaccharide peptide alleviates cyclophosphamide-induced male reproductive injury by reducing oxidative stress and apoptosis[J]. Biomedicines, 2024, 12(8):1632.

DOI

[25]
ONO M, ISHII A, ARITSUNE M, et al. Changes in serum concentration and activity of diamine oxidase during the first month of life in calves[J]. Journal of Veterinary Medical Science, 2023, 85(4):417-419.

DOI PMID

[26]
吴海涛, 莘余, 吕尚揆, 等. 葛根多糖对腹泻犊牛炎性因子含量、抗氧化能力、免疫功能、DAO活性及肠道菌群的影响[J]. 四川农业大学学报, 2023, 41(4):698-706.

WU H T, SHEN Y, LV S K, et al. Effects of pueraria polysaccharides on contents of inflammatory factors,antioxidant capacity,immune function,DAO activity and intestinal microflora of neonatal diarrheic calves[J]. Journal of Sichuan Agricultural University, 2023, 41(4):698-706. (in Chinese)

[27]
YUAN C, MA X Y, JIANG M C, et al. Effects of tea tree oil on production performance,serum parameter indices,and immunity in postpartum dairy cows[J]. Animals, 2023, 13(4):682.

DOI

[28]
ABBAS A K, TROTTA E, R SIMEONOV D, et al. Revisiting IL-2:biology and therapeutic prospects[J]. Science Immunology, 2018, 3(25):eaat1482.

DOI

[29]
HEIDARI A, FATHABADI F, GHANAVATI K, et al. A systematic review of the role of interleukin inhibitors in lichen planus:therapeutic and paradoxical effects[J]. Inflammopharmacology, 2025, 33(8):4237-4274.

DOI

[30]
ZENG P J, LI J, CHEN Y L, et al. The structures and biological functions of polysaccharides from traditional Chinese herbs[J]. Progress in Molecular Biology and Translational Science, 2019, 163:423-444.

DOI PMID

[31]
ZHAO G L, NIU Y, WANG H X, et al. Effects of three different plant-derived polysaccharides on growth performance,immunity,antioxidant function,and cecal microbiota of broilers[J]. Journal of the Science of Food and Agriculture, 2024, 104(2):1020-1029.

DOI

[32]
吕尚揆, 莘余, 樊磊, 等. 葛根多糖对犊牛血清抗氧化、免疫指标及肠道菌群的影响[J]. 动物营养学报, 2023, 35(3):1696-1704.

DOI

LV S K, SHEN Y, FAN L, et al. Effects of Pueraria polysaccharides on serum antioxidant and immune indexes and gut microbiota of calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1696-1704. (in Chinese)

[33]
王琪茹, 张雨, 姜国均, 等. 木耳多糖对犊牛血清抗氧化、免疫指标及肠道菌群的影响[J]. 中国兽医学报, 2024, 44(6):1290-1298.

WANG Q R, ZHANG Y, JIANG G J, et al. Effects of agaric polysaccharides on antioxidant capacity,serum immune indexes and intestinal flora of calves[J]. Chinese Journal of Veterinary Science, 2024, 44(6):1290-1298. (in Chinese)

[34]
LI X Q, YANG X L, LIU S X, et al. Yeast culture improves growth,antioxidant status,immunity,and gut microbiota homeostasis in preweaning Holstein calves[J]. Frontiers in Veterinary Science, 2025, 12:1670912.

DOI

[35]
ZHANG X T, YANG Y, JI C L, et al. Ganoderma lucidum polysaccharides reduce the severity of acute liver injury by improving the diversity and function of the gut microbiota[J]. Heliyon, 2024, 10(15):e35559.

DOI

[36]
GAO Y Y, LIU X P, ZHOU Y H, et al. The addition of hot water extract of Juncao-substrate Ganoderma lucidum residue to diets enhances growth performance,immune function,and intestinal health in broilers[J]. Animals, 2024, 14(20):2926.

DOI

[37]
SUN Y G, ZHANG S S, NIE Q X, et al. Gut firmicutes:relationship with dietary fiber and role in host homeostasis[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(33):12073-12088.

DOI

[38]
SPENCE C, WELLS W G, SMITH C J. Characterization of the primary starch utilization operon in the obligate anaerobe Bacteroides fragilis:regulation by carbon source and oxygen[J]. Journal of Bacteriology, 2006, 188(13):4663-4672.

DOI

[39]
YANG Q, LIANG Q, BALAKRISHNAN B, et al. Role of dietary nutrients in the modulation of gut microbiota:a narrative review[J]. Nutrients, 2020, 12(2):381.

DOI

[40]
BINDA C, LOPETUSO L R, RIZZATTI G, et al. Actinobacteria:a relevant minority for the maintenance of gut homeostasis[J]. Digestive and Liver Disease, 2018, 50(5):421-428.

DOI

[41]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

DOI

文章导航

/