研究论文

N-氨甲酰谷氨酸对断奶仔兔肠道黏膜屏障功能的改善作用

  • 姚瑶 , 1, 2 ,
  • 秦枫 , 1, 2, * ,
  • 翟频 1, 2 ,
  • 杨杰 1, 2 ,
  • 邵乐 1, 2 ,
  • 李健 1, 2 ,
  • 张霞 1, 2
展开
  • 1 江苏省农业科学院畜牧研究所, 南京 210014
  • 2 农业部种养结合重点实验室, 南京 210014
* 秦 枫,副研究员,E-mail:

姚 瑶(1995—),女,山西忻州人,博士,助理研究员,研究方向为动物营养与饲料科学。E-mail:

Office editor: 菅景颖

收稿日期: 2025-11-05

  网络出版日期: 2026-06-13

基金资助

国家兔产业技术体系南京综合试验站(CARS-43-G-2)

Improvement Effect of N-Carbamylglutamate on Intestinal Mucosal Barrier Function of Weaned Rabbit Kits

  • YAO Yao , 1, 2 ,
  • QIN Feng , 1, 2, * ,
  • ZHAI Pin 1, 2 ,
  • YANG Jie 1, 2 ,
  • SHAO Le 1, 2 ,
  • LI Jian 1, 2 ,
  • ZHANG Xia 1, 2
Expand
  • 1 Institute of Animal Science, Jiangsu Academy of Agricultural Sciences, Nanjing 210014, China
  • 2 Key Laboratory of Crop and Livestock Integrated Farming, Ministry of Agriculture, Nanjing 210014, China
* associate professor, E-mail:

Received date: 2025-11-05

  Online published: 2026-06-13

摘要

本试验旨在探究N-氨甲酰谷氨酸(NCG)对断奶仔兔肠道黏膜屏障功能的改善作用。选取3周龄新西兰白兔仔兔90只,随机分为母兔哺乳组(NC组)、断奶应激组(WS组)和NCG干预组(NCG组),每组10个重复,每个重复3只仔兔。NC组仔兔在试验期内由母兔进行自然哺乳;WS组与NCG组仔兔在3周龄断奶后独立饲养,其中WS组饲喂基础饲粮,NCG组则在基础饲粮中添加600 mg/kg NCG。试验期14 d。结果显示:1)与WS组相比,饲粮中添加NCG显著提高了断奶仔兔的生长性能(P<0.05),显著降低了腹泻率(P<0.05),并显著改善了空肠组织形态(P<0.05),表现为绒毛高度增加、隐窝深度变浅、绒隐比升高以及杯状细胞数量增多。2)与WS组相比,饲粮中添加NCG显著降低了断奶仔兔血清中二胺氧化酶(DAO)活性和肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)水平(P<0.05),显著上调了空肠黏膜中紧密连接蛋白基因及蛋白的表达(P<0.05)。3)与WS组相比,饲粮中添加NCG显著降低了断奶仔兔血清和空肠组织中丙二醛(MDA)含量(P<0.05),并显著提高了总抗氧化能力(T-AOC)和总超氧化物歧化酶(T-SOD)活性(P<0.05)。4)与WS组相比,饲粮中添加NCG显著上调了空肠组织中腺苷酸活化蛋白激酶(AMPK)α的磷酸化水平(P<0.05),并显著上调了AMPK-核因子E2相关因子2(Nrf2)信号通路相关因子[基因:Nrf2、超氧化物歧化酶2(SOD2)、血红素氧合酶-1(HO-1);蛋白:NAD(P)H:醌氧化还原酶1(NQO1)]的表达(P<0.05),同时显著抑制了Kelch样ECH关联蛋白1(Keap1)的表达(P<0.05)。综上可知,饲粮中添加600 mg/kg NCG可能通过激活肠道AMPK-Nrf2信号通路、增强抗氧化能力,缓解断奶应激所致的肠道黏膜屏障损伤,从而促进肠道发育,提高断奶仔兔的生长性能。

本文引用格式

姚瑶 , 秦枫 , 翟频 , 杨杰 , 邵乐 , 李健 , 张霞 . N-氨甲酰谷氨酸对断奶仔兔肠道黏膜屏障功能的改善作用[J]. 动物营养学报, 2026 , 38(6) : 4462 -4472 . DOI: 10.12418/CJAN2026.358

Abstract

This study aimed to investigate the improvement effect of N-carbamylglutamate (NCG) on the intestinal mucosal barrier function of weaned rabbit kits. A total of 90 three-week-old New Zealand white rabbit kits were randomly divided into a dam-reared group (NC group), a weaning stress group (WS group), and an NCG intervention group (NCG group), with 10 replicates per group and 3 rabbit kits per replicate. The kits in the NC group were naturally suckled by their dams throughout the experimental period, whereas those in the WS and NCG groups were reared independently after weaning at three weeks of age. The WS group was fed a basal diet, while the NCG group was fed the basal diet supplemented with 600 mg/kg NCG. The experimental period lasted 14 days. The results showed as follows: 1) compared with the WS group, dietary NCG supplementation significantly improved the growth performance of weaned rabbit kits (P<0.05), significantly reduced the diarrhea rate (P<0.05), and significantly improved the jejunal morphology (P<0.05), as evidenced by increased villus height, decreased crypt depth, increased villus height-to-crypt depth ratio, and increased number of goblet cells. 2) Compared with the WS group, dietary NCG supplementation significantly reduced the serum diamine oxidase (DAO) activity and the levels of tumor necrosis factor-α (TNF-α) and interleukin-6 (IL-6) (P<0.05), and significantly upregulated the expression of tight junction protein genes and proteins in the jejunal mucosa (P<0.05). 3) Compared with the WS group, dietary NCG supplementation significantly decreased the malondialdehyde (MDA) content in the serum and jejunal tissue (P<0.05), and significantly increased the total antioxidant capacity (T-AOC) and total superoxide dismutase (T-SOD) activity (P<0.05). 4) Compared with the WS group, dietary NCG supplementation significantly upregulated the phosphorylation level of adenosine monophosphate-activated protein kinase (AMPK) α in the jejunal tissue (P<0.05), significantly upregulated the expression of AMPK-nuclear factor erythroid 2-related factor 2 (Nrf2) signaling pathway-related factors [genes: Nrf2, superoxide dismutase 2 (SOD2), heme oxygenase-1 (HO-1); protein: NAD(P)H:quinone oxidoreductase 1 (NQO1)] (P<0.05), and significantly inhibited the expression of Kelch-like ECH-associated protein 1 (Keap1) (P<0.05). In conclusion, dietary supplementation with 600 mg/kg NCG may alleviate weaning stress-induced intestinal mucosal barrier injury by activating the intestinal AMPK-Nrf2 signaling pathway and enhancing antioxidant capacity, thereby promoting intestinal development and improving the growth performance of weaned rabbit kits.

在家兔集约化养殖过程中,早期断奶作为一种常见管理策略,旨在通过缩短母兔繁殖间隔来提高其利用效率,从而提升养殖经济效益[1]。然而,断奶阶段仔兔消化系统尚未发育完全,加之饲料转换引起的营养应激,容易导致消化不良、腹泻等肠道疾病,造成仔兔生长迟缓、死亡率增加,已成为制约产业健康发展的关键瓶颈[2]。研究显示,断奶会导致肠道氨基酸供应不足、蛋白质合成受阻以及免疫功能受损,进而影响幼畜的健康生长[3]。因此,通过外源性氨基酸干预来改善肠道环境、增强免疫功能,成为缓解仔兔断奶应激的有效策略。
精氨酸(Arg)是一种重要的功能性氨基酸,在蛋白质合成、免疫调节及肠道屏障维持等生理过程中发挥重要作用[4-5]。研究证实,精氨酸能够有效调节幼畜的营养代谢与免疫功能,从而促进其生长发育[6]。然而,断奶应激会显著抑制幼畜内源性精氨酸的合成能力,而外源补充精氨酸又存在成本高、半衰期短等问题[7]。N-氨甲酰谷氨酸(NCG)作为精氨酸内源合成的激活剂,具有价格低廉、生物利用率高的优势。研究表明,NCG能够提高动物生长性能、增强免疫力、改善肠道健康和畜产品品质,因而已被广泛应用于畜禽生产[8-9]。饲粮中添加NCG可显著提高断奶仔猪血浆精氨酸水平[10],改善空肠形态并降低腹泻率[11]。此外,NCG通过增强宫内发育迟缓(IUGR)羔羊空肠的抗氧化能力来抑制炎症反应,从而缓解肠道氧化损伤[12]。在兔养殖方面,NCG已被证明可提高伊拉肉兔的生长性能、增强抗氧化能力并改善肉品质[13]。然而,NCG对断奶仔兔肠道健康的调控作用及机制尚不清楚。
因此,本研究以断奶仔兔为研究对象,旨在探究饲粮中添加NCG对其生长性能、抗氧化能力及肠道黏膜屏障功能的影响,揭示NCG缓解断奶仔兔肠道黏膜屏障损伤的作用机制,为NCG作为功能性饲料添加剂在断奶仔兔中的应用提供理论依据。

1 材料与方法

1.1 伦理声明

本试验在江苏省农业科学院试验基地进行,所有试验程序经该院动物伦理委员会审查批准(批准编号:PDC2021002)。

1.2 试验设计

选用90只3周龄、体重相近的新西兰白兔仔兔,随机分为3组,分别为母兔哺乳组(NC组)、断奶应激组(WS组)和NCG干预组(NCG组),每组10个重复,每个重复3只仔兔。NC组仔兔在试验期内继续由母兔进行自然哺乳;WS组与NCG组仔兔则转移至断奶笼进行独立饲养,试验期间WS组饲喂基础饲粮,NCG组则在基础饲粮中添加600 mg/kg NCG。试验期为14 d,期间仔兔自由采食和饮水。基础饲粮参照NRC(1977)兔饲养标准并结合《肉兔营养需要量》(NY/T 4049—2021)配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平

Table 1 Composition and nutrient levels of the basal diet %

项目 Items 含量 Content
原料 (风干基础) Ingredients (air-dry basis)
玉米 Corn 22.0
麦麸 Wheat bran 20.9
豆粕 Soybean meal 10.8
菜粕 Rapeseed meal 3.0
食盐 NaCl 0.3
菊花粉 Chrysanthemum powder 38.0
预混料 Premix1) 5.0
合计 Total 100.0
营养水平(干物质基础) Nutrient levels (DM basis)2)
消化能 DE/(MJ/kg) 10.17
粗蛋白质 CP 16.19
粗纤维 CF 11.57
中性洗涤纤维 NDF 28.54
酸性洗涤纤维 ADF 17.02
酸性洗涤木质素 ADL 3.73
粗脂肪 EE 3.65
钙 Ca 1.54
磷 P 0.40
赖氨酸 Lys 0.96
蛋氨酸+胱氨酸 Met+Cys 0.47
精氨酸 Arg 0.82

1)预混料为每千克饲粮提供The premix provided the following per kilogram of the diet:FeSO4·H2O 266 mg,CuSO4·5H2O 54 mg,MnSO4·H2O 28 mg,ZnSO4·H2O 182.6 mg,CoCl2·6H2O 50 mg,VA 9 000 IU,VD 900 IU,VE 45 000 IU,CaHPO4 12.5 g,赖氨酸 Lys 3 g,蛋氨酸 Met 2 g。
2)消化能根据各原料的消化能数据(参考NY/T 4049—2021附录中的原料数据库)及其在饲粮配方中的占比进行计算。粗蛋白质、粗纤维、中性洗涤纤维、酸性洗涤纤维、酸性洗涤木质素、粗脂肪、钙、磷和氨基酸含量分别参照GB/T 6432—2018、GB/T 6434—2022、GB/T 20806—2022、NY/T 1459—2022、GB/T 20805—2006、GB/T 6433—2006、GB/T 6436—2018、GB/T 6437—2018和GB/T 18246—2019方法进行测定。DE was calculated based on the DE values of individual feed ingredients (according to the ingredient database in the appendix of NY/T 4049—2021) and their proportions in the diet formula. The contents of CP, CF, NDF, ADF, ADL, EE, Ca, P and amino acids were measured by the methods in the GB/T 6432—2018, GB/T 6434—2022, GB/T 20806—2022, NY/T 1459—2022, GB/T 20805—2006, GB/T 6433—2006, GB/T 6436—2018, GB/T 6437—2018 and GB/T 18246—2019, respectively.

1.3 样品采集

饲养试验结束后,从每个重复随机选取1只试验兔称重,经无菌耳缘静脉采血后处死,分离心脏、肝脏、脾脏和肾脏,采集空肠等组织样本,用于后续分析。

1.4 测定指标及方法

1.4.1 生长性能及器官指数测定

饲养试验结束时将仔兔和剩余饲粮称重,计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G);试验期间记录腹泻和死亡仔兔只数,计算腹泻率和死亡率;称取心脏、肝脏、脾脏和肾脏的重量,计算各器官指数。腹泻率、死亡率及器官指数使用下述公式计算:
腹泻率(%)=[(Σ腹泻只数×腹泻天数)/(试验兔只数×试验天数)]×100;
死亡率(%)=[试验期内死亡只数/初始试验兔只数]×100;
器官指数(%)=[器官重量(g)/体重(g)]×100。

1.4.2 血清和空肠组织中抗氧化和炎症相关指标测定

采集的血样于室温静置60 min后以955×g的离心力离心10 min,分离血清于-20 ℃冰箱保存备用。称取100 mg空肠组织,加入900 μL生理盐水,在冰水浴条件下机械匀浆,随后以955×g的离心力离心10 min,分离上清液。使用商品化试剂盒测定血清中总抗氧化能力(T-AOC)、总超氧化物歧化酶(T-SOD)活性、丙二醛(MDA)含量、肿瘤坏死因子-α(TNF-α)和白细胞介素-6(IL-6)水平、二胺氧化酶(DAO)活性以及空肠组织中T-AOC、T-SOD活性和MDA含量。空肠组织中各指标均以二喹啉甲酸(BCA)法测定的蛋白浓度进行标准化校准。

1.4.3 空肠组织形态学观察

取空肠中段组织,用预冷生理盐水轻柔冲洗后,立即置于4%多聚甲醛溶液中固定。经脱水、石蜡包埋及切片处理后,分别进行苏木精-伊红(HE)和阿利新蓝-过碘酸雪夫(AB-PAS)染色。染色切片使用显微成像系统进行图像采集,并通过Image-Pro Plus 6.0软件测量HE染色图像中的肠绒毛高度(VH)和隐窝深度(CD),并计算绒毛高度与隐窝深度比值(绒隐比)。

1.4.4 空肠组织总RNA提取及目的基因相对表达水平测定

采用TRIzol试剂提取空肠组织总RNA,使用超微量分光光度计检测RNA的浓度与纯度。取2 μg总RNA,使用反转录试剂盒反转录为cDNA,随后采用SYBR Green定量PCR试剂盒进行实时荧光定量PCR分析。反应程序为:95 ℃预变性5 min;95 ℃变性10 s,60 ℃退火30 s,共40个循环。以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt法计算目的基因的mRNA相对表达水平。TRIzol试剂、反转录试剂盒及SYBR Green定量PCR试剂盒均购自南京诺唯赞生物科技股份有限公司,实时荧光定量PCR引物由北京擎科生物科技股份有限公司合成,引物序列见表2
表2 实时荧光定量PCR引物序列

Table 2 Sequences of primers for real-time qPCR

基因名称
Gene names
GenBank登录号
GenBank accession number
引物序列
Primer sequence (5'—3')
产物长度
Product length/bp
闭合蛋白
Occludin
XM_070056832 F:ACCCAGAGGACGAAA
R:CAAATATGGCGATGC
102
闭锁小带蛋白-1
ZO-1
XM_070053527 F:TGCCTAACTCAGCG
R:ACATCATTTCCACCAG
106
封闭蛋白-3
CLDN-3
XM_002721962 F:TCATCGGCAGCAGCATC
R:GCAGCGAGTCGTACACCTT
108
核因子E2相关因子2
Nrf2
MK645905 F:GCCTCCACCTCCTTA
R:ATACATTGCCGTCCC
129
血红素氧合酶-1
HO-1
XM_070051491 F:TTTAAGCTGGTGATGGC
R:CTCCTCCGGGAAGTAGA
108
Kelch样ECH关联蛋白1
Keap1
XR_001792646 F:CGACCCAGACACTGACACC
R:CCCTGCCTAAGGAACACG
142
超氧化物歧化酶2
SOD2
XM_051854201 F:AGGGTTCAGGATGGG
R:GCAGGTAGTAAGCGTGTT
147
β-肌动蛋白
β-actin
NM_001101683 F:TTCCAGCCCTCCTTCCT
R:GTCCACGTCGCACTTCA
81

1.4.5 免疫印迹分析

提取空肠组织及黏膜总蛋白,采用BCA法测定蛋白浓度。经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离蛋白后,通过湿转法转移至聚偏二氟乙烯(PVDF)膜。用5%牛血清白蛋白(BSA)溶液封闭2 h,随后加入相应兔源一抗,4 ℃孵育过夜。次日洗膜,加入辣根过氧化物酶(HRP)标记的山羊抗兔免疫球蛋白G(IgG)二抗,室温孵育2 h,使用ECL化学发光底物显影并采集图像。采用Image J软件分析目标条带灰度值,以微管蛋白β(tubulin β)为内参蛋白,通过计算目的蛋白与内参蛋白的灰度比值进行相对定量。试验所用抗体的相关信息见表3
表3 抗体信息

Table 3 Information of antibodies

抗体
Antibodies
来源
Source
货号
Catalog No.
稀释比例
Dilution ratio
闭锁小带蛋白-1 ZO-1 Proteintech Group Cat#21773-1-AP 1∶5 000
闭合蛋白 Occludin Proteintech Group Cat#27260-1-AP 1∶5 000
NAD(P)H:醌氧化还原酶1 NQO1 Proteintech Group Cat#11451-1-AP 1∶1 000
腺苷酸活化蛋白激酶α AMPKα Cell Signaling Technology Cat#5831 1∶1 000
磷酸化AMPKα p-AMPKα Cell Signaling Technology Cat#2535 1∶1 000
微管蛋白β Tubulin β Bioworld Technology Cat#AP0064 1∶10 000

1.5 数据统计与分析

所有数据均以平均值±标准误(mean±SE)的形式表示。利用SPSS 20.0软件进行单因素方差分析(one-way ANOVA),并采用LSD法进行事后两两比较。以P<0.05表示差异显著。

2 结果与分析

2.1 饲粮中添加NCG对断奶仔兔生长性能及器官指数的影响

表4所示,与NC组相比,WS组断奶仔兔的终末体重和平均日增重显著降低(P<0.05),腹泻率显著增加(P<0.05);与WS组相比,饲粮中添加NCG显著增加了断奶仔兔的终末体重、平均日增重和平均日采食量(P<0.05),同时显著降低了料重比(P<0.05);此外,与WS组相比,饲粮中添加NCG显著降低了断奶仔兔的腹泻率(P<0.05),对死亡率无显著影响(P>0.05);各组间肝脏、心脏、脾脏、肾脏指数均无显著差异(P>0.05)。上述结果提示,饲粮中添加NCG可改善断奶仔兔的生长性能并降低腹泻率,但对器官指数无显著影响。
表4 饲粮中添加NCG对断奶仔兔生长性能及器官指数的影响

Table 4 Effects of dietary NCG supplementation on growth performance and organ indexes of weaned rabbit kits

项目
Items
组别 Groups
NC WS NCG
初始体重 IBW/g 363.98±11.73 335.32±13.14 354.47±14.27
终末体重 FBW/g 1 147.08±47.92a 755.97±39.06b 1 022.97±50.05a
平均日增重 ADG/(g/d) 55.77±3.74a 29.96±2.97b 48.04±4.97a
平均日采食量 ADFI/(g/d) 97.66±6.03b 126.64±8.82a
料重比 F/G 3.34±0.17a 2.72±0.19b
肝脏指数 Liver index/% 3.58±0.51 4.67±1.12 4.32±0.30
心脏指数 Heart index/% 0.24±0.04 0.34±0.07 0.29±0.01
脾脏指数 Spleen index/% 0.13±0.01 0.14±0.03 0.11±0.02
肾脏指数 Kidney index/% 0.91±0.12 1.08±0.16 0.96±0.06
腹泻率 Diarrhea rate/% 0.48±0.29c 14.29±1.36a 4.52±0.87b
死亡率 Mortality rate/% 0.00±0.00 6.67±4.08 0.00±0.00

同行数据肩标不同字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05).

2.2 饲粮中添加NCG对断奶仔兔空肠组织形态的影响

图1所示,与NC组相比,WS组空肠绒毛高度和绒隐比显著降低(P<0.05),而隐窝深度则显著提高(P<0.05);与WS组相比,饲粮中添加NCG显著增加了空肠绒毛高度与绒隐比(P<0.05),并显著降低了隐窝深度(P<0.05)。此外,图2中的AB-PAS染色结果显示,NCG有效改善了断奶引起的空肠杯状细胞丢失。
图1 饲粮中添加NCG对断奶仔兔空肠组织形态的影响

数据柱标注相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of dietary NCG supplementation on jejunal tissue morphology of weaned rabbit kits

Value columns with the same letter mean no significant difference (P>0.05), while with different letters mean significant difference (P<0.05). The same as below.

图2 饲粮中添加NCG对断奶仔兔空肠杯状细胞密度的影响

Fig.2 Effects of dietary NCG supplementation on jejunal goblet cell density of weaned rabbit kits

2.3 饲粮中添加NCG对断奶仔兔血清中DAO活性及炎性因子水平的影响

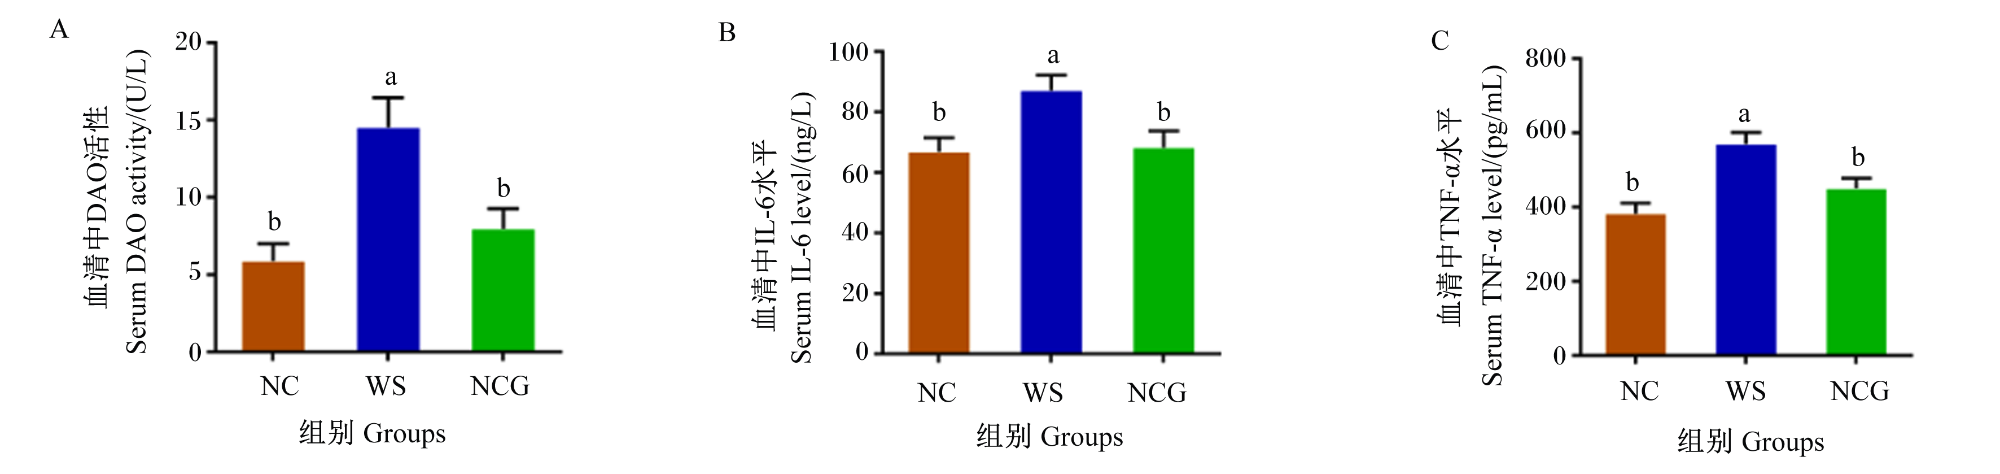
图3所示,与NC组相比,WS组断奶仔兔血清中DAO活性、IL-6和TNF-α水平显著升高(P<0.05);与WS组相比,饲粮中添加NCG显著降低了DAO活性、IL-6和TNF-α水平(P<0.05)。上述结果提示,NCG可有效抑制断奶引起的仔兔血清中DAO及炎性因子的过度分泌。
图3 饲粮中添加NCG对断奶仔兔血清中DAO活性及炎性因子水平的影响

Fig.3 Effects of dietary NCG supplementation on DAO activity and inflammatory factor levels in serum of weaned rabbit kits

2.4 饲粮中添加NCG对断奶仔兔空肠黏膜屏障功能的影响

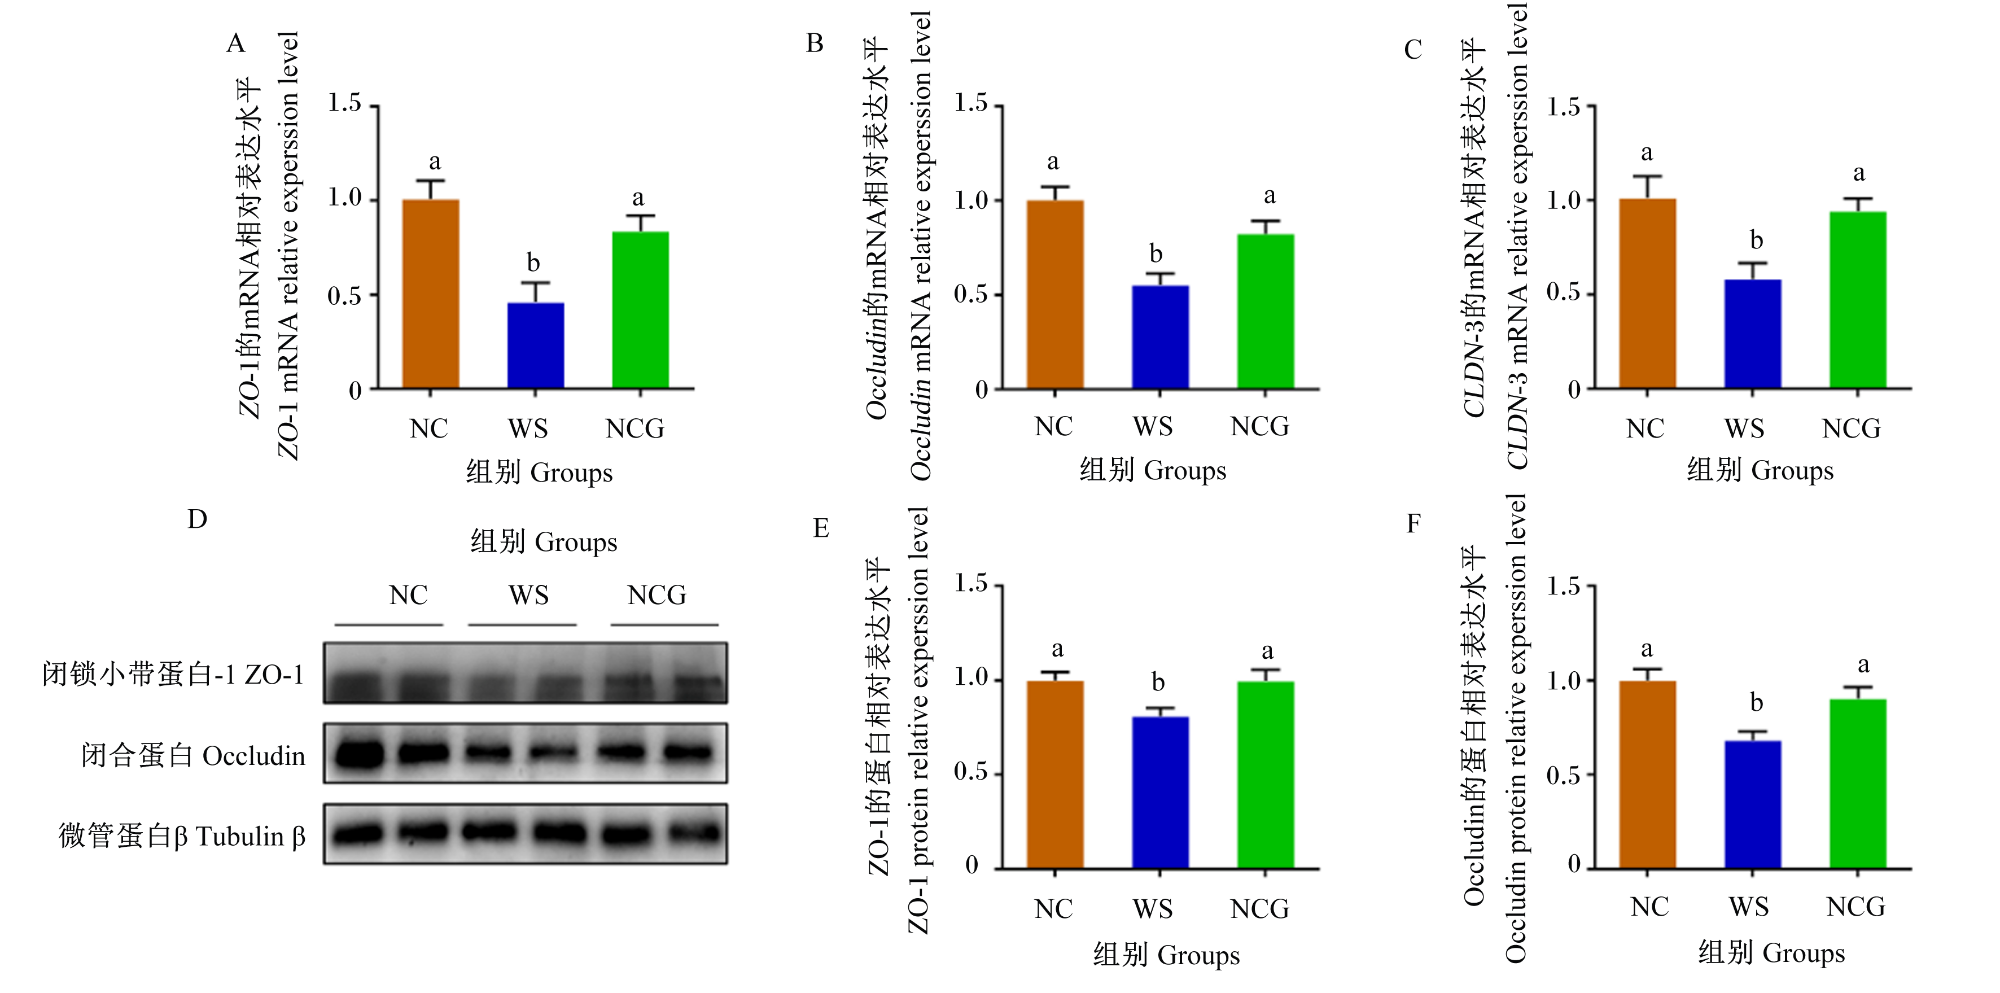
图4所示,与NC组相比,WS组断奶仔兔空肠黏膜中紧密连接蛋白如闭锁小带蛋白-1(ZO-1)、闭合蛋白(Occludin)和封闭蛋白-3(CLDN-3)的mRNA相对表达水平显著降低(P<0.05),且ZO-1和Occludin的蛋白相对表达水平也显著降低(P<0.05);与WS组相比,饲粮中添加NCG则显著增加了断奶仔兔空肠黏膜中ZO-1、OccludinCLDN-3的mRNA相对表达水平以及ZO-1和Occludin的蛋白相对表达水平(P<0.05)。上述结果提示,NCG可改善断奶诱导的仔兔肠道黏膜屏障功能受损。
图4 饲粮中添加NCG对断奶仔兔空肠黏膜中紧密连接蛋白表达的影响

Fig.4 Effects of dietary NCG on tight junction protein expression in jejunal mucosa of weaned rabbit kits

2.5 饲粮中添加NCG对断奶仔兔抗氧化能力的影响

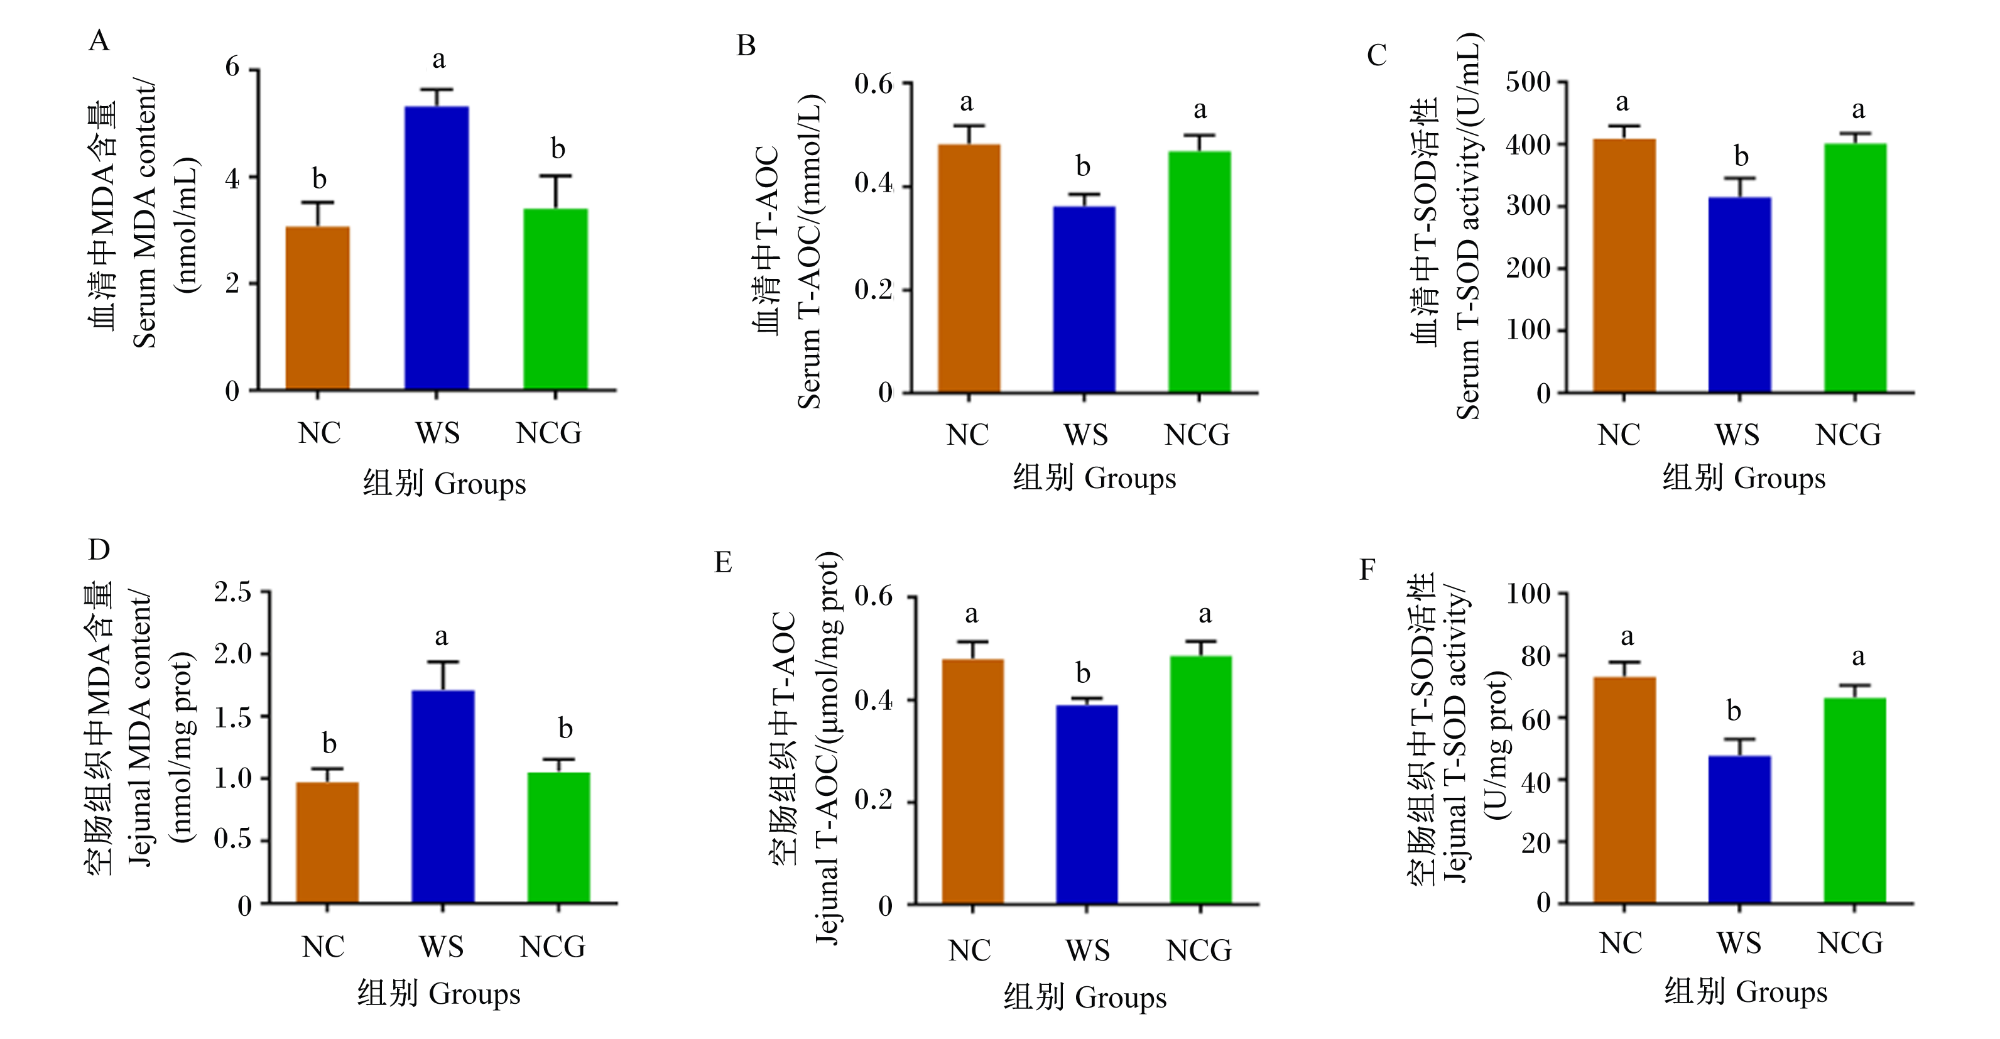
图5所示,与NC组相比,WS组血清和空肠组织中MDA含量显著增加(P<0.05),T-AOC和T-SOD活性显著降低(P<0.05);与WS组相比,饲粮中添加NCG显著降低了血清和空肠组织中MDA含量(P<0.05),并显著增加了T-AOC和T-SOD活性(P<0.05)。上述结果提示,NCG可缓解断奶引起的仔兔氧化损伤。
图5 饲粮中添加NCG对断奶仔兔血清和空肠组织中抗氧化指标的影响

Fig.5 Effects of dietary NCG on antioxidant capacity in serum and jejunal tissue of weaned rabbit kits

2.6 饲粮中添加NCG对断奶仔兔空肠组织中腺苷酸活化蛋白激酶(AMPK)-核因子E2相关因子2(Nrf2)信号通路的影响

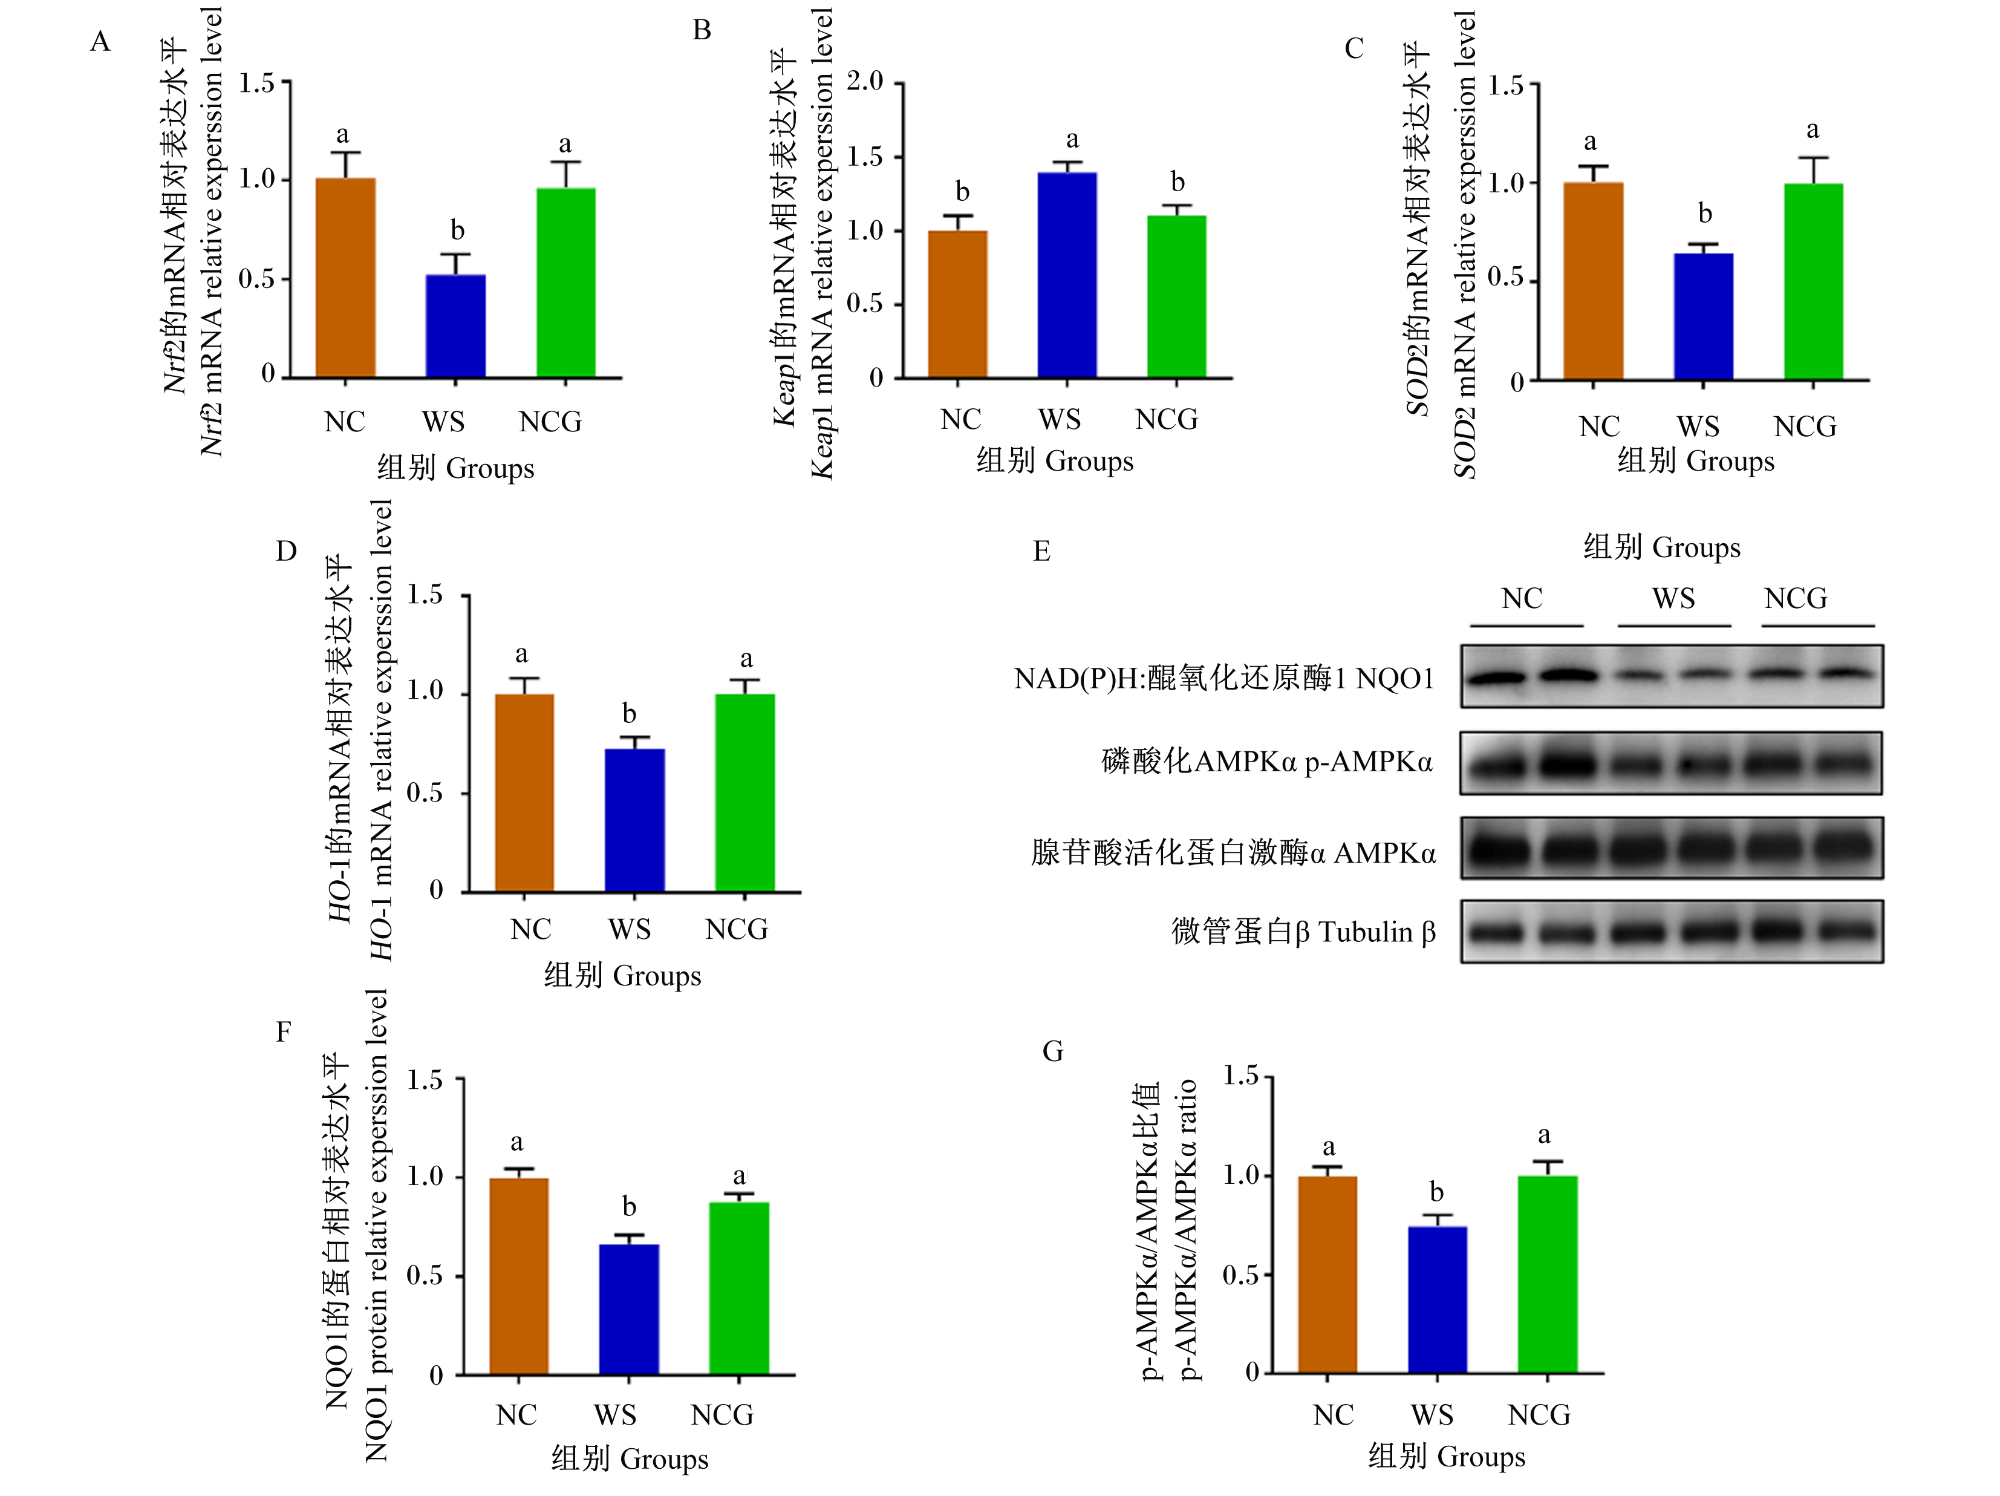
图6所示,与NC组相比,WS组断奶仔兔空肠组织中Kelch样ECH关联蛋白1(Keap1)的mRNA相对表达水平显著增高(P<0.05),而Nrf2、超氧化物歧化酶2(SOD2)和血红素氧合酶-1(HO-1)的mRNA相对表达水平显著降低(P<0.05);与WS组相比,饲粮中添加NCG显著上调了断奶仔兔空肠组织中Nrf2、SOD2和HO-1的mRNA相对表达水平(P<0.05),并显著下调了Keap1的mRNA相对表达水平(P<0.05);此外,与WS组相比,饲粮中添加NCG还显著增加了断奶仔兔空肠组织中NQO1的蛋白相对表达水平和AMPKα的磷酸化水平(p-AMPKα/AMPKα比值)(P<0.05)。上述结果提示,NCG可激活断奶仔兔肠道AMPK-Nrf2信号通路。
图6 NCG对断奶仔兔空肠组织中AMPK-Nrf2信号通路相关因子表达的影响

Fig.6 Effects of dietary NCG on expression of AMPK-Nrf2 signaling pathway related factors in jejunal tissue of weaned rabbit kits

3 讨论

3.1 饲粮中添加NCG对断奶仔兔生长性能的影响

在仔兔集约化养殖中,早期断奶易导致生长迟缓、腹泻乃至死亡[2]。研究显示,NCG作为精氨酸的内源激活剂,能够显著提高哺乳仔猪的生长性能[14];饲粮中添加800 mg/kg NCG可提高断奶仔猪的终末体重和平均日增重[15];饲粮中添加500或1 000 mg/kg NCG可促进伊拉肉兔生长,改善肠道形态和肉品质,且1 000 mg/kg NCG组的抗氧化能力高于500 mg/kg组[13]。本课题组前期研究发现,饲粮中添加600 mg/kg NCG可缓解断奶獭兔腹泻,并提高生长性能[16]。因此,本试验利用600 mg/kg NCG作为试验组的处理剂量,结果发现NCG显著增加了断奶仔兔的终末体重、平均日增重和平均日采食量,显著降低了料重比和腹泻率,提示NCG可显著改善断奶仔兔的生长性能。

3.2 饲粮中添加NCG对断奶仔兔空肠组织形态、血清DAO活性及炎性因子水平的影响

肠道是机体消化吸收与免疫保护的主要部位,其选择性屏障可有效阻止外源性有害物质进入循环系统[17]。绒毛高度、隐窝深度及绒隐比是反映肠道发育和消化功能的重要形态学指标。研究表明,断奶应激会导致仔猪肠绒毛萎缩,而补充NCG可有效增加空肠绒毛高度,促进肠道发育[18]。此外,NCG可通过改善肠道组织形态和绒毛高度,缓解敌草快诱导的小鼠肠道黏膜损伤[19]。本试验中的空肠组织切片HE染色结果显示,饲粮中添加NCG显著提高了断奶仔兔的空肠绒毛高度及绒隐比,同时显著降低了隐窝深度。血清中DAO的活性和炎性因子水平是评估肠道屏障完整性的常用指标。本试验中,饲粮中添加NCG显著降低了血清中DAO活性及TNF-α、IL-6水平,表明NCG有助于降低断奶仔兔的肠道通透性,改善肠道结构和功能完整性。

3.3 饲粮中添加NCG对断奶仔兔空肠黏膜屏障功能的影响

肠道的机械屏障由上皮细胞及其间的连接复合物构成。其中,紧密连接是调控肠道通透性的核心结构,其关键蛋白(如ZO-1、CLDN-3和Occludin)的表达常被用作评估屏障功能与通透性的常用指标[20]。当紧密连接结构受损时,肠道通透性增加,易引发细菌移位和炎症反应[21]。已有研究报道,断奶应激可破坏仔猪肠道机械屏障,造成紧密连接结构损伤和肠道通透性升高[22]。本试验中,饲粮中添加NCG显著上调了断奶仔兔空肠黏膜中ZO-1、CLDN-3和Occludin基因以及ZO-1和Occludin蛋白的表达,提示NCG可通过增强肠道紧密连接蛋白的表达,改善断奶应激引起的肠道黏膜屏障功能障碍。杯状细胞是肠道黏膜的重要组成部分,通过分泌黏液和抗菌肽隔离肠腔内有害物质。当肠道黏膜屏障功能受损时,杯状细胞数量减少[23]。早期研究显示,在炎症性肠病患者中,肠道杯状细胞数量减少并伴随黏液层结构受损[24]。本试验利用AB-PAS染色法对杯状细胞进行观察,结果发现饲粮中添加NCG显著增加了空肠杯状细胞数量。综上可知,饲粮中添加NCG能够通过促进肠上皮细胞和杯状细胞的增殖发育,增强紧密连接蛋白表达,维持肠道黏膜结构完整与屏障功能稳定,缓解由断奶应激引起的仔兔空肠组织形态异常与黏膜屏障功能障碍。

3.4 饲粮中添加NCG对断奶仔兔抗氧化能力的影响

机体代谢产生的活性氧(ROS)在正常情况下可被抗氧化系统清除并维持动态平衡。然而,当ROS过量产生或机体抗氧化能力减弱时,该平衡被打破,引发氧化应激,进而导致脂质、DNA和蛋白质发生过氧化反应,造成组织损伤。MDA作为脂质过氧化的主要副产物,常用于评估细胞氧化损伤程度;T-AOC综合反映了机体清除自由基的能力;T-SOD是抗氧化系统的关键酶,通过催化超氧阴离子歧化反应清除自由基,其活性水平是衡量机体抗氧化应激能力的重要指标。早期研究发现,NCG可降低仔猪血清中MDA含量并增加抗氧化酶活性,有效缓解断奶仔猪的氧化应激[25]。本研究结果显示,饲粮中添加NCG可显著抑制断奶应激引起的仔兔血清和空肠组织中MDA含量的升高,同时显著提升血清和空肠组织中T-AOC与T-SOD活性,表明NCG可通过增强机体的抗氧化能力,有效缓解断奶引起的仔兔肠道氧化损伤。

3.5 饲粮中添加NCG对断奶仔兔空肠组织中AMPK-Nrf2信号通路的影响

AMPK是感知和调控细胞能量代谢的关键激酶,在氧化应激和肠道屏障功能的维持中也扮演着重要角色[26]。研究表明,活化的AMPK可通过促进Nrf2的核转位来增强抗氧化防御能力,并能通过调节紧密连接蛋白表达维持肠道屏障完整性[27-28]。NCG能够激活尿素循环中的关键酶氨甲酰磷酸合成酶I的活性,在促进内源性精氨酸合成的同时消耗大量ATP,从而诱导AMPK活化[29]。研究表明,NCG通过调控精氨酸合成,增强Nrf2/Keap1通路蛋白表达以缓解仔猪肠道氧化应激[30]。本研究发现,饲粮中添加NCG增加了断奶仔兔空肠组织中Nrf2及其下游抗氧化因子的基因表达,降低了Keap1的表达,并上调AMPKα的磷酸化,提示NCG可能通过激活AMPK-Nrf2信号通路,缓解断奶应激引起的仔兔肠道损伤。

4 结论

饲粮中添加600 mg/kg的NCG可有效改善断奶仔兔的生长性能,降低腹泻率,促进空肠发育,缓解断奶应激所致的肠道黏膜屏障功能障碍。其作用机制可能与激活肠道AMPK-Nrf2信号通路、增强抗氧化能力有关。
[1]
阚庆华, 谷子林. 仔兔早期断奶技术[J]. 今日畜牧兽医, 2006(6):42-43.

KAN Q H, GU Z L. Early weaning technology of young rabbits[J]. Today Animal Husbandry and Veterinary Medicine, 2006(6):42-43. (in Chinese)

[2]
刘月, 韩昱, 王鹏, 等. 断奶仔兔肠道屏障功能及其调控研究进展[J]. 中国养兔杂志, 2022(5):24-27.

LIU Y, HAN Y, WANG P, et al. Research progress on intestinal barrier function and its regulation in weaned rabbits[J]. Chinese Journal of Rabbit Farming, 2022(5):24-27. (in Chinese)

[3]
MI M M, SHEN Z W, HU N Z, et al. Effects of diets with different amino acid release characteristics on the gut microbiota and barrier function of weaned pigs[J]. BMC Microbiology, 2023, 23(1):18.

DOI PMID

[4]
CANÈ S, GEIGER R, BRONTE V. The roles of arginases and arginine in immunity[J]. Nature Reviews Immunology, 2025, 25(4):266-284.

DOI

[5]
BRANDT A, BAUMANN A, HERNÁNDEZ-ARRIAGA A, et al. Impairments of intestinal arginine and NO metabolisms trigger aging-associated intestinal barrier dysfunction and ‘inflammaging’[J]. Redox Biology, 2022, 58:102528.

DOI

[6]
于国刚, 栾志松. 精氨酸对断奶仔猪生长性能、血清生化和免疫指标的影响[J]. 中国饲料, 2024(8):33-36.

YU G G, LUAN Z S. The effects of L-arginine on growth performance,serum biochemical and immune indicators in weaned piglets[J]. China Feed, 2024(8):33-36. (in Chinese)

[7]
熊云霞, 邱月琴, 罗茜, 等. 精氨酸在断奶仔猪营养应用中的研究进展[J]. 广东饲料, 2016, 25(6):30-32.

XIONG Y X, QIU Y Q, LUO Q, et al. Research progress of arginine application in weaned piglet nutrition[J]. Guangdong Feed, 2016, 25(6):30-32. (in Chinese)

[8]
LI J N, ZHANG Y Y, FAN Z, et al. Effects of arginine and/or N-carbamylglutamate supplementation on growth,biochemical composition and expression of growth-regulating factors of hybrid sturgeon (Acipenser schrenckii♀×A. baerii ♂) juveniles fed an arginine-deficient diet[J]. Animal Feed Science and Technology, 2022, 285:115246.

DOI

[9]
李情兵, 陈晓东, 张桂杰. N-氨甲酰谷氨酸在畜禽饲料中的应用研究进展[J]. 中国畜牧杂志, 2025, 61(11):102-109.

LI Q B, CHEN X D, ZHANG G J. Research progress on the application of N-carbamylglutamic acid in livestock and poultry feed[J]. Chinese Journal of Animal Science, 2025, 61(11):102-109. (in Chinese)

[10]
刘粉粉, 林雪, 印遇龙, 等. N-氨甲酰谷氨酸与精氨酸在猪生产中的研究应用进展[J]. 饲料工业, 2016, 37(24):28-31.

LIU F F, LIN X, YIN Y L, et al. The proceeding and application of N-carbamylgluatmate and arginine in swine production[J]. Feed Industry, 2016, 37(24):28-31. (in Chinese)

[11]
HU N Z, MAO P, XIONG X Y, et al. Effect of N-carbamylglutamate supplementation on growth performance,jejunal morphology,amino acid transporters,and antioxidant ability of weaned pigs[J]. Animals, 2023, 13(20):3183.

DOI

[12]
ZHANG H, SUN H, PENG A L, et al. N-carbamylglutamate and L-arginine promote intestinal function in suckling lambs with intrauterine growth restriction by regulating antioxidant capacity via a nitric oxide-dependent pathway[J]. Food & Function, 2019, 10(10):6374-6384.

[13]
叶鑫, 沈迎春, 薛梦迪, 等. N-氨甲酰谷氨酸对肉兔生长性能、血液生化、抗氧化指标和肉品质的影响[J]. 中国兽医学报, 2024, 44(9):2055-2062.

YE X, SHEN Y C, XUE M D, et al. Effects of N-carbamylglutamic on growth performance,blood biochemistry,antioxidant indicators and meat quality of meat rabbits[J]. Chinese Journal of Veterinary Science, 2024, 44(9):2055-2062. (in Chinese)

[14]
ZENG X F, HUANG Z M, ZHANG F R, et al. Oral administration of N-carbamylglutamate might improve growth performance and intestinal function of suckling piglets[J]. Livestock Science, 2015, 181:242-248.

DOI

[15]
安亚南, 赖玉娇, 孙卫, 等. 泌乳期日粮添加N-氨甲酰谷氨酸对经产母猪和哺乳仔猪的影响[J]. 中国畜牧杂志, 2017, 53(6):98-101.

AN Y N, LAI Y J, SUN W, et al. Effects of dietary N-carbamylglutamate supplementation during lactation on multiparous sows and suckling piglets[J]. Chinese Journal of Animal Science, 2017, 53(6):98-101. (in Chinese)

[16]
张林林, 秦枫, 潘孝青, 等. 精氨酸或N-氨甲酰谷氨酸对母獭兔繁殖性能和断奶幼兔生长性能及抗氧化能力的影响[J]. 畜牧与兽医, 2017, 49(4):40-45.

ZHANG L L, QIN F, PAN X Q, et al. Effects of N-carbamylglutamate or arginine on production performance of lactation doe and growth performance,antioxidant ability of weaning rabbit[J]. Animal Husbandry & Veterinary Medicine, 2017, 49(4):40-45. (in Chinese)

[17]
PETERSON L W, ARTIS D. Intestinal epithelial cells:regulators of barrier function and immune homeostasis[J]. Nature Reviews Immunology, 2014, 14(3):141-153.

DOI

[18]
WU X, RUAN Z, GAO Y L, et al. Dietary supplementation with L-arginine or N-carbamylglutamate enhances intestinal growth and heat shock protein-70 expression in weanling pigs fed a corn- and soybean meal-based diet[J]. Amino Acids, 2010, 39(3):831-839.

DOI PMID

[19]
XIAO L, CAO W, LIU G M, et al. Arginine,N-carbamylglutamate,and glutamine exert protective effects against oxidative stress in rat intestine[J]. Animal Nutrition, 2016, 2(3):242-248.

DOI

[20]
OTANI T, FURUSE M. Tight junction structure and function revisited[J]. Trends in Cell Biology, 2020, 30(10):805-817.

DOI PMID

[21]
HOROWITZ A, CHANEZ-PAREDES S D, HAEST X, et al. Paracellular permeability and tight junction regulation in gut health and disease[J]. Nature Reviews Gastroenterology & Hepatology, 2023, 20(7):417-432.

[22]
WANG J, JI H F. Tight junction proteins in the weaned piglet intestine:roles and regulation[J]. Current Protein & Peptide Science, 2019, 20(7):652-660.

[23]
GUSTAFSSON J K, JOHANSSON M E V. The role of goblet cells and mucus in intestinal homeostasis[J]. Nature Reviews Gastroenterology & Hepatology, 2022, 19(12):785-803.

[24]
PARIKH K, ANTANAVICIUTE A, FAWKNER-CORBETT D, et al. Colonic epithelial cell diversity in health and inflammatory bowel disease[J]. Nature, 2019, 567(7746):49-55.

DOI

[25]
张卫辉, 朱秋凤. N-氨甲酰谷氨酸或牛磺酸对母猪繁殖性能、血清抗氧化指标、免疫球蛋白水平及其仔猪生产性能的影响[J]. 南京农业大学学报, 2023, 46(4):764-771.

ZHANG W H, ZHU Q F. Effects of N-carbamylglutamate or taurine on reproductive performance,serum antioxidant indices,immunoglobulin levels of sows and growth performance of piglets[J]. Journal of Nanjing Agricultural University, 2023, 46(4):764-771. (in Chinese)

[26]
TREFTS E, SHAW R J. AMPK:restoring metabolic homeostasis over space and time[J]. Molecular Cell, 2021, 81(18):3677-3690.

DOI

[27]
XU W T, ZHAO T T, XIAO H Y. The implication of oxidative stress and AMPK-Nrf2 antioxidative signaling in pneumonia pathogenesis[J]. Frontiers in Endocrinology, 2020, 11:400.

DOI PMID

[28]
ZHU M J, SUN X F, DU M. AMPK in regulation of apical junctions and barrier function of intestinal epithelium[J]. Tissue Barriers, 2018, 6(2):1-13.

[29]
LIN Y Y, ZHANG Y H, HUANG T Z, et al. Arginine deprivation induces quiescence and confers vulnerability to ferroptosis in colorectal cancer[J]. Cancer Research, 2025, 85(9):1663-1679.

[30]
胡乃志, 马文锋, 毛培, 等. N-氨甲酰谷氨酸缓解猪肠道氧化应激的研究进展[J]. 动物营养学报, 2023, 35(4):2081-2086.

DOI

HU N Z, MA W F, MAO P, et al. Research progress of N-carbamoyl glutamate in alleviating intestinal oxidative stress in pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2081-2086. (in Chinese)

DOI

文章导航

/