研究论文

基于代谢组学和网络药理学的茶树精油对肉鸡肉品质的调控机制研究

  • 吴琼 , 1, 2 ,
  • 曾令添 1, 2, * ,
  • 罗婷 1 ,
  • 曾雅婷 1 ,
  • 林诗妮 1 ,
  • 邱龙新 1, 2 ,
  • 李晓冰 , 1, 2, ** ,
  • 陈洪博 , 1, 2, **
展开
  • 1 龙岩学院生命科学学院, 龙岩 364000
  • 2 福建省家畜传染病防治与生物技术重点实验室, 龙岩 364000
** 李晓冰,讲师,硕士生导师,E-mail: ;
陈洪博,副教授,硕士生导师,E-mail:

*同等贡献作者

吴 琼(1978—),女,黑龙江佳木斯人,副教授,博士,从事畜禽健康养殖研究。E-mail:

Office editor: 武海龙

收稿日期: 2025-11-21

  网络出版日期: 2026-06-13

基金资助

福建省科技厅对外合作项目(2024I01020104)

福建省科技厅对外合作项目(2025I0029)

新罗区产学研技术创新项目(2022XLXYZ007)

Study on Regulation Mechanism of Tea Tree Essential Oil on Meat Quality of Broilers Based on Metabolomics and Network Pharmacology

  • WU Qiong , 1, 2 ,
  • ZENG Lingtian 1, 2 ,
  • LUO Ting 1 ,
  • ZENG Yating 1 ,
  • LIN Shini 1 ,
  • QIU Longxin 1, 2 ,
  • LI Xiaobing , 1, 2, ** ,
  • CHEN Hongbo , 1, 2, **
Expand
  • 1 School of Life Sciences, Longyan University, Longyan 364000, China
  • 2 Fujian Provincial Key Laboratory of Preventive Veterinary Medicine and Biotechnology, Longyan 364000, China
** LI Xiaobing, lecturer, E-mail: ;
CHEN Hongbo, associate professor, E-mail:

*Contributed equally

Received date: 2025-11-21

  Online published: 2026-06-13

摘要

本试验旨在基于代谢组学和网络药理学探究茶树精油(TTO)对肉鸡肉品质的调控机制。选取180只1日龄体重相近的科宝肉鸡,随机分为2个组,每组6个重复,每重复15只。对照组饲喂基础饲粮,试验组在基础饲粮中添加300 mg/kg的TTO。试验期42 d。试验结束后采集胸肌、腿肌和血浆样本,测定肉品质,并进行非靶向代谢组学分析。结合网络药理学方法,构建TTO成分-靶点互作图,筛选与肥胖相关的交集靶点,进行GO功能和KEGG通路富集分析,并通过分子方法对接验证活性成分与核心靶点的相互作用。结果表明:试验组的胸肌和腿肌红度(a*)值显著低于对照组(P<0.05)。2组共鉴定出2 395个血浆代谢物,其中257种存在显著差异(P<0.05)。试验组中1-硬脂酰-2-花生四烯酰、1-棕榈酰-2-花生四烯酰-sn-甘油-3-磷酸甘油等代谢物水平升高,L-精氨酸代谢上调。网络药理学分析表明,TTO主要作用于表皮生长因子受体(EGFR)、雌激素受体1(ESR1)、缺氧诱导因子1A(HIF1A)等靶点,与脂肪细胞因子信号通路、过氧化物酶体增殖物激活受体(PPAR)信号通路等功能途径密切相关;分子对接结合能均低于-5 kcal/mol,表明结合稳定。综上所述,饲粮中添加TTO可通过调节甘油磷脂代谢、亚油酸代谢及α-亚麻酸代谢等途径,调控肥胖相关靶点基因,进而对肉鸡肉品质产生一定影响。

本文引用格式

吴琼 , 曾令添 , 罗婷 , 曾雅婷 , 林诗妮 , 邱龙新 , 李晓冰 , 陈洪博 . 基于代谢组学和网络药理学的茶树精油对肉鸡肉品质的调控机制研究[J]. 动物营养学报, 2026 , 38(6) : 4508 -4524 . DOI: 10.12418/CJAN2026.362

Abstract

This experiment aimed to investigate the regulation mechanism of tea tree essential oil (TTO) on meat quality of broilers based on metabolomics and network pharmacology. A total of 180 one-day-old Cobb broilers with similar body weight were randomly divided into 2 groups with 6 replicates per group and 15 chickens per replicate. The control group was fed a basal diet, and the experimental group was fed the basal diet supplemented with 300 mg/kg TTO. The experimental period lasted for 42 days. At the end of the experiment, the breast muscle, thigh muscle and plasma samples were collected to measure the meat quality, and performed the non-targeted metabolomic analysis. Using the network pharmacology method, the TTO component-target interaction map of tea tree essential oil was constructed, the obesity related intersection targets were screened, the GO function and KEGG pathway enrichment analysis were performed, and the molecular docking method was used to verify the interaction between the active components and core targets. The results showed that the redness (a*) value in breast muscle and thigh muscle of the experimental group was significantly lower than that of the control group (P<0.05). A total of 2 395 plasma differential metabolites were identified in two groups, of which 257 were significantly different (P<0.05). In the experimental group, the levels of metabolites such as 1-stearoyl-2-arachidoyl and 1-palmitoyl-2-arachidoyl-sn-glycerol-3-phosphate were increased, and L-arginine metabolites were up-regulated. The network pharmacology analysis showed that TTO mainly acted on targets such as epidermal growth factor receptor (EGFR), estrogen receptor 1 (ESR1) and hypoxia-inducible factor 1A (HIF1A), it was closely related to the functional pathways such as adipocytokine signaling pathway and peroxisome proliferator activated receptor (PPAR) signaling pathway. The molecular docking binding energy was less than -5 kcal/mol, and indicated the stable binding. In conclusion, the addition of TTO in the diet can regulate the obesity-related target genes by regulating the pathways such as glycerophospholipid metabolism, linoleic acid metabolism and α-linolenic acid metabolism, and then has a certain effect on the meat quality of broilers.

作为全球最大的肉类生产消费国,我国的肉禽产业在国民经济中占据重要地位,且市场规模持续扩大[1]。但随着肉鸡养殖规模的快速扩张,众多快大型肉鸡在饲养过程中主要集中于加快生长速度、改善屠体性状、增加胸肌和腿肌的产量等研究[2-3],使肉品质性状受到负面影响,出现深度胸肌病变、白肌肉(PSE肉)、木质肉、白纹肉等使消费者的口感品质和感官充分性下降的肉类[4],其中,白纹肉常出现白色条纹或斑点,木质肉则表现为颜色苍白或有血点,这些异常肉类的肉色红度(a*)值通常低于正常肉类,进一步降低了产品的市场竞争力[5]。因此,在不影响快大型肉鸡生长速度的前提下,寻找无抗、无残留、高效可靠的饲料添加剂以提高其生长性能、改善肉品质具有重要的现实意义与应用价值。
茶树精油(tea tree essential oil,TTO)是一种天然植物提取物,具有极高的营养价值和药用价值。研究表明,TTO在抗炎、抗氧化、抗菌和抗病毒方面表现出显著功效[6],是目前已知活性最强的天然抑菌剂之一,已被广泛应用于食品、医药和化妆品等领域,作为杀菌剂和防腐剂使用。同时,TTO作为植物源性饲料添加剂,能够调节动物肠道菌群,提高动物对营养成分的吸收和利用效率[7]。然而,关于TTO对畜禽生长性能和肉品质调控的研究相对较少,仅有部分精油(如牛至精油)被证实可以改善肉鸡生长性能[8]
目前,TTO有效活性成分对机体调节代谢通路作用机制还不清楚。网络药理学是分析中草药有效活性成分和作用靶点的研究方法。因此,网络药理学能够系统地揭示TTO对代谢调控的分子机制。除此之外,代谢组学作为系统生物学的重要分支,可利用高通量检测技术同时从生物样品中收集并评估众多的代谢物,识别标志代谢物并探索生物化学作用机制,为特定时间点的代谢变化研究提供了精准方向[9-10]。目前,代谢组学已广泛应用于营养调控研究[11-12]。前期研究表明,TTO可以改善肉鸡生长发育[13]。因此,为了探究TTO对肉鸡肉品质和血浆代谢物的影响,本研究采用网络药理学和代谢组学技术,分析饲粮中添加TTO对肉鸡肉品质和血浆代谢物的影响,筛选与TTO相关的差异代谢物,旨在阐明TTO调控宿主的代谢途径,以改善肉鸡的生长性能和机体健康,为开发具有代谢调控功能的新型绿色饲料添加剂提供理论依据。

1 材料与方法

1.1 试验材料

TTO由福建某生物药业有限公司提供(含量大于10%),主要成分为松油烯-4-醇(32%)、γ松油烯(10%)、α松油烯(5%)。

1.2 试验设计

本试验经龙岩学院动物福利伦理委员会批准(LY2024008L)。选取180只1日龄科宝肉公鸡,初始体重为(44.20±0.50) g,采用完全随机设计分为2组,每组6个重复,每重复15只。对照组饲喂基础饲粮,试验组在基础饲粮中添加300 mg/kg的TTO。试验期42 d。基础饲粮为玉米-豆粕型,参照《鸡饲养标准》(NY/T 33—2004)分1~21日龄和22~42日龄2个阶段配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
含量 Content
1~21日龄
1 to 21
days of age
22~42日龄
22 to 42
days of age
原料 Ingredients
玉米 Corn 53.25 57.32
豆粕 Soybean meal 30.71 27.24
次粉 Wheat middling 8.00 7.00
豆油 Soybean oil 3.00 3.50
石粉 Limestone 1.60 1.50
食盐 NaCl 0.24 0.24
预混料 Premix1) 2.00 2.00
碳酸氢钙 CaHPO4 1.20 1.20
合计 Total 100.00 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 12.25 12.85
粗蛋白质 CP 21.14 20.23
钙 Ca 1.06 0.97
总磷 TP 0.70 0.67

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 8 000 IU,VD3 2 000 IU,VE 20 mg,VK3 4 mg,VB1 2 mg,VB2 6 mg,VB6 4 mg,VB12 0.02 mg,烟酸 nicotinic acid 40 mg,D-泛酸 D-pantothenic acid 12 mg,D-生物素 D-biotin 0.1 mg,叶酸 folic acid 1 mg,胆碱 choline 800 mg,DL-蛋氨酸 DL-methionine 1 000 mg,Fe 80 mg,Cu 8 mg,Mn 60 mg,Zn 80 mg,I 0.60 mg,Se 0.30 mg。
2)代谢能为计算值,其余均为实测值。ME was a calculated value, while the others were measured values.

1.3 样品采集与处理

采用翅静脉采血法采集2~3 mL血液,置于抗凝管中,4 ℃、850×g离心10 min分离血浆,取200 μL血浆分装至2 mL离心管中,-80 ℃保存备用。采集试验鸡的左侧胸肌和腿肌样品,称重后置于4 ℃保存备用。

1.4 指标测定

1.4.1 饲粮营养成分测定

代谢能根据《中国饲料成分及营养价值表(2021年第32版)》中各原料参考值及配方配比加权计算。粗蛋白质含量参照GB/T 6432—2018的方法测定,钙含量参照GB/T 6436—2018的方法测定,总磷含量参照GB/T 6437—2018的方法测定。

1.4.2 肉品质测定

肉色亮度(L*)、a*、黄度(b*)值及pH、剪切力、失水率的测定方法均参照《畜禽肉质的测定》(NY/T 1333—2007)。

1.4.3 血浆代谢组学分析

采用液相色谱-串联质谱(LC-MS/MS)进行非靶向代谢组学分析。色谱分离在Shimadzu LC-30A超高效液相色谱系统完成,使用Waters ACQUITY Premier HSS T3色谱柱(2.1 mm×100 mm,1.8 μm)。流动相为0.1%甲酸水(A)和0.1%甲酸乙腈(B),梯度洗脱程序:0~2 min,5%~20% B;2~5 min,20%~60% B;5~6 min,60%~99% B;6~7.5 min,99% B;7.5~7.6 min,99%~5% B;7.6~10 min,平衡于5% B。柱温40 ℃,流速0.4 mL/min,进样量4 μL。质谱在SCIEX TripleTOF 6000+系统上以信息依赖采集模式运行,一级扫描范围m/z 50~1 000(累积200 ms),二级触发范围m/z 25~1 000(累积40 ms)。数据经XCMS进行峰提取、对齐及保留时间校正。特征峰通过公共数据库、结构库及代谢物鉴定及失调网络分析(metabolite identification and dysregulated network analysis,metDNA)方法进行鉴定。试验过程中每10个样本插入1个质控(QC)样本,以评估系统重复性。

1.4.4 生物信息学分析

采用正交偏最小二乘法判别分析(OPLS-DA)和主成分分析(PCA)进行样品分类和差异分析。筛选标准为变量重要性投影(VIP)>1.5且P<0.05的血浆差异代谢物。通过KEGG数据库对差异代谢物进行代谢通路注释,使用Origin 2024和微生信软件进行数据可视化分析。

1.4.5 网络药理学分析

从PubChem数据库获取TTO相关化合物及其Uniprot靶点基因。针对脂代谢特点,以肥胖为目标,通过GeneCards、OMIM数据库获取肥胖相关靶点,去重后与TTO靶点取交集。基于String数据库构建蛋白质-蛋白质互作(PPI)网络,利用Cytoscape软件按度值(degree值)筛选关键靶点。通过DAVID数据库进行GO功能和KEGG通路富集分析,结果经微生物信息学平台可视化。关键靶点与有效成分的结构来源于PubChem、PDB数据库,经格式处理后采用AutoDock和CB-Dock软件完成分子对接。

1.5 数据统计分析

试验数据采用Excel 2020进行初步统计,采用SPSS 26统计软件进行单因素方差分析(one-way ANOVA),组间差异显著性检验采用LSD法。结果以“平均值±标准差”表示。

2 结果与分析

2.1 TTO对肉鸡肉品质的影响

表2可知,试验组的胸肌和腿肌a*值显著低于对照组(P<0.05),表明TTO对肉鸡肌肉颜色有一定影响。对照组和试验组之间其他肉品质指标均无显著差异(P>0.05)。
表2 TTO对肉鸡肉品质的影响

Table 2 Effects of TTO on meat quality of broilers

项目
Items
胸肌 Breast muscle 腿肌 Thigh muscle
对照组
Control group
试验组
Test group
对照组
Control group
试验组
Test group

pH
45 min 6.01±0.03 5.94±0.06 6.10±0.07 6.63±0.10
24 h 5.54±0.06 5.51±0.05 6.08±0.08 6.05±0.20


肉色
Meat color
亮度 L* 45.41±1.95 44.78±1.87 49.30±3.99 46.76±3.22
红度 a* 5.96±0.63a 3.26±1.81b 10.48±1.33a 7.72±3.30b
黄度 b* 9.89±1.51 9.39±0.95 11.05±2.84 12.07±1.92
剪切力 Shear force/(kg/cm2) 2.76±0.08 2.85±0.10 3.05±0.18 3.08±0.18
失水率 Water loss rate/% 6.27±0.98 6.41±0.87 5.62±1.32 5.15±0.53

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05).

2.2 TTO对肉鸡血浆代谢组学的影响

2.2.1 血浆样本质控分析结果

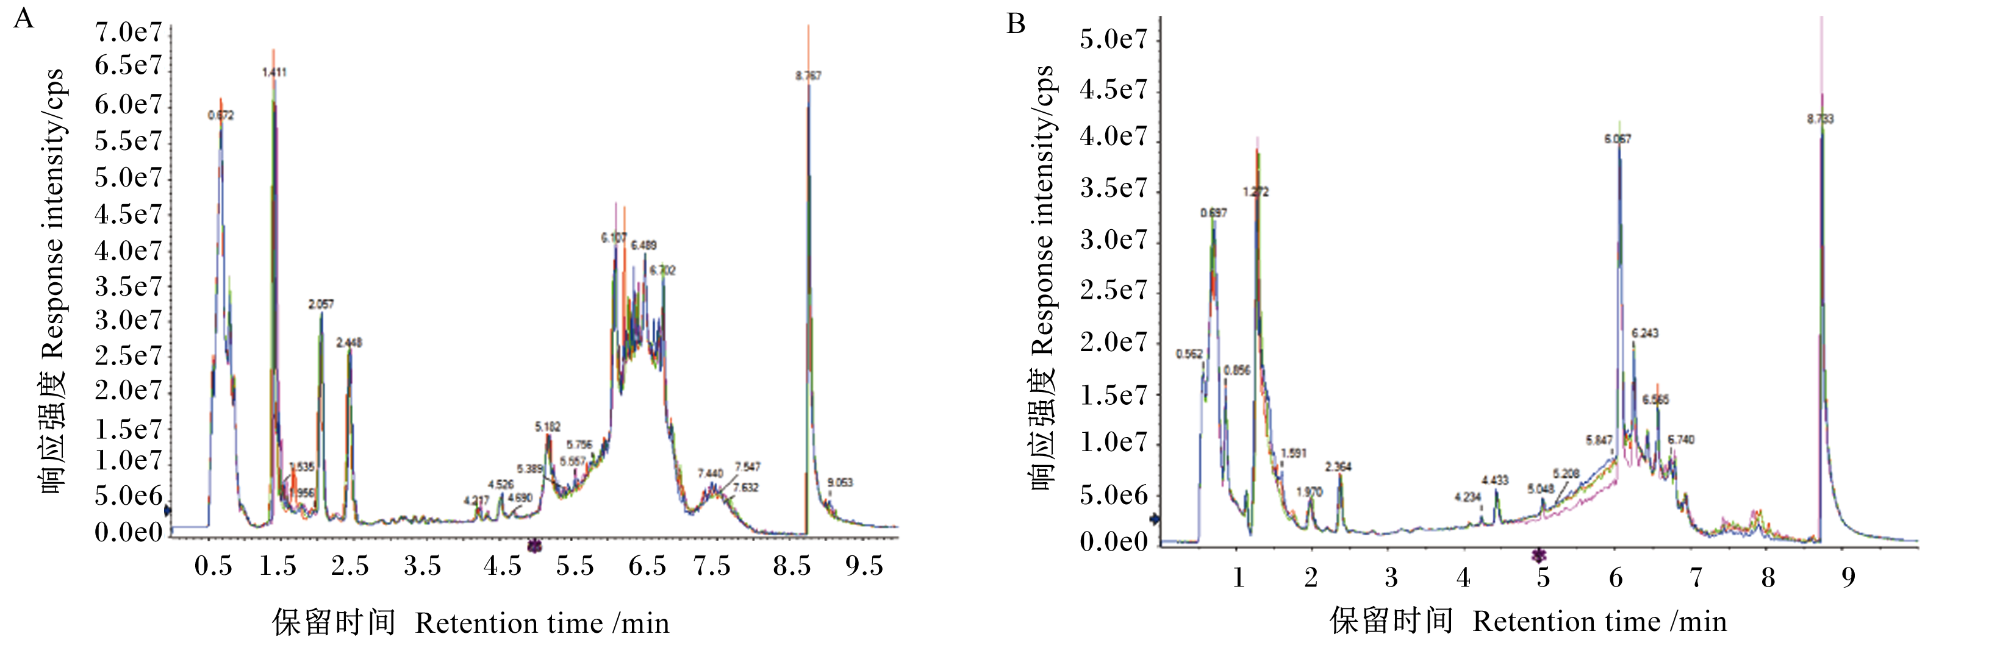
基于正离子模式(图1-A)和负离子模式(图1-B)下质控样本的总离子流图(TIC)重叠分析显示,各血浆代谢物检测的总离子流曲线具有高度重叠性,证实了质谱分析系统在整个试验过程中具有优异的信号稳定性。
图1 质控样本质谱检测TIC重叠分析

A:正离子模式 positive ion mode;B:负离子模式 negative ion mode。

Fig.1 QC sample mass spectrometry detection TIC overlap analysis

2.2.2 代谢物亚类组成分析结果

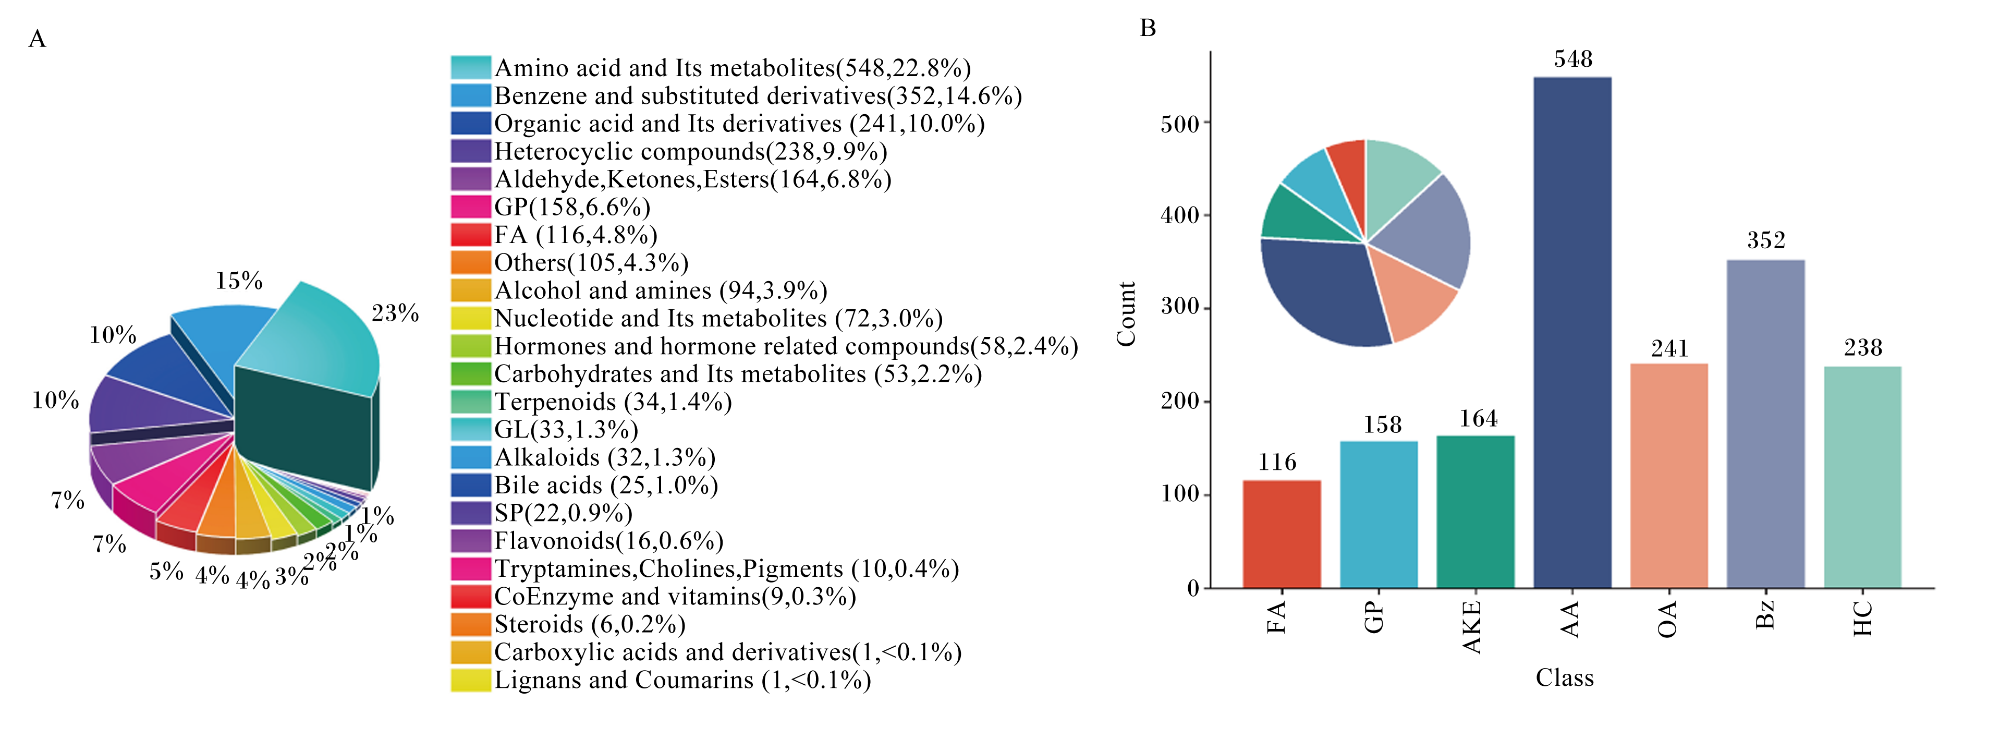
基于非靶向代谢组学技术,在对照组和试验组中共鉴定到2 395个代谢物,涵盖23个代谢物亚类(图2-A)。取前7个代谢物亚类分布分析显示,氨基酸及其代谢物在所有鉴定代谢物中占比最高(图2-B)。
图2 代谢物亚类组成

Amino acid and its metabolites,AA:氨基酸及其代谢物;Benzene and substituted derivatives,BZ:苯及取代衍生物;Organic acid and its derivatives,OA:有机酸及其衍生物;Heterocyclic compounds,HC:杂环化合物;Aldehyde, Ketones, Esters,AKE:醛、酮、酯;GP:甘油磷脂 glycerophospholipid;FA:脂肪酰类 fatty acyl;Others:其他;Alcohol and amines:醇类和胺类;Nucleotide and its metabolites:核苷酸及其代谢产物;Hormones and hormone related compounds:激素及激素相关化合物;Carbohydrates and its metabolites:碳水化合物及其代谢物;Terpenoids:萜类化合物;GL:甘油酯类 glycerides;Alkaloids:生物碱;Bile acids:胆汁酸;SP:鞘脂类;Flavonoids:黄酮类;Tryptamines, Cholines, Pigments:色胺、胆碱、色素;Coenzyme and vitamins:辅酶和维生素;Steroids:甾体类化合物;Carboxylic acids and derivatives:羧酸及其衍生物;Lignans and coumarins:木脂素和香豆素;Count:得分;Class:分类。图3图4同 the same as Fig.3 and Fig.4

A:代谢物种类饼图 pie chart of metabolite categories;B:差异代谢物种类及数目柱状图 bar chart of differential metabolite categories and counts。

Fig.2 Composition of metabolite subclasses

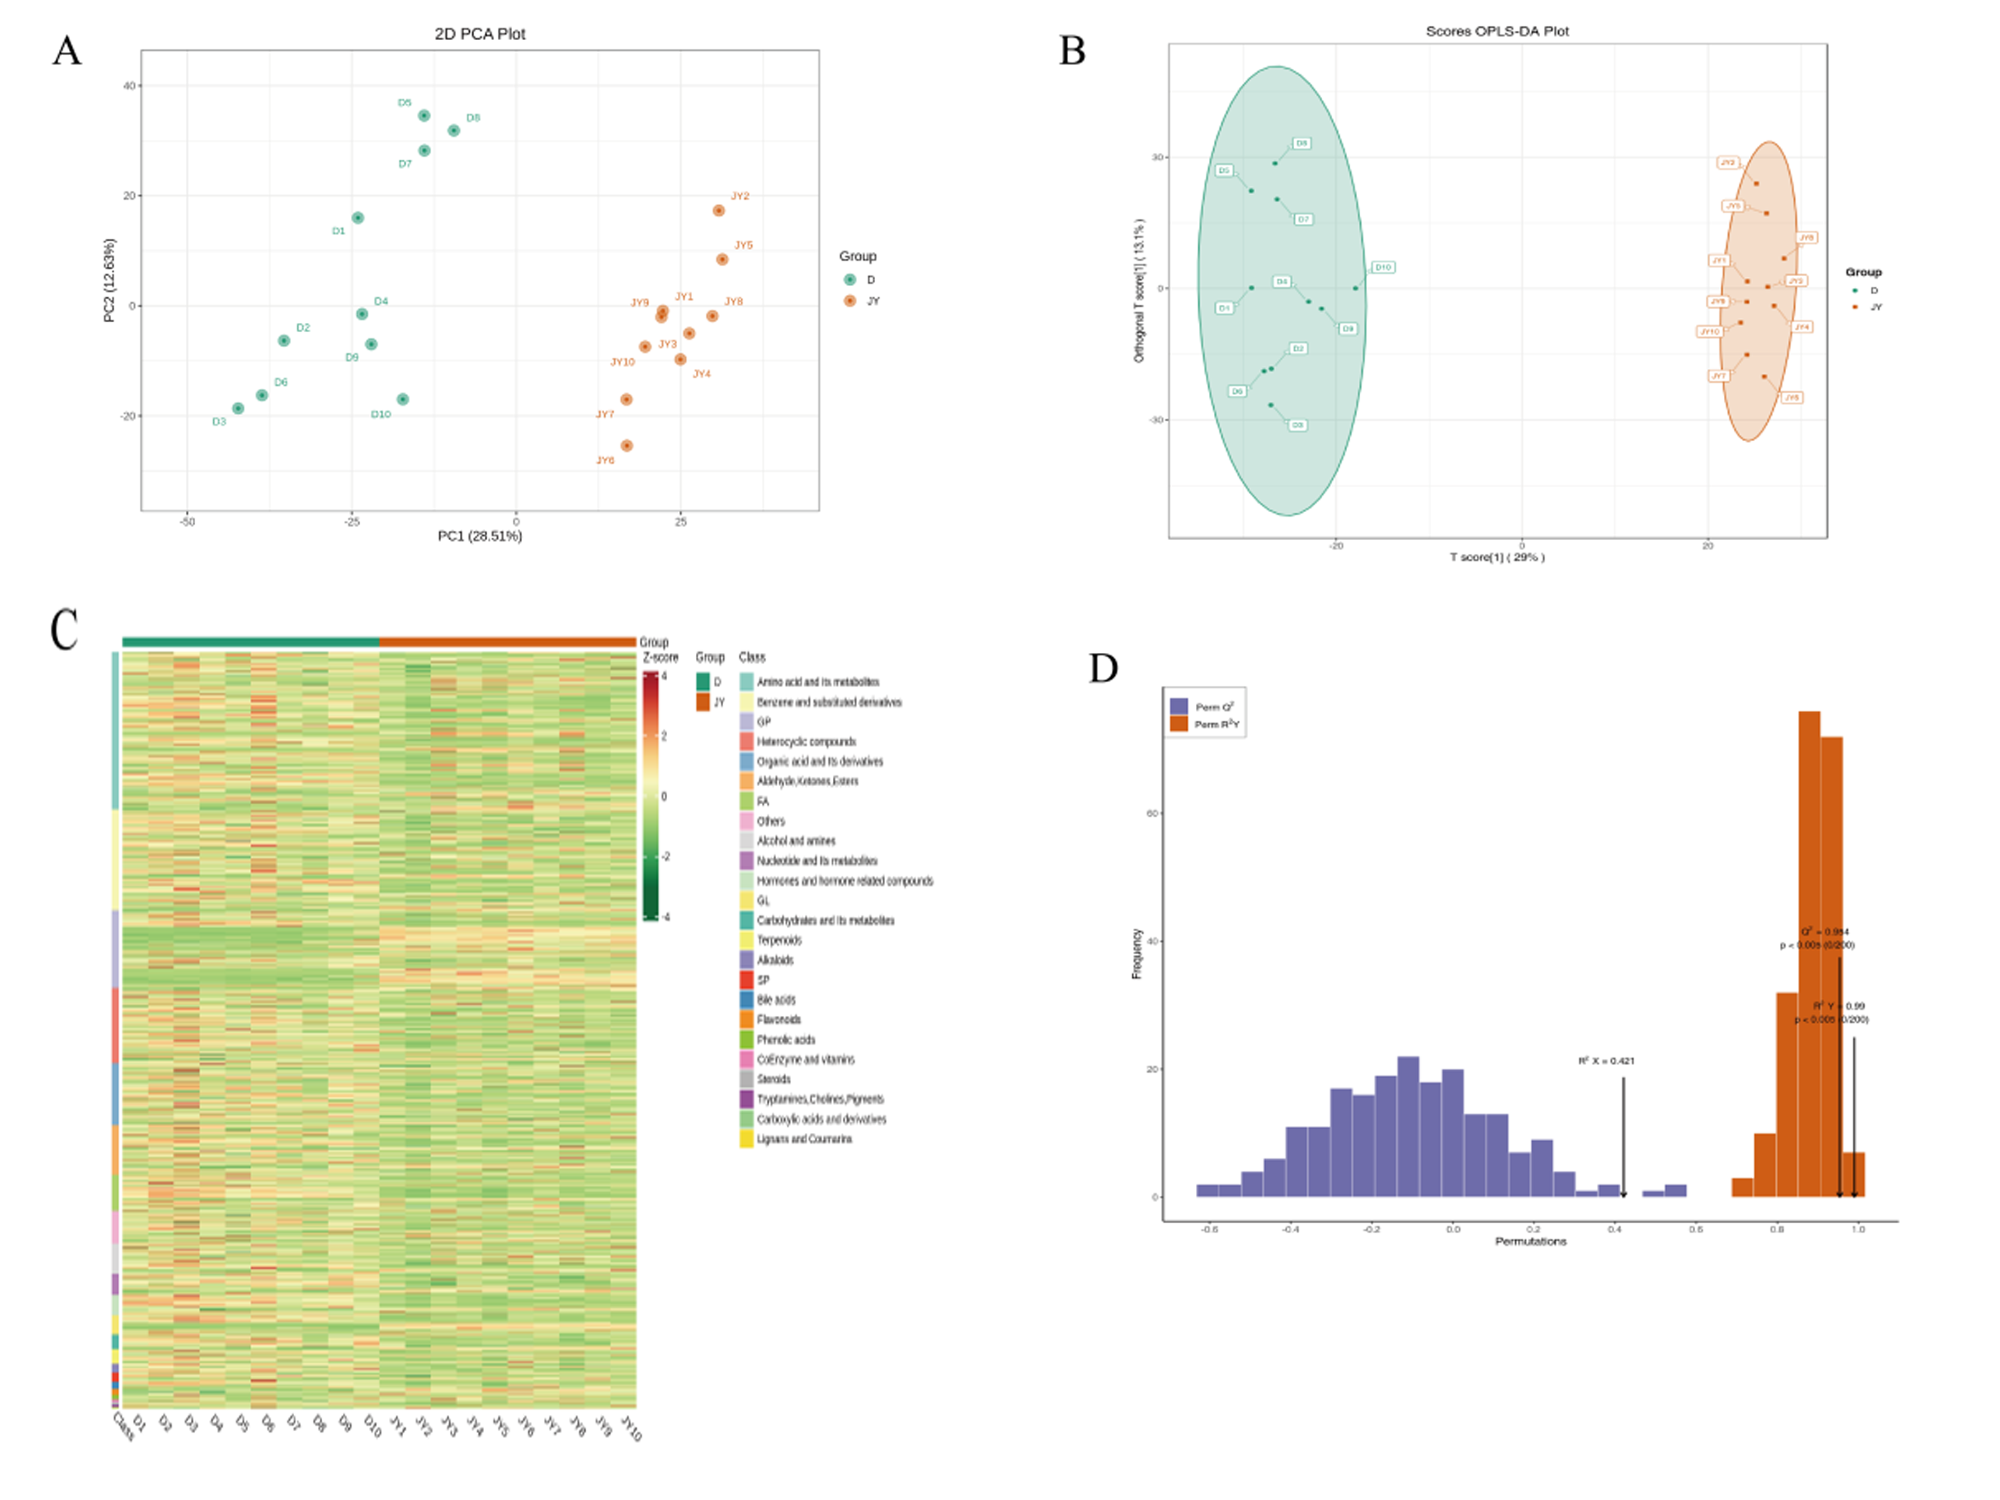
基于多元统计分析的肉鸡血浆代谢组结果显示,PCA表明试验组与对照组组存在明显差异(图3-A);OPLS-DA表明试验组样本聚集良好,组间分离明显(图3-B)。层次聚类分析进一步显示,试验组中氨基酸及其衍生物、苯及取代衍生物和甘油磷脂水平高于对照组(图3-C)。经200次置换检验验证,模型参数Q2=0.953(P<0.05)、R2Y=0.99(P<0.05)和R2X=0.421(图3-D),表明差异代谢物筛选结果可靠。
图3 代谢物亚类组成分析

D:对照组 control group;JY:试验组 test group;PC:主成分 principal component;Original T score:原始预测得分;T score:预测得分;Frequency:频率;Permutations:置换。

A:PCA得分图 PCA score plot;B:OPLS-DA得分图 OPLS-DA score plot;C:差异代谢物聚类热图cluster heatmap of differential metabolites;D:OPLS-DA验证图 OPLS-DA validation plot。

Fig.3 Analysis of composition of metabolite subclasses

2.2.3 差异代谢物筛选

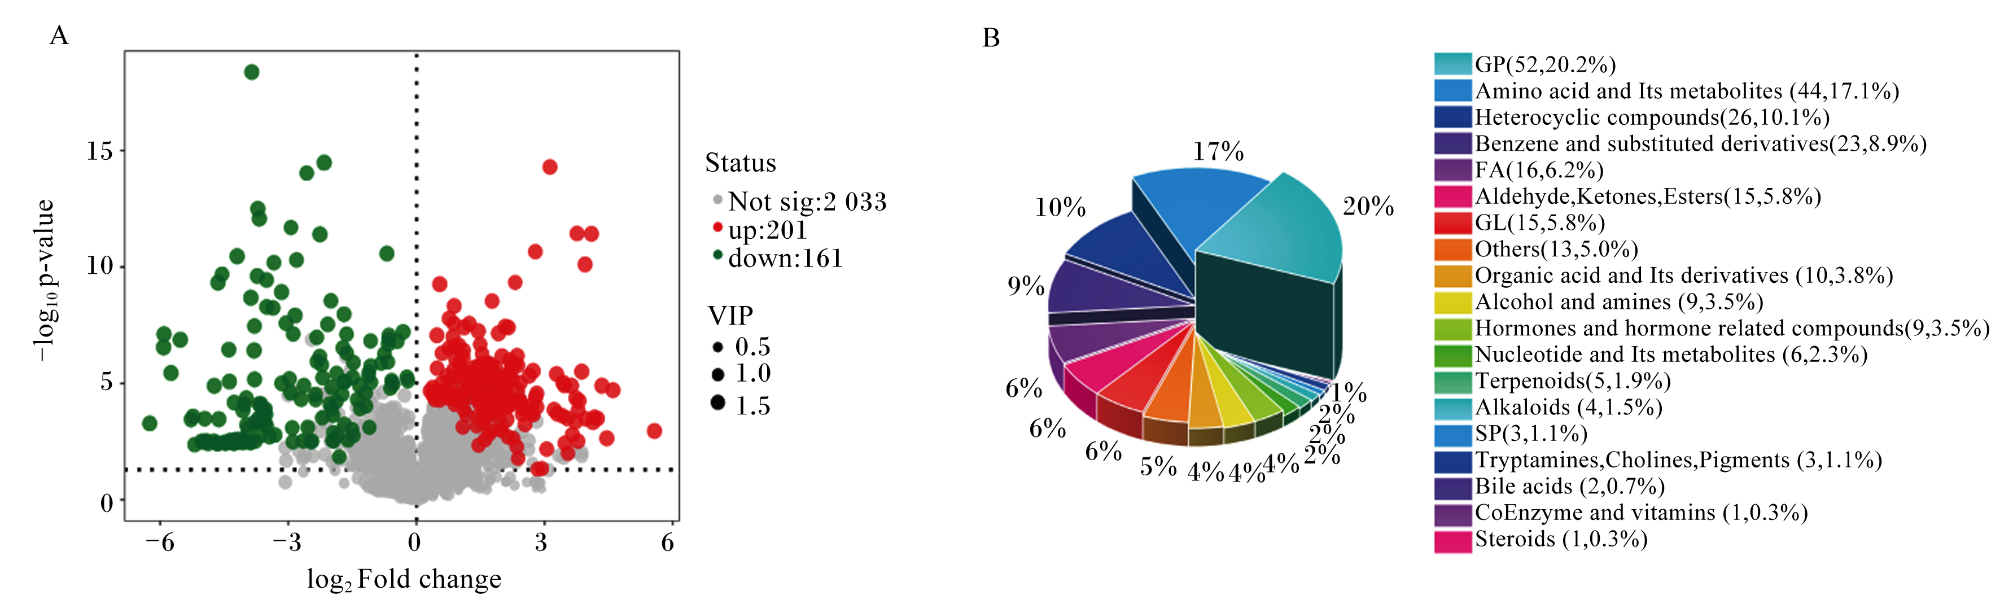
为明确TTO对肉鸡血浆代谢物的影响,以VIP>1.5且P<0.05为标准,筛选出362种差异代谢物(201种上调,161种下调)。进一步结合log2差异倍数(FC)>|±1|和错误发现率(FDR)<0.01,得到257种差异代谢物(151种上调,106种下调,图4-A)。差异代谢物以甘油磷脂占比最高,其次为氨基酸及其代谢物(图4-B)。分析前22种显著变化的内源性代谢物(表3),试验组血浆中多种代谢物水平显著升高,包括甘油磷脂类(如1-硬脂酰-2-花生四烯酰-sn-甘油-3-磷酸甘油)、脂肪酰类(如花生四烯酸-生物素、γ-亚麻酸),以及甘油脂类、胆汁酸、胆碱、有机酸及其衍生物、氨基酸及其代谢物等,如单甘油脂(MG)(18∶1/0∶0/0∶0)、甘氨脱氢胆酸、磷酸胍基乙酸酯和L-精氨酸等水平均呈现明显升高趋势。
图4 差异代谢物筛选

-log10p-value:P值负对数 -log10P-value。log2Fold change:log2差异倍数 log2FC;status:状态;Not sig:不显著 not significant;up:上调 up-regulated;down:下调 down-regulated;VIP:变量重要性投影variable importance projection。

A:差异代谢物火山图 volcano plot of differential metabolites;B:差异代谢物分类图 classification of differential metabolites。

Fig.4 Screen of differential metabolites

表3 差异代谢物筛选结果

Table 3 Screening results of differential metabolites

代谢物亚类
Metabolite
subclass
物质
Substance
变量重
要性投影
VIP
P
P-value
log2差异倍数
log2FC
类型
Type


甘油磷脂类
Glycerophospholipids
PC(18∶0/18∶0) 1.79 <0.001 -3.72 下调
1-硬脂酰-2-花生四烯酰PC-D8 1.79 <0.001 2.73 上调
1-棕榈酰-2-花生四烯酰-sn-甘油-3-磷酸甘油 1.69 <0.001 3.78 上调
LPC(18∶1/0∶0) 1.69 <0.001 2.69 上调
PC(20∶5(5Z,8Z,11Z,14Z,17Z)/20∶2(11Z,14Z)) 1.69 <0.001 -2.37 下调
PC(18∶0/20∶4(5Z,8Z,11Z,14Z)) 1.68 <0.001 -3.55 下调
PC(16∶1(9Z)/18∶1(11Z)) 1.67 <0.001 -3.79 下调
1,2二亚油酰基-sn-甘油-3-磷酸胆碱 1.65 <0.001 -3.34 下调
PC(18∶0/22∶5(4Z,7Z,10Z,13Z,16Z)) 1.65 <0.001 -2.33 下调
PC(16∶0/18∶1(11Z)) 1.65 <0.001 -1.99 下调
PC(18∶1(11Z)/20∶4(5Z,8Z,11Z,14Z)) 1.64 <0.001 -2.33 下调
PE(18∶1(11Z)/16∶0) 1.62 <0.001 -1.87 下调
PC(18∶0/18∶4(6Z,9Z,12Z,15Z)) 1.60 <0.001 -2.89 下调


脂肪酰类
Fatty acyls
花生四烯酸-生物素 1.76 <0.001 4.13 上调
γ-亚麻酸 1.73 <0.001 3.28 上调
亚油酸 1.61 <0.001 -1.11 下调

甘油脂类
Glycerolipids
MG(18∶1/0∶0/0∶0) 1.74 <0.001 3.30 上调
MG(16∶0/0∶0/0∶0) 1.66 <0.001 3.97 上调
胆汁酸 Bile acids 甘氨脱氢胆酸 1.77 <0.001 2.23 上调
色胺、胆碱、色素
Tryptamines,
choline, pigments
胆碱 1.73 <0.001 1.09 上调
有机酸及其衍生物
Organic acids and
derivatives
磷酸胍基乙酸酯 1.72 <0.001 2.09 上调
氨基酸及其代谢物
Amino acids and
metabolites
L-精氨酸 1.68 <0.001 1.27 上调

PC:磷脂酰胆碱 phosphatidylcholine;LPC:溶血磷脂酰胆碱 lysophosphatidylcholine;PE:磷脂酰乙醇胺 phosphatidylethanolamine;MG:单甘油脂 monoglyceride。表4同 the same as Table 4

2.2.4 相关网络及代谢通路分析

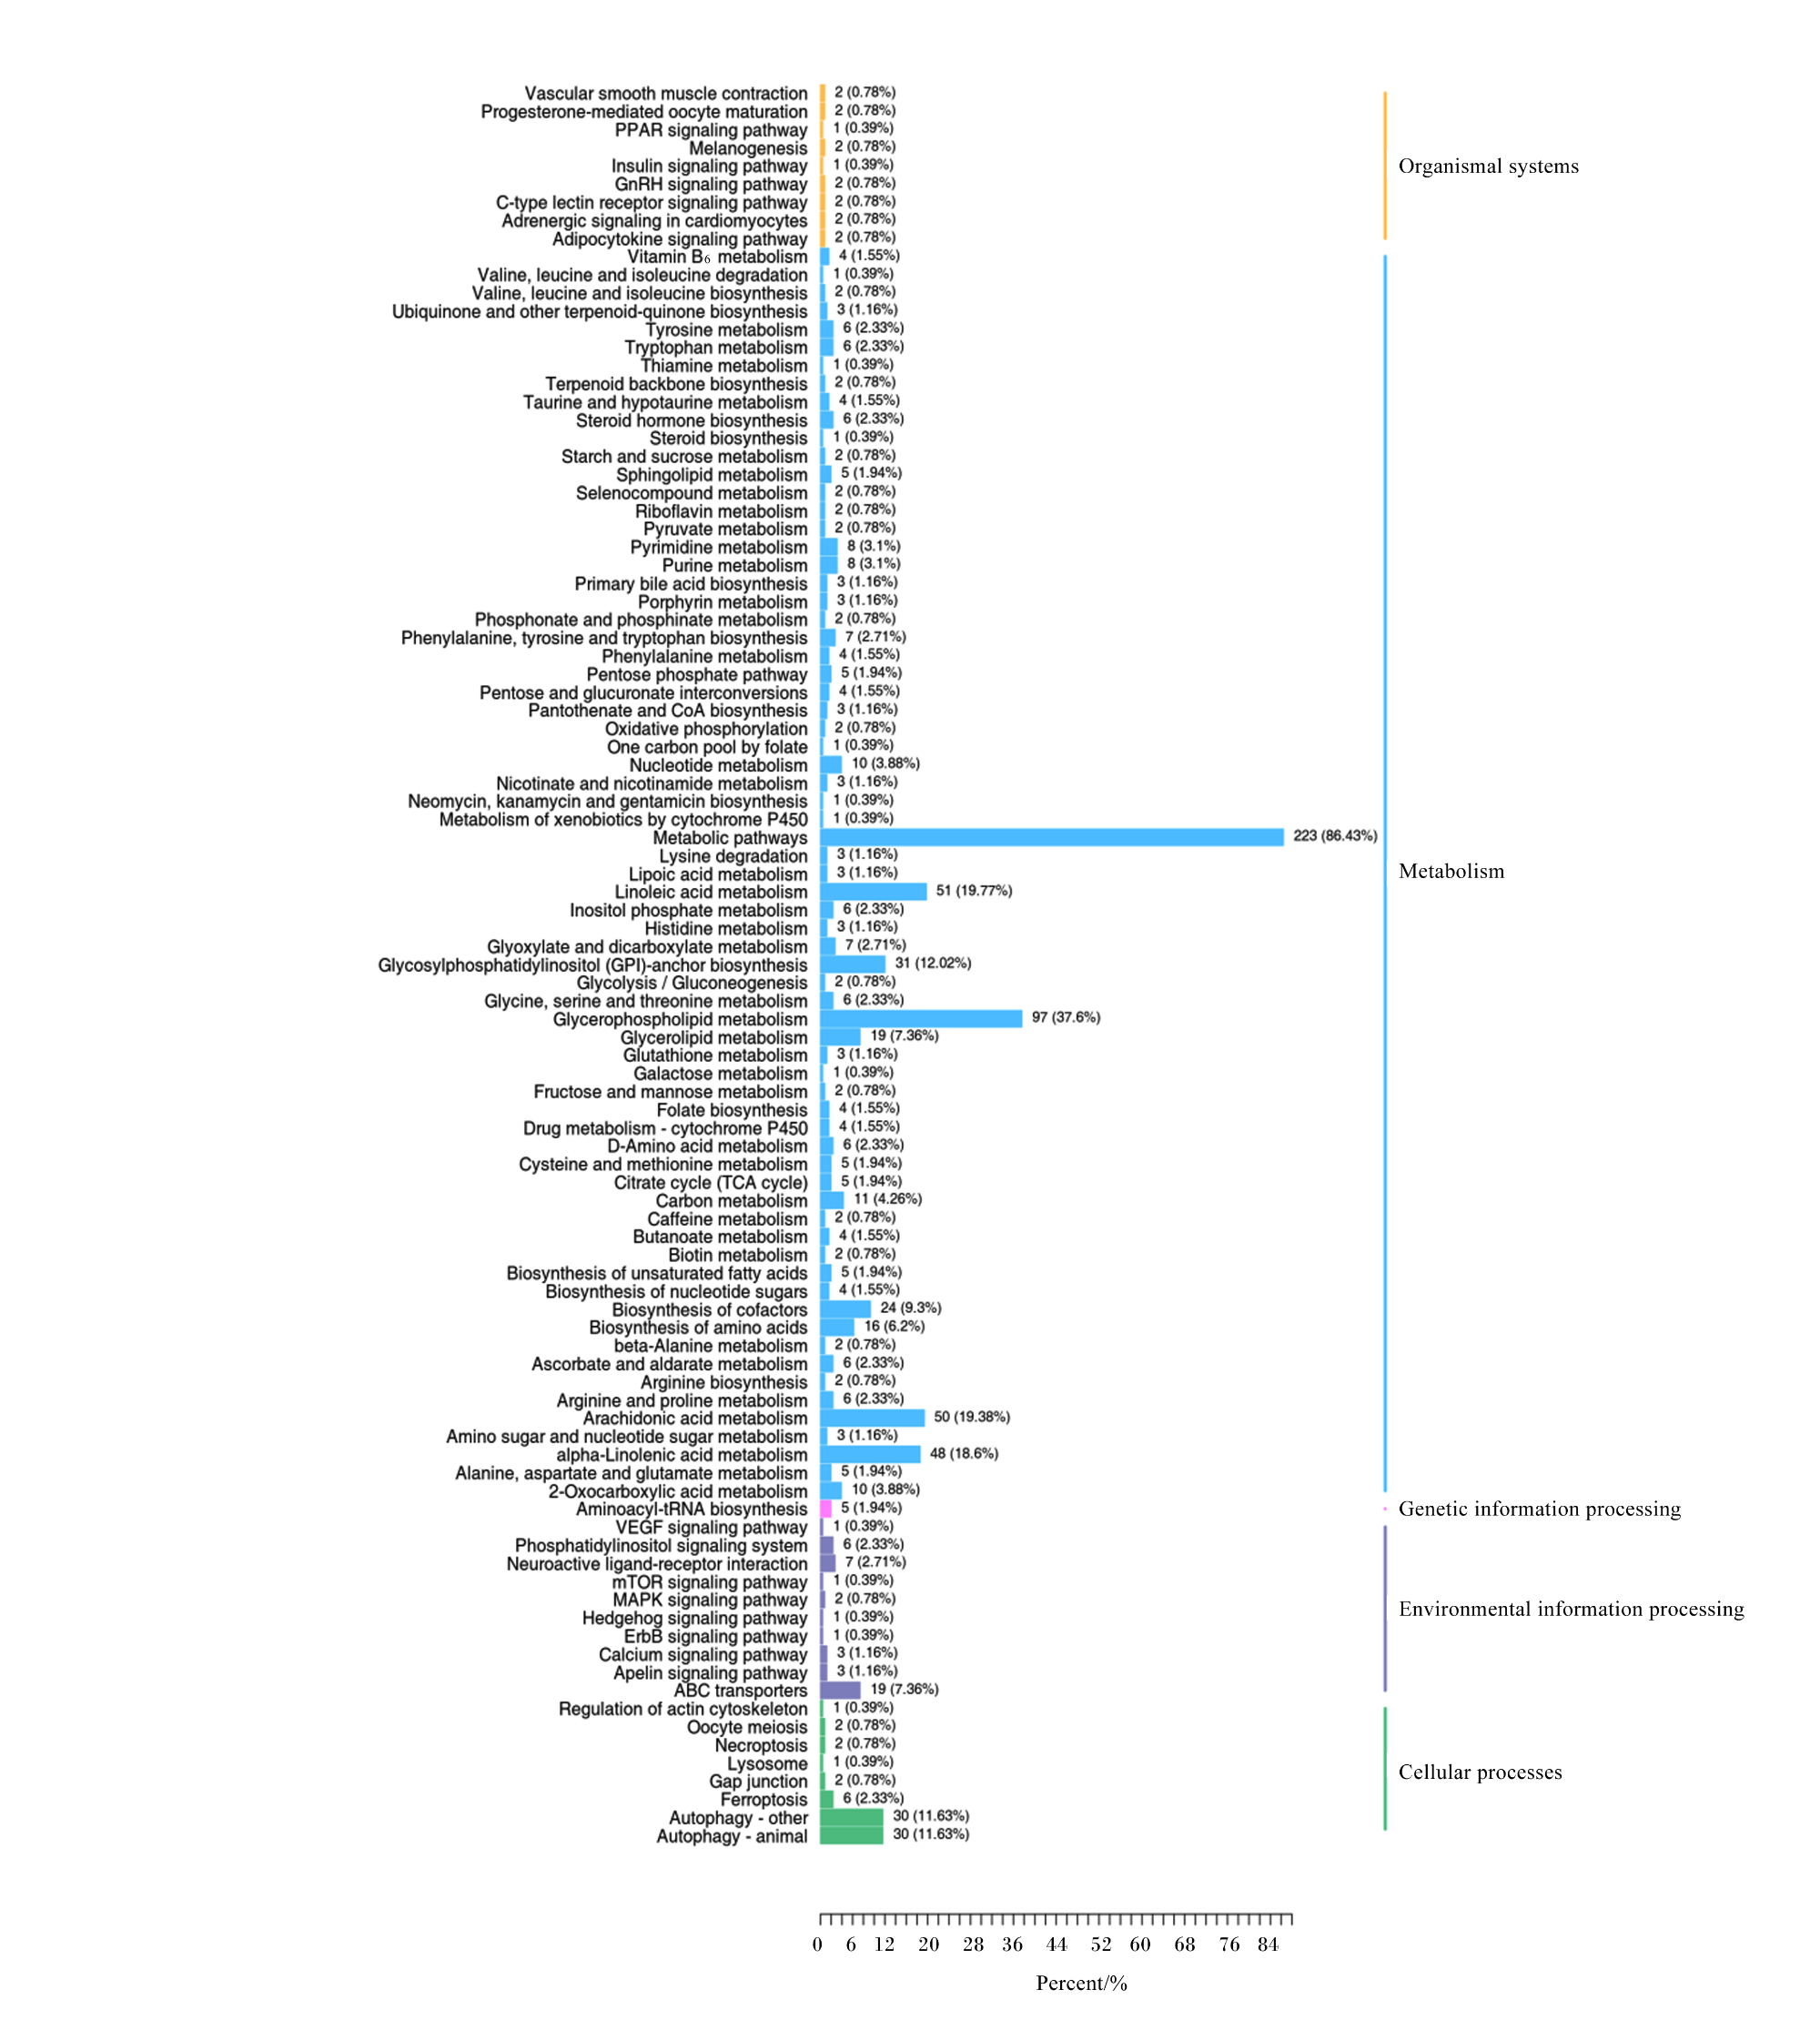
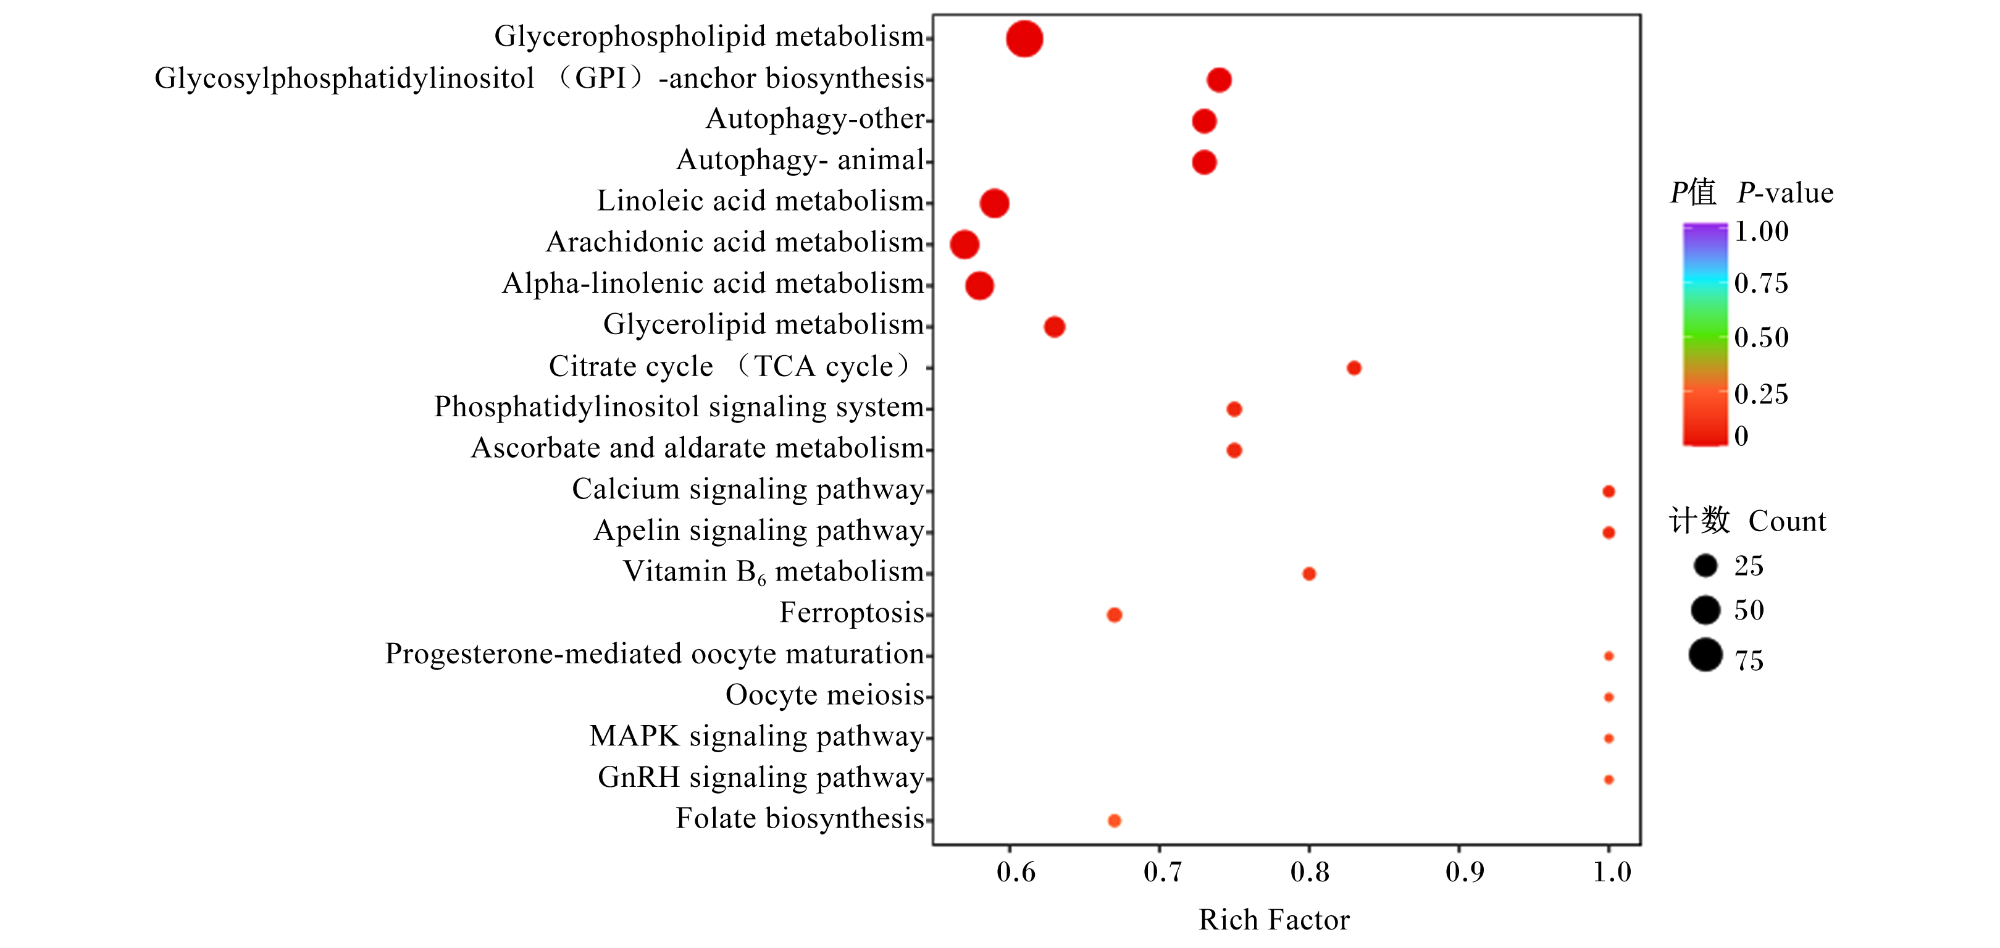
KEGG通路富集分析显示,试验组共鉴定出97条潜在代谢途径。差异代谢物主要富集于代谢途径(86.43%),其中甘油磷脂代谢(37.6%)、亚油酸代谢(19.77%)和花生四烯酸代谢(19.38%)为关键通路(图5)。P值(P<0.05)前20位的KEGG通路进一步显示主要富集于甘油磷脂代谢、亚油酸代谢、花生四烯酸代谢及α-亚麻酸代谢,表明TTO对这些通路具有显著调控作用(图6)。结果提示,TTO主要通过调控磷脂重构及多不饱和脂肪酸代谢网络发挥作用。选取前8条KEGG通路富集分析发现(表4),甘油磷脂代谢、亚油酸代谢、花生四烯酸代谢及α-亚麻酸代谢等通路均可生成甘油磷脂类代谢物;同时,差异代谢物L-氨基酸亦与ABC转运蛋白等多条代谢通路显著相关。
图5 差异代谢物KEGG分类

Organismal systems:有机体系统;Metabolism:代谢;Genetic information processing:遗传信息处理;Environmental information processing:环境信息处理;Cellular processes:细胞过程;Vascular smooth muscle contraction:血管平滑肌收缩;Progesterone-mediated oocyte maturation:孕酮介导的卵母细胞成熟;PPAR signaling pathway:PPAR信号通路;Insulin signaling pathway:胰岛素信号通路;cGMP-PKG signaling pathway:cGMP-PKG信号通路;C-type lectin receptor signaling pathway:C型凝集素受体信号通路;Adrenergic signaling in cardiomyocytes:心肌细胞中的肾上腺素能信号;Vitamin B6 metabolism:维生素B6代谢;Valine, leucine and isoleucine biosynthesis:缬氨酸、亮氨酸和异亮氨酸的生物合成;Ubiquinone and other terpenoid-quinone biosynthesis:泛醌及其他萜类-醌的生物合成;Thiamine metabolism:硫胺素代谢;Tyrosine metabolism:酪氨酸代谢;Taurine and hypotaurine metabolism:牛磺酸和亚牛磺酸代谢;Steroid hormone biosynthesis:甾体激素生物合成;Steroid biosynthesis:甾体生物合成;Starch and sucrose metabolism:淀粉和蔗糖代谢;Sphingolipid metabolism:鞘脂代谢;Selenocompound metabolism:硒化合物代谢;Pyruvate metabolism:丙酮酸代谢;Primary bile acid biosynthesis:初级胆汁酸生物合成;Pyrimidine metabolism:嘧啶代谢;Purine metabolism:嘌呤代谢;Phosphonate and phosphinate metabolism:膦酸酯和次膦酸酯代谢;Phenylalanine, tyrosine and tryptophan biosynthesis:苯丙氨酸、酪氨酸和色氨酸的生物合成;Phenylalanine metabolism:苯丙氨酸代谢;Penrose and glucuronate interconversions:戊糖和葡糖醛酸的相互转化;Palmitate and CoA biosynthesis:棕榈酸和辅酶A的生物合成;One carbon pool by folate:叶酸介导的一碳单位代谢;Nicotinate and nicotinamide metabolism:烟酸和烟酰胺代谢;Neomycin, kanamycin and gentamicin biosynthesis:新霉素、卡那霉素和庆大霉素的生物合成;Metabolism of xenobiotics by cytochrome P450:细胞色素P450介导的异生物质代谢;Lysine degradation:赖氨酸降解;Lipid phosphate phosphatase activity:脂质磷酸磷酸酶活性;Inositol phosphate metabolism:肌醇磷酸代谢;Histidine metabolism:组氨酸代谢;Glycosphingolipid biosynthesis (GPI-anchor biosynthesis):糖鞘脂生物合成(GPI锚定生物合成);Glycolysis/gluconeogenesis:糖酵解/糖异生;Glycerolipid metabolism:甘油脂代谢;Glycerophospholipid metabolism:甘油磷脂代谢;Galactose metabolism:半乳糖代谢;Fructose and mannose metabolism:果糖和甘露糖代谢;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;D-amino acid metabolism:D-氨基酸代谢;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Citrate cycle (TCA cycle):柠檬酸循环(三羧酸循环);Carbon metabolism:碳代谢;Butanoate metabolism:丁酸代谢;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Biosynthesis of secondary metabolites:次级代谢产物的生物合成;Biosynthesis of other secondary metabolites:其他次级代谢产物的生物合成;Biosynthesis of cofactors:辅因子的生物合成;Biosynthesis of amino acids:氨基酸的生物合成;Ascorbate and aldarate metabolism:抗坏血酸和醛糖酸代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖代谢;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;2-oxocarboxylic acid metabolism:2-氧羧酸代谢;VEGF signaling pathway:VEGF信号通路;mTOR signaling pathway:mTOR信号通路;Wnt signaling pathway:Wnt信号通路;MAPK signaling pathway:MAPK信号通路;HIF-1 signaling pathway:HIF-1信号通路;Endocrine resistance:内分泌抵抗;Calcium signaling pathway:钙信号通路;Apoptosis:细胞凋亡;Regulation of actin cytoskeleton:肌动蛋白细胞骨架的调控;ABC transporters:ABC转运蛋白;Neurotrophin signaling pathway:神经营养因子信号通路;Oocyte meiosis:卵母细胞减数分裂;Ferroptosis:铁死亡;Autophagy-other:自噬-其他;Autophagy-animal:自噬-动物;percent:百分率。

Fig.5 KEGG classification of differential metabolites

图6 差异代谢物KEGG通路富集分析

Glycerophospholipid metabolism:甘油磷脂代谢;Glycosylphosphatidylinositol (GPI)-anchor biosynthesis:糖基磷脂酰肌醇(GPI)锚定生物合成;Autophagy-other:自噬-其他;Autophagy- animal:自噬-动物;Linoleic acid metabolism:亚油酸代谢;Arachidonic acid metabolism:花生四烯酸代谢;Alpha-linolenic acid metabolism:α-亚麻酸代谢;Glycerolipid metabolism:甘油脂代谢;Citrate cycle (TCA cycle):柠檬酸循环(三羧酸循环);Phosphatidylinositol signaling system:磷脂酰肌醇信号系统;Ascorbate and aldarate metabolism:抗坏血酸和醛糖酸代谢;Calcium signaling pathway:钙信号通路;Apelin signaling pathway:Apelin信号通路;Vitamin B6 metabolism:维生素B6代谢;Ferroptosis:铁死亡;Progesterone-mediated oocyte maturation:孕酮介导的卵母细胞成熟;Oocyte meiosis:卵母细胞减数分裂;MAPK signaling pathway:MAPK信号通路;GnRH signaling pathway:GnRH信号通路;Folate biosynthesis:叶酸生物合成;Rich Factor:富集因子。

Fig.6 KEGG pathway enrichment analysis of differential metabolites

表4 差异代谢物KEGG通路富集分析(前8条)

Table 4 KEGG pathway enrichment analysis of differential metabolites (top 8)

项目
Items
代谢物亚类
Metabolite subclass
代谢物
Metabolite
P
P-value
代谢途径
Metabolic pathways
甘油磷脂类 1-硬脂酰-2-花生四烯酰PC-D8、1,2-
二十五碳烯基-sn-甘油-3-磷酸胆碱、1-棕榈酰-2-
花生四烯酰-sn-甘油-3-磷酸甘油LPC(18∶1/
0∶0)、1-十五烷酰基-sn-甘油-3-磷酸胆碱
<0.001
辅酶和维生素 维生素K <0.001
甘油脂类 MG(18∶1/0∶0/0∶0) <0.001
脂肪酰类 γ-亚麻酸 <0.001
氨基酸及其代谢物 L-精氨酸 <0.001
甘油磷脂代谢
Glycerophospholipid
metabolism
甘油磷脂类 LPC(16∶0/0∶0)、LPC(18∶1/0∶0)、1-硬脂酰-2-花生
四烯酰 PC-D8、1-十五烷酰基-sn-甘油-3-磷酸胆碱、
1-(1Z-十六烷基)-sn-甘油-3-磷酸胆碱、PC(20∶1(11Z)/
14∶1(9Z))、PC(22∶0/14∶1(9Z))、1,2-二十五碳烯基-sn-
甘油-3-磷酸胆碱、1-木质纤维素-2-羟基-sn-甘油-3-磷酸
胆碱、1-棕榈酰-2-花生四烯酰-sn-甘油-3-磷酸甘油
<0.001
甘油脂类 MG(16∶0/0∶0/0∶0) <0.001
亚油酸代谢
Linoleic acid metabolism
甘油磷脂类 LPC(18∶1/0∶0)、1-硬脂酰-2-花生四烯酰 PC-D8、
1-十五烷酰基-sn-甘油-3-磷酸胆碱、1-(1Z-十六
烷基)-sn-甘油-3-磷酸胆碱、PC(20∶1(11Z)/
14∶1(9Z))、PC(22∶0/14∶1(9Z))、
1,2-二十五碳烯基-sn-甘油-3-磷酸胆碱
<0.001

脂肪酰类
α-二吗啡酸 <0.001
γ-亚麻酸 <0.001
花生四烯酸代谢
Arachidonic acid metabolism
甘油磷脂类 1,2二亚油酰基-sn-甘油-3-磷酸胆碱、LPC
(18∶1/0∶0)、1-硬脂酰-2-花生四烯酰 PC-D8、1-十五烷
酰基-sn-甘油-3-磷酸胆碱、1-(1Z-十六烷基)-sn-
甘油-3-磷酸胆碱、PC(20∶1(11Z)/14∶1(9Z))、
PC(22∶0/14∶1(9Z))、1,2-二十五
碳烯基-sn-甘油-3-磷酸胆碱
<0.001
α-亚麻酸代谢
Alpha-linolenic acid
metabolism
甘油磷脂类 1,2二亚油酰基-sn-甘油-3-磷酸胆碱、LPC(18∶1/
0∶0)、1-硬脂酰-2-花生四烯酰 PC-D8、1-十五烷酰
基-sn-甘油-3-磷酸胆碱、1-(1Z-十六烷基)-sn-
甘油-3-磷酸胆碱、PC(20∶1(11Z)/14∶1(9Z))、
PC(22∶0/14∶1(9Z))、1,2-二十五
碳烯基-sn-甘油-3-磷酸胆碱
<0.001

ABC转运蛋白
ABC transporters
核苷酸及其代谢物 2'-脱氧胞苷、肌苷、鸟苷 <0.001
氨基酸及其代谢物 L-精氨酸 <0.001

氨基酸的生物合成
Biosynthesis of amino acids
氨基酸及其代谢物 L-精氨酸 <0.001
有机酸及其衍生物 丙酮酸 <0.001
甘油脂代谢
Glycerolipid metabolism
甘油脂类 MG(16∶0/0∶0/0∶0)、MG(18∶1/0∶0/0∶0)、
MG(i-18∶0/0∶0/0∶0)
<0.001

2.3 TTO对调控脂代谢的网络药理学分析

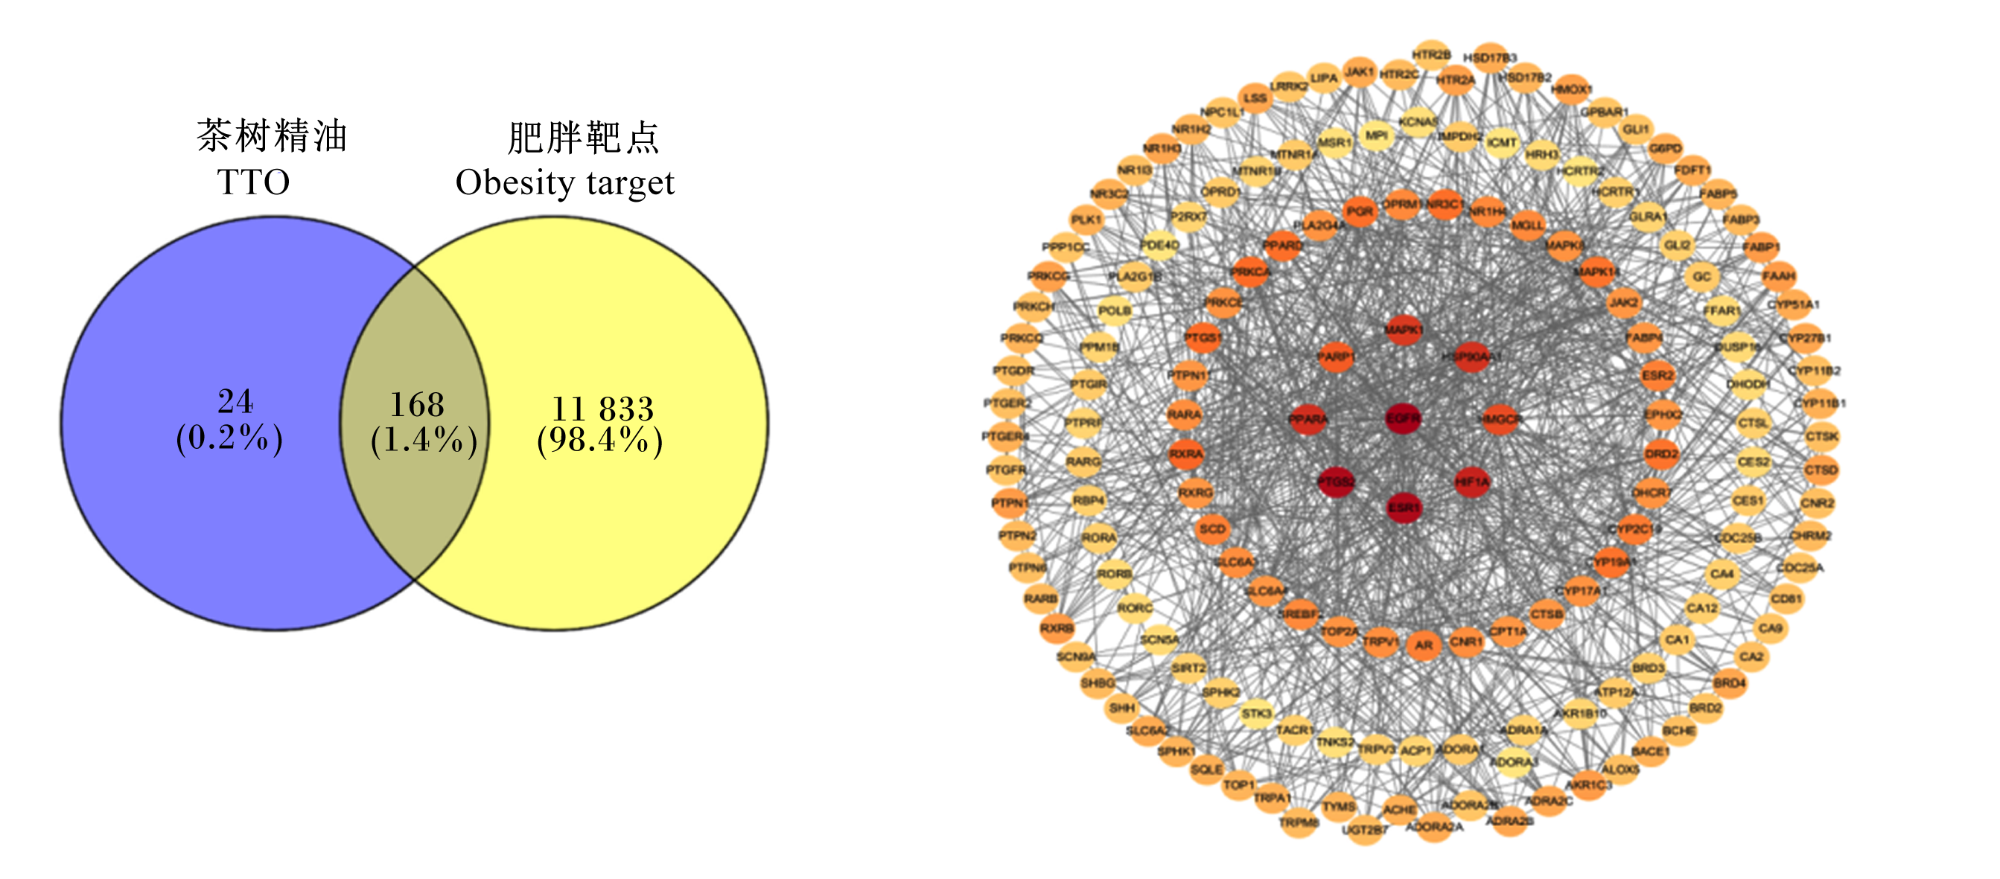
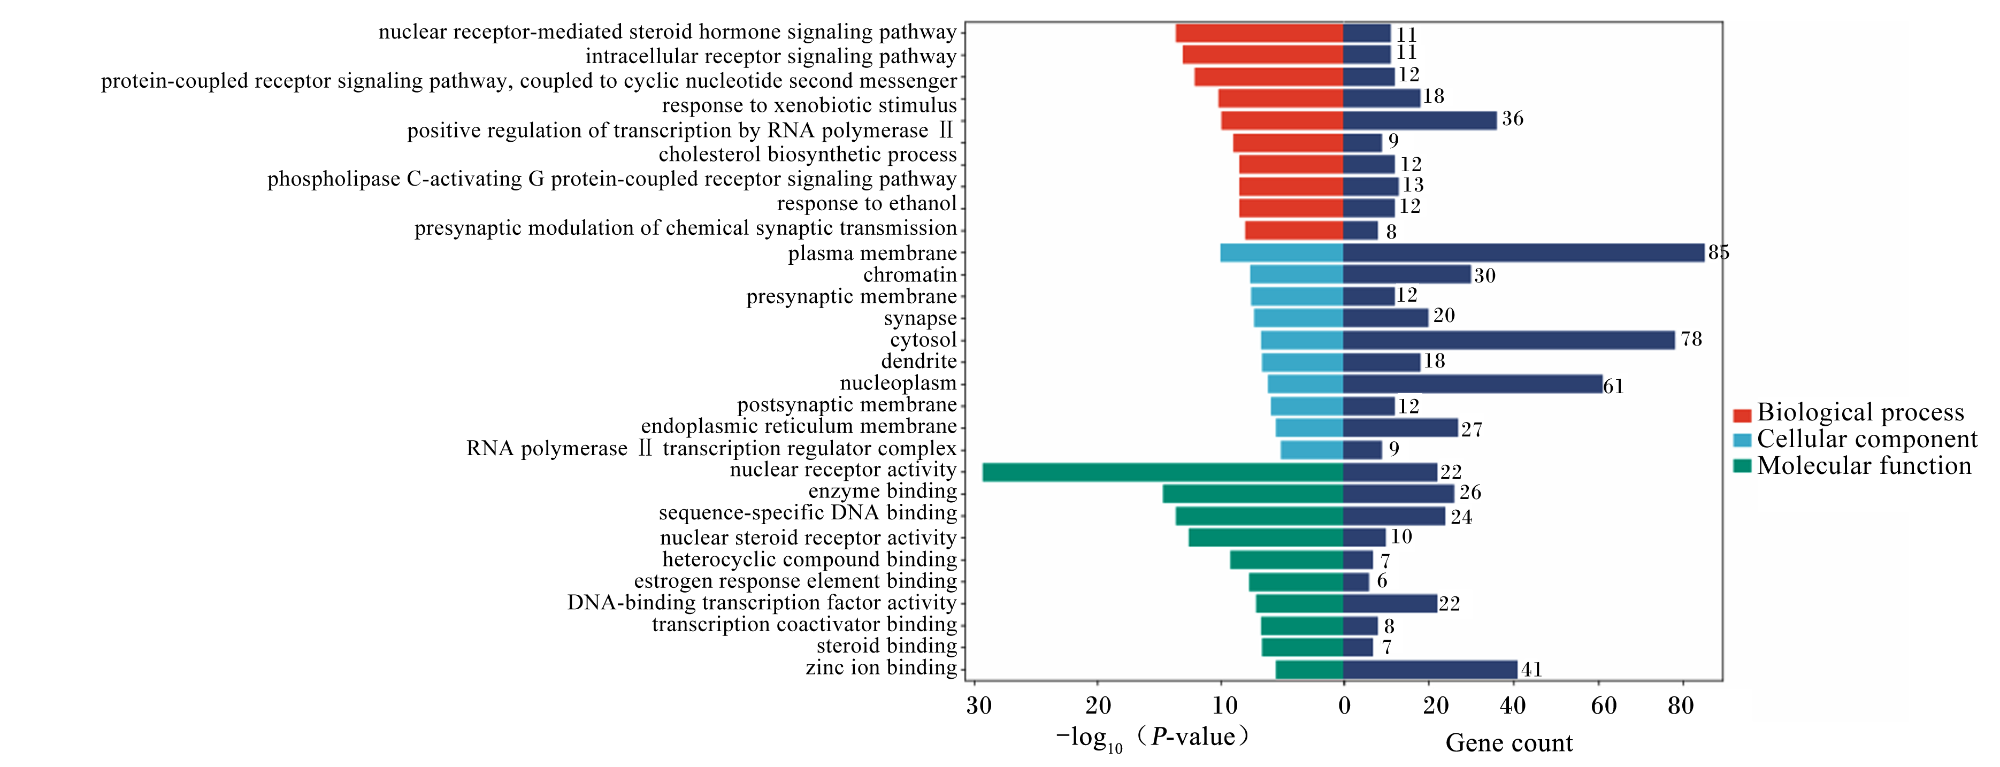
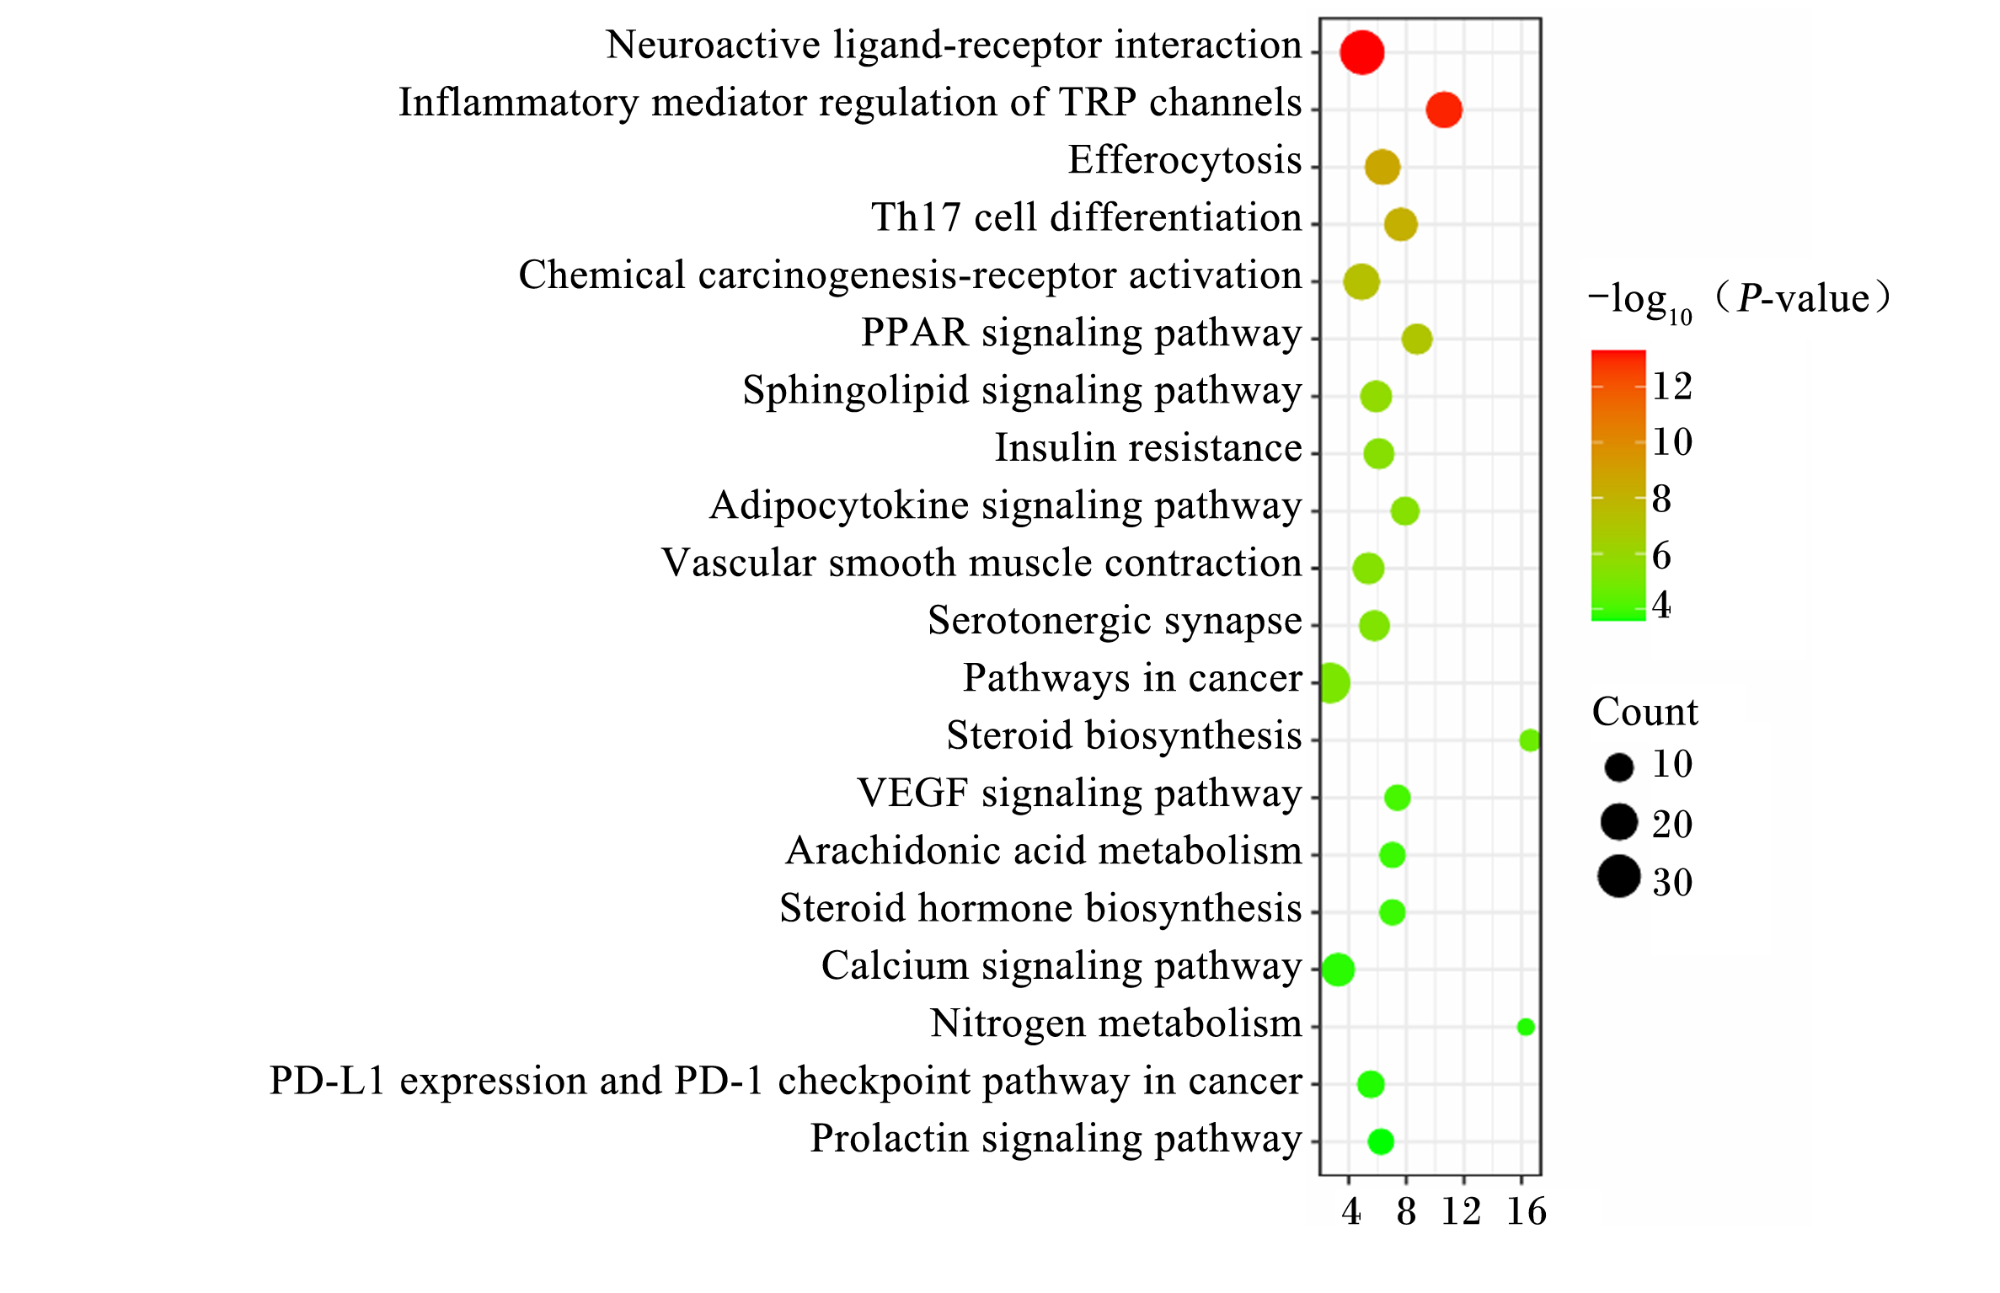
从PubChem数据库筛选得到6种TTO有效活性成分(表5)。通过GeneCards和OMIM数据库获得12 001个肥胖相关靶点,与TTO活性成分靶点取交集后获得168个共同靶点(图7-A)。经PPI网络及degree值分析,确定表皮生长因子受体(EGFR)、雌激素受体1(ESR1)、缺氧诱导因子1A(HIF1A)为关键靶点(图7-B)。DAVID数据库GO功能富集分析显示,交集靶点主要参与磷脂酶C激活型G蛋白偶联受体信号通路、核类固醇受体活性及类固醇结合等过程(图8)。KEGG通路富集分析表明,其主要富集于脂肪细胞因子信号通路、神经活性配体-受体相互作用、鞘脂信号通路及花生四烯酸代谢等通路(图9)。采用AutoDock和CB-Dock软件对关键靶点与TTO活性成分进行分子对接。结合能均低于-5 kcal/mol,表明三者能与活性成分形成稳定复合物(表6)。
表5 TTO有效活性成分

Table 5 Effective active components of TTO

编号 ID 有效活性成分 Effective active component
MOL000608 松油烯-4-醇 Terpinen-4-ol
MOL000904 1,8-桉叶油 1,8-cineole
MOL000911 α-松油烯 Alpha-terpilene
MOL000118 α-松油醇 Alpha-terpineol
MOL000202 γ-松油烯 Gamma-terpinene
MOL000264 异松油烯 Terpinolene
图7 TTO与肥胖靶点韦恩图和PPI网络图

仅列出后续相关靶点名称 list only the names of subsequent related targets。EGFR:表皮生长因子受体 epidermal growth factor receptor;ESR1:雌激素受体1 estrogen receptor 1;PTGS2:前列腺素内过氧化物合酶2 prostaglandin-endoperoxide synthase 2;HMGCR:3-羟基-3-甲基戊二酰辅酶A还原酶 3-hydroxy-3-methylglutaryl coenzyme A reductase;HIF1A:缺氧诱导因子1A hypoxia induce factor 1A。

Fig 7 TTO and obesity target Venn diagram and PPI network diagram

图8 GO功能富集分析

Biological process:生物学过程;Cellular component:细胞组分;Molecular function:分子功能;nuclear receptor-mediated steroid hormone signaling pathway:核受体介导的类固醇激素信号通路;intracellular receptor signaling pathway:细胞内受体信号通路;protein-coupled receptor signaling pathway, coupled to cyclic nucleotide second messenger:蛋白偶联受体信号通路(偶联环核苷酸第二信使);response to xenobiotic stimulus:外源性物质刺激应答;positive regulation of transcription by RNA polymerase Ⅱ:RNA聚合酶Ⅱ对转录的正调控;cholesterol biosynthetic process:胆固醇生物合成过程;phospholipase C-activating G protein-coupled receptor signaling pathway:磷脂酶C激活型G蛋白偶联受体信号通路;response to ethanol:乙醇应答;presynaptic modulation of chemical synaptic transmission:突触前部位对化学突触传递的调节作用;plasma membrane:质膜;chromatin:染色质;presynaptic membrane:突触前膜;synapse:突触;cytosol:细胞质;dendrite:树突;nucleoplasm:核质;postsynaptic membrane:突触后膜;endoplasmic reticulum membrane:内质网膜;RNA polymerase Ⅱ transcription regulator complex:RNA聚合酶Ⅱ转录调节复合物;nuclear receptor activity:核受体活性;enzyme binding:酶结合;sequence-specific DNA binding:序列特异性DNA结合;nuclear steroid receptor activity:核类固醇受体活性;heterocyclic compound binding:杂环化合物结合;estrogen response element binding:雌激素应答元件结合;DNA-binding transcription factor activity:DNA结合转录因子活性;transcription coactivator binding:转录辅激活因子结合;steroid binding:类固醇结合;zinc ion binding:锌离子结合; -log10(P-value):P值负对数;Gene count 基因数量。

Fig 8 GO functional enrichment analysis

图9 KEGG通路富集分析

Neuroactive ligand-receptor interaction:神经活性配体-受体相互作用;Inflammatory mediator regulation of TRP channels:炎症介质对TRP通道的调节作用;Efferocytosis:胞葬作用;Th17 cell differentiation:Th17细胞分化;Chemical carcinogenesis-receptor activation:化学致癌作用-受体的激活;PPAR signaling pathway:PPAR信号通路;Sphingolipid signaling pathway:鞘脂信号通路;Insulin resistance:胰岛素抵抗;Adipocytokine signaling pathway:脂肪细胞因子信号通路;Vascular smooth muscle contraction:血管平滑肌收缩;Serotonergic synapse:5-羟色胺能突触;Pathways in cancer:癌症相关通路;Steroid biosynthesis:类固醇生物合成;VEGF signaling pathway:血管内皮生长因子信号通路;Arachidonic acid metabolism:花生四烯酸代谢;Steroid hormone biosynthesis:类固醇激素生物合成;Calcium signaling pathway:钙信号通路;Nitrogen metabolism:氮代谢;PD-L1 expression and PD-1 checkpoint pathway in cancer:癌症中的PD-L1表达与PD-1检查点通路;Prolactin signaling pathway:催乳素信号传导通路;-log10(P-value):P值负对数;Count:数量。

Fig.9 KEGG pathway enrichment analysis

表6 TTO有效活性成分与关键靶点的结合能

Table 6 Binding energy between effective active components of TTO and key targetskcal/mol

分子名称
Molecular names
与EGFR结合能
Binding energy with EGFR
与ESR1结合能
Binding energy with ESR1
与HIF1A结合能
Binding energy with HIF1A
松油烯-4-醇 Terpinen-4-ol -6.0 -5.1 -5.2
1,8-桉叶油 1,8-cineole -5.2 -5.3 -5.7
α-松油烯 Alpha-terpilene -5.8 -5.1 -5.0
α-松油醇 Alpha-terpineol -6.1 -5.1 -5.9
γ-松油烯 Gamma-terpinene -9.2 -6.5 -6.8
异松油烯 Terpinolene -10.0 -7.2 -7.0

3 讨论

肉品质是评价肉类产品质量的主要指标,不仅直接影响消费者的感官体验,还与肉品的营养价值、加工特性及货架期密切相关[14]。本研究系统测定了肉鸡胸肌和腿肌的肉色、pH、剪切力和失水率等关键肉品质指标,以评估TTO对肉品质的影响,结果表明,试验组胸肌和腿肌a*值较对照组显著降低,肉色作为重要感官属性,主要取决于肌红蛋白的氧化还原状态和氧结合能力,优质肉色通常表现为较低的L*和b*值、较高的a*[15]。但pH、剪切力和失水率等指标未见显著差异,这可能与TTO添加剂量未达效应阈值或受饲养环境因素有关。
亚油酸和α-亚麻酸可通过调控脂肪代谢、脂肪酸合成与分解、肌肉发育及脂肪酸组成等途径显著影响肉品质[16]。邹优敬等[17]报道,饲粮添加α-亚麻酸能提升肉鸡增重、屠宰性能及饲料利用率,同时改善鸡肉风味和品质。姚池蓓[18]研究发现,添加不同比例的α-亚麻酸/亚油酸可提高草鱼生长性能并优化肌肉品质,从而提升肌肉营养价值;适宜比例的α-亚麻酸/亚油酸(0.92)可提高草鱼的肉色(a*值),改善肌肉品质,这与本试验结果不一致,可能与试验对象不同有关。本试验结果显示,TTO能激活肉鸡亚油酸代谢和α-亚麻酸代谢通路,肌肉膜磷脂中总多不饱和脂肪酸含量与脂质氧化速率和肉色稳定性之间存在强烈的负相关,其含量升高都会增加氧化风险,进而影响肉质颜色。
脂质分子分为脂肪酰类、甘油酯类、甘油磷脂类、鞘脂类、固醇脂类、异戊烯醇脂类、糖脂类和聚酮化合物八大类[19],作为关键生物分子,其在细胞膜构建、能量储备及信号转导等生理过程中发挥核心作用[20]。其中,血浆脂质组分主要包括甘油三酯、磷脂、胆固醇酯及游离脂肪酸,其来源可分为外源性(饲粮摄食经消化道吸收)与内源性(肝脏、脂肪组织等合成释放)[21]。而甘油磷脂作为机体内含量最多的磷脂之一,是构成活体细胞膜的主要成分,参与细胞膜对蛋白质的识别以及信号传导,根据其结构通式中-X基团的不同,分为磷脂酰胆碱、磷脂酰乙醇胺等。Thomas等[22]认为,磷脂水平的升高可通过提高细胞膜受体定位的精确性,从而优化生长激素和免疫信号的传递效率。本研究结果显示,试验组肉鸡血浆中甘油磷脂类代谢物水平提升,且甘油磷脂代谢通路富集度最高,表明TTO可通过影响细胞膜受体定位的精确性,促进肉鸡生理功能的稳态,摄入的营养物质对脂类代谢具有影响作用[23]。本试验结果显示,TTO提升1-硬脂酰-2-花生四烯酰/1-棕榈酰-2-花生四烯酰-sn-甘油-3-磷酸甘油和溶血磷脂酰胆碱(LPC)等代谢物的水平。1-硬脂酰-2-花生四烯酰磷脂是动物细胞膜(尤其是肌肉细胞膜)中的一种重要磷脂成分。1-棕榈酰-2-花生四烯酰-sn-甘油-3-磷酸甘油是磷脂酰甘油的一种分子种类,也是动物细胞中一种重要的磷脂其氧化产物(自由基、过氧化物等),直接影响肌红蛋白合成,并破坏膜结构释放促氧化剂[24],进而影响肉质颜色。
本研究通过网络药理学方法系统分析了TTO活性成分对脂代谢的调控作用,获取了EGFR、ESR1、HIF1A等关键靶点,脂肪细胞因子信号通路。TTO活性成分中的松油烯-4-醇能够缓解脂多糖(LPS)诱导的肠上皮细胞的损伤,改善肠道健康[25];α-松油烯和γ-松油烯具有良好的抗氧化作用[26]。EGFR是参与调控细胞分裂、增殖、炎症的关键蛋白,抑制EGFR磷酸化可缓解非酒精性脂肪肝病(NAFLD)小鼠的脂肪堆积[27]。Choung等[28]报道,在饮食诱导的肥胖小鼠中,抑制EGFR表达可以降低小鼠的体重及脂肪含量。ESR1是一种雌激素受体,可以通过细胞外调节蛋白激酶1/2(ERK1/2)缓解肝脏脂肪沉积和抗氧化应激反应[29]。ESR1可促进脂肪组织中血管内皮生长因子A的表达,改善脂肪组织功能[30]。HIF1A通过上调脂肪酸结合蛋白,促进脂肪酸摄取和脂滴储存,减少游离脂肪酸的β-氧化,从而抑制脂质过氧化[31]。脂肪细胞因子信号通路由脂肪细胞合成并分泌的多种激素和细胞因子通过细胞表面受体的结合作用来调节生理过程的一系列化学反应,包括能量代谢、炎症反应、免疫应答、细胞增殖等[32]。过氧化物酶体增殖物激活受体(PPAR)信号通路可以调节脂质β-氧化系统的代谢[33]。EGFR调节花生四烯酸调节,促进合体滋养层细胞分泌绒毛膜[34]。通过交集靶点的GO功能和KEGG通路富集分析,其代谢物会影响肉品质,如花生四烯酸的水平能反映了肉的营养价值[35],钙信号通路与肉品质密切相关及改善脂肪沉积[36-37]。结合能的数值越小,意味着活性成分与靶点之间的结合更为紧密且稳定[38]。分子对接结合结果表明,TTO活性成分能与靶点有效地结合。综上所述,推测TTO与脂代谢调控有密切关系。

4 结论

肉鸡饲粮中添加300 mg/kg的TTO能显著降低肌肉a*值,并引起血浆中257种代谢物显著变化,包括甘油磷脂水平升高和L-精氨酸代谢上调。网络药理学分析揭示,TTO可能通过作用于EGFR、ESR1等核心靶点,调控PPAR等信号通路,进而影响甘油磷脂、亚油酸等代谢途径,是其调节机体代谢并最终影响鸡肉品质的潜在机制。
[1]
ZHANG H F, WANG J, MARTIN W. Factors affecting households’ meat purchase and future meat consumption changes in China:a demand system approach[J]. Journal of Ethnic Foods, 2018, 5(1):24-32.

DOI

[2]
SANTOS M N, ROTHSCHILD D, WIDOWSKI T M, et al. In pursuit of a better broiler:carcass traits and muscle myopathies in conventional and slower-growing strains of broiler chickens[J]. Poultry Science, 2021, 100(9):101309.

DOI

[3]
ALSOUFI M A, LIU Y, CAO C W, et al. Integrated transcriptomics profiling in Chahua and Digao chickens’ breast for assessment molecular mechanism of meat quality traits[J]. Genes, 2022, 14(1):95.

DOI

[4]
王可, 刘欢, 张一敏, 等. 肉鸡异常肉的研究进展[J]. 肉类研究, 2023, 37(7):35-44.

WANG K, LIU H, ZHANG Y M, et al. Research progress on abnormal broiler meat[J]. Meat Research, 2023, 37(7):35-44. (in Chinese)

[5]
王梦如, 王雨佳, 陈金虎, 等. 3种茶树精油的GC-MS分析及体外抑菌研究[J]. 食品科技, 2020, 45(4):291-296.

WANG M R, WANG Y J, CHEN J H, et al. Analysis of three essential oils of tea tree by GC-MS and study on antibacterial activity[J]. Food Science and Technology, 2020, 45(4):291-296. (in Chinese)

[6]
程峰, 尚若锋, 杨珍, 等. 茶树精油抗微生物作用机理研究进展[J]. 食品工业科技, 2021, 42(3):331-337.

CHENG F, SHANG R F, YANG Z, et al. Advances in antimicrobial mechanism of tea tree oil[J]. Science and Technology of Food Industry, 2021, 42(3):331-337. (in Chinese)

[7]
唐歆, 李晓冰, 田颖, 等. 茶树精油对断奶仔猪生长性能、抗氧化能力、免疫功能以及肠道屏障功能的影响[J]. 动物营养学报, 2024, 36(4):2246-2261.

DOI

TANG X, LI X B, TIAN Y, et al. Effects of tea tree oil on growth performance,antioxidant capacity,immune function and intestinal barrier function of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2246-2261. (in Chinese)

DOI

[8]
李晓杰, 冀泓澔, 刘仲昊, 等. 牛至精油对肉鸡生长性能、免疫功能和屠宰性能的影响[J]. 饲料研究, 2024, 47(15):45-50.

LI X J, JI H B, LIU Z H, et al. Effects of oregano essential oil on growth performance,immune function,and slaughter performance of broilers[J]. Feed Research, 2024, 47(15):45-50. (in Chinese)

[9]
YUAN H L, CAO G P, HOU X D, et al. Development of a widely targeted volatilomics method for profiling volatilomes in plants[J]. Molecular Plant, 2022, 15(1):189-202.

DOI

[10]
张兆博, 侯黎明, 李平华, 等. 基于血浆代谢组学筛选日粮纤维影响二花脸猪肉质性状的候选代谢物[J]. 畜牧兽医学报, 2023, 54(9):3758-3769.

DOI

ZHANG Z B, HOU L M, LI P H, et al. Screening candidate metabolites of dietary fiber affecting meat quality traits of Erhualian pigs based on plasma metabolomics[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(9):3758-3769. (in Chinese)

[11]
马丽娜, 李蕾蕾, 康晓冬, 等. 饲粮蛋白质水平对哺乳期犊牛生长性能、血清生化、免疫和抗氧化指标以及血清代谢物的影响[J]. 动物营养学报, 2024, 36(9):5776-5792.

DOI

MA L N, LI L L, KANG X D, et al. Effects of dietary protein level on growth performance, serum biochemical, immune and antioxidant indexes and serum metabolites of lactating calves[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5776-5792. (in Chinese)

[12]
段元亮, 高杰, 赖玉娇, 等. 维生素K3对爱拔益加肉鸡生长性能和血浆代谢组学的影响[J]. 动物营养学报, 2025, 37(7):4481-4493.

DOI

DUAN Y L, GAO J, LAI Y J, et al. Effects of vitamin K3 on growth performance and plasma metabolomics of Arbor Acres broilers[J]. Chinese Journal of Animal Nutrition, 2025, 37(7):4481-4493. (in Chinese)

[13]
田颖. TTO纳米乳剂的制备及对白羽肉鸡保健作用的研究[D].硕士学位论文. 福州: 福建农林大学, 2024.

TIAN Y. Preparation of TTO nanoemulsion and study on its effect on health of white-feathered broilers[D].Master’s Thesis. Fuzhou: Fujian Agriculture and Forestry University, 2024. (in Chinese)

[14]
张飞, 赵天枝, 陈诒伟, 等. 散养和封闭式笼养模式下塔里木鸽相关性能的比较分析[J]. 养禽与禽病防治, 2025,(12):31-36.

ZHANG F, ZHAO T Z, CHEN Y W, et al. Comparative analysis of related performance of Tarim pigeons under free-range and closed cage rearing modes[J]. Poultry and poultry disease prevention and control, 2025,(12):31-36. (in Chinese)

[15]
闫世雄, 李颜攸, 胡梅, 等. 茶花鸡、科宝肉鸡肉质性状及营养风味的分析和评价[J]. 黑龙江畜牧兽医, 2023(7):1-6,14.

YAN S X, LI Y Y, HU M, et al. Analysis and evaluation of meat quality traits and nutritional flavor of Chahua chicken and Cobb broiler[J]. Heilongjiang Animal Science and Veterinary Medicine, 2023(7):1-6,14. (in Chinese)

[16]
HERDMANN A, NUERNBERG K, MARTIN J, et al. Effect of dietary fatty acids on expression of lipogenic enzymes and fatty acid profile in tissues of bulls[J]. Animal, 2010, 4(5):755-762.

DOI PMID

[17]
邹优敬, 黄凌军, 夏中生, 等. α-亚麻酸对良凤花鸡生产性能、养分利用率及肉品质的影响[J]. 广西农业生物科学, 2007(S1):54-57.

ZOU Y J, HUANG L J, XIA Z S, et al. Effects of α-linolenic acid on growth performance,dietary nutrient utilization and meat quality of Liangfeng chickens[J]. Journal of Guangxi Agricultural and Biological Science, 2007(S1):54-57. (in Chinese)

[18]
姚池蓓. 不同比例的α-亚麻酸/亚油酸对生长后期草鱼生产性能和肉质的影响及其作用机制[D].硕士学位论文. 雅安: 四川农业大学, 2023.

YAO C B. Effects of different dietary α-linolenic acid/linoleic acid ratios on growth performance and flesh quality of adult grass carp (Ctenopharyngodon idella) and involved mechanism[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2023. (in Chinese)

[19]
SUD M, FAHY E, COTTER D, et al. LMSD:LIPID MAPS structure database[J]. Nucleic Acids Research, 2007, 35(S1):D527-D532.

DOI

[20]
HULBERT A J, KELLY M A, ABBOTT S K. Polyunsaturated fats,membrane lipids and animal longevity[J]. Journal of Comparative Physiology B, 2014, 184(2):149-166.

DOI

[21]
聂存喜, 张文举, 闫理东, 等. 基于棉籽粕源发酵饲料的鸡血浆代谢组学研究[J]. 畜牧兽医学报, 2013, 44(5):737-744.

NIE C X, ZHANG W J, YAN L D, et al. A metabolomics study on chicken plasma based on fermented feed from cottonseed meal mixed substrate[J]. Acta Veterinaria et Zootechnica Sinica, 2013, 44(5):737-744. (in Chinese)

DOI

[22]
THOMAS M S, DIBELLA M, BLESSO C N, et al. Comparison between egg intake versus choline supplementation on gut microbiota and plasma carotenoids in subjects with metabolic syndrome[J]. Nutrients, 2022, 14(6):1179.

DOI

[23]
王爽, 夏伟光, 陈伟, 等. 饲粮中椰子粕和复合酶添加水平对蛋鸭抗氧化及脂类代谢指标的影响[J]. 动物营养学报, 2023, 35(3):1610-1621.

DOI

WANG S, XIA W G, CHEN W, et al. Effects of dietary copra meal and compound enzyme supplemental levels on antioxidant and lipid metabolism indexes of laying ducks[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1610-1621. (in Chinese)

DOI

[24]
SABBAH D A, HAJJO R, SWEIDAN K. Review on epidermal growth factor receptor (EGFR) structure,signaling pathways,interactions,and recent updates of EGFR inhibitors[J]. Current Topics in Medicinal Chemistry, 2020, 20(10):815-834.

DOI

[25]
王梦璇. 4-萜品醇对免疫应激仔猪肠上皮细胞稳态的调节作用[D].硕士学位论文. 扬州: 扬州大学, 2023.

WANG M X. Regulation effects of terpine-4-ol on intestinal epithelial cell homeostasis in piglets under immune stress[D].Master’s Thesis. Yangzhou: Yangzhou University, 2023. (in Chinese)

[26]
吴江敏. 茶树精油的提取、抗氧化性、抑菌性及其脂质体的研究[D].硕士学位论文. 合肥: 安徽大学, 2020.

WU J M. Studies on the extraction,antioxidant,bacteriostasis and liposomes properties of tea tree oil[D].Master’s Thesis. Hefei: Anhui University, 2020. (in Chinese)

[27]
LIANG D D, CHEN H J, ZHAO L P, et al. Inhibition of EGFR attenuates fibrosis and stellate cell activation in diet-induced model of nonalcoholic fatty liver disease[J]. Biochimica et Biophysica Acta:Molecular Basis of Disease, 2018, 1864(1):133-142.

DOI

[28]
CHOUNG S, KIM J M, JOUNG K H, et al. Epidermal growth factor receptor inhibition attenuates non-alcoholic fatty liver disease in diet-induced obese mice[J]. PLoS One, 2019, 14(2):e0210828.

DOI

[29]
TRIPATHI M, YEN P M, SINGH B K. Estrogen-related receptor alpha:an under-appreciated potential target for the treatment of metabolic diseases[J]. International Journal of Molecular Sciences, 2020, 21(5):1645.

DOI

[30]
FATIMA L A, CAMPELLO R S, DE SOUZA SANTOS R, et al. Estrogen receptor 1 (ESR1) regulates VEGFA in adipose tissue[J]. Scientific Reports, 2017, 7(1):16716.

DOI

[31]
孙辰阳. 基于铁死亡与昼夜节律钟基因的机器学习算法构建胶质瘤预后模型[D].硕士学位论文. 长春: 吉林大学, 2025.

SUN C Y. Construction of a glioma prognosis model based on ferroptosis and circadian clock genes using machine learning algorithms[D].Master’s Thesis. Changchun: Jilin University, 2025. (in Chinese)

[32]
侯中一, 王宝维, 张名爱, 等. 基于蛋白质组学解析鹅肥肝形成的脂质代谢调控机制[J]. 畜牧兽医学报, 2025, 56(5):2182-2193.

DOI

HOU Z Y, WANG B W, ZHANG M A, et al. The regulation mechanism of lipid metabolism in foie gras formation based on proteomics analysis[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(5):2182-2193. (in Chinese)

DOI

[33]
CHEN L J, LI W, FU Y L, et al. Shugan Jiangzhi decoction alleviates nonalcoholic fatty liver disease (NAFLD) by regulating the AMPK/PPAR signaling pathway[J]. Letters in Drug Design & Discovery, 2024, 21(13):2740-2750.

[34]
赵亮, 孙丽芳, 郑秀丽, 等. 表皮生长因子受体在体外受精-胚胎移植胎盘及胚胎组织中表达及意义[J]. 中国组织化学与细胞化学杂志, 2018, 27(5):434-439.

ZHAO L, SUN L F, ZHENG X L, et al. Expression and significance of epidermal growth factor receptor in placenta and embryonic tissues from in vitro fertilization-embryo transfer cases[J]. Chinese Journal of Histochemistry and Cytochemistry, 2018, 27(5):434-439. (in Chinese)

[35]
KOLETZKO B, DECSI T, DEMMELMAIR H. Arachidonic acid supply and metabolism in human infants born at full term[J]. Lipids, 1996, 31(1):79-83.

PMID

[36]
LUO P, WANG L N, LUO L, et al. Ca2+-calcineurin-NFAT pathway mediates the effect of thymol on oxidative metabolism and fiber-type switch in skeletal muscle[J]. Food & Function, 2019, 10(8):5166-5173.

[37]
LIU J Q, WANG L Y, CHEN W T, et al. CRTC3 regulates the lipid metabolism and adipogenic differentiation of porcine intramuscular and subcutaneous adipocytes by activating the calcium pathway[J]. Journal of Agricultural and Food Chemistry, 2021, 69(25):7243-7255.

DOI PMID

[38]
HAN J X, HOU J Y, LIU Y, et al. Using network pharmacology to explore the mechanism of Panax notoginseng in the treatment of myocardial fibrosis[J]. Journal of Diabetes Research, 2022, 2022(1):8895950.

文章导航

/