研究论文

不同产犊季节奶牛初乳微生物群落特征及功能乳酸菌筛选

  • 王孚惠 , 1, 2 ,
  • 刘志鑫 3, * ,
  • 高云龙 1, 2 ,
  • 张涛 1, 2 ,
  • 刘金鑫 , 1, 2, **
展开
  • 1 南京农业大学消化道微生物研究室, 南京 210095
  • 2 南京农业大学反刍动物营养与清洁化生产创新中心, 南京 210095
  • 3 江苏省泰州市兴化市畜牧兽医站, 泰州 225700
** 刘金鑫,教授,博士生导师,E-mail:

*同等贡献作者

王孚惠(2001—),男,河北唐山人,硕士研究生,从事消化道微生物研究。E-mail:

Office editor: 靳 爽

收稿日期: 2025-11-09

  网络出版日期: 2026-06-13

基金资助

国家自然科学基金项目(32372904)

Characteristics of Colostrum Microbial Community of Dairy Cows Calving in Different Seasons and Screening of Functional Lactic Acid Bacteria

  • WANG Fuhui , 1, 2 ,
  • LIU Zhixin 3 ,
  • GAO Yunlong 1, 2 ,
  • ZHANG Tao 1, 2 ,
  • LIU Jinxin , 1, 2, **
Expand
  • 1 Laboratory of Gastrointestinal Microbiology, Nanjing Agricultural University, Nanjing 210095, China
  • 2 Innovation Center for Ruminant Nutrition and Clean Production, Nanjing Agricultural University, Nanjing 210095, China
  • 3 Xinghua Animal Husbandry and Veterinary Station, Taizhou City, Taizhou 225700, China
** professor, E-mail:

*Contributed equally

Received date: 2025-11-09

  Online published: 2026-06-13

摘要

为探究产犊季节对奶牛初乳微生物群落多样性及组成的影响,并挖掘其中具有潜在应用价值的功能乳酸菌,本研究以38头健康荷斯坦奶牛为试验对象,依据产犊时期分为春末产犊组(LS组,4—6月份产犊)和夏后产犊组(PS组,9—11月份产犊),每组19头,于奶牛分娩后6 h内采集初乳样品。乳成分检测结果表明,2组间初乳乳脂、乳蛋白、乳糖、总固形物含量及体细胞数均无显著差异(P>0.05),而LS组乳尿素氮含量显著高于PS组(P<0.05)。16S rRNA测序结果表明,奶牛初乳中的优势菌门主要为变形菌门(Proteobacteria)、厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidota);其中LS组上述3种菌门的相对丰度依次为81.79%、13.70%和3.48%,PS组为74.15%、4.77%和18.75%。α多样性分析显示2组初乳微生物群落丰富度与多样性无显著差异(P>0.05),但主坐标分析(PCoA)表明2组群落结构存在显著分化(P<0.05)。线性判别分析效应大小(LEfSe)分析进一步鉴定出26个差异菌科,其中肠杆菌科(Enterobacteriaceae)、莫拉菌科(Moraxellaceae)、气单胞菌科(Aeromonadaceae)、乳杆菌科(Lactobacillaceae)等11个菌科在LS组显著富集(P<0.05),假单胞菌科(Pseudomonadaceae)、噬几丁质菌科(Chitinophagaceae)、黄色杆菌科(Xanthobacteraceae)等15个菌科在PS组显著富集(P<0.05)。通过分离鉴定,从初乳中共获得24株乳酸菌;筛选发现,清酒广泛乳杆菌(Latilactobacillus sakei)L17、乳酸乳球菌(Lactococcus lactis)L20和台湾乳球菌(Lactococcus formosensis)L21表现出优良的抗逆性及抑菌活性,且无溶血活性、对多数抗生素敏感,具备良好的益生菌开发潜质。综上所述,产犊季节主要影响奶牛初乳尿素氮含量及微生物群落结构,春末产犊奶牛初乳的功能乳酸菌挖掘潜力更高。本研究筛选出的3株乳酸菌可为犊牛健康促进及益生菌资源开发提供菌株支撑。

本文引用格式

王孚惠 , 刘志鑫 , 高云龙 , 张涛 , 刘金鑫 . 不同产犊季节奶牛初乳微生物群落特征及功能乳酸菌筛选[J]. 动物营养学报, 2026 , 38(6) : 4716 -4727 . DOI: 10.12418/CJAN2026.377

Abstract

This study aimed to investigate the effects of calving season on diversity and composition of the colostrum microbial community of dairy cows, and to screen functional lactic acid bacteria with potential application value. A total of 38 healthy Holstein cows were divided into two groups according to calving season: late spring calving group (LS group, calving from April to June) and post-summer calving group (PS group, calving from September to November), with 19 cows in each group. Colostrum samples were collected within 6 h after calving. Milk composition analysis showed that there were no significant differences in the contents of fat, protein, lactose, total solids, and somatic cell count between the two groups (P>0.05). However, the milk urea nitrogen content in the LS group was significantly higher than that in the PS group (P<0.05). The results of 16S rRNA sequencing indicated that the dominant phyla in dairy cow colostrum were Proteobacteria, Firmicutes and Bacteroidota; their relative abundances in the LS group were 81.79%, 13.70% and 3.48%, respectively, and in the PS group were 74.15%, 4.77% and 18.75%, respectively. Alpha diversity analysis showed no significant differences in the richness and diversity of the colostrum microbial community between the two groups (P>0.05), but principal coordinate analysis (PCoA) revealed a significant differentiation in community structure between the two groups (P<0.05). Linear discriminant analysis effect size (LEfSe) analysis further identified 26 differential bacterial families. Among them, 11 families, including Enterobacteriaceae, Moraxellaceae, Aeromonadaceae and Lactobacillaceae, were significantly enriched in the LS group (P<0.05), while 15 families, including Pseudomonadaceae, Chitinophagaceae and Xanthobacteraceae, were significantly enriched in the PS group (P<0.05). A total of 24 lactic acid bacteria were isolated and identified from the colostrum. Further screening showed that Latilactobacillus sakei L17, Lactococcus lactis L20 and Lactococcus formosensis L21 exhibited excellent stress resistance and antibacterial activity, with no hemolytic activity and sensitivity to most antibiotics, indicating good potential for probiotic development. In conclusion, calving season mainly affects the milk urea nitrogen content and microbial community structure of dairy cow colostrum, and colostrum from cows calving in late spring has a higher potential for functional lactic acid bacteria mining. The three lactic acid bacteria strains screened in this study can provide strain support for calf health promotion and probiotic resource development.

初乳是母牛分娩后分泌的首批乳汁,富含蛋白质、脂肪、乳糖、免疫球蛋白及多种生物活性物质[1],是犊牛出生后获取营养和免疫保护的关键来源[2]。近年来的研究表明,初乳不仅承担营养和免疫功能,还携带复杂而多样的微生物群落[3-4]。这些微生物能够在犊牛消化道早期定植过程中发挥重要作用,不仅参与营养物质的利用和吸收,还可帮助抵御病原菌入侵,并促进免疫系统的成熟,从而对犊牛早期健康和生长发育产生深远影响[5-6]
已有研究报道,奶牛初乳中的主要优势菌群包括变形菌门(Proteobacteria)、厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidota)[7-8],其中部分乳酸菌能够通过产酸和分泌抑菌物质改善肠道环境,并在维持犊牛肠道菌群稳态方面发挥积极作用[9]。然而,奶牛的分娩时间存在明显的季节性规律,随季节变化而波动的环境条件与饲养管理方式,可能影响乳腺微生物生态,进而导致初乳微生物群落结构发生分化[10-11]。目前,关于不同产犊季节对初乳微生物群落多样性及组成的影响仍缺乏系统研究,针对初乳中功能性乳酸菌资源的挖掘与开发利用也相对不足。因此,本研究以不同时期产犊的荷斯坦奶牛为研究对象,系统比较初乳成分与微生物群落的差异,并从中分离和筛选潜在功能益生菌,旨在揭示产犊季节对初乳微生物群落结构的影响,明确其中潜在的益生菌资源价值,为犊牛早期健康管理及乳源功能菌的开发提供科学依据。

1 材料与方法

1.1 试验动物与分组

本试验方案符合南京农业大学实验动物福利与伦理审查要求并已进行审批,审批编号为NJAU.No20230315N11。选取38头健康、体况相近的2~3胎荷斯坦奶牛,因奶牛妊娠周期固定、围产期饲养管理安排及季节性环境条件差异,其产犊时间呈现典型季节性分布。依据产犊时期将试验奶牛分为2组,即春末产犊组(LS组,4—6月份产犊,n=19)和夏后产犊组(PS组,9—11月份产犊,n=19)。

1.2 样品采集与初乳成分测定

在奶牛分娩后6 h内采集初乳,采集前对乳头及乳区皮肤进行消毒,弃去最初3把乳汁以避免污染。每头奶牛采集3份初乳样品:一份取25 mL置于无菌冻存管,-80 ℃保存,用于微生物群落分析;一份按1∶1体积比加入50%甘油,置于50 mL冻存管,-80 ℃保存,用于后续菌株分离培养;最后一份分装于含重铬酸钾防腐剂的50 mL离心管,4 ℃保存,用于乳成分测定[12]

1.3 初乳微生物群落分析

采用E.Z.N.A.® Food DNA Kit(Omega Bio-Tek,美国),按照试剂盒说明书操作提取初乳样品中的微生物基因组DNA。通过1%琼脂糖凝胶电泳检测DNA完整性,利用NanoDrop 2000分光光度计(Thermo Fisher Scientific,美国)测定DNA的纯度与浓度。以提取的基因组DNA为模板,利用引物341F(5'-CCTAYGGGRBGCASCAG-3')和806R(5'-GTGGACTACHVGGGTWTCTAAT-3')对16S rRNA基因的V3~V4可变区进行PCR扩增。PCR扩增产物经胶回收纯化后在Illumina MiSeq PE250平台[13]进行双端测序。原始测序数据经fastp(v0.23.4)[14]进行质量控制,去除接头序列和低质量reads;过滤后的有效序列通过DADA2(v1.22)[15]进行去噪、拼接及嵌合体去除,获得扩增子序列变异(amplicon sequence variants,ASV)。基于SILVA 138数据库[16](https://www.arb-silva.de/archive)对ASV进行物种分类注释,确定各初乳样品的微生物物种组成及相对丰度。

1.4 乳酸菌的分离与鉴定

1.4.1 分离与纯化

取初乳样品及其10-1、10-2倍稀释液涂布于MRS培养基(青岛海博生物技术有限公司),挑选呈溶钙环的单菌落,采用平板划线法进行多轮纯化培养,直至菌落形态均一。纯化后的菌株经革兰氏染色镜检,筛选革兰氏阳性菌株,并通过3%过氧化氢法测定过氧化氢酶活性,合格菌株作为后续分子鉴定与功能性评价的试验材料。

1.4.2 分子鉴定

将菌株接种于MRS肉汤培养基富集培养后,提取菌株基因组DNA;采用细菌通用引物27F/1492R扩增16S rRNA基因,并进行Sanger测序。所得序列在NCBI的Nucleotide collection(nr/nt)数据库[17]进行BLAST比对,以获得参考物种信息。

1.5 菌株功能性评价

1.5.1 生长曲线

将活化菌株以1%接种量接入无菌MRS肉汤培养基,于37 ℃厌氧培养,分别在不同时间点(0、4、8、12、16、20、24、30、48 h)取样,测定菌液在600 nm波长下的吸光度(OD600 nm)值,每个菌株设置3个重复,并绘制菌株生长曲线。

1.5.2 耐酸与耐胆盐性能

为评价菌株对酸性环境和胆盐的耐受能力,将MRS肉汤的pH分别调节至2.0、3.0、4.0,以中性pH的MRS肉汤为空白对照,将菌株接入不同pH培养基,37 ℃厌氧培养24 h后测定OD600 nm值。同时,在MRS肉汤中分别添加0.1%、0.3%、0.5%的牛胆盐,以未添加牛胆盐的MRS肉汤为空白对照,将菌株接入不同牛胆盐浓度培养基,37 ℃厌氧培养24 h后测定OD600 nm值。菌株相对生长率计算公式为:
相对生长率(%)=100×试验组OD600 nm值/对照组OD600 nm值。

1.5.3 抑菌活性

以大肠杆菌(ATCC 25922)、金黄色葡萄球菌(ATCC 29213)和沙门氏菌(S1株)为指示菌,采用打孔法[18]检测菌株抑菌活性。培养结束后观察抑菌圈形成情况,使用游标卡尺检测抑菌圈直径,每个菌株设置3个重复。

1.6 菌株表型特征与系统发育分析

将菌株在MRS肉汤和固体培养基中连续传代3次后,观察菌落大小、形状及颜色等表型特征。BLAST比对结果在MEGA-X软件(v10.2.6)[19]中进行多序列比对,并基于比对结果采用邻接法(neighbor-joining,NJ)构建系统发育树,同时通过自举检验(Bootstrap,1 000次)评估分支支持度。

1.7 菌株安全性评价

为评估菌株安全性,对筛选菌株进行溶血活性及抗生素敏感性检测。将菌株在哥伦比亚血琼脂平板(青岛海博生物技术有限公司)上培养24 h后,观察菌落周围是否出现溶血圈,并记录溶血圈大小。采用纸片扩散法检测菌株对14种抗生素(包括青霉素、氨苄西林、红霉素、链霉素等)的敏感性,参照美国临床与实验室标准化研究所(Clinical and Laboratory Standards Institute)发布的CLSI M100(2023)[20]标准进行抗生素敏感性判定。

1.8 数据统计分析

本试验所有数据的统计分析与图形绘制均使用R软件(v4.5.1)[21]完成。其中,微生物群落α多样性指数(Shannon指数)通过QIIME2(v2020.11)[22]计算,并采用Wilcoxon秩和检验进行组间差异分析;β多样性基于Bray-Curtis距离进行主坐标分析(principal coordinate analysis,PCoA),并结合置换多元方差分析(Adonis)进行群落差异检验;组间差异菌群鉴定采用线性判别分析效应大小(linear discriminant analysis effect size,LEfSe)分析[23],筛选标准为线性判别分析(LDA)得分>3.0且P<0.05。初乳成分组间差异采用Wilcoxon秩和检验进行分析。菌株耐酸与耐胆盐性能通过热图可视化展示;菌株抑菌活性以抑菌圈直径表示,并采用单因素方差分析(one-way ANOVA)进行组间差异检验。连续型数据结果以平均值±标准差(mean±SD)表示,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 产犊季节对初乳成分的影响

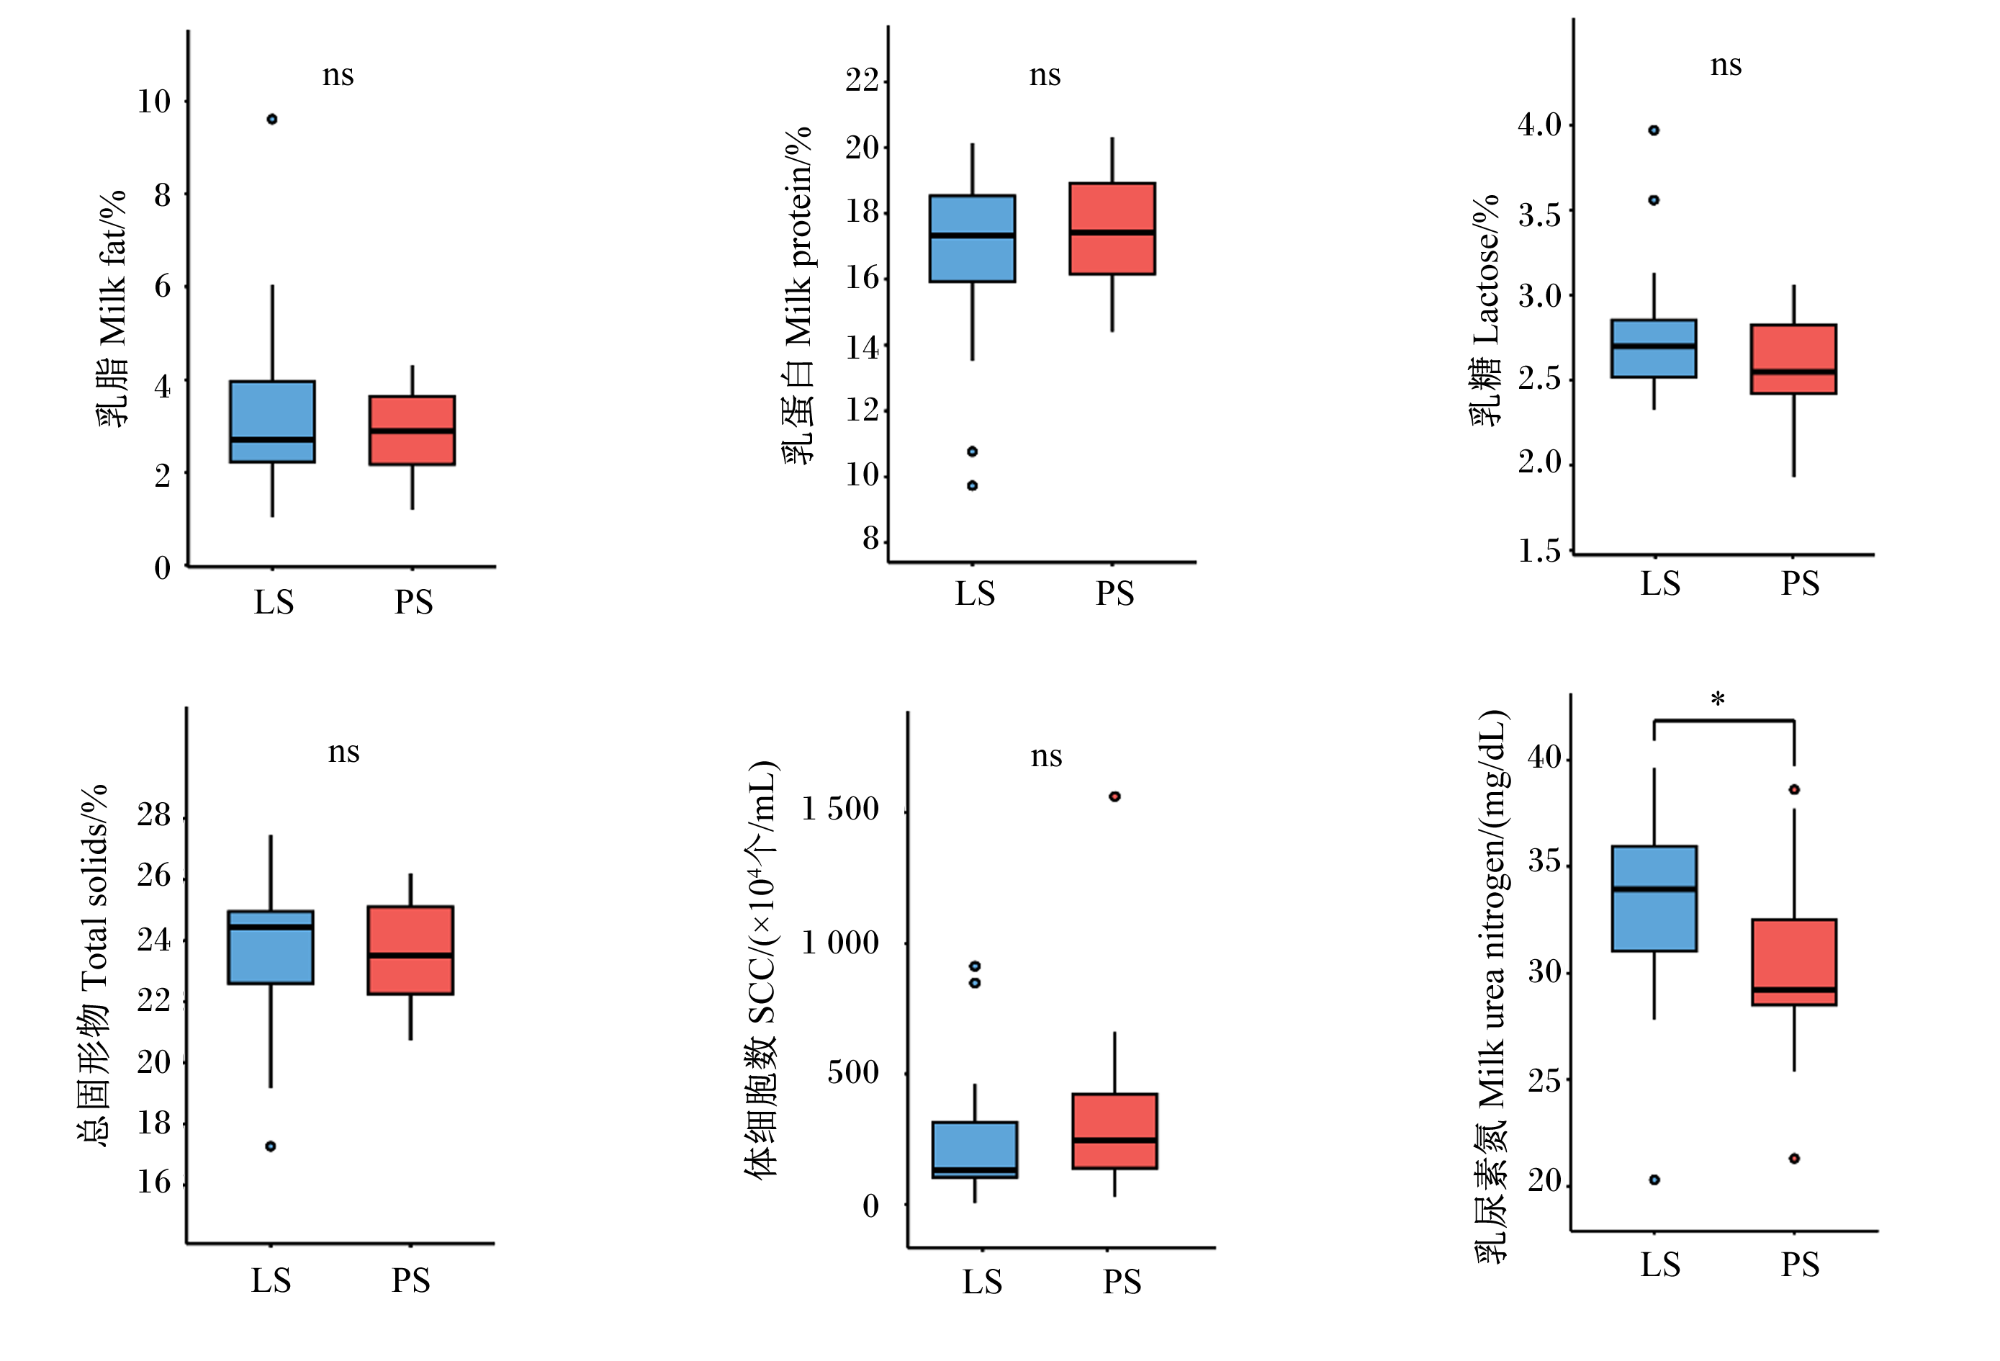
产犊季节对奶牛初乳主要成分的影响如图1所示。2组间初乳乳脂、乳蛋白、乳糖、总固形物含量及体细胞数均无显著差异(P>0.05),表明这些指标在不同产犊季节相对稳定。然而,LS组乳尿素氮含量显著高于PS组(P<0.05),提示产犊季节可能对初乳中氮代谢相关成分产生一定调节作用。
图1 产犊季节对初乳成分的影响

LS:LS组;PS:PS组。*表示差异显著(P<0.05),ns表示差异不显著(P>0.05)。图2图3同。

Fig.1 Effects of calving season on colostrum composition

LS: LS group; PS: PS group. * indicated significant difference (P<0.05), ns indicated no significant difference (P>0.05). The same as Fig.2 and Fig.3.

2.2 产犊季节对初乳微生物区系的影响

2.2.1 初乳微生物群落多样性分析
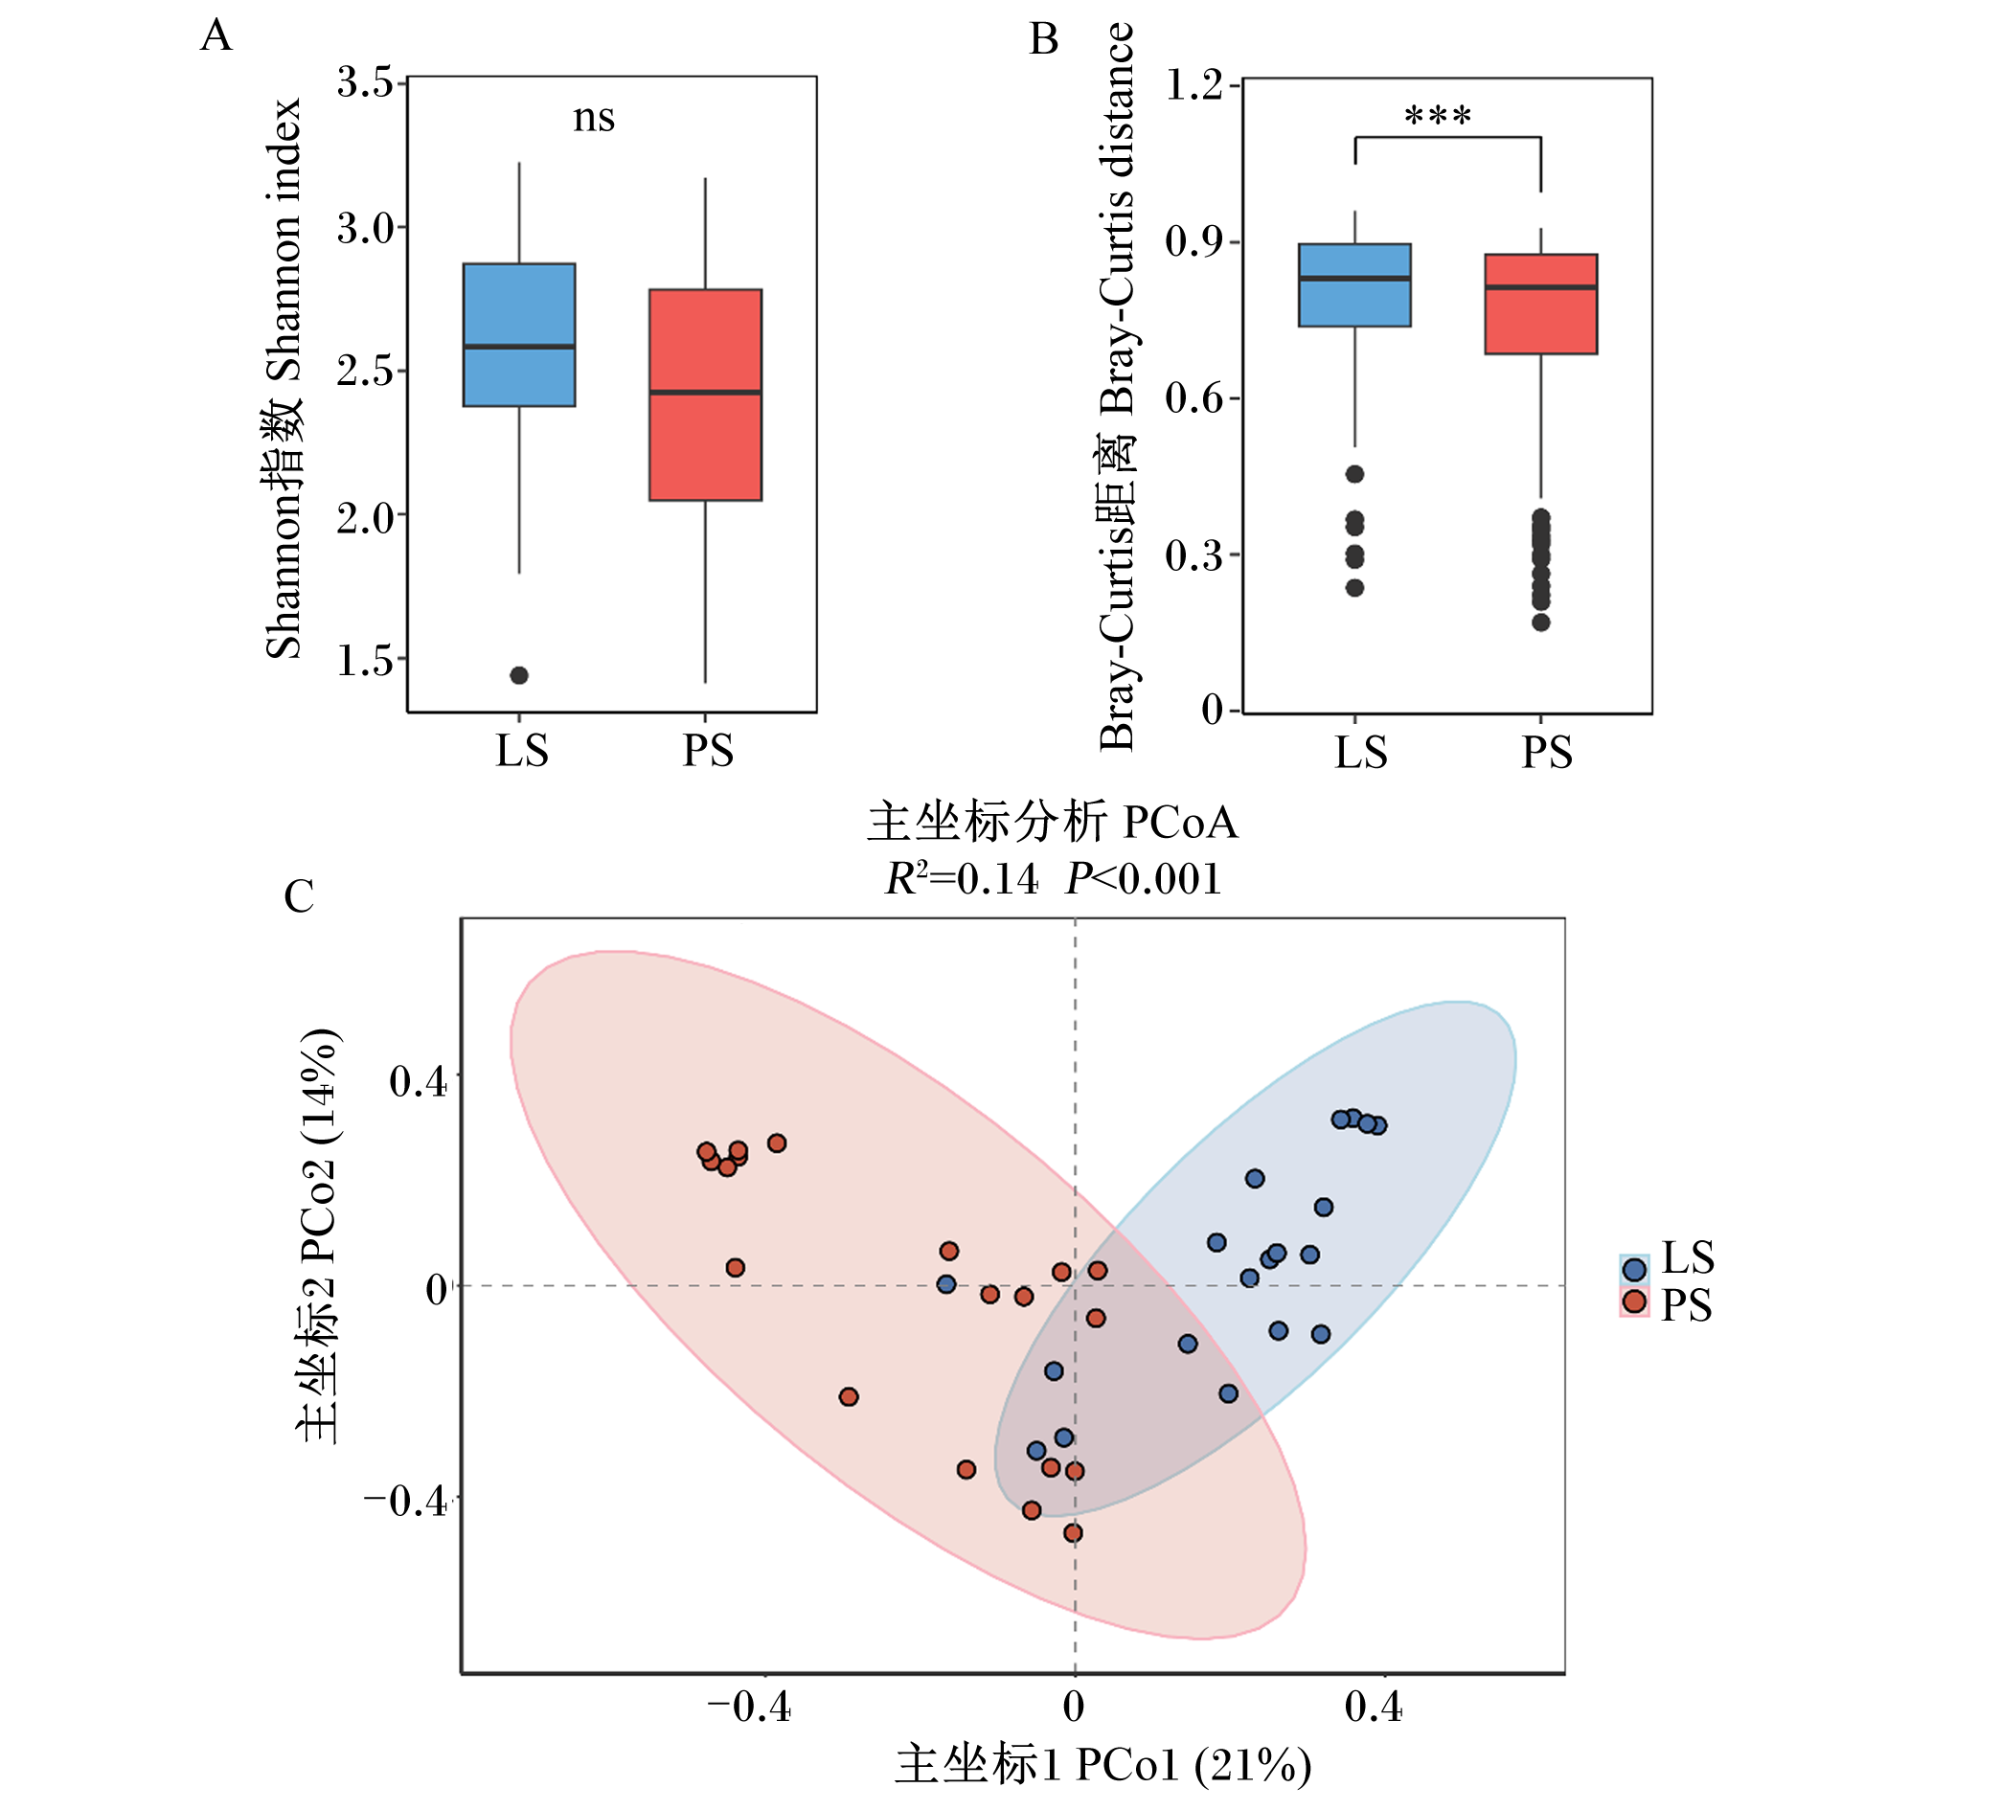
为评估产犊季节对初乳微生物区系的影响,本研究采用16S rRNA测序技术分析了不同产犊季节初乳中微生物群落多样性及组成结构。结果显示,2组样品在物种丰富度和均匀度方面整体相似,Shannon指数无显著差异(P>0.05,图2-A)。Bray-Curtis距离分析结果显示,LS组内微生物群落差异极显著高于PS组(P<0.01,图2-B),表明LS组样本间微生物组成离散程度更高。PCoA结果显示,LS组与PS组初乳微生物组成结构显著分离(R2=0.14,P<0.001,图2-C)。综上所述,产犊季节对初乳微生物的物种丰富度和均匀度无显著影响,但显著影响其微生物群落组成结构。
图2 初乳微生物群落多样性分析

***表示差异极显著(P<0.01)。

Fig.2 Microbial community diversity analysis of colostrum

*** indicated extremely significant difference (P<0.01).

2.2.2 初乳微生物群落组成与差异

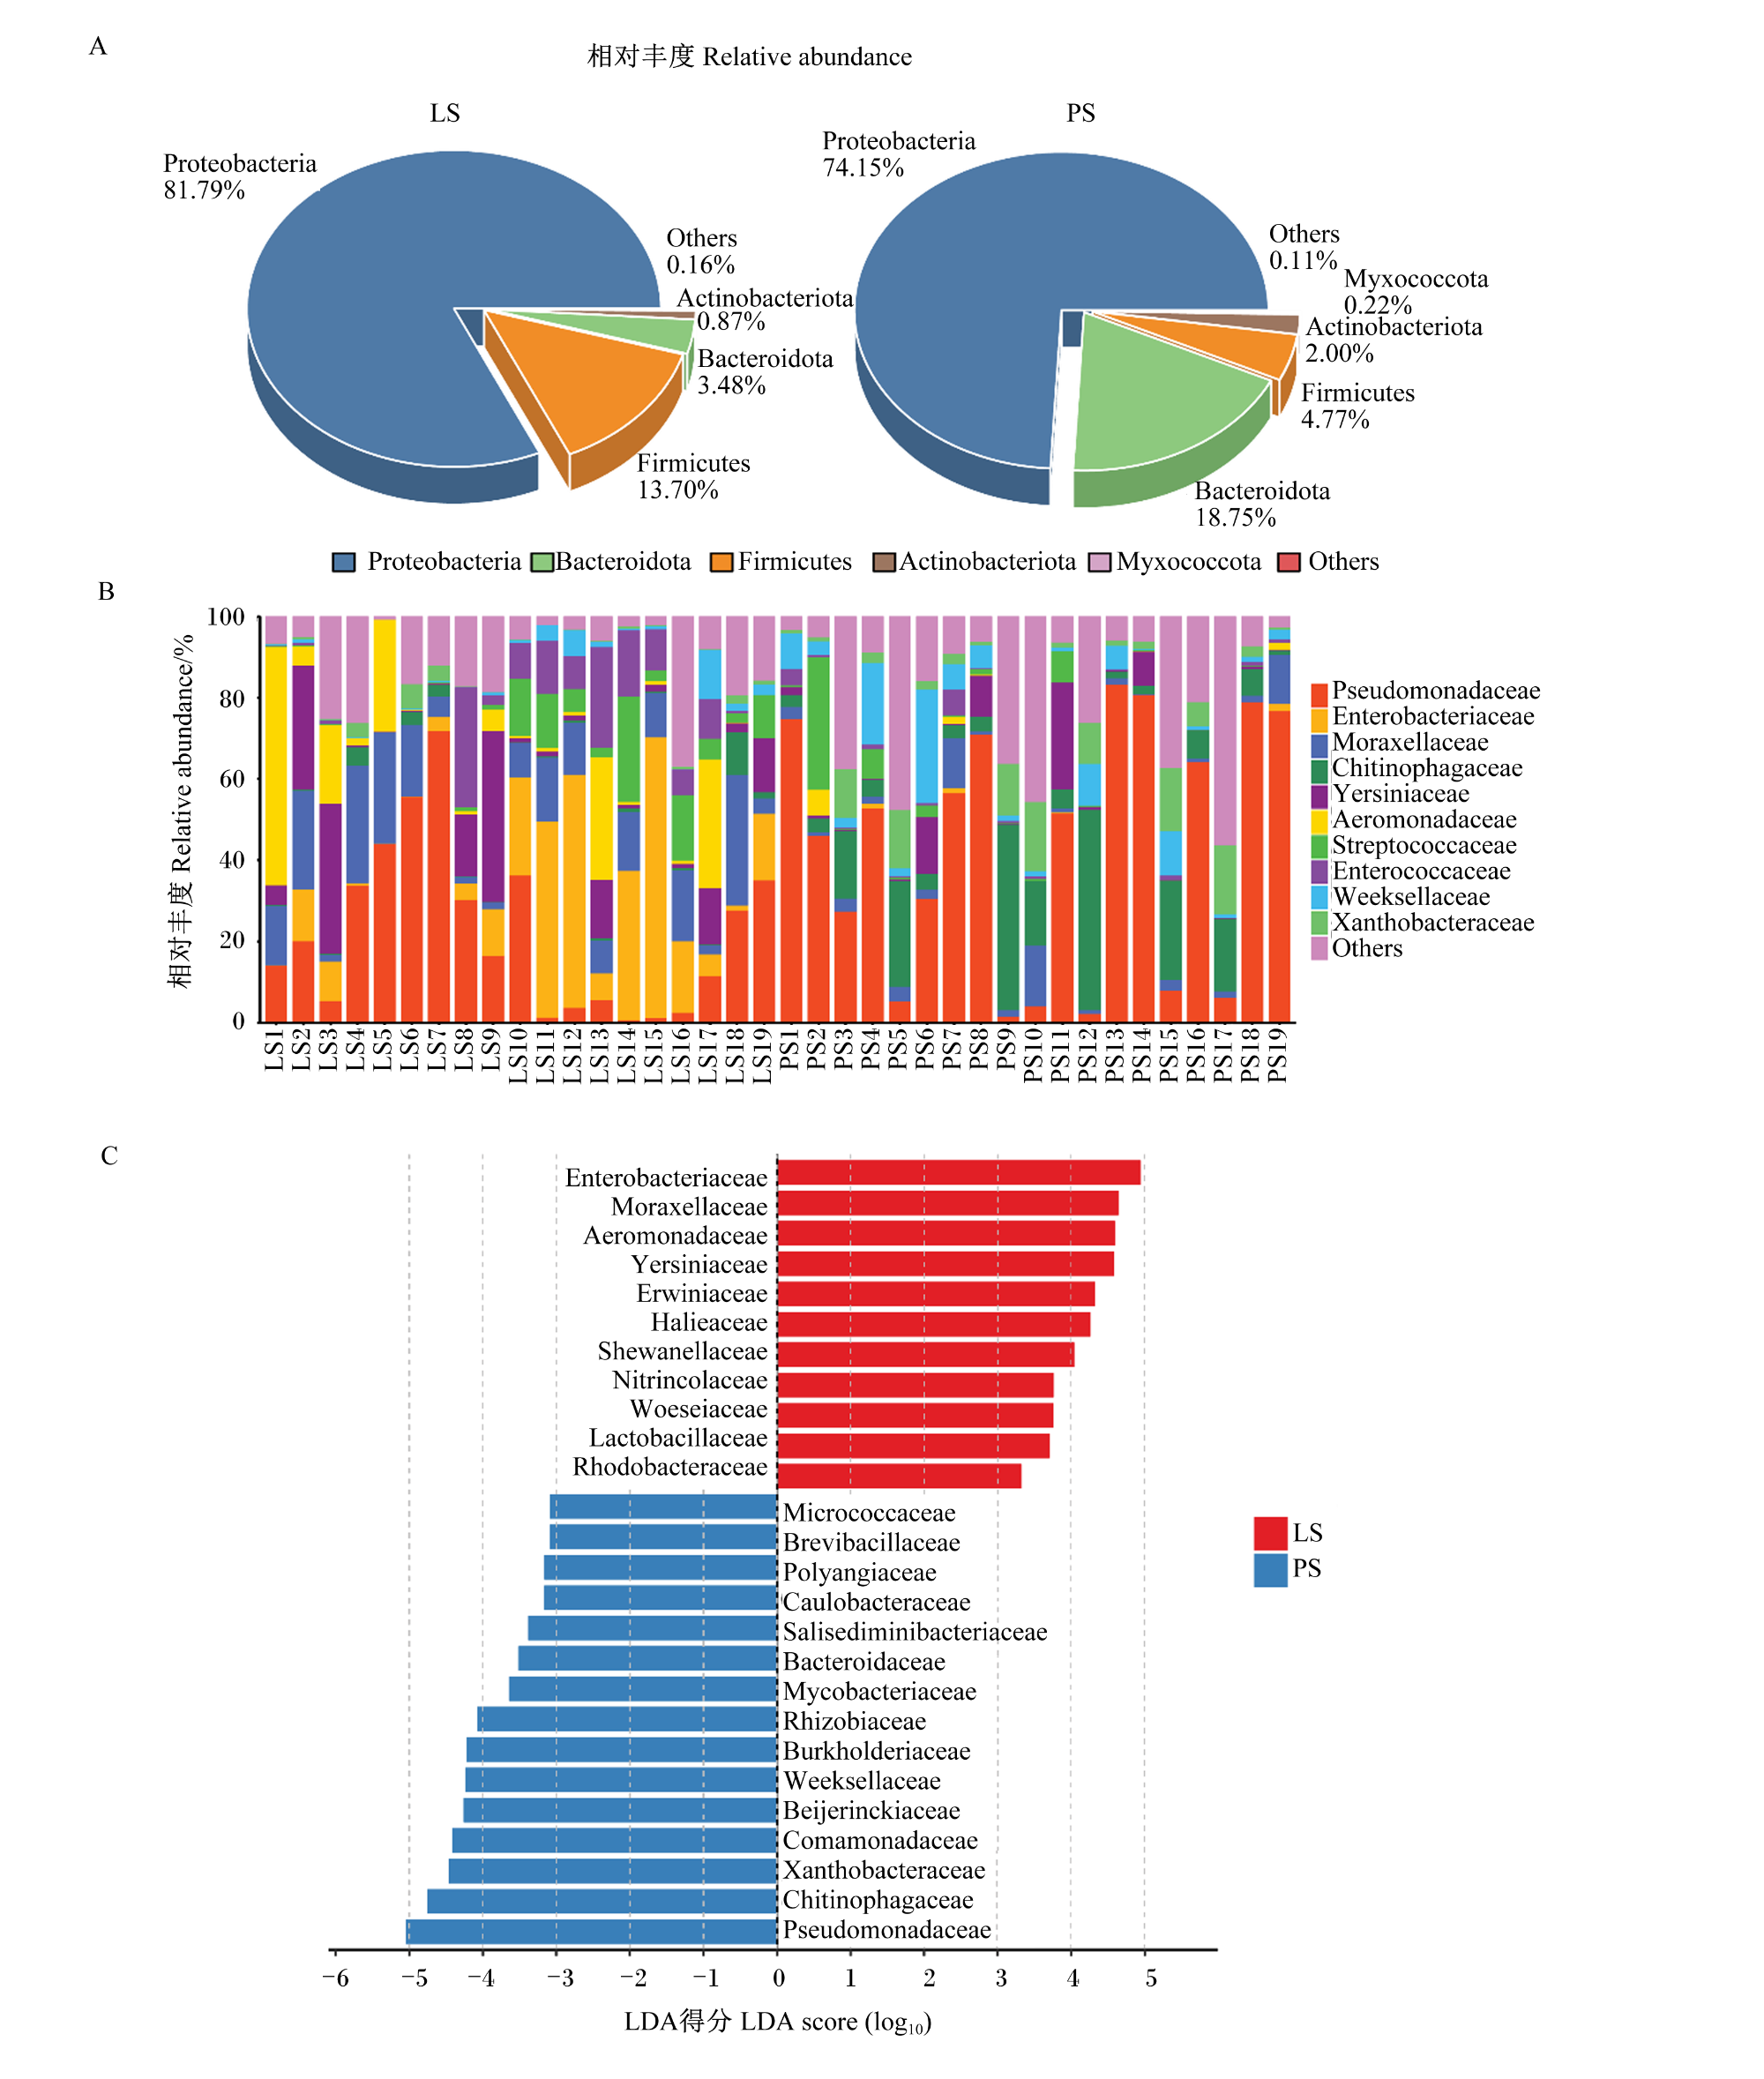
为了揭示不同产犊季节初乳微生物群落的组成差异,本研究进一步在不同分类水平上进行了比较分析。在门水平上,38个初乳样本中共检测到22个菌门,如图3-A所示,优势菌门主要为Proteobacteria(LS组vs PS组:81.79% vs 74.15%)、Firmicutes(LS组vs PS组:13.70% vs 4.77%)和Bacteroidota(LS组vs PS组:3.48% vs 18.75%)。在科水平上,2组样本均以假单胞菌科(Pseudomonadaceae)为最主要的优势菌科,但次级优势菌科存在差异,其中LS组以肠杆菌科(Enterobacteriaceae)为主,PS组则表现出噬几丁质菌科(Chitinophagaceae)的相对富集(图3-B)。为识别具有统计学意义的显著差异类群,采用LEfSe(LDA得分>3.0,P<0.05)进行差异分析,本研究共鉴定出26个差异菌科。如图3-C所示,PS组显著富集Pseudomonadaceae、Chitinophagaceae和黄色杆菌科(Xanthobacteraceae)等15个菌科(P<0.05),LS组显著富集Enterobacteriaceae、莫拉菌科(Moraxellaceae)、气单胞菌科(Aeromonadaceae)和乳杆菌科(Lactobacillaceae)等11个菌科(P<0.05)。
图3 初乳微生物群落组成与差异

A:门水平微生物群落组成 microbial community composition at phylum level;B:科水平微生物群落组成 microbial community composition at family level;C:科水平微生物群落LEfSe分析 LEfSe analysis of microbial communities at family level。

Proteobacteria:变形菌门;Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Actinobacteriota:放线菌门;Myxococcota:黏细菌门;Others:其他;Pseudomonadaceae:假单胞菌科;Enterobacteriaceae:肠杆菌科;Moraxellaceae:莫拉菌科;Chitinophagaceae:噬几丁质菌科;Yersiniaceae:耶尔森菌科;Aeromonadaceae:气单胞菌科;Streptococcaceae:链球菌科;Enterococcaceae:肠球菌科;Weeksellaceae:威克斯氏菌科;Xanthobacteraceae:黄色杆菌科;Erwiniaceae:欧文菌科;Halieaceae:海仙菌科;Shewanellaceae:希瓦氏菌科;Nitrincolaceae:硝养杆菌科;Woeseiaceae:沃斯氏菌科;Lactobacillaceae:乳杆菌科;Rhodobacteraceae:红杆菌科;Micrococcaceae:微球菌科;Brevibacillaceae:短芽孢杆菌科;Polyangiaceae:多囊菌科;Caulobacteraceae:柄杆菌科;Salisediminibacteriaceae:盐沉积杆菌科;Bacteroidaceae:拟杆菌科;Mycobacteriaceae:分枝杆菌科;Rhizobiaceae:根瘤菌科;Burkholderiaceae:伯克氏菌科;Beijerinckiaceae:拜叶林克氏菌科;Comamonadaceae:丛毛单胞菌科。

Fig.3 Microbial community composition and differences of colostrum

2.3 菌株的分离纯化与筛选

结合上述LEfSe分析结果,为进一步挖掘初乳中的益生菌资源,本研究从初乳样品中共分离纯化获得154株候选菌株,这些菌株均表现为溶钙圈阳性、革兰氏染色阳性且触酶试验阴性。经16S rRNA基因序列比对初步鉴定,最终获得24株乳酸菌(菌株编号为L1~L24)。在属水平上,这些乳酸菌归属于肠球菌属(Enterococcus,15株)、乳杆菌属(Lactobacillus,3株)、乳球菌属(Lactococcus,3株)、片球菌属(Pediococcus,2株)和双歧杆菌属(Bifidobacterium,1株),表明初乳中含有丰富的潜在乳酸菌资源,且物种多样性较高。

2.4 乳酸菌功能特性评估

为评估所分离菌株的益生潜力以筛选功能性乳酸菌,本研究对其生长特性、耐受性及体外抑菌能力等进行了系统分析。
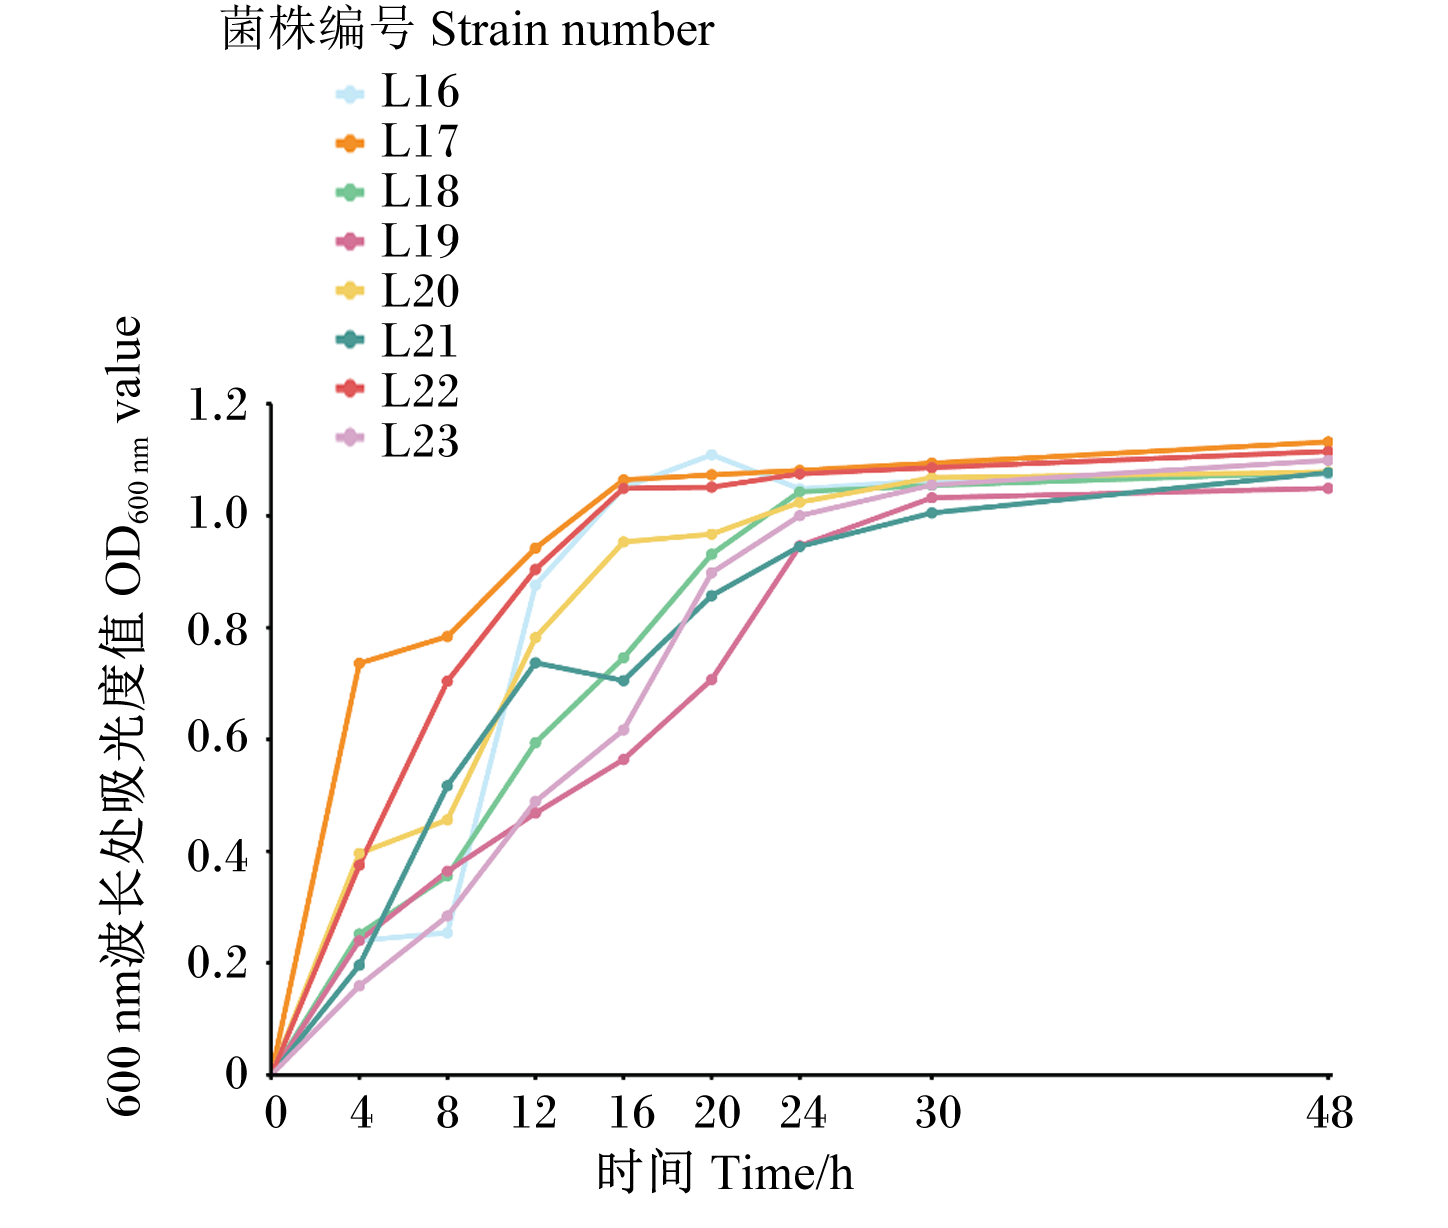
在生长特性方面,24株乳酸菌中有8株(L16、L17、L18、L19、L20、L21、L22、L23)在培养24 h后菌液OD600 nm值超过1.0,表现出较快的生长速率(图4);多数菌株在接种30 h后进入生长稳定期,其中菌株L17在稳定期的OD600 nm值最高,提示其具有较强的增殖能力。
图4 菌株生长曲线

Fig.4 Growth curve of strains

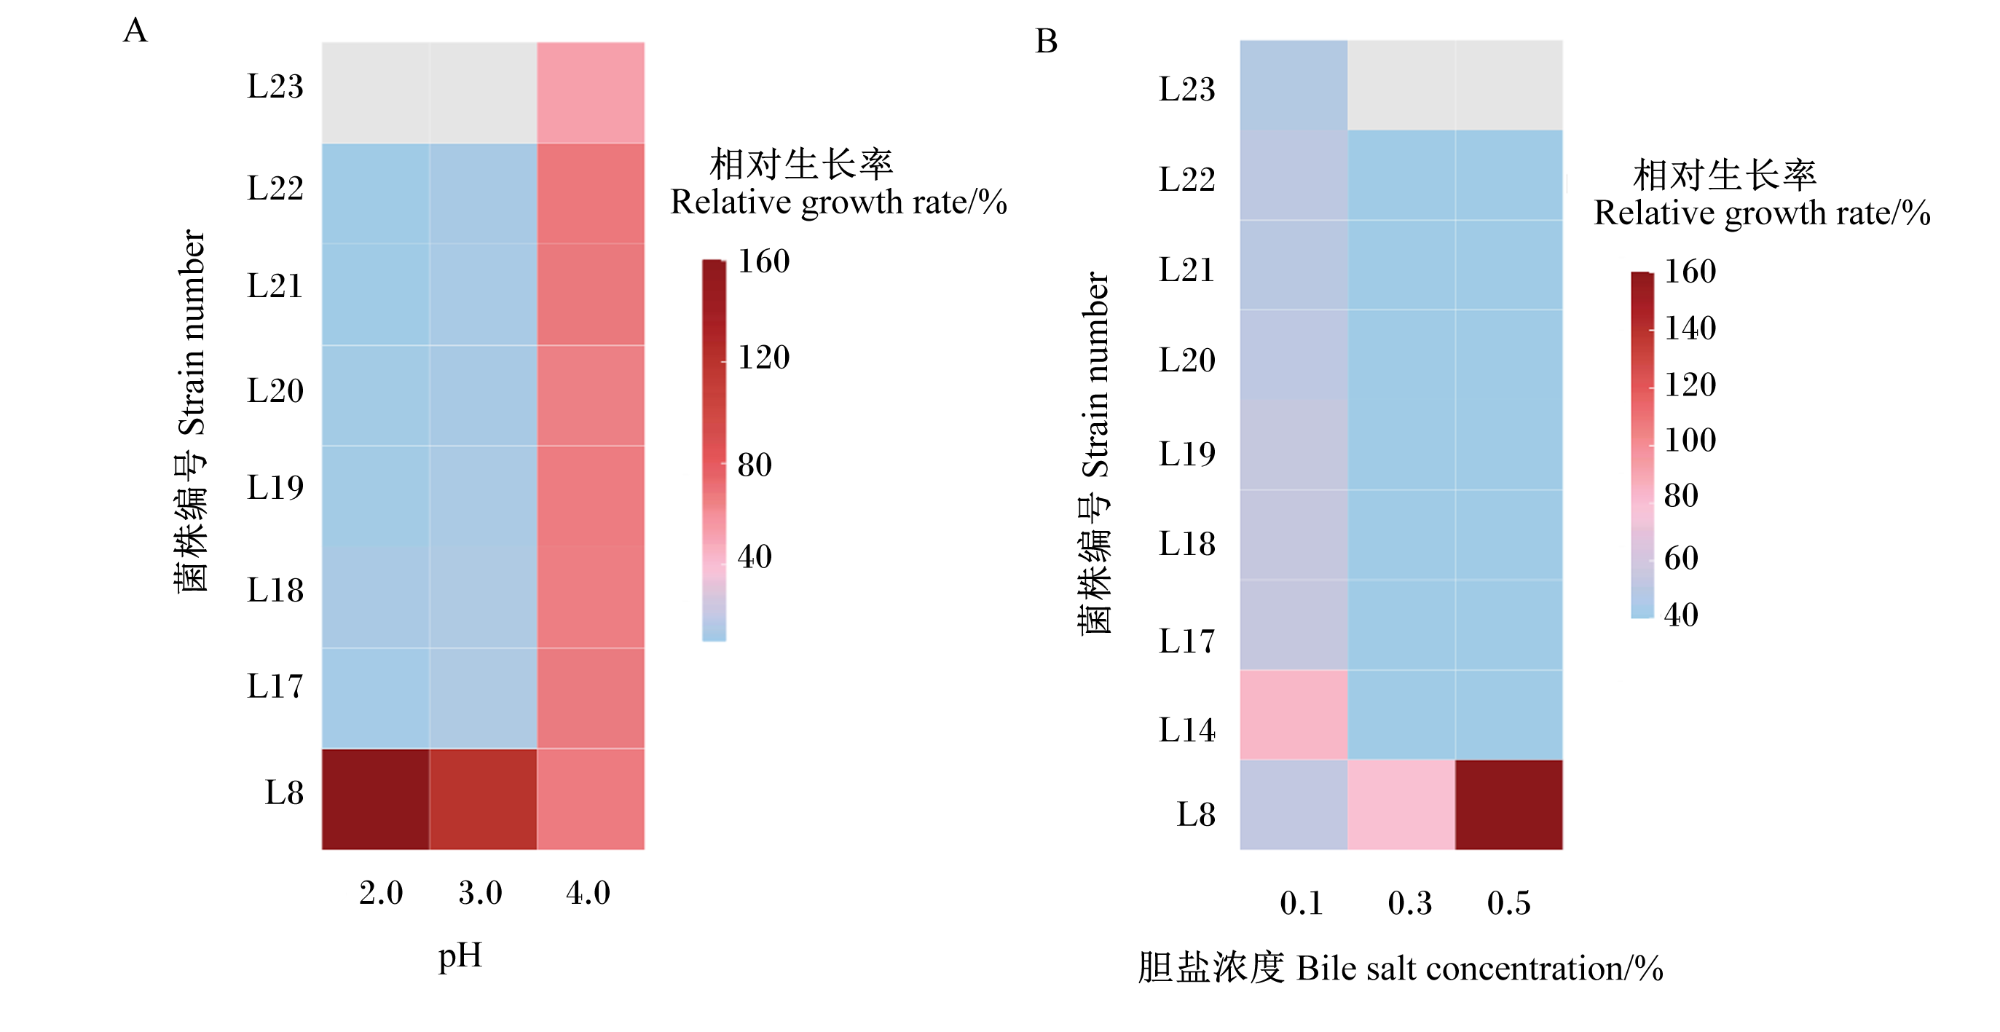
耐酸试验结果(图5-A)表明,当pH为4.0时,24株乳酸菌中有8株(L8、L17、L18、L19、L20、L21、L22、L23)相对生长率超过50%,表现出一定的耐酸性。在pH为2.0或3.0时,L8菌株的相对生长率超过100%,耐酸性能突出;L23菌株的相对生长率低于10%,耐酸能力较弱;其余菌株的相对生长率均高于10%,均具备一定的耐酸性。耐胆盐试验(图5-B)结果表明,当胆盐浓度为0.1%时,24株乳酸菌中有9株(L8、L14、L17、L18、L19、L20、L21、L22、L23)相对生长率接近50%,表现出一定的耐胆盐能力。当胆盐浓度升至0.3%或0.5%时,L8菌株的相对生长率超过100%,耐胆盐性能突出;L23菌株的相对生长率低于10%,耐胆盐能力较弱;其余菌株的相对生长率均高于10%,具备一定的耐胆盐性。
图5 菌株耐酸及耐胆盐能力

A:耐酸能力 acid tolerance;B:耐胆盐能力 bile salt tolerance。

Fig.5 Acid and bile salt tolerance of strains

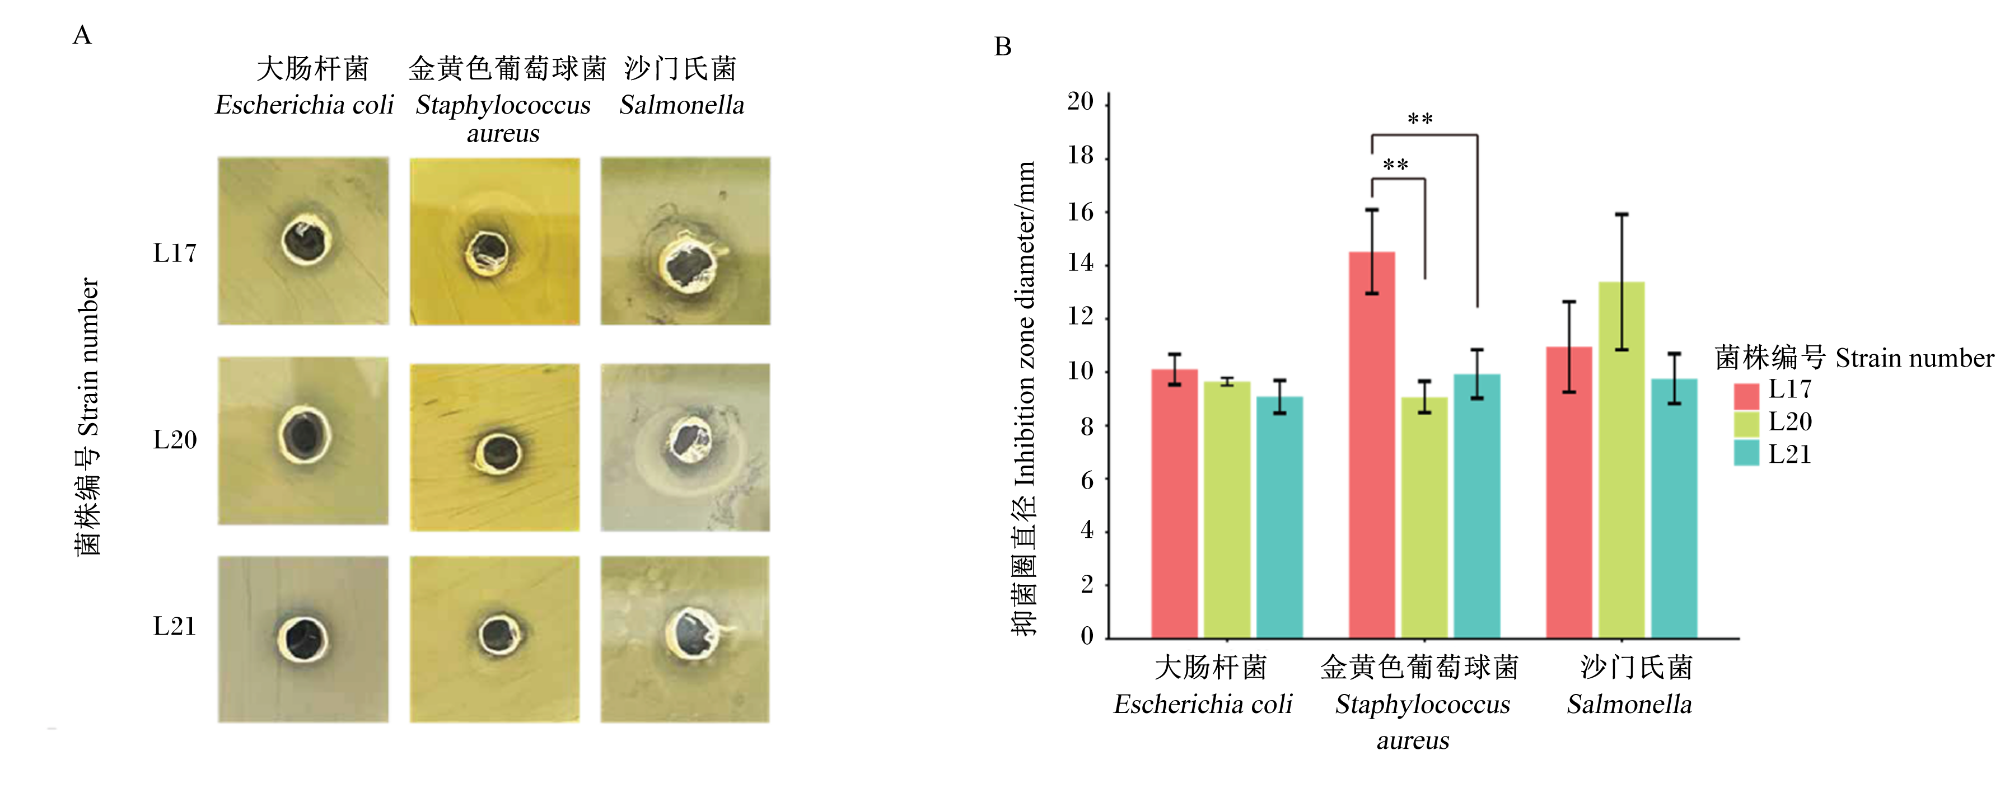
体外抑菌试验结果(图6-A)表明,仅L17、L20和L21菌株对大肠杆菌、金黄色葡萄球菌和沙门氏菌均具有抑制作用。值得注意的是,L17菌株对金黄色葡萄球菌的抑制效果极显著强于L20和L21菌株(P<0.01,图6-B),提示其在抗病原微生物方面具有更强的应用潜力。
图6 菌株抑菌能力

A:抑菌圈形态;B:抑菌圈直径。**表示差异极显著(P<0.01)。

Fig.6 Antibacterial activity of strains

A: inhibition zone morphology; B: inhibition zone diameter. ** indicated extremely significant difference (P<0.01).

2.5 功能乳酸菌表型特征与系统发育分析

综合上述益生特性研究的结果,L17、L20和L21菌株在生长性能、耐受性和抑菌活性方面表现突出,进一步对其进行表型特征观察和系统发育分析。在MRS固体平板上的菌落形态观察显示,3株菌的单菌落均呈光滑、湿润、边缘整齐的乳白色圆形凸起(图7-A)。系统发育分析显示,L17菌株与清酒广泛乳杆菌(Latilactobacillus sakei)的多株参考菌聚类于同一分支,并与Latilactobacillus sakei subsp. sakei DSM 20017的Bootstrap值为77%,提示其在系统发育上与Latilactobacillus sakei亲缘关系较近(图7-B)。L20菌株与乳酸乳球菌(Lactococcus lactis)的参考菌株形成高度支持的聚类分支,其中部分分支的Bootstrap值>96%,显示其聚类于Lactococcus lactis,并与该物种内菌株关系紧密(图7-C)。L21菌株则与台湾乳球菌(Lactococcus formosensis)相关菌株聚类,部分分支Bootstrap值为100%,表明其与Lactococcus formosensis亲缘关系较近(图7-D)。
图7 菌株表型特征与系统发育分析

A:L17、L20和L21菌株的表型特征 phenotypic characterization of L17, L20 and L21 strains;B:L17菌株的系统发育分析 phylogenetic analysis of L17 strain;C:L20菌株系统发育分析 phylogenetic analysis of L20 strain;D:L21菌株的系统发育分析 phylogenetic analysis of L21 strain。

Latilactobacillus sakei:清酒广泛乳杆菌;Lacticaseibacillus brantae:棕雁乳酸乳杆菌;Paucilactobacillus wasatchensis:瓦萨奇贫乳杆菌;Paucilactobacillus oligofermentans:寡发酵贫乳杆菌;Latilactobacillus fuchuensis:府中广泛乳杆菌;Latilactobacillus curvatus:弯曲广泛乳杆菌;Latilactobacillus graminis:禾草广泛乳杆菌;Lactococcus lactis:乳酸乳球菌;Lactococcus cremoris:乳脂乳球菌;Lactococcus hircilactis:山羊乳酸乳球菌;Lactococcus nasutitermitidis:犀白蚁乳球菌;Lactococcus fujiensis:富士乳球菌;Lactococcus plantarum:植物乳球菌;Lactococcus formosensis:台湾乳球菌;Lactococcus garvieae:格氏乳球菌;Lactococcus chungangensis:韩中乳球菌;Lactococcus laudensis:劳登乳球菌。

Fig.7 Phenotypic characterization and phylogenetic analysis of strains

2.6 功能乳酸菌溶血活性及抗生素敏感性分析

基于上述益生特性筛选结果,L17、L20和L21菌株展现出良好的益生潜力,进一步对其开展溶血活性及抗生素敏感性检测,以评估菌株的应用安全性。
溶血活性检测结果显示(图8),3株菌在哥伦比亚血琼脂平板上均形成典型菌落,且菌落周围均未出现透明溶血圈,表明L17、L20和L21菌株均无溶血作用,符合益生菌的基本安全性要求。抗生素敏感性结果(表1)显示,3株菌均对青霉素、氨苄西林和氯霉素敏感,L17和L20菌株对利福平敏感,L20和L21菌株对万古霉素敏感,L21菌株则对红霉素、链霉素、庆大霉素和四环素敏感。对于氟喹诺酮类药物,L20和L21菌株对诺氟沙星和环丙沙星均表现为中介。此外,L20菌株对红霉素、L21菌株对卡那霉素和头孢西丁也表现为中介。在耐药性方面,3株菌均对多黏菌素耐药,L17和L20菌株对链霉素、卡那霉素、庆大霉素和头孢西丁耐药;L17菌株对四环素和万古霉素耐药,而L21菌株则对利福平耐药。综上可知,3株乳酸菌均无溶血活性,整体对多种临床常用抗生素保持敏感,但菌株间存在明显的耐药谱差异,需要在实际应用过程中予以关注。
图8 菌株溶血活性检测

Fig.8 Detection of hemolytic activity of strains

表1 菌株抗生素敏感性试验结果

Table 1 Antibiotic sensitivity test results of strains

项目
Items
菌株编号 Strain number
L17 L20 L21
青霉素 Penicillin S S S
氨苄西林 Ampicillin S S S
红霉素 Erythromycin S I S
链霉素 Streptomycin R R S
卡那霉素 Kanamycin R R I
庆大霉素 Gentamicin R R S
氯霉素Chloramphenicol S S S
四环素 Tetracycline R S S
利福平 Rifampicin S S R
诺氟沙星 Norfloxacin R I I
环丙沙星 Ciprofloxacin R I I
多黏菌素 Polymyxin R R R
万古霉素 Vancomycin R S S
头孢西丁 Cefoxitin R R I

S:敏感 susceptible;I:中介 intermediate;R:耐药 resistant。

3 讨论

初乳是犊牛出生后最早接触的营养与微生物来源,不仅为新生个体提供能量与免疫保护,还可通过微生物传递促进其肠道菌群的早期定植与功能成熟[24]。阐明产犊季节对初乳微生物群落结构的影响,并发掘其中潜在的益生菌资源,对于解析母源与环境在犊牛早期肠道菌群建立中的作用机制,以及开发乳源功能性菌株具有重要意义。
在乳成分方面,本研究发现LS组初乳中乳尿素氮含量显著高于PS组,与前人研究结果[25]相符,这再次印证了母体代谢状态、环境因素等非营养因素在驱动乳中尿素氮含量差异中发挥关键作用[26]。而乳脂、乳蛋白、乳糖等主要营养成分的含量在2组间无显著差异,可能是由于这类营养成分的合成受多组织、多信号途径调控[27],与产犊季节的关联性较弱。
微生物多样性分析结果表明,产犊季节对初乳微生物群落丰富度的影响有限,但可显著改变群落组成结构,说明其主要调控物种丰度比例与优势类群构成,而非整体群落的复杂程度[28]。在群落组成上,2组初乳的优势菌门均为Proteobacteria、Firmicutes和Bacteroidota,与前人研究结果[29]一致。值得注意的是,Proteobacteria虽包含多种条件致病菌,但其在初乳中的高相对丰度也反映出初乳可能携带大量来源于母体乳腺或环境的微生物,该现象在健康乳汁中亦有报道[3]。LEfSe分析结果显示,Lactobacillaceae在LS组初乳中显著富集,提示产犊季节可能影响关键益生菌类群的增殖与竞争力。已有研究表明,Lactobacillaceae含有乳杆菌属(Lactobacillus)等典型益生菌属,可通过促进营养物质吸收、构建肠道生物屏障、抑制病原菌生长等途径,推动犊牛肠道早期微生态稳态的建立[30-32]。这一结果提示,产犊季节不仅影响初乳微生物群落的整体结构,还可能调控关键益生菌类群的相对丰度,进而影响犊牛的生长发育与肠道健康。
为了进一步挖掘初乳中的功能性益生菌株资源,本研究从奶牛初乳中成功分离鉴定出24株乳酸菌。耐受性检测结果表明,多数菌株可耐受低pH与高胆盐环境;尽管其耐酸、耐胆盐性能整体低于食源乳酸菌[33],但部分菌株达到了肠道定植的最低阈值,具备在犊牛消化道中定植的潜力。通过性能筛选,本研究发现L17、L20、L21菌株对大肠杆菌、沙门氏菌和金黄色葡萄球菌均具有抑制作用,经系统发育分析3株菌分别聚类于Latilactobacillus sakeiLactococcus lactisLactococcus formosensis。此外,3株菌均无溶血活性,且对多数临床常用抗生素保持敏感,基本符合微生态制剂的安全标准[34]。这些结果表明,初乳不仅是营养与免疫活性物质的载体,亦是潜在益生菌的重要天然来源,可为犊牛肠道健康调控与功能乳制品开发提供新思路。总体而言,本研究为解析初乳微生物群落的季节性特征及其功能价值提供了新证据,也为乳源益生菌资源的挖掘与开发奠定了基础;但上述菌株在犊牛肠道的实际定植能力与健康调控效应,仍需体内试验进一步验证。

4 结论

本研究证实,产犊季节可显著影响初乳微生物群落结构。通过分离培养,共获得24株乳酸菌,其中Latilactobacillus sakei L17、Lactococcus lactis L20和Lactococcus formosensis L21表现出优良的抗逆性与抑菌活性,且无溶血性、抗生素敏感性良好,符合益生菌安全性要求,具备开发为反刍动物微生态制剂的潜力。
[1]
WESTHOFF T A, BORCHARDT S, MANN S. Invited review:nutritional and management factors that influence colostrum production and composition in dairy cows[J]. Journal of Dairy Science, 2024, 107(7):4109-4128.

DOI

[2]
SILVA F G, SILVA S R, PEREIRA A M F, et al. A comprehensive review of bovine colostrum components and selected aspects regarding their impact on neonatal calf physiology[J]. Animals, 2024, 14(7):1130.

DOI

[3]
URRUTIA-ANGULO L, OCEJO M, YERGALIYEV T, et al. Exploring colostrum microbiota and its influence on early calf gut microbiota development using full-length 16S rRNA gene metabarcoding[J]. Scientific Reports, 2025, 15(1):36350.

DOI

[4]
YASIR M, AL-ZAHRANI I A, KHAN R, et al. Microbiological risk assessment and resistome analysis from shotgun metagenomics of bovine colostrum microbiome[J]. Saudi Journal of Biological Sciences, 2024, 31(4):103957.

DOI

[5]
FLYNN A, LEECH J, MCFADDEN M, et al. The effects of offering adequate-quality or high-quality colostrum on the passive immunity,health,growth,and fecal microbiome development of dairy heifer calves[J]. Journal of Dairy Science, 2025, 108(6):6254-6272.

DOI

[6]
禹世雄, 魏凌云, 徐甜甜, 等. 幼龄反刍动物肠道微生物定植规律及其营养调控研究进展[J]. 畜牧兽医学报, 2023, 54(7):2701-2707.

DOI

YU S X, WEI L Y, XU T T, et al. Research progress of intestinal microbial colonization pattern in young ruminants and its nutritional regulation[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(7):2701-2707. (in Chinese)

DOI

[7]
ZHU H, MIAO R F, TAO X X, et al. Longitudinal changes in milk microorganisms in the first two months of lactation of primiparous and multiparous cows[J]. Animals, 2023, 13(12):1923.

DOI

[8]
陈斌. 奶牛初乳菌群分析及益生菌组合对犊牛生长和肠道菌群的影响[D].硕士学位论文. 杨凌: 西北农林科技大学, 2021.

CHEN B. The analysis of colostrum microbial community structure of dairy cows and the effect of probiotics combination on growth and intestinal bacteria structure of calves[D].Master’s Thesis. Yangling: Northwest A&F University, 2021. (in Chinese)

[9]
SOYER P, TEKGÖZ M, TUNALI Y. Determination of potential probiotic properties of lactic acid bacteria isolated from colostrum milk[J]. European Journal of Life Sciences, 2023, 2(1):31-38.

DOI

[10]
CELANO G, CALASSO M, COSTANTINO G, et al. Effect of seasonality on microbiological variability of raw cow milk from Apulian dairy farms in Italy[J]. Microbiology Spectrum, 2022, 10(5):e0051422.

DOI

[11]
NGUYEN T T, WU H M, NISHINO N. An investigation of seasonal variations in the microbiota of milk,feces,bedding,and airborne dust[J]. Asian-Australasian Journal of Animal Sciences, 2020, 33(11):1858-1865.

DOI

[12]
许海丽, 孙文安, 安同乐. DHI奶牛生产性能测定技术及其在生产中的应用[J]. 畜牧兽医杂志, 2009, 28(5):33-35.

XU H L, SUN W A, AN T L. Determination technology of DHI dairy cow performance and its application in production[J]. Journal of Animal Science and Veterinary Medicine, 2009, 28(5):33-35. (in Chinese)

[13]
CAPORASO J G, LAUBER C L, WALTERS W A, et al. Ultra-high-throughput microbial community analysis on the Illumina HiSeq and MiSeq platforms[J]. The ISME Journal, 2012, 6(8):1621-1624.

DOI

[14]
CHEN S F, ZHOU Y Q, CHEN Y R, et al. Fastp:an ultra-fast all-in-one FASTQ preprocessor[J]. Bioinformatics, 2018, 34(17):i884-i890.

DOI

[15]
CALLAHAN B J, MCMURDIE P J, ROSEN M J, et al. DADA2:high-resolution sample inference from Illumina amplicon data[J]. Nature Methods, 2016, 13(7):581-583.

DOI

[16]
QUAST C, PRUESSE E, YILMAZ P, et al. The SILVA ribosomal RNA gene database project:improved data processing and web-based tools[J]. Nucleic Acids Research, 2013, 41(D1):D590-D596.

DOI

[17]
SAYERS E W, BOLTON E E, BRISTER J R, et al. Database resources of the national center for biotechnology information in 2023[J]. Nucleic Acids Research, 2023, 51(D1):D29-D38.

DOI

[18]
SCHILLINGER U, LÜCKE F K. Antibacterial activity of Lactobacillus sake isolated from meat[J]. Applied and Environmental Microbiology, 1989, 55(8):1901-1906.

DOI

[19]
KUMAR S, STECHER G, LI M, et al. MEGA X:molecular evolutionary genetics analysis across computing platforms[J]. Molecular Biology and Evolution, 2018, 35(6):1547-1549.

DOI

[20]
Clinical and Laboratory Standards Institute. Performance standards for antimicrobial susceptibility testing[S].33rd ed.CLSI supplement M100. Wayne,PA: CLSI, 2023.

[21]
STIGLIC G, WATSON R, CILAR L. R you ready?Using the R programme for statistical analysis and graphics[J]. Research in Nursing & Health, 2019, 42(6):494-499.

DOI

[22]
BOLYEN E, RIDEOUT J R, DILLON M R, et al. Reproducible,interactive,scalable and extensible microbiome data science using QIIME 2[J]. Nature Biotechnology, 2019, 37(8):852-857.

DOI

[23]
SEGATA N, IZARD J, WALDRON L, et al. Metagenomic biomarker discovery and explanation[J]. Genome Biology, 2011, 12(6):R60.

DOI

[24]
GOMES V, HOFFMANN C, CASTRO-TARDÓN D I, et al. Vertical transfer of gut microbiota from dam to neonate calf in the early of life[J]. Scientific Reports, 2024, 14(1):21746.

DOI PMID

[25]
李胜利. 黄梅县中国荷斯坦奶牛产奶量和乳成分的相关性及其影响因素研究[D].硕士学位论文. 武汉: 华中农业大学, 2017.

LI S L. Correlation between milk yield and composition in Chinese Holstein and their effects in Huangmei county[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2017. (in Chinese)

[26]
赵小博, 余诗强, 蒋林树, 等. 中国荷斯坦奶牛乳尿素氮非营养影响因素及其与泌乳性能的相关性分析[J]. 动物营养学报, 2023, 35(8):5209-5225.

DOI

ZHAO X B, YU S Q, JIANG L S, et al. Non-nutritional influence factors on milk urea nitrogen and its correlation with lactation performance of Chinese Holstein dairy cows[J]. Chinese Journal of Animal Nutrition, 2023, 35(8):5209-5225. (in Chinese)

DOI

[27]
CANUL-MEDINA G, FERNANDEZ-MEJIA C. Morphological,hormonal,and molecular changes in different maternal tissues during lactation and post-lactation[J]. Journal of Physiological Sciences, 2019, 69(6):825-835.

DOI

[28]
PATANGIA D V, GRIMAUD G, LINEHAN K, et al. Microbiota and resistome analysis of colostrum and milk from dairy cows treated with and without dry cow therapies[J]. Antibiotics, 2023, 12(8):1315.

DOI

[29]
CHEN B, TANG G F, GUO W Q, et al. Detection of the core bacteria in colostrum and their association with the rectal microbiota and with milk composition in two dairy cow farms[J]. Animals, 2021, 11(12):3363.

DOI

[30]
DE DEA LINDNER J, SANTARELLI M, YAMAGUISHI C T, et al. Recovery and identification of bovine colostrum microflora using traditional and molecular approaches[J]. Food Technology and Biotechnology, 2011, 49(3):364-368.

[31]
SOLIERI L, DE VERO L, TAGLIAZUCCHI D. Peptidomic study of casein proteolysis in bovine milk by Lactobacillus casei PRA205 and Lactobacillus rhamnosus PRA331[J]. International Dairy Journal, 2018, 85:237-246.

DOI

[32]
MALDONADO N C, DE RUIZ C S, OTERO M C, et al. Lactic acid bacteria isolated from young calves-characterization and potential as probiotics[J]. Research in Veterinary Science, 2012, 92(2):342-349.

DOI

[33]
仝静雯. 传统发酵食品中优良可食用乳酸菌的筛选及其在发酵乳中的应用研究[D].硕士学位论文. 杭州: 浙江工商大学, 2023:9-42.

TONG J W. Screening of excellent edible lactic acid bacteria from traditional fermented foods and their application in fermented milk[D].Master’s Thesis. Hangzhou: Zhejiang Gongshang University, 2023:9-42. (in Chinese)

[34]
SITDHIPOL J, NIWASABUTRA K, CHAIJAWAN N, et al. Evaluating the safety and efficacy of Lacticaseibacillus paracasei TISTR 2593 as a therapeutic probiotic for obesity prevention[J]. Frontiers in Microbiology, 2025, 16:1501395.

DOI

文章导航

/