研究论文

玉米赤霉烯酮降解菌的筛选、鉴定及其降解特性研究

  • 靳科 , 1 ,
  • 梁一飞 1 ,
  • 王楚凡 1 ,
  • 张淼 1 ,
  • 王春光 1, 2 ,
  • 张铁 , 1, 2, *
展开
  • 1 河北农业大学动物医学院, 保定 071000
  • 2 保定市肉羊养殖减抗替抗技术研究重点实验室, 保定 071000
* 张 铁,教授,硕士生导师,E-mail:

靳 科(2001—),男,河北邯郸人,硕士研究生,从事霉菌毒素生物降解研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-11-03

  网络出版日期: 2026-06-13

基金资助

河北省现代农业产业技术体系建设专项(HBCT2024240207)

河北省现代农业产业技术体系建设专项(HBCT2024250206)

Screening, Identification and Degradation Characteristics of Zearalenone-Degrading Bacteria

  • JIN Ke , 1 ,
  • LIANG Yifei 1 ,
  • WANG Chufan 1 ,
  • ZHANG Miao 1 ,
  • WANG Chunguang 1, 2 ,
  • ZHANG Tie , 1, 2, *
Expand
  • 1 College of Veterinary Medicine, Hebei Agricultural University, Baoding 071000, China
  • 2 Baoding Key Laboratory of Research on Antimicrobial Reduction and Substitution Technology in Mutton Sheep Breeding, Baoding 071000, China
* professor, E-mail:

Received date: 2025-11-03

  Online published: 2026-06-13

摘要

本试验旨在筛选出能有效降解玉米赤霉烯酮(ZEN)的菌株,并对其降解效果进行研究。以ZEN降解率为判定标准从发霉饲料、玉米、土壤等样本中筛选有降解ZEN作用的菌株,通过形态观察、生理生化鉴定及16S rDNA测序对其种属进行鉴定;探究筛选的玉米赤霉烯酮降解菌的最适生长及降解条件,并对降解活性物质进行初步分析;采用硫酸铵沉淀法从筛选的玉米赤霉烯酮降解菌发酵上清液中提取粗酶液,并测定粗酶液中活性蛋白的分子质量;在玉米粉、豆粕粉及麸皮中添加ZEN后接种筛选的玉米赤霉烯酮降解菌,培养72 h后探究筛选的玉米赤霉烯酮降解菌对不同饲料中ZEN的脱毒效果。结果显示:从玉米地土壤中筛选出的菌株HD-R1对1 μg/mL ZEN的降解率可达84.61%,该菌株鉴定为枯草芽孢杆菌(Bacillus subtilis),其生长最适培养基为LB培养基,对数生长期为2~18 h,最适生长、降解的温度和初始pH分别为37 ℃、pH 7.0;菌株HD-R1的降解活性物质主要存在于发酵上清液中的胞外酶,初步推测胞外酶的分子质量可能为38、60或70 kDa;菌株HD-R1对人工染毒玉米粉、豆粕粉及麸皮中ZEN的降解率分别为44.10%、62.08%、76.32%。综上可知,本研究筛选出的枯草芽孢杆菌HD-R1能有效降解LB培养基及人工染毒饲料中的ZEN,展现出在饲料ZEN脱毒方面良好的应用潜力。

本文引用格式

靳科 , 梁一飞 , 王楚凡 , 张淼 , 王春光 , 张铁 . 玉米赤霉烯酮降解菌的筛选、鉴定及其降解特性研究[J]. 动物营养学报, 2026 , 38(6) : 4728 -4740 . DOI: 10.12418/CJAN2026.378

Abstract

This experiment aimed to screen out strains that can effectively degrade zearalenone (ZEN) and study their degradation effects. Using the ZEN degradation rate as the criterion, strains with ZEN-degrading ability were screened from various samples such as moldy feed, corn and soil; their species were identified by morphological observation, physiological and biochemical identification and 16S rDNA sequencing. The optimal growth and degradation conditions of the screened zearalenone-degrading strain were investigated, and the degradation-active substances were preliminarily analyzed. Crude enzyme solution was extracted from the fermentation supernatant of the screened ZEN-degrading strain using the ammonium sulfate precipitation method, and the molecular masses of the active proteins in the crude enzyme solution were determined. ZEN was added to corn flour, soybean meal powder and wheat bran, followed by inoculation with the screened ZEN-degrading strain. After 72 hours of cultivation, the detoxification effects of the screened ZEN-degrading strain on ZEN in different feeds were investigated. The results showed that, the strain HD-R1, screened from cornfield soil, exhibited a degradation rate of 84.61% against 1 μg/mL ZEN. This strain was identified as Bacillus subtilis. Its optimal growth medium was LB medium, with a logarithmic growth phase of 2 to 18 h. The optimal temperature and initial pH for both growth and degradation for strain HD-R1 were 37 ℃ and pH 7.0, respectively. The degradation-active substances of strain HD-R1 were primarily extracellular enzymes present in the fermentation supernatant, and the molecular masses of these extracellular enzymes were preliminarily estimated to be 38, 60 or 70 kDa. The ZEN degradation rate of strain HD-R1 in artificially contaminated corn flour, soybean meal powder and wheat bran was 44.10%, 62.08% and 76.32%, respectively. In summary, Bacillus subtilis HD-R1 screened in this study can effectively degrade ZEN in LB medium and artificially contaminated feeds, demonstrating good application potential for ZEN detoxification in feeds.

玉米赤霉烯酮(zearalenone,ZEN)是常见霉菌毒素之一,又称F-2毒素,是由禾谷镰刀菌(Fusarium graminearum)等镰刀菌属真菌分泌的一种非甾体类雌激素毒素,化学式为C18H22O5,是一种2,4-二羟基苯甲酸内酯类化合物[1-2],最早是由Stob等[3]在1962年从发霉的玉米中分离得到并将其命名,随后Urry等[4]明确了其化学结构。ZEN污染范围广,对动物和人类危害较大。我国对其含量有明确的限量标准:谷类及其制品中应低于60 μg/kg[5],玉米及其加工产品中应低于0.5 mg/kg[6]。ZEN具有与内源性雌激素相似的化学结构,可竞争性结合雌激素受体,从而造成生殖系统障碍[7]。ZEN及其衍生物可影响细胞免疫、器官免疫等多种免疫应答水平,影响机体正常免疫功能[8]。此外,肝脏是机体代谢ZEN的重要器官,ZEN会导致血清中天冬氨酸氨基转移酶(AST)、丙氨酸氨基转移酶(ALT)、碱性磷酸酶(ALP)活性升高,抑制谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)等抗氧化酶的活性,对肝脏造成损伤[9-10]。因此,解决饲料及食品中的ZEN污染问题对降低经济损失、保障食品安全及提高动物生产性能具有重要意义。
ZEN的脱毒方法主要包括物理法、化学法及生物法,物理法多采用萃取、吸附、高温或辐射,化学法则依靠酸、碱、臭氧等[11],这2种方法存在脱毒效率低、易造成营养物质流失及引发二次污染等问题。ZEN的生物脱毒方法具有安全、高效、环保等特点,主要包括微生物吸附、微生物降解及酶降解。某些微生物细胞壁上的肽聚糖、蛋白质、脂质等结构可与ZEN产生氢键、疏水键等分子间作用力,实现对ZEN的吸附[12]。Moebus等[13]从牛饲粮中分离出的酿酒酵母LL08,以及Murtaza等[14]使用的4种植物源乳酸杆菌,均具有吸附ZEN的作用。在降解方面,微生物可将ZEN转化为无毒或低毒化合物。研究表明,多种微生物对ZEN表现出良好的降解效果,例如,段锦等[15]筛选出的解淀粉芽孢杆菌(Bacillus amyloliquefaciens)NA-J21和枯草芽孢杆菌(Bacillus subtilis)MLS-H32,Feng等[16]筛选出的贝莱斯芽孢杆菌YM1,以及陈昌翠等[17]筛选出的戈登氏菌属细菌DC-R2。此外,挖掘微生物中高效降解ZEN的酶也是生物脱毒领域的研究热点。Takahashi-Ando等[18]首次报道粉红粘帚霉(Clonostachys rosea)产生的内酯水解酶ZHD101,可通过水解ZEN的二羟基苯甲酸内酯键,使其环形结构打开,从而实现降解,其降解产物的雌激素活性远低于ZEN。目前研究发现的ZEN降解酶主要包括内酯水解酶[19-20]、漆酶[21]和过氧化物酶[22]
本研究以ZEN为唯一碳源进行初筛,以ZEN降解率为评价指标进行复筛,从样品中筛选出能有效降解ZEN的菌株,探究其最适生长及降解条件,并分析其降解活性物质;通过硫酸铵沉淀法提取降解酶并测定其蛋白质分子质量,进一步探究筛选出的ZEN降解菌对不同饲料中ZEN的脱毒效果,以期为后续ZEN降解酶基因的挖掘及饲料中ZEN污染问题的解决提供参考。

1 材料与方法

1.1 样品来源

样品采集自河北邯郸、承德、保定等地的耕种土壤、发霉饲料、玉米、秸秆及动物粪便,共计19份。

1.2 试验材料

ZEN标准品(纯度>99%),上海源叶生物科技有限公司;磷酸盐缓冲液(PBS)干粉,北京索莱宝科技有限公司;ZEN酶联免疫吸附测定(ELISA)检测试剂盒,北京华安麦科生物技术有限公司;细菌基因组DNA提取试剂盒,北京天根生化科技有限公司;十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶制备试剂盒,武汉赛维尔生物科技有限公司;BCA蛋白浓度测定试剂盒,上海碧云天生物技术股份有限公司;甲醇(分析纯),天津大茂化学试剂厂;LB固体及液体培养基、NB培养基、BHI培养基、生化鉴定管,青岛海博生物技术有限公司;初筛液体培养基:磷酸氢二钠 2.44 g/L、磷酸二氢钾 1.52 g/L、硫酸铵0.5 g/L、硫酸镁 0.2 g/L、氯化钙 0.05 g/L,用蒸馏水定容至 1 L,高压灭菌后备用;初筛固体培养基是在初筛液体培养基配方基础上添加琼脂粉 20 g/L。

1.3 ZEN降解菌的筛选

初筛:分别称取5 g不同样品加入100 mL无菌水,37 ℃下180 r/min恒温振荡2 h,静置30 min后取上清;按5%接种量将上清液加入到含有ZEN(终浓度10 μg/mL)的初筛液体培养基中,37 ℃下180 r/min培养24 h;抽取培养后的菌液1 mL进行梯度稀释,依次稀释至10-7,将稀释后的菌液分别涂布于含有ZEN(终浓度10 μg/mL)的初筛固体培养基中,置于生化培养箱中37 ℃倒置培养72 h;培养结束后将不同形态、大小的菌落接种至LB固体培养基上进行纯化。
复筛:挑取初筛得到的不同单菌落分别接种于LB液体培养基,发酵培养24 h;取不同菌株的发酵液,加入终浓度为1 μg/mL的ZEN溶液,37 ℃下180 r/min振荡培养24 h,每种菌株的发酵液设置3个重复;培养结束后14 000×g,离心10 min取上清,利用ZEN ELISA检测试剂盒检测各反应体系中ZEN的含量,以含有相同浓度ZEN的无菌LB液体培养基作为空白对照,计算各菌株的ZEN降解率。
ZEN降解率(%)=[(空白对照中ZEN含量-待测反应体系中ZEN含量)/空白对照中ZEN含量]×100。

1.4 ZEN降解菌的种属鉴定

1.4.1 形态学观察及生理生化鉴定

将筛选得到的菌株(编号HD-R1)接种至LB固体培养基中,37 ℃培养24 h后观察菌落形态,挑取单菌落进行革兰氏染色及芽孢染色。参照《伯杰氏细菌鉴定手册》及《常见细菌系统鉴定手册》将菌株分别接种至不同的生化鉴定管中,反应后观察并记录结果。

1.4.2 菌株16S rDNA鉴定

利用细菌基因组DNA提取试剂盒提取菌株HD-R1的DNA,选用细菌16S rDNA通用引物27F(5'-AGAGTTTGATCCTGGCTCAG-3')和1492R(5'-GGTTACCTTGTTACGACTT-3')进行PCR扩增。PCR反应体系(50 μL):DNA模板2 μL,引物27F、1492R各1 μL,2×Taq Master Mix 25 μL,ddH2O 21 μL。PCR反应条件:94 ℃预变性5 min;94 ℃变性30 s,53 ℃退火30 s,72 ℃延伸30 s,34个循环;72 ℃延伸5 min。PCR产物经1%琼脂糖凝胶电泳验证后送至生工生物工程(上海)股份有限公司进行测序。将测序结果在NCBI上进行BLAST序列比对,并用MEGA 10.0软件构建系统发育树。

1.5 ZEN降解菌生长及降解条件优化

1.5.1 生长条件优化

培养基筛选:HD-R1菌液以1%的接种量分别接种至LB培养基、NB培养基、BHI培养基中,在37 ℃下180 r/min振荡培养24 h后,通过酶标仪测定菌液在630 nm处的吸光度(OD630)值。每个培养基设置3个重复。
培养时间筛选:HD-R1菌液以1%的接种量接种至LB培养基中,37 ℃下180 r/min振荡培养,每隔2 h取样,通过酶标仪测定菌液的OD630值。以培养时间为横坐标,OD630值为纵坐标绘制生长曲线。每个培养时间设置3个重复。
培养温度筛选:HD-R1菌液以1%的接种量接种至LB培养基中,分别在20、25、30、37、40 ℃下180 r/min振荡培养24 h后,通过酶标仪测定菌液的OD630值。每个温度设置3个重复。
初始pH筛选:将LB培养基的pH分别调整至4.0、5.0、6.0、7.0、8.0、9.0,HD-R1菌液以1%的接种量分别接种至上述培养基中,在37 ℃下180 r/min振荡培养24 h后,通过酶标仪测定菌液的OD630值。每个pH设置3个重复。

1.5.2 降解条件优化

HD-R1菌液以1%的接种量接种至LB培养基中,37 ℃下180 r/min振荡培养24 h制得发酵菌液。
反应时间筛选:发酵菌液中加入终浓度为1 μg/mL的ZEN,于37 ℃、pH 7.0、180 r/min条件下,分别培养0、6、12、24、36、48、60、72 h。
反应温度筛选:发酵菌液中加入终浓度为1 μg/mL的ZEN,于pH 7.0、180 r/min条件下,分别在20、25、30、37、40 ℃下培养24 h。
初始pH筛选:将LB培养基的pH分别调至4.0、5.0、6.0、7.0、8.0、9.0,加入终浓度为1 μg/mL的ZEN,并按1%的接种量接入发酵菌液,于37 ℃、180 r/min条件下培养24 h。
接种量筛选:将发酵菌液分别按0.5%、1.0%、2.5%、5.0%、7.5%、10.0%的接种量,接入含有终浓度为1 μg/mL ZEN的LB培养基中,于37 ℃、pH 7.0、180 r/min条件下培养24 h。
上述反应条件每个处理分别设置3个重复,培养结束后检测ZEN含量,计算ZEN降解率。

1.6 降解活性物质分析

1.6.1 菌株HD-R1对ZEN的吸附试验

将HD-R1菌液接种至LB培养基中,37 ℃、180 r/min振荡培养24 h制得发酵菌液,14 000×g下离心10 min后分离发酵上清液和菌体沉淀。菌体用无菌PBS进行洗涤、离心,重复3次后用PBS重悬制得菌悬液,等体积分成2份,其中一份于121 ℃高压蒸汽灭菌30 min,另一份不做处理。将上述制备的活菌体和灭活菌体分别与终浓度为1 μg/mL的ZEN在37 ℃、180 r/min条件下共培养24 h,反应结束后离心取沉淀,将沉淀用甲醇浸取,涡旋30 min后再次离心,取上清液检测ZEN含量,计算菌体对ZEN的吸附率。以含等量ZEN的无菌PBS作为空白对照,每个处理设置3个重复。
ZEN吸附率=(上清液中ZEN含量/空白对照中ZEN含量)×100。

1.6.2 降解活性物质定位

按1.6.1中步骤分别制备菌株HD-R1的发酵上清液及菌悬液。发酵上清液用0.22 μm水系滤膜过滤后,4 ℃保存备用。菌悬液经超声破碎处理后,离心取上清液,0.22 μm滤膜过滤,得到胞内液;剩余沉淀经无菌PBS洗涤、离心、重悬后制得破碎细胞壁。分别将发酵上清液、菌悬液、胞内液、破碎细胞壁与ZEN(终浓度1 μg/mL)在37 ℃、180 r/min条件下共培养24 h,培养结束后检测ZEN含量,计算ZEN降解率。以含有等量ZEN的无菌PBS为空白对照,每个处理分别设置3个重复。
在上述试验的基础上,将发挥主要降解作用的部分进行不同处理:1)热处理,100 ℃水浴15 min;2)蛋白酶K处理,添加终浓度为1 mg/mL的蛋白酶K,55 ℃水浴2 h;3)十二烷基硫酸钠(SDS)处理,添加1% SDS,55 ℃水浴2 h;4)蛋白酶K+SDS处理,添加终浓度为1 mg/mL的蛋白酶K和1% SDS,55 ℃水浴2 h。各处理结束后分别与ZEN(终浓度1 μg/mL)反应24 h后检测ZEN含量,计算ZEN降解率。以含有等量ZEN的无菌PBS为空白对照,每个处理分别设置3个重复。

1.7 降解酶的粗提取

1.7.1 粗酶液的制备

按1.6.1中步骤制备菌株HD-R1的发酵上清液,向发酵上清液中缓慢添加研磨后的硫酸铵粉末至饱和度为80%,置于4 ℃冰箱静置过夜,4 ℃下14 000×g离心15 min后收集沉淀,经无菌PBS复溶后转移至截留分子质量3.5 kDa的透析袋中透析除盐24 h,以无菌PBS作为透析液,期间每4 h更换1次透析液,透析结束后使用BCA蛋白浓度测定试剂盒检测所提取粗酶液的蛋白浓度。

1.7.2 活性蛋白分子质量的测定

使用SDS-PAGE凝胶制备试剂盒分别制备5%浓缩胶及10%分离胶,分别吸取100 μL透析后的粗酶液、发酵菌液、菌悬液及未经硫酸铵沉淀处理的发酵上清液,加入25 μL的5×SDS-PAGE上样缓冲液,95 ℃水浴10 min,待冷却至室温后取20 μL上样,作为参考的蛋白Maker分子质量为10~180 kDa。上层胶电压80 V,待样品进入下层胶后,电压改为120 V,电泳结束后凝胶经考马斯亮蓝染色及脱色处理直至条带清晰,对结果拍照记录。

1.8 粗酶液降解ZEN动力曲线的绘制

按照1.7.1中步骤制备粗酶液并调整至相同浓度,将提取的粗酶液与终浓度为1 μg/mL的ZEN在pH 7.0、37 ℃、180 r/min条件下反应,分别于12、24、36、48、60、72 h时检测ZEN含量,计算ZEN降解率,绘制粗酶液降解ZEN的动力曲线。以含等量ZEN的无菌PBS作为空白对照,每个时间点设3个重复。

1.9 菌株HD-R1对饲料中ZEN脱除效果的测定

参照陈毅保[23]的方法并加以修改:分别称取5 g玉米粉、豆粕粉及麸皮装入50 mL三角瓶中,灭菌后烘干;添加ZEN至终浓度为1 mg/kg,并以10%的接种量添加HD-R1菌液(3.8×108 CFU/mL),最终用无菌PBS调整料液比为1∶1;搅拌均匀后,37 ℃培养箱发酵培养72 h后取出,放入60 ℃烘箱中进行烘干;按照ZEN ELISA检测试剂盒说明书对样本进行处理,检测ZEN含量,计算ZEN降解率。以不接种菌株HD-R1的饲料样本作为空白对照,每个样本分别设置3个重复。

1.10 数据处理与分析

试验数据经Excel 2019整理后,采用SPSS 26.0软件进行单因素方差分析及Duncan氏法多重比较。数据以平均值±标准差表示,并利用GraphPad Prism 9.5软件进行图形绘制。

2 结果与分析

2.1 ZEN降解菌的筛选

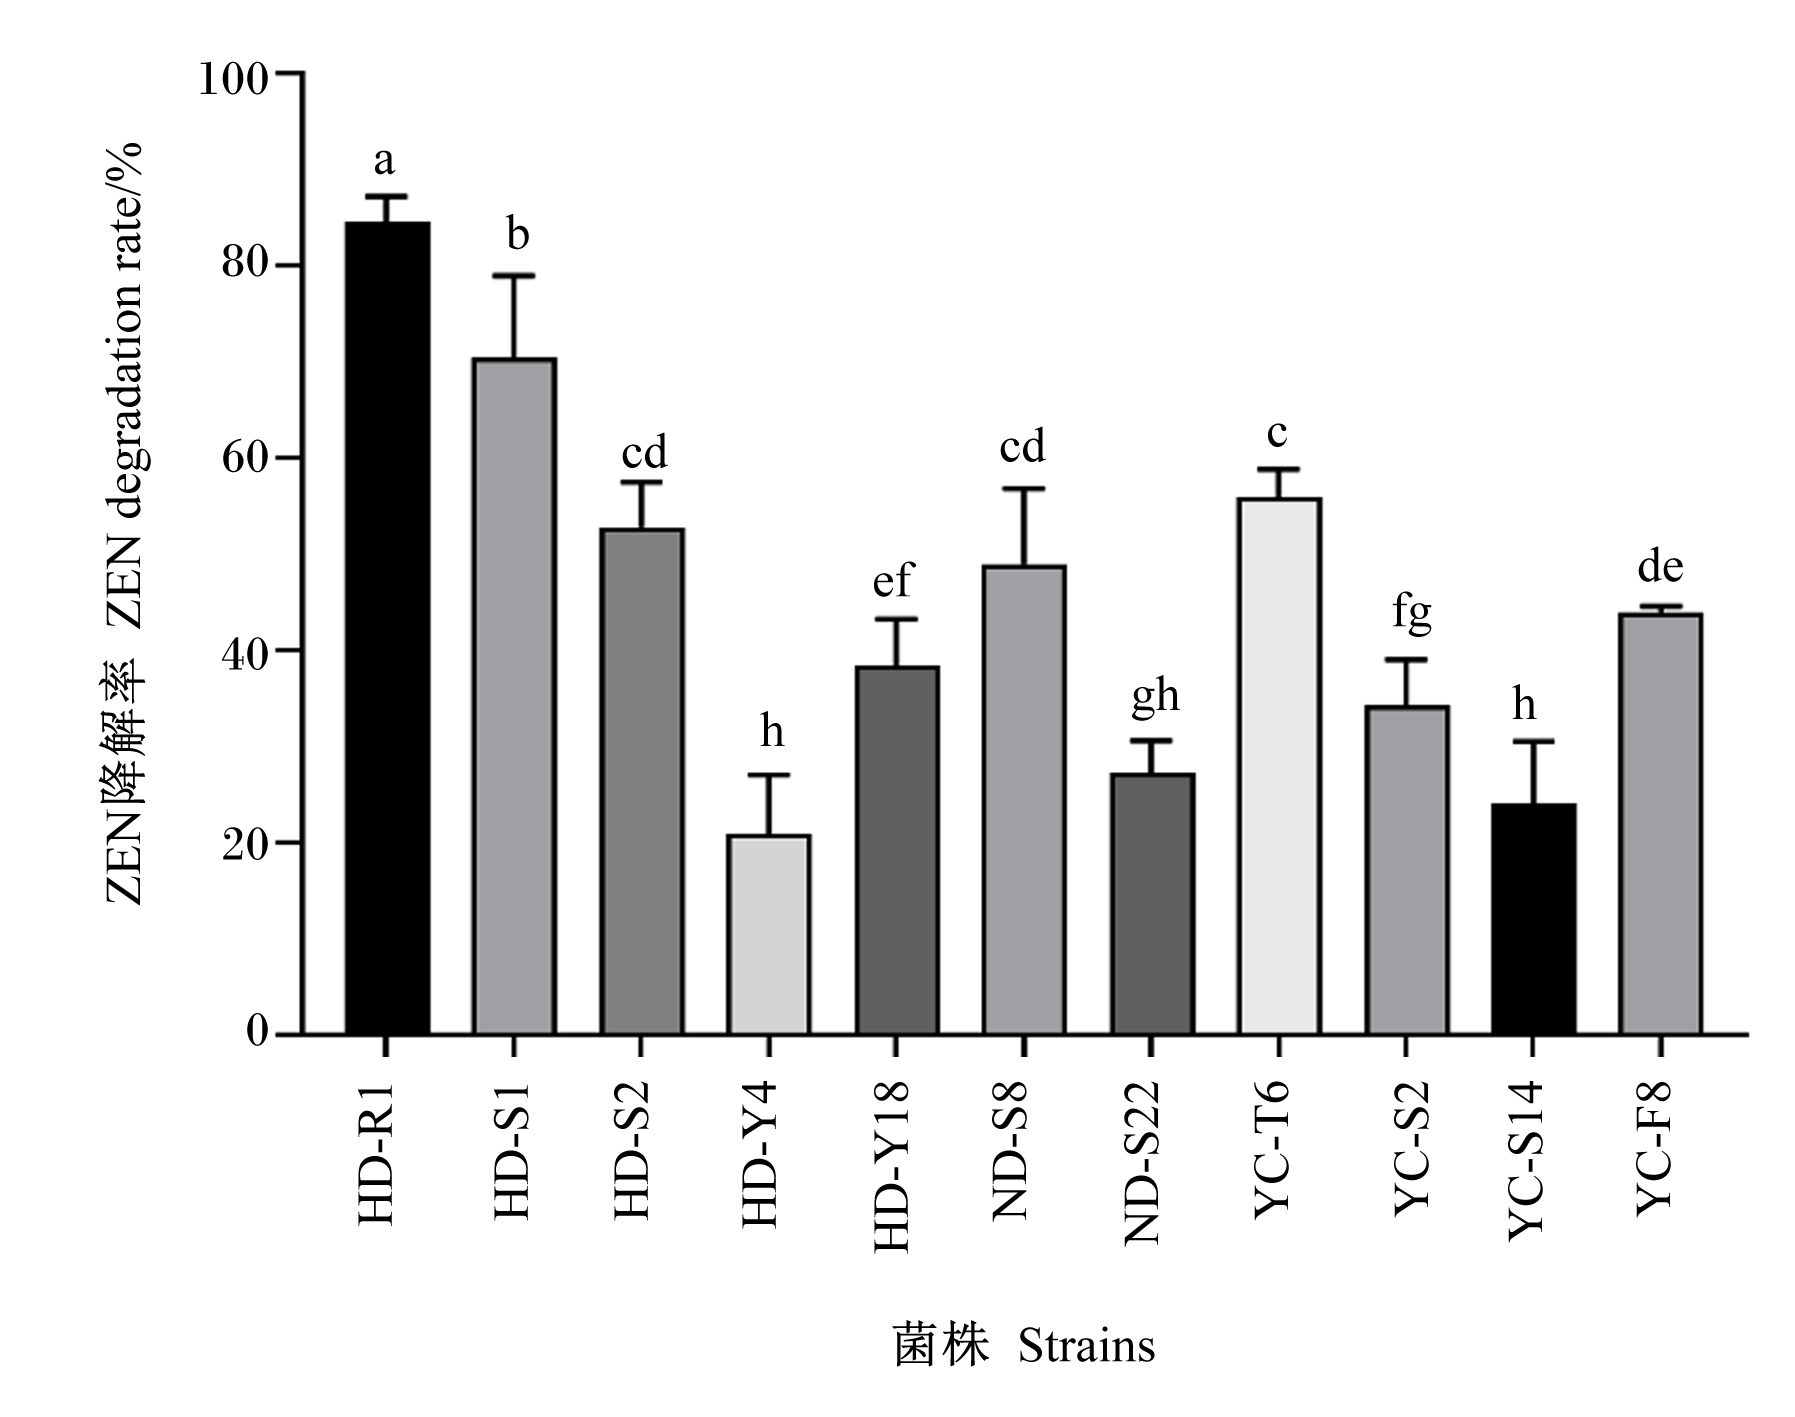
以ZEN为唯一碳源进行初筛,从不同样品中共筛选出58株可在初筛固体培养基上生长的菌株。如图1所示,以ZEN降解率为评价指标进行复筛,共得到11株对ZEN具有降解效果的菌株(ZEN降解率>20%),其中1株来源于玉米地土壤编号为HD-R1的菌株对ZEN的降解率可达84.61%,因此选择菌株HD-R1进行后续研究。
图1 不同菌株的ZEN降解率

数据柱形标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 ZEN degradation rate of different strains

Value columns with different small letters mean significant difference (P<0.05). The same as below.

2.2 ZEN降解菌HD-R1的种属鉴定

2.2.1 形态学观察

图2所示,菌株HD-R1在LB培养基上培养24 h后,菌落呈乳白色、不规则圆形,表面有褶皱凸起(图2-A);革兰氏染色为阳性,菌体呈杆状,可见芽孢(图2-B中箭头所示);芽孢染色后,芽孢被染成绿色(图2-C中箭头所示)。综合上述特征,初步鉴定该菌株为芽孢杆菌属(Bacillus)细菌。
图2 菌株HD-R1的菌落形态及染色结果

A:菌落形态;B:革兰氏染色(1 000×);C:芽孢染色(1 000×)。

Fig.2 Colony morphology and staining results of strain HD-R1

A: colony morphology; B: Gram staining (1 000×); C: spore staining (1 000×).

2.2.2 生理生化鉴定

菌株HD-R1的生理生化鉴定结果如表1所示,参照《常见细菌系统鉴定手册》及《伯杰氏细菌鉴定手册》判断该菌株为枯草芽孢杆菌。
表1 菌株HD-R1的生理生化特征

Table 1 Physiological and biochemical characteristics of strain HD-R1

项目 Items 鉴定结果 Identification results 判定标准 Criteria for determination
厌氧生长 Anaerobic growth - 不生长
4 ℃生长 Growth at 4 ℃ - 不生长
30 ℃生长 Growth at 30 ℃ + 生长
50 ℃生长 Growth at 50 ℃ + 生长
木糖利用 Xylose utilization + 变黄
阿拉伯糖利用 Arabinose utilization + 变黄
甘露醇利用 Mannitol utilization - 变黄
7%NaCl生长 Growth in 7% NaCl + 生长
明胶液化 Gelatin liquefaction + 液化
V-P试验 VP test - 变红
甲基红试验 Methyl red test - 变黄
淀粉水解 Starch hydrolysis + 不变蓝
丙酸盐利用 Propionate utilization - 变蓝
柠檬酸盐利用 Citrate utilization + 变蓝
硝酸盐还原试验 Nitrate reduction test + 变红
接触酶试验 Catalase test + 产生气泡
氧化酶试验 Oxidase test + 变紫
pH 5.7生长 Growth at pH 5.7 + 生长

“+”为阳性,“-”为阴性。

“+” indicates positive, and “-” indicates negative.

2.2.3 16S rDNA鉴定

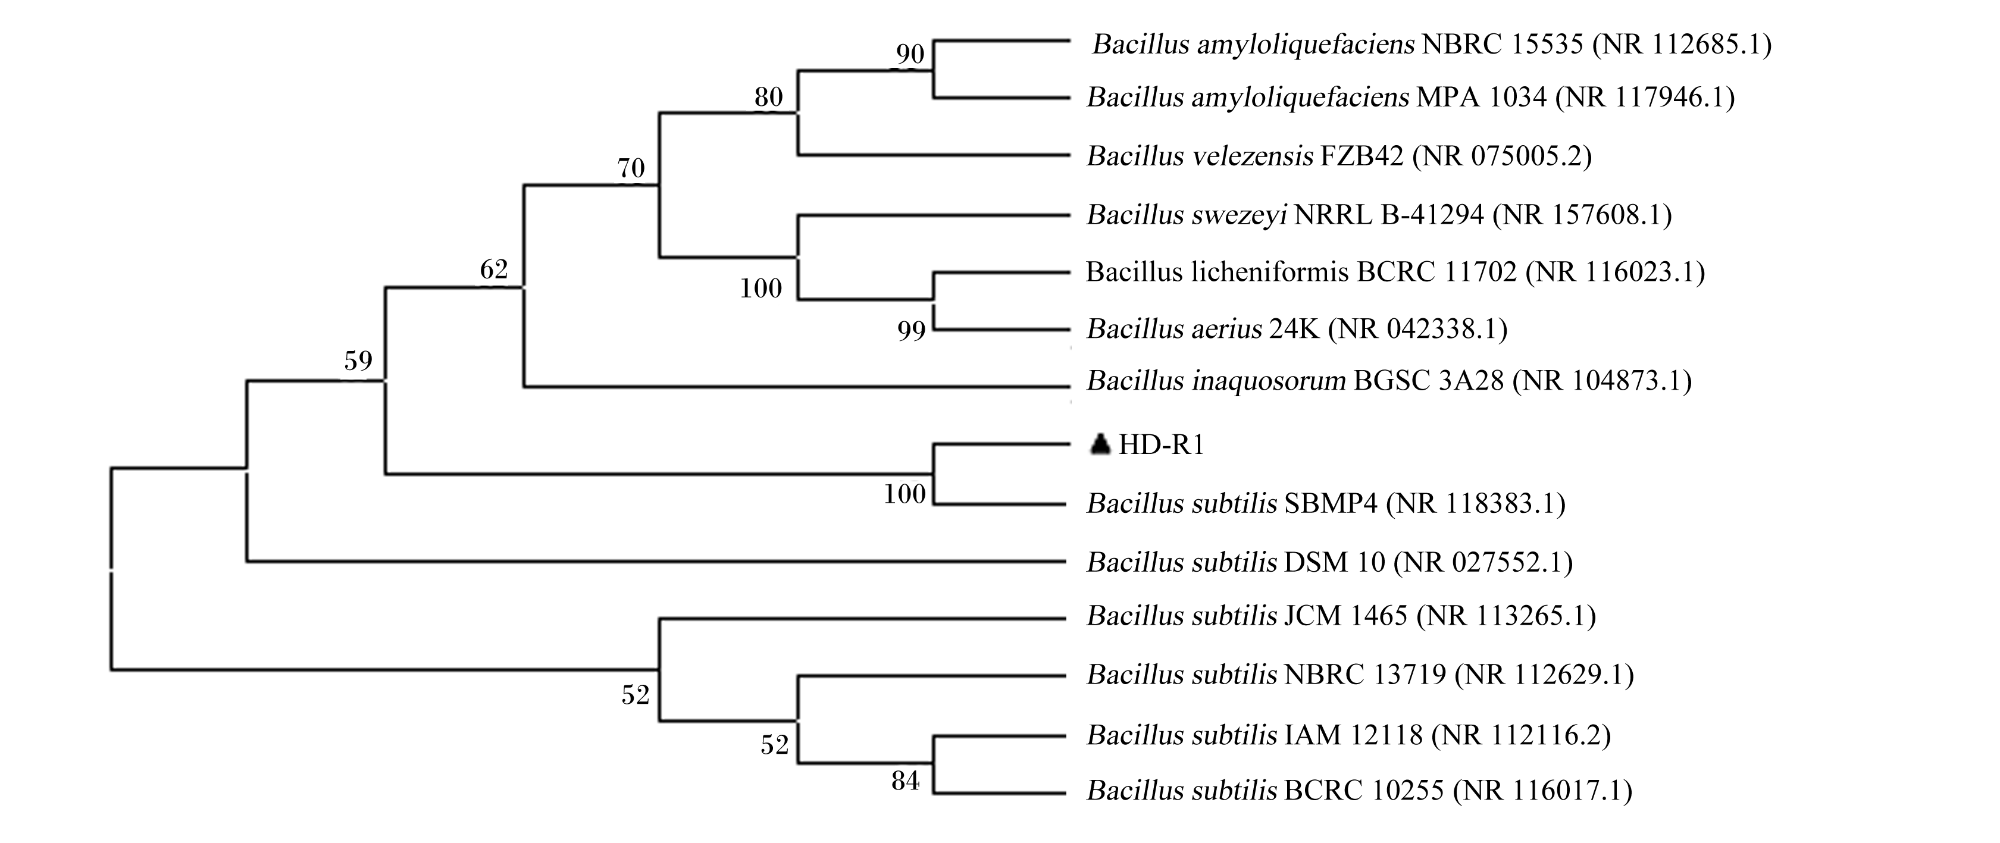
菌株HD-R1的16S rDNA序列长度为1 454 bp。BLAST比对结果显示,该菌株与枯草芽孢杆菌的同源性为99.65%。采用MEGA软件构建系统发育树,结果如图3所示:菌株HD-R1与枯草芽孢杆菌SBMP4位于同一进化分支。据此,将菌株HD-R1鉴定为枯草芽孢杆菌。
图3 菌株HD-R1的16S rDNA系统发育树

Bacillus amyloliquefaciens:解淀粉芽孢杆菌;Bacillus velezensis:贝莱斯芽孢杆菌;Bacillus swezeyi:斯威泽芽孢杆菌;Bacillus licheniformis:地衣芽孢杆菌;Bacillus aerius:空气芽孢杆菌;Bacillus inaquosorum:贫瘠水芽孢杆菌;Bacillus subtilis:枯草芽孢杆菌。

Fig.3 Phylogenetic tree of 16S rDNA of strain HD-R1

2.3 ZEN降解菌HD-R1的最适生长条件

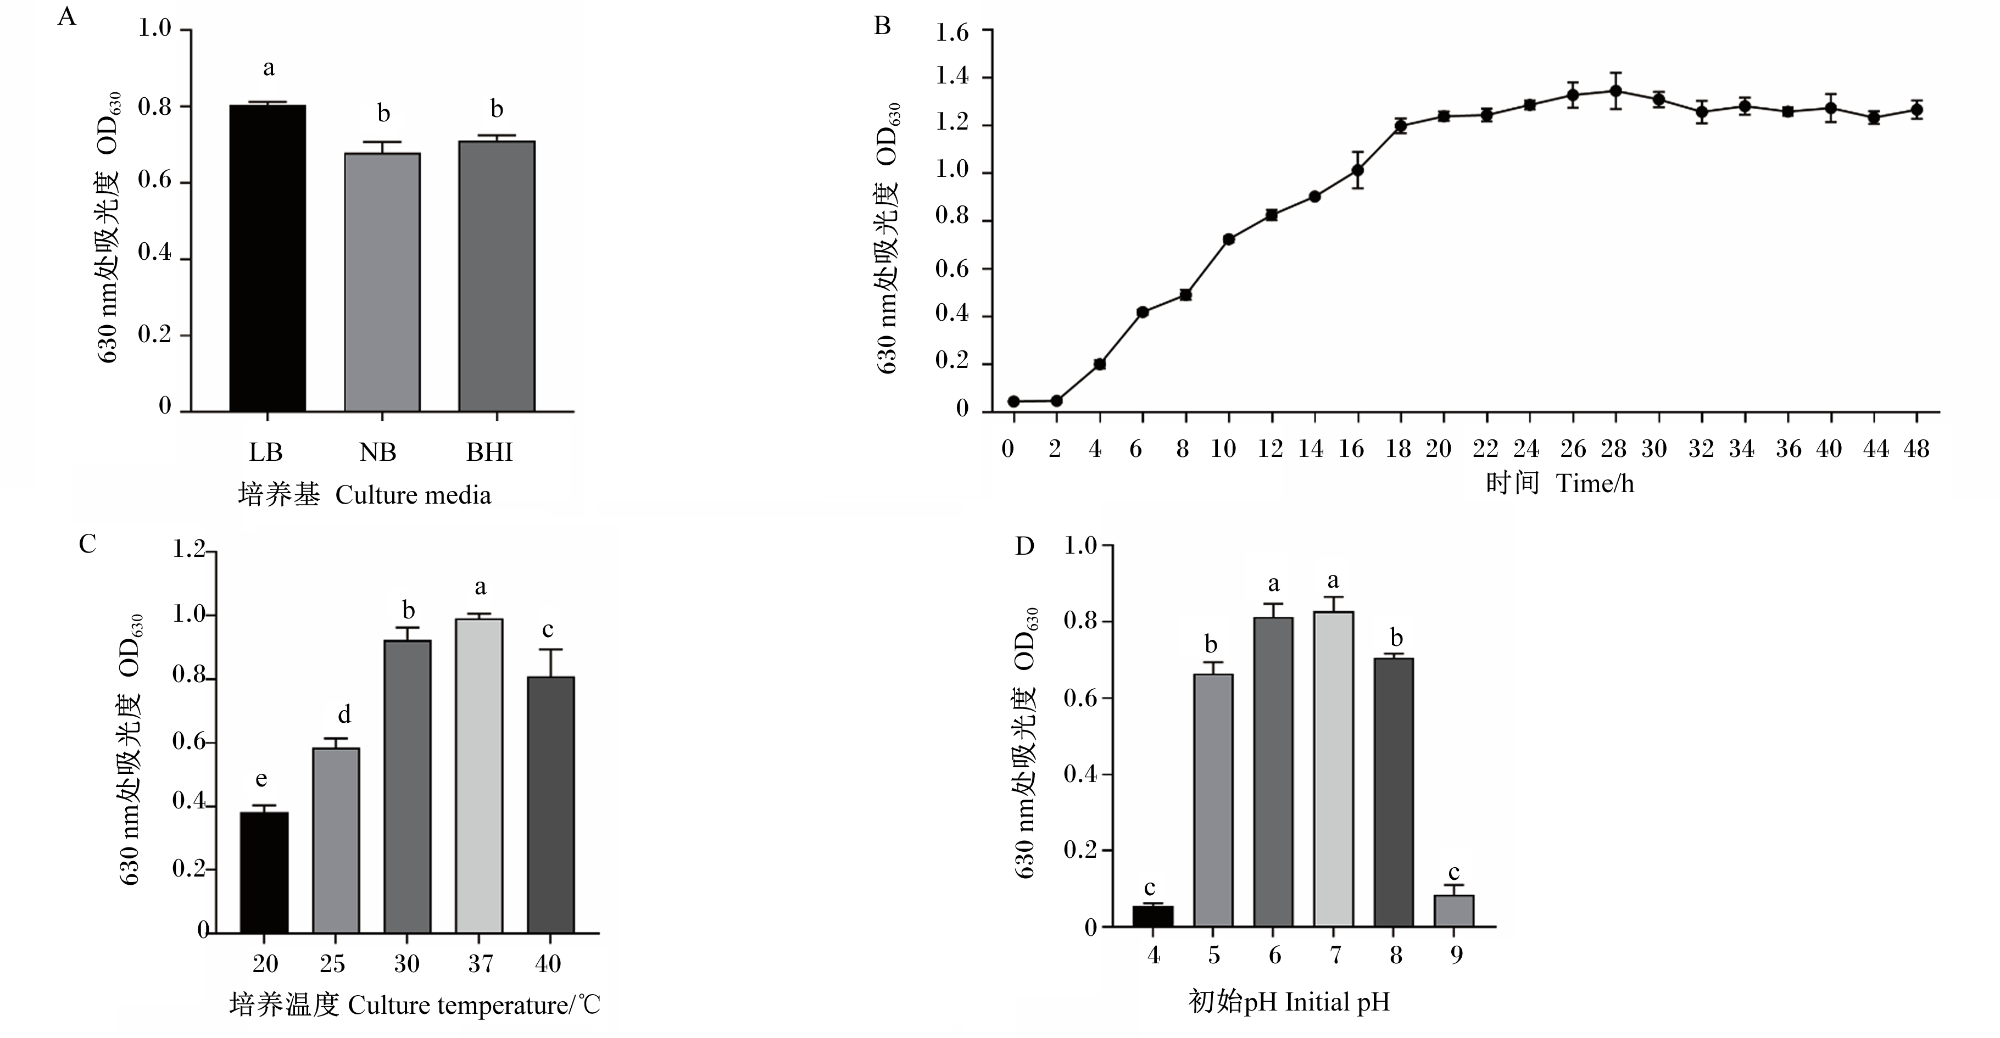
不同营养成分的培养基会影响菌株的生长,如图4-A所示,在LB培养基、NB培养基、BHI培养基中,菌株HD-R1在LB培养基中生长状况最好,因此后续试验选择LB培养基对菌株HD-R1进行培养。菌株HD-R1的生长曲线如图4-B所示,在培养2 h后进入对数生长期,培养18 h后进入稳定期,因此其最适培养时间为18 h。培养温度在20~37 ℃区间时,菌株HD-R1的OD630值随温度升高逐渐增大,但当培养温度达到40 ℃时,生长受到抑制,因此菌株HD-R1的最适培养温度是37 ℃(图4-C)。菌株HD-R1在LB培养基初始pH为4.0和9.0时OD630值较低,生长缓慢,说明过酸、过碱条件不利于菌株HD-R1的生长;菌株HD-R1在初始pH 5.0~8.0区间生长状况良好,初始pH为7.0时OD630值达到最大,说明pH 7.0是菌株HD-R1的最适生长pH(图4-D)。上述结果表明,菌株HD-R1在初始pH为7.0的LB培养基中,于37 ℃培养18 h可获得较佳的生长效果。
图4 菌株HD-R1生长条件优化

A:不同培养基对菌株HD-R1生长的影响;B:菌株HD-R1的生长曲线;C:不同培养温度对菌株HD-R1生长的影响;D:不同初始pH对菌株HD-R1生长的影响。

Fig.4 Optimization of growth conditions for strain HD-R1

A: effects of different culture media on growth of strain HD-R1; B: growth curve of strain HD-R1; C: effects of different temperature on growth of strain HD-R1; D: effects of different initial pH on growth of strain HD-R1.

2.4 ZEN降解菌HD-R1的最适降解条件

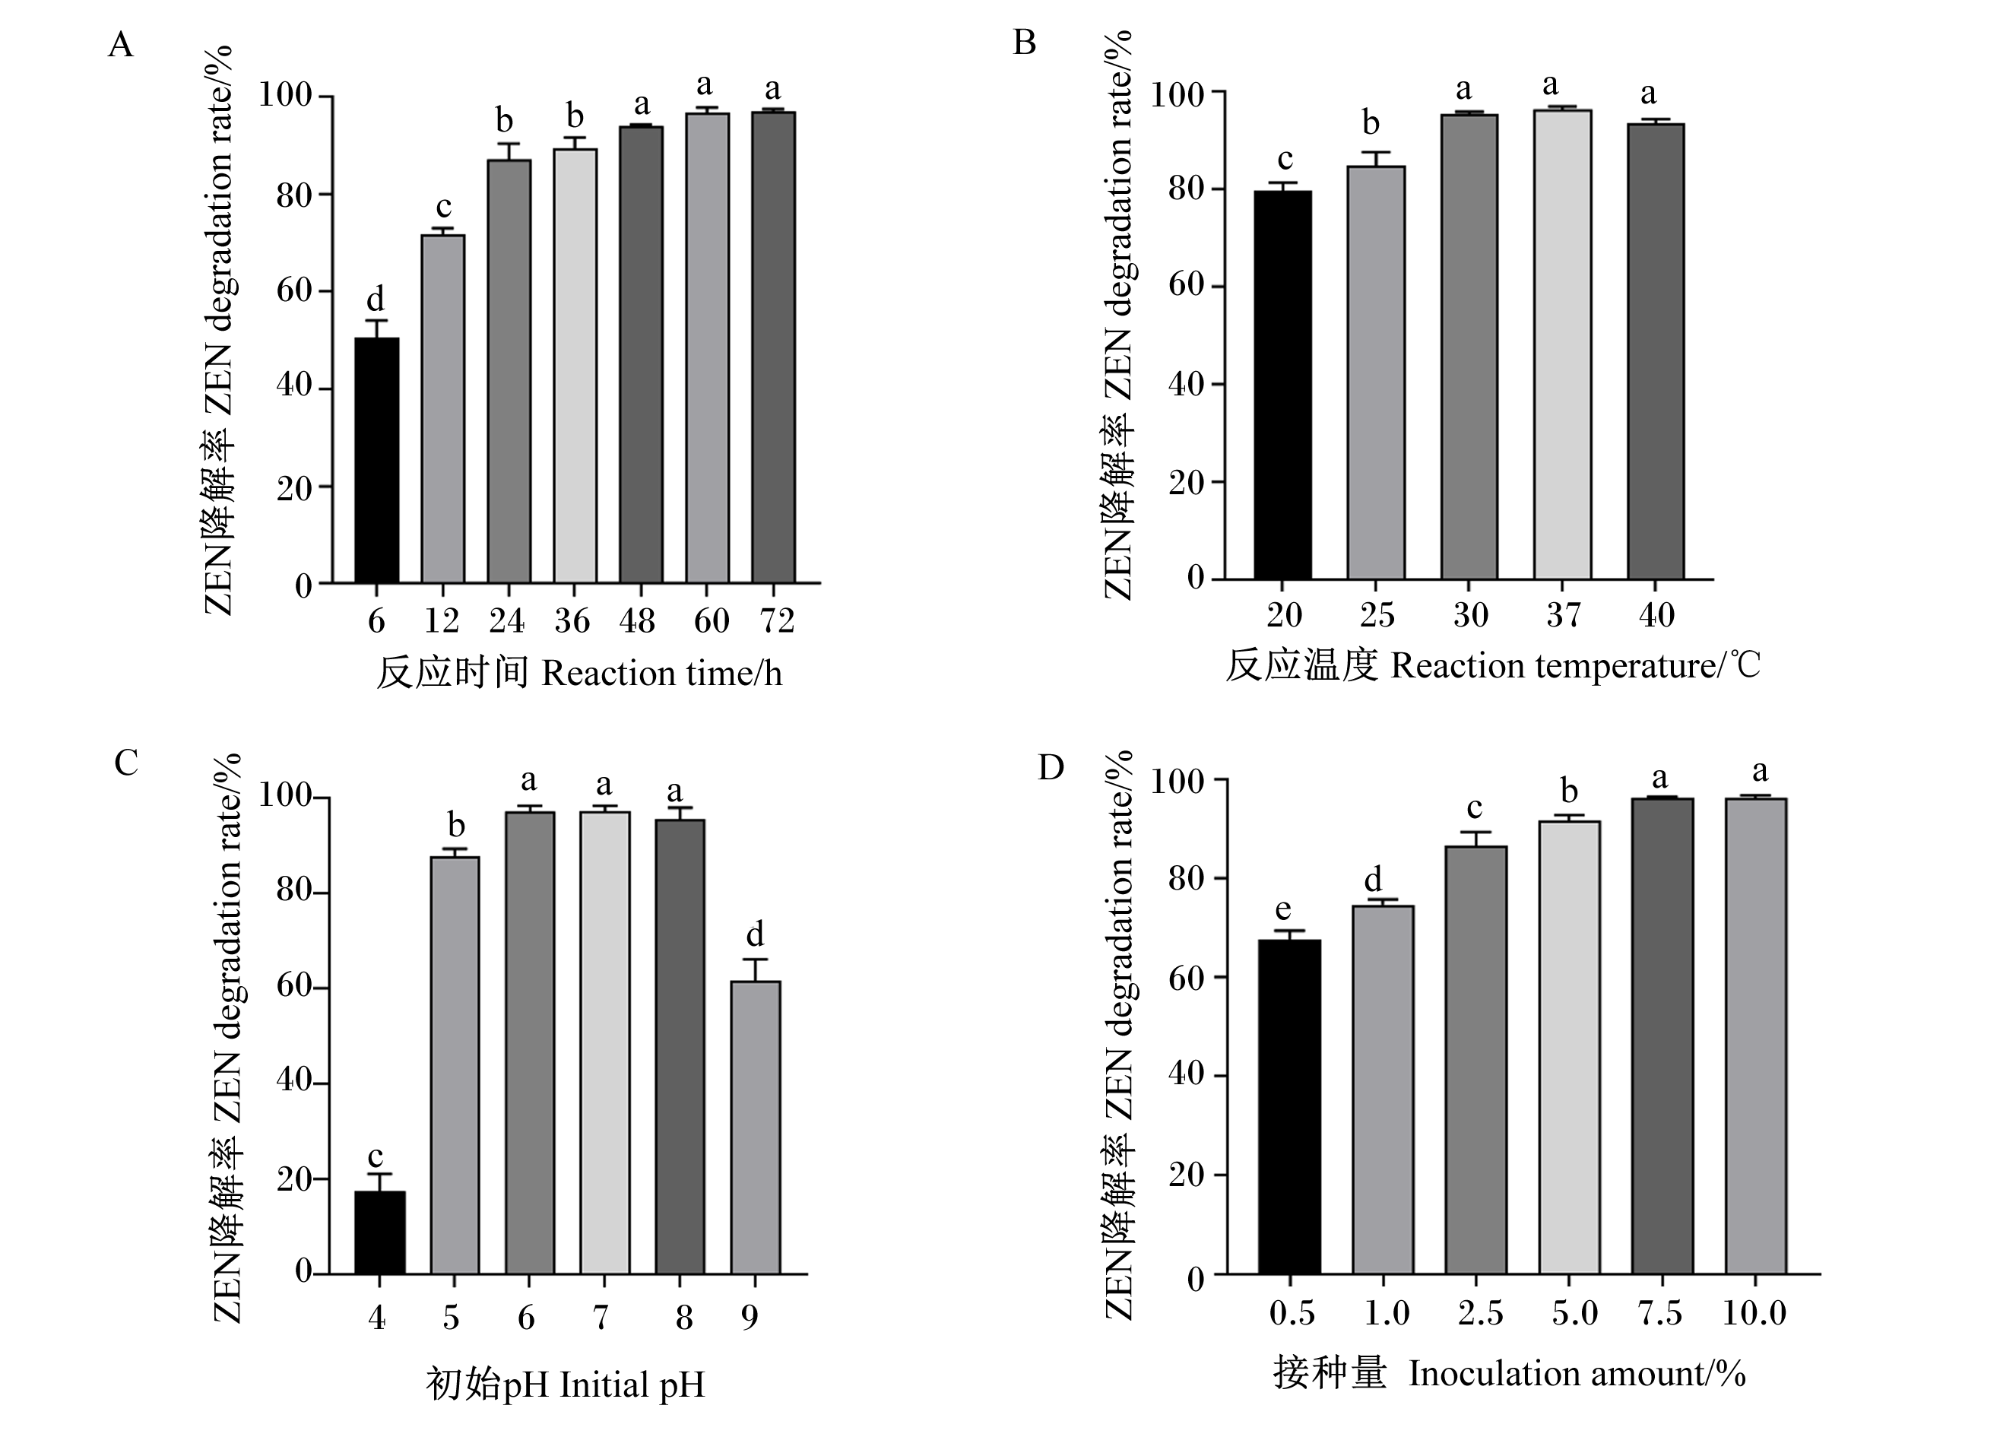
不同反应条件下菌株HD-R1对ZEN的降解效果如图5所示。ZEN降解率随反应时间的增加不断升高,24 h后趋于平缓,且稳定在80%以上,在72 h时ZEN降解率最高,可达到97.07%(图5-A)。菌株HD-R1在20~40 ℃区间时ZEN降解率较稳定且整体呈现出先升高后降低的趋势,37 ℃反应条件下ZEN降解率最高,为96.18%(图5-B)。在强酸及强碱环境下,菌株HD-R1对ZEN的降解率较低,在pH为5.0~7.0时,ZEN降解率逐渐升高,且pH为6.0与7.0条件下ZEN降解率相差不大,分别为97.10%、97.24%,pH为8.0时略有下降,为95.66%(图5-C)。菌株HD-R1对ZEN的降解率随菌液接种量的增加逐渐升高,但在接种量为5%~10%时ZEN降解率变化较缓慢,10%接种量时降解率最高,达96.41%(图5-D)。基于上述结果,可以认定菌株HD-R1的最适降解条件为:在37 ℃、初始pH 7.0的体系中,以10%的接种量降解72 h。
图5 菌株HD-R1的降解条件优化

A:反应时间对ZEN降解率的影响;B:反应温度对ZEN降解率的影响;C:初始pH对ZEN降解率的影响;D:接种量对ZEN降解率的影响。

Fig.5 Optimization of degradation conditions of strain HD-R1

A: effect of reaction time on ZEN degradation rate; B: effect of reaction temperature on ZEN degradation rate; C: effect of initial pH on ZEN degradation rate; D: effect of inoculation amount on ZEN degradation rate.

2.5 菌株HD-R1的降解活性物质分析

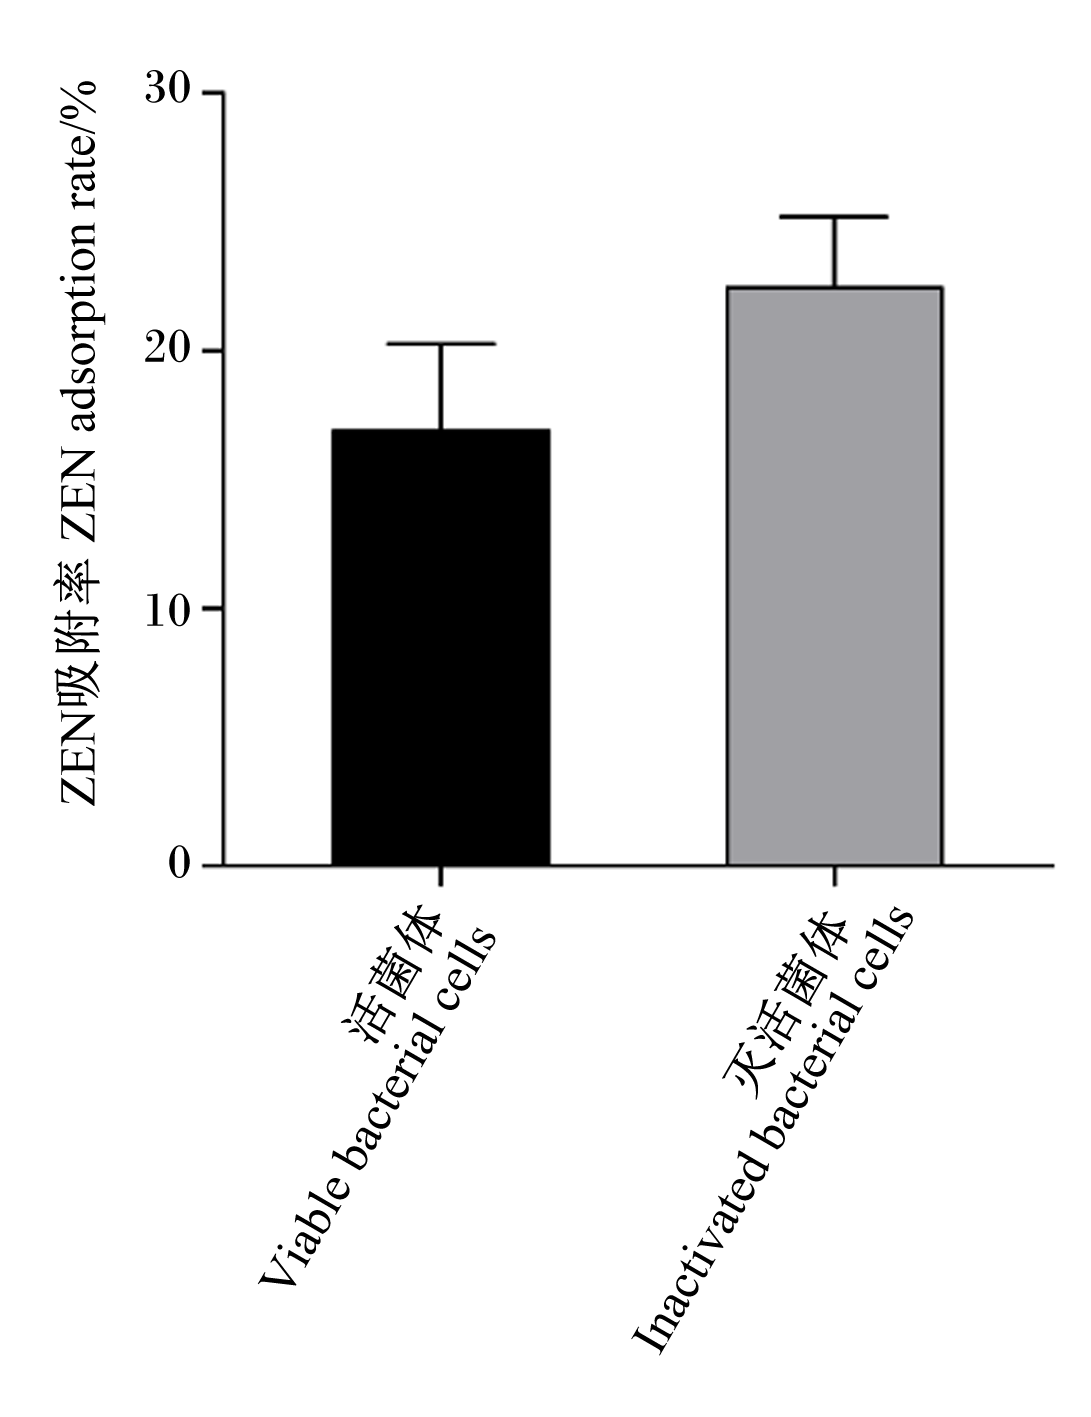
图6可知,菌株HD-R1的活菌体和灭活菌体对ZEN的吸附率分别为16.96%和22.53%,表明菌株HD-R1的活菌体和灭活菌对ZEN均具有一定的吸附作用。
图6 菌株HD-R1对ZEN的吸附率

Fig.6 Adsorption rate of ZEN by strain HD-R1

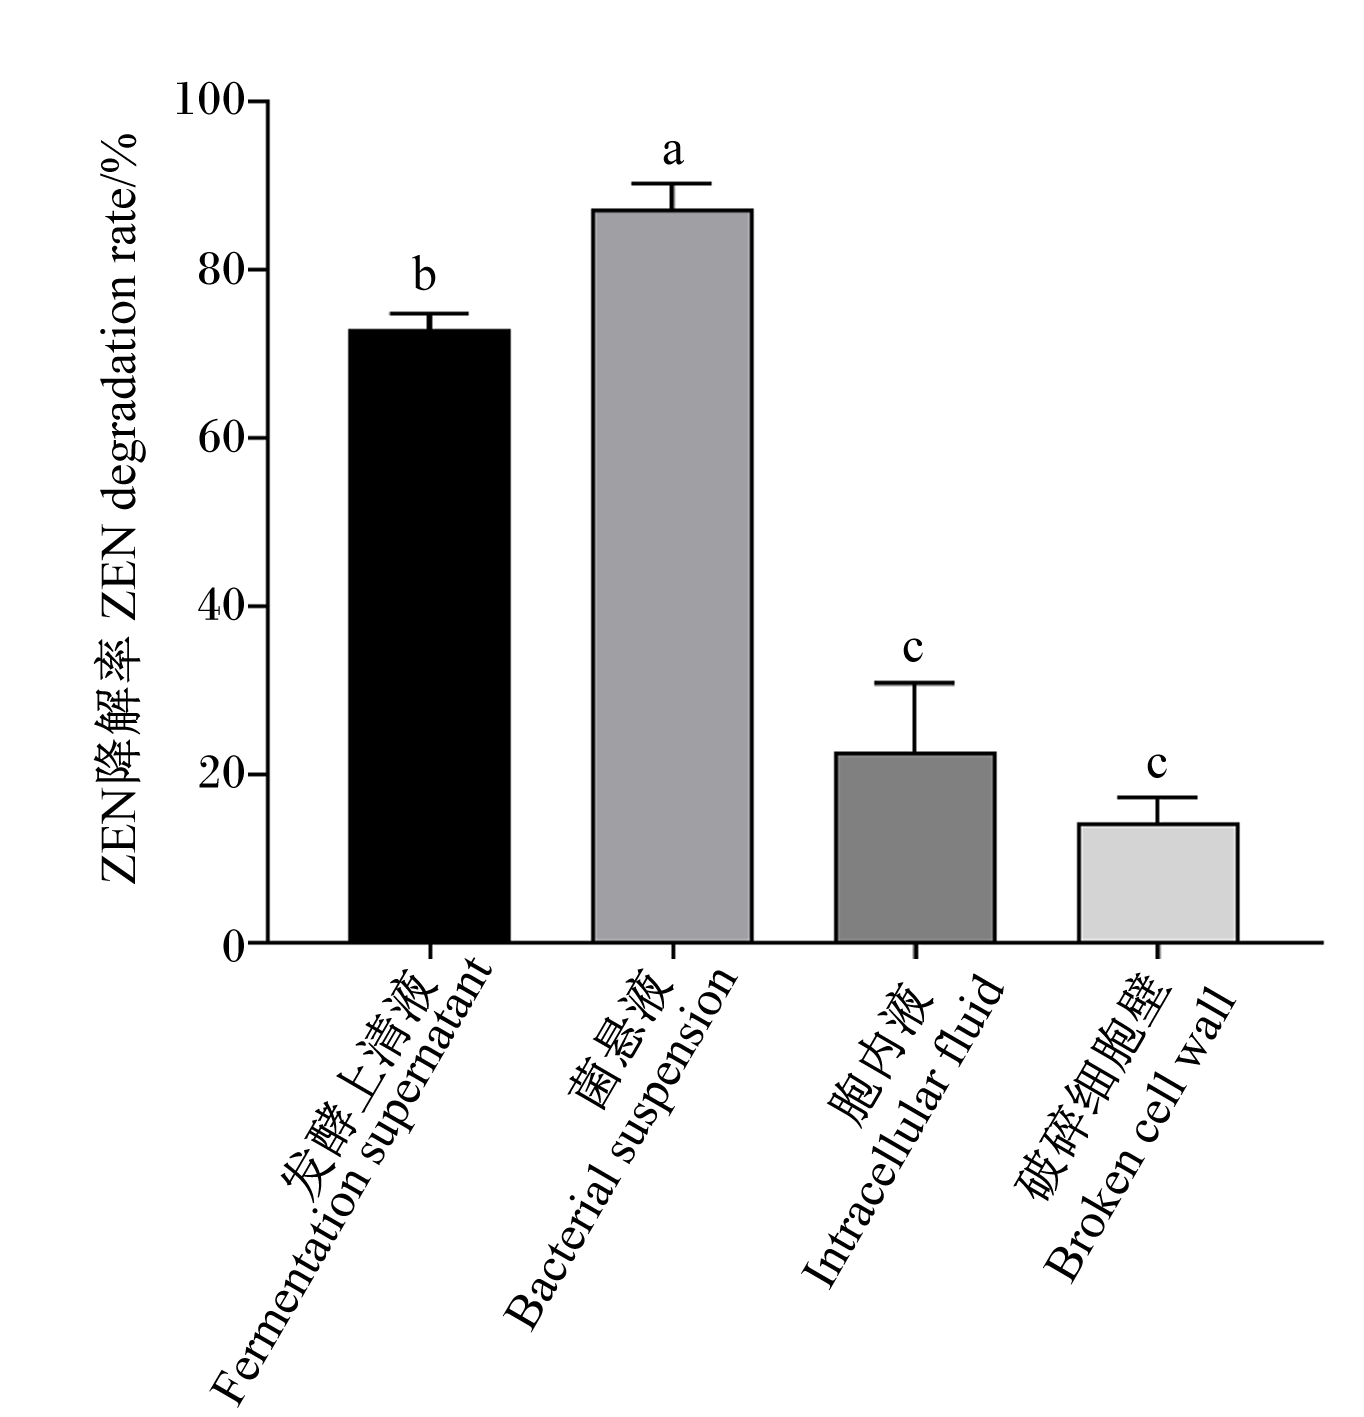
菌株HD-R1的不同组分与ZEN共培养24 h后的ZEN降解率如图7所示,其中,菌悬液的ZEN降解率最高,为87.27%,其次为发酵上清液,ZEN降解率73.05%,胞内液、破碎细胞壁的ZEN降解率分别为22.70%、14.31%,因此推测菌株HD-R1的降解活性物质主要存在于发酵上清液中。
图7 降解活性物质定位

Fig.7 Localization of active substances for degradation

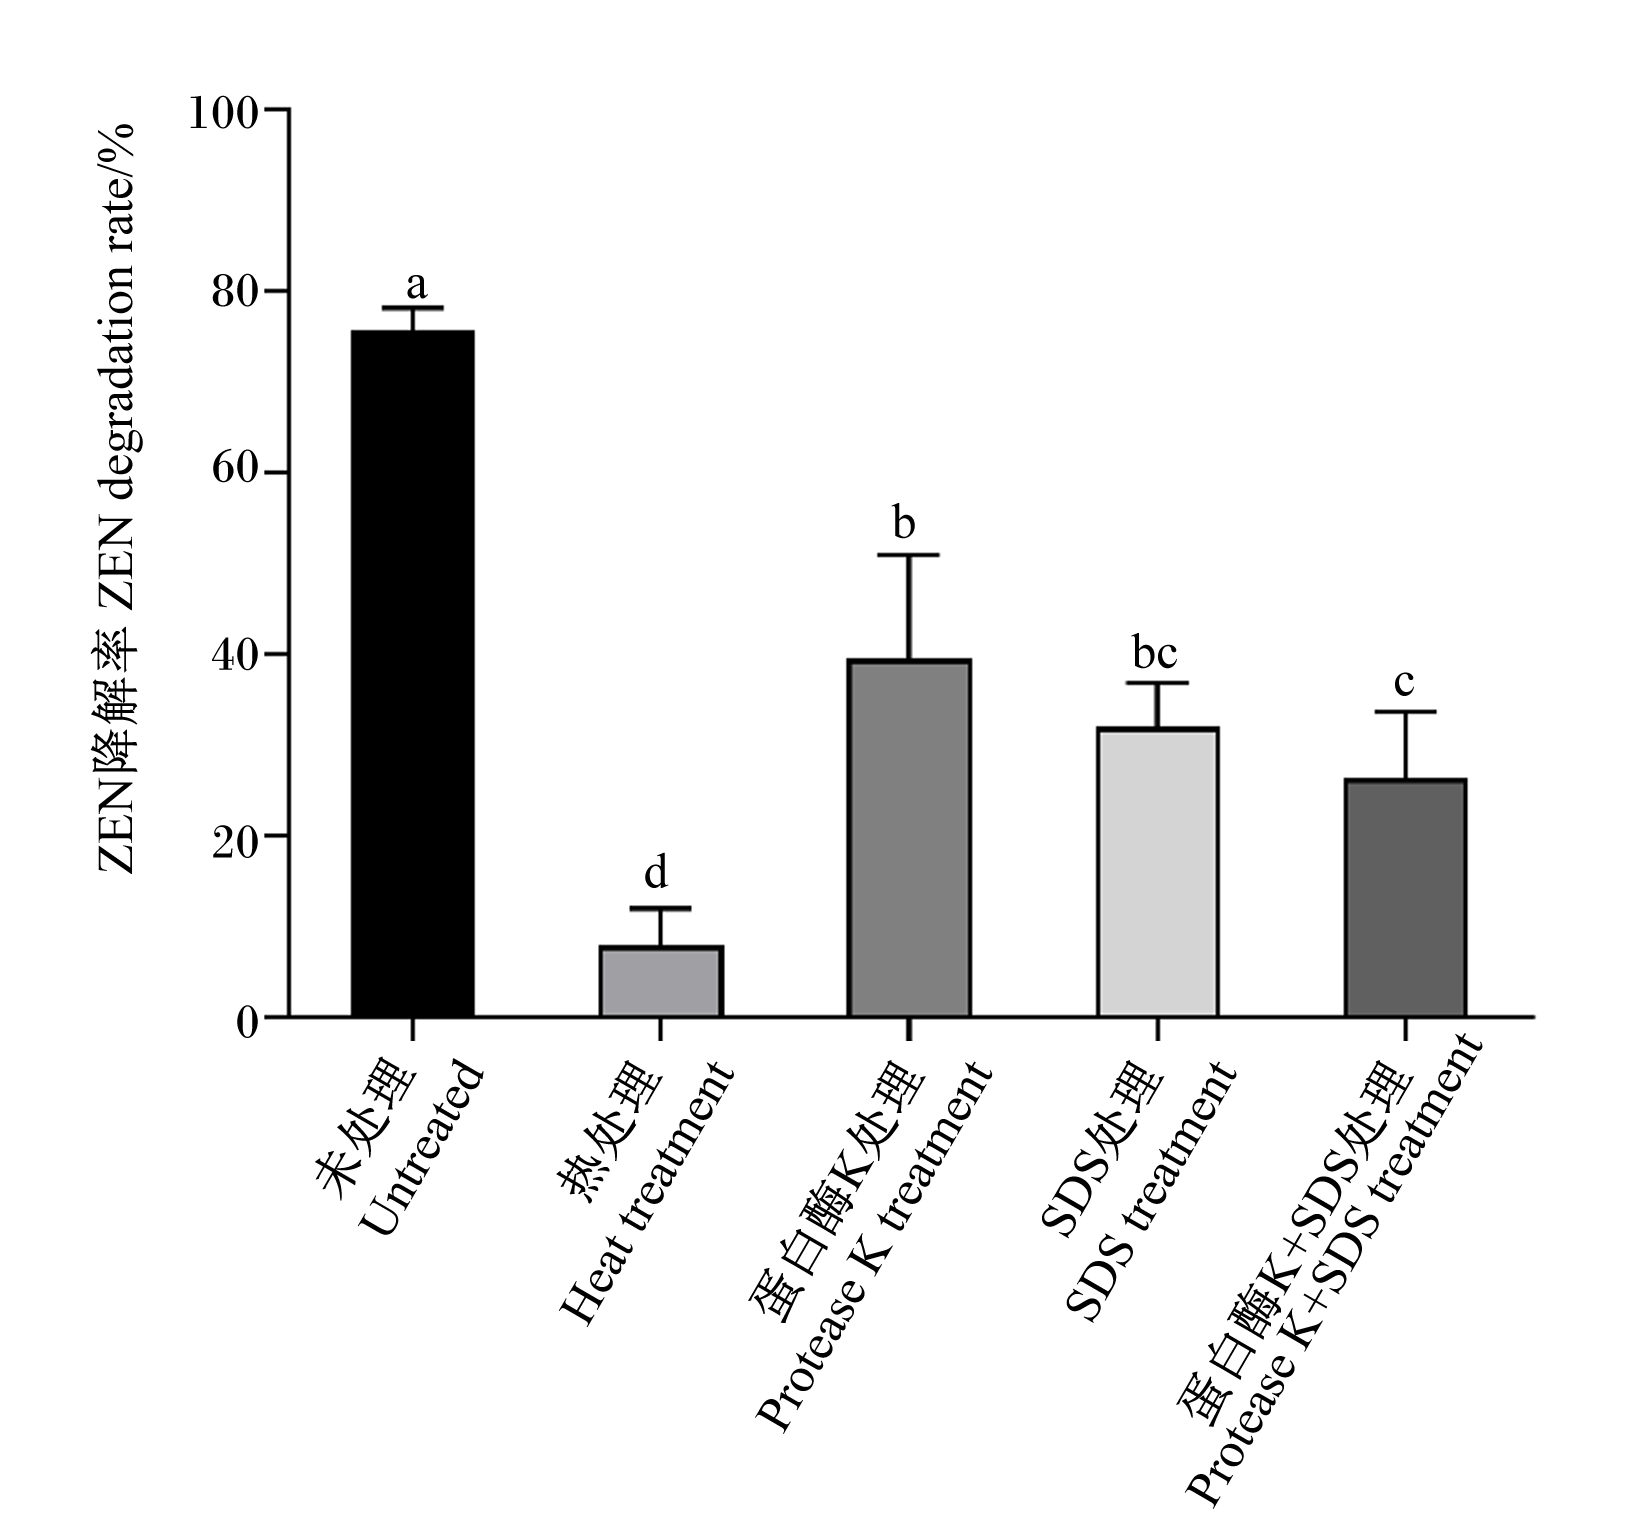
对菌株HD-R1的发酵上清液进行不同处理,反应结束后不同处理的ZEN降解率如图8所示。发酵上清液未做处理时ZEN降解率为75.79%,而经100 ℃热处理后的ZEN降解率显著下降(P<0.05),仅有7.99%;经蛋白酶K及SDS处理后的ZEN降解率也显著下降(P<0.05),蛋白酶K处理后ZEN降解率为39.52%,SDS处理后ZEN降解率为32.06%,蛋白酶K及SDS共同处理下ZEN降解率降至26.35%。由此推断,发酵上清液中发挥降解作用的活性物质主要是菌株HD-R1分泌的胞外酶。
图8 经不同处理后发酵上清液的ZEN降解率

Fig.8 ZEN degradation rate of fermentation supernatant after different treatments

由上述结果可知,菌株HD-R1降解ZEN是通过菌体吸附及胞外酶的共同作用来完成的,但起主要作用的是菌株分泌的胞外酶。

2.6 粗酶液中活性蛋白的分子质量

经检测,硫酸铵沉淀法提取的粗酶液蛋白浓度为1.42 mg/mL,通过SDS-PAGE测定粗酶液中蛋白的分子质量,结果如图9所示。降解活性物质主要集中在发酵上清液中,而提取的粗酶液及上清液组分均可在38、60、70 kDa处看到条带,此外提取的粗酶液也可看到其他分子质量大小的条带,推测可能是杂蛋白。由此推测,发挥降解作用的胞外酶的分子质量可能是38、60或70 kDa,菌株HD-R1对ZEN的降解可能是这3种分子质量的活性蛋白中的一种或多种发挥作用。
图9 粗酶液SDS-PAGE结果

M:蛋白Maker(10~180 kDa);1:粗酶液;2:发酵菌液;3:菌悬液;4:发酵上清液。

Fig.9 Results of SDS-PAGE of crude enzyme solution

M: protein Maker (10 to 180 kDa); 1: crude enzyme solution; 2: fermentation bacteria solution; 3: bacterial suspension; 4: fermentation supernatant.

2.7 粗酶液降解ZEN的动力曲线

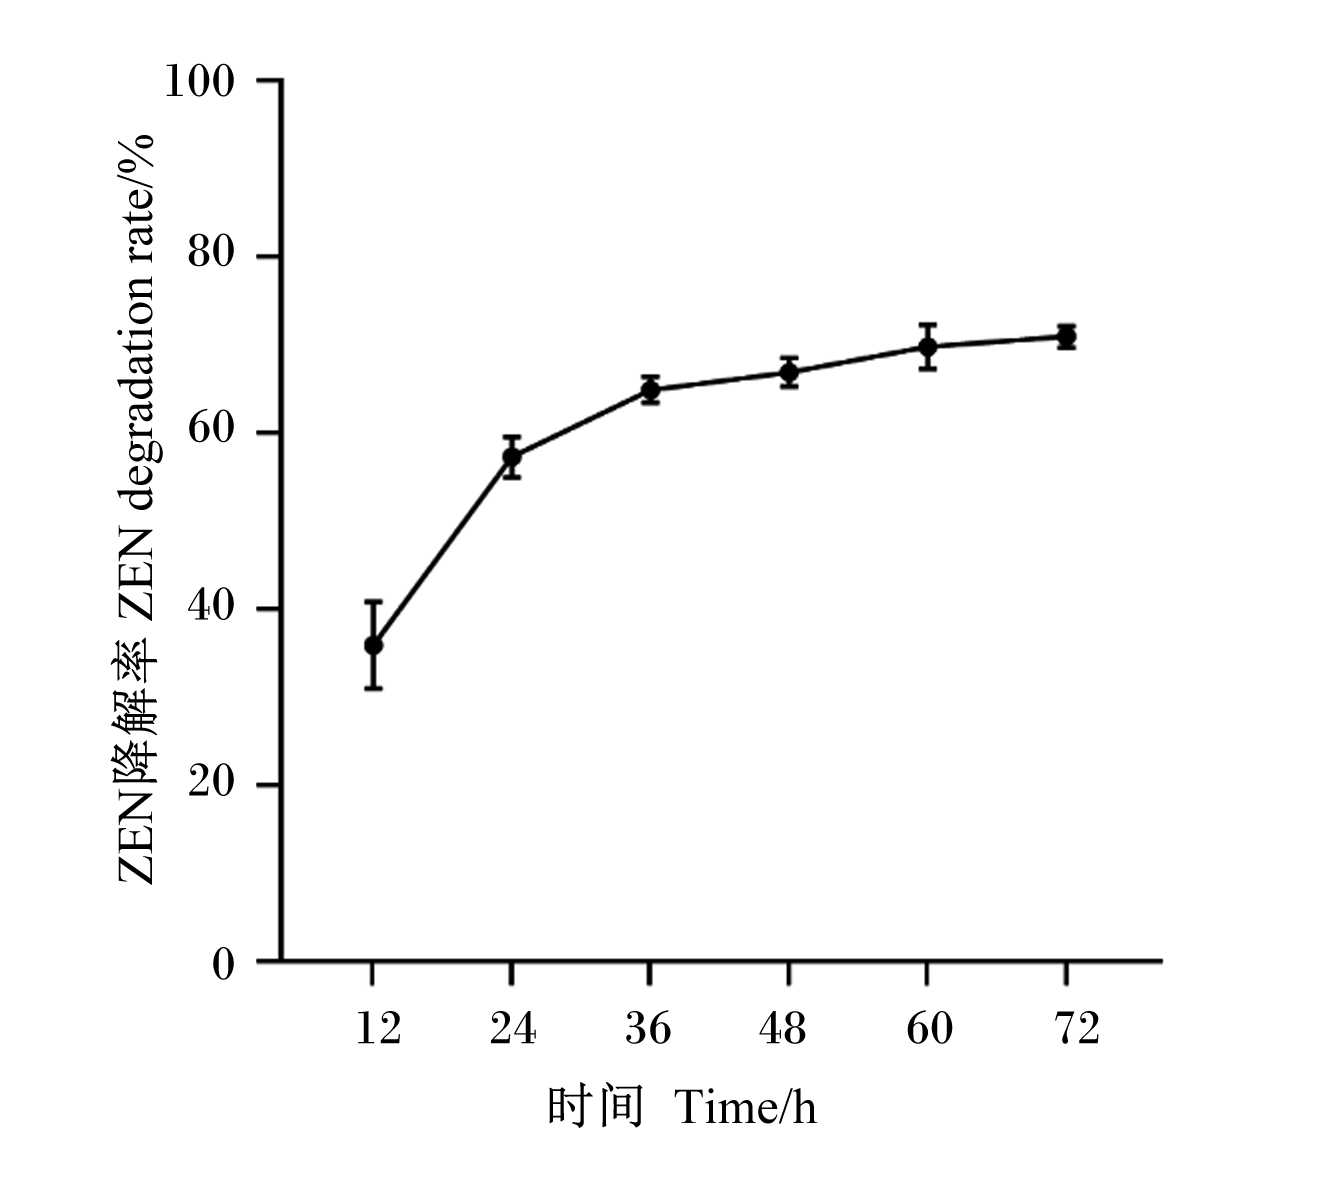
图10所示,通过硫酸铵沉淀法提取的粗酶液具有降解活性,且ZEN降解率随时间变化逐渐升高,反应36h后趋于平缓,并在72h后达到最高,此时ZEN降解率为71.03%。
图10 粗酶液降解ZEN的动力曲线

Fig.10 Kinetic curve of ZEN degradation by crude enzyme solution

2.8 菌株HD-R1对饲料中ZEN的脱除效果

不同饲料样本中的ZEN含量如表2所示,虽然不同饲料样本的染毒情况存在差异,但经菌株HD-R1发酵后的ZEN含量均显著降低(P<0.05)。经过72 h的发酵,菌株HD-R1对人工染毒玉米粉、豆粕粉及麸皮中ZEN的降解率分别达到44.10%、62.08%、76.32%。上述结果表明,菌株HD-R1对饲料中的ZEN具有良好的脱毒效果。
表2 不同饲料样本中的ZEN含量

Table 2 ZEN content in different feed samples

项目
Items
ZEN含量 ZEN content/(μg/kg) ZEN降解率
ZEN degradation
rate/%
不接种菌株HD-R1
Without inoculation of
strain HD-R1
菌株HD-R1发酵后
After fermentation by
strain HD-R1
玉米粉 Corn flour 1 175.38±173.69a 649.98±46.17b 44.10±6.97
豆粕粉 Soybean meal powder 713.93±44.94a 272.75±66.89b 62.08±6.87
麸皮 Wheat bran 898.49±58.29a 213.43±35.38b 76.32±2.96

对于ZEN含量数据,同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

For the ZEN content data, values in the same row with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05).

3 讨论

本试验从种植玉米的土壤中筛选出1株对ZEN(1 μg/mL)降解率为84.61%的菌株,编号HD-R1,鉴定为枯草芽孢杆菌。大量研究发现,芽孢杆菌属细菌可有效降解ZEN。例如,Orso等[24]通过探究样品中微生物的酯酶活性及ZEN的降解情况筛选出了贝莱斯芽孢杆菌CL197,其在作用24 h后对1 μg/mL ZEN的降解率为99%;Li等[25]筛选出的贝莱斯芽孢杆菌L9,对10 μg/mL ZEN的降解率可达到91.14%,其分泌的胞外酶是降解ZEN的关键;吴宗芮等[26]从发霉饲料中筛选出解淀粉芽孢杆菌G-6,对ZEN得降解率为81.19%,该菌株在玉米粉、豆粕粉及可溶性淀粉中发酵72 h后对ZEN能达到100%降解。环境中的微生物资源丰富,除芽孢杆菌属细菌外,还有研究发现耳炎假单胞菌[27]、鲁氏不动杆菌[28]、谷氨酸棒状杆菌[29]、多食鞘氨醇杆菌[30]等多种微生物均具有降解ZEN的能力。
本试验探究了不同条件对菌株HD-R1的生长及其对ZEN降解效果的影响,结果显示,菌株HD-R1的最适培养基为LB培养基,在LB培养基中的对数生长期为2~18 h,最适培养温度和初始pH分别为37 ℃和7.0。反应时间与ZEN的降解率呈正相关,反应72 h后菌株HD-R1对ZEN的降解率最高达到97.07%。菌株HD-R1具有较稳定的降解温度及pH,当温度范围在25~40 ℃及pH范围在5.0~8.0时,ZEN降解率均可稳定在80%以上。相同培养时间下,菌株HD-R1对ZEN的降解率随接种量的增加逐渐升高,但当接种量达到5%及以上时,ZEN降解率增长幅度变缓,推测接种量达到5%以后菌株处理ZEN的量达到饱和。
为了确认菌株HD-R1的菌体是否具有吸附作用,本试验采用甲醇萃取法,对与ZEN共培养24 h后的活菌体及灭活菌体进行处理,以检测其中吸附的ZEN含量。该方法曾被段锦等[15]用于证实解淀粉芽孢杆菌NA-J21及枯草芽孢杆菌MLS-H31的细胞壁对ZEN具有吸附能力。在此基础上,本研究进一步通过比较菌株HD-R1发酵上清液、菌悬液、胞内液及破碎细胞壁等不同组分对ZEN的降解效果,对其降解活性物质进行了定位分析。类似地,邓凤如等[31]在研究贝莱斯芽孢杆菌PA26-7的活性成分时,亦分别测定了发酵上清液、菌体及胞内容物对ZEN的降解率,最终确定其主要降解活性物质存在于发酵上清液中。本试验结果显示,菌悬液对ZEN的降解率最高,达到87.27%,其次是发酵上清液,ZEN降解率为73.05%,胞内液及破碎细胞壁的ZEN降解率均低于发酵上清液。由此推测,菌株HD-R1的降解活性物质主要分布于发酵上清液中,可能为其分泌至胞外的酶类;同时,吸附试验结果显示,活菌体及灭活菌体对ZEN的吸附率分别为16.96%和22.53%,表明菌体对ZEN具有一定的吸附作用。
本试验中,菌悬液对ZEN的降解率高于发酵上清液,推测其原因可能为:在无菌PBS中,菌株HD-R1的细胞壁在发挥吸附作用的同时,ZEN的刺激诱导细菌分泌胞外酶,从而进一步增强了对ZEN的降解。高温处理可使酶变性失活,而蛋白酶K及SDS可破坏蛋白质结构,从而降低酶活性。试验结果显示,发酵上清液经上述不同处理后,其对ZEN的降解率均显著下降,进一步佐证了降解活性物质的酶学属性。综上所述,菌株HD-R1对ZEN的脱除是通过菌体吸附与胞外酶降解协同实现的,其中胞外酶起主导作用。
大量研究表明,微生物对霉菌毒素的降解主要依赖于酶的作用。Yang等[32]筛选出1株可降解ZEN的枯草芽孢杆菌Y816,通过转录组分析鉴定出其胞内存在ZEN磷酸转移酶(ZPH)。Sun等[33]从地衣芽孢杆菌ZOM-1中克隆得到CotA漆酶,该酶的最适反应条件为80 ℃、pH 9.0;80 μg纯化后的CotA漆酶对黄曲霉毒素B1(AFB1)和ZEN的降解率分别达到90.32%和98.58%,且其降解产物对人胃黏膜上皮细胞(GES-1)的毒性显著低于原毒素。魏单平等[34]从兔粪便中分离出的解淀粉芽孢杆菌H6,其降解活性物质被证实为存在于发酵上清液中的胞外酶。随后,Xu等[35]对菌株H6的降解机制进行了深入研究,发现由BAMF_RS30125基因编码的辅酶A硫酯酶可通过破坏ZEN的内酯环或内酯键,将其降解为无毒性产物。本试验采用硫酸铵沉淀法从菌株HD-R1发酵上清液中提取粗酶液,该粗酶液在反应72 h后对ZEN的降解率达到71.03%,进一步证实了胞外酶在ZEN降解中的关键作用。SDS-PAGE分析显示,该粗酶液在38、60和70 kDa处均出现明显的蛋白条带。据此推测,参与ZEN降解的酶可能为上述分子质量中的某一种或多种蛋白。上述研究结果为后续深入挖掘菌株HD-R1中ZEN降解酶的相关基因提供了重要参考。
Ju等[36]采用固态发酵技术,探究了枯草芽孢杆菌168及纳豆芽孢杆菌CICC24640对大豆、小麦及玉米粉中ZEN的脱除效果,结果表明,枯草芽孢杆菌168对玉米粉中ZEN的降解效果最佳,达到75%;纳豆芽孢杆菌CICC24640则可降解大豆中70%的ZEN。Chang等[37]将莫哈韦芽孢杆菌L-4接种至ZEN污染的玉米粉中,经5 d发酵培养后,莫哈韦芽孢杆菌L-4对ZEN的降解率达49.41%。本研究进一步探究了菌株HD-R1对不同饲料中对ZEN的降解能力,结果显示,菌株HD-R1对麸皮中ZEN的降解率最高,达76.32%;其次为豆粕粉,ZEN降解率为62.08%;而对玉米粉中ZEN的降解率相对较低,为44.10%。上述结果表明,菌株HD-R1在不同饲料中均表现出一定的ZEN降解能力,具有作为饲料发酵脱毒菌株的潜力。

4 结论

本研究筛选获得1株具有ZEN降解能力的菌株HD-R1,经鉴定为枯草芽孢杆菌。该菌株的最适生长条件为LB培养基、37 ℃、初始pH 7.0,且在较宽的温度和pH范围内表现出稳定的ZEN降解活性。其降解ZEN的主要活性物质为定位于发酵上清液中的胞外酶;通过硫酸铵沉淀法提取粗酶液,经SDS-PAGE初步推测胞外酶的分子质量可能为38、60或70 kDa。将菌株HD-R1分别应用于ZEN污染的玉米粉、豆粕粉及麸皮中,其对ZEN的降解率分别达到44.10%、62.08%和76.32%。上述结果表明,菌株HD-R1在饲料ZEN脱毒方面具有良好的应用潜力。
[1]
GRUBER-DORNINGER C, JENKINS T, SCHATZMAYR G. Global mycotoxin occurrence in feed:a ten-year survey[J]. Toxins, 2019, 11(7):375.

DOI

[2]
ROPEJKO K, TWARUŻEK M. Zearalenone and its metabolites general—overview,occurrence,and toxicity[J]. Toxins, 2021, 13(1):35.

DOI

[3]
STOB M, BALDWIN R S, TUITE J, et al. Isolation of an anabolic,uterotrophic compound from corn infected with Gibberella zeae[J]. Nature, 1962, 196(4861):1318.

[4]
URRY W H, WEHRMEISTER H L, HODGE E B, et al. The structure of zearalenone[J]. Tetrahedron Letters, 1966, 7(27):3109-3114.

DOI

[5]
中华人民共和国国家卫生和计划生育委员会, 国家食品药品监督管理总局. 食品安全国家标准食品中真菌毒素限量:GB2761—2017[S]. 北京: 中国标准出版社, 2017.

National Health and Family Planning Commission of People’s Republic of China,State Food and Drug Administration. National standards for food safety—limits of mycotoxins in foods:GB2761—2017[S]. Beijing: Standards Press of China, 2017. (in Chinese)

[6]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料卫生标准:GB13078—2017[S]. 北京: 中国标准出版社, 2017.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China,National Standardization Administration. Hygienical standard for foods:GB 13078—2017[S]. Beijing: Standards Press of China, 2017. (in Chinese)

[7]
ROGOWSKA A, POMASTOWSKI P, SAGANDYKOVA G, et al. Zearalenone and its metabolites:effect on human health,metabolism and neutralisation methods[J]. Toxicon, 2019, 162:46-56.

DOI

[8]
BULGARU C V, MARIN D E, PISTOL G C, et al. Zearalenone and the immune response[J]. Toxins, 2021, 13(4):248.

DOI

[9]
WU F Y, CUI J, YANG X Y, et al. Effects of zearalenone on liver development,antioxidant capacity and inflammatory factors of prepubertal gilts[J]. Journal of Animal Physiology and Animal Nutrition, 2022, 106(4):832-840.

DOI

[10]
李樵锋, 张伟伦, 罗颖, 等. 玉米赤霉烯酮对蛋鸡肝脏损伤作用的研究[J]. 黑龙江畜牧兽医, 2021(11):92-95,153.

LI Q F, ZHANG W L, LUO Y, et al. Study on the effect of zearalenone on liver damage in laying hens[J]. Heilongjiang Animal Science and Veterinary Medicine, 2021(11):92-95,153. (in Chinese)

[11]
KRSTOVIĆ S, KRULJ J, JAKŠIĆ S, et al. Ozone as decontaminating agent for ground corn containing deoxynivalenol,zearalenone,and ochratoxin A[J]. Cereal Chemistry, 2021, 98(1):135-143.

DOI

[12]
WU Y T, WU F N, ZHAO P, et al. Isolation and mechanistic investigation of the efficient zearalenone-removing strain Bacillus licheniformis YJ25[J]. Toxins, 2025, 17(6):263.

DOI

[13]
MOEBUS V F, DE ASSUNÇÃO PINTO L, KÖPTCKE F B N, et al. In vitro mycotoxin decontamination by Saccharomyces cerevisiae strains isolated from bovine forage[J]. Fermentation, 2023, 9(7):585.

DOI

[14]
MURTAZA B, JIN B W, WANG L L, et al. Mitigation of zearalenone in vitro using probiotic strains[J]. LWT, 2023, 186:115265.

DOI

[15]
段锦, 丁轲, 余祖华, 等. 玉米赤霉烯酮降解菌株的筛选及降解特性研究[J]. 动物营养学报, 2021, 33(9):5266-5276.

DOI

DUAN J, DING K, YU Z H, et al. Screening and degradation characteristics of strains degrading zearalenone[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):5266-5276. (in Chinese)

[16]
FENG J T, DU X Y, ZHANG Y Y, et al. Isolation and characterization of Bacillus velezensis YM1 and its mechanism for zearalenone degradation[J]. LWT, 2025, 224:117810.

DOI

[17]
陈昌翠, 王乾支, 孙洋洋, 等. 一株玉米赤霉烯酮降解菌的筛选及其降解特性[J]. 微生物学报, 2025, 65(3):1266-1282.

CHEN C C, WANG Q Z, SUN Y Y, et al. Screening and degradation characterization of a zearalenone-degrading strain[J]. Acta Microbiologica Sinica, 2025, 65(3):1266-1282. (in Chinese)

[18]
TAKAHASHI-ANDO N, KIMURA M, KAKEYA H, et al. A novel lactonohydrolase responsible for the detoxification of zearalenone:enzyme purification and gene cloning[J]. The Biochemical Journal, 2002, 365(Pt 1):1-6.

[19]
WANG Z X, LUO F F, JIANG S J, et al. Biochemical characterization and molecular modification of a zearalenone hydrolyzing enzyme Zhd11D from Phialophora attinorum[J]. Enzyme and Microbial Technology, 2023, 170:110286.

DOI

[20]
LIU X L, WANG Y N, FANG X, et al. Characteristics of a novel zearalenone lactone hydrolase ZHRnZ and its thermostability modification[J]. International Journal of Molecular Sciences, 2024, 25(17):9665.

DOI

[21]
WANG X L, BAI Y G, HUANG H Q, et al. Degradation of aflatoxin B1 and zearalenone by bacterial and fungal laccases in presence of structurally defined chemicals and complex natural mediators[J]. Toxins, 2019, 11(10):609.

DOI

[22]
YU Y S, WU H, TANG Y Q, et al., Cloning,expression of a peroxiredoxin gene from Acinetobacter sp. SM04 and characterization of its recombinant protein for zearalenone detoxification[J]. Microbiological Research, 2012, 167(3):121-126.

DOI

[23]
陈毅保. 黄曲霉毒素B1降解菌的筛选及其脱毒机理研究[D].硕士学位论文. 郑州: 河南工业大学, 2023.

CHEN Y B. Screening and detoxification mechanism of aflatoxin B1 degrading bacteria[D].Master’s Thesis. Zhengzhou: Henan University of Technology, 2023. (in Chinese)

[24]
ORSO P B, EVANGELISTA A G, DE MELO NAZARETH T, et al. Bacillus velezensis CL197:a zearalenone detoxifying strain isolated from wheat with potential to be used in animal production[J]. Veterinary Research Communications, 2024, 48(6):3847-3857.

DOI

[25]
LI Y J, CHEN S B, YU Z H, et al. A novel Bacillus velezensis for efficient degradation of zearalenone[J]. Foods, 2024, 13(4):530.

DOI

[26]
吴宗芮, 丁轲, 余祖华, 等. 降解玉米赤霉烯酮菌株的筛选、降解机制及特性研究[J]. 中国粮油学报, 2022, 37(9):27-33.

WU Z R, DING K, YU Z H, et al., Screening,degradation mechanism and characteristics of strains degrading zearalenone[J]. Journal of the Chinese Cereals and Oils Association, 2022, 37(9):27-33. (in Chinese)

[27]
TAN H, ZHANG Z M, HU Y C, et al. Isolation and characterization of Pseudomonas otitidis TH-N1 capable of degrading zearalenone[J]. Food Control, 2015, 47:285-290.

DOI

[28]
刘晨, 谢岩黎, 曹荣耀, 等. 玉米赤霉烯酮降解菌的筛选、鉴定及降解酶初步提取[J]. 现代食品科技, 2022, 38(8):73-79.

LIU C, XIE Y L, CAO R Y, et al. Screening and identification of zearalenone degrading bacteria and preliminary extraction of zearalenone degrading enzyme[J]. Modern Food Science and Technology, 2022, 38(8):73-79. (in Chinese)

[29]
唐彧, 张琼琼, 郭永鹏, 等. 一株同时降解玉米赤霉烯酮和黄曲霉毒素B1的谷氨酸棒状杆菌及其降解特性研究[J]. 饲料工业, 2019, 40(20):34-39.

TANG Y, ZHANG Q Q, GUO Y P, et al. Isolation of a Corynebacterium glutamate capable of degrading of ZEN and AFB1,and investigation of its degrading characteristics[J]. Feed Industry, 2019, 40(20):34-39. (in Chinese)

[30]
金博文, 徐长春, 李根, 等. 玉米赤霉烯酮降解菌的分离、鉴定及其适宜降解条件的研究[J]. 中国畜牧兽医, 2020, 47(9):2808-2815.

DOI

JIN B W, XU C C, LI G, et al. Isolation,identification and its suitable degradation conditions of a zearalenone-degrading bacteria[J]. China Animal Husbandry & Veterinary Medicine, 2020, 47(9):2808-2815. (in Chinese)

[31]
邓凤如, 陈嘉杭, 贾淑卉, 等. 玉米赤霉烯酮脱毒菌PA26-7的分离鉴定及其应用效果评价[J]. 微生物学通报, 2023, 50(8):3404-3416.

DENG F R, CHEN J H, JIA S H, et al. Screening and performance evaluation of a zearalenone-degrading bacterial isolate PA26-7[J]. Microbiology China, 2023, 50(8):3404-3416. (in Chinese)

[32]
YANG S B, ZHENG H C, XU J Y, et al. New biotransformation mode of zearalenone identified in Bacillus subtilis Y816 revealing a novel ZEN conjugate[J]. Journal of Agricultural and Food Chemistry, 2021, 69(26):7409-7419.

DOI

[33]
SUN F, YU D Z, ZHOU H Y, et al. CotA laccase from Bacillus licheniformis ZOM-1 effectively degrades zearalenone,aflatoxin B1 and alternariol[J]. Food Control, 2023, 145:109472.

DOI

[34]
魏单平, 刘玉洁, 孙向丽, 等. 玉米赤霉烯酮降解菌的筛选及其活性检测[J]. 畜牧兽医学报, 2017, 48(4):761-768.

WEI D P, LIU Y J, SUN X L, et al. Screening and activity detection of a bacterial strain degrading zearalenone[J]. Acta Veterinaria et Zootechnica Sinica, 2017, 48(4):761-768. (in Chinese)

DOI

[35]
XU L P, SUN X L, WAN X H, et al. Identification of a Bacillus amyloliquefaciens H6 thioesterase involved in zearalenone detoxification by transcriptomic analysis[J]. Journal of Agricultural and Food Chemistry, 2020, 68(37):10071-10080.

DOI

[36]
JU J, TINYIRO S E, YAO W R, et al. The ability of Bacillus subtilis and Bacillus natto to degrade zearalenone and its application in food[J]. Journal of Food Processing and Preservation, 2019, 43(10):e14122.

[37]
CHANG J G, DONG W X, GAO S S, et al. Biodegradation of ZEN by Bacillus mojavensis L-4:analysis of degradation conditions,products,degrading enzymes,and whole-genome sequencing,and its application in semi-solid-state fermentation of contaminated cornmeal[J]. Frontiers in Microbiology, 2025, 16:1512781.

DOI

文章导航

/