综述

亮氨酸代谢及G蛋白偶联受体介导其重编程调控骨骼肌纤维类型转化的研究进展

  • 邢敬亚 , 1 ,
  • 芒来 2 ,
  • 贾明泉 1 ,
  • 李光玉 , 1, *
展开
  • 1 青岛农业大学动物科技学院, 青岛 266000
  • 2 内蒙古农业大学动物科学学院, 内蒙古自治区马属动物遗传育种与繁殖学重点实验室, 内蒙古农业大学马属动物研究中心, 呼和浩特 010018
*李光玉,教授,博士生导师,E-mail:

邢敬亚(1988—),女,山东临清人,讲师,博士,主要从事特种经济动物营养与饲料科学研究。E-mail:

Office editor: 陈燕

收稿日期: 2026-03-20

  网络出版日期: 2026-08-13

基金资助

国家重点研发计划(2024YFD1300500)

山东省自然科学基金(ZR2024QC125)

山东省特种经济动物产业技术体系(SDARS-21)

Research Progress on Leucine Metabolism and G Protein-Coupled Receptor-Mediated Metabolic Reprogramming in Regulating Skeletal Muscle Fiber Type Transformation

  • XING Jingya , 1 ,
  • MANG Lai 2 ,
  • JIA Mingquan 1 ,
  • LI Guangyu , 1, *
Expand
  • 1 College of Animal Science and Technology, Qingdao Agricultural University, Qingdao 266000, China
  • 2 Equine Research Center of Inner Mongolia Agricultural University, Inner Mongolia Key Laboratory of Equine Genetics, Breeding and Reproduction, College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
*professor, E-mail:

Received date: 2026-03-20

  Online published: 2026-08-13

摘要

骨骼肌纤维类型转化是骨骼肌对营养供给、运动负荷及代谢微环境变化产生的关键适应性反应,其过程通常伴随着能量代谢特征与收缩功能的协同调整。亮氨酸作为关键的支链氨基酸,除作为蛋白质合成底物外,近年来被视为重要的代谢信号分子,可通过特定的G蛋白偶联受体(GPCRs)介导细胞内信号转导过程。现有研究表明,部分GPCRs能够感知胞外亮氨酸及其代谢相关信号,并激活钙依赖性信号通路、能量感知轴及相关转录调控网络,从而参与骨骼肌细胞代谢调节过程。因此,从机制上推测,GPCRs介导的亮氨酸信号转导可能通过影响细胞代谢状态及转录调控网络,在骨骼肌纤维类型转化过程中发挥潜在作用。此外,亮氨酸及其代谢物在信号调控、蛋白质合成与降解平衡等方面具有多重生物学功能,可能共同参与“营养信号-代谢网络-表型表达”之间的耦联调控。本文综述了亮氨酸的代谢过程及其在骨骼肌纤维类型转化过程中的相关信号转导通路,总结了近年来GPCRs介导的亮氨酸感知信号在代谢通路与转录调控网络中的作用,并进一步探讨其在骨骼肌纤维类型转化中的潜在作用,同时对当前研究中存在的关键科学问题及未来发展方向进行了分析,以期为运动营养干预、畜禽肌肉发育及肉品质改良提供理论依据。

本文引用格式

邢敬亚 , 芒来 , 贾明泉 , 李光玉 . 亮氨酸代谢及G蛋白偶联受体介导其重编程调控骨骼肌纤维类型转化的研究进展[J]. 动物营养学报, 2026 , 38(8) : 5543 -5551 . DOI: 10.12418/CJAN2026.442

Abstract

Skeletal muscle fiber type transformation represents an important adaptive response of skeletal muscle to changes in nutrient availability, exercise load and metabolic microenvironment, and is typically accompanied by coordinated adjustments in energy metabolism characteristics and contractile function. Leucine, as a key branched-chain amino acid, not only serves as a substrate for protein synthesis but has also been increasingly recognized as an important metabolic signaling molecule that can mediate intracellular signal transduction through specific G protein-coupled receptors (GPCRs). Current studies indicate that certain GPCRs can sense extracellular leucine and its related metabolic signals, thereby activating calcium-dependent signaling pathways, energy-sensing axes, and associated transcriptional regulatory networks, and participating in the regulation of skeletal muscle cellular metabolism. Therefore, it is mechanistically plausible that GPCR-mediated leucine signaling may influence the cellular metabolic state and transcriptional regulatory networks, thereby playing a potential role in skeletal muscle fiber type transformation. In addition, leucine and its metabolites exert multiple biological functions in signal regulation, protein synthesis, and degradation balance, and may collectively participate in the coupling regulation among “nutrient signaling, metabolic networks and phenotypic expression”. This review summarized the metabolic processes of leucine and the related signal transduction pathways involved in skeletal muscle fiber type transformation, outlined recent advances in the role of GPCR-mediated leucine sensing in metabolic pathways and transcriptional regulatory networks, and further explored its potential involvement in skeletal muscle fiber type transformation. Additionally, key scientific questions as well as future research directions were highlighted, with the aim of providing a theoretical basis for exercise nutrition interventions, muscle development in livestock and meat quality improvement.

骨骼肌是一种高度异质性的组织,由来源于体节的多核肌纤维构成,其功能特性取决于肌纤维类型组成及其代谢特征[1]。依据肌球蛋白重链(myosin heavy chain,MyHC)同工型的表达谱,肌纤维通常分为Ⅰ型、Ⅱa型、Ⅱx型和Ⅱb型,并可进一步根据代谢特征划分为氧化型与糖酵解型。在骨骼肌中,Ⅰ型肌纤维通常表现为较慢的收缩动力学特性,并具有较高的氧化代谢能力(即慢收缩氧化型);相比之下,Ⅱb型肌纤维特性与Ⅰ型肌纤维相反,表现为较快的收缩动力学特性,具有较高的糖酵解代谢能力(即快收缩糖酵解型)。Ⅱx型肌纤维与Ⅱb型肌纤维特性相似,但是Ⅱx型收缩速率更慢、氧化代谢能力略高,Ⅱa型肌纤维特性介于Ⅰ型和Ⅱx型之间[2]。不同类型肌纤维在收缩速度、耐力及能量代谢方式上存在显著差异,从而赋予骨骼肌在运动适应与功能调控中的多样性。成年骨骼肌中肌纤维数量恒定,但类型可受外界刺激发生适应性重塑,且肌纤维组成直接决定肌肉生理功能[3]。在畜牧生产中,肌纤维类型与肉品质密切相关,如慢肌纤维比例较高的肌肉通常表现出更优的肉色、嫩度及保水性等品质特征[4-6]。肌纤维类型转化受环境、营养、转录因子及信号通路调控,马的骨骼肌具有物种特异性,是研究该调控机制的理想模型[7-9]。亮氨酸(leucine,Leu)是关键支链氨基酸(branched-chain amino acids,BCAAs),分解代谢主要发生在骨骼肌中,可通过调控蛋白质合成与降解维持肌肉蛋白稳态,同时参与肌肉生成过程[10]。亮氨酸已从传统营养物质拓展为重要代谢信号分子,细胞膜表面的G蛋白偶联受体(G protein-coupled receptors,GPCRs)能特异性感知胞外亮氨酸,启动下游信号通路,连接营养感知与肌肉细胞代谢调控。本文综述了亮氨酸的代谢及功能,重点阐述亮氨酸调控肌纤维类型转化的关键受体与信号通路,总结了GPCRs介导的亮氨酸感知信号在代谢通路与转录调控网络中的作用,并进一步探讨亮氨酸在骨骼肌纤维类型转化中的潜在作用,为运动营养干预、畜禽肌肉发育及肉品质改良提供理论依据。

1 亮氨酸代谢概述

亮氨酸的化学名称为α-氨基异己酸,最早由Proust于1819年从奶酪中分离获得;随后,Braconnot从肌肉和羊毛的酸水解产物中成功结晶该化合物,并将其命名为亮氨酸;1935年,Schulze以异戊醛为原料成功合成亮氨酸,为后续研究其在生长发育中关键作用奠定了基础[11]。亮氨酸、异亮氨酸和缬氨酸共同构成BCAAs。BCAAs在哺乳动物体内分布广泛,尽管其在生理pH条件下同时带有正负电荷,但仍可较高效地穿透血脑屏障(blood-brain barrier,BBB)。其中亮氨酸跨越血脑屏障的转运尤为迅速,其内流速率高于其他所有中性L型氨基酸。BCAAs为哺乳动物必需氨基酸,机体无法内源性合成,其代谢主要涉及分解代谢与中间产物代谢。

1.1 亮氨酸的转运与分解

亮氨酸为必需氨基酸,需由膳食供给,体内不能合成。膳食蛋白经胃肠道消化后,以游离亮氨酸或小肽形式释放,主要在小肠上皮细胞完成吸收过程。游离亮氨酸主要通过中性氨基酸转运系统[包括L型氨基酸转运体(L-type amino acid transporter,LAT)1/2/3/4]进行转运[12-13]。不同LAT亚型在组织分布和表达丰度上存在明显差异,但在功能上具有一定重叠性,为亮氨酸在不同组织中的吸收、分配及代谢调控提供了基础。
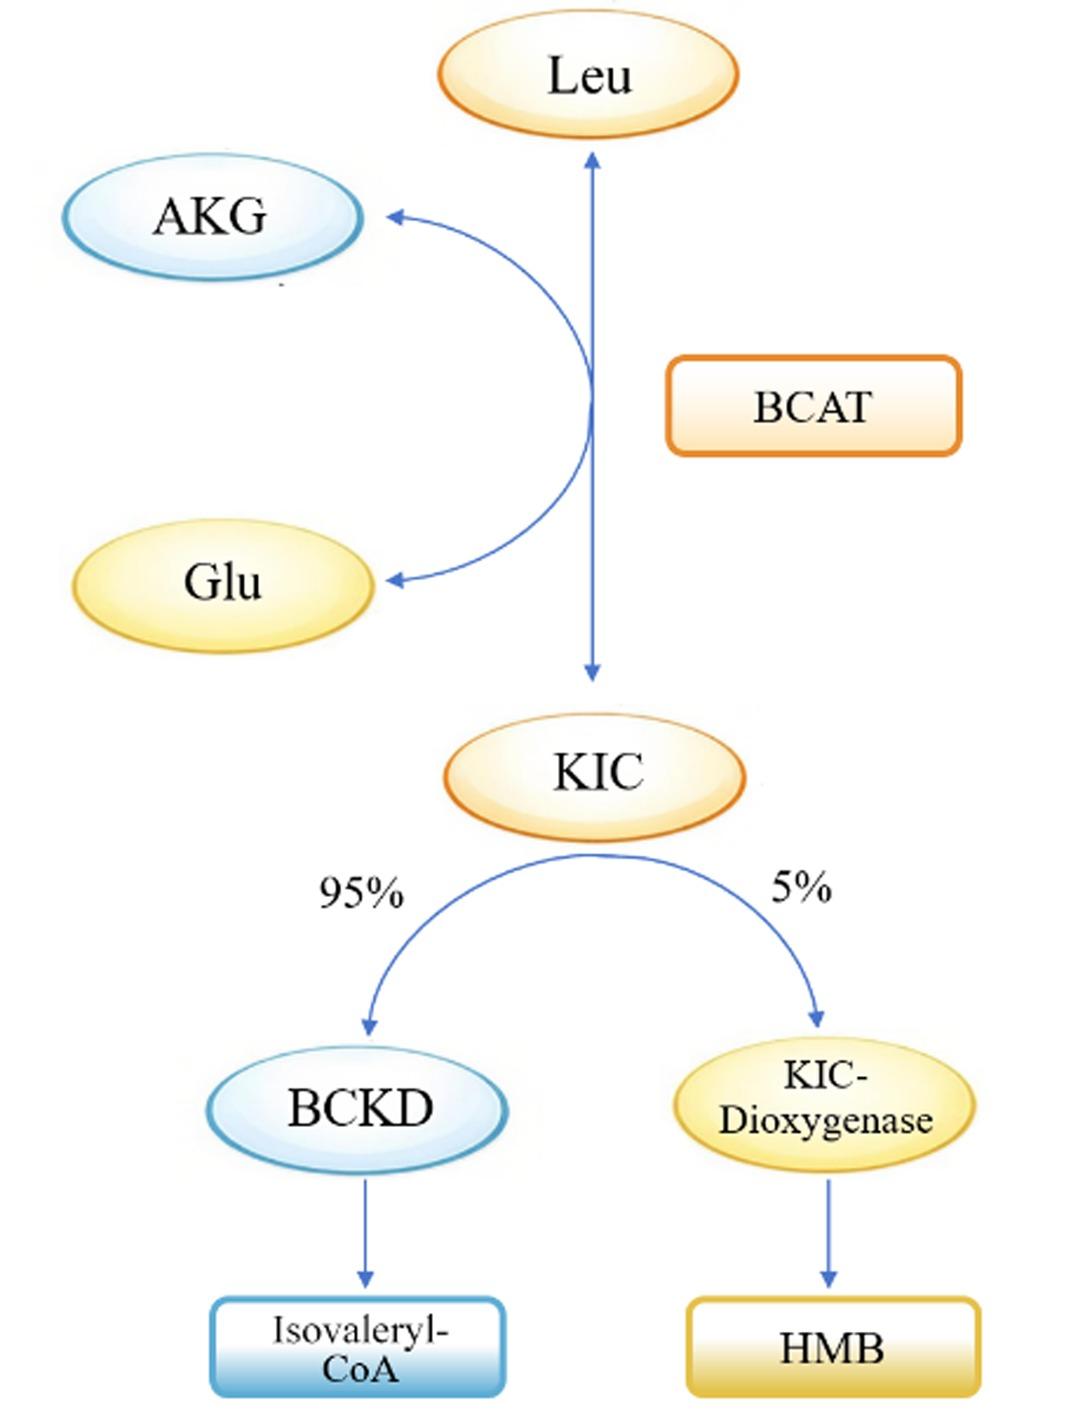
在哺乳动物中,由于肝脏缺乏支链氨基酸转氨酶(branched-chain aminotransferase,BCAT)活性,亮氨酸的初始分解代谢主要发生在骨骼肌、心肌及脑组织中,其中骨骼肌是其最重要的分布和利用部位[14]。亮氨酸的细胞摄取依赖于谷氨酰胺,并通过一种典型的“两步式交换转运机制”完成。首先,谷氨酰胺在谷氨酰胺转运体溶质载体家族1成员5(solute carrier family 1 member 5,SLC1A5)的介导下进入细胞,在维持细胞内谷氨酰胺稳态中发挥关键作用。随后,由溶质载体家族7成员5(solute carrier family 7 member 5,SLC7A5)与其伴侣蛋白溶质载体家族3成员2(solute carrier family 3 member 2,SLC3A2)构成的异源二聚体转运复合体以内源性谷氨酰胺作为外排底物,通过反向交换转运机制促进胞外亮氨酸的摄取[15]。亮氨酸进入细胞后,可参与并调控多种细胞生物学过程,既可作为蛋白质合成原料,也可通过转氨反应将其α-氨基转移至α-酮戊二酸(α-ketoglutarate,AKG),从而启动其分解代谢过程[16]。首先摄入的亮氨酸在BCAT的催化下发生转氨反应,生成α-酮异己酸(α-ketoisocaproate,KIC),后者是β-羟基-β-甲基丁酸(β-hydroxy-β-methylbutyrate,HMB)的前体物质;该转氨反应速度快且具有可逆性。随后,KIC可进入2条不同的代谢途径:其一(占亮氨酸代谢的90%~95%),KIC经由支链α-酮酸脱氢酶复合物(BCKD)催化,发生不可逆且限速性的氧化脱羧反应,生成异戊酰辅酶A,该过程受BCKD的精细调控;其二,KIC在KIC双氧酶的作用下不可逆转化为HMB(图1)。
图1 亮氨酸的分解代谢

Leu:亮氨酸 leucine;AKG:α-酮戊二酸 α- ketoglutarate;Glu:谷氨酸 glutamate;BCAT:支链氨基酸转移酶 branched-chain amino acid aminotransferase;KIC:α-酮异己酸 α-ketoisocaproate;BCKD:支链α-酮酸脱氢酶复合物 branched-chain α-keto acid dehydrogenase complex;KIC-Dioxygenase:α-酮异己酸双氧酶 α-ketoisocaproate dioxygenase;Isovaleryl-CoA:异戊酰辅酶A;HMB:β-羟基-β-甲基丁酸 β-hydroxy-β-methylbutyrate。

Fig.1 Catabolism of leucine

1.2 亮氨酸及其代谢产物

亮氨酸及其代谢产物被认为是机体能量稳态调控中的关键营养信号分子,在调节细胞代谢和蛋白质合成过程中发挥关键作用。已有研究表明,在介导哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路激活的过程中,发挥决定性作用的可能并非亮氨酸本身,而是其代谢过程中生成的关键中间产物[17]。早期的Shiota等[18]关于亮氨酸与KIC转氨关系的经典研究发现,即使不显著提高亮氨酸浓度,KIC仍可增强大鼠心肌蛋白质合成并抑制蛋白质降解,提示其可能具有部分独立于亮氨酸的调控作用;另一研究结果显示,在抑制亮氨酸转氨反应的条件下,亮氨酸仍可刺激大鼠肌肉组织蛋白质的合成,说明亮氨酸促进蛋白质合成的作用并不完全依赖其转氨生成的KIC[19]。后续研究表明,在相同条件下,亮氨酸与KIC均可显著提高仔猪骨骼肌真核翻译起始因子结合蛋白1(eukaryotic initiation factor 4E-binding protein 1,4EBP1)的磷酸化水平,并促进活化的真核翻译起始因子4E(eukaryotic translation initiation factor 4E,eIF4E)和真核翻译起始因子4G(eukaryotic translation initiation factor 4G,eIF4G)形成翻译起始复合物,从而增强蛋白质翻译起始效率;值得注意的是,静脉输注KIC可显著提高仔猪血浆亮氨酸浓度,提示其在体内可大量逆转氨基化生成亮氨酸,因此KIC对蛋白质合成的促进作用可能并非完全由其本身直接介导[20]。除促进蛋白质合成外,KIC还可通过上调单羧酸转运蛋白1和2(monocarboxylate transporter 1/2,MCT1/2)的表达,激活丝氨酸/苏氨酸蛋白激酶B(protein kinase B,Akt)-叉头框转录因子O3a(forkhead box O3a,FOXO3a)信号通路,显著下调肌肉特异性环指蛋白1(muscle RING finger protein 1,MuRF1)和肌萎缩F-box蛋白(muscle atrophy F-box,MAFbx)的表达,从而抑制蛋白质多聚泛素化修饰,并阻断肌肉蛋白质降解过程;在癌症相关肌肉萎缩模型中,KIC在抑制肌肉分解代谢方面表现出优于亮氨酸的干预效果[21]。与KIC类似,HMB同样在骨骼肌代谢调控中发挥重要作用,其生物学效应主要体现在促进肌肉蛋白质合成、抑制蛋白质降解以及增强肌肉卫星细胞增殖与分化等方面。研究表明,HMB可通过多条信号通路协同发挥肌肉合成代谢与抗损伤效应:一方面,它可上调生长激素(growth hormone,GH)-胰岛素样生长因子-1(insulin-like growth factor-1,IGF-1)轴的表达,促进大鼠骨骼肌纤维肥大[22];另一方面,HMB还能拮抗泛素-蛋白酶体系统活性,降低大鼠肌肉蛋白泛素化修饰水平,并抑制促炎因子表达,从而缓解炎症诱导的蛋白质水解反应[23]。基于上述分子与细胞水平的作用机制,HMB已被广泛用作一种安全有效的运动营养补剂,其不仅可减轻运动后肌肉损伤、加速机体恢复过程,还能够提高无训练基础人群的肌力水平与无脂体重,并增强耐力型运动员骨骼肌的抗分解代谢能力。

2 亮氨酸及其代谢物调控骨骼肌纤维类型的转化

骨骼肌纤维类型的相互转化受复杂的生物学通路调节,涉及细胞内信号通路的变化,该过程调节肌纤维特异性基因表达,从而诱发肌纤维类型的转化。在调节网络中,钙调蛋白依赖性蛋白激酶(Ca2+/calmodulin-dependent protein kinase,CaMK)和5'-腺苷酸激活蛋白激酶(AMP-activated protein kinase,AMPK)信号通路被认为是关键途径[24]。骨骼肌收缩导致细胞内钙离子和5'-腺苷酸(adenosine monosphate,AMP)的浓度增加,分别激活CaMK和AMPK信号通路,进而引起一系列的级联反应。研究发现,钙调蛋白依赖性蛋白激酶激酶2(Ca2+/calmodulin-dependent protein kinase 2,CaMKK2)通过磷酸化172号苏氨酸残基(Thr172)活化AMPK,以响应钙信号,从而在钙信号和与能量代谢之间构建了桥梁[25]。故CaMKK2作为CaMK家族成员,是AMPK的上游激酶。早期研究发现,胞内钙离子浓度和钙调蛋白(calmodulin,CaM)可以调控肝细胞中钠离子(Na+)非依赖性亮氨酸的转运,无论细胞外是否存在钙离子,胞内钙释放均刺激亮氨酸的转运,而抑制CaM则会显著降低这一转运水平[26]。亮氨酸还可激活钙调蛋白依赖性蛋白激酶Ⅱ(Ca2+/calmodulin-dependent kinase Ⅱ,CaMKⅡ)信号通路上调肌细胞增强因子2(MEF2)和促进线粒体生物发生,进而提高猪背最长肌慢肌纤维比例[27]。此外,亮氨酸在猪骨骼肌卫星细胞中还可通过沉默信息调节因子1(sirtuin 1,SIRT1)/AMPK信号通路诱导慢肌纤维的表达并改善线粒体功能[28]。在体内研究中,饲粮添加亮氨酸显著提高仔猪背最长肌中慢肌纤维、肌红蛋白和过氧化物酶体增殖物激活受体γ辅激活因子-1α(peroxisome proliferator-activated receptor γ coactivator-1α,PGC-1α)的表达水平,同时降低快肌纤维的表达水平,从而增强线粒体生物发生与功能[29-30]。Gong等[27]进一步指出,饲粮亮氨酸通过激活CaMK-AMPK/SIRT1-PGC-1α信号通路提高猪背最长肌中慢肌纤维占比,促使肌纤维类型从糖酵解型向氧化型转化。
亮氨酸作为一种生酮氨基酸,主要用于合成蛋白质,其余部分在骨骼肌中转化为AKG、KIC和HMB。HMB是一种运动补充剂,膳食中补充HMB可通过AMPK-SIRT1-PGC-1α轴调节线粒体生物发生和脂肪酸氧化,进而调控肌纤维类型向慢肌纤维转化[31]。国际运动营养学会分别于2013年和2025年发布了关于HMB的立场声明,系统呈现了该营养因子在循证研究层面与理论认知框架上的演进。2013年的声明主要基于当时有限的人体干预与运动营养研究证据,确立了HMB在促进骨骼肌蛋白质合成、抑制蛋白质分解以及长期补充安全性方面的基础应用价值,其研究与应用重点集中于训练及非训练人群的肌肉肥大与运动后恢复效应[32]。随着多中心临床研究与机制性研究证据的持续积累,2025年更新的立场声明进一步明确了HMB作为亮氨酸代谢产物所具有的相对独立信号调控属性,指出其对哺乳动物雷帕霉素靶蛋白复合体1(mechanistic target of rapamycin complex 1,mTORC1)的激活作用不依赖于经典亮氨酸感知通路,从而在一定程度上突破了与老龄化相关合成代谢抵抗的生理限制。最新共识进一步强调,HMB在老年及久坐人群中具有良好的安全性和有效性,可改善无脂体重与肌肉功能表现,并在与结构化运动干预相结合时,对肌少症防治及功能衰退延缓具有重要的转化应用潜力[33]

3 GPCRs介导的亮氨酸信号转导及其在骨骼肌纤维类型转化中的潜在作用

GPCRs是真核生物中最大、种类最多的膜受体,亦被称作7次跨膜受体。GPCRs通过与异源三聚体G蛋白(由α、β和γ亚基组成)偶联,在配体结合后发生构象变化,从而将细胞外信号转导为细胞内响应[34]。该类受体能够感知多种外源与内源信号,包括光、神经递质、生物胺、脂肪酸以及氨基酸等,在细胞对营养与环境变化的适应过程中发挥关键作用[35]。近年来研究表明,GPCRs在氨基酸感知过程中具有重要功能。部分氨基酸感知型GPCRs,如钙敏感受体(calcium-sensing receptor,CaSR)及味觉受体1型成员1/3(taste receptor type 1 member 1/3,T1R1/3)异源二聚体,已被证实可响应亮氨酸及其相关代谢信号,并通过G蛋白α亚基q型与11型(Gq/11)或G蛋白α亚基抑制型与o型(Gi/o)蛋白介导钙依赖通路及环腺苷酸(cyclic adenosine monophosphate,cAMP)相关信号轴的调控[36-37]。这些信号级联反应提示,GPCRs可能作为细胞外氨基酸变化与细胞内信号转导的重要分子节点,参与营养信号的感知与放大过程。在下游调控层面,GPCRs介导的亮氨酸信号转导可能与多条关键代谢及转录调控通路发生交叉整合,包括mTORC1依赖的蛋白质合成调控的核心信号轴[38]、AMPK-SIRT1-PGC-1α能量代谢调控网络[31]以及钙调神经磷酸酶(calcineurin,CaN)-活化T细胞核因子(nuclear factor of activated T cells,NFAT)介导的慢肌特异性转录程序[39]等。这些信号通路在骨骼肌能量代谢调节、线粒体功能维持及蛋白质合成过程中具有重要作用。因此,GPCRs介导的亮氨酸信号可能通过调控上述分子网络,参与骨骼肌细胞代谢状态的动态调节,并为骨骼肌纤维类型转化提供代谢与转录层面的分子基础。
从代谢角度来看,亮氨酸不仅作为蛋白质合成的重要底物,还可作为信号分子参与细胞代谢调控。其代谢产物可进入三羧酸循环,在一定程度上影响糖酵解与氧化磷酸化途径之间的通量分配,从而改变细胞的能量利用方式与代谢特征。在此过程中,细胞可通过对特定代谢通路的选择性调节,实现能量供给与生物合成需求之间的动态平衡,这一过程通常被认为与代谢状态重塑或代谢重编程相关[40]。在骨骼肌系统中,代谢特征的改变通常与肌纤维类型密切相关。本课题组前期研究发现,在马骨骼肌卫星细胞中亮氨酸能够提高线粒体有氧呼吸水平,并通过AMPK和mTOR信号通路促进慢肌纤维相关基因的表达[41]。然而,目前关于GPCRs是否直接介导亮氨酸诱导的代谢重编程过程,仍缺乏系统性的试验证据。
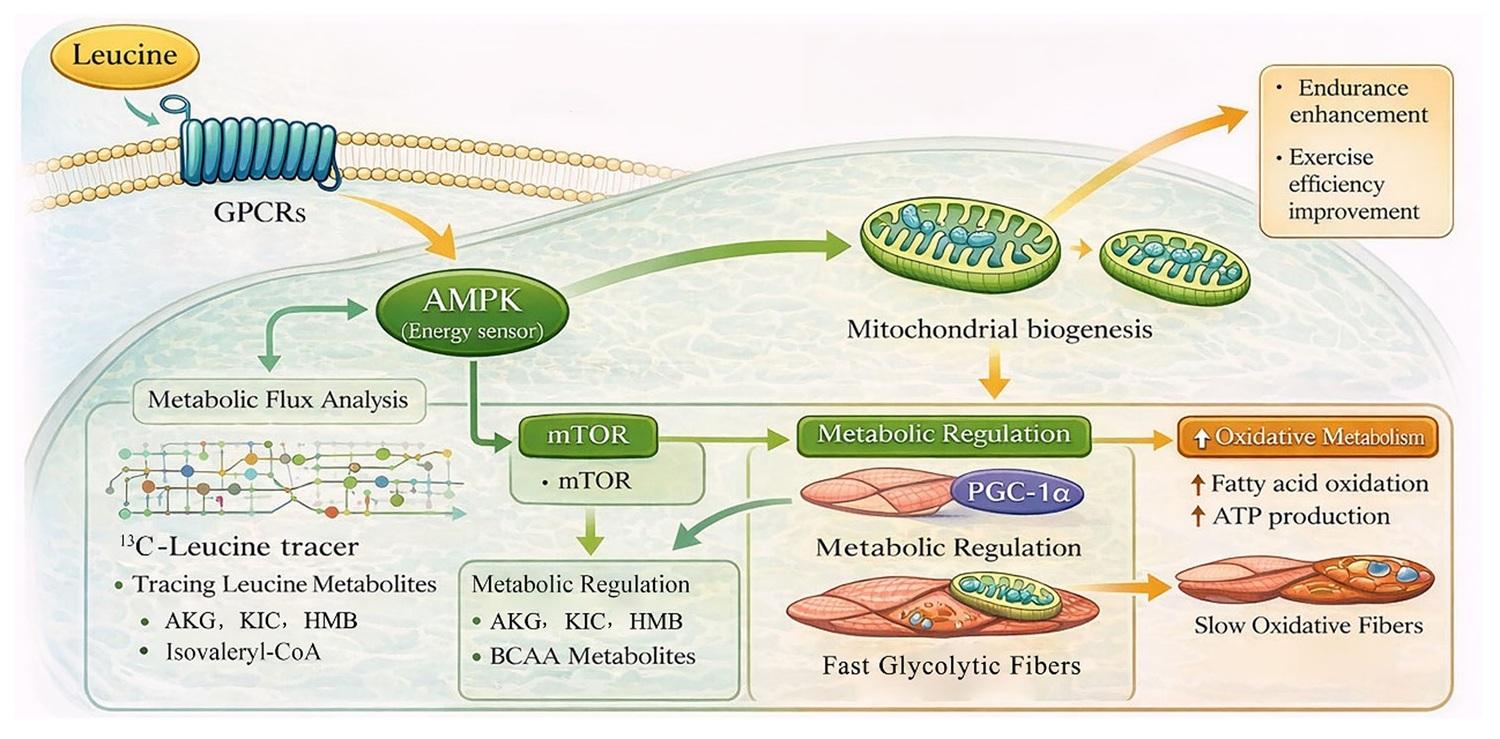
氨基酸可通过感受器或氨基酸转运载体启动细胞内信号传导,调控基因表达[42-43]。近年来研究发现,除经典氨基酸感知受体外,部分新型或孤儿型GPCRs亦被发现参与亮氨酸代谢调控。例如,C类G蛋白偶联受体第5组成员C(G-protein coupled receptor family C group 5 member C,GPRC5C)被认为是BCAAs代谢调控的重要上游信号节点,其激活可增强细胞对亮氨酸的摄取与代谢通量,影响mTORC1信号通路活性,从而参与细胞代谢状态的调节[44]。此外,亮氨酸感受蛋白Sestrin家族蛋白2(SESN2)及新近报道的分泌相关Ras相关GTP酶1B(secretion-associated Ras-related GTPase 1B,SAR1B)也可通过调控GTP酶激活蛋白活性复合物2(GAP activity toward Rags complex 2,GATOR2)参与mTORC1信号调控[45]。这些研究进一步表明,亮氨酸信号的感知与转导涉及多层级调控网络,GPCRs可能在其中发挥重要的调节作用。在骨骼肌生物学背景下,代谢状态的改变通常与肌纤维功能特性的调节密切相关,氧化代谢能力增强往往伴随着线粒体生物发生增加及慢肌纤维相关基因表达上调。因此,推测GPCRs介导的亮氨酸信号转导可能通过影响细胞代谢特征及相关转录调控网络,在骨骼肌纤维类型转化过程中发挥潜在作用。在马属动物研究中,肌纤维类型构成与运动能力和代谢效率密切相关;在肉用家畜中,肌纤维类型亦与肉品质性状(如肉色稳定性、嫩度、系水力及脂质沉积模式)密切相关。同时,从实践应用角度看,GPCRs-亮氨酸信号轴可为理解肌肉发育调控及肉品质形成机制提供新的研究视角(图2)。
图2 GPCRs介导亮氨酸代谢重编程调控骨骼肌纤维类型转化的可能机制

Leucine:亮氨酸;GPCRs:G蛋白偶联受体 G protein-coupled receptors;AMPK:5'-腺苷酸激活蛋白激酶 AMP-activated protein kinase;Energy sensor:能量感受器;Mitochondrial biogenesis:线粒体生物发生;Endurance enhancement:耐力增强;Exercise efficiency improvement:运动效率提升;Metabolic Flux Analysis:代谢流分析;13C-Leucine tracer:13C-亮氨酸示踪剂;Tracing Leucine Metabolites:亮氨酸代谢物示踪;AKG:α-酮戊二酸 α-ketoglutarate;KIC:α-酮异己酸 α-ketoisocaproate;HMB:β-羟基-β-甲基丁酸 β-hydroxy-β-methylbutyrate;Isovaleryl-CoA:异戊酰辅酶A;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;Metabolic regulation:代谢调控;BCAA Metabolites:支链氨基酸代谢物 branched-chain amino acids metabolites;PGC-1α:过氧化物酶体增殖受体γ辅激活因子-1α peroxisome proliferator-activated receptor γ coactivator-1α;Fast Glycolytic Fibers:快糖酵解型肌纤维;Oxidative Metabolism:氧化代谢;Fatty acid oxidation:脂肪酸氧化;ATP production:ATP生成;Slow Oxidative Fibers:慢氧化型肌纤维。

Fig.2 Proposed mechanism of GPCRs-mediated leucine metabolic reprogramming in regulating skeletal muscle fiber type transformation

4 小结

综上所述,现有研究逐步揭示,GPCRs作为细胞膜层面感知与转导营养信号的关键节点,在识别亮氨酸及其代谢产物后,可通过偶联多条下游信号通路参与细胞内信号级联反应,并在一定程度上影响骨骼肌细胞的代谢调控过程。从机制层面推测,GPCRs介导的亮氨酸信号转导可能通过影响代谢网络及相关转录过程,在骨骼肌纤维类型转化中发挥潜在作用。基于上述理论框架,作者前期研究发现,在马骨骼肌卫星细胞中,亮氨酸可通过激活AMPK信号通路提高慢肌纤维相关基因的表达水平,并上调线粒体相关蛋白表达;转录组分析显示差异基因主要富集于cGMP-PKG信号通路、钙离子信号通路及AMPK信号通路,同时多个GPCRs相关基因呈显著差异表达,且亮氨酸代谢相关酶显著上调。这些结果提示,GPCRs可能参与亮氨酸相关代谢调控过程,并与骨骼肌纤维类型转化存在一定关联。然而目前关于GPCRs是否直接参与亮氨酸的代谢重编程及其在骨骼肌纤维类型转化中的具体作用,仍缺乏系统性的体内外试验证据,其分子机制及因果关系有待进一步阐明。因此,未来研究有必要结合多组学整合分析与功能验证模型,系统解析不同GPCRs亚型在骨骼肌中的表达谱与调控特征,进一步探讨亮氨酸代谢重编程与肌纤维类型转化的关系,并在马及典型肉用家畜中开展验证研究。总体而言,GPCRs-亮氨酸信号轴为理解骨骼肌代谢调控及肌纤维类型转化提供了新的研究视角,在精准营养调控及畜产品品质改良中具有重要的潜在应用价值。
[1]
SCHIAFFINO S, REGGIANI C, AKIMOTO T, et al. Molecular mechanisms of skeletal muscle hypertrophy[J]. Journal of Neuromuscular Diseases, 2021, 8(2):169-183.

[2]
BOURDEAU JULIEN I, SEPHTON C F, DUTCHAK P A. Metabolic networks influencing skeletal muscle fiber composition[J]. Frontiers in Cell and Developmental Biology, 2018, 6:125.

[3]
SCHIAFFINO S, CHEMELLO F, REGGIANI C. The diversity of skeletal muscle fiber types[J]. Cold Spring Harbor Perspectives in Biology, 2025, 17(8):a041477.

[4]
CHO S H, HOA V B, SONG D H, et al. Comparison of muscle fiber and meat quality characteristics of beef strip loin,tenderloin,and round cuts among Jeju black cattle,Hanwoo,and their crossbreeds[J]. Food Science of Animal Resources, 2024, 44(5):1181-1194.

[5]
XU M, CHEN X L, HUANG Z Q, et al. Effects of dietary grape seed proanthocyanidin extract supplementation on meat quality,muscle fiber characteristics and antioxidant capacity of finishing pigs[J]. Food Chemistry, 2022, 367:130781.

[6]
张宁, 康燕, 任文义, 等. 饲粮添加琥珀酸对滩羊肉品质及肌纤维类型的影响[J]. 动物营养学报, 2023, 35(10):6538-6545.

ZHANG N, KANG Y, REN W Y, et al. Effects of dietary succinic acid on meat quality and muscle fiber type of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6538-6545. (in Chinese)

[7]
邵亚飞, 贺琼玉, 姚卫磊, 等. 山竹醇对生长育肥猪生长性能、肌肉抗氧化能力和肌纤维类型组成的影响[J]. 动物营养学报, 2020, 32(3):1151-1160.

SHAO Y F, HE Q Y, YAO W L, et al. Effects of garcinol on growth performance,muscle antioxidant capacity and muscle fiber type of growing-finishing pigs[J]. Chinese Journal of Animal Nutrition, 2020, 32(3):1151-1160. (in Chinese)

[8]
丁文淇, 图格琴, 任秀娟, 等. 胎儿期与成年期蒙古马骨骼肌肌纤维类型转化研究[J]. 畜牧兽医学报, 2022, 53(1):88-99.

DING W Q, TU G Q, REN X J, et al. Study on muscle fiber type transformation of mongolian horse during fetal and adult period[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(1):88-99. (in Chinese)

[9]
RIVERO J L L, HILL E W. Skeletal muscle adaptations and muscle genomics of performance horses[J]. The Veterinary Journal, 2016, 209:5-13.

[10]
IJAZ A, AIN H B U, TUFAIL T, et al. Enhancing muscle quality:exploring leucine and whey protein in sarcopenic individuals[J]. Journal of Cachexia,Sarcopenia and Muscle, 2025, 16(5):e70060.

[11]
KARKASHADZE N, URIDIA R, TSERODZE N, et al. Origin of twenty proteinogenic amino acids[J]. Georgian Scientists, 2023, 5(1):172-179.

[12]
XU G, ZHAO W Z, YU Z P. Intestinal epithelial transport of bioactive di/tripeptides through PepT1:molecular mechanism and influencing factors[J]. Food Chemistry, 2025, 496(Pt 3):146851.

[13]
BAO L Y, FU L Z, SU Y J, et al. Amino acid transporter SLC7A5 regulates cell proliferation and secretary cell differentiation and distribution in the mouse intestine[J]. International Journal of Biological Sciences, 2024, 20(6):2187-2201.

[14]
MANN G, MORA S, MADU G, et al. Branched-chain amino acids:catabolism in skeletal muscle and implications for muscle and whole-body metabolism[J]. Frontiers in Physiology, 2021, 12:702826.

[15]
NICKLIN P, BERGMAN P, ZHANG B L, et al. Bidirectional transport of amino acids regulates mTOR and autophagy[J]. Cell, 2009, 136(3):521-534.

[16]
SUZUKI R, SATO Y, OBENG K A, et al. Energy metabolism profile of the effects of amino acid treatment on skeletal muscle cells:leucine inhibits glycolysis of myotubes[J]. Nutrition, 2020, 77:110794.

[17]
SON S M, PARK S J, LEE H, et al. Leucine signals to mTORC1 via its metabolite acetyl-coenzyme A[J]. Cell Metabolism, 2019, 29(1):192-201.e7.

[18]
SHIOTA T, YAGI M, WALSER M. Utilization for protein synthesis in individual rat organs of extracellular 2-ketoisocaproate relative to utilization of extracellular leucine[J]. Metabolism, 1989, 38(7):612-618.

[19]
KANG C W, WALSER M. Nutritional efficiency of alpha-ketoisocaproate relative to leucine,assessed isotopically[J]. The American Journal of Physiology, 1985, 249(4 Pt 1):e355-e359.

[20]
ESCOBAR J, FRANK J W, SURYAWAN A, et al. Leucine and alpha-ketoisocaproic acid,but not norleucine,stimulate skeletal muscle protein synthesis in neonatal pigs[J]. The Journal of Nutrition, 2010, 140(8):1418-1424.

[21]
LIM P, WOO S W, HAN J, et al. Alpha-ketoisocaproate attenuates muscle atrophy in cancer cachexia models[J]. Journal of Cachexia,Sarcopenia and Muscle, 2025, 16(4):e70044.

[22]
YAMADA A K, FERRETTI R, MATSUMURA C Y, et al. Beta-hydroxy-beta-methylbutyrate associated with low-intensity exercise training improves skeletal muscle regeneration through the IGF-Akt pathway[J]. Brazilian Journal of Medical and Biological Research, 2022, 55:e11597.

[23]
GERLINGER-ROMERO F, GUIMARÃES-FERREIRA L, YONAMINE C Y, et al. Effects of beta-hydroxy-beta-methylbutyrate(HMB)on the expression of ubiquitin ligases,protein synthesis pathways and contractile function in extensor digitorum longus (EDL) of fed and fasting rats[J]. The Journal of Physiological Sciences, 2018, 68(2):165-174.

[24]
QU Z H, LIU A L, LIU C W, et al. Theaflavin promotes mitochondrial abundance and glucose absorption in myotubes by activating the CaMKK2-AMPK signal axis via calcium-ion influx[J]. Journal of Agricultural and Food Chemistry, 2021, 69(29):8144-8159.

[25]
STEINBERG G R, HARDIE D G. New insights into activation and function of the AMPK[J]. Nature Reviews Molecular Cell Biology, 2023, 24(4):255-272.

[26]
TAKADERA T, MOHRI T. Effect of intracellular free Ca2+ on leucine transport in chang liver cells[J]. Cell Structure and Function, 1985, 10(4):349-359.

[27]
GONG S M, YIN Y J, HAN M M, et al. Dietary leucine and fish oil cooperatively regulate skeletal myofiber type transformation via the CaMKⅡ signaling pathway of pigs[J]. Food & Function, 2023, 14(1):133-147.

[28]
CHEN X L, XIANG L, JIA G, et al. Leucine regulates slow-twitch muscle fibers expression and mitochondrial function by SIRT1/AMPK signaling in porcine skeletal muscle satellite cells[J]. Animal Science Journal, 2019, 90(2):255-263.

[29]
CHEN X L, ZHANG M, XUE Y H, et al. Effect of dietary L-theanine supplementation on skeletal muscle fiber type transformation in vivo[J]. The Journal of Nutritional Biochemistry, 2022, 99:108859.

[30]
龚赛明. 日粮亮氨酸和鱼油协同调控仔猪骨骼肌肌纤维类型转化的机制研究[D]. 硕士学位论文. 长沙: 湖南农业大学, 2023.

GONG S M. Mechanism of dietary leucine and fish oil cooperatively regulate skeletal muscle myofiber type transformation in piglets[D]. Master’s Thesis. Changsha: Hunan Agricultural University, 2023. (in Chinese)

[31]
DUAN G Y, ZHENG C B, YU J Y, et al. β-hydroxy-β-methyl butyrate regulates the lipid metabolism,mitochondrial function,and fat browning of adipocytes[J]. Nutrients, 2023, 15(11):2550.

[32]
WILSON J M, FITSCHEN P J, CAMPBELL B, et al. International society of sports nutrition position stand: beta-hydroxy-beta-methylbutyrate(HMB)[J]. Journal of the International Society of Sports Nutrition, 2013, 10(1):6.

[33]
RATHMACHER J A, PITCHFORD L M, STOUT J R, et al. International society of sports nutrition position stand: beta-hydroxy-beta-methylbutyrate(HMB)[J]. Journal of the International Society of Sports Nutrition, 2025, 22(1):2434734.

[34]
AVET C, MANCINI A, BRETON B, et al. Effector membrane translocation biosensors reveal G protein and βarrestin coupling profiles of 100 therapeutically relevant GPCRs[J]. eLife, 2022, 11:e74101.

[35]
YANG D H, ZHOU Q T, LABROSKA V, et al. G protein-coupled receptors:structure-and function-based drug discovery[J]. Signal Transduction and Targeted Therapy, 2021, 6(1):7.

[36]
LI Q H, CHEN J M, LIU J X, et al. Leucine and arginine enhance milk fat and milk protein synthesis via the CaSR/Gi/mTORC1 and CaSR/Gq/mTORC1 pathways[J]. European Journal of Nutrition, 2023, 62(7):2873-2890.

[37]
TIAN M, HENG J H, SONG H Q, et al. Branched chain amino acids stimulate gut satiety hormone cholecystokinin secretion through activation of the umami taste receptor T1R1/T1R3 using an in vitro porcine jejunum model[J]. Food & Function, 2019, 10(6):3356-3367.

[38]
ROSARIO F J, URSCHITZ J, POWELL T L, et al. Overexpression of the LAT1 in primary human trophoblast cells increases the uptake of essential amino acids and activates mTOR signaling[J]. Clinical Science, 2023, 137(21):1651-1664.

[39]
LUO P, WANG L N, LUO L, et al. Ca2+ -calcineurin-NFAT pathway mediates the effect of thymol on oxidative metabolism and fiber-type switch in skeletal muscle[J]. Food & Function, 2019, 10(8):5166-5173.

[40]
LIANG L F, SUN F, WANG H B, et al. Metabolomics, metabolic flux analysis and cancer pharmacology[J]. Pharmacology & Therapeutics, 2021, 224:107827.

[41]
XING J Y, BOU G, LIU G Q, et al. Leucine promotes energy metabolism and stimulates slow-twitch muscle fibers expression through AMPK/mTOR signaling in equine skeletal muscle satellite cells[J]. Comparative Biochemistry and Physiology Part D:Genomics & Proteomics, 2024, 51:101249.

[42]
MENCHINI R J, CHAUDHRY F A. Multifaceted regulation of the system A transporter SLC38A2 suggests nanoscale regulation of amino acid metabolism and cellular signaling[J]. Neuropharmacology, 2019, 161:107789.

[43]
ERICSON M D, HASLACH E M, SCHNELL S M, et al. Discovery of molecular interactions of the human melanocortin-4 receptor(hMC4R)Asp189(D189)amino acid with the endogenous G-protein-coupled receptor(GPCR)antagonist agouti-related protein(AGRP)provides insights to AGRP’s inverse agonist pharmacology at the hMC4R[J]. ACS Chemical Neuroscience, 2021, 12(3):542-556.

[44]
ZHANG Y W, VELASCO-HERNANDEZ T, MESS J, et al. GPRC5C drives branched-chain amino acid metabolism in leukemogenesis[J]. Blood Advances, 2023, 7(24):7525-7538.

[45]
CHEN J, OU Y H, LUO R, et al. SAR1B senses leucine levels to regulate mTORC1 signalling[J]. Nature, 2021, 596(7871):281-284.

文章导航

/