综述

饲料中赭曲霉毒素A生物降解研究进展

  • 梁雪聪 ,
  • 马秋刚 ,
  • 赖长华 ,
  • 黄世猛 , *
展开
  • 中国农业大学动物科学技术学院, 畜禽营养与饲养全国重点实验室, 北京 100193
*黄世猛,副教授,博士生导师,E-mail:

梁雪聪(2000—),男,辽宁抚顺人,博士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 陈燕

收稿日期: 2025-12-31

  网络出版日期: 2026-08-13

基金资助

国家重点研发计划“畜禽新品种培育与现代牧场科技创新”重点专项“饲料饲草真菌毒素危害控制与生物降解技术”(2023YFD1301000)

中国农业大学-东阿阿胶产业创新研究院驴精准营养与健康养殖项目(DEEJ-ZD-2025-11-299)

河北省现代农业产业技术体系驴马鹿高效养殖与综合利用岗位(HBCT2024280203)

Research Progress on Biodegradation of Ochratoxin A in Feeds

  • LIANG Xuecong ,
  • MA Qiugang ,
  • LAI Changhua ,
  • HUANG Shimeng , *
Expand
  • State Key Laboratory of Animal Nutrition and Feeding, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
*associate professor, E-mail:

Received date: 2025-12-31

  Online published: 2026-08-13

摘要

赭曲霉毒素A(OTA)主要由曲霉属(Aspergillus)和青霉属(Penicillium)真菌产生,其污染已成为饲料安全领域亟待解决的产业问题。目前,OTA污染控制主要从3个方面开展:第一,通过竞争性微生物或具有抑菌活性的物质抑制产毒真菌的定植与增殖;第二,利用植物提取物、微生物代谢产物以及培养条件调控等手段阻断OTA的生物合成过程;第三,采用微生物降解菌及其降解酶对已形成的OTA进行高效去除。通过系统筛选高效OTA降解微生物及关键降解酶,并结合合成生物学、基因工程、转录组学等技术解析其作用机制,有望为OTA污染防控提供更精准、可靠的技术方案。本文系统梳理了OTA的理化特性及其在畜禽体内的毒性效应,重点分析OTA在不同靶器官和生理系统中的潜在作用机制,并从产毒真菌调控、OTA生物合成阻断及污染治理等不同阶段出发,总结和归纳现有的多维防控措施,以期为饲料饲草中OTA的科学、精准和高效防控提供参考。

本文引用格式

梁雪聪 , 马秋刚 , 赖长华 , 黄世猛 . 饲料中赭曲霉毒素A生物降解研究进展[J]. 动物营养学报, 2026 , 38(8) : 5552 -5562 . DOI: 10.12418/CJAN2026.443

Abstract

Ochratoxin A (OTA) is primarily produced by fungi of the genera Aspergillus and Penicillium, and its contamination has become a critical issue in feed safety that urgently requires resolution. Current strategies for OTA contamination control are primarily implemented from three aspects: first, inhibiting the colonization and proliferation of toxigenic fungi by using competitive microorganisms or substances with antifungal activity; second, blocking the biosynthetic pathway of OTA through the intervention of plant extracts, microbial metabolites and culture condition regulation; third, achieving efficient removal of already formed OTA via microbial degrading strains and their associated degrading enzymes. Through systematic screening of efficient OTA-degrading microorganisms and key degrading enzymes, combined with technologies such as synthetic biology, genetic engineering, and transcriptomics to elucidate their mechanisms of action, it is expected to provide more precise and reliable technical solutions for OTA pollution prevention and control. This paper systematically reviewed the physicochemical properties of OTA and its toxic effects in livestock and poultry, with a focus on the potential mechanisms of action in different target organs and physiological systems. Furthermore, starting from the regulation of toxigenic fungi, interruption of OTA biosynthesis, and contamination remediation, the existing multi dimensional prevention and control measures were summarized and categorized, aiming to provide a reference for the scientific, precise, and efficient control of OTA in feed and forage.

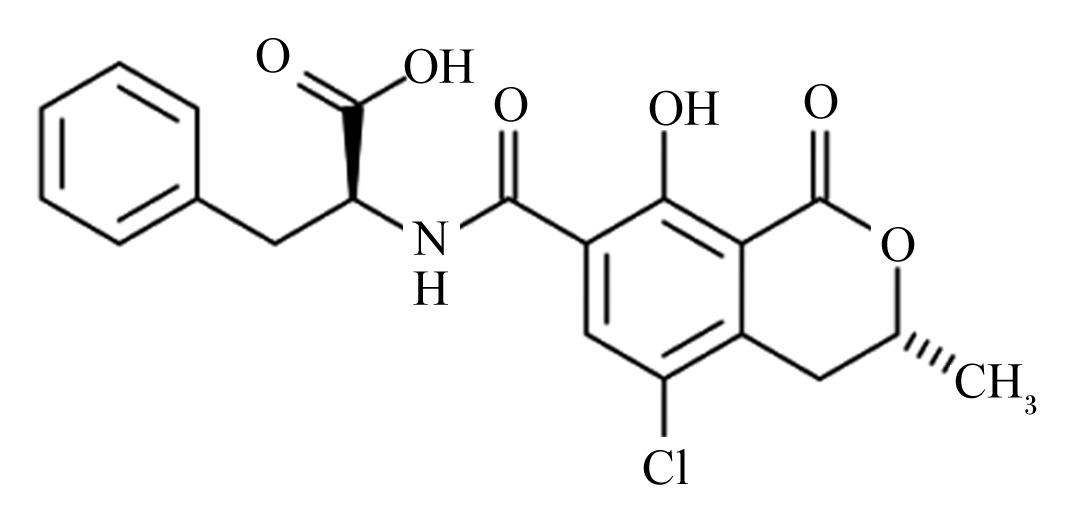
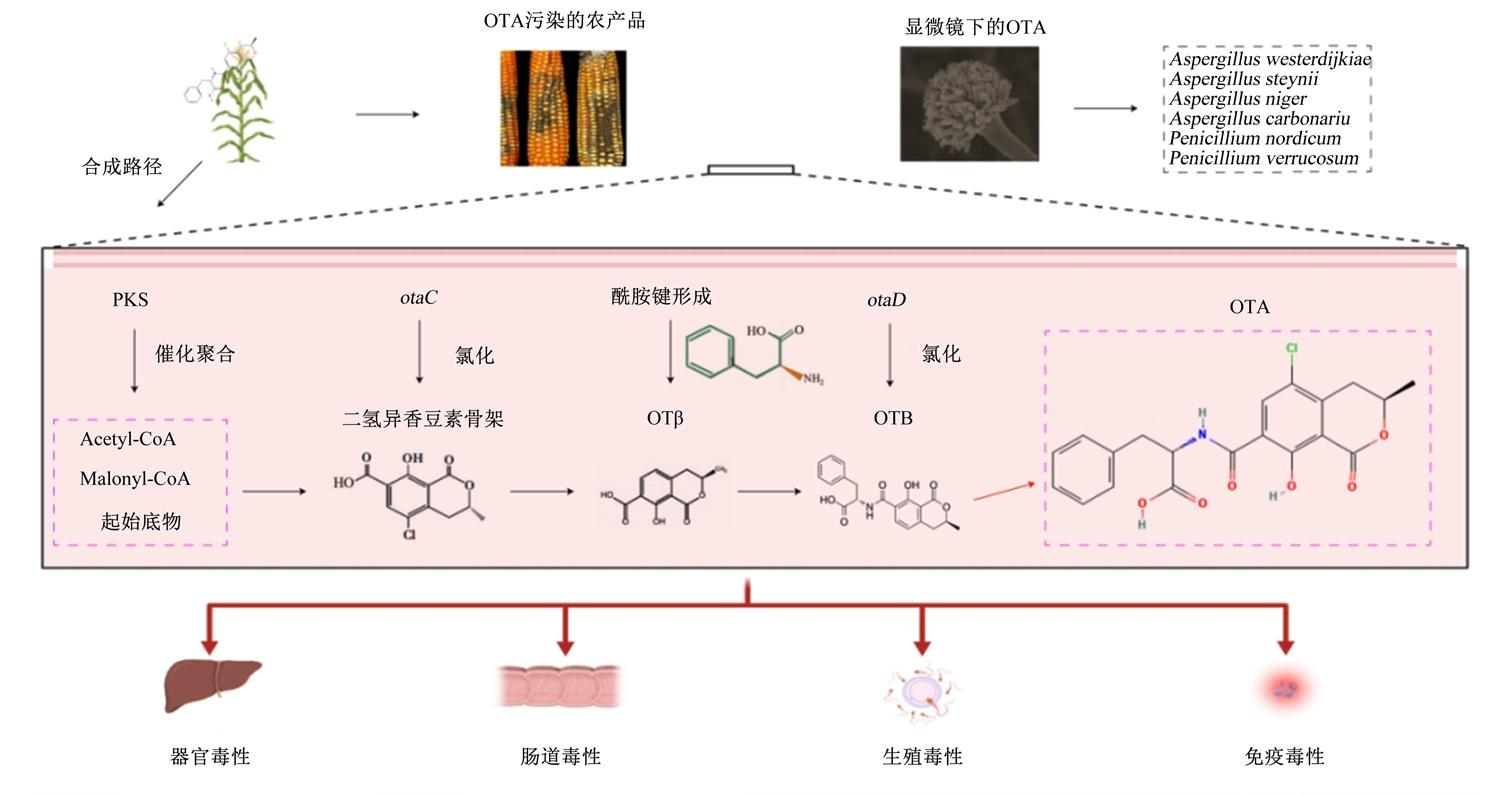
赭曲霉毒素A(ochratoxin A,OTA)是一种广泛存在于畜禽饲料中的真菌毒素,具有显著的肾毒性、肝毒性、神经毒性、遗传毒性和致畸性,已被国际癌症研究机构(International Agency for Research on Cancer,IARC)列为2B类潜在致癌物(可能对人类致癌)。饲料作为动物获取营养物质的主要来源,也是霉菌毒素进入畜禽生产体系及食物链的主要路径。本实验室前期对1 989份饲料与饲草样本开展的真菌毒素污染调查结果表明,OTA检出阳性率为8.98%~30.84%,最高污染水平达260 μg/kg,其中杂粕类原料、小麦及其麸皮、玉米副产物受OTA污染较为严重。研究发现,OTA污染可导致动物生产性能下降和健康损伤,并可通过肉、蛋、奶等畜产品残留进入食物链,进而威胁食品安全,造成显著的经济损失[1]。目前,已报道的霉菌毒素种类超过400种,主要包括黄曲霉毒素(aflatoxins)、单端孢霉烯族毒素(trichothecenes)、赭曲霉毒素(ochratoxins)、伏马毒素(fumonisins)和玉米赤霉烯酮(zearalenone)等[2]。由于OTA毒性强、污染率高,因而受到国内外学者的广泛关注[3]。OTA的化学名称为N-[(3R)-(5-氯-8-羟基-3-甲基-1-氧代-3,4-二氢-1H-异色原酮-7-基)羰基]-L-苯丙氨酸(N-[(3R)-(5-chloro-8-hydroxy-3-methyl-1-oxo-3,4-dihydro-1H-isochromen-7-yl)carbonyl]-L-phenylalanine),其化学式为C20H18ClNO6,相对分子质量为403.8。OTA的分子结构由1个二氢异香豆素(dihydroisocoumarin)骨架与L-苯丙氨酸(L-phenylalanine)通过酰胺键连接而成,属于由多酮类化合物(polyketide)与苯丙氨酸(Phe)共同组成的混合型次级代谢产物(图1)[4]。OTA的生物合成以多酮骨架(polyketide backbone)的形成为起始步骤:多酮合酶(polyketide synthase,PKS,由pks基因编码)以乙酰辅酶A(acetyl-CoA)和丙二酰辅酶A(malonyl-CoA)等为起始底物,催化生成异香豆素或二氢异香豆素骨架;随后,该骨架在细胞色素P450单加氧酶(cytochrome P450 monooxygenase,由otaC基因编码)的催化下发生氧化反应,生成中间产物赭曲霉毒素β(ochratoxin β,OTβ)。接着,非核糖体肽合成酶(non-ribosomal peptide synthetase,NRPS,由otaB基因编码)将Phe通过酰胺键连接至多酮骨架,形成去氯的OTA类似物赭曲霉毒素B(ochratoxin B,OTB);最后,卤素化酶(halogenase,由otaD基因编码)对OTB进行氯化修饰,生成最终产物OTA(图2)[5]。基于OTA的生物合成特征,目前针对其合成前期的抑制措施主要包括抑制产毒真菌的生长与定植,利用天然活性化合物干扰OTA的关键生物合成步骤,以及通过基因敲除等分子生物学手段靶向阻断产毒菌的关键基因。OTA的生物合成途径复杂,且在生物体内代谢缓慢,易在食品和饲料中长期残留,对人类及动物健康构成严重威胁,已被列为2B类潜在致癌物[6]
图1 OTA分子结构图

Fig.1 Molecular structure of OTA[4]

图2 OTA的合成机制

OTA:赭曲霉毒素A ochratoxin A;Aspergillus westerdijkiae:韦氏曲霉;Aspergillus steynii:斯泰恩曲霉;Aspergillus niger:黑曲霉;Aspergillus carbonarius:炭黑曲霉;Penicillium nordicum:诺迪克青霉;Penicillium verrucosum:疣孢青霉;PKS:多酮合酶 polyketide synthase;otaC:细胞色素P450单加氧酶的编码基因 coding gene of cytochrome P450 monooxygenase;otaD:卤素化酶的编码基因 coding gene of halogenase; Acetyl-CoA:乙酰辅酶A;Malonyl-CoA:丙二酰辅酶A;OTβ:赭曲霉毒素β ochratoxin β;OTB:赭曲霉毒素B ochratoxin B。

Fig.2 Synthesis mechanism of OTA

现有研究表明,OTA对饲料的污染具有污染基质多样、地理分布广泛、发生频率较高以及易发生多重毒素共污染等显著特征[7-9]。其中,谷物及其副产物(如玉米、小麦、大麦、稻谷、麸皮及杂粕类原料)因水分含量高、储藏周期长,更易受到产OTA真菌的侵染。从全球范围来看,OTA在饲料与食品中的污染具有明显的区域性和气候依赖性特征。Pittet[10]综述了全球范围内霉菌毒素污染的情况,1990年初至1997年底25%~40%的谷物样品存在霉菌毒素污染风险,且多数样品检出多种毒素共污染状态。Nguyen等[11]报道,在气候炎热、湿润地区(如越南中部5个省份),产毒丝状真菌更易生长繁殖,大米等作物中OTA污染问题尤为突出。Lee等[12]基于10年全球数据发现,未加工食品级大麦、玉米、小麦和水稻等谷物的真菌毒素感染率在欧洲约为20%,在美国可达42%,估算全球平均污染率约为29%。OTA污染不仅存在于饲料原料,也可通过饲料-动物-畜产品途径进入食物链。Huong等[13]研究发现,越南老街省儿童膳食中OTA的平均暴露量为52.6 ng/(kg·d),其中大米、鸡蛋、牛奶和豆类是主要暴露来源。Pietruszka等[14]对2014—2016年波兰动物组织及饲料样品的持续监测结果显示,约23.5%的动物组织样品检出OTA,部分样品OTA含量达到5~10 μg/kg,提示OTA可在动物体内发生组织残留并通过畜产品向下游传递。相关研究表明,我国2013年份红葡萄酒样品中OTA阳性检出率高达57%,最高检测值为5.65 μg/kg[15];济南地区小麦和玉米中OTA的检出率分别达到41%和38%[16]。上述结果表明,OTA在我国饲料及食品体系中具有一定的普遍性和潜在风险。现有研究一致认为,OTA可通过多靶器官、多通路对动物机体产生毒性效应,包括抑制生长性能[17]、损害繁殖功能[18]、诱导肝脏与肾脏毒性[19]、破坏肠道屏障与菌群稳态[20]以及抑制免疫功能[21]。研究发现,猪采食OTA污染饲料后,其血液、肝脏、肾脏、肺脏、心脏、脂肪和肌肉组织中均可检测到OTA残留;畜产品中残留的OTA可进一步通过肉、蛋、奶等动物性食品进入食物链,对消费者健康构成潜在威胁。针对OTA污染问题,Ben Miri等[8]系统综述了OTA的理化性质、主要产毒真菌及其毒代动力学特征,为建立不同去除和控制技术的适用条件与作用机制提供了重要理论基础。目前,OTA的防控措施主要包括原料与储藏环节的产毒真菌生长控制,加工阶段的物理和化学脱毒技术,以及饲喂阶段以吸附剂、生物降解菌或降解酶为代表的生物防控措施。基于上述研究进展,本文系统梳理了OTA的理化特性及其在畜禽体内的毒性效应,重点分析OTA在不同靶器官和生理系统中的潜在作用机制,并从产毒真菌调控、OTA生物合成阻断及污染治理等不同阶段出发,总结和归纳现有的多维防控措施,以期为饲料饲草中OTA的科学、精准和高效防控提供参考。

1 产毒真菌生长阶段的防控措施

OTA主要由曲霉属(Aspergillus)中的赭曲霉(Aspergillus ochraceus)和炭黑曲霉(Aspergillus carbonarius),以及青霉属(Penicillium)中的疣孢青霉(Penicillium verrucosum)产生(表1)。不同产毒真菌在生态适应性和生理特性上的差异,决定了OTA污染在全球范围内呈现出明显的地域分布特征:在温暖或温带地区,由于曲霉属真菌更适应较高温度和相对干燥环境,OTA污染主要与曲霉属产毒菌相关;而在气候相对寒冷、湿度较高的地区,青霉属真菌更具竞争优势,青霉属产毒菌则成为OTA污染的主要来源[22]。基于OTA产毒真菌的生态学特征及其生物合成规律,目前针对OTA合成阶段的抑制措施主要集中于3个方面:1)通过调控环境条件或应用抑菌措施抑制产毒真菌的生长与定植;2)利用天然活性化合物干扰OTA的关键生物合成步骤,从源头降低毒素生成;3)通过基因敲除或基因沉默等分子生物学手段,靶向阻断产毒真菌中与OTA合成密切相关的关键功能基因。上述措施为OTA污染的源头控制提供了重要技术路径。
表1 产赭曲霉毒素A的部分菌种

Table 1 Partial species capable of producing OTA

菌属 Genus 亚属 Subgenus 菌种 Species 参考文献 Reference


曲霉属Aspergillus


环青霉属Circumdati
炭黑曲霉A. carbonarius [23]
蜂蜜曲霉A. melleus [24]
韦氏曲霉A. westerdijkiae [25]
斯泰恩曲霉A. steynii [26]
赭曲霉A. ochraceus [27]
近缘曲霉A. affinis [5]
彼得拉克曲霉A. petrakii [28]
菌核曲霉A. sclerotiorum [26]
灰绿曲霉A. glaucus [28]
硫色曲霉A. sulphureus [24]
烟曲霉A. fumigatus [29]
羊毛状曲霉A. lanosus [30]
塔宾曲霉A. tubingensis [31]
新石曲霉Neopetromyces muricatus [26]
乳咖啡曲霉A. lacticoffeatus [32]
臭曲霉A. foetidus [33]


曲霉属Aspergillus


黑曲霉属Nigri
百岁兰曲霉A. welwitschiae [34]
黑曲霉A. niger [29]
泡盛曲霉A. awamori [35]
黑曲霉(原变种)A. niger var. niger [29]
宇佐美曲霉A. usamii [36]
葱状曲霉A. alliaceus [37]
曲霉属Aspergillus 黄曲霉属Flavi 阿尔伯塔曲霉A. albertensis [27]


青霉属Penicillium
疣孢青霉P. verrucosum [38]
诺迪克青霉P. nordicum [38]
短密青霉P. brevicompactum [27]
百里香青霉P. thymicola [39]
甘草青霉P. glycyrrhizacola [23]
波兰青霉P. polonicum [23]
在真菌生长阶段,OTA的产生可通过多种非产毒微生物的生物拮抗作用得到有效抑制,尤其是细菌和酵母菌。此类微生物主要通过竞争营养物质和生存空间,或分泌具有抑菌活性的次级代谢产物,从而抑制产毒真菌的定植与扩增[40]。近年来,Stincone等[41]研究表明,芽孢杆菌属(Bacillus)菌株能够合成多种抗菌脂肽,在抑制产毒真菌生长方面表现出显著效果。Silveira等[42]研究发现,贝莱斯芽孢杆菌(Bacillus velezensis)P1菌株不仅可完全抑制葡萄浆果中A. carbonarius的生长,还能显著降低OTA的积累水平。除细菌外,酵母菌在OTA生物防控中同样发挥重要作用。Zjalic等[43]报道,酵母菌株酿酒酵母(Saccharomyces cerevisiae)可通过竞争性抑制作用,有效限制赭曲霉及其他产毒真菌的生长。相较于直接杀灭作用,酵母菌更倾向于通过快速消耗可利用碳源和氮源、改变微生态环境,从而削弱产毒真菌的生长优势。在机制层面,这些拮抗菌株在抑制OTA生物合成过程中通常表现出多靶点协同作用:一方面,其分泌的抗菌脂肽可抑制真菌细胞的蛋白质合成和细胞壁生物合成,影响菌丝伸长与孢子形成;另一方面,其代谢产物还可干扰真菌的能量代谢过程,破坏细胞膜完整性、通透性及渗透压调节能力,进而诱导细胞应激反应甚至程序性死亡。上述多重干预机制共同作用,使产毒真菌的生长与OTA合成受到持续而稳定的抑制。

2 OTA生物合成阶段的靶向干预措施

2.1 环境因子调控OTA生物合成的作用机制

OTA的生物合成受多种环境因素的显著调控,包括温度、水活性、pH、光照条件、二氧化碳(CO2)浓度以及碳源和氮源类型等。这些因素通过影响产毒真菌的生长状态、初级代谢水平及次级代谢通路,在不同层面协同调节OTA的生成过程。Shindia等[44]研究表明,OTA的最适生成温度约为25 ℃,当培养温度高于或低于25 ℃时,OTA产量均显著下降,提示温度可能通过调控真菌酶活性及代谢通量分配影响OTA生物合成效率。水活性和湿度是决定OTA污染风险的关键环境因子。Esteban等[45]发现,高水活性和高湿度环境不仅有利于真菌的生长和定植,也显著促进OTA的合成。进一步研究表明,当A. ochraceusA. carbonarius和黑曲霉(Aspergillus niger)在水活性为0.90~0.99的条件下培养时,OTA产量显著升高;而当水活性降至0.85以下时,OTA的生成几乎被完全抑制[46]。pH条件同样对OTA的生物合成具有重要调控作用。Franca Passamani等[47]研究表明,在A. carbonarius中,偏酸性环境更有利于OTA的合成,提示pH可能通过影响关键合成酶的活性或调控OTA生物合成基因簇的表达水平发挥作用。然而,不同菌株和基质条件下,pH对OTA产量的影响存在差异,反映出OTA合成调控具有明显的菌株依赖性和环境适应特征。营养因子,尤其是碳源类型,是影响OTA合成的重要内源性调控因素。Shindia等[44]指出,以蔗糖、葡萄糖和麦芽糖作为碳源时,OTA合成水平最高;而以乳糖、纤维素或木质素等复杂碳源为底物时,OTA产量显著降低。这一现象可能与易利用碳源促进糖酵解和乙酰辅酶A供给,从而增强多酮合成前体供应有关。与此同时,光照条件亦可显著影响OTA的生成。Petronijevic等[48]发现,在持续黑暗条件下培养产毒菌株时,OTA产量明显高于光照条件,提示光信号可能通过调控真菌发育和次级代谢相关转录因子,进而参与OTA生物合成调节。近年来的研究还表明,环境CO2浓度变化可通过影响真菌的代谢网络和环境应答机制,间接调控OTA生物合成相关基因的表达水平[49]。总体而言,温度、水活性、pH、光照条件以及营养因子等环境因素并非单独作用,而是通过多层级协同调控产毒真菌的代谢状态和基因表达网络,共同决定OTA的生物合成水平。

2.2 天然活性化合物对OTA生物合成的抑制作用

Kalagatur等[50]系统评估了多种植物精油的防霉活性,结果表明,这些精油对A. ochraceusP. verrucosum的生长均具有显著抑制作用。Roncero等[51]进一步总结了植物精油及其他天然活性化合物对多种霉菌毒素(包括OTA)的控制效果,认为此类天然物质在防霉和降毒方面具有良好的应用潜力。Giorni等[52]的研究也表明,多种植物副产物提取物能够显著降低OTA的生成水平,充分展示了天然化合物在OTA污染防控中的应用前景。在作用机制层面,除直接抑制产毒真菌生长外,部分天然活性化合物还可通过调控真菌中OTA生物合成相关基因的表达水平,进一步降低OTA的生成。基于最新研究结果,植物提取物和黄酮类化合物可通过多种途径协同抑制OTA的生物合成过程:一方面,这些化合物可破坏产毒真菌细胞膜和细胞壁结构,增加膜通透性并诱导细胞应激反应;另一方面,其还可抑制OTA生物合成过程中PKS、氧化酶等关键酶的活性,干扰前体物质的生成和代谢通量分配,从而在代谢水平和分子水平双重阻断OTA的合成。

2.3 基于基因敲除与编辑技术的OTA生物合成靶向干预

Gil-Serna等[53]通过对OTA产毒真菌(如A. carbonariusA. niger等)的全基因组比较分析,首次确认了OTA生物合成基因簇的存在。该基因簇由多个结构基因和调控基因组成,为OTA的系统性生物合成提供了遗传基础。随后,多项基因敲除研究从分子水平验证了该基因簇中关键基因在OTA合成过程中的必需作用。Gallo等[54]和Ferrara等[55]进一步报道,敲除otaD基因后,OTA的生成完全消失,而其去氯前体OTB显著积累,表明氯化反应是OTA生物合成的最后关键步骤,该卤素化酶为不可或缺的结构基因。在多酮骨架环化步骤方面,Ferrara等[55]利用CRISPR/Cas9技术在A. carbonarius中完全敲除环化酶(cyclase)基因otaY,结果显示,突变体几乎不产生OTA;该研究首次从遗传学层面明确证明cyclase在OTA生物合成中的必需性;在允许OTA合成条件下,otaY表达在野生型菌株中显著上调,而其缺失会导致OTA产量接近于零,进一步表明多酮骨架的正确环化对最终OTA形成至关重要。此外,O’Callaghan等[56]基于逆转录PCR(RT-PCR)分析发现,多酮合酶基因pks的转录水平与OTA产量高度相关,且2个细胞色素P450单加氧酶基因的表达模式与pks基本同步,暗示其可能参与OTA生物合成过程中的后续氧化修饰步骤。综上所述,现有基因敲除和表达分析研究一致表明,OTA的生物合成至少依赖于一组核心功能基因模块,包括pksotaBotaDotaY,以及参与后修饰或调控的氧化酶和转录因子。敲除任一关键结构基因均可显著破坏OTA的生物合成过程,从而为靶向基因层面的OTA源头控制提供了明确的分子依据。

3 OTA形成后的脱毒措施

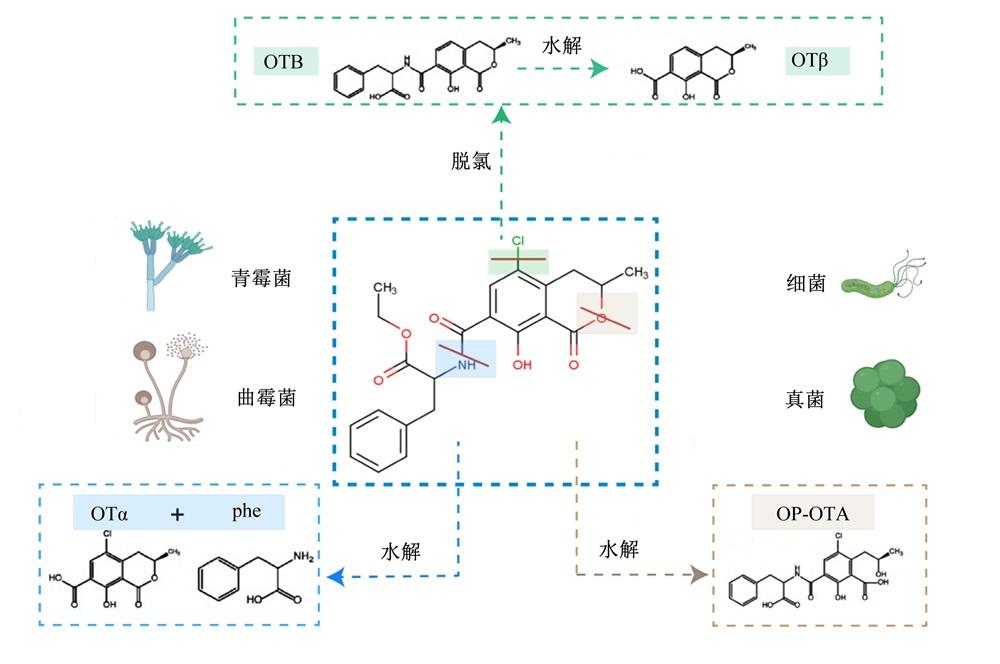
微生物介导的OTA生物降解过程见图3
图3 微生物介导的OTA生物降解

OTB:赭曲霉毒素B ochratoxin B;OTβ:赭曲霉毒素β ochratoxin β;OTα:赭曲霉毒素α ochratoxin α;phe:苯丙氨酸 phenylalanine;OP-OTA:开环内酯型赭曲霉毒素A lactone-opened ochratoxin A。

Fig.3 Microbe-mediated biodegradation of OTA

在细菌类群中,Bacillus是目前研究最为广泛的OTA降解菌之一。该属菌株能够形成内生孢子,从而耐受极端温度、pH和渗透压等不利环境条件,这一特性使其在饲料和食品工业中的实际应用具有显著优势。Xu等[57]研究发现,枯草芽孢杆菌(Bacillus subtilis)CW14具有较高的稳定性和抗菌活性,对OTA的抑制率可达71.3%,且其降解酶在20~70 ℃、pH 4~9的范围内仍能保持较高活性。地衣芽孢杆菌(Bacillus licheniformis)的活细胞及经121 ℃灭活的细胞均表现出较强的OTA吸附能力,其细胞游离上清液在24 h内对6.2 μg/mL OTA的降解率可达98%;在霉变玉米样本中亦可实现约35%的OTA去除效果[58]。Chang等[59]从谷仓储存玉米中分离获得解淀粉芽孢杆菌(Bacillus amyloliquefaciens)ASAG1,该菌株在液体培养体系及其细胞外提取物中均能有效降解OTA,进一步研究表明,其克隆表达的羧肽酶同样具有显著的OTA降解能力,提示该酶可能是OTA生物降解过程中的关键功能酶。Muhialdin等[60]指出,乳酸菌在OTA生物脱毒过程中主要通过细胞壁吸附以及将OTA转化为低毒代谢产物如赭曲霉毒素α(ochratoxin α,OTα)2种机制发挥作用;此外,乳酸菌还能通过产生乳酸等抗菌代谢物抑制产毒真菌的生长,从而间接降低OTA的生成,是一种安全、绿色的OTA控制措施。Zheng等[61]筛选获得鼠李糖乳酸菌(Lactobacillus rhamnosus)Bm01,该菌株在48 h内可去除约83.58%的OTA(50 ng/mL)。此外,An等[62]发现,解淀粉乳杆菌(Lactobacillus amylolyticus)L6的发酵产物对产毒真菌A. ochraceus具有显著抑制作用,当发酵上清液浓度为0.500 g/mL时,其抑制率可达40.00%,显示出良好的生物防控潜力。不动杆菌属(Acinetobacter)同样被认为是具有应用前景的OTA降解菌类群。不动杆菌BD189活菌在24 h内可去除80%以上的OTA,微核试验结果表明,经不动杆菌BD189菌株脱毒处理后的OTA溶液,其细胞毒性显著降低,人肝癌细胞系HepG2细胞微核形成数量明显减少,从功能层面验证了该菌株的有效脱毒能力[63]。在真菌类群中,A. niger是较早被报道具有OTA降解能力的代表性菌种之一。研究表明,该菌可将OTA水解转化为无毒代谢产物OTα,其粗酶液经进一步纯化后,主要获得羧肽酶类水解酶。姜楠等[64]研究指出,不同OTA解毒微生物在降解过程中形成的代谢产物可能存在一定差异,但羧肽酶类水解酶普遍被认为是OTA生物降解过程中的关键功能酶。鉴于A. niger的部分安全型工业菌株已被认定为公认安全(generally recognized as safe,GRAS)菌株,其作为OTA生物脱毒剂在食品和饲料工业中的应用潜力受到广泛关注。
Haq等[65]研究表明,酰胺键水解是OTA酶促脱毒的核心机制,该过程通过断裂OTA分子中的酰胺键,使其转化为毒性显著降低甚至无毒的代谢产物OTα和Phe,被认为是目前最具应用潜力的OTA脱毒途径之一。近年来,围绕OTA向OTα转化的关键功能酶研究不断深入,已报道的相关酶类主要包括酰胺水解酶、羧肽酶以及部分脂肪酶等。羧肽酶可通过水解OTA分子中的酰胺键,实现OTA分子结构的断裂。Xu等[66]通过对Bacillus subtilis CW14菌株进行基因组测序,鉴定出一种具有OTA降解能力的羧肽酶A(carboxypeptidase A,CPA),该酶在24 h内对OTA的降解率可达71.3%,为芽孢杆菌来源OTA降解酶的功能鉴定提供了重要依据。酰胺水解酶在OTA酶促脱毒中表现出更高的催化效率。Luo等[67]报道,重组乙醇脱氢酶3(ADH3)(1.2 μg/mL)在90 s内完全降解50 μg/L OTA,将OTA完全转化为OTα,其催化效率较此前报道的重组粪产碱杆菌N-酰基-L-氨基酸酰胺水解酶(rAfOTase)、重组赭曲霉毒素酶(rOTase)和CPA提高56.7至3.5×10⁴倍;进一步鉴定了一种氨基水解酶ADH3(1.2 μg/mL),该酶可在90 s内完全降解50 μg/L的OTA,显示出极高的催化效率和反应速率。Gonaus等[68]则发现,肽酶S9家族中的一种金属依赖型水解酶Chr1_3858681_3267对OTA的降解率可达100%,进一步拓展了OTA降解酶的酶学类型和功能谱系。除上述酶类外,部分脂肪酶同样被发现具有OTA酰胺键水解活性。Liu等[69]研究表明,某些脂肪酶可促进OTA分子中酰胺键的断裂,将OTA转化为OTα和Phe,同时将OTB转化为OTβ。Santos等[70]进一步报道,猪胰脂肪酶在44 ℃条件下作用7 h即可实现OTA的完全降解,表明脂肪酶在OTA酶促脱毒中亦具有一定的应用潜力。

4 小结与展望

OTA对动物多器官系统具有显著毒性,已成为影响畜禽健康和饲料安全的重要风险因素。围绕OTA污染防控,已逐步形成涵盖产毒前调控、产毒阶段抑制及产毒后脱毒的多层次综合措施,其中基于降解菌和降解酶的生物脱毒方法因高效、特异且环境友好而展现出广阔应用前景。尽管相关研究取得了重要进展,其在复杂饲料基质中的稳定性、降解产物的安全性以及规模化应用仍面临挑战。未来研究应进一步加强OTA生物降解与酶促脱毒机制的系统解析和技术优化,以推动构建全链条、可产业化的OTA防控体系。
[1]
AKINMOLADUN O F, FON F N, NJI Q, et al. Multiple mycotoxin contamination in livestock feed:implications for animal health,productivity,and food safety[J]. Toxins, 2025, 17(8):365.

[2]
KHAN R, ANWAR F, GHAZALI F M. A comprehensive review of mycotoxins:toxicology,detection,and effective mitigation approaches[J]. Heliyon, 2024, 10(8):e28361.

[3]
赵伟, 厉学武, LAMESGEN D, 等. 我国饲料原料和配合饲料中T-2毒素、赭曲霉毒素A和伏马毒素的污染研究[J]. 动物营养学报, 2024, 36(4):2690-2698.

ZHAO W, LI X W, LAMESGEN D, et al. A study of contamination of T-2 toxin,ochratoxin A and fumonisin in feed ingredients and compound feed in China[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2690-2698. (in Chinese)

[4]
EL KHOURY A, ATOUI A. Ochratoxin A:general overview and actual molecular status[J]. Toxins, 2010, 2(4):461-493.

[5]
WANG Y, WANG L Q, LIU F, et al. Ochratoxin A producing fungi,biosynthetic pathway and regulatory mechanisms[J]. Toxins, 2016, 8(3):83.

[6]
王晓萱, 赵琳琳, 李露露, 等. 赭曲霉毒素A对动物的危害及脱毒研究进展[J]. 动物营养学报, 2024, 36(1):107-114.

WANG X X, ZHAO L L, LI L L, et al. Research progress on harm of ochratoxin A to animals and its detoxification[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):107-114. (in Chinese)

[7]
BANAHENE J C M, OFOSU I W, ODAI B T, et al. Ochratoxin A in food commodities:a review of occurrence,toxicity,and management strategies[J]. Heliyon, 2024, 10(20):e39313.

[8]
BEN MIRI Y, BENABDALLAH A, CHENTIR I, et al. Comprehensive insights into ochratoxin A:occurrence,toxicity,and control strategies[J]. Foods, 2024, 13(8):1184.

[9]
DE MELO NAZARETH T, SORIANO PÉREZ E, LUZ C, et al. Comprehensive review of aflatoxin and ochratoxin A dynamics:emergence,toxicological impact,and advanced control strategies[J]. Foods, 2024, 13(12):1920.

[10]
PITTET A. Natural occurrence of mycotoxins in foods and feeds:an updated review[J]. Revue de Médecine Vétérinaire, 1998, 149(6):479-492.

[11]
NGUYEN M T, TOZLOVANU M, TRAN T L, et al. Occurrence of aflatoxin B1,citrinin and ochratoxin A in rice in five provinces of the central region of Vietnam[J]. Food Chemistry, 2007, 105(1):42-47.

[12]
LEE H J, RYU D. Worldwide occurrence of mycotoxins in cereals and cereal-derived food products:public health perspectives of their co-occurrence[J]. Journal of Agricultural and Food Chemistry, 2017, 65(33):7034-7051.

[13]
HUONG B T M, TUYEN L D, MADSEN H, et al. Total dietary intake and health risks associated with exposure to aflatoxin B1,ochratoxin A and fuminisins of children in Lao Cai province,Vietnam[J]. Toxins, 2019, 11(11):638.

[14]
PIETRUSZKA K, PIATKOWSKA M, JEDZINIAK P. Occurrence of ochratoxin A in animal tissues and feeds in Poland in 2014-2016[J]. Journal of Veterinary Research, 2017, 61(4):483-487.

[15]
石鸿辉, 陈少敏, 黎欣欣, 等. 葡萄酒中赭曲霉毒素A污染情况及其分析方法的研究进展[J]. 食品安全质量检测学报, 2020, 11(16):5371-5379.

SHI H H, CHEN S M, LI X X, et al. Research progress on ochratoxin A contamination in wine and its analytical methods[J]. Journal of Food Safety & Quality, 2020, 11(16):5371-5379. (in Chinese)

[16]
杨延友, 高文花, 温红玲, 等. 济南市售小米和玉米中赭曲霉素A污染状况研究[J]. 山东大学学报(医学版), 2010, 48(11):125-128.

YANG Y Y, GAO W H, WEN H L, et al. Contamination of ochratoxin A in millet and maize sold in Jinan[J]. Journal of Shandong University(Health Sciences), 2010, 48(11):125-128. (in Chinese)

[17]
QING H R, HUANG S M, ZHAN K, et al. Combined toxicity evaluation of ochratoxin A and aflatoxin B1 on kidney and liver injury,immune inflammation,and gut microbiota alteration through pair-feeding pullet model[J]. Frontiers in Immunology, 2022, 13:920147.

[18]
SAJJAD Y, DIB J, SOLIMAN N, et al. The role of mycotoxins in reproductive health:mechanisms,evidence,and clinical implications[J]. Journal of IVF-Worldwide, 2025, 3(1):42-55.

[19]
曾睿, 陈佩榕, 王琼珊, 等. 我国华南地区家禽配合饲料中3种真菌毒素污染现状分析[J]. 动物营养学报, 2024, 36(1):672-680.

ZENG R, CHEN P R, WANG Q S, et al. Pollution situation analysis of 3 mycotoxins in poultry compound feeds from South China[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):672-680. (in Chinese)

[20]
WIECKOWSKA M, SZELENBERGER R, POPLAWSKI T, et al. Gut as a target of ochratoxin A:toxicological insights and the role of microbiota[J]. International Journal of Molecular Sciences, 2025, 26(19):9438.

[21]
MUBARIK Y, BOYETEY S T, AIKINS A R, et al. Effect of ochratoxin A (OTA) on the immune system:a systematic review[J]. Toxins, 2025, 17(5):256.

[22]
赵丽红, 马秋刚, 李笑樱, 等. 抽样调查北京地区猪场饲料及饲料原料赭曲霉毒素A污染状况[J]. 动物营养学报, 2012, 24(10):1999-2005.

ZHAO L H, MA Q G, LI X Y, et al. Sampling and investigating ochratoxin A contamination of feeds and feedstuffs from pig farms in Beijing area[J]. Chinese Journal of Animal Nutrition, 2012, 24(10):1999-2005. (in Chinese)

[23]
PERRONE G, MULÈ G, SUSCA A, et al. Ochratoxin A production and amplified fragment length polymorphism analysis of Aspergillus carbonarius,Aspergillus tubingensis,and Aspergillus niger strains isolated from grapes in Italy[J]. Applied and Environmental Microbiology, 2006, 72(1):680-685.

[24]
LAI M, SEMENIUK G, HESSELTINE C W. Conditions for production of ochratoxin A by Aspergillus species in a synthetic medium[J]. Applied Microbiology, 1970, 19(3):542-544.

[25]
HAN X L, CHAKRABORTTI A, ZHU J D, et al. Sequencing and functional annotation of the whole genome of the filamentous fungus Aspergillus westerdijkiae[J]. BMC Genomics, 2016, 17(1):633.

[26]
FRISVAD J C, FRANK J M, HOUBRAKEN J A M P, et al. New ochratoxin A producing species of Aspergillus section Circumdati[J]. Studies in Mycology, 2004, 50(1):23-43.

[27]
VARGA J, KEVEI E, RINYU E, et al. Ochratoxin production by Aspergillus species[J]. Applied and Environmental Microbiology, 1996, 62(12):4461-4464.

[28]
BAYMAN P, BAKER J L, DOSTER M A, et al. Ochratoxin production by the Aspergillus ochraceus group and Aspergillus alliaceus[J]. Applied and Environmental Microbiology, 2002, 68(5):2326-2329.

[29]
ABARCA M L, BRAGULAT M R, CASTELLÁ G, et al. Ochratoxin A production by strains of Aspergillus niger var. niger[J]. Applied and Environmental Microbiology, 1994, 60(7):2650-2652.

[30]
PALUMBO J D, O’KEEFFE T L, MAHONEY N E, et al. Inhibition of ochratoxin A production and growth of Aspergillus species by phenolic antioxidant compounds[J]. Mycopathologia, 2007, 164(5):241-248.

[31]
LAHOUAR A, MARIN S, CRESPO-SEMPERE A, et al. Influence of temperature,water activity and incubation time on fungal growth and production of ochratoxin A and zearalenone by toxigenic Aspergillus tubingensis and Fusarium incarnatum isolates in sorghum seeds[J]. International Journal of Food Microbiology, 2017, 242:53-60.

[32]
SAMSON R A, HOUBRAKEN J A M P, KUIJPERS A F A, et al. New ochratoxin A or sclerotium producing species in Aspergillus section nigri[J]. Studies in Mycology, 2004, 50(1):45-61.

[33]
TÉREN J, VARGA J, HAMARI Z, et al. Immunochemical detection of ochratoxin A in black Aspergillus strains[J]. Mycopathologia, 1996, 134(3):171-176.

[34]
SUSCA A, PROCTOR R H, MORELLI M, et al. Variation in fumonisin and ochratoxin production associated with differences in biosynthetic gene content in Aspergillus niger and A. welwitschiae isolates from multiple crop and geographic origins[J]. Frontiers in Microbiology, 2016, 7:1412.

[35]
DALCERO A, MAGNOLI C, HALLAK C, et al. Detection of ochratoxin A in animal feeds and capacity to produce this mycotoxin by Aspergillus section nigri in Argentina[J]. Food Additives & Contaminants, 2002, 19(11):1065-1072.

[36]
ONO H, KATAOKA A, KOAKUTSU M, et al. Ochratoxin A producibility by strains of Aspergillus niger group stored in IFO culture collection[J]. JSM Mycotoxins, 1995, 41:47-51.

[37]
HESSELTINE C W, VANDEGRAFT E E, FENNELL D I, et al. Aspergilli as ochratoxin producers[J]. Mycologia, 1972, 64(3):539-550.

[38]
CABAÑES F J, BRAGULAT M R, CASTELLÁ G. Ochratoxin A producing species in the genus Penicillium[J]. Toxins, 2010, 2(5):1111-1120.

[39]
NGUYEN H D T, MCMULLIN D R, PONOMAREVA E, et al. Ochratoxin A production by Penicillium thymicola[J]. Fungal Biology, 2016, 120(8):1041-1049.

[40]
FARBO M G, URGEGHE P P, FIORI S, et al. Effect of yeast volatile organic compounds on ochratoxin A-producing Aspergillus carbonarius and A. ochraceus[J]. International Journal of Food Microbiology, 2018, 284:1-10.

[41]
STINCONE P, VERAS F F, QUEIROZ PEREIRA J, et al. Diversity of cyclic antimicrobial lipopeptides from Bacillus P34 revealed by functional annotation and comparative genome analysis[J]. Microbiological Research, 2020, 238:126515.

[42]
SILVEIRA R D, VERAS F F, BACH E, et al. Aspergillus carbonarius-derived ochratoxins are inhibited by Amazonian Bacillus spp. used as a biocontrol agent in grapes[J]. Food Additives & Contaminants:Part A, 2022, 39(1):158-169.

[43]
ZJALIC S, MARKOV K, LONCAR J, et al. Biocontrol of occurrence ochratoxin A in wine:a review[J]. Toxins, 2024, 16(6):277.

[44]
SHINDIA A A, AMMAR H, ISMAIL A E A, et al. Ecophysiological factor effect on growth and ochratoxin A production by Aspergillus ochraceus[J]. African Journal of Parasitology Research, 2016, 3(3):176-186.

[45]
ESTEBAN A, ABARCA M L, BRAGULAT M R, et al. Effect of water activity on ochratoxin A production by Aspergillus niger aggregate species[J]. International Journal of Food Microbiology, 2006, 108(2):188-195.

[46]
SPADARO D, PATHARAJAN S, LORE A, et al. Effect of pH,water activity and temperature on the growth and accumulation of ochratoxin A produced by three strains of Aspergillus carbonarius isolated from Italian vineyards[J]. Phytopathologia Mediterranea, 2010, 49(1):65-73.

[47]
FRANCA PASSAMANI F R, HERNANDES T, LOPES N A, et al. Effect of temperature,water activity,and pH on growth and production of ochratoxin A by Aspergillus niger and Aspergillus carbonarius from Brazilian grapes[J]. Journal of Food Protection, 2014, 77(11):1947-1952.

[48]
PETRONIJEVIC F, WIESENBERGER G, SUSCA A, et al. Production and purification of ochratoxin A:effects of media,light,and fungal strain variety[J]. World Mycotoxin Journal, 2025, 19(1):35-48.

[49]
LLOBREGAT B, CERVINI C, GONZÁLEZ-CANDELAS L, et al. Will climate change affect growth and ochratoxin A production of putative biocontrol knockout strains of Aspergillus carbonarius?[J]. International Journal of Food Microbiology, 2025, 439:111250.

[50]
KALAGATUR N K, GURUNATHAN S, KAMASANI J R, et al. Inhibitory effect of C. zeylanicum,C. longa,O. basilicum,Z. officinale,and C. martini on growth and ochratoxin A content of A. ochraceus and P. verrucosum in maize grains[J]. Biotechnology Reports, 2020, 27:e00490.

[51]
RONCERO E, DELGADO J, MORCUENDE D, et al. Plant extracts as biopreservatives against Penicillium nordicum in dry-cured sausages[J]. Food Control, 2023, 153:109972.

[52]
GIORNI P, BULLA G, LENI G, et al. Enhancement of agri-food by-products:green extractions of bioactive molecules with fungicidal action against mycotoxigenic fungi and their mycotoxins[J]. Frontiers in Nutrition, 2023, 10:1196812.

[53]
GIL-SERNA J, GARCÍA-DÍAZ M, GONZÁLEZ-JAÉN M T, et al. Description of an orthologous cluster of ochratoxin A biosynthetic genes in Aspergillus and Penicillium species. A comparative analysis[J]. International Journal of Food Microbiology, 2018, 268:35-43.

[54]
GALLO A, BRUNO K S, SOLFRIZZO M, et al. New insight into the ochratoxin A biosynthetic pathway through deletion of a nonribosomal peptide synthetase gene in Aspergillus carbonarius[J]. Applied and Environmental Microbiology, 2012, 78(23):8208-8218.

[55]
FERRARA M, GALLO A, CERVINI C, et al. Evidence of the involvement of a cyclase gene in the biosynthesis of ochratoxin A in Aspergillus carbonarius[J]. Toxins, 2021, 13(12):892.

[56]
O’CALLAGHAN J, STAPLETON P C, DOBSON A D W. Ochratoxin A biosynthetic genes in Aspergillus ochraceus are differentially regulated by pH and nutritional stimuli[J]. Fungal Genetics and Biology, 2006, 43(4):213-221.

[57]
XU X G, PANG M, LIU J W, et al. Genome mining reveals the genes of carboxypeptidase for OTA-detoxification in Bacillus subtilis CW14[J]. International Journal of Biological Macromolecules, 2021, 186:800-810.

[58]
师磊, 梁志宏, 徐诗涵, 等. 一株地衣芽胞杆菌Sl-1对赭曲霉毒素A的吸附和降解研究[J]. 农业生物技术学报, 2013, 21(12):1420-1425.

SHI L, LIANG Z H, XU S H, et al. Adsorption and degradation of ochratoxin A by Bacillus licheniformis Sl-1[J]. Journal of Agricultural Biotechnology, 2013, 21(12):1420-1425. (in Chinese)

[59]
CHANG X J, WU Z D, WU S L, et al. Degradation of ochratoxin A by Bacillus amyloliquefaciens ASAG1[J]. Food Additives & Contaminants:Part A, 2015, 32(4):564-571.

[60]
MUHIALDIN B J, SAARI N, MEOR HUSSIN A S, et al. Review on the biological detoxification of mycotoxins using lactic acid bacteria to enhance the sustainability of foods supply[J]. Molecules, 2020, 25(11):2655.

[61]
ZHENG X F, XIA F P, LI J, et al. Reduction of ochratoxin A from contaminated food by Lactobacillus rhamnosus Bm01[J]. Food Control, 2023, 143:109315.

[62]
AN P P, LI L, HE Y, et al. Inhibition of toxigenic Aspergillus ochraceus by Lactobacillus amylolyticus L6 via its metabolites,hydroxy-3-methoxycinnamic acid and 3,7-dimethyl-2,6-octadienol[J]. LWT, 2025, 220:117551.

[63]
梁晓翠. 不动杆菌BD189对赭曲霉毒素A的脱毒研究[D]. 硕士学位论文. 上海: 上海交通大学, 2010.

LIANG X C. The study of detoxification of ochratoxin A by Acinetobacter sp. BD189[D]. Master’s Thesis. Shanghai: Shanghai Jiao Tong University, 2010. (in Chinese)

[64]
姜楠, 王刘庆, 姜冬梅, 等. AcCdr4对炭黑曲霉生长和赭曲霉毒素A合成的调控功能[J]. 核农学报, 2025, 39(3):437-448.

JIANG N, WANG L Q, JIANG D M, et al. Regulated function of AcCdr4 on growth and ochratoxin A production of Aspergillus carbonarius[J]. Journal of Nuclear Agricultural Sciences, 2025, 39(3):437-448. (in Chinese)

[65]
HAQ M, GONZALEZ N, MINTZ K, et al. Teratogenicity of ochratoxin A and the degradation product,ochratoxin αin the zebrafish (Danio rerio) embryo model of vertebrate development[J]. Toxins, 2016, 8(2):40.

[66]
XU H W, WANG L Z, SUN J D, et al. Microbial detoxification of mycotoxins in food and feed[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(18):4951-4969.

[67]
LUO H, WANG G, CHEN N, et al. A superefficient ochratoxin A hydrolase with promising potential for industrial applications[J]. Applied and Environmental Microbiology, 2022, 88(2):e0196421.

[68]
GONAUS C, WIELAND L, THALLINGER G G, et al. Ochratoxin A degrading enzymes of Stenotrophomonas sp. 043-1a[J]. FEMS Microbiology Letters, 2023,370:fnad028.

[69]
LIU M Y, ZHANG X, LUAN H N, et al. Bioenzymatic detoxification of mycotoxins[J]. Frontiers in Microbiology, 2024, 15:1434987.

[70]
SANTOS J, OLIVEIRA C, TEIXEIRA F, et al. Enzymatic degradation of ochratoxin A:the role of ultra-pure water[J]. Foods, 2025, 14(3):397.

文章导航

/