综述

牛磺酸缓解断奶仔猪肠道氧化损伤机制的研究进展

  • 温金城 ,
  • 张伟龙 ,
  • 陈琛 ,
  • 唐志如 , *
展开
  • 西南大学动物科学技术学院, 重庆 400700
*唐志如,研究员,博士生导师,E-mail:

温金城(2002—),男,四川巴中人,硕士研究生,从事单胃动物营养与免疫调控研究。E-mail:

Office editor: 田艳明

收稿日期: 2026-01-14

  网络出版日期: 2026-08-13

基金资助

国家自然科学基金面上项目(32372894)

Research Progress on Mechanism of Taurine Alleviating Intestinal Oxidative Damage in Weaned Piglets

  • WEN Jincheng ,
  • ZHANG Weilong ,
  • CHEN Chen ,
  • TANG Zhiru , *
Expand
  • College of Animal Science and Technology, Southwest University, Chongqing 400700, China
*professor, E-mail:

Received date: 2026-01-14

  Online published: 2026-08-13

摘要

断奶应激易导致仔猪氧化还原稳态失衡,引发肠道及全身器官损伤,严重影响生长性能。牛磺酸(Tau)是一种功能性条件必需氨基酸,具有抗炎、抗氧化、免疫调节及促进生长发育等多种生物学功能。本文从Tau调控谷胱甘肽(GSH)/二硫化谷胱甘肽(GSSG)抗氧化系统、核因子E2相关因子2(Nrf2)/抗氧化反应元件(ARE)抗氧化信号通路及维持线粒体正常功能3个层面综述了Tau在缓解断奶仔猪肠道氧化损伤中的核心作用机制,以期为理解Tau的抗氧化作用机制及其在养猪生产中的精准应用提供参考。

本文引用格式

温金城 , 张伟龙 , 陈琛 , 唐志如 . 牛磺酸缓解断奶仔猪肠道氧化损伤机制的研究进展[J]. 动物营养学报, 2026 , 38(8) : 5583 -5592 . DOI: 10.12418/CJAN2026.446

Abstract

Weaning stress readily disrupts redox homeostasis in piglets, triggering intestinal and systemic organ damage that severely impairs growth performance. Taurine (Tau) is a conditionally essential amino acid with multiple biological functions, including anti-inflammatory and antioxidant effects, immune modulation, and promotion of growth and development. This review elucidates Tau’s core mechanisms in alleviating intestinal oxidative stress in weaned piglets across three levels: regulation of the glutathione (GSH)/glutathione disulphide (GSSG) antioxidant system, modulation of the nuclear factor erythroid 2-related factor 2 (Nrf2)/antioxidant response element (ARE) antioxidant signaling pathway, and maintenance of normal mitochondrial function. It provides insights into the mechanisms underlying Tau’s antioxidant effects and offers guidance for its precise application in swine production.

断奶是仔猪生长发育过程中的关键转折点,也是其最易发生应激损伤的时期。在现代养猪业中,为提高母猪繁殖效率,仔猪通常在21~28日龄实行早期断奶。此时,仔猪的消化和免疫系统还未发育成熟,需应对环境、营养及生理等多重应激挑战。在此阶段,仔猪易发生断奶应激,其特征为肠道氧化损伤、屏障受损及炎症发生。研究表明,断奶后24~72 h,仔猪体内氧化还原稳态迅速失衡[1],血清皮质醇水平升高,肠道黏膜活性氧(reactive oxygen species,ROS)含量激增,进入典型的氧化应激状态。肠道作为应激的直接靶器官,在氧化应激发生时首先便会遭到严重损伤,导致肠道紧密连接蛋白表达下调,肠道绒毛萎缩以及隐窝增深等,并伴随着炎症因子的释放和肠道通透性增加,进一步加剧ROS的生成;之后,细菌内毒素(endotoxin)通过受损的肠道屏障进入血液循环,激活远端器官的炎症信号通路和ROS产生途径,导致肝脏、脾脏等全身器官产生过量ROS[2],最终表现为仔猪采食量下降、腹泻率显著升高及生长迟缓,给养猪业造成巨大的经济损失[3]
近年来,随着农业农村部禁抗政策的颁布,营养调控手段成为缓解仔猪断奶应激、减轻氧化损伤的研究热点,牛磺酸(taurine,Tau)也因其独特的生物学功能而备受关注。与传统抗氧化剂如维生素E和硒等相比,Tau不仅具有清除过氧化氢(H2O2)和羟自由基(·OH)等ROS的能力,还可通过调控细胞内关键信号通路和代谢网络,增强机体内源性抗氧化防御能力[4-5]。近年来的研究发现,Tau及其氯胺衍生物可通过激活核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)/抗氧化反应元件(antioxidant response element,ARE)信号通路,诱导包括谷氨酸半胱氨酸连接酶(glutamate-cysteine ligase,GCL)在内的抗氧化基因转录,促进谷胱甘肽(glutathione,GSH)合成及二硫化谷胱甘肽(glutathione disulphide,GSSG)再生为GSH,增强机体抗氧化防御能力[6-8];同时,Tau还是线粒体转运RNA(tRNA)上5-牛磺酰甲基尿苷(5-taurinomethyluridine,τm5U)修饰的关键底物,该修饰对于维持呼吸链复合物活性及线粒体稳态至关重要[9-11]。基于此,本文将从Tau调控GSH/GSSG抗氧化系统、Nrf2/ARE抗氧化信号通路及维持线粒体正常功能3个层面综述Tau在缓解断奶仔猪肠道氧化损伤中的核心作用机制,以期为理解Tau的抗氧化作用机制及其在养猪生产中的精准应用提供参考。

1 Tau调控GSH/GSSG抗氧化系统

GSH是哺乳动物细胞内丰度最高的非蛋白巯基化合物,由谷氨酸、半胱氨酸和甘氨酸缩合而成。作为细胞抗氧化防御网络的核心,GSH既可利用其半胱氨酸残基上的活性巯基(-SH),直接清除·OH、超氧阴离子( ${\mathrm{O}}_{2}^{-}$·)等ROS;又可作为谷胱甘肽过氧化物酶(glutathione peroxidase,GPx)的底物参与H2O2的分解,并在此过程中被氧化为GSSG,随后在谷胱甘肽还原酶(glutathione reductase,GR)和还原型辅酶Ⅱ(NADPH)的作用下再生为GSH,形成“GSH-GSSG-GSH”的动态循环[12-13]。GSH及其氧化形式GSSG构成了细胞内最重要的抗氧化缓冲对,其稳态对于维持细胞正常功能至关重要。在正常生理状态下,细胞内GSH/GSSG比值维持在一个很高的水平,通常在10∶1~100∶1,处于高度还原状态;然而,在断奶应激等病理条件下,ROS增加导致GSH被过度消耗,GSSG累积,该比值可能迅速下降,因此,GSH/GSSG比值是衡量细胞氧化还原状态(redox status)的常用标准[14]。维持该比值的稳定,主要依赖于GSH的从头合成能力以及GR、GPx等关键酶的协同作用。研究表明,在断奶后早期,仔猪肠道黏膜和血清GSH含量显著下降,而GSSG和丙二醛(MDA)含量等氧化损伤指标升高,使GSH/GSSG比值明显降低,这种氧化指标变化广泛存在于空肠、回肠、肝脏甚至血液中,表明断奶应激使仔猪呈现氧化还原失衡趋势或已处于氧化损伤状态[15-16]

1.1 Tau对GSH合成和再生的影响

GSH的从头合成由GCL和谷胱甘肽合成酶(glutathione synthase,GS)分2步催化完成,其中GCL是限速酶[17]。Tau并非是GSH生物合成的直接前体,但其可通过多种代谢调控机制,显著增强GSH的合成和再生循环,从而提升细胞的抗氧化储备。研究证实,Tau及其氯胺衍生物可调节Nrf2/ARE信号通路,促进Nrf2核转位并与ARE结合,从而显著上调GCL催化亚基(GCLC)和GCL调节亚基(GCLM)的mRNA转录及蛋白表达,提高GSH的生物合成效率[6,18]。而半胱氨酸作为GSH合成的限速底物,其在断奶应激期间容易因氧化损伤和蛋氨酸转化障碍而匮乏。研究发现,Tau能显著改善半胱氨酸的生物利用度,一方面,作为半胱氨酸代谢的终产物,外源性Tau通过负反馈机制调节半胱氨酸双加氧酶(cysteine dioxygenase,CDO)的活性,减少半胱氨酸向Tau途径的转化,降低“代谢分流”[19];另一方面,Tau通过抑制炎症引起的半胱氨酸氧化消耗,确保更多半胱氨酸流向GSH合成途径[5,20]。由此表明,Tau可以通过调控GSH合成的限速酶GCL的表达和底物供应在GSH合成方面发挥促进作用。
氧化形成的GSSG还原为GSH的过程高度依赖NADPH[21]。研究表明,Tau可通过Nrf2信号通路增加胞内NADPH的生成,也可通过其代谢衍生物牛磺酸氯胺(taurine chloramine,TauCl)清除ROS,减少细胞内NADPH的消耗,为GR提供充足的还原力[18,22]。同时,Tau通过保护线粒体功能,以维持ATP的产生,为GSH合成和再生过程提供充足的能量支持[23]。这说明,Tau在一定程度上可通过保障能量及还原当量的供应来支持GR的功能,以促进GSH的再生。

1.2 Tau对GSH/GSSG比值及相关酶活性的调节

氧化应激导致的GSH/GSSG抗氧化系统失衡是断奶仔猪肠道及全身氧化损伤的重要驱动因素。断奶应激发生时,通常导致仔猪肠道黏膜及血清GSH含量显著下降,而GSSG含量显著升高,GSH/GSSG比值明显降低。相关研究显示,Tau处理可使仔猪血清及肝脏GSH含量显著回升,GSSG含量降低,使GSH/GSSG比值从应激组的低谷恢复至接近正常水平[8,15,24]。此外,Tau亦可显著提升GPx和GR活性。断奶应激常导致仔猪GPx活性下降,Tau不仅通过Nrf2信号通路在转录层面提高GPx的表达,还可通过维持GPx的稳定,使肠道GPx活性显著提升[6,8]。同时,Tau处理通常表现出更高的GR活性,这一方面归功于NADPH供应的改善,另一方面则是由于Tau清除了部分ROS,降低了胞内氧化压力,保护了GR蛋白免受氧化修饰[25]
综上所述,Tau对GSH/GSSG抗氧化系统的调节主要依靠其调控Nrf2/ARE信号通路的能力,通过促进抗氧化相关基因的转录与表达以及促进NADPH和ATP的生成,并维持相关酶的活性来调节GSH/GSSG抗氧化系统的稳态,从而提高断奶仔猪的抗氧化能力。

2 Tau调控Nrf2/ARE信号通路

Nrf2作为一种对氧化还原状态高度敏感的转录因子,其核心功能是感知细胞内的氧化和亲电刺激。Nrf2含有独特的N端Neh2结构域,这是其主要负调控蛋白Kelch样ECH关联蛋白1(Kelch-like ECH-associated protein 1,Keap1)的结合位点;而其C端的bZIP结构域则负责与DNA上的ARE序列特异性结合[26-27]。在正常生理状态下,传感器蛋白Keap1会促进转录因子Nrf2的泛素化降解,使其保持低水平;一旦细胞受到ROS或毒素攻击,Keap1被修饰而改变构象,Nrf2得以积累并进入细胞核,通过结合ARE,启动一系列解毒、抗氧化及抗炎基因的表达,帮助细胞适应压力环境,维持生存[28-29]

2.1 Nrf2信号通路在仔猪抗氧化中的核心地位

Nrf2/ARE信号通路被广泛认为是哺乳动物抵御氧化损伤、维持细胞内氧化还原稳态的核心调控轴之一,在多种应激条件下发挥关键保护作用。对于断奶仔猪而言,这一信号通路的活性至关重要,在断奶应激发生期间,仔猪体内氧化代谢增强,ROS生成显著增加,超过其内源抗氧化清除能力,使仔猪发生氧化损伤,而Nrf2/ARE信号通路的激活可缓解断奶诱导的氧化损伤和生长性能下降;在断奶应激条件下,仔猪肠道和肝脏组织中Nrf2信号通路可能出现抑制现象,体内高水平ROS不仅直接损伤大分子,还可能通过多种机制干扰Keap1-Nrf2调控轴,导致Nrf2核转位及下游抗氧化基因表达受限[30]。这种Nrf2信号应答的抑制也被认为是断奶后氧化损伤持续、肠道屏障功能受损的重要分子基础之一。

2.2 Tau激活Nrf2信号通路的机制和效应

2.2.1 促进Nrf2核转位

Tau促进Nrf2从胞浆向胞核转移的机制是多层次的。相关研究显示,Tau及其氯胺衍生物可通过影响Keap1构象、激酶信号和下游基因转录等多个层面调节Nrf2信号通路,在抗氧化应答中发挥重要作用[6,7,18,31]
Keap1是一个富含半胱氨酸的传感器蛋白。在炎症伴随的氧化损伤中,Tau可被白细胞中的髓过氧化物酶(myeloperoxidase,MPO)催化生成TauCl[18]。TauCl作为一种温和的氧化剂,能氧化Keap1上的关键半胱氨酸残基,诱导Keap1发生变构效应并解除Nrf2抑制,构象改变后的Keap1丧失了与Cul3-E3泛素连接酶复合物的偶联能力,导致其无法将Nrf2标记为泛素化底物,这使得新合成的Nrf2蛋白得以逃脱蛋白酶体的降解,并在胞浆内迅速积累,为核转位做好物质储备[18,26,32]
具有活性的糖原合成酶激酶-3β(glycogen synthase kinase-3β,GSK-3β)通常会促进Nrf2降解,有相关研究显示,Tau能够调节细胞膜受体及胞内信号转导,通过Tau处理可激活仔猪细胞内的磷脂酰肌醇3-激酶(phosphatidylinositol 3-kinase,PI3K)/蛋白激酶B(protein kinase B,Akt)信号通路,导致GSK-3β发生丝氨酸磷酸化而失活,减少Nrf2降解,进一步增强Nrf2稳定性[33-35]。同时,Tau也可通过激活细胞外信号调节激酶(extracellular signal-regulated kinase,ERK)来增强Nrf2的活性[36-37]。ERK能磷酸化Nrf2,这种磷酸化修饰能够协助Nrf2通过核孔复合物进入细胞核,促进Nrf2的核转位[38]

2.2.2 全面上调Nrf2下游靶基因

Nrf2入核后与小Maf蛋白(small Maf protein,sMaf)形成异二聚体,特异性结合于下游基因启动子区的ARE序列,启动下游抗氧化和解毒基因转录程序。
Nrf2激活后参与GSH/GSSG抗氧化系统,调控GSH的生物合成和再生循环。激活的Nrf2通过调控GSH生物合成的关键限速酶GCL的表达,以提高GSH的生物合成能力[39];同时,Nrf2通过调控GPxGR的表达,提高“GSH-GSSG-GSH”动态循环系统的通量,进而促进GSH的再生。
血红素氧合酶-1(heme oxygenase-1,HO-1)是Nrf2诱导的最强效细胞保护酶之一,不仅能降解促氧化的游离血红素,其代谢产物胆红素更是一种强效的ROS清除剂。激活的Nrf2可诱导HO-1的表达,为机体抗氧化提供长效保护作用[6,40]。同时,Nrf2激活能够显著增强超氧化物歧化酶(superoxide dismutase,SOD)和过氧化氢酶(catalase,CAT)的表达,与其他抗氧化酶共同组成了ROS防御屏障[18,31]
除此以外,Nrf2还调控Ⅰ/Ⅱ相解毒酶基因的表达,参与代谢解毒。Nrf2调控的Ⅰ相解毒酶NAD(P)H醌氧化还原酶1[NAD(P)H quinone oxidoreductase 1,NQO1),可以促进醌类物质的双电子还原,避免其通过单电子还原产生大量ROS,对于维持线粒体膜稳定性尤为重要[41-42]。同时,Nrf2也调控Ⅱ相解毒酶谷胱甘肽S-转移酶(glutathione S-transferase,GST),其在各种类型亲电试剂的解毒中发挥作用,能够增强毒素与GSH的结合排出,减轻断奶期间饲粮抗原或代谢毒素对细胞的损伤[43-44]
此外,Tau对Nrf2/ARE信号通路的调控与其保护线粒体功能正常的作用密切相关。线粒体是细胞内ROS产生的主要源头,当线粒体功能障碍时,ROS过量产生并泄漏积累,进一步抑制Nrf2的活性。Tau能够通过改善线粒体功能降低线粒体活性氧(mitochondrial reactive oxygen species,mtROS)的生成,缓解ROS过量对Nrf2活性的抑制,从而增强Nrf2介导的抗氧化应答。Tau处理使肠道和肝脏组织mtROS水平降低,同时Nrf2靶基因表达增强、抗氧化酶活性提升,这种双向作用机制使Tau既能够从源头减少氧化压力,又能够提升细胞抗氧化能力,为断奶仔猪提供更全面的保护。

3 Tau通过保护线粒体功能从源头减轻仔猪氧化损伤

线粒体作为真核细胞的“能量工厂”和重要代谢枢纽,既是细胞合成ATP以维持生命活动的核心场所,同时也是细胞内ROS最主要的内源性来源之一[45-46]。断奶应激不仅造成细胞氧化还原稳态的失衡,更对线粒体功能产生影响。肠道线粒体的这种功能障碍进一步导致屏障蛋白合成不足、紧密连接结构变化及细胞更新能力下降,使肠道屏障结构完整性进一步被削弱。Tau作为细胞内含量最丰富的游离氨基酸之一,可通过维持物理层面的膜电位/离子稳态及参与分子层面的线粒体tRNA修饰调控的双重作用机制保护线粒体的正常生理功能,阻断由线粒体损伤引发的ROS爆发[47-48]

3.1 仔猪断奶应激对线粒体的影响

断奶应激引起的仔猪肠道氧化损伤和代谢异常与线粒体功能障碍密切相关。研究表明,断奶应激会损伤仔猪肠道和肝脏线粒体正常功能,导致线粒体膜电位(ΔΨm)下降、呼吸链复合物活性减弱,线粒体ATP生成能力降低,同时呼吸链电子传递受阻导致mtROS生成增加并泄露,从而加重组织氧化损伤[49-51]
在正常生理状态下,线粒体呼吸链复合物(尤其是复合物Ⅰ和Ⅲ)在电子传递过程中会有微量电子泄漏,直接还原分子氧生成 ${\mathrm{O}}_{2}^{-}$·[52-53]。而在断奶应激诱导下,仔猪肠上皮细胞线粒体面临底物供应波动和钙超载的双重打击,导致电子传递链(electron transport chain,ETC)关键酶活性显著受抑,致使呼吸链功能失衡并伴随电子泄漏增加,使得mtROS生成量显著增加,远超细胞抗氧化系统的清除能力[49-50]
肠上皮细胞更新周期较短,紧密连接蛋白[如密封蛋白(claudin)、闭合蛋白(occludin)]的维持和细胞骨架的重排均是高耗能过程[54]。氧化损伤引发线粒体内膜脂质(特别是心磷脂)过氧化,破坏膜完整性和流动性,导致膜电位降低和ATP合成受阻。而能量匮乏直接导致肠上皮细胞更新受阻,肠道屏障通透性增加,病原体易感性上升,易位更加容易,并诱发肠道炎症[55-56]
线粒体DNA(mtDNA)由于缺乏组蛋白保护且紧邻ROS生成源,极易发生氧化损伤和突变[57-58]。受损的mtDNA编码出错误的呼吸链蛋白亚基,进一步加剧电子泄漏,形成“ROS升高→mtDNA受损→ETC功能恶化→ROS进一步升高”的正反馈恶性循环,最终诱导细胞凋亡[59-60]

3.2 Tau的线粒体保护效应

3.2.1 Tau改善线粒体功能的经典机制

Tau通过维持线粒体物理结构稳定、保障基因表达精准度以及维持线粒体呼吸链正常功能来发挥线粒体保护作用。现有的断奶仔猪及细胞模型研究证实,Tau能显著改善线粒体生物能学指标。Tau可以通过调节线粒体膜电位和离子通道活动,间接维持线粒体内膜的流动性和稳定性,从而抵御脂质过氧化导致的膜去极化[61]。这种物理保护作用能够抵御脂质过氧化链式反应的攻击,防止膜电位崩溃,从而保障ATP合酶(线粒体呼吸链复合物Ⅴ)的质子驱动力[62]
断奶应激常伴随着细胞内钙超载,促使线粒体通透性转换孔(mitochondrial permeability transition pore,mPTP)开放,导致细胞色素C(cytochrome C,CytC)释放并激活胱天蛋白酶(Caspase)-3/9凋亡级联反应。有研究提示,Tau可减轻钙超载和膜去极化相关的线粒体损伤[11],其可能通过影响线粒体钠离子(Na+)/钙离子(Ca2+)交换[23,63]及mPTP开放阈值发挥作用,从而阻断肠上皮细胞的内源性凋亡途径,维护肠绒毛形态。

3.2.2 Tau参与线粒体tRNA的τm5U修饰

线粒体内拥有一套独立的蛋白质合成系统,负责编码呼吸链复合物Ⅰ、Ⅲ、Ⅳ和Ⅴ中的13个关键疏水亚基[64-65]。线粒体tRNA独特的“摆动配对”规则,使其能以最少的tRNA识别所有密码子[66]
τm5U是一种发生在特定线粒体tRNA[主要是tRNALeu(UUR)和tRNALys]反密码子摆动位点(U34)的关键修饰[9]。Tau不直接参与蛋白质合成,但它是合成τm5U修饰基团(牛磺酰甲基)的绝对必需底物。Tau参与线粒体tRNA的τm5U修饰,是维持线粒体蛋白翻译精准性和呼吸链功能完整性的关键因子之一[11,67]
τm5U的合成涉及三磷酸鸟苷结合蛋白3(GTP-binding protein 3,GTPBP3)和线粒体tRNA修饰蛋白1(mitochondrial tRNA modification 1,MTO1)的催化[9,68]。断奶应激导致的摄食减少和代谢消耗可能使胞内Tau水平下降。低Tau状态会导致线粒体tRNA τm5U修饰不足、线粒体翻译效率下降和呼吸链复合物Ⅰ、Ⅳ功能受损[69]。缺乏τm5U修饰的tRNALeu(UUR)无法有效识别UUG密码子,导致核糖体停滞或亮氨酸(Leu)无法正确掺入多肽链[69]。由于线粒体呼吸链复合物Ⅰ中富含亮氨酸,这种翻译错误会导致线粒体呼吸链复合物Ⅰ组装失败或形成不稳定的“亚复合物”,影响呼吸链复合物的组装效率和功能[70]
不完整的呼吸链复合物导致线粒体氧化磷酸化效率下降,电子泄漏加剧,致使ROS生成显著增加并形成恶性循环。通过补充充足的Tau可恢复线粒体tRNA上的τm5U修饰水平,确保呼吸链复合物Ⅰ和Ⅳ核心亚基的精准翻译和组装。同时,呼吸链复合物恢复后,能够改善线粒体ATP的生成,为tRNA修饰酶的催化反应和甲基供体S-腺苷甲硫氨酸(S-adenosylmethionine,SAM)的循环提供必要的能量和物质基础,间接促进修饰过程的顺利进行。

3.2.3 Tau调节线粒体自噬

在断奶应激环境下,线粒体损伤累积容易触发过度的自噬反应,导致功能性线粒体数量不足,使细胞能量代谢紊乱进一步加剧。而Tau除了具有维持线粒体结构功能稳定和参与τm5U修饰的主要生理功能外,对线粒体自噬也具有一定的调节作用。研究表明,Tau可通过抑制过度的PTEN诱导假定激酶1(PTEN-induced putative kinase 1,PINK1)/帕金蛋白(parkin protein,Parkin)依赖性线粒体自噬维持线粒体数量,表现为微管相关蛋白1轻链3(microtubule-associated protein 1 light chain 3,LC3)-Ⅱ/Ⅰ比值下降、p62水平回升[71-72]。因此,Tau也可在一定程度上通过参与自噬调控减少由氧化损伤等引起的线粒体数量下降,维持机体的正常功能,缓解氧化损伤的发生。
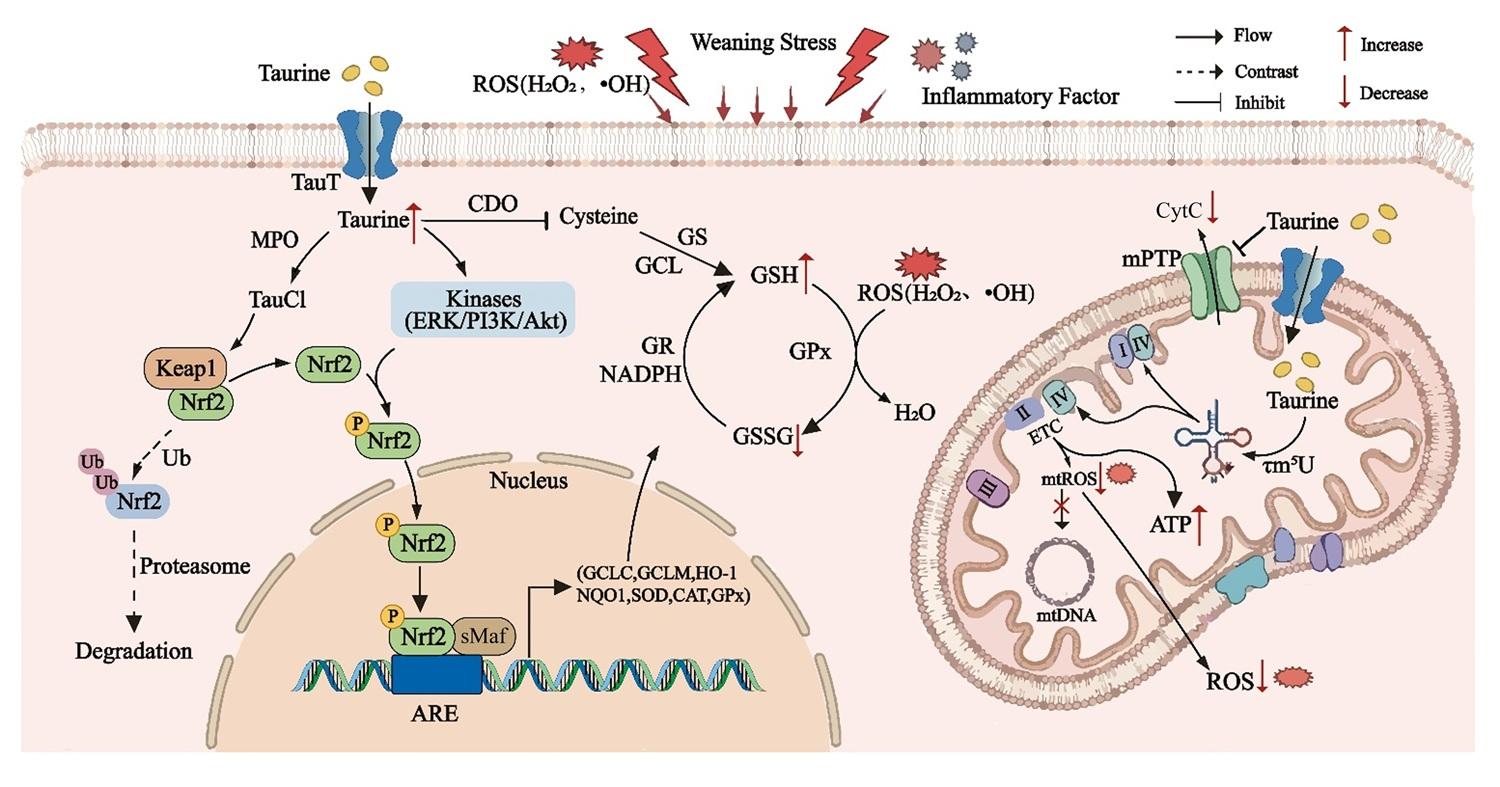
综上所述,牛磺酸缓解肠上皮细胞氧化损伤的机制如图1所示。
图1 牛磺酸缓解肠上皮细胞氧化损伤的机制

Taurine:牛磺酸;ROS:活性氧 reactive oxygen species;H2O2:过氧化氢 hydrogen peroxide;·OH:羟自由基 hydroxyl radical;Weaning Stress:断奶应激;Inflammatory Factor:炎症因子;Flow:流向;Contrast:反向;Inhibit:抑制;Increase:提高;Decrease:降低;TauT:牛磺酸转运蛋白 taurine transporter;MPO:髓过氧化物酶 myeloperoxidase;TauCl:牛磺酸氯胺 taurine chloramine;Keap1:Kelch样ECH关联蛋白1 Kelch-like ECH-associated protein 1;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;Ub:泛素 ubiquitin;Proteasome:蛋白酶体;Degradation:降解;sMaf:小Maf蛋白 small Maf protein;ARE:抗氧化反应元件 antioxidant response element;Kinases:激酶;ERK:细胞外信号调节激酶 extracellular signal-regulated kinase;PI3K:磷脂酰肌醇3-激酶 phosphatidylinositol 3-kinase;Akt:蛋白激酶B protein kinase B;Nucleus:细胞核;GCLC:谷氨酸半胱氨酸连接酶催化亚基 glutamate-cysteine ligase catalytic subunit;GCLM:谷氨酸半胱氨酸连接酶调节亚基 glutamate-cysteine ligase modifier subunit;HO-1:血红素氧合酶-1 heme oxygenase-1;NQO1:NAD(P)H醌氧化还原酶1 NAD(P)H quinone oxidoreductase 1;SOD:超氧化物歧化酶 superoxide dismutase;CAT:过氧化氢酶 catalase;GPx:谷胱甘肽过氧化物酶 glutathione peroxidase;CDO:半胱氨酸双加氧酶 cysteine dioxygenase;Cysteine:半胱氨酸;GS:谷胱甘肽合成酶 glutathione synthase;GCL:谷氨酸半胱氨酸连接酶 glutamate-cysteine ligase;GSH:谷胱甘肽glutathione;GR:谷胱甘肽还原酶 glutathione reductase;NADPH:还原型辅酶Ⅱ reduced coenzyme Ⅱ;GSSG:二硫化谷胱甘肽 glutathione disulphide;H2O:水 water;CytC:细胞色素C cytochrome C;mPTP:线粒体通透性转换孔 mitochondrial permeability transition pore;τm5U:5-牛磺酰甲基尿苷 5-taurinomethyluridine;ETC:电子传递链 electron transport chain;mtROS:线粒体活性氧 mitochondrial reactive oxygen species;mtDNA:线粒体DNA mitochondrial DNA。

Fig.1 Mechanism by which taurine alleviates oxidative damage in intestinal epithelial cells[11,18,19,23,67,73]

4 小结与展望

仔猪断奶应激的核心病理机制包括氧化损伤、肠道屏障受损、炎症反应增强以及线粒体能量代谢障碍等,是现代养猪生产中不可避免的重要健康挑战。Tau以其抗炎、抗氧化、免疫调节和促进生长发育等多种生物学功能,在断奶仔猪营养调控中展现出高度的应用价值。通过对现有研究梳理发现,Tau以多途径协同的方式参与缓解断奶仔猪氧化损伤,其主要机制可总结为三大关键途径:调控GSH/GSSG抗氧化系统、激活Nrf2/ARE信号通路以及参与线粒体tRNA τm5U修饰并维持线粒体稳态。同时,Tau能够提高断奶仔猪生长性能,改善肠道结构完整性,提高紧密连接蛋白表达,降低炎症反应,促进免疫系统功能恢复。这显示了Tau在断奶仔猪营养调控中独特的应用价值,其不仅可以作为一种抗氧化剂发挥作用,更可以作为一种核心调控因子协调细胞代谢、抗炎抗氧化和免疫调节网络,从而促进断奶仔猪生长发育。
基于现有的研究与应用基础,后续研究可聚焦于以下方向:1)Tau参与线粒体tRNA τm5U修饰的调控在猪上的直接研究,为相关理论提供直接证据;2)Tau与其他营养素的互作效应研究,不同营养素之间是否存在协同或拮抗关系;3)Tau长期补充对肠道微生态、代谢重编程和免疫系统发育的影响;4)不同品种、断奶日龄、饲喂模式和环境条件下的最佳Tau添加量研究。上述研究将为Tau的科学、安全和高效应用提供重要的理论和实践支持,使Tau有望成为养猪生产中重要的功能性营养添加剂之一。
[1]
YIN J, WU M M, XIAO H, et al. Development of an antioxidant system after early weaning in piglets[J]. Journal of Animal Science, 2014, 92(2):612-619.

[2]
WANG Y J, CHEN Y, ZHANG X Y, et al. New insights in intestinal oxidative stress damage and the health intervention effects of nutrients:a review[J]. Journal of Functional Foods, 2020, 75:104248.

[3]
UPADHAYA S D, KIM I H. The impact of weaning stress on gut health and the mechanistic aspects of several feed additives contributing to improved gut health function in weanling piglets-a review[J]. Animals, 2021, 11(8):2418.

[4]
REDMOND H P, STAPLETON P P, NEARY P, et al. Immunonutrition:the role of taurine[J]. Nutrition, 1998, 14(7/8):599-604.

[5]
BALIOU S, ADAMAKI M, IOANNOU P, et al. Protective role of taurine against oxidative stress (review)[J]. Molecular Medicine Reports, 2021, 24(2):605.

[6]
SUN JANG J, PIAO S Y, CHA Y N, et al. Taurine chloramine activates Nrf2,increases HO-1 expression and protects cells from death caused by hydrogen peroxide[J]. Journal of Clinical Biochemistry and Nutrition, 2009, 45(1):37-43.

[7]
KIM C, JANG J S, CHO M R, et al. Taurine chloramine induces heme oxygenase-1 expression via Nrf2 activation in murine macrophages[J]. International Immunopharmacology, 2010, 10(4):440-446.

[8]
ZHOU M, WU Z C, DENG D H, et al. Effects of taurine on the growth performance,diarrhea,oxidative stress and intestinal barrier function of weanling piglets[J]. Frontiers in Veterinary Science, 2024, 11:1436282.

[9]
PENG G X, ZHANG Y, WANG Q Q, et al. The human tRNA taurine modification enzyme GTPBP3 is an active GTPase linked to mitochondrial diseases[J]. Nucleic Acids Research, 2021, 49(5):2816-2834.

[10]
SUZUKI T, SUZUKI T, WADA T, et al. Taurine as a constituent of mitochondrial tRNAs:new insights into the functions of taurine and human mitochondrial diseases[J]. The EMBO Journal, 2002, 21(23):6581-6589.

[11]
JONG C J, SANDAL P, SCHAFFER S W. The role of taurine in mitochondria health:more than just an antioxidant[J]. Molecules, 2021, 26(16):4913.

[12]
FORMAN H J, ZHANG H Q, RINNA A. Glutathione:overview of its protective roles,measurement,and biosynthesis[J]. Molecular Aspects of Medicine, 2009, 30(1/2):1-12.

[13]
JONES D P. Redefining oxidative stress[J]. Antioxidants & Redox Signaling, 2006, 8(9/10):1865-1879.

[14]
HANSCHMANN E M, GODOY J R, BERNDT C, et al.Thioredoxins,glutaredoxins,and peroxiredoxins-molecular mechanisms and health significance:from cofactors to antioxidants to redox signaling[J]. Antioxidants & Redox Signaling, 2013, 19(13):1539-1605.

[15]
DEGROOTE J, MICHIELS J, CLAEYS E, et al. Changes in the pig small intestinal mucosal glutathione kinetics after weaning[J]. Journal of Animal Science, 2012,90 (Suppl.4):359-361.

[16]
崔新霞, 郝瑞荣. 断奶日龄对仔猪抗氧化功能和免疫力的影响[J]. 中国猪业, 2018, 13(3):38-41,44.

CUI X X, HAO R R. The influence of weaning age on the antioxidant function and immunity of piglets[J]. China Swine Industry, 2018, 13(3):38-41,44. (in Chinese)

[17]
LU S C. Regulation of glutathione synthesis[J]. Molecular Aspects of Medicine, 2009, 30(1/2):42-59.

[18]
SEOL S I, KANG I S, LEE J S, et al. Taurine chloramine-mediated Nrf2 activation and HO-1 induction confer protective effects in astrocytes[J]. Antioxidants, 2024, 13(2):169.

[19]
BELLA D L, KWON Y H, HIRSCHBERGER L L, et al. Post-transcriptional regulation of cysteine dioxygenase in rat liver[M]// CORTEL, HUXTABLER J, SGARAGLIG, et al.Taurine 4.Boston: Springer,2002:71-85.

[20]
GACHMAN A M, OUTLAW A C, NEWELL B, et al. Low feed intake at weaning reduces intestinal glutathione levels and promotes cysteine oxidation to taurine in pigs[J]. Journal of Animal Science, 2024,102:skae348.

[21]
FORMAN H J, MAIORINO M, URSINI F. Signaling functions of reactive oxygen species[J]. Biochemistry, 2010, 49(5):835-842.

[22]
WU K C, CUI J Y, KLAASSEN C D. Beneficial role of Nrf2 in regulating NADPH generation and consumption[J]. Toxicological Sciences, 2011, 123(2):590-600.

[23]
SCHAFFER S, KIM H W. Effects and mechanisms of taurine as a therapeutic agent[J]. Biomolecules & Therapeutics, 2018, 26(3):225-241.

[24]
WANG L G, JIANG L W, CHU Y Y, et al. Dietary taurine improves growth performance and intestine health via the GSH/GSSG antioxidant system and Nrf2/ARE signaling pathway in weaned piglets[J]. Antioxidants, 2023, 12(10):1852.

[25]
ANAND P, RAJAKUMAR D, JERAUD M, et al. Effects of taurine on glutathione peroxidase,glutathione reductase and reduced glutathione levels in rats[J]. Pakistan Journal of Biological Sciences, 2011, 14(3):219-225.

[26]
SUZUKI T, TAKAHASHI J, YAMAMOTO M. Molecular basis of the KEAP1-NRF2 signaling pathway[J]. Molecules and Cells, 2023, 46(3):133-141.

[27]
AHMED S M U, LUO L, NAMANI A, et al. Nrf2 signaling pathway:pivotal roles in inflammation[J]. Biochimica et Biophysica Acta:Molecular Basis of Disease, 2017, 1863(2):585-597.

[28]
PIOTROWSKA M, SWIERCZYNSKI M, FICHNA J, et al. The Nrf2 in the pathophysiology of the intestine:molecular mechanisms and therapeutic implications for inflammatory bowel diseases[J]. Pharmacological Research, 2021, 163:105243.

[29]
SUZUKI T, YAMAMOTO M. Molecular basis of the Keap1-Nrf2 system[J]. Free Radical Biology & Medicine, 2015, 88( Pt B):93-100.

[30]
QIN Y C, JIN C L, HU T C, et al. Early weaning inhibits intestinal stem cell expansion to disrupt the intestinal integrity of duroc piglets via regulating the Keap1/Nrf2 signaling[J]. Antioxidants, 2024, 13(10):1188.

[31]
XIAO J X, YANG M, LI K, et al. Taurine alleviates oxidative stress,inflammation,and mitochondrial apoptosis in lipopolysaccharide-induced bovine endometrial epithelial cells by activating Nrf2/HO-1 and inhibiting TLR4-MAPK/NF-κB and Caspase-3 pathways[J]. European Journal of Pharmacology, 2025, 1003:177986.

[32]
PIAO S Y, CHA Y N, KIM C. Taurine chloramine protects RAW 264.7 macrophages against hydrogen peroxide-induced apoptosis by increasing antioxidants[J]. Journal of Clinical Biochemistry and Nutrition, 2011, 49(1):50-56.

[33]
DAS J, GHOSH J, MANNA P, et al. Taurine suppresses doxorubicin-triggered oxidative stress and cardiac apoptosis in rat via up-regulation of PI3-K/Akt and inhibition of p53, p38-JNK[J]. Biochemical Pharmacology, 2011, 81(7):891-909.

[34]
JAIN A K, JAISWAL A K. GSK-3β acts upstream of Fyn kinase in regulation of nuclear export and degradation of NF-E2 related factor 2[J]. Journal of Biological Chemistry, 2007, 282(22):16502-16510.

[35]
HUO K, MA K G, GUO Q Y, et al. Perilipin 5 protects against oxygen-glucose deprivation/reoxygenation-elicited neuronal damage by inhibiting oxidative stress and inflammatory injury via the Akt-GSK-3β-Nrf2 pathway[J]. International Immunopharmacology, 2022, 108:108718.

[36]
BAEK Y Y, CHO D H, CHOE J, et al. Extracellular taurine induces angiogenesis by activating ERK-,Akt-,and FAK-dependent signal pathways[J]. European Journal of Pharmacology, 2012, 674(2/3):188-199.

[37]
SUN Q R, JIA N, YANG J, et al. Nrf2 signaling pathway mediates the antioxidative effects of taurine against corticosterone-induced cell death in human SK-N-SH cells[J]. Neurochemical Research, 2018, 43(2):276-286.

[38]
SUN Z, HUANG Z P, ZHANG D D. Phosphorylation of Nrf2 at multiple sites by MAP kinases has a limited contribution in modulating the Nrf2-dependent antioxidant response[J]. PLoS One, 2009, 4(8):e6588.

[39]
ZHU H, JIA Z Q, MISRA B R, et al. Nuclear factor E2-related factor 2-dependent myocardiac cytoprotection against oxidative and electrophilic stress[J]. Cardiovascular Toxicology, 2008, 8(2):71-85.

[40]
NA H K, SURH Y J. Oncogenic potential of Nrf2 and its principal target protein heme oxygenase-1[J]. Free Radical Biology & Medicine, 2014, 67:353-365.

[41]
李慧, 杨林. Nrf2抗氧化的分子调控机制[J]. 生物信息学, 2018, 16(1):1-6.

LI H, YANG L. Molecular regulatory mechanism of Nrf2 antioxidant[J]. China Journal of Bioinformatics, 2018, 16(1):1-6. (in Chinese)

[42]
JUNG K A, KWAK M K. The Nrf2 system as a potential target for the development of indirect antioxidants[J]. Molecules, 2010, 15(10):7266-7291.

[43]
KENSLER T W, WAKABAYASHI N, BISWAL S. Cell survival responses to environmental stresses via the Keap1-Nrf2-ARE pathway[J]. Annual Review of Pharmacology and Toxicology, 2007, 47:89-116.

[44]
MA Q. Role of nrf2 in oxidative stress and toxicity[J]. Annual Review of Pharmacology and Toxicology, 2013, 53:401-426.

[45]
ZHAO R Z, JIANG S, ZHANG L, et al. Mitochondrial electron transport chain,ROS generation and uncoupling (review)[J]. International Journal of Molecular Medicine, 2019, 44(1):3-15.

[46]
MURPHY M P. How mitochondria produce reactive oxygen species[J]. Biochemical Journal, 2009, 417(1):1-13.

[47]
YANG Y J, ZHANG Y, LIU X Y, et al. Exogenous taurine attenuates mitochondrial oxidative stress and endoplasmic reticulum stress in rat cardiomyocytes[J]. Acta Biochimica et Biophysica Sinica, 2013, 45(5):359-367.

[48]
HOMMA K, TODA E, OSADA H, et al. Taurine rescues mitochondria-related metabolic impairments in the patient-derived induced pluripotent stem cells and epithelial-mesenchymal transition in the retinal pigment epithelium[J]. Redox Biology, 2021, 41:101921.

[49]
CAO S T, WANG C C, WU H, et al. Weaning disrupts intestinal antioxidant status,impairs intestinal barrier and mitochondrial function,and triggers mitophagy in piglets[J]. Journal of Animal Science, 2018, 96(3):1073-1083.

[50]
YU C B, LUO Y X, SHEN C, et al. Effects of microbe-derived antioxidants on growth performance,hepatic oxidative stress,mitochondrial function and cell apoptosis in weaning piglets[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):128.

[51]
NOVAIS A K, MARTEL-KENNES Y, ROY C, et al. Tissue-specific profiling reveals modulation of cellular and mitochondrial oxidative stress in normal- and low-birthweight piglets throughout the peri-weaning period[J]. Animal, 2020, 14(5):1014-1024.

[52]
DRÖSE S, BRANDT U. Molecular mechanisms of superoxide production by the mitochondrial respiratory chain[J]. Advances in Experimental Medicine and Biology, 2012, 748:145-169.

[53]
WANG W, FANG H Q, GROOM L, et al. Superoxide flashes in single mitochondria[J]. Cell, 2008, 134(2):279-290.

[54]
JANSSENDUIJGHUIJSEN L M, GREFTE S, DE BOER V C J, et al. Mitochondrial ATP depletion disrupts Caco-2 monolayer integrity and internalizes claudin 7[J]. Frontiers in Physiology, 2017, 8:794.

[55]
PARADIES G, PARADIES V, RUGGIERO F M, et al. Role of cardiolipin in mitochondrial function and dynamics in health and disease: molecular and pharmacological aspects[J]. Cells, 2019, 8(7):728.

[56]
LIN P Y, STERN A, PENG H H, et al. Redox and metabolic regulation of intestinal barrier function and associated disorders[J]. International Journal of Molecular Sciences, 2022, 23(22):14463.

[57]
YAKES F M, VAN HOUTEN B. Mitochondrial DNA damage is more extensive and persists longer than nuclear DNA damage in human cells following oxidative stress[J]. Proceedings of the National Academy of Sciences, 1997, 94(2):514-519.

[58]
NADALUTTI C A, AYALA-PEÑA S, SANTOS J H. Mitochondrial DNA damage as driver of cellular outcomes[J]. American Journal of Physiology:Cell Physiology, 2022, 322(2):C136-C150.

[59]
SHIMURA T. Mitochondrial signaling pathways associated with DNA damage responses[J]. International Journal of Molecular Sciences, 2023, 24(7):6128.

[60]
KROEMER G, GALLUZZI L, BRENNER C. Mitochondrial membrane permeabilization in cell death[J]. Physiological Reviews, 2007, 87(1):99-163.

[61]
PARVEZ S, TABASSUM H, BANERJEE B D, et al. Taurine prevents tamoxifen-induced mitochondrial oxidative damage in mice[J]. Basic & Clinical Pharmacology & Toxicology, 2008, 102(4):382-387.

[62]
THIRUPATHI A, PINHO R A, BAKER J S, et al. Taurine reverses oxidative damages and restores the muscle function in overuse of exercised muscle[J]. Frontiers in Physiology, 2020, 11:582449.

[63]
TIMBRELL J A, SEABRA V, WATERFIELD C J. The in vivo and in vitro protective properties of taurine[J]. General Pharmacology, 1995, 26(3):453-462.

[64]
HÄLLBERG B M, LARSSON N G. Making proteins in the powerhouse[J]. Cell Metabolism, 2014, 20(2):226-240.

[65]
AMUNTS A, BROWN A, TOOTS J, et al. The structure of the human mitochondrial ribosome[J]. Science, 2015, 348(6230):95-98.

[66]
SUZUKI T, NAGAO A, SUZUKI T. Human mitochondrial tRNAs:biogenesis,function,structural aspects,and diseases[J]. Annual Review of Genetics, 2011, 45:299-329.

[67]
KIRINO Y, YASUKAWA T, OHTA S, et al. Codon-specific translational defect caused by a wobble modification deficiency in mutant tRNA from a human mitochondrial disease[J]. Proceedings of the National Academy of Sciences, 2004, 101(42):15070-15075.

[68]
BOUTOUAL R, MESEGUER S, VILLARROYA M, et al. Defects in the mitochondrial-tRNA modification enzymes MTO1 and GTPBP3 promote different metabolic reprogramming through a HIF-PPARγ-UCP2-AMPK axis[J]. Scientific Reports, 2018, 8(1):1163.

[69]
JONG C J, AZUMA J, SCHAFFER S. Mechanism underlying the antioxidant activity of taurine:prevention of mitochondrial oxidant production[J]. Amino Acids, 2012, 42(6):2223-2232.

[70]
SCHAFFER S W, JONG C J, ITO T, et al. Role of taurine in the pathologies of MELAS and MERRF[J]. Amino Acids, 2014, 46(1):47-56.

[71]
MENG L, LU C L, WU B, et al. Taurine antagonizes macrophages M1 polarization by mitophagy-glycolysis switch blockage via dragging SAM-PP2Ac transmethylation[J]. Frontiers in Immunology, 2021, 12:648913.

[72]
JIN S M, YOULE R J. PINK1- and parkin-mediated mitophagy at a glance[J]. Journal of Cell Science, 2012, 125(Pt 4):795-799.

[73]
CHEN T H, WANG H C, CHANG C J, et al. Mitochondrial glutathione in cellular redox homeostasis and disease manifestation[J]. International Journal of Molecular Sciences, 2024, 25(2):1314.

文章导航

/