

鹿茸是梅花鹿、马鹿等雄鹿可周期性再生的器官,在保健和疾病治疗方面具有重要应用价值。传统中医认为,鹿茸具有补肾壮阳、强筋壮骨的功效[1]。近期研究表明,鹿茸中富含多种生物活性成分,其功能也极其广泛,如修复骨骼损伤、抗癌、抗氧化、抗炎、治疗神经性疾病等[2-4],具有良好的临床应用前景。因此,提升鹿茸生产效率和产量对养鹿业、中药开发等方面均具有重要意义。鹿茸的快速生长依赖于细胞层面的持续增殖更新与定向分化。鹿茸生长中心(antler growth center,AGC)富集多种鹿茸间充质干细胞(antler mesenchymal stem cells,AnSCs),是驱动鹿茸组织形成和再生的重要细胞基础[5-6]。AGC内细胞具有自我更新和多向分化潜能,可向软骨谱系分化并促进软骨细胞外基质(extracellular matrix,ECM)的合成与沉积;随后软骨组织经历成熟与矿化,并向骨组织转化,从而推动鹿茸组织的生长[7-8]。Ba等[9]分析了生长30 d鹿茸的5个层区的基因表达模式,鉴定出了370个关键基因,包括胶原蛋白Ⅱ型α1链(collagen type Ⅱ alpha 1 chain,COL2A1)、胶原蛋白Ⅹ型α1链(collagen type Ⅹ alpha 1 chain,COL10A1)和SRY-box转录因子9(SRY-box transcription factor 9,SOX9)等成软骨标志基因以及胰岛素样生长因子-1受体(insulin-like growth factor-1 receptor,IGF1R)、成纤维细胞生长因子受体3(fibroblast growth factor receptor 3,FGFR3)和转化生长因子-β1(transforming growth factor-β1,TGF-β1)等生长因子受体基因,主要参与了AnSCs增殖分化与软骨形成,进而从分子层面证明了AnSCs成软骨分化在鹿茸生长过程中的重要性。综上所述,鹿茸AnSCs成软骨分化是鹿茸生长的关键环节。
维生素A(vitamin A,VA)是动物必需的脂溶性维生素,在维持动物正常生长发育、促进蛋白质的合成、维持骨骼生长发育以及骨细胞的分化等方面发挥重要作用[10-11]。视黄酸(retinoic acid,RA)作为维生素A代谢产生的关键活性产物,能够通过与视黄酸受体(retinoic acid receptor,RAR)、类视黄醇X受体(retinoid X receptor,RXR)结合介导转录调控,从而参与细胞增殖与分化程序,并影响ECM代谢等多个环节[12]。近年来,RA信号通路在调控干细胞命运与软骨发生的作用逐渐受到重视,Lin等[13]研究表明,外源补充RA或激活醛脱氢酶1家族成员A(aldehyde dehydrogenase 1 family member A,ALDH1A)2可增强小鼠等非再生哺乳动物耳廓损伤后的再生能力。此外,有研究表明在梅花鹿饲粮中添加维生素A可显著提高鹿茸产量[14-15]。在AnSCs成软骨分化过程中,RA信号通路可能以阶段性、剂量依赖的方式参与关键分化节点与ECM重塑过程,从而影响鹿茸软骨组织的形成及其生长。因此,本文通过概述鹿茸的生物学特性,阐述RA信号通路的组成和功能,并探讨了其对AnSCs分化及在鹿茸生长过程中的潜在作用,以期为解析RA信号通路在鹿茸生长过程中的调控机制、优化生茸期梅花鹿饲料配方及提高鹿茸产量提供理论依据。
1 鹿茸生长的细胞和组织学基础
鹿茸是哺乳动物中唯一的可完全再生器官,生长速度可达2 cm/d[16-17]。根据组织学特征,鹿茸从上至下可划分5个层区,依次为间充质层(reserve mesenchyme,RM)、前软骨区(pre-cartilage,PC)、过渡区(transition zone,TZ)、软骨区(cartilage area,CA)及矿化软骨区(mineralized cartilage,MC)(也称骨化区)[5,8]。其中,间充质层是提供鹿茸生长的重要细胞来源部位,其厚度在鹿茸生长过程中不断变薄,直至骨化消失[18]。前软骨区存在大量处于不同成软骨分化阶段的AnSCs,从上至下分化程度逐渐升高,过渡区和软骨区分别由正在发育和成熟的软骨细胞组成,而矿化软骨区则主要由成骨细胞和破骨细胞等构成。
在鹿茸生长的不同阶段及不同层区之间,细胞组成和增殖速率、ECM沉积、血管和神经分布、代谢状态等方面均存在差异,这些因素共同决定了细胞命运与组织重塑方向[19-21]。近年来,随着组学技术发展,多项多组学研究进一步揭示了鹿茸发生、发育的细胞组成图谱及其调控规律。Qin等[6]利用单细胞转录组构建了鹿茸再生关键阶段的细胞图谱,发现鹿茸再生早期存在配对相关同源框1(paired-related homeobox 1,PRRX1)阳性间充质干细胞,其可分化产生具有强再生潜能的鹿茸再生祖细胞群(antler blastema progenitor cells,ABPCs),ABPCs在体内外表现出较强自我更新与成骨-成软骨分化能力,提示其可能在驱动鹿茸再生中起着关键作用。此外,该研究还鉴定出SOX9阳性软骨祖细胞、X染色体磷酸盐调节内肽酶同源基因(phosphate regulating endopeptidase homolog X-linked,PHEX)阳性成骨细胞、胶原蛋白Ⅲ型α1链(collagen type Ⅲ alpha 1 chain,COL3A1)阳性成纤维细胞、软骨粘附素(chondroadherin,CHAD)阳性软骨细胞、蛋白酪氨酸磷酸酶受体C型(protein tyrosine phosphatase receptor type C,PTPRC)阳性免疫细胞等多种细胞类群,表明鹿茸再生是多细胞类型协同参与的复杂过程。同样,Zhang等[22]比较生长(60 d)和骨化(90 d)阶段的单细胞转录组测序发现,在鹿茸尖端除AnSCs、软骨细胞、成骨细胞外,还包括大量内皮细胞和周细胞,以及免疫细胞和破骨细胞等群体;在生长阶段,与血管、胶原蛋白组织和细胞分化相关的基因显著上调;在骨化阶段,参与成骨细胞分化、p53信号传导和ATP合成的基因被激活,揭示了鹿茸生长和骨化阶段的基因表达模式的不同。Ba等[8]进一步通过整合单细胞核转录组、单细胞核转座酶可及染色质高通量测序和空间转录组学对AGC系统解析发现,AGC中富含大量的干/祖细胞库,以高增殖状态持续提供软骨发生所需的细胞来源,并以旁分泌的方式释放分子信号物质,同时AGC可构建高度血管化的生态位以支持强血管生成和加速软骨生长,并促进成骨细胞募集,此外,鹿茸的生长涉及到混合骨化的方式,即结合软骨内骨化与直接肥厚软骨细胞到成骨细胞的转分化,其中肥厚软骨细胞可能通过PHEX+中间体产生成骨细胞。因此,从细胞和组织发育的角度考虑,鹿茸的生长是一个AnSCs成软骨分化形成软骨并再次分化成骨的过程。
在上述细胞和组织学基础上,为揭示鹿茸的生长调控机制,国内外学者围绕生长因子或激素对AnSCs的成软骨分化的影响开展了大量研究,发现胰岛素样生长因子-Ⅰ(insulin like growth factor-Ⅰ,IGF-Ⅰ)、转化生长因子-β(transforming growth factor-β,TGF-β)、睾酮、褪黑激素、营养素等可通过Wnt、IGF-Ⅰ等信号通路及软骨形成标志物COL2A1等蛋白调控AnSCs的增殖与分化,并能促进胶原蛋白Ⅱ型(collagen type Ⅱ,COL2)的生成[23-25]。值得注意的是,已有研究证实全反式视黄酸(all-trans retinoic acid,ATRA)可以促进梅花鹿鹿茸软骨细胞的增殖与分化[26],同时,在生茸期提高饲粮维生素A水平可增加梅花鹿鹿茸产量[14-15]。因此,RA信号通路与鹿茸再生、生长过程可能存在紧密联系,但具体机制仍需进一步探究。
2 RA调控鹿茸干细胞成软骨分化的机制
2.1 RA在体内的代谢途径及功能
在靶细胞内,ROH由多种醇脱氢酶催化氧化为RAL,随后RAL在醛脱氢酶(aldehyde dehydrogenase,ALDH)的作用下进一步不可逆氧化生成RA,该步骤主要由3种ALDH1A同工酶催化,包括ALDH1A1(RALDH1)、ALDH1A2(RALDH2)和ALDH1A3(RALDH3)[32]。生成的RA在细胞内与细胞视黄酸结合蛋白(cellular retinoic acid binding protein,CRABP)结合,被转运到细胞核[33]。在细胞核内,RA与RAR、RXR结合形成异源二聚体复合物,结合视黄酸反应元件(retinoic acid response elements,RAREs)从而启动或抑制靶基因转录[34-35],最终调控细胞增殖、分化和凋亡等过程。为避免RA累积产生毒性,机体需要依赖关键的细胞色素P450家族成员,包括细胞色素P450家族成员26A1(cytochrome P450 family 26 subfamily A member 1,CYP26A1)、细胞色素P450家族成员26B1(cytochrome P450 family 26 subfamily B member 1,CYP26B1)和细胞色素P450家族成员26C1(cytochrome P450 family 26 subfamily C member 1,CYP26C1)对多余的RA进行代谢降解,主要生成4-羟基-视黄酸(4-hydroxy-retinoic acid,4-OH-RA)和4-氧化-视黄酸(4-oxo-retinoic acid,4-oxo-RA)等代谢产物,进而维持RA在组织细胞中的稳态水平[36](图1)。
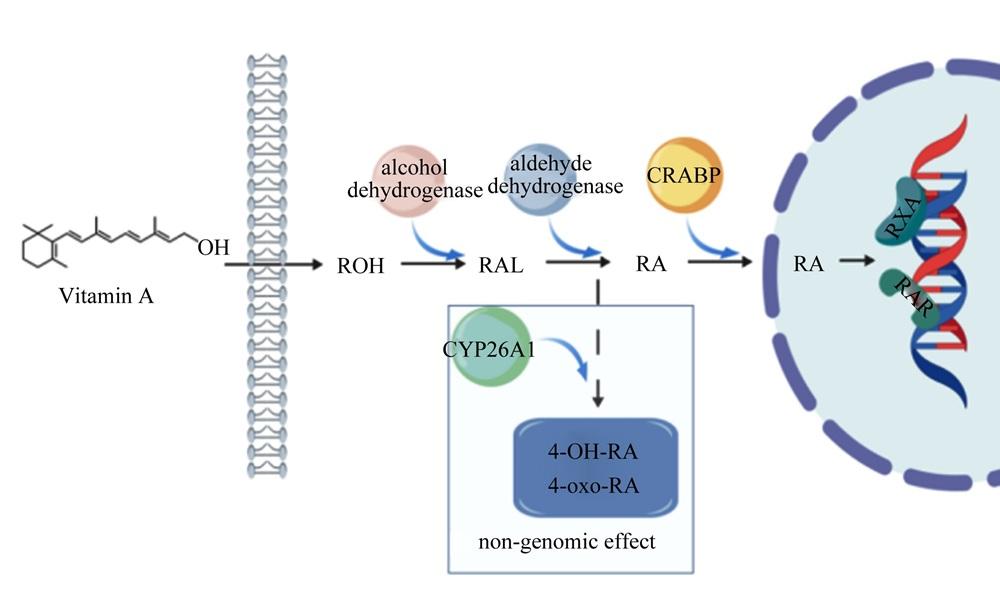
图1 RA代谢途径示意图Vitamin A:维生素A;ROH:视黄醇 retinol;RAL:视黄醛 retinaldehyde;RA:视黄酸 retinoic acid;4-OH-RA:4-羟基-视黄酸 4-hydroxy-retinoic acid;4-oxo-RA:4-氧化-视黄酸 4-oxo-retinoic acid;RAR:视黄酸受体 retinoic acid receptor;RXR:类视黄醇X受体 retinoid X receptor;CYP26A1:细胞色素P450家族成员26A1 cytochrome P450 family 26 subfamily A member 1;alcohol dehydrogenase:醇脱氢酶;aldehyde dehydrogenase:醛脱氢酶;CRABP:细胞视黄酸结合蛋白 cellular retinoic acid binding protein;non-genomic effect:非基因组效应。 Fig.1 Schematic diagram of RA metabolic pathway |
RA信号通路在各种细胞功能中起着关键作用,可调节基因转录、细胞分化及蛋白质的翻译后修饰等[37]。研究表明,阻断RA信号通路调节过程会导致多种发育障碍的发生,包括肢体和骨骼缺陷、中枢神经系统异常、眼和颅面缺陷、心脏畸形、前肠内胚层缺陷和肾发育不全等[38]。RA能够诱导人胚胎干细胞向神经前体细胞分化,提示RA在干细胞命运决定与谱系分化中具有关键作用[39]。RA信号通路在斑马鱼咽齿早期的发育过程中起调控作用,尤其是RA信号通路缺少会严重影响咽齿发育,使咽齿不能正常形成[40]。Mancini等[41]在体外人多能干细胞成软骨分化体系中,发现RAR信号通路对肢体发育至关重要,采用RAR小分子激活剂(AGN191183)并优化骨形态发生蛋白2(bone morphogenetic protein,BMP2)添加时序可增强早期软骨发生相关基因表达,并获得表达关节软骨基质蛋白的软骨样组织。Lin等[13]通过比较再生能力强(兔等)与非再生(大鼠、小鼠)耳廓损伤后的再生情况,发现ALDH1A2是影响再生能力的关键基因,通过外源注射RA或在小鼠中激活ALDH1A2基因可诱导耳廓的完全再生(包括软骨及神经组织的重建)。此外,RA信号通路通过抑制成纤维细胞生长因子8(fibroblast growth factor 8,FGF8)确保胚胎在体轴延伸的早期阶段正确发育以及激活前肢发生[42]。因此,RA信号通路的调节对组织的发育及细胞命运调控至关重要。
2.2 RA信号通路在AnSCs成软骨分化中的作用
鹿茸的整个生长过程与胚胎长骨的方式相似,涉及软骨内成骨完成发育[8]。在AnSCs成软骨分化过程中,SOX9为软骨生成的关键调节因子,可靶向调控COL2A1、胶原蛋白Ⅸ型(collagen type Ⅸ,COL9)、胶原蛋白Ⅺ型(collagen type Ⅺ,COL11)、聚集蛋白聚糖(aggrecan,ACAN)和软骨寡聚基质蛋白(cartilage oligomeric matrix protein,COMP)等软骨基质相关基因的表达,从而影响软骨形成进程[43]。根据不同机体的生理状态和靶细胞的类型,RA可以直接或通过转录因子间接调控基因转录表达[44-45]。已有研究表明,ATRA可调控软骨发育的关键基因SOX9、COL2A1等的表达[46]。同时,已有体内试验证实饲喂维生素A或向鹿角柄周围注射ATRA可以促进初角茸或再生鹿茸生长[47-48],并调控鹿茸组织中软骨细胞、成骨细胞和破骨细胞的分化[49]。Si等[14]研究表明,在梅花鹿饲粮中添加维生素A可显著提高鹿茸产量,并且参与将ROH转化为RAL、RA的相关基因显著上调,包括视黄醇脱氢酶13(retinol dehydrogenase 13,RDH13)、短链脱氢酶/还原酶家族16C成员5(short chain dehydrogenase/reductase family 16C member 5,SDR16C5)、脱氢酶/还原酶(dehydrogenase/reductase,DHRS)、ALDH1A等。此外,Zhang等[50]对鹿茸不同发育阶段差异基因进行加权基因共表达网络分析(weighted gene co-expression network analysis,WGCNA)后发现,骨化阶段相关模块的模块基因在RA受体信号通路中显著富集。Allen等[47]发现在鹿茸的各分化阶段均含有较高水平的维生素A,且在鹿茸的不同层区(茸皮、前软骨区、软骨区、骨化区)均检测出了ATRA或4-oxo-RA,同时,鹿茸间充质层、软骨区高度表达RARα、RXRβ等。以上结果表明,鹿茸各层组织中存在内源性维生素A及其代谢产物,并可能通过旁分泌的方式参与鹿茸的生长与分化调控。此外,张虹亮[26]研究发现,ATRA可活化RARα和RXRα受体进而通过BMP2-Wnt4-Runt相关转录因子1(Runt-related transcription factor 1,RUNX1)信号通路诱导鹿茸软骨细胞的分化。同样,Williams等[51]通过比较软骨和软骨肥大区等部位参与ROH合成、运输和降解的基因产物的表达发现,ALDH1A2在软骨周围高度表达,而软骨肥大区等几乎无法检测到。以上结果提示,不同细胞类型与不同发育阶段的RA反应性往往表现出显著差异[52-53]。因此,RA信号通路可参与鹿茸生长调控,但RA信号通路对AnSCs成软骨分化效率的作用机制仍需进一步研究。
3 小结与展望
本文通过论述鹿茸生长的细胞和组织学基础,归纳了RA信号通路相关受体、代谢酶与通路基因在鹿茸生长过程中的动态变化,总结了RA信号通路在调控AnSCs成软骨分化中的潜在作用。尽管现有研究提示外源ATRA或生茸期提高饲粮维生素A水平与鹿茸生长和产量改善相关,但关于RA信号通路在鹿茸发育过程中的成软骨分化、ECM重塑与成软骨向成骨转换等关键环节中的作用、关键靶基因网络和层区特异性调控规律仍缺乏系统阐明。
未来研究可围绕鹿茸不同生长阶段与不同层区的RA及其代谢产物水平变化、关键代谢节点分子及受体亚型的表达与定位开展系统分析,并结合单细胞转录组、空间转录组等组学手段,明确RA浓度变化与成软骨分化程度、ECM沉积强度及骨化程序启动之间的关系。进一步可在AnSCs及鹿茸软骨细胞体系中结合外源因子处理与基因调控等方法,对受体及关键代谢节点进行功能验证,阐明RA信号通路对SOX9和COL2A1等软骨发生关键通路、COL10A1相关肥大表型以及ECM合成与降解平衡的直接影响,并解析RA信号通路与Wnt、BMP2等与细胞分化相关信号通路之间的互作关系。以期为生茸期梅花鹿维生素A营养补充的科学应用、饲粮配方优化以及鹿茸产量与品质提升提供理论基础与试验支撑,并为梅花鹿营养调控与养殖效益提升提供新的研究思路。
 京公网安备 11010802041926号

